[S. v]
Vorwort zur dritten Auflage.
Schon knapp ein Jahr nach dem Erscheinen der 2. Auflage war diese vergriffen. Es mochte dies ein Anzeichen davon sein, daß viele Forscher und Praktiker ein solches Buch bedurften und daß es in seiner Grundanlage diesen Bedürfnissen entsprach. Darum machte ich mich sogleich an die Bearbeitung der neuen Auflage, welche ein ganzes Jahr angestrengter Arbeit in Anspruch nahm. In den 3 Jahren, welche vom Druckbeginn der 2. Auflage bis zum Abschluß der Arbeit an der 3. Auflage verstrichen waren, ist so enorm viel Neues auf dem Gebiet der Protozoenkunde publiziert worden, daß es notwendig war, jedes Kapitel erneut durchzuarbeiten. Kein Bogen blieb dabei ohne Verbesserungen, Ergänzungen und Zusätze. Dadurch ist das Buch etwas umfangreicher geworden; doch hatten alle Fachgenossen, welche das Buch benutzten, gerade in seiner Ausführlichkeit einen wesentlichen Vorzug erblickt, der es ihnen zum wirksamen Hilfsmittel bei Lehrtätigkeit und Forschung machte. Immerhin ist es meine Hoffnung, bei einer etwaigen weiteren Auflage das Buch an Umfang reduzieren zu können; denn in einigen Jahren müssen sich unsere Kenntnisse speziell der pathogenen Protozoen so weit geklärt haben, daß eine knappere Darstellung derselben möglich sein wird.
Dann können auch manche Abschnitte eingefügt werden, auf welche ich diesmal verzichtete, da ich den Umfang des Buches nicht allzusehr steigern wollte. Diesmal habe ich nur ein umfangreicheres neues Kapitel eingefügt, welches von den Artbildungs- und Vererbungsproblemen bei den Protozoen handelt. Es wird dies manchen Benützern des Buches willkommen sein.
In den allgemeinen und speziellen Kapiteln der neuen Auflage habe ich vieles geändert und, wie ich hoffe, verbessert. Ich weiß wohl, daß noch manches verbesserungsbedürftig ist, doch konnte ich nicht alle Kapitel diesmal gleichmäßig durcharbeiten. Im allgemeinen Teil wurden vor allem die wichtigen Arbeiten Hartmanns und seiner Schüler ausgiebig berücksichtigt, im speziellen Teil außer den vielen neueren Untersuchungen, die Erwähnung fanden, einige Aenderungen in der Anordnung des Stoffes vorgenommen. So wurden die Abschnitte über Parasitismus und pathogene Bedeutung einiger Gruppen praktischer untergebracht.
[S. vi]
Wenn es mir gelungen ist, die Brauchbarkeit des Buches zu erhöhen, so verdanke ich dies zum großen Teil der Hilfe und den wertvollen Ratschlägen zahlreicher Kollegen. So verdanke ich Notizen und Mitteilungen den Kollegen Dr. Dobell, Dr. Fantham, Prof. Grassi, Prof. Hartmann, Dr. Hindle, Dr. Janicki, Prof. Korschelt, Prof. Nuttall, Dr. Tyzzer, Frl. Dr. Hamburger, Frl. Dr. A. Porter, Frl. Dr. Zülzer. Durch Abbildungen und Präparate unterstützten mich Herr Dr. Epstein, Dr. Glaeser, Prof. Hartmann, Dr. Janicki, Dr. Jollos, Prof. R. May, Dr. Mulsow, Dr. Theiler, Frl. Dr. Zülzer. Für die Beschaffung schwer erreichbarer Literatur bin ich der Sleeping Sickness Commission, Col. Sir David Bruce und Dr. Dobell sehr zu Dank verpflichtet.
Ihnen allen sei dieser Dank hiermit auch öffentlich zum Ausdruck gebracht, nicht weniger meinem Assistenten Herrn Dr. O. Koehler für die gewissenhafte Hilfe bei der Korrektur und der Anfertigung der umfangreichen Register.
München, September 1911.
Franz Doflein.
[S. vii]
Vorwort zur zweiten Auflage.
Als ich die Bearbeitung der 2. Auflage meines Buchs über die „Protozoen als Parasiten und Krankheitserreger“ begann, hatte ich nicht die Absicht, es zu einem umfangreichen Werk zu gestalten. Die neue Entwicklung der Protozoenkunde wies mich aber darauf hin, dem Buch eine neue Form zu geben. Für die zahlreichen Praktiker, welche sich neuerdings der Protozoenkunde widmen, mußte es von Vorteil sein, die Ergebnisse der Forschungen über parasitische und pathogene Protozoen im Rahmen unserer allgemeinen Kenntnisse über die Naturgeschichte der Protozoen dargeboten zu erhalten. Ein solches Buch konnte dazu dienen, den Zusammenhang zwischen der praktischen und der „unpraktischen“ Protozoenkunde aufrecht zu erhalten und zu befestigen; denn ein solcher Zusammenhang ist für die praktische Arbeit und die wissenschaftliche Forschung nicht nur nützlich, sondern notwendig.
So entstand das vorliegende „Lehrbuch der Protozoenkunde“, an welches ich fast 3 Jahre mühsamer Arbeit, die allerdings öfters durch andere Pflichten und Forschungen unterbrochen war, verwandt habe. Hätte ich von vornherein den Umfang der Arbeit und vor allem die Last des Literaturstudiums klar überblickt, ich hätte die Arbeit, von der es mich immer wieder zu den Naturobjekten hinweglockte, kaum unternommen. Jetzt bin ich froh, es gewagt zu haben; denn ich empfinde es als einen großen persönlichen Gewinn, das ganze Gebiet durchgearbeitet zu haben.
Doch bin ich mir sehr der Unvollkommenheit bewußt, mit der ich die Aufgabe gelöst habe. Ich suchte zwar stets durch eigene Untersuchungen mir Erfahrungen auf den einzelnen Gebieten zu verschaffen, ob ich aber bei der Beurteilung der schwierigen Fragen stets auch nur annähernd das Richtige getroffen habe, kann erst die Zukunft lehren. Ich habe mich jedenfalls bemüht, so objektiv und vorsichtig in der Formulierung der Ergebnisse zu sein, als es meine Ueberzeugungen und mein Temperament zuließen.
Wenn Ruge in der Einleitung zu seinem Buch über die Malariakrankheiten sagt, daß es heute für einen Einzelnen ganz unmöglich ist, die Malarialiteratur zu beherrschen, so gilt dies in noch viel höherem Grad für das Gesamtgebiet der Protozoenkunde. Wenn es mir gelang, in 3 Jahren die wichtigste Literatur mit wenig Ausnahmen [S. viii]kennen zu lernen, so war dies mir sehr erleichtert durch die vorzüglichen zusammenfassenden Darstellungen einzelner Teilgebiete der Protozoenkunde durch Lühe, Laveran und Mesnil, Ruge, Nocht, Minchin u. a. Vor allem konnte ich mich aber immer wieder auf das große Protozoenwerk Bütschlis stützen, welches noch für lange Zeit die klassische Grundlage aller Protozoenforschung bilden muß. Mit Bewunderung konstatiert man immer wieder bei Benutzung dieses Werks, daß in allen Abteilungen und Abschnitten, welche damals schon genau durchgearbeitet waren, wohl Zusätze und Berichtigungen, aber keine Aenderungen der Gesamtdarstellung in den 30 Jahren intensiver Forschung notwendig geworden sind.
Da während der Bearbeitung meines Buchs die vortrefflichen technischen Leitfäden von Hartmann und Kißkalt, von Prowazek und von Braun und Lühe erschienen, so habe ich die technischen Ratschläge in einem Kapitel kurz zusammengefaßt.
Vielen habe ich für Hilfe bei der Abfassung des Buchs zu danken; durch Beschaffung schwer zu erhaltender Literatur, durch Zusendung von Präparaten oder von Zeichnungen etc. haben mich unterstützt: das Institut Pasteur in Paris, das Institut für Schiffs- und Tropenhygiene in Hamburg, Dr. Aragao (Rio), Dr. Christophers (Madras), Dr. Dalima (Rio), Dr. Dobell (Cambridge), Prof. H. Dürck (Jena), Dr. Elmassian (Paris), Dr. Goldschmidt (München), Prof. M. Gruber (München), Dr. Hartmann (Berlin), Prof. R. Hertwig (München), stud. med. Isenberg (München), Dr. Kon (Formosa), Lt.-Col. Leslie (Simla), Dr. Neresheimer (Wien), Dr. Patton (Madras), Frl. Dr. M. Plehn (München), Dr. H. Prandtl †, Dr. v. Prowazek (Hamburg), Prof. R. Roessle (München), Herr v. Stubenrauch (München), Dr. Viereck (Hamburg), Dr. Zander (Erlangen), Frl. Dr. Zülzer (Berlin), sowie der Aerztliche Verein in München mit seiner großen, schönen Bibliothek.
Allen diesen freundlichen Helfern sage ich hiermit meinen herzlichsten Dank, nicht zum wenigsten meinem Assistenten Herrn Dr. H. Balss für die sorgfältige Durchsicht der Korrekturen.
Die Originalfiguren und zahlreiche der Kopien wurden von Frl. Emma Kissling angefertigt.
Für die reichliche Ausstattung und mancherlei Entgegenkommen während der aus inneren und äußeren Gründen fast 1½ Jahre sich hinziehenden Drucklegung bin ich der Verlagsbuchhandlung sehr zu Dank verpflichtet. Es ist wohl unnötig, hervorzuheben, daß bei einem so umfangreichen Buch die neue Literatur nicht bis in die letzten Monate vor dem Erscheinen berücksichtigt sein kann. Das gilt vor allem für die ersten Abschnitte, welche zuerst gedruckt wurden. Soweit es möglich war, habe ich noch während des Druckes neu erscheinende Schriften erwähnt.
Für alle Kritik und alle Verbesserungsvorschläge werde ich dankbar sein.
München, im August 1909.
[S. ix]
Inhaltsverzeichnis.
(Es ist hier nur die allgemeine Disposition des Buches angegeben, alle Einzelheiten finden sich in den Registern am Schlusse des Buches.)
[S. 1]
I. Teil.
Allgemeine Naturgeschichte der Protozoen.
[S. 3]
Einleitung.
Protozoen.
Zwischen den niedersten Organismen, welche wir kennen, des Bakterien und ihren Verwandten einerseits und den vielzelligen Tieren (Metazoen) andererseits, steht der Stamm der Protozoen.
In ihrem gesamten Aufbau entsprechen die typischen Protozoen nur einer jener Einheiten, aus denen sich der Körper der vielzelligen Tiere wie aus vielen Bausteinen aufbaut, sie bestehen aus einer einzigen Zelle.
Als einzellige Wesen besitzen die Protozoen einen Körper, welcher aus einem Klümpchen Protoplasma besteht, jener wunderbaren Substanz, welche im ganzen Reich des Lebendigen der Träger der Eigenschaften ist, die wir als charakteristisch für das Leben ansehen: der Ernährung, der Empfindung, der Bewegung, des beschränkten Wachstums und der Fortpflanzung.
Als echte Zellen besitzen die Protozoen einen oder mehrere Zellkerne. Wie alle anderen Zellen, vermögen sie bestimmte Gebilde an ihrem Leibe hervorzubringen, welche zu den verschiedenen Lebensfunktionen notwendig sind.
Aber die Protozoen besitzen weder echte Gewebe noch echte Organe: denn Gewebe bestehen aus zahlreichen Zellen und aus deren Produkten, Organe sind aus Geweben zusammengesetzt. So besitzen sie kein Nervensystem, keinen Darm, keine Niere und keine Geschlechtsorgane.
Die eine Zelle muß alle jene wichtigen Funktionen, welche die Organe der höheren Tiere unter sich verteilt haben, mit Hilfe ihres Protoplasmas leisten.
Manche dieser Funktionen werden ohne die Ausbildung besonderer dauernder Apparate vollbracht; bei den verschiedenen Formen der Protozoen bildet aber die Zelle für verschiedene Funktionen besondere Apparate, welche Produkte der Zelle sind: wir nennen sie daher zum Unterschied von den vielzelligen Organen der Metazoen die Organellen oder Zellorgane der Protozoen.
Die Vermehrung der Protozoen erfolgt stets durch einen Teilungsvorgang, wobei Zellkern und Zellleib in zwei oder mehrere [S. 4]Teilprodukte zerfallen, wie bei den Teilungen der Metazoenzellen. Bei den meisten Gruppen sind geschlechtliche Vorgänge nachgewiesen worden, wobei ganze Protozoenindividuen sich vollkommen entsprechend den Geschlechtszellen der Metazoen verhalten.
Obwohl der Protozoenkörper nur einer einzigen Metazoenzelle entspricht, kann sein Bau die merkwürdigsten Komplikationen aufweisen, können die Lebensvorgänge, deren Sitz er ist, sehr mannigfaltig und wechselnd sein.
Es ist daher unsere nächste Aufgabe, uns über die Grundzüge des Baues und der Lebenserscheinungen bei den Protozoen zu unterrichten.
[S. 5]
I. Allgemeine Morphologie der Protozoen.
Die Protozoen sind fast sämtlich sehr kleine Organismen; während die kleinsten unter ihnen nur wenige Tausendstel eines Millimeters messen, erreichen die größten Formen einen Durchmesser von einigen Centimetern (4–5 cm). Noch etwas größere Dimensionen können Protozoenkolonien besitzen, welche sich aus zahlreichen Protozoenindividuen zusammensetzen.
Daher sind sehr viele Protozoen für das menschliche Auge gerade noch sichtbar, wenn es scharf und geübt ist; die meisten Arten sind aber nur mit dem Mikroskop wahrnehmbar, alle enthüllen nur bei Untersuchung mit starken Vergrößerungen die Geheimnisse ihres komplizierten Baues.
Die äußere Form ist ebenso vielgestaltig wie bei den Metazoen; bei manchen Formen wechselt sie während des Lebens eines Individuums rasch oder langsam, bei anderen ist sie von großer Starrheit und Dauerhaftigkeit. Es hängt dies verschiedene Verhalten hauptsächlich von der Beschaffenheit des Protoplasmas und von seinen Einschlüssen und Ausscheidungen ab.
A. Das Protoplasma der Protozoen.
Das Protoplasma betrachten wir als die Grundsubstanz aller tierischen und pflanzlichen Zellen; in ihm erblicken wir denjenigen Bestandteil, an welchen alle Erscheinungen des Lebens gebunden sind, und ohne den der Wissenschaft kein Leben auf der Erde bekannt ist.
Wir beschreiben unter dem Namen „Protoplasma“ die meist durchsichtige oder durchscheinende, zähflüssige Substanz, welche in den meisten Protozoenzellen als Hauptbestandteil leicht beobachtet werden kann. Sie ist mit Wasser nicht mischbar, stark lichtbrechend (d. h. stärker lichtbrechend als Wasser) und ist durch alkalische Reaktion ausgezeichnet. Sie erweist sich bei chemischer Analyse als ein kompliziertes Gemisch von zahlreichen organischen Substanzen, von Salzen und Wasser. Als wichtigste Bestandteile und Träger des Lebens betrachtet man die Eiweißverbindungen (Proteïne und Proteïde), welche man in den abgetöteten Tierkörpern nachweisen kann. Allerdings haben wir keine Kenntnis, ob die verschiedenen Organismen verschiedene Mischungen ähnlicher Stoffe oder verschiedene Varianten eines Stoffes von sehr komplizierter und modifizierbarer Konstitution in ihrem Protoplasma enthalten. Sicher ist nur, daß es sich nicht um einfache Eiweißkörper handelt; vielmehr ist bei verschiedenen Organismen, unter anderem gerade bei Einzelligen, nachgewiesen, daß ihr Protoplasma überhaupt kein „Eiweiß“ enthält. Der Hauptbestandteil des Protoplasmas besteht aus sehr [S. 6]komplizierten „Eiweißverbindungen“. Unter solchen Verbindungen, welche aus tierischen Geweben und Flüssigkeiten isoliert werden können, verdienen hauptsächliches Interesse Körper, welche bei der Zersetzung ein Eiweiß und einen nicht-eiweißartigen Körper liefern, die sog. Proteïde. Unter diesen sind die wichtigsten die Nukleoalbumine und Nukleoproteïde. In ersteren sind Eiweißkörper mit Pseudonukleïnen, in letzteren mit Nukleïnen verbunden. Diese beiden Gruppen von Substanzen sind phosphorhaltige Eiweißverbindungen. Nukleïne und Nukleoproteïde kommen im (abgetöteten) Zellprotoplasma und Zellkern vor. Als die ersten bekannten Zersetzungsprodukte der lebenden Substanz beanspruchen sie ein großes Interesse. Ferner sind wesentliche Bestandteile der lebenden Zellen fast stets Kohlehydrate und Fette; sehr wichtig sind für die Lebensvorgänge die als Katalysatoren wirkenden Enzyme, welche wahrscheinlich den Eiweißkörpern anzugliedern sind und die Lipoide, welche für das Zustandekommen der Strukturen im Protoplasma von besonderer Bedeutung zu sein scheinen.
Die kleinen Körper der Protozoen, welche meist mit allen möglichen sekundären Bestandteilen erfüllt sind, bieten kein sehr günstiges Material für die chemische Analyse des Protoplasmas dar. Daher sind wir über die chemische Zusammensetzung speziell des Protozoenprotoplasmas noch sehr wenig unterrichtet[1].
Wenn wir also das Protozoenprotoplasma mit demjenigen der Metazoen- und Pflanzenzellen zusammenfassen, so wird unsere Definition durch das mikroskopische Bild bestimmt, welches uns in allen lebenden Zellen eine Substanz von ähnlicher Beschaffenheit erkennen läßt.
In den meisten Protozoenzellen ist das Protoplasma weißlich bis gelblich gefärbt; nicht selten ist es von glasheller Durchsichtigkeit; doch wird diese oft getrübt durch Einlagerung verschiedener Substanzen, welche sich durch ihr Lichtbrechungsvermögen von ihm und voneinander unterscheiden. Das Protoplasma ist eine Flüssigkeit, deren Konsistenz sehr verschiedenartig sein kann; während es in manchen Fällen sehr leicht beweglich ist (eine geringe innere Reibung besitzt), kann es auch sehr zähflüssig auftreten.
Bei der Untersuchung mit starken Vergrößerungen läßt das Protoplasma eine feine Struktur erkennen, welche gerade bei Protozoenzellen besonders gut studiert werden kann. Hier ist sie sowohl am lebenden Objekt als auch am konservierten Präparat oft mit gleicher Deutlichkeit zu erkennen.
Am lebenden Protoplasma unterscheidet man ohne Schwierigkeit zwei Hauptbestandteile, von denen der eine, in der Regel stärker lichtbrechende, ein Gerüst oder Netzwerk bildet, dessen Zwischenräume von einer durchsichtigeren Masse erfüllt werden. Die Gerüstsubstanz stellt sich als ein System von Wänden dar, welche sehr dünn sind, — ihre Dicke beträgt nur den Bruchteil von 1 µ —, während die von ihnen umschlossenen Zwischenräume einen Durchmesser von ½–1 µ, oft auch etwas darüber, besitzen. Die Gerüstsubstanz wird als Gerüstplasma, die Substanz in den Zwischenräumen als Enchylema bezeichnet.
[S. 7]
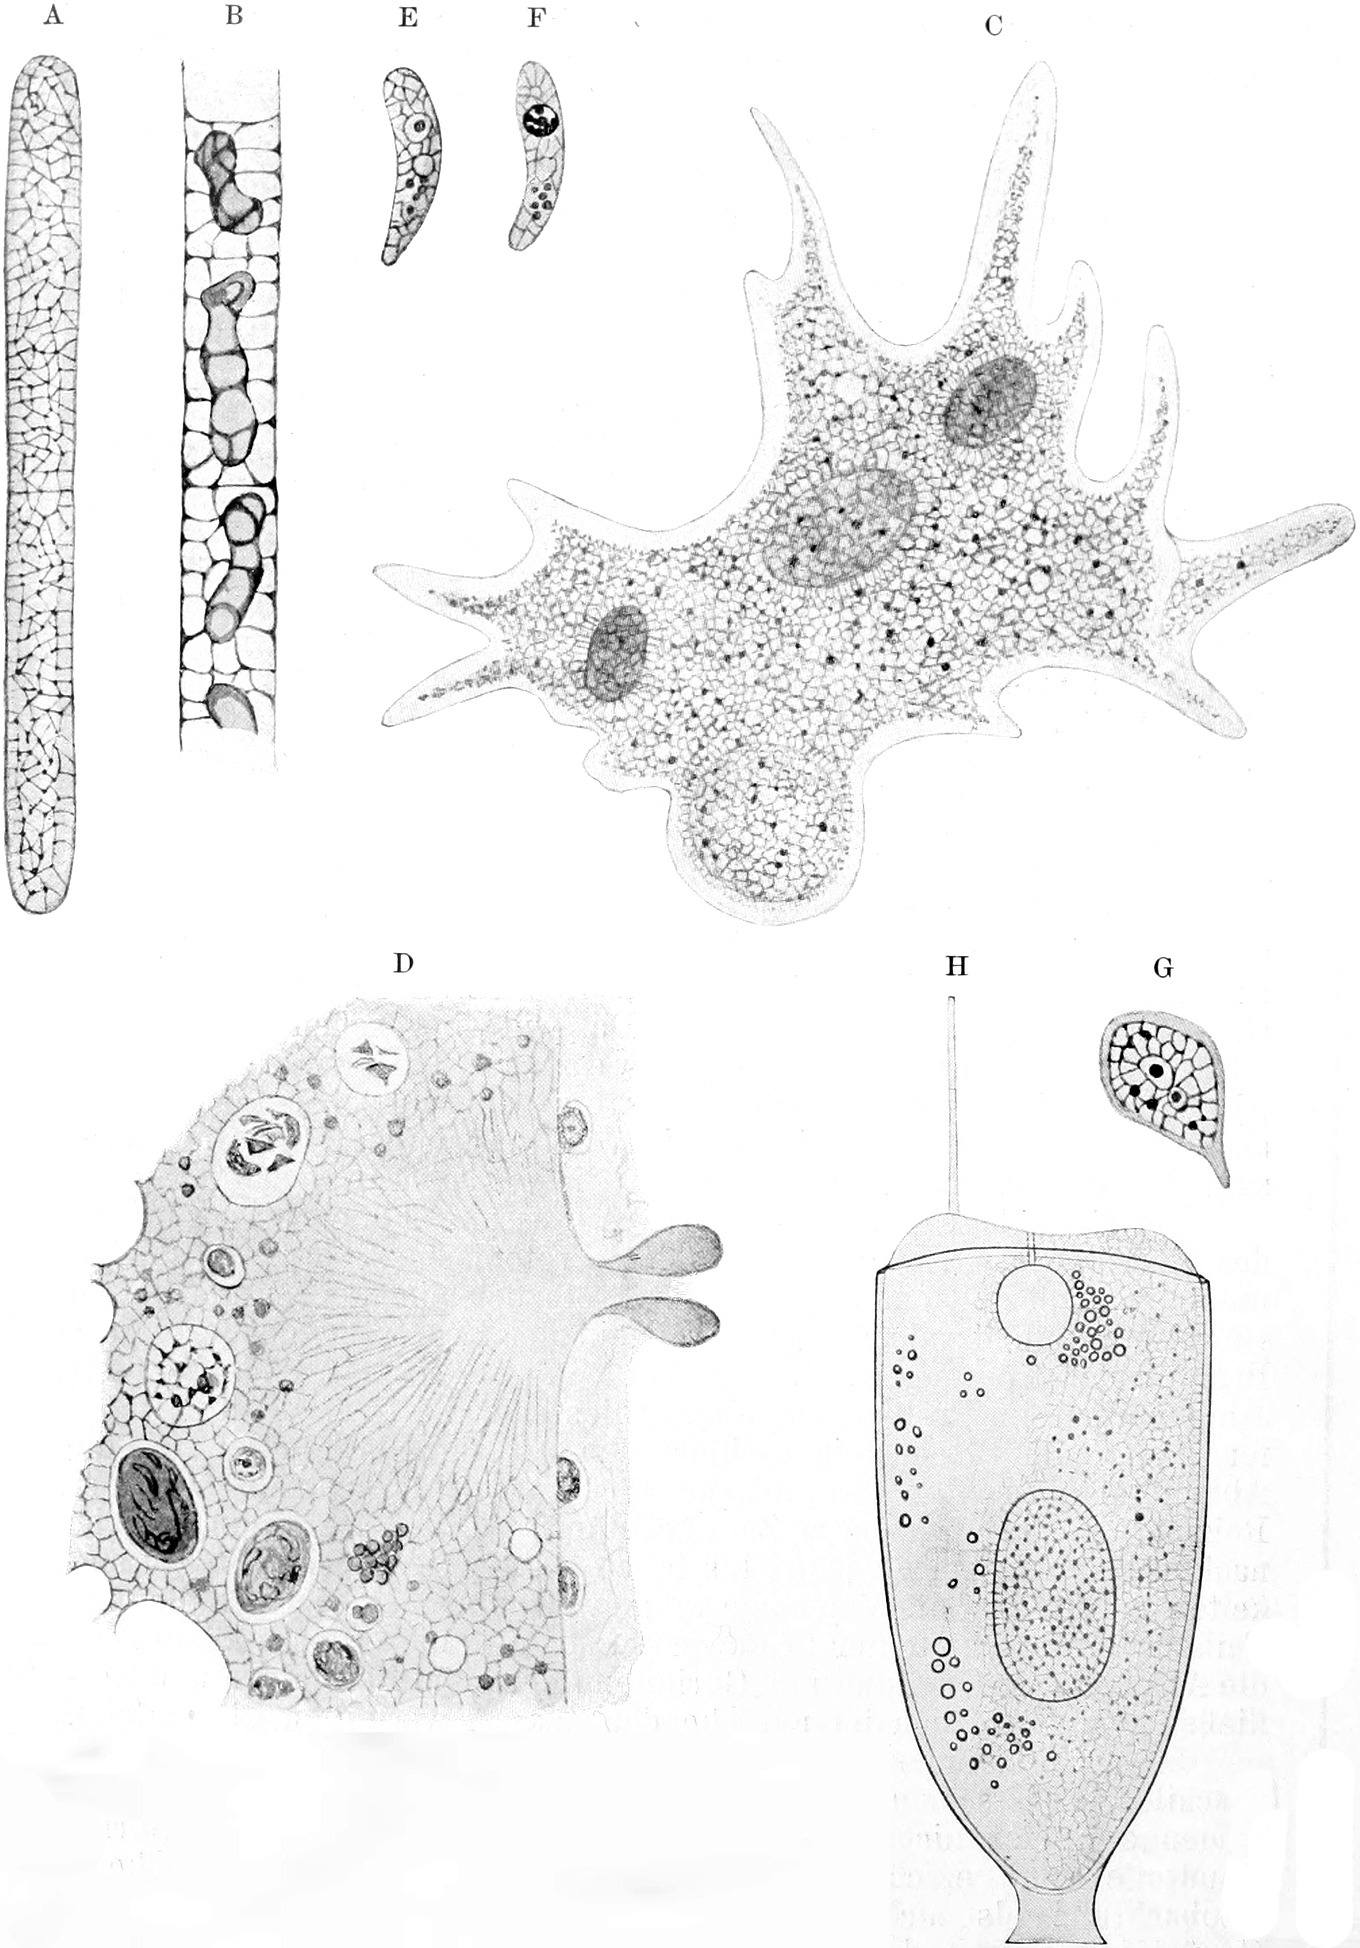
Betrachten wir einen Teil eines lebenden Protozoenkörpers, etwa das flach ausgebreitete Pseudopodium einer Amöbe (vgl. Fig. 1 C), so erkennen wir eine sehr auffallende Anordnung der Gerüstsubstanz. Die vom Enchylema erfüllten Räume werden von Wänden der Gerüstsubstanz umschlossen, welche stets in den Knotenpunkten zu je dreien zusammenstoßen, indem jede mit der benachbarten einen Winkel von 120° bildet. Wo das Plasma einen Fremdkörper oder eine Vakuole umschließt, oder wo es an die äußere Umgebung angrenzt, da stehen die Wände der Gerüstsubstanz senkrecht zur äußersten Begrenzung der Protoplasmaschicht. Es ist also jede Grenzfläche von einem sogenannten Alveolarsaum eingefaßt. Wir erhalten bei Einstellung auf eine beliebige Ebene das mikroskopische Bild eines kontinuierlichen, gesetzmäßig gebauten Netzwerks.
Genau dasselbe Bild erhalten wir, wenn wir eine Emulsion oder einen Schaum untersuchen. Nach den von Plateau und anderen Physikern untersuchten Gesetzmäßigkeiten müssen die Wände der einzelnen Schaumalveolen genau in derselben gesetzmäßigen Weise angeordnet sein, wie wir es bei den Alveolen des Protoplasmas beobachten können. Daß wir nicht in allen Fällen alle Wände der Protoplasmaalveolen erkennen und die Tropfennatur der enchylemaerfüllten Räume wahrnehmen können, liegt an der Kleinheit dieser Strukturen. Wir haben also das netzartige Bild der Gerüstsubstanz als den optischen Ausdruck eines Wabenwerkes aufzufassen.
Zu der Auffassung, daß das Protoplasma die Struktur eines mikroskopisch feinen Schaumes besitzt, ist auf Grund von Beobachtungen, Experimenten und durch die konsequente Anwendung physikalischer Gesetze zuerst Bütschli gelangt. Da, wie wir gesehen haben, seine Theorie der Schaum- oder Alveolarstruktur des Protoplasmas vollkommen mit den an Protozoen zu beobachtenden Tatsachen übereinstimmt, so ist es nicht zu verwundern, daß die Mehrzahl der Protozoenforscher Anhänger dieser Theorie sind.
Die Grundlage für Bütschlis Auffassung bildet die Annahme des flüssigen Aggregatzustandes des Protoplasmas. Für diese Annahme hat speziell das Studium der Protozoen eine Anzahl der besten Beweise gebracht; als solche werden in der Regel angegeben: 1) die Protoplasmaströmungen, die amöboide Beweglichkeit und die Verschiebbarkeit im Protoplasma eingeschlossener Partikel; 2) die Kugelform aller im Plasma eingeschlossenen Flüssigkeitsvakuolen; 3) die Abkugelung nackter Protoplasmastücke im Ruhezustand, bei der Reizung oder nach erfolgter Zerstückelung; 4) die Ausbreitung, welche nacktes Protoplasma wie jede Flüssigkeit auf der Oberfläche von Flüssigkeiten erfährt; 5) die Verschmelzung, welche man in vielen Fällen bei Teilstücken zerschnittener Protozoen erzielen kann. Hierzu käme noch die Abkugelung, Quellung und Gerinnung der beim Zerplatzen und Zerfließen von Protozoen im umgebenden Wasser verteilten Plasmateile.
Ist das Protoplasma nun eine Flüssigkeit, so sind alle die oben geschilderten Erscheinungen verständlich, wenn wir es als ein Schaumgemenge zweier nicht mischbarer Flüssigkeiten auffassen; jene Bestandteile von verschiedenem Lichtbrechungsvermögen, welche die Beobachtung als nicht miteinander mischbar nachweist, eben das Gerüstplasma und das Enchylema, sind diese beiden Flüssigkeiten. Sie lassen durch ihre gegenseitige Lagerung erkennen, daß sie beide den für Flüssigkeiten geltenden Gesetzen unterworfen sind.
[S. 8]
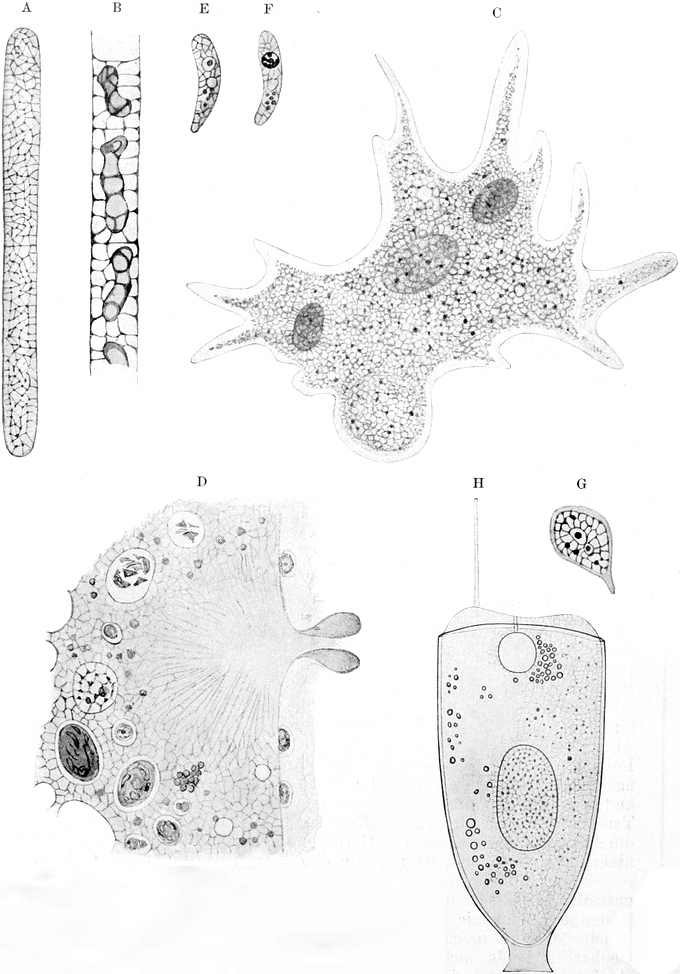
[S. 9]
Gerüstplasma und Enchylema sind also beides eiweißhaltige Flüssigkeiten, welche innig miteinander vermengt sind. Sie sind aber beide nicht als einfache chemische Körper, sondern selbst wieder als Gemenge zahlreicher Stoffe zu betrachten. Insbesondere zeigt uns die Untersuchung von Protozoen in dem Gerüstplasma zahlreiche Körnchen, Tröpfchen, Kriställchen, Trichiten etc., welche sich in den Wabenwänden bewegen können und welche infolge der Spannungsgesetze in den Knotenpunkten derselben angehäuft erscheinen.
Unter bestimmten Verhältnissen scheinen innerhalb des Gerüstplasmas fädige Differenzierungen, sowie starr kolloidale oder feste Ausscheidungen von größerer Ausdehnung aufzutreten, welche wir später bei den Stütz- und Gerüstsubstanzen zu besprechen haben werden.
Ganz anderer Art sind gewisse fadenartig erscheinende Strukturen, welche im flüssigen Protoplasma auftreten, und welche den Anlaß zu Theorien von der Struktur des Protoplasmas gaben, die viel Beifall fanden, ehe sie durch die rationelle Theorie Bütschlis verdrängt wurden. Die fädigen Strukturen im flüssigen Protoplasma haben sich bei genauerer Analyse als Reihen von in die Länge gezogenen Schaumalveolen erwiesen, welche durch optische Täuschung als Fäden erscheinen. Es sind also ebenfalls Bildungen, welche aus Flüssigkeitsgemengen bestehen, nicht feste Bestandteile der Zelle, wie es die Protoplasmatheorien von Flemming, Heidenhain u. a. erfordert hätten (vgl. Fig. 1 D).
Gerade bei der Besprechung des Protozoenprotoplasmas ist es vollkommen unnötig, die anderen Theorien über die Protoplasmastruktur zu erörtern, da von allen neueren Protozoenuntersuchern, einerlei welcher Schule sie entstammen, die Bütschlischen Angaben bestätigt worden sind.
Wahrscheinlich besitzt übrigens das Gerüstplasma selbst wieder eine feinste Struktur, welche aber jenseits der Grenze der optischen Wahrnehmbarkeit (mit unseren gegenwärtigen Hilfsmitteln) liegt.
Die große Bedeutung von Bütschlis Entdeckung der Schaumnatur des lebenden Protoplasmas liegt darin, daß sie uns eine Handhabe zur Erforschung vieler Lebenserscheinungen bietet, worauf in späteren Kapiteln zurückzukommen sein wird.
Außer der Mikrostruktur ist an dem Plasma lebender, funktionierender Protozoenzellen eine Reihe gröberer Differenzierungen in der Regel zu unterscheiden. Das schaumige Protoplasma erscheint oft zu Lamellen und Strängen ausgezogen, indem es die bei verschiedenen Lebensvorgängen im Innern des Tieres auftretenden Vakuolen umschließt. Es sind dies Tropfen von wässeriger Flüssigkeit, welche bei der Nahrungsaufnahme, Verdauung und Defäkation auftreten, oder Tropfen von Oelen oder Fetten und anderen Substanzen, bei manchen Protozoen auch Gasblasen, welche als normale oder pathologische Erscheinungen im Innern des Protoplasmas sich bilden. Im strömenden Protoplasma werden sie von der Bewegung mit fortgetragen; beim Stoffwechsel erleiden sie oft große Veränderungen ihrer Dimensionen. Solche Vakuolen, welche oft in großer Anzahl gleichzeitig das Protoplasma gewisser Protozoen erfüllen, sind stets kugelig gestaltet, und wenn sie durch Bewegungen im Tierkörper deformiert werden, oder wenn zwei oder mehrere durch Zerplatzen ihrer Wände zusammenfließen, so streben sie entsprechend den für Flüssigkeiten geltenden [S. 10]physikalischen Gesetzen, die Kugelform wieder anzunehmen. Diese tritt auch je nach der Konsistenz des Protoplasmas in kürzerer oder längerer Zeit wieder ein.
Da die Vakuolen oft in sehr großer Anzahl vorhanden sind und da sie oft auch sehr klein sein können, so sind sie nicht selten mit den Enchylemaalveolen der Mikrostruktur des Protoplasmas verwechselt und zusammengeworfen worden. Diese gröbere Struktur, die Vakuolisierung des Protoplasmas ist es auch, welche die Annahmen derjenigen Autoren verursacht hat, welche dem Protoplasma einen netzigen oder spongiösen Bau zuschrieben. Tatsächlich bietet die grobe Vakuolisierung des Protoplasmas nicht selten das Bild eines Netzwerks dar, indem besonders bei zähflüssigem, bewegtem Plasma Balken, Stränge und Lamellen die flüssigkeiterfüllten Hohlräume im Innern des Plasmakörpers durchziehen.
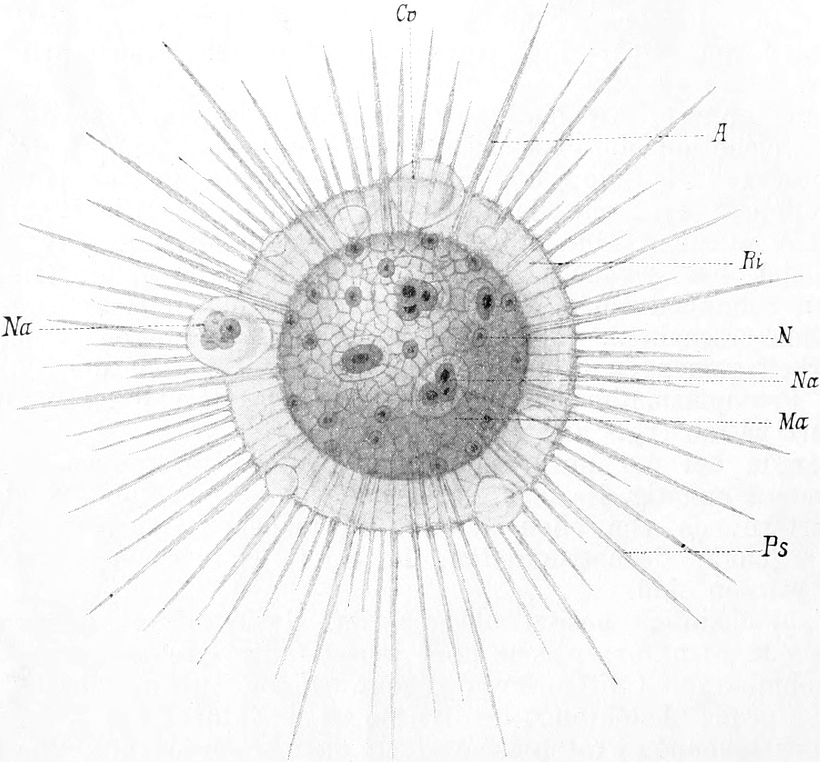
Die nächst der Vakuolisierung auffallendste Differenzierung an nackten Protoplasmakörpern ist die Trennung von Ekto- und Entoplasma. Bei sehr vielen Protozoen unterscheidet sich eine der freien Oberfläche zunächst liegende Schicht von wechselnder, aber meist geringer Dicke durch das abweichende optische Verhalten von den zentralen Teilen des Körperplasmas. Diese äußere Schicht, das Ektoplasma, ist durchsichtiger und gleichmäßiger strukturiert als das Entoplasma. Es ist hyalin, arm an Einschlüssen, ärmer jedenfalls [S. 11]als das Entoplasma an stark lichtbrechenden Körnern, Tröpfchen etc. Auch sind in ihm in der Regel keine oder wenig Vakuolen enthalten. Seine Konsistenz ist eine zähere, als diejenige des Entoplasmas. Das Entoplasma ist in der Regel von Vakuolen und Einschlüssen der verschiedensten Art erfüllt und infolgedessen stärker lichtbrechend als das Ektoplasma. Es ist meist viel flüssiger als das letztere.
Die Grenzen zwischen Ektoplasma und Entoplasma sind weder scharf noch dauernd. Ektoplasma kann in das Entoplasma aufgenommen werden und kann sich aus demselben ohne weiteres wieder herausdifferenzieren. Weitere Einzelheiten sind weiter unten bei der Besprechung der Pseudopodienbildung erörtert.
Wir nennen das Protoplasma einer Zelle „nackt“, wenn keine besondere Hüllschicht (siehe unten) seine äußere Oberfläche überzieht. In jedem Fall kommt der äußersten Oberflächenschicht eine besondere Beschaffenheit zu, auch wo wir sie nicht mit unseren Hilfsmitteln deutlich unterscheiden können, und wo sie so weich und nachgiebig ist, daß sie dem Protoplasma jede Formänderung gestattet. Nach den Untersuchungen von Overton besteht diese Plasmahaut aus lipoïden Substanzen, was sich aus ihrem Verhalten bei der Diffusion von Stoffen aus der Umgebung in den Plasmaleib ergibt. Nach neueren Untersuchungen besteht sie aber nicht nur aus Lipoïden, sondern besitzt eine kompliziertere Zusammensetzung. Darüber wird in dem Kapitel über die Physiologie der Protozoen noch einiges zu erörtern sein.
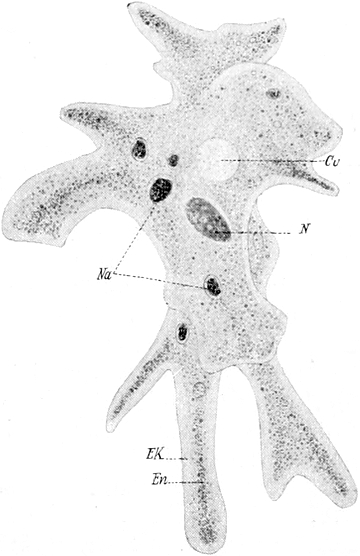
B. Zellkerne und Kernsubstanzen der Protozoen.
Die wichtigste Differenzierung der Protozoenzelle ist der Zellkern. Fassen wir ein typisches, einkerniges Protozoon ins Auge, so können wir im Innern des Körperplasmas den Zellkern als ein von allen Seiten abgeschlossenes, stark lichtbrechendes Gebilde erkennen, welches durch seine Struktur und seine chemische Zusammensetzung sich vom Körperplasma deutlich unterscheidet. Während der Kern in den starrer gebauten Protozoen mit wenig beweglichem Protoplasma meist eine Normallagerung im Zellinnern einnimmt, wird er in Zellen mit strömendem Protoplasma von der Strömung im Zellinnern herumgeschleppt, und so kann er bei solchen Formen in den verschiedensten Regionen des Entoplasmas gefunden werden.
Während wir in den Gewebezellen der Metazoen eine relativ sehr geringe Variabilität der Form und Struktur ruhender Kerne nachweisen können, finden wir im Gegensatz hierzu bei den Protozoen eine außerordentlich große Mannigfaltigkeit.
[S. 12]
I. Die stoffliche Zusammensetzung der Protozoenkerne.
Im großen und ganzen können wir bei den Protozoen zwei Haupttypen von Kernen unterscheiden, bläschenförmige und massige Kerne. Die ersteren sind gewöhnlich kugelig gestaltet, lassen im Innern eine stärker lichtbrechende Substanz erkennen, welche in Strängen oder in Form eines Netzwerkes angeordnet ist und welche mit einer schwächer lichtbrechenden Flüssigkeit erfüllte Hohlräume umschließt. Die Kerngerüstsubstanz bildet auch die äußere Hülle des Kernes, welche in manchen Fällen die Ausbildung einer Membran zeigen kann. Innerhalb der Kerngerüstsubstanz finden sich regelmäßig sehr stark lichtbrechende Körner, Stränge oder Kugeln eingelagert.
Die massigen Kerne haben einen im Prinzip ähnlichen Bau. Nur ist bei ihnen die Gerüstsubstanz viel dichter gefügt, es sind keine großen Vakuolen vorhanden, und die stark lichtbrechenden Körner sind meist sehr klein, erfüllen aber in sehr großer Menge und dichter Lagerung das ganze Innere des Kernes.
Die bläschenförmigen Kerne sind in sehr vielen Fällen offenbar vollkommen aus flüssigen Bestandteilen zusammengesetzt. Dem entspricht ihre kugelige Form, die Form und Anordnung der Vakuolen in ihrem Innern, sowie die Deformation, welche sie natürlicherweise oder experimentell unter bestimmten Verhältnissen erfahren. In manchen Fällen legen die Befunde die Annahme einer starr kolloidalen Kernmembran nahe.
Eine solche oder Gerüstbildungen anderer Art können es auch sein, welche den massigen Kernen gestatten, in außerordentlich mannigfaltigen, oft strangförmig ausgezogenen und vielfach verästelten Formen aufzutreten. Doch weisen die Zerfließungserscheinungen und die Annahme der Kugelform bei Ruhezuständen in der Cyste auch bei solchen Formen auf zähflüssige Beschaffenheit des Gesamtkernes hin.
Die Gerüstsubstanz der Kerne zeigt denselben schaumigen Aufbau wie das Zellprotoplasma. Manchmal läßt sich eine alveoläre Struktur, welche den ganzen Kern erfüllt, am lebenden Objekt erkennen. In der Mehrzahl der Fälle ist sie aber wegen der Schwierigkeit der Untersuchung erst am konservierten Tier nachweisbar.
Während nämlich am lebenden Protozoon der Kern oft nur mit Mühe erkennbar ist, da er sich vom umgebenden Protoplasma vielfach kaum abhebt, haben wir es in der Hand, durch eine durch reichliche Erfahrung erprobte Abtötungstechnik die Gegensätze im Lichtbrechungsvermögen der einzelnen Substanzen ganz erheblich zu steigern. Durch Zusatz von gewissen Säuren (Essigsäure, Chromsäuregemische, Pikrinsäuregemische) oder von giftigen Salzen[2] zu dem Wasser, in welchem die Protozoen untersucht werden, bringt man Protoplasma und Kernsubstanzen zur Gerinnung. Hierbei wird die Verschiedenheit der einzelnen Substanzen gewöhnlich für unser Auge sehr viel auffälliger.
Um eine genauere Kenntnis vom Wesen der einzelnen Bestandteile des Zellleibes und des Kernes zu erhalten, wendet man außerdem mikrochemische Reaktionen und Färbungsmethoden an.
[S. 13]
Die mikrochemischen Reaktionen haben vor allem Erfolge bei der Untersuchung sekundärer Bestandteile des Zellleibes gezeitigt: so bei der Analyse von anorganischen Abscheidungen (z. B. Skeletten) und von organischen Exkretionskristallen der Protozoen. Die Untersuchung der eigentlichen lebenden Bestandteile ist infolge der geringen Kenntnisse über die chemische Natur der sie zusammensetzenden organischen Verbindungen zurückgeblieben. Immerhin haben die mikrochemischen Reaktionen gezeigt, daß die morphologisch unterscheidbaren Bestandteile der lebenden Substanzen auch in ihrer chemischen Zusammensetzung voneinander abweichen müssen. Die Methoden, welche zur Differenzierung der einzelnen Substanzen angewandt wurden, bestanden in der Untersuchung ihres Verhaltens gegenüber Säuren. Alkalien, Salzlösungen etc., und zwar ihres morphologisch sich darstellenden Verhaltens im mikroskopischen Bilde. Dadurch ergab sich weder eine Analyse der Substanzen, noch eine Vereinigung mit bekannten Komponenten zu neuen Substanzen von bekannten Eigenschaften, sondern es resultierte nur eine Charakterisierung der einzelnen Substanzen nach ihren Fällungs-, Löslichkeitsreaktionen etc. Dabei verhält sich der Kern in der Hauptmasse seiner Substanzen abweichend vom Körperplasma.
Als besonders charakteristische mikrochemische Reaktion hat sich das Verhalten gegenüber der künstlichen Verdauung erwiesen. Bei künstlicher Magensaftverdauung (Verdauung in Pepsin-Salzsäure), ebenso bei Einwirkung von Trypsin, lösen sich alle geformten Kernbestandteile bis auf jene stärkst lichtbrechenden Körper (Chromatingebilde), welche wir oben als auffallendste Kernbestandteile erwähnten. Dagegen werden diese letzteren in konzentrierten Mineralsäuren, in verdünnten Alkalien, Calciumkarbonat und Natriumphosphat aufgelöst. Umgekehrt werden gewisse ebenfalls stark lichtbrechende Substanzen, welche besonders häufig in Kugelform in den Kernen enthalten sind (Nukleolen), von pepsin- oder trypsinhaltigem Verdauungssaft aufgelöst; dagegen bleiben sie in Kalilauge, 1–3-proz. Essigsäure etc. ungelöst.
Da nun Miescher nachgewiesen hat, daß die Nukleïne im Gegensatz zu anderen Proteïnen und Proteïden in Magensaft unlöslich sind, da ferner Nukleïne den Hauptbestandteil der fast nur aus Kernsubstanz bestehenden Köpfe von Spermatozoen bilden, so vermutet man, daß die Inhaltskörper der Kerne aus Nukleïnen bestehen.
Da gerade bei den Protozoen die mikrochemischen Reaktionen von Protoplasma und Kern wenig methodische Bearbeitung gefunden haben, mögen diese kurzen Bemerkungen genügen, welche zeigen sollen, daß wir von einer chemischen Analyse der für das Leben wichtigsten Substanzen weit entfernt sind, daß uns aber diese Reaktionen bei der Unterscheidung der einzelnen Substanzen sehr wesentlich unterstützen. Eingehendere Forschungen dieser Art, gerade an Protozoen, wären sehr erwünscht und versprechen wichtige Aufschlüsse.
Die Färbungsmethoden sind in ihrer großen Mehrzahl nicht als mikrochemische Reaktionen zu betrachten. Indem die einzelnen Bestandteile von Zelle und Protoplasma je nach der Dichtigkeit ihrer Struktur einen aufgenommenen Farbstoff verschieden intensiv zurückhalten, wird durch die Färbung die Verschiedenheit der auch in ungefärbtem Zustand unterscheidbaren Bestandteile für unser Auge [S. 14]verstärkt. Doch scheint eine Anzahl von Färbungen immerhin auf chemischen Prozessen zu beruhen.
Wahrscheinlich auf rein physikalischer Grundlage beruht die Färbung mit Boraxkarmin, Delafieldschem Hämatoxylin, Heidenhainschem Eisenhämatoxylin und vielen Anilinfarbstoffen.
Da diejenigen Kernbestandteile, in denen man nach den mikrochemischen Reaktionen Nukleïne vermutet, sich mit saurer Lösung von Methylgrün stark grün färben, da ferner Miescher nachgewiesen hat, daß dieser Farbstoff mit Nukleïnsäure unlösliche grüne Salze bildet, so hat man Methylgrün für ein spezifisches Reagens auf Nukleïne gehalten. Doch ist die Reaktion nicht sicher und in vielen Fällen sehr schwach.
Ebenso ist die von List angegebene Berlinerblau-Reaktion, welche die mit Methylgrün nicht färbbaren geformten Kernbestandteile zum Teil differenzieren sollte, eine bei Protozoen noch nicht viel versuchte und erprobte Reaktion.
Es scheint mir auch keine berechtigte Forderung zu sein, daß wir in jedem Moment die gleichen morphologischen Bestandteile durch die gleiche chemische Reaktion als identisch nachweisen können. Vielmehr scheint mir die Hypothese Berechtigung zu haben, daß die verschiedenartigen Bestandteile von Plasma und Kern, auf deren Wechselwirkung die Lebenserscheinungen beruhen, einem unablässigen Wechsel unterworfen sind. Chemische Reaktionen, Ortswechsel der einzelnen Substanzen, Austausch von solchen, Aenderung des Mischungsverhältnisses und damit der relativen Dichte müssen unablässig vor sich gehen. Damit stimmt die Beobachtung überein, daß die gleichen morphologischen Bestandteile des Protozoenkernes sich in verschiedenen Entwicklungsstadien des gleichen Tieres in chemischer und färberischer Reaktion verschieden verhalten können, und daß umgekehrt verschiedenartige Bestandteile zu Zeiten gleichartig reagieren können.
Immerhin können wir mit Hilfe der mikrochemischen Reaktionen und der Färbungen die nämlichen drei Substanzen am Protozoenkern unterscheiden, welche wir am lebenden und am abgetöteten aber ungefärbten Objekt schon erkannten, ja wir sind sogar imstande, festzustellen, daß in den stärkst lichtbrechenden Bestandteilen der Kerne zwei verschiedene, fast stets gleichzeitig vorkommende Substanzen auseinander gehalten werden müssen.
Wir unterscheiden demnach an den Protozoenkernen folgende regelmäßig wiederkehrende Bestandteile, wobei wir nochmals hervorheben, daß es sich nur um morphologisch definierte Bestandteile handelt[3]:
[S. 15]
1) Die Kerngerüstsubstanz oder das Achromatin gleicht in vieler Beziehung der Gerüstsubstanz des Zellprotoplasmas. Aussehen in lebendem und konserviertem Zustand, mikrochemische Reaktionen und Färbbarkeit sind sehr ähnlich. Sie gerinnt wie diese bei der Behandlung mit den üblichen Konservierungsmitteln. Sie wird bei Pepsinsalzsäureverdauung rasch gelöst. Die Gerüstsubstanz der Kerne speichert die üblichen (basischen) Kernfarbstoffe in sehr geringem Grade, vielfach gar nicht, daher die Bezeichnung als Achromatin: dagegen färbt sie sich gut mit sauren Farbstoffen.
Von der Gerüstsubstanz des Zellprotoplasmas ist diejenige des Kernes in der Regel in auffälliger Weise durch den Mangel aller gröberen Einschlüsse von Nahrungspartikeln, Stoffwechselgranulationen, Fetttropfen, Exkretkristallen etc. unterschieden.
Kernmembran. Bei vielen Protozoenkernen kann man erkennen, daß Kernmembran und Kerngerüstsubstanz kontinuierlich ineinander übergehen und sich im gesamten Verhalten kaum voneinander unterscheiden. In anderen Fällen sehen wir die an der äußersten Peripherie sehr deutlich sich unterscheidende Substanz der Kernmembran nach innen graduell ganz allmählich in die Substanz des Kerngerüstes übergehen, so daß nach außen wohl eine scharfe Grenze existiert, nach innen aber nicht. Und schließlich gibt es doppeltkonturierte Kernmembranen, welche, nach innen und außen scharf abgegrenzt, sich in ihrer ganzen Substanz und wohl auch in ihrem Aggregatzustand von der Kerngerüstsubstanz deutlich unterscheiden. — Wir sind also wohl zu der Annahme berechtigt, daß ähnliche Verhältnisse vorliegen, wie wir sie früher (S. 11) für die äußersten Schichten des Protoplasmaleibes der Protozoenzellen kennen lernten und wie wir sie später noch im einzelnen zu erörtern haben werden: daß nämlich sowohl Fälle von vollständigem Mangel einer eigentlichen Membran, als auch Fälle von sehr ausgesprochener Membranbildung vorkommen, daß diese Extreme aber durch alle Uebergänge miteinander verbunden sind.
2) Das Kernenchylema oder der Kernsaft ist sowohl in den feinen Alveolarräumen der Gerüstsubstanz, als auch in den größeren Vakuolen, welche diese umschließen kann, enthalten. Es ist eine meist klare, farblose, wässerige Flüssigkeit, welche bei der Behandlung mit den üblichen Konservierungsmitteln nicht gerinnt und deren Bestandteile bei der Behandlung mit Wasser oder schwachem Alkohol in der Regel ausgezogen werden.
Somit stellen sich die von ihm erfüllt gewesenen Räume im regelrecht konservierten Präparat als ungefärbte Räume dar, welche von dem Medium erfüllt sind, in welchem man das Objekt untersucht.
Bei manchen Konservierungsmethoden treten aber auch im Kernenchylema Fällungen in Form von Granulationen auf, welche zum Teil auch Farbstoffe annehmen.
3) Das Chromatin kann in den Protozoenkernen in sehr verschiedenen Formen und Mengenverhältnissen enthalten sein. In der Regel stellt es die Hauptmasse der schon an den lebenden oder frisch abgetöteten Kernen sichtbaren, stärkst lichtbrechenden Körper dar. Das Chromatin unterscheidet sich von den übrigen Kernbestandteilen durch seine dichte Beschaffenheit, welche es bald als außerordentlich zähflüssig, bald als kolloidal starr erscheinen läßt. Die aus ihm bestehenden Körper färben sich am stärksten in den Lösungen der üblichen (basischen) Kernfarbstoffe und halten bei der Einwirkung von Flüssigkeiten, in denen [S. 16]diese Farbstoffe löslich sind, sie am zähesten zurück. Sie werden bei Behandlung mit Pepsinsalzsäure sowie mit trypsinhaltigen Lösungen nicht verdaut und bleiben nach längerer Einwirkung oft als einzige Reste der Organismen übrig. Dagegen lösen sie sich in Alkalien rasch auf.
Während manche Protozoenkerne sehr chromatinarm sind, z. B. die einiger Thalamophoren, sind andere sehr chromatinreich, z. B. die Hauptkerne der Infusorien. Im allgemeinen sind bläschenförmige Kerne relativ chromatinarm, massige Kerne stets sehr chromatinreich.
In den massigen Kernen kommt das Chromatin in Form von kleinen Kugeln und Granulationen vor, welche in der Größe nicht sehr voneinander abweichen und welche in den Knotenpunkten der Gerüstsubstanzalveolen liegen. Dadurch erhalten solche Kerne ein sehr charakteristisches, fein punktiertes Aussehen (vgl. Fig. 4 und 5).
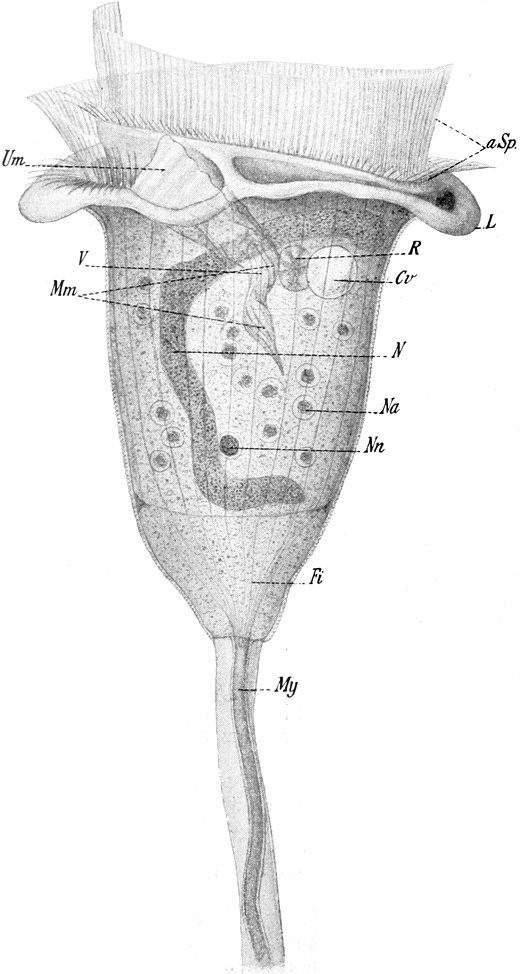
Der Bau der bläschenförmigen Kerne kann sehr verschiedenartig sein. Weit verbreitet ist der Typus des Bläschens mit großer Zentralkugel. Das kugelige Bläschen (s. Fig. 6) besitzt außer einer der Kernwand anliegenden Gerüstsubstanz und einer Anzahl meist relativ großer Kernsaftvakuolen Chromatin in zweierlei Anordnung: 1) fein verteilt in der wandständigen Gerüstsubstanz und 2) massig angehäuft in einem großen kugeligen Klumpen, welcher meist in der Mitte des Kernbläschens im Kernsaft schwebt, mit der wandständigen Gerüstsubstanz durch mehrere Stränge dieser Substanz verbunden. Statt als Zentralkugel kann die färbbare Substanz auch in Form eines verästelten oder zerteilten Gebildes vorhanden sein. Es werden auch Formen des bläschenförmigen [S. 17]Kerns beschrieben, bei denen die Zentralkugel in einer von Gerüstsubstanz freien Kernsaftvakuole schweben soll.
In anderen Fällen ist ein verschieden geformtes Netzwerk von Gerüstsubstanz vorhanden, welches größere und kleinere Kernsaftvakuolen umschließt und in welchem das Chromatin in verschieden geformten und verschieden großen Brocken oder Strängen angeordnet ist. Seltener sind die Klumpen der färbbaren Substanz wandständig, während das Innere des Kernes von Gerüstsubstanz und Kernsaft erfüllt ist.
4) Die Nukleolarsubstanz unterscheidet sich vom Chromatin durch das Verhalten gegen Kernfarbstoffe und die mikrochemischen Reaktionen. Sie färbt sich zwar ebenfalls mit ersteren, aber in schwächerem Maße, und nimmt stets einen deutlich abweichenden Farbton an; sie färbt sich stark mit sauren Farbstoffen. Bei künstlicher Magensaftverdauung quillt sie auf und wird gelöst, während das Chromatin erhalten bleibt. In Alkalien ist sie schwer löslich, jedenfalls viel schwerer als das Chromatin.
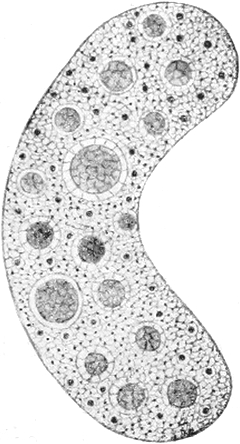
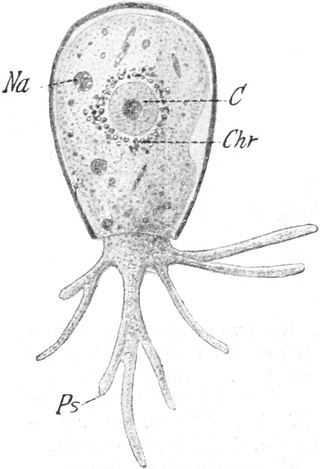
In den Kernen der Protozoen tritt die Nukleolarsubstanz entweder in Form gesonderter Kugeln und Brocken auf, welche im Kerninnern an verschiedenen Stellen der Gerüstsubstanz eingelagert sein können (Fig. 5), oder — und das ist die häufigere Erscheinung — ist mit dem Chromatin eng verbunden und zeigt infolgedessen die gleiche Anordnung wie dieses. Die Nukleolarsubstanz bildet dann ein Gerüst, in welches die Körnchen des Chromatins eingelagert sind, und welches selbst auf dem Kerngerüst ausgebreitet ist. Ist die Nukleolarsubstanz in gesonderten Gebilden vorhanden, so bezeichnet man diese als echte Nucleoli; bestehen die größeren färbbaren [S. 18]Einschlüsse des Kernes sowohl aus Nukleolarsubstanz als auch aus Chromatin, so nennt man sie Amphinucleoli.
Bei gewissen Zuständen der Zelle können die beiden färbbaren Substanzen, Chromatin und Nukleolarsubstanz, sich sehr deutlich voneinander sondern.
II. Der morphologische Aufbau der Protozoenkerne.
Infolge ihrer verschiedenartigen äußeren Umrisse und infolge der verschiedenartigen räumlichen Verteilung und Anordnung der sie aufbauenden Substanzen bieten die Kerne der Protozoen sehr mannigfache Bilder dar. Die im nachfolgenden Abschnitt gekennzeichneten Typen können die Mannigfaltigkeit des Kernbaues, welche bei den Protozoen eine außerordentlich große ist, bei weitem nicht erschöpfen. Sie geben uns nur die einheitliche Grundlage und die Terminologie für die in den späteren Kapiteln folgenden Einzelbeschreibungen. Die Verschiedenartigkeit im Kernbau ist bei den einzelnen Abteilungen der Protozoen so groß, daß es sich als geeigneter erwies, die wichtigsten Kernformen im speziellen Teil im Zusammenhang mit der Darstellung der Gesamtorganisation der betreffenden Formen und mit den Fortpflanzungserscheinungen zu behandeln. Das empfahl sich auch deswegen, weil viele Kerntypen noch zu wenig erforscht sind, um eine vollkommene Homologisierung ihrer Bestandteile mit denjenigen der gut erforschten Formen zu erlauben.
A. Die massigen Kerne.
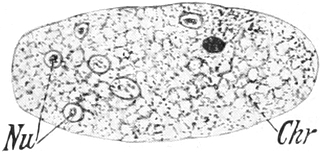
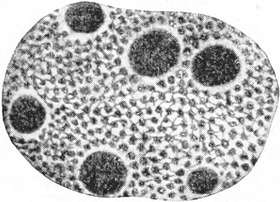
Die massigen Kerne treten auf entweder als kompakte Scheiben von kreisförmigem, ovalem oder leicht gelapptem Umriß oder sie können kugelförmig, oval, ellipsoidisch sein; nicht selten finden sich bei den Ciliophoren wurst-, band-, strangförmige, hirschgeweihartig oder baumähnlich verzweigte Kerne. Sie zeichnen sich alle fast stets durch die gleichmäßige, dichte Anordnung der Substanzen in ihrem Innern aus (Fig. 8). Zwischen dem fein verteilten, auf dem Kerngerüst gleichmäßig angeordneten Chromatin finden sich bisweilen Nukleolen von verschiedener Form und Größe in regelloser Anordnung (Fig. 9). Solche Kerne erscheinen meist mit Kernfarbstoffen sehr gleichmäßig stark gefärbt, wobei besonders bei den verästelten Kernen nicht selten die peripheren Partien sich intensiver färben als die zentralen.
Oft zeigt sich die äußerste Hüllschicht der Kerne relativ dicht und fest gebaut, ohne daß man jedoch in den meisten Fällen von einer distinkten Kernmembran sprechen kann.
[S. 19]
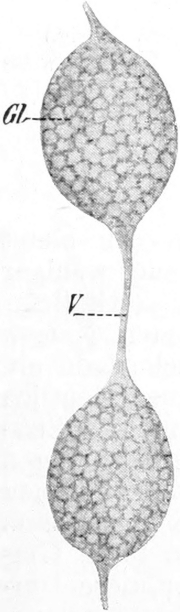
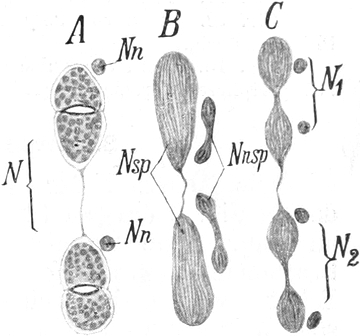
Manche Ciliatenkerne zeigen trotz des im allgemeinen massigen Baues eine ziemlich weitgehende Differenzierung, welche sie trotz ihrer aberranten Formen in mancher Beziehung den bläschenförmigen Kernen nähert. Es sind dies Kerne, in welchen Partien mit dichterem und weniger dichtem Bau in eigentümlich regelmäßiger Weise miteinander vereinigt sind. Als Beispiel bilde ich den Kern von Stylonychia mytilus ab, welcher aus zwei ellipsoidischen, durch einen feinen Verbindungsfaden verknüpften Hälften besteht (Fig. 10 A). Jede dieser Hälften ist durch einen eigenartigen Spalt wieder in zwei Hälften zerlegt. Der Kern hat eine ziemlich dicke Membran, ein achromatisches Gerüst und auf diesem relativ große, regelmäßig verteilte Chromatinpartikel.
B. Die bläschenförmigen Kerne.
Die bläschenförmigen Kerne sind fast stets kugelig, manchmal linsenförmig, ellipsoidisch etc. Stets ist aber der Umriß ein sehr einfacher. Vielfach ist eine deutliche Kernmembran vorhanden, welche in manchen Fällen doppelt konturiert und von beträchtlicher Dicke ist.
Trotz großer Fortschritte, welche die letzten Jahre gebracht haben, ist sogar die rein morphologische Erforschung der Protozoenkerne nicht hinreichend gefördert, um die vielfältigen Erscheinungen in ein rationelles System bringen zu können. Daher ist die folgende Gruppierung nur als provisorischer Versuch der Anordnung zu beurteilen. — Wir unterscheiden:
1. Kerne ohne zentralen Binnenkörper.
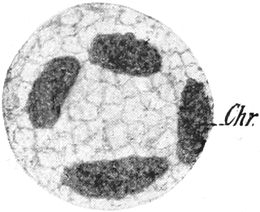
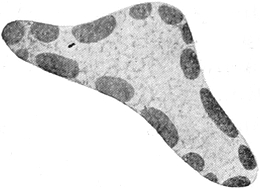
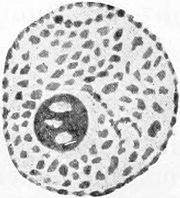
Das Kerngerüst solcher Kerne ist meist frei von Chromatin oder doch arm an solchem. Das Chromatin findet sich in mehreren Klumpen angehäuft, welche entweder peripher an der Kernmembran gelagert (Foraminiferen: Polystomella etc., Fig. 12) oder regellos im [S. 20]Innern des Kernes verteilt sind (so z. B. bei Pelomyxa binucleata Gr., Fig. 11). Diese Chromatinanhäufungen sind als Amphinucleoli zu bezeichnen; auch kommen in solchen Kernen echte Nukleolen vor.
2. Kerne mit zentralem Binnenkörper.
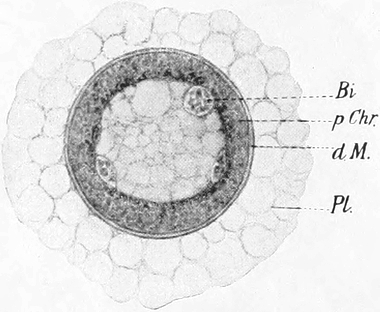
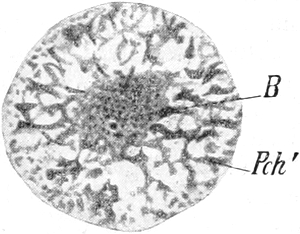
Die Mehrzahl der bläschenförmigen Kerne bei Protozoen bietet das in Fig. 6 dargestellte typische Bild, indem der mehr oder weniger ausgesprochene kugelige Kern in seinem Zentrum eine stark lichtbrechende Kugel zeigt, welche wir mit dem indifferenten Namen Binnenkörper bezeichnen. Diese Binnenkörper, welche bald ein sehr homogenes tropfenartiges Aussehen haben, bald einen deutlich wabigen oder retikulären Bau zeigen, scheinen sowohl in ihrer Substanz als auch in ihrem Verhalten bei den mannigfachen Erscheinungen des Zelllebens sehr große Verschiedenheiten bei den verschiedenen Arten aufzuweisen. Wir können bei dem gegenwärtigen Stand unseres Wissens keinen Zusammenhang zwischen ihrem Bau und ihren Umwandlungen im Verlauf des Zelllebens feststellen. Ueber diese Umwandlungen findet sich Näheres in dem Kapitel über Fortpflanzung.
a) Kerne mit zentralem Amphinucleolus.
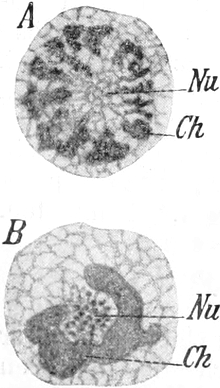
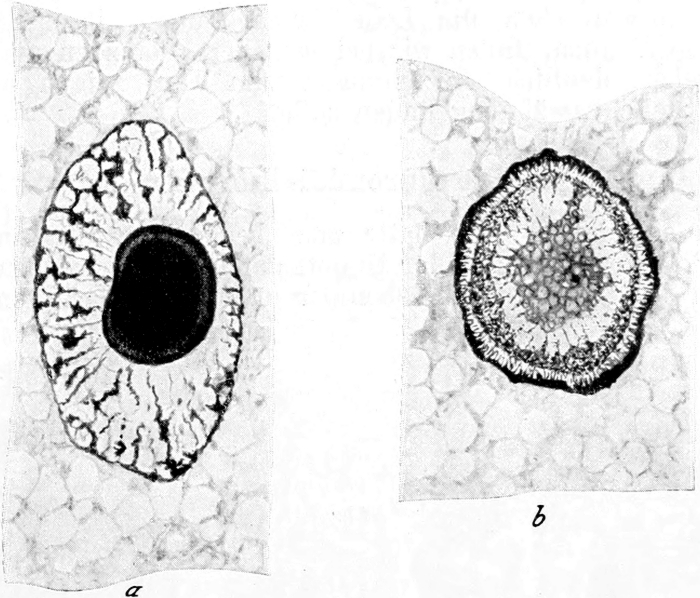
Manche bläschenförmigen Kerne zeigen im peripheren Teil des ziemlich gleichmäßigen Kerngerüstes gar kein Chromatin. Dasselbe ist vielmehr in seiner Gesamtheit gemeinsam mit der Nukleolarsubstanz in einem zentralen Amphinucleolus angesammelt. Derselbe ist sehr häufig kugelig oder annähernd kugelig (z. B. bei Arcella, Fig. 22), manchmal scheiben- oder linsenförmig. In anderen Fällen ist er lappig, nieren-, [S. 21]bandförmig, oder auch stark verzweigt (z. B. bei Actinosphaerium, Fig. 14 A). Meist sind Nukleolarsubstanz und Chromatin in inniger Durchmischung vorhanden, in anderen Fällen lassen sich bei geeigneter Präparation beide Substanzen nebeneinander nachweisen, z. B. bei Actinosphaerium in den ruhenden Kernen freilebender Tiere (Fig. 14 A und B).
Bei manchen Formen ist außer einem solchen Amphinucleolus auch noch mehr oder weniger reichliches Chromatin in den peripheren Partien des Kernes vorhanden, so z. B. in dem Kern von Aulacantha, bei welchem die Hauptmenge des Chromatins auf dem Kerngerüst peripher verteilt ist (Fig. 13).
In manchen Zuständen der Zelle werden die Umrisse dieser Amphinucleoli undeutlich, da Chromatin und Plastin aus ihnen in andere Teile des Kernes übertreten. Vor allen Dingen wegen ihrer Rolle beim Aufbau der Chromosomen werden sie gegenwärtig meist als Chromatinreservoire betrachtet.
b) Kerne mit kernähnlichem Binnenkörper.
Die zentral gelegenen Binnenkörper mancher Protozoen bieten morphologisch das Bild eines Kernes im Kerne. Wie bei den Kernen des vorigen Typus kann der periphere Teil des Kernes Chromatin führen oder es fehlt peripheres Chromatin. Im letzteren Falle kann die periphere Zone sogar ausschließlich Kernsaft enthalten, auch fehlt dann eine Kernmembran. Ist peripheres Chromatin vorhanden, dann fehlt auch wohl nie periphere Gerüstsubstanz. Das Kerngerüst kann entweder als kontinuierliche Schaummasse den peripheren Teil des Kernes einnehmen oder in mehr oder weniger radiär angeordneten, durch größere Kernsaftvakuolen getrennten Strängen zwischen Kernmembran und Binnenkörper ausgespannt sein. Das peripher im Kern gelegene Chromatin kann in ganz feinen Granulationen (Amöben) oder in Form von groben Klumpen vorhanden sein (Chilodon).
Der Binnenkörper selbst zeigt eine membranartige Außenschicht, ein retikuläres Gerüst und auf diesem fein verteilt in Form von Granulen Nukleolarsubstanz und Chromatin (Fig. 16). Wahrscheinlich ist die Gerüstsubstanz übereinstimmend mit derjenigen des eigentlichen Kerngerüstes, so daß diese Binnenkörper sowohl in ihrem morphologischen Aufbau als auch in den sie zusammensetzenden Substanzen mit Kernen übereinstimmen. Es existieren alle Uebergänge [S. 22]zwischen solchen Kernen mit bläschenförmigem Binnenkörper, bis zu solchen, bei denen er massig und schließlich vollkommen homogen erscheint.
c) Karyosomkerne.
Sowohl die Kerne mit Amphinucleolus als auch diejenigen mit kernähnlichem Binnenkörper zeigen oft einen Bau, der theoretisch von besonderer Bedeutung ist. Viele neuere Untersucher haben in den Binnenkörpern ein zentrales Korn nachgewiesen, welches vor der Teilung des Kerns sich teilt und in seinem ganzen Verhalten an ein Centrosoma oder richtiger das Centriol eines Metazoencentrosoms erinnert. Hartmann und seine Schüler, welche Centriolen bei Protozoen aus allen möglichen Gruppen nachgewiesen haben, glauben, daß Binnenkörper mit Centriolen bei den niederen Protozoen allgemein und auch sonst in diesem Stamm weit verbreitet sind. Hartmann definiert auf Grund seiner Erfahrungen ein Karyosom als einen Binnenkörper mit Centriol.
Karyosomkerne können nach Hartmanns Annahme sehr verschiedene Organisationsstufen erreichen. Im einfachsten Falle schwebt das Karyosom in einer Zone von Kernsaft und enthält den Gesamtvorrat des Kerns an Chromatin und Nukleolarsubstanz.
Eine höhere Stufe ist repräsentiert, wenn der periphere Raum zu einem „Außenkern“ umgestaltet ist, indem er Chromatin und Gerüstsubstanz enthält. Der Außenkern ist gegen das Zellplasma durch eine Kernmembran abgegrenzt. Von diesem Typus werden nun weitere Formen unterschieden, bei denen in dem dicht strukturierten Karyosom ein Centriol kaum oder gar nicht erkennbar ist. Da es [S. 23]durch sogenannte „zyklische Veränderungen“ in manchen Karyosomen, in denen es normalerweise vorhanden ist, vorübergehend verdeckt werden kann, so nimmt Hartmann an, daß es in allen solchen dicht strukturierten Karyosomen nur verdeckt sei. Und schließlich nimmt er an, daß die massigen Kerne ähnlichen Vorgängen ihren Ursprung verdanken, indem auch hier die in großen Mengen auftretenden Chromatinkörnchen das vorhandene Centriol nicht sichtbar werden lassen.
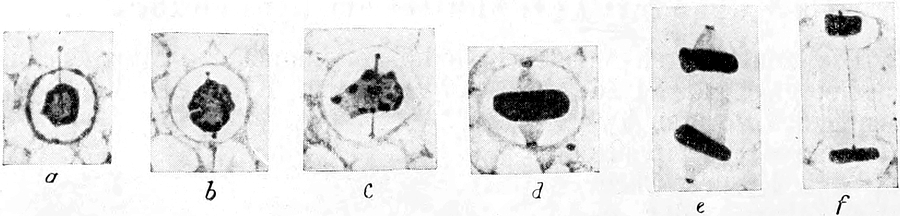
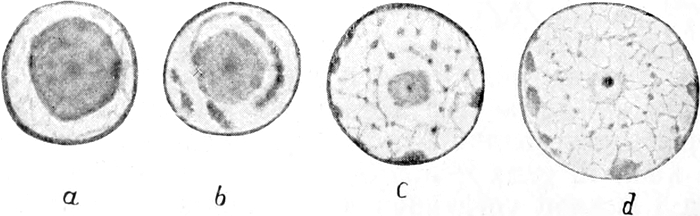
Unter „zyklischen Veränderungen“ am Karyosom versteht Hartmann Vorgänge, wie sie bei Zentrosomen nachgewiesen worden sind, welche darin bestehen, daß in regelmäßigem Wechsel um das Centriol dichte Massen färbbarer Substanz auftreten, um dann gleichsam zentrifugal abzufließen, worauf sie dann im Zentrum wieder erneuert werden (vgl. Fig. 19). Nach Siedlecki sind derartige Vorgänge zum Teil durch Ernährungszustände der Zelle bedingt (vgl. Fig. 20).
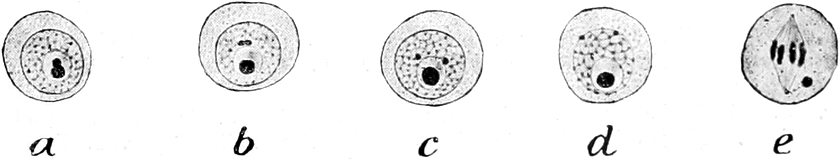
Schließlich nimmt Hartmann als weiteren Typus die „Pseudokaryosomkerne“ an, deren Karyosom zwar auch ein Centriol enthält; letzteres tritt aber vor den Teilungen aus dem vegetativen Hauptteil des Karyosoms aus, welches zugrunde geht. Nach vollendeter Teilung wächst das Centriol wieder zu einem vollständigen Karyosom resp. Pseudokaryosom heran (Fig. 21).
[S. 24]
Ihre Ergänzung finden diese Vorstellungen durch die Annahme, daß diese einfach gebauten „monoenergiden“ Kerne bei kompliziert gebauten Protozoen (Ciliaten, Radiolarien, Trichonymphiden) durch zusammengesetzte „Polycaryen“ „polyenergide Kerne“ vertreten seien. Näheres hierzu findet sich unten im Abschnitt über die Protozoen als einzellige Organismen.
Die Hartmannschen Ansichten stellen einen sehr interessanten Versuch dar, in der Vielgestaltigkeit der Protozoenkerne Regel und Ordnung nachzuweisen. Bei aller Würdigung sei nicht verfehlt, auf ihren stark hypothetischen Charakter hinzuweisen.
C. Elementare Zellorgane besonderer Art.
Während das Plasma mit seinen Schichten und der Kern elementare Bestandteile jeder typischen Protozoenzelle sind, ohne deren Zusammenwirken die Lebenserscheinungen ihren geregelten Ablauf nicht nehmen, finden wir bei manchen Protozoen weitere Zellorgane, welche deutliche Beziehungen zum Kern zeigen und daher an dieser Stelle Erwähnung finden sollen.
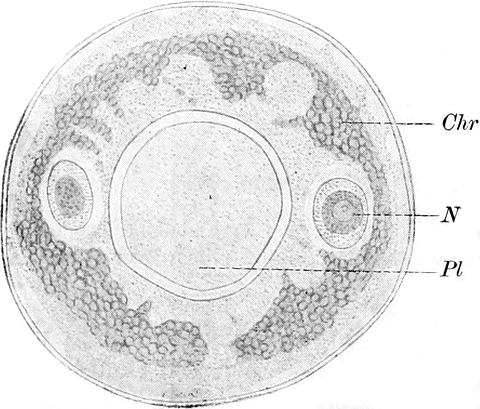
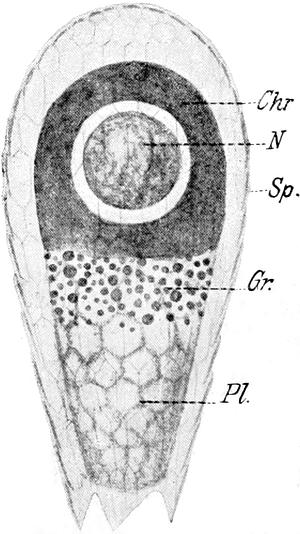
I. Die Chromidialkörper.
Schon seit langer Zeit hatte man beobachtet, daß im Zellleib gewisser Protozoen, speziell der Monothalamien, umschriebene Partien sich durch ihr Aussehen im lebenden und im präparierten Zustand deutlich von der Hauptmasse des Zellplasmas unterscheiden. Erst die neueren Forschungen haben Veranlassung gegeben, diese Bildungen [S. 25]sorgfältiger zu untersuchen und ihre Bedeutung für die Zellorganisation zu würdigen.
Es sind massige oder strang-, netz-, ringförmige Körper, welche sich von dem sie umschließenden Protoplasma durch ihr Lichtbrechungsvermögen und ihre Färbbarkeit mit Kernfarbstoffen unterscheiden. Diese sogenannten Chromidialkörper erinnern also zunächst durchaus an Zellkerne, unterscheiden sich aber von solchen durch den Mangel einer Membran oder sonstigen Hüllschicht. Sie machen durchaus den Eindruck eines aufgelösten und auf den Strängen des Zellplasmas verteilten Kernes. Die Substanzen, aus denen sie bestehen, und welche die Farbstoffe intensiv aufnehmen, verhalten sich wie das Chromatin und die Nukleolarsubstanz der Kerne. Man sieht beide Substanzen sowohl in enger Vereinigung als auch insofern getrennt, als in dem Netzwerk des Chromidialkörpers echte Nukleolen auftreten können. In der feineren Struktur schließen sich die Chromidialkörper dem Zellplasma an, auf welchem sie ausgebreitet sind; nicht selten kann man in ihrer ganzen Ausdehnung einen deutlich schaumigen Aufbau erkennen.
Ihre chemische Zusammensetzung ist noch wenig untersucht; doch steht so viel fest, daß sie auch mancherlei Substanzen ein- und umschließen können, z. B. Kohlehydrate, auch umgeben sie manchmal Vakuolen, in denen von dem Tier gefressene Substanzen eingeschlossen sind.
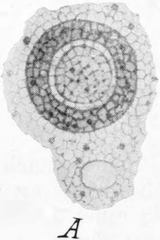
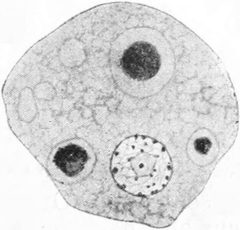
Der Ausdruck „Chromidialkörper“ ist eine zusammenfassende Bezeichnung; je nach der äußeren Form kann man Chromidialnetze, Chromidialringe, Chromidialstränge, Chromidialhauben etc. unterscheiden (Fig. 22 und 23).
Die Chromidialkörper der Thalamophoren sind normale Bestandteile der agamen Zustände dieser Protozoen. Nach neueren Forschungen, hauptsächlich von F. Schaudinn, spielen sie bei den Fortpflanzungsvorgängen eine wichtige Rolle (s. Kap. III); auch hat R. Hertwig nachgewiesen, daß ähnliche Bildungen in normalen und pathologischen Stoffwechselprozessen bei anderen Protozoen als den Thalamophoren auftreten, R. Goldschmidt hat Chromidien in den Gewebezellen vieler Metazoen nachgewiesen. Es ist daher zu erwarten, daß diese Bildungen sich als sehr wichtige Zellbestandteile herausstellen werden. Ueber ihre Bedeutung sind Theorien aufgestellt worden, welche wir später im Zusammenhang mit anderen Erscheinungen des Zelllebens erörtern werden.
II. Centrosom, Zentralkorn und Centriol.
Aehnlich wie bei den Metazoen, kommen auch bei den Protozoen Centrosomen bei manchen Formen als dauernde Zellorgane vor, während sie bei anderen nur während der Teilung oder bei den geschlechtlichen Prozessen zeitweilig auftreten.
Als Centrosomen bezeichnen wir meist kugelige Körperchen, welche das Zentrum einer Strahlung der Gerüstsubstanz im Zellplasma oder im Kerne bilden. Bei den Metazoen sind sie in der bekannten Weise an den Vorgängen der Zellteilung beteiligt. Man pflegt jetzt auch mancherlei Bildungen, welche in ähnlichem Zusammenhang wie [S. 26]die Centrosomen, im Zellleben der Metazoen eine Rolle spielen, den Centrosomen beizuordnen, auch wenn sie keine Strahlungen hervorrufen.
Am besten mit den Centrosomen der Metazoen vergleichbar sind diejenigen der Heliozoen und Gregarinen.
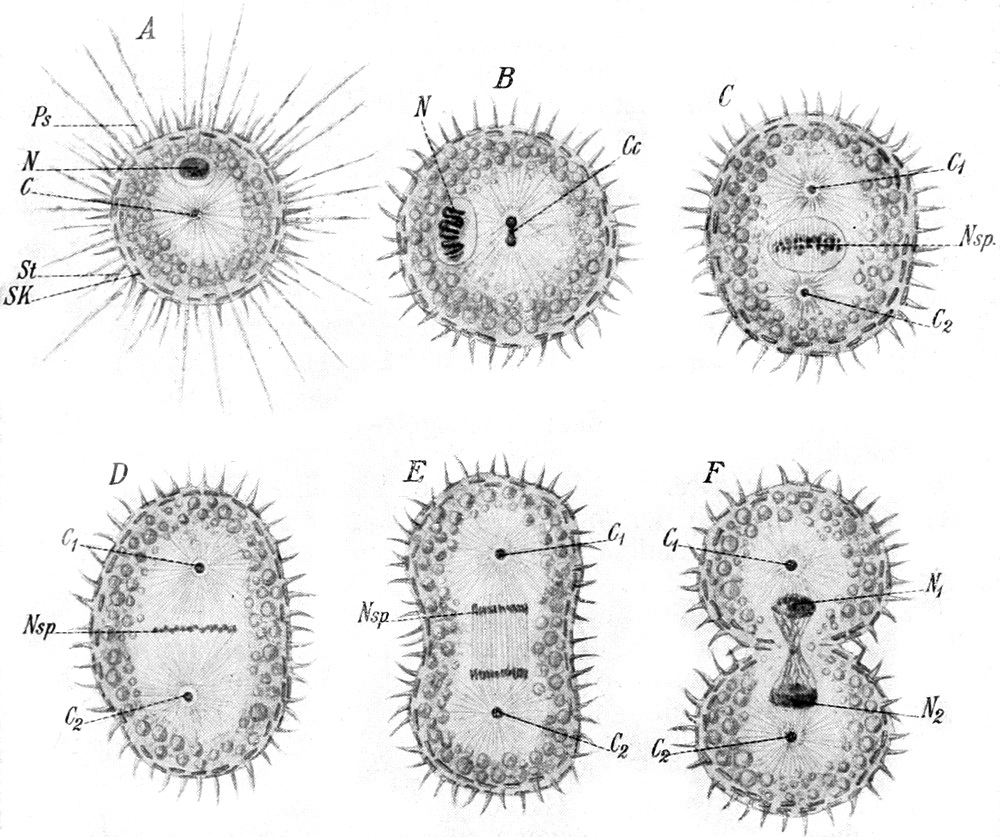
Bei einer Anzahl vorwiegend einkerniger Heliozoen wird das Zentrum des Zellleibes von einem stark lichtbrechenden Körperchen eingenommen, in welchem die Achsenfäden der Axopodien ihren Vereinigungspunkt finden (Fig. 24 A). Dieses sogenannte Zentralkorn ist ungefähr kugelig, läßt infolge seiner Kleinheit im Innern keine Struktur erkennen, färbt sich mit Kernfarbstoffen sehr stark. Bei den Zellteilungsvorgängen verhält es sich vollkommen wie ein Metazoencentrosoma, indem es der Kernteilung vorangeht, und indem seine Tochterprodukte sich an die Pole der Kernspindel begeben, wobei sie jedes den Mittelpunkt einer plasmatischen Strahlung bilden (Fig. 24 B–F).
Sehr deutliche Centrosomen treten bei den Gregarinen auf; doch sind sie hier nur während der Teilungsstadien der Kerne nachweisbar. [S. 27]Auch hier sind sie der Mittelpunkt einer intensiven Plasmastrahlung (s. Fig. 25 und 26 und weitere Abbildungen bei den Teilungserscheinungen im Kapitel III).
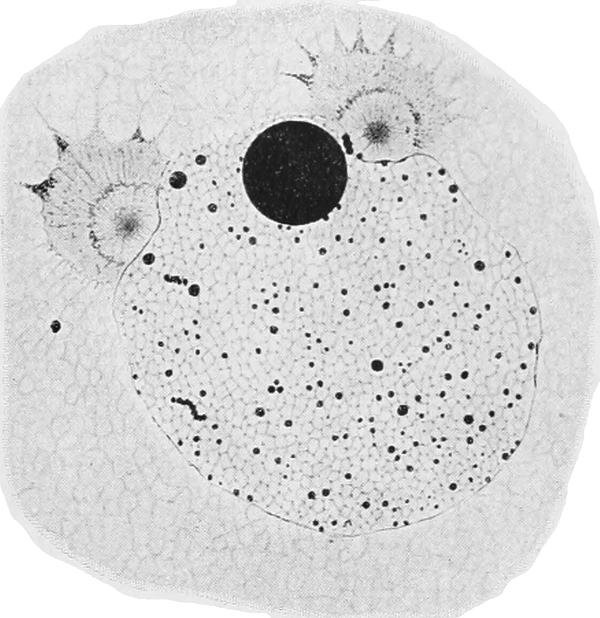
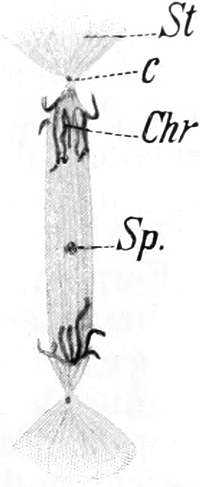
Eigenartige Gebilde sind die von R. Hertwig bei Actinosphaerium entdeckten centrosomenähnlichen Bildungen. Es sind kugelige Körper mit retikulärer innerer Struktur, welche sich mit Kernfarbstoffen stark färben. Sie entstehen durch Austritt von Chromatin aus dem Kern und werden ebenfalls nach Umwandlung in ein kleineres, kornartiges Gebilde zum Mittelpunkt einer Plasmastrahlung. Sie kommen nur bei der Bildung des 1. Richtungskörpers vor (Fig. 27 A und B).
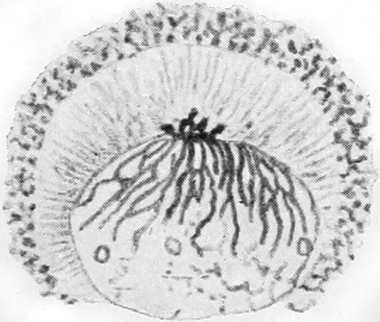
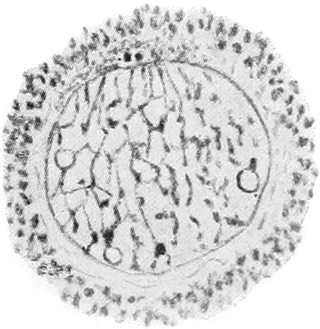
Centrosomen kommen nach Schewiakoff ferner bei den thekaten Rhizopoden Euglypha und nach Schaudinn bei Centropyxis und [S. 28]Chlamydophrys vor. Ferner wird auch für Noctiluca das Vorkommen von solchen angegeben. Ueber letztere, sowie über weitere verschiedene, den Centrosomen vergleichbare Bildungen, welche bei der Kernteilung auftreten, findet sich Näheres im Kapitel über die Fortpflanzung.
Schaudinn hat bei Paramoeba Eilhardi einen neben dem Kern in der ruhenden Zelle liegenden stark lichtbrechenden, kugeligen Körper beschrieben, welcher sich bei der Teilung ähnlich wie ein Centrosoma verhält, ohne daß jedoch Strahlungserscheinungen im Plasma sichtbar werden.
Im Anschluß an Ideen Schaudinns haben vor allem Hartmann und Prowazek (im Zusammenhang mit der Theorie der Doppelkernigkeit der Protozoenzelle s. unten) das Zentralkorn der Heliozoen, den Nebenkern von Paramoeba, das Centrosom von Actinosphaerium etc. für den zweiten (den lokomotorischen) Kern der betreffenden Formen erklärt. Das Centrosom der Metazoen wird mit diesem zweiten Kern der Zelle identifiziert.
Das eigentliche Teilungsorgan der Protozoenzelle stellt nach diesen Autoren das Centriol dar, eine feine, punktförmige achromatische Bildung, welche bei der Teilung sich hantelförmig auszieht und sodann verdoppelt (vgl. Fig. 18). Aehnliche Bildungen kommen bekanntlich auch im Zentrum von Centrosomen der Metazoenzellen vor. Solche Centriolen sind nun bei zahlreichen Protozoen durch Prowazek und Hartmann und deren Schüler aufgefunden worden; nach ihren Befunden ist Hartmann berechtigt, das Vorkommen eines Centriols in allen Gruppen der Protozoen anzunehmen. Es spielt eine wesentliche Rolle bei der Teilung und steht vor allen Dingen in Beziehung zu den lokomotorischen Strukturen des Protozoenkörpers. Hartmann nimmt die Kontinuität des Centriols bei allen Vermehrungsvorgängen an.
III. Blepharoplaste.
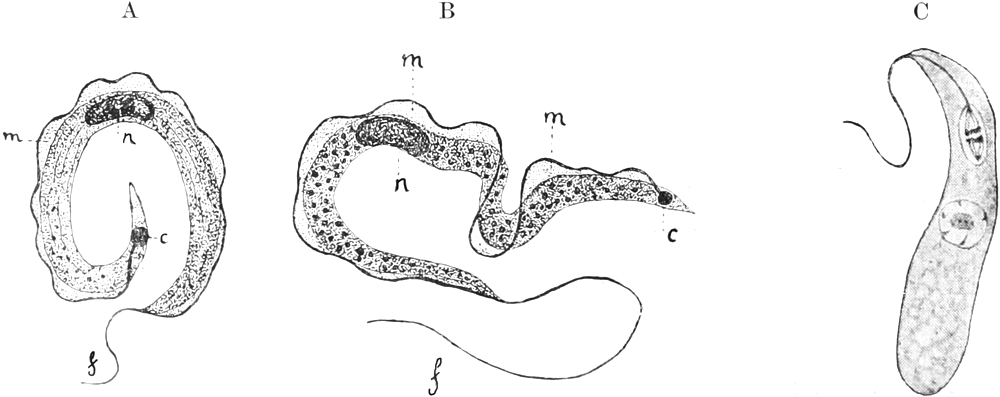
In dem Körper der mit Geißeln und undulierenden Membranen sich bewegenden Protozoen finden sich vielfach auffallende Zellbestandteile, welche von manchen Autoren als elementare Zellbestandteile betrachtet [S. 29]und mit Kernen und Centrosomen in nähere Beziehung gebracht werden. Es sind dies stark lichtbrechende, kugelige bis ovoïde umschriebene Körper von homogener Masse, welche meist an der Basis der Geißeln gelegen sind und durch ihre Lage, Form und Aussehen an die unten beschriebenen Basalkörper der Geißeln und Cilien erinnern (vgl. Fig. 28 A und B). Sie färben sich stark mit Kernfarbstoffen. Bei der Zellteilung werden sie geteilt, wobei sie hantelförmig werden und sich in zwei Tochterblepharoplaste durchschnüren. Bei manchen Formen treten sie dann in ähnliche Beziehungen zu den Kernspindeln wie echte Centrosomen. In manchen Fällen zeigen sie bläschenförmigen Bau wie Zellkerne und teilen sich, indem sie eine Spindel bilden, welche durchaus wie eine mitotische Teilungsspindel aussieht. Bei multiplen Teilungen des Zellleibes führen sie mit den Kernteilungen simultane Teilungen aus.
Diese ihre Eigentümlichkeiten, in Zusammenhang mit von Schaudinn kurz mitgeteilten, bisher aber noch nicht bestätigten Beobachtungen über ihr Verhalten bei der Befruchtung von Haemoproteus haben manche Autoren dazu geführt, die Blepharoplasten als zweite Kerne, als lokomotorische Kerne aufzufassen. Näheres darüber findet sich unten in dem Kapitel über die Doppelkernigkeit der Protozoenzelle.
IV. Die Chromatophoren.
(Chromoplasten,
Leukoplasten)
Die Farbstoffträger in dem Protoplasma mancher, auf pflanzliche Weise sich ernährenden Mastigophoren und Rhizopoden sind an dieser Stelle ebenfalls kurz zu erwähnen. Ihre ausführliche Berücksichtigung finden sie im II. Kapitel bei der Besprechung der Physiologie des Stoffwechsels.
Soweit wir bis jetzt wissen, entstehen Chromatophoren nur durch Teilung aus schon vorhandenen. Neuere Angaben über Bildung aus chromidienartigen Kernprodukten sind wohl noch sehr wenig gesichert.
D. Die Bewegung und die Bewegungsorganellen der Protozoen.
An dieser Stelle sollen die Haupttypen der Bewegung bei den Protozoen und die wichtigsten Formen der Bewegungsorganellen bei dieser Tiergruppe kurz beschrieben werden. Die Anschauungen, welche man sich über die Quelle der bewegenden Kräfte gebildet hat, sollen in dem physiologischen Kapitel, die vielfältigen Formen, in welchen die Bewegung und die Bewegungsorganellen bei Protozoen auftreten, sollen am geeigneten Ort im speziellen Teil dieses Buches zur Erörterung kommen.
Nach der Natur der zur Verwendung kommenden Organellen kann man zwei Haupttypen der Bewegung unterscheiden:
1) die Bewegung durch Fließen oder Strömen des Protoplasmas,
2) die Bewegung durch schwingende Organellen (Geißeln und Cilien).
Die erstere Art der Bewegung macht die Tiere, soweit es sich nicht um schwebende Formen handelt, in hohem Grade von einem Substrat abhängig, während die zweite Art sie zu einer sehr freien Ortsbewegung im flüssigen Medium befähigt.
[S. 30]
1) Die fließende oder amöboide Bewegung wird durch Teile des Körperplasmas vermittelt, welche jederzeit zum Zwecke der Bewegung hervorgestreckt werden können, um später wieder eingezogen zu werden. Als mehr oder weniger zähflüssige Masse fließt eine Partie Ektoplasma allein oder Entoplasma mit dem zugehörigen Ektoplasmaüberzug aus dem Körper des Tieres hervor, und nachdem die vorgestreckte Partie durch Adhäsion oder sonstwie einen Fixationspunkt gewonnen hat, strömt das Plasma des Körpers nach; indem sich diese Erscheinung in derselben oder einer anderen Richtung wiederholt, erfolgt die Ortsbewegung des Tieres.
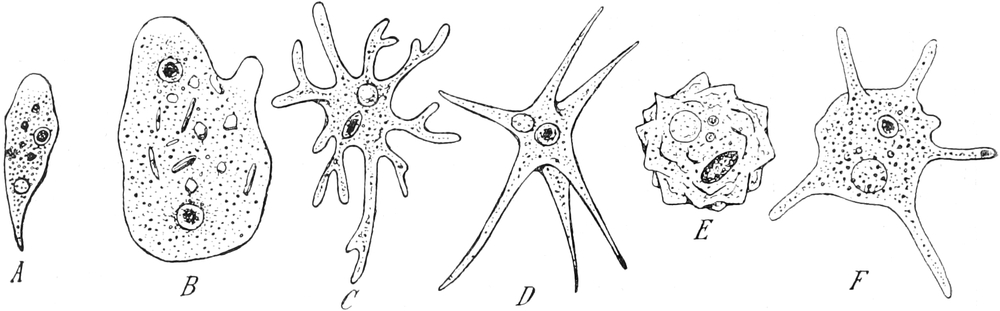
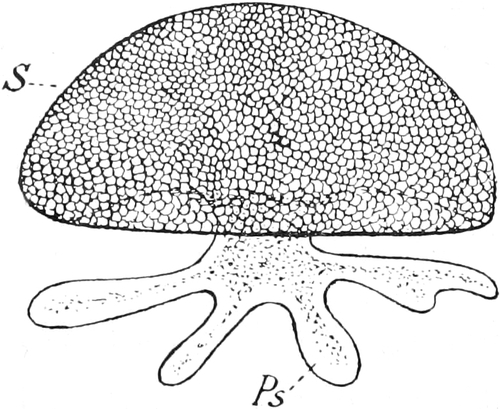
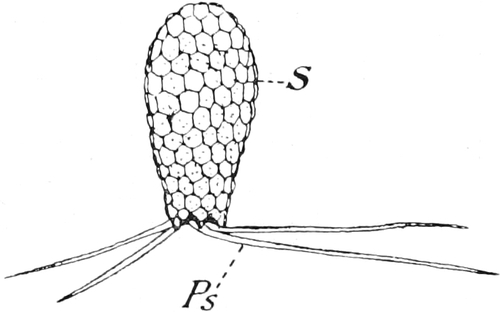
Dabei können die vorgeströmten Teile des Körpers, welche man als Pseudopodien bezeichnet, verschiedene Gestalt und Oberflächenbeschaffenheit aufweisen. Danach bezeichnet man sie als:
A. Lobopodien, d. h. mehr oder weniger breite, lappenförmige Pseudopodien, welche meist am distalen Ende abgerundet sind. Solange solche Lobopodien klein bleiben, bestehen sie ausschließlich aus Ektoplasma; wenn durch Nachströmen des Protoplasmas das Lobopodium eine gewisse Größe überschreitet, dann beginnt im basalen Teil auch Entoplasma an seinem Aufbau teilzunehmen (vergl. Fig. 3, S. 11). An den Lobopodien ist mit größter Deutlichkeit ihre Entstehung aus fließendem Protoplasma zu erkennen, da die zahlreichen körnigen [S. 31]Einschlüsse des Protoplasmas dessen Bewegungen in den meisten Fällen leicht beobachten lassen. In manchen Fällen sind die Lobopodien [S. 32]sehr langgestreckt und dünn (vgl. Fig. 29); sie nähern sich dann einem zweiten Typus des Pseudopodienbaues, den sogenannten
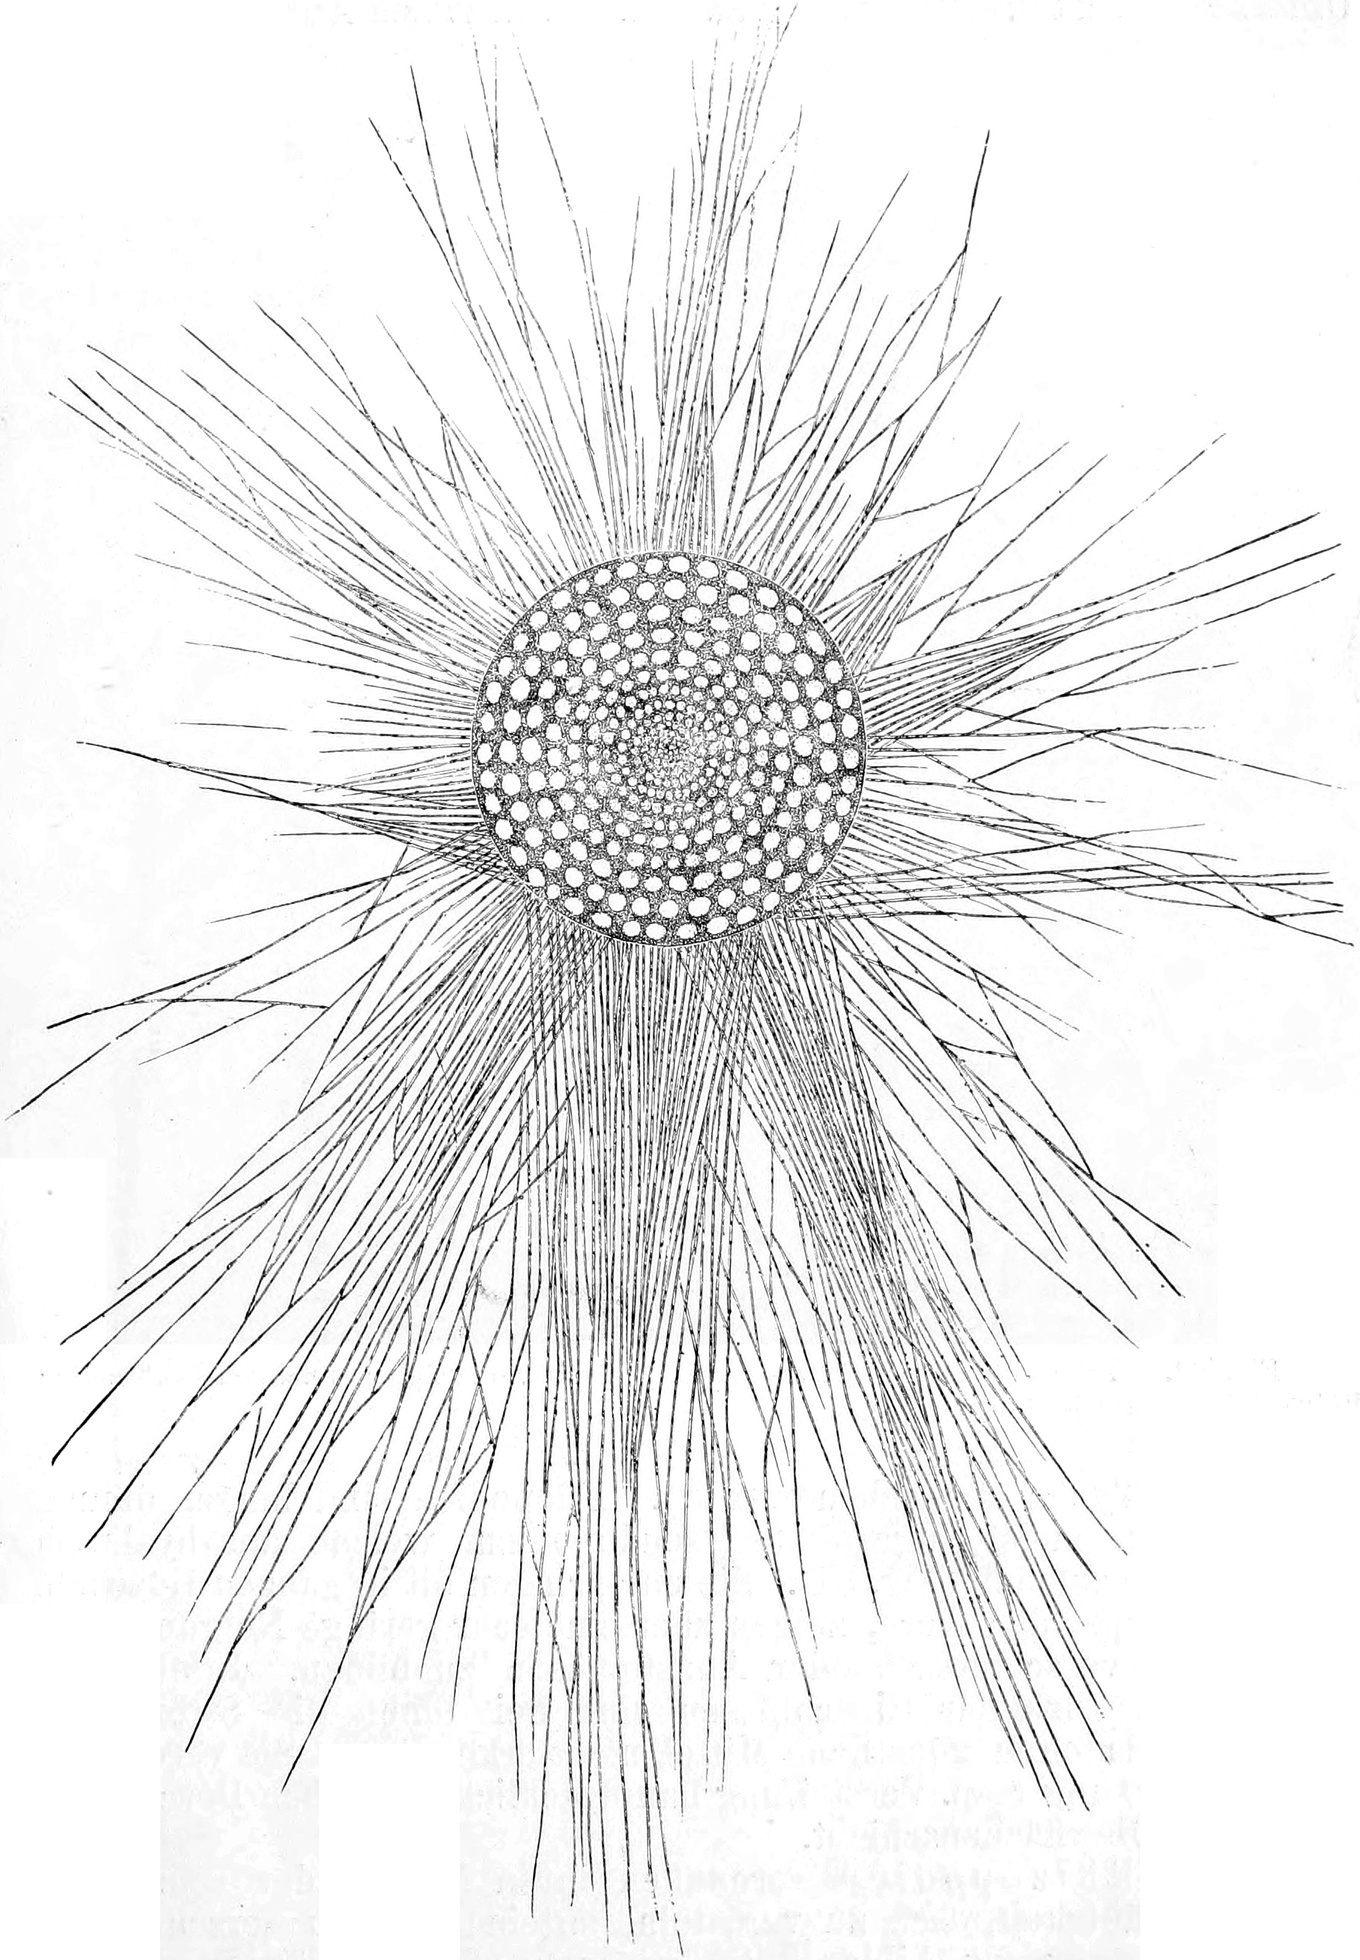
B. Filopodien, welche von den Lobopodien nur durch graduelle Unterschiede zu trennen sind und daher von vielen Autoren nicht als besonderer Typus angesehen werden. Filopodien sind lange, dünne, fadenförmige, meist zugespitzte Pseudopodien, welche aus hyalinem Ektoplasma bestehen (Fig. 31). Sie entspringen oft in ganzen Büscheln aus dem Körper der Tiere, zeigen aber eine sehr geringe Neigung, miteinander zu verschmelzen oder Anastomosen zu bilden. Infolge des Mangels an körnigen Einschlüssen sind bei ihnen die Strömungserscheinungen ohne künstliche Mittel nicht erkennbar. Sie verdanken ihre Verfestigung resp. Versteifung hauptsächlich der zähen Beschaffenheit ihrer Oberflächenschicht.
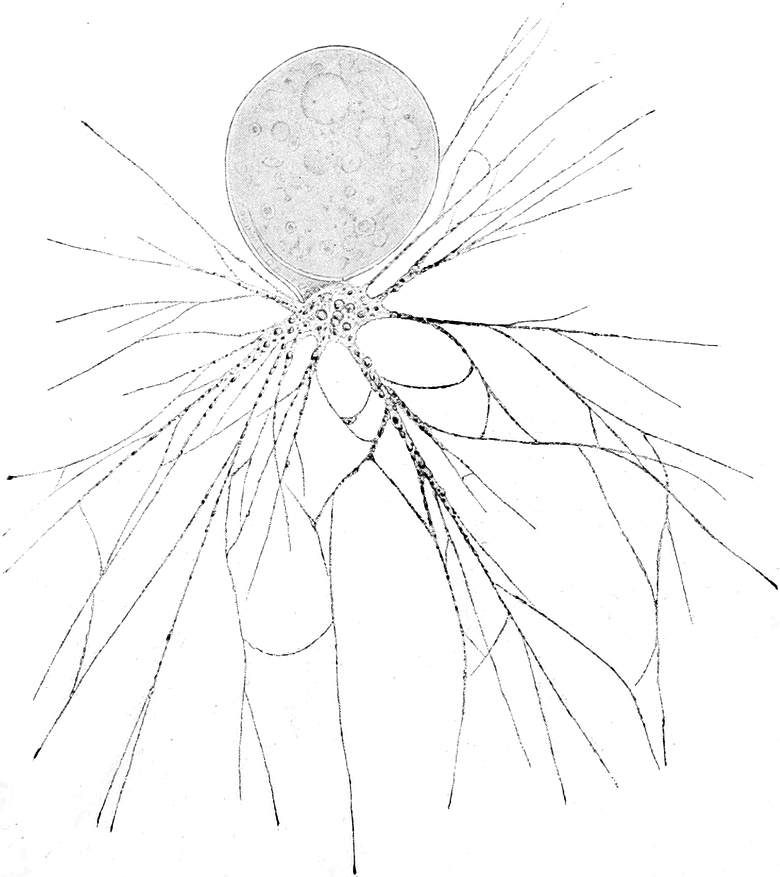
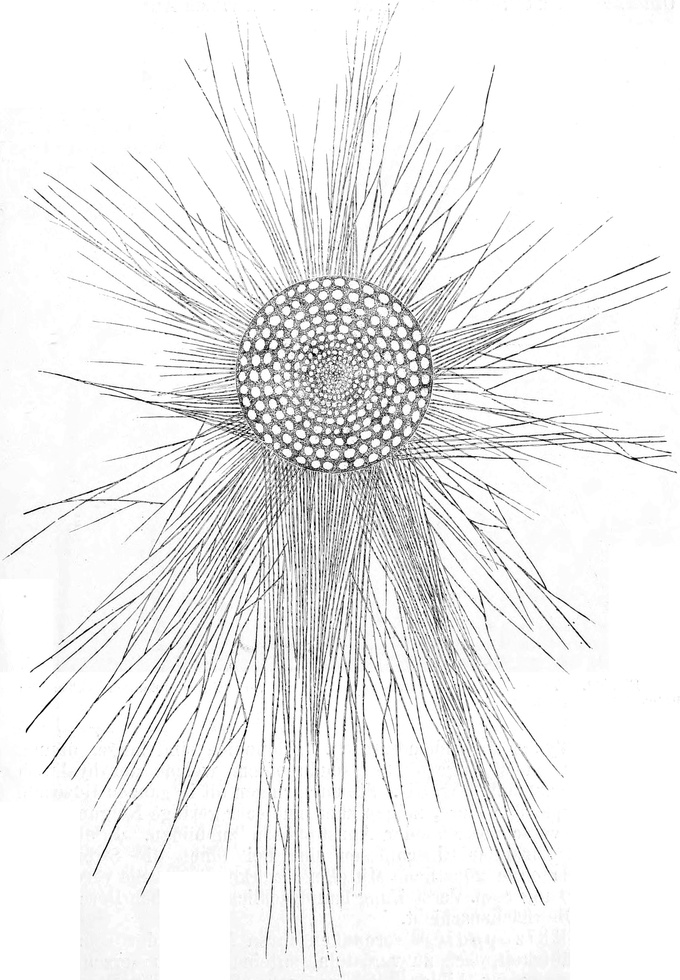
C. Die Rhizopodien verdanken ihren Namen der sehr weitgehenden Fähigkeit, sich zu verästeln, miteinander zu verschmelzen und Anastomosen zu bilden. Sie strömen oft in großer Menge als feine Fäden aus der Oberfläche des Plasmakörpers hervor, verzweigen sich dann in ganz beliebiger Weise, wobei die Hauptstränge oder die Zweige miteinander vielfach in Berührung treten und verschmelzen [S. 33]können (Fig. 32 und 33). An den Verschmelzungspunkten entstehen manchmal größere Ansammlungen von Plasma, wie denn der Durchmesser der Rhizopodien ein sehr wechselnder ist, indem nicht selten in ihrem Verlauf Anschwellungen auftreten.
Die Rhizopodien bestehen aus einem fein strukturierten körnerreichen Plasma, an welchem man das Phänomen der „Körnchenströmung“ in der wundervollsten Weise studieren kann. Die zahlreichen. stark lichtbrechenden Körnchen, welche das Plasma mit sich führt, bewegen sich an der Oberfläche der Rhizopodien dahin, wobei sie nicht selten über die Kontur des Rhizopodiums vorragen (Fig. 33). So kann man bei ruhenden Pseudopodien mit aller Klarheit erkennen, daß an der einen Seite derselben eine zentrifugale Wanderung der Körnchen stattfindet, während an der anderen Seite eine zentripetale Rückwanderung vor sich geht.
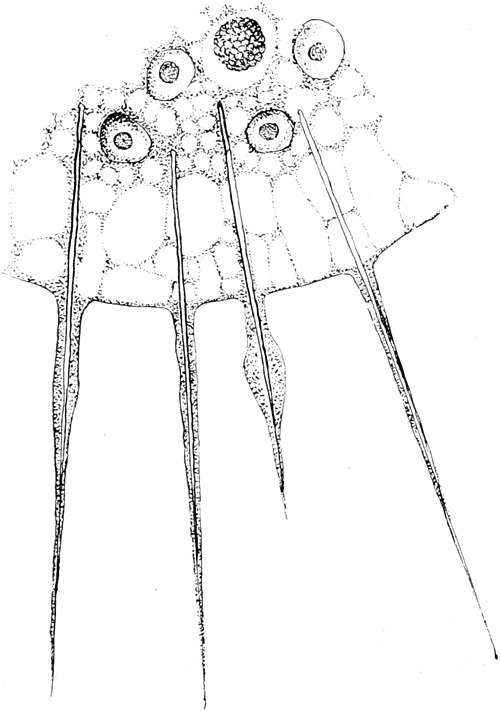
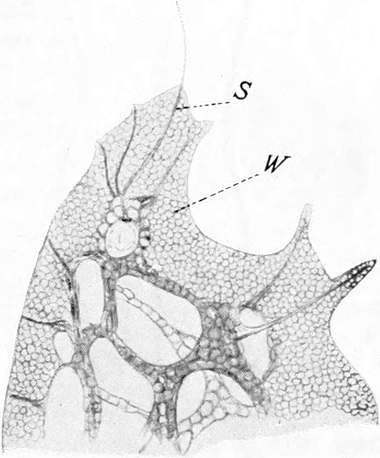
Meistens kann man auch an den Rhizopodien eine deutliche Sonderung des Plasmas in Schichten von verschiedener Dichte nicht wahrnehmen. In anderen Fällen, z. B. bei den Pseudopodien der Heliozoen, können wir jedoch deutlich axiale Differenzierungen wahrnehmen, welche aus stark lichtbrechender Substanz bestehen und durch ihre Festigkeit dem ganzen Pseudopodium seine Steifheit und Dauerhaftigkeit angesichts der flüssigen Beschaffenheit des Protoplasmas verleihen (Fig. 34). Pseudopodien mit solchen stereoplasmatischen Achsen werden auch als Axopodien bezeichnet. Doch liegt nur ein gradueller Unterschied gegenüber den gewöhnlichen Rhizopodien vor. Der Bildung eines solchen Axopodiums geht stets, vom Entoplasma [S. 34]ausgehend, die Bildung der stereoplasmatischen Achse voraus (vgl. Fig. 35, Mastigamöbe nach Goldschmidt). Beim Einziehen der Pseudopodien wird die stereoplasmatische Achse wieder verflüssigt, „eingeschmolzen“.
2) Die Bewegung durch schwingende Organellen (Undulipodien) kann entweder durch einen oder wenige relativ große und kräftige schwingende Fäden oder durch das Zusammenwirken zahlreicher kleiner, relativ schwacher Fäden bewirkt sein. Im ersteren Fall werden die Bewegungsorganellen als Geißelhaare, Geißeln oder Flagellen, im zweiten Fall als Wimperhaare, Wimpern oder Cilien bezeichnet.
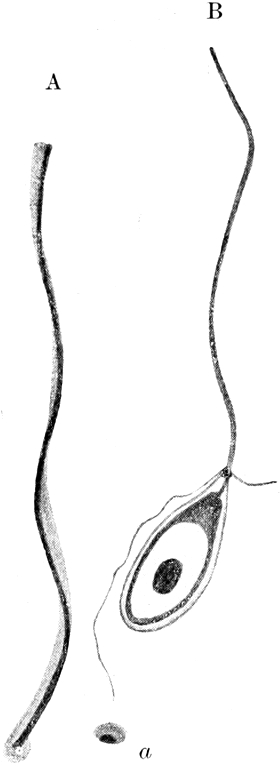
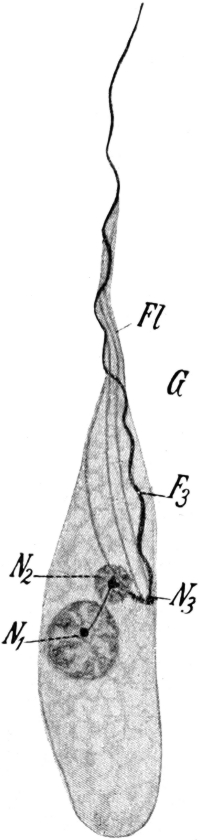
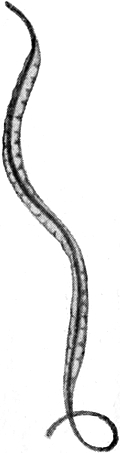
Flagellen vermitteln die Bewegung von sehr zahlreichen niederen Organismen (Bakterien, Flagellaten) und der Geschlechtszellen [S. 35](besonders der männlichen) der meisten niederen und höheren Tiere, sowie vieler Pflanzen. Entsprechend der weiten Verbreitung im Organismenreich finden wir zahllose spezielle Ausbildungsformen der Geißeln.
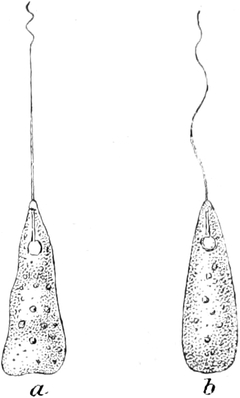
Die Geißel selbst, d. h. der über die Zelloberfläche hervorragende, feine, aus hyalinem Protoplasma bestehende Faden besitzt allerdings in seiner äußeren Form keine großen Variationsmöglichkeiten. Sehr verschieden kann die Länge der Geißeln und ihr Verhältnis zur Körperlänge ihres Trägers sein. In der Regel erreichen oder übertreffen die Geißeln die Länge ihres Trägers. Ihr Querschnitt ist kreisrund oder oval; es sind aber auch bandförmige Geißeln beschrieben, so bei den Peridineen.
Die Geißeln sind nicht in ihrer ganzen Ausdehnung gleichmäßig dick; bei langen Geißeln ist der Endteil oft etwas verdünnt. Während die meisten Protozoengeißeln eine kompliziertere Struktur der sie bildenden Substanz bisher nicht haben erkennen lassen, ist in anderen Fällen die Zusammensetzung aus zwei parallel verlaufenden feinen Fäden nachgewiesen worden. Nach Schaudinn besteht sogar die Geißel von Trypanosoma noctuae aus einer Zentralfaser mit acht dieselbe in ihrem basalen Teil umhüllenden Mantelfasern (Fig. 37). Im allgemeinen darf man wohl annehmen, daß die Geißeln aus einem oder mehreren starren elastischen Fäden mit einer Protoplasmahülle bestehen (vgl. Fig. 36–38).
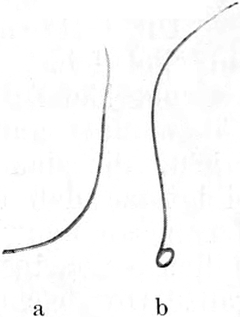
Doch müssen ziemlich beträchtliche Verschiedenheiten in der Struktur vorliegen, was schon aus der verschiedenartigen Weise hervorgeht, in welcher die Geißeln bewegt werden. Fast alle Geißeln werden in Schraubenlinien geschwungen, wobei die einen größere, die anderen kleinere Kurven beschreiben. Während bei den einen die Schraubenlinie auf einem Kegelmantel verläuft, hat sie bei anderen [S. 36]ihre Lage annähernd auf einem Cylinder etc. Bei manchen Geißeln führt der distale, bei anderen der proximale Teil die intensivsten Schwingungen aus. Nicht selten wird bei der regelmäßigen Bewegung nur der distale Teil der Geißel bewegt, der proximale dagegen starr gehalten; dieselbe Geißel kann jedoch unter dem Einfluß stärkerer Reize in ihrer ganzen Ausdehnung zu schlagen beginnen (Fig. 39 a und b).
Der Ort der Insertion und die Zahl der Geißeln sind vielfach charakteristisch für höhere systematische Kategorien, Gattungen und Arten der Flagellaten. Wenn mehrere Geißeln vorhanden sind, so können sie nach Größe, Struktur usw. untereinander differieren. Die durch diese Verhältnisse bedingte Mannigfaltigkeit der Formen findet im speziellen Teil Berücksichtigung. Hervorgehoben sei an dieser Stelle nur, daß die Geißeln häufig am Grund von gruben- oder trichterförmigen Vertiefungen der Körperoberfläche entspringen.
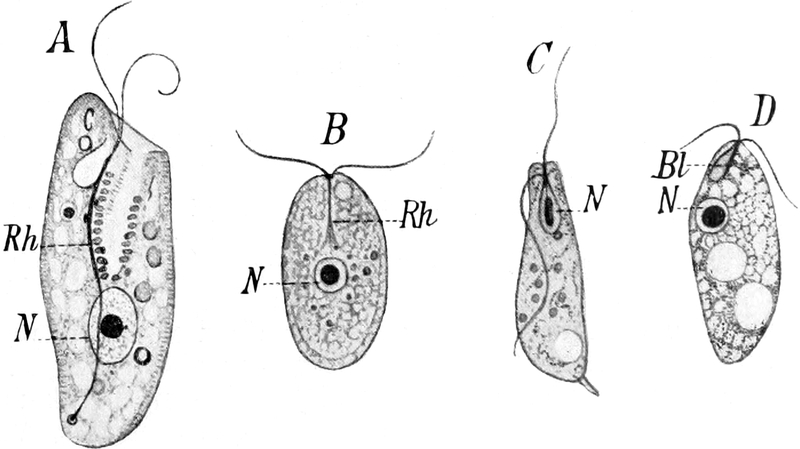
Wichtig und interessant sind die verschiedenen Typen der Insertion der Geißel im Protozoenkörper. Während bei manchen Protozoen die Geißel ohne sichtbare Differenzierung in das Ektoplasma übergeht, finden wir in anderen Fällen eine Verbindung der Geißelwurzel mit verschiedenartigen Strukturelementen im Zellinnern. Als solche sind zu bezeichnen:
1) fädige Fortsetzungen von Bestandteilen der Geißel selbst, vor allem ihres Achsenfadens (sogenannter Rhizoplast),
2) bläschen- oder kugelförmige Bildungen besonderer Art (Basalkörner und Blepharoplaste),
3) die Zellkerne selbst. In diesem Fall kann auch, besonders wenn ein langer Verbindungsstrang vorliegt, eine Verdichtung irgendwelcher Art in die Verbindungsstrecke von Geißelbasis und Kern eingeschaltet sein, ein Basalkorn o. A. Im letzteren Fall ist oft eine Zone dichten Plasmas um das Verbindungsstück angegeben. (Zygoplast nach Prowazek.)
In allen Fällen handelt es sich offenbar darum, der Geißel für ihre Bewegungen in dem weichen Körperplasma des Tieres ein Widerlager zu schaffen. Wir finden daher solche Vorrichtungen weit verbreitet bei Tieren mit weicher Körperoberfläche (Mastigamöben, Trypanosomen), während bei größerer Starrheit der Körperoberfläche diese letztere den Geißeln zur Insertion genügt.
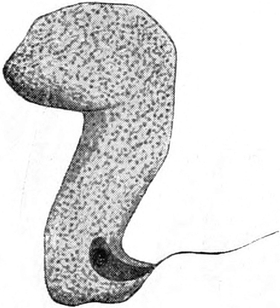
Die mehr oder minder spiralig verlaufenden Bewegungen der Geißeln wirken ähnlich wie Propellerschraubenbewegungen. Meist sitzen die in der Einzahl oder zu wenigen vereinigt vorkommenden Flagellen am Vorderende des Körpers und bewirken eine Vorwärtsbewegung, wobei das Vorderende vorangeht. Selten sitzen die Geißeln an dem bei der Bewegung nach hinten gerichteten Ende. Bei sehr vielen Formen wird durch die Geißelbewegung der ganze Körper in eine kontinuierliche Rotation versetzt. So kommt die charakteristische Flagellatenbewegung zustande, bei welcher der Körper des Protozoons meist leicht schwankend, unter wirbelnder Bewegung um die eigene Längsachse, dem am Vorderende angebrachten Geißelapparat folgt.
[S. 37]
Bei manchen Formen macht der ganze Körper des Protozoons die spiraligen Bewegungen der Geißel mit und unterstützt dadurch die Leistung der Geißel; das ist besonders dann der Fall, wenn der Körper lamellenartig abgeflacht ist, oder wenn der eine Rand des Körpers zu einer kontraktilen Lamelle ausgebildet ist. Im letzteren Fall spricht man von einer undulierenden Membran, welche bei parasitischen Formen besonders verbreitet ist (vgl. Fig. 28).
Wenn eine größere Anzahl von Geißeln vorhanden ist, welche an verschiedenen Stellen des Körpers inserieren, so nähert sich die Bewegungsart und die Wirkungsweise der an den Seiten des Körpers sitzenden Geißeln mehr derjenigen der Cilien; d. h. die Bewegung erfolgt nicht in Spiralen, sondern annähernd in einer Ebene, und die Wirkung gleicht infolgedessen der einfachen Hebelwirkung eines Ruders.
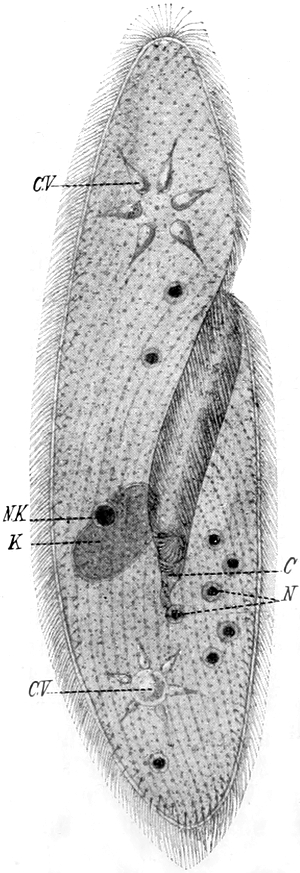
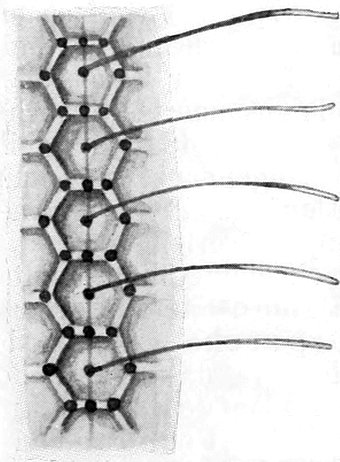
Die Cilien oder Wimperhaare sind im Organismenreich ebenfalls weit verbreitet, doch finden sie nicht so häufig Verwendung bei Bewegungsorganellen von einzelligen Organismen. Außer bei den [S. 38]Schwärmsporen gewisser niederen Pflanzen (Vaucheria etc.), finden wir sie bei den Ciliophoren oder Wimperinfusorien. Bei denselben sind sie allgemein verbreitet; nur durch Cilien oder deren Derivate werden die Angehörigen dieses Unterstammes des Tierreiches bewegt.
Die Cilien haben im Prinzip denselben Bau wie die Flagellen; sie sind feine, aus hyalinem Plasma bestehende Fäden, welche aus der oberflächlichen Schicht des Ektoplasmas hervorragen und deren Länge stets nur einen Bruchteil der Körperlänge ihres Trägers erreicht. Sie sind stets in großer Anzahl in engster Nachbarschaft vereinigt, so daß die Kleinheit der einzelnen Cilien durch die Menge der zusammenwirkenden Cilien kompensiert wird. In den meisten Fällen erscheinen sie zu einem Wimperkleid vereinigt, welches die ganze Oberfläche eines Tieres oder abgegrenzte Felder dieser Oberfläche bedeckt. Die Cilien erscheinen dabei in regelmäßigen Reihen angeordnet, sind untereinander entweder vollkommen gleich lang oder zeigen eine Längenveränderung in regelmäßiger Progression.
Jede einzelne Cilie ist ein feines, haarartiges Fädchen aus plasmaähnlich aussehender Substanz, welches einen kreisförmigen Querschnitt besitzt und meist distal in eine feine Spitze auszulaufen scheint. Ihre Substanz ist sehr dicht und doppelt lichtbrechend, doch läßt sich mit dem Mikroskop keine feinere Struktur erkennen, die Cilien erscheinen vielmehr vollkommen homogen.
Wie bei den Flagellen so ist auch bei den Cilien die Verbindung mit dem Ektoplasma vielfach eine sehr komplizierte. Der Ursprung des freien Wimperhaares ist bei allen darauf untersuchten Formen in einer Vertiefung der Körperoberfläche zu finden. Selten ist für jede Wimper ein gesondertes Grübchen vorhanden (Paramaecium, Fig. 44), meist entsprechen den Cilienreihen längere Furchen, in deren Grund die Cilien eingepflanzt sind, und welche durch ihre Anordnung und ihren Verlauf den verschiedenen Infusorien eine eigenartige Oberflächenskulptur verleihen.
Jede einzelne Cilie nimmt ihren Ursprung im Ektoplasma oder an dessen Innenseite aus einer besonderen Differenzierung, dem sog. Basalkörperchen. Selten sind fadenförmige Verlängerungen eines Achsenfadens in das Innere des Zellplasmas gefunden worden, wie sie bei den Flagellen so häufig vorkommen.
Basalkörperchen sind basale Verdickungen der Ciliensubstanz, welche im Leben infolge ihrer geringen Größe nur schwer als stärker lichtbrechende Körnchen wahrnehmbar sind. Sie lassen sich aber sehr gut mit Eisenhämatoxylin färben und auf Schnitten als kugel-, ei- oder birnförmige Gebilde erkennen.
Jede einzelne Wimper schwingt annähernd in einer Ebene hin und her; so kommt eine typische Ruderbewegung der einzelnen Wimper zustande. Deren Nutzeffekt für die Bewegung des ganzen Tieres wird bei Wimperkleidern, welche aus vielen kleinen, gleichartigen Cilien bestehen, dadurch gewährleistet, daß die in einer Reihe hintereinander stehenden Cilien metachron schlagen, während die in der Querrichtung der Reihen nebeneinander stehenden Cilien synchron schlagen. Keine Wimper schlägt spontan für sich, sondern bei der regulären Bewegung schlagen alle Wimpern einer Reihe, „von einem Ende beginnend, in genau gleichem Rhythmus und in genau gleicher Aufeinanderfolge, so daß jeder Schlag der ersten Wimper von einem Schlag der zweiten, dann der dritten, vierten usw. gefolgt [S. 39]ist“. Jede „beginnt stets sofort ihre Bewegung, nachdem die vorhergehende Wimper begonnen und noch ehe dieselbe ihre Bewegung vollendet hat. So kommt es, daß, von der letzten Wimper einer Reihe her nach der ersten hin gerechnet, jede obere Wimper der unteren um einen geringen Bruchteil der Bewegung voraus ist“ (nach Verworn). (Fig. 48.)
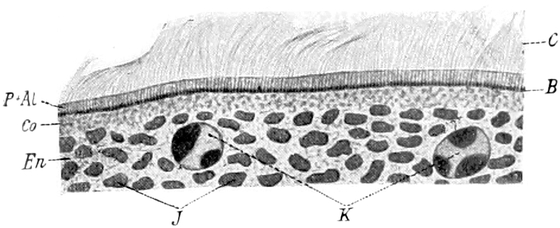
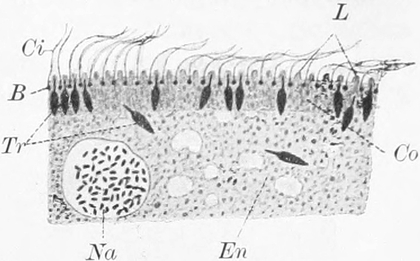
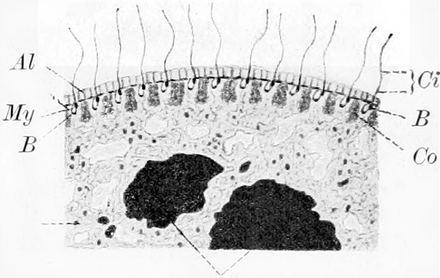
So kommt die typische Bewegung eines Wimperfeldes zustande, welches jedem Beobachter den Vergleich mit einem vom Wind bewegten Aehrenfeld aufdrängt.
Spezialisierte Bewegungsformen werden erzielt, indem Reihen von Cilien zu größeren, für die Wasserbewegung wirksameren Organellen verschmelzen, als welche unterschieden werden: Membranellen, undulierende Membranen und Cirren. Alle diese Bildungen sind wohl mit Recht als durch Verklebung oder Verschmelzung zahlreicher Cilien entstanden zu betrachten; denn wenn sie auch vielfach im Leben eine Differenzierung in einzelne Fasern nicht erkennen lassen, so ist eine solche stets an abgetöteten Exemplaren, besonders nach Behandlung mit Sodalösung oder nach Färbung mit Eisenhämatoxylin, nachzuweisen. Auch ist durch neuere Untersuchungen sichergestellt (N. Maier), daß jeder der Fasern ein Basalkörperchen [S. 40]entspricht, wodurch die Homologisierung mit je einer Cilie eine weitere Bekräftigung erhält.
Die Längenausdehnung dieser Organellen wird durch ihre Zusammensetzung aus einem mehr oder minder großen Stück einer Cilienreihe, ihre Dicke durch ihre Zusammensetzung aus den Bestandteilen von einer, zwei oder mehr Cilienreihen bedingt; das läßt sich ebenfalls in klarster Art durch den Nachweis der Reihen von Basalkörperchen demonstrieren.
Obwohl die undulierenden Membranen und die Membranellen fast ausschließlich als Organellen zur Nahrungsaufnahme Verwendung finden, sei ihr Bau im Zusammenhang an dieser Stelle kurz geschildert, während die Cirren eine etwas genauere Schilderung erfordern.

Die undulierenden Membranen (der Ciliophoren im Gegensatz zu den ähnlich aussehenden, aber anders gebauten undulierenden Membranen der Flagellaten) sind bewegliche Hautsäume von meist rechteckiger Form, welche viel länger als breit zu sein und mit der einen Längsseite dem Ektoplasma eingepflanzt zu sein pflegen. Im einfachsten Fall entsprechen die undulierenden Membranen einer Reihe miteinander vereinigter Cilien, deren Basalkörper sich gemeinsam als Basalsaum darstellen. In anderen Fällen ist die Zusammensetzung aus mehreren (3, 5 bis 10) Cilienreihen nachgewiesen, welche dann auch in der Querrichtung miteinander verschmolzen sind; dann sind auch entsprechend viele Basalsäume vorhanden. Außerdem findet die ganze kräftig wirkende Organelle eine Stütze in einer gegen das Entoplasma vorragenden ektoplasmatischen Verdickung, der Basallamelle, auf deren äußerem Teil die Basalkörperchen des Basalsaumes liegen. Die Bewegung einer undulierenden Membran erfolgt genau in der Weise, als handle es sich um eine nicht verschmolzene Cilienreihe, indem jedes einzelne Element gegen das vorhergehende metachron schlägt; so kommt die charakteristische, wellenförmige Bewegung der undulierenden Membran zustande.
Die Membranellen sind drei- oder viereckige, lebhaft ruderartig schlagende Plättchen, welche sich ebenfalls in ihrem Aufbau durch Verschmelzung zahlreicher Cilien erklären lassen, und zwar bestehen sie aus zwei Reihen von Fasern und haben dementsprechend zwei Basalsäume; auch bei den Membranellen sind nicht selten Stützapparate ausgebildet, welche oft sehr kompliziert gebaut sind. Man unterscheidet Basalwülste, Basallamellen, Basalfibrillen usw.
Als Membranulen werden aus nur einer Cilienreihe zusammengesetzte Schwimmplättchen am Körper verschiedener Infusorien von den nur in der adoralen Zone vorkommenden, im Dienste der Nahrungsaufnahme stehenden Membranellen unterschieden.
[S. 41]
Die Cirren schließlich sind lange, steife, nach allen Seiten bewegliche Lokomotionsorganellen, welche nicht wie die Mehrzahl der sonstigen Ciliengebilde fortgesetzt gleichmäßig rudern, sondern sie werden ruckweise nach Bedarf bewegt. Der Körper des Infusors kann auf ihnen wie auf Stelzen ruhen; durch Rudern, Schreiten, Schieben kann die Fortbewegung mit ihnen vermittelt werden. Cirren sind meist an der Basis sehr dick und gegen das freie Ende hin zugespitzt. Auch sie sind aus einer größeren Anzahl cilienartiger Einzelelemente aufgebaut, welche zu einem Bündel von kreisrundem, elliptischem, polygonalem oder rechteckigem Querschnitt vereinigt sind. Ihnen entsprechen aus zahlreichen Basalkörperchen bestehende Basalplatten, mit denen sehr eigenartige Stützgebilde, Basalfasern etc. in Verbindung treten können.
[S. 42]
Die Verwendung von Zellprodukten zur Förderung der Lokomotion.
Bei vielen Protozoen treten nicht nur lebende Organellen, sondern auch unbelebte Ausscheidungen des Körpers in den Dienst der Lokomotion.
Bei Amöben und Thalamophoren wird an der Oberfläche des Ektoplasmas ein klebriger, fadenziehender Schleim abgeschieden, welcher den Pseudopodien das Haften auf der Unterlage ermöglicht und so die nötigen Fixationspunkte bei der Lokomotion schafft. Bei manchen Formen tritt die entsprechende Substanz in Form von Tröpfchen, sog. Klebkörnern auf. Hält man solche Rhizopoden in Uhrgläsern, so ist der ganze Boden nach einiger Zeit mit einem feinen Netz der schleimigen Kriechspuren bedeckt.
Bei einigen Organismengruppen glauben einige Forscher in solchen Schleimabsonderungen das wichtigste Moment bei der Bewegung erblicken zu dürfen. Diatomeen, Desmidiaceen, Gregarinen und gewisse Zustände von Coccidien haben die Fähigkeit, sich in stetig gleitender, eigentümlich wackelnder Bewegung ohne Gestaltsveränderung, und ohne daß die Tätigkeit irgendwelcher Organellen erkennbar wäre, von der Stelle zu bewegen.
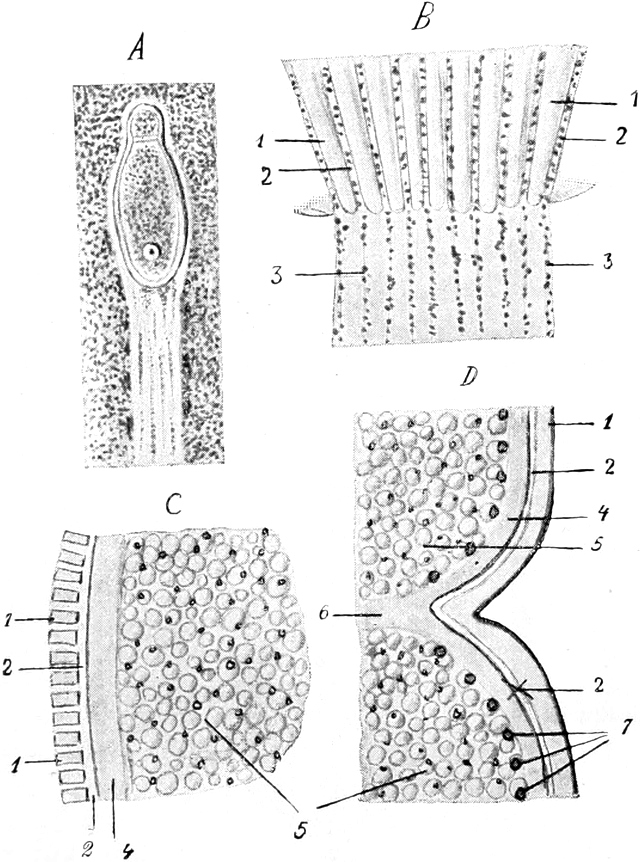
Bei den verschiedenen Formen ist nun nachgewiesen, daß sie eine besonders starke Schleimabsonderung besitzen, welche in Form dicker, erstarrender Schleimfäden bei der Bewegung als deutlich nachweisbare Kriechspur hinter ihnen zurückbleibt.
Speziell für die Gregarinen hat Schewiakoff nachgewiesen, daß zwischen Ektoplasma und Cuticula solcher Schleim in großen Mengen abgesondert und durch Furchen an der ganzen Oberfläche des Körpers entleert wird. Dadurch fließt nach hinten zu ein aus den Schleimfäden sich zusammensetzender Schleimcylinder ab, welcher [S. 43]alsbald an der Unterlage festhaftet und erstarrt. So entsteht hinter dem Tier ein hohler Gallertstiel, welcher bei seinem Erstarren und bei der steten Neubildung von Schleim das Tier kontinuierlich vor sich herschiebt.
Wenn auch die Richtigkeit der Beobachtungen allgemein anerkannt wird, so haben sich doch vielfache Zweifel an den Deutungen ergeben, und die Bewegung der Diatomeen und Gregarinen wurde von verschiedenen Autoren auf andere Weise zu erklären gesucht. Jedenfalls spielt aber der Gallertstiel eine sehr wichtige Rolle bei der Bewegung der betreffenden Organismen. Bei gewissen Stadien der Malariaparasiten und von Trypanosomen vereinigen sich Kontraktionsbewegungen des Körpers und Ausscheidung eines Gallertstiels, um die Vorwärtsbewegung zustande zu bringen.
Auch bei Flagellaten ist Schleimabsonderung vielfach beobachtet worden. Bei ihnen spielt der Schleim vorwiegend eine Rolle als Bewegungshindernis. Bei der sog. „Agglomeration“ der Trypanosomen verkleben diese untereinander und mit der Unterlage durch eine Schleimabsonderung in der Region des Blepharoplasts.
Bewegungserscheinungen innerhalb des Protozoenkörpers und deren morphologische Grundlagen.
Die Pseudopodienbildung bei den Amöben ist von einer unablässigen Verlagerung der einzelnen Plasmapartien begleitet; die Plasmaströmungen stehen hier bei der plastischen Beschaffenheit des ganzen Körpers im engsten Zusammenhang mit seinen Formveränderungen. Dieser Zusammenhang verschwindet immer mehr, je mehr starre und feste Gebilde im Körper der höher differenzierten Protozoen auftreten; wir werden solche Gebilde unten als Skelette, als stützende und formgebende Substanzen kennen lernen.
Auch bei Protozoen, welche ringsum mit einer starren Hülle umgeben sind, findet wie bei den von einer festen Membran umhüllten Pflanzenzellen im Innern Protoplasmaströmung in Gestalt von Rotation des ganzen Inhalts[4] oder von bestimmt gerichteten Strömen einzelner Plasmapartien statt. Aber durch solche Plasmabewegungen wird die äußere Form der Tiere in keiner Weise mehr beeinflußt.
Dennoch können solche Tiere für bestimmte Lebensverrichtungen die äußere Form ihres Körpers verändern. Dazu bedarf es aber besonderer Differenzierungen, welche in Form von kontraktilen Fibrillen und ihren entsprechenden gelenkartigen Bildungen, elastischen Hüllen etc. ausgebildet sind.
Die an die Muskeln der höheren Tiere erinnernden kontraktilen Fibrillen sind es, welche an dieser Stelle eine kurze Darstellung zu erfahren haben. Durch ihr Vorhandensein wird die Beweglichkeit bestimmter Körperteile zu einer fest geregelten: die apolare Bewegung des Protoplasmas wird durch plasmatische Differenzierungen zu einer polar differenzierten, indem die langgestreckten Fibrillen sich nur in der Richtung ihrer Längsausdehnung zu kontrahieren vermögen. [S. 44]Der Vorteil dieser Differenzierungen beruht darauf, daß gegenüber den Bewegungen des undifferenzierten Protoplasmas diejenigen der kontraktilen Fasern besonders energische sind; auch wird ihre Arbeitsleistung noch durch Hebel- oder Elastizitätswirkungen verstärkt, indem sie an festen Membranen, Skeletten etc. inserieren und auf diese einwirken.
Die kontraktilen Fibrillen, auch Myoneme genannt, bestehen aus langen, dünnen, meist drehrunden, stark lichtbrechenden Fasern, welche sowohl im Ektoplasma als auch im Entoplasma auftreten, meist sich aber deutlich als Differenzierungen des ersteren erkennen lassen. Vielfach kann man an ihnen keine feinere Struktur erkennen; in anderen Fällen bieten sie das Bild einer Querstreifung dar, indem dichtere Schichten mit weniger dichten alternieren. In manchen Fällen gelingt es, diese Struktur auf alveolären Bau zurückzuführen.
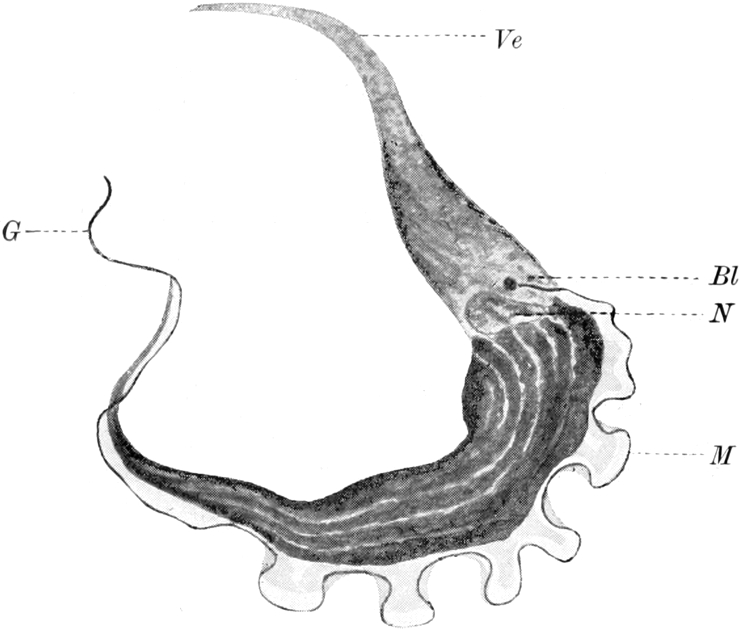
Kontraktile Fibrillen können als Längsfaserschicht ausgebildet sein, z. B. bei den Trypanosomen, bei denen nach Schaudinn 8 Myoneme im Ektoplasma vorhanden sind (bei Halteridium noctuae). [S. 45]Als Ringfaserschicht sind die Myoneme der Gregarinen entwickelt; bei diesen Sporozoen ist die tiefere Schicht des Ektoplasmas erfüllt von einer dichten Lage von äußerst feinen Fibrillen, welche kreisförmig (vielleicht auch spiralig) verlaufen und zwischen welchen zahlreiche Anastomosen vorkommen. Die Fasern, welche in kleinen Kanälchen liegen, sind häufig quergestreift (s. die Querschnitte 51 D).
In den beiden geschilderten Fällen beruht die Wirkung der Fibrillen auf dem Vorhandensein einer festen Hüllschicht, welche den ganzen Körper einhüllt, und an welche sich die Myoneme unmittelbar anschließen. So bewirken sie durch ihre Kontraktionen die wurmförmig schlängelnden Bewegungen der Trypanosomen und die peristaltischen Bewegungen des Gregarinenkörpers.
Bei den Acanthometriden (Radiolarien) inserieren 8–30 kontraktile Fibrillen, welche hier Myophrisken (Fig. 53) genannt werden, mit dem einen Ende an den Skelettstacheln; das andere Ende ist an dem Gallertmantel befestigt, welcher als weite Hülle den Weichkörper des Radiolars umhüllt. Durch die Kontraktion der Myophrisken erfolgt eine Volumvergrößerung des Tieres, wodurch bei diesen im Meer schwebenden Formen hydrostatische Wirkungen erzielt werden.
Noch komplizierter ist Anordnung und Wirkungsweise der kontraktilen Fibrillen bei den Ciliophoren. Hier finden wir Längsfaser- [S. 46]und Ringfasersysteme, sowie Hebelvorrichtungen kompliziertester Art. Bei den Heterotrichen handelt es sich in der Hauptsache um längs oder spiral verlaufende Fasern, welche das Tier zu energischen Kontraktionen befähigen. Bei den Peritrichen finden wir Kombinationen verschiedener Systeme, welche das Tier befähigen, sich plötzlich zusammen- und zurückzuziehen, welche diese festsitzenden Formen in Gehäuse zurückschnellen und Deckel über sich schließen lassen, welche dazu dienen, die spiraligen Kontraktionen der Stiele herbeizuführen etc.
E. Stützsubstanzen und Skelettbildungen.
Alle höheren Komplikationen im Bau der Protozoen erscheinen aufs engste verbunden mit der Ausbildung von festen Substanzen am oder im Körper dieser Tiere. Schon im Kapitel über die Bewegungsorganellen sahen wir mit deren steigender Vervollkommnung das Bedürfnis nach festen Fixationspunkten für die bewegenden Organellen wachsend.
Niedere Rhizopoden suchen solche Fixationspunkte von Fall zu Fall außerhalb ihres Körpers, indem sie ihre Pseudopodien mit Hilfe von klebrigen Ausscheidungen an feste Gegenstände der Umgebung heften. Aber schon bei manchen Amöben erreicht die äußerste Schicht des Ektoplasmas eine so dichte, zähflüssige Beschaffenheit, daß dem Formwechsel der betreffenden Formen dadurch bestimmte Grenzen gezogen werden (Fig. 56). Die Tiere sind nur zu sehr langsamen Formänderungen befähigt, welche nur in der Bildung plumper, breiter Aussackungen der Körperwand sich äußern. Von solchen Formen leiten uns kontinuierliche Uebergänge zu Protozoen, deren äußerste, in das Ektoplasma kontinuierlich übergehende Körperschicht eine starre Hülle darstellt. Ihnen stehen jene Formen gegenüber, welche außerhalb ihres Ektoplasmas eine entweder diesem dicht anliegende oder mehr oder weniger abstehende Hülle durch Sekretion absondern. Morphologisch ist oft der Unterschied zwischen Zellhüllen aus beiden Gruppen schwer oder gar nicht nachzuweisen.
1) Unter einer Pellicula verstehen wir eine Körperbedeckung, welche aus einer verhärteten Außenschicht des Ektoplasmas besteht. Vielfach sieht man die Alveolarstruktur des Protoplasmas direkt in die Pellicula übergehen. Bei Ciliaten besteht die Pellicula oft aus der äußeren Wandmasse des Alveolarsaumes, welcher das ganze Tier an der Oberfläche umgibt. Eine Pellicula kann von ihrem Träger bei den Umwandlungen, welche derselbe bei seinen verschiedenen Lebensäußerungen erfährt, eingeschmolzen und umgeformt werden; sie wird bei Teilungsprozessen mitgeteilt und bleibt bei Vermehrungsvorgängen niemals als leere Hülle zurück.
Eine Pellicula schließt das Ektoplasma von der Außenwelt vollkommen ab, so daß besondere Durchbohrungen notwendig sind, damit [S. 47]das Ektoplasma hervortreten kann oder damit Nahrungskörper u. dgl. in das Innere des Tierkörpers gelangen können.
Die Pellicula stellt sich als dünne, stark lichtbrechende Schicht dar, deren Festigkeitsgrad bei den verschiedenen Formen ein sehr verschiedener sein kann. Meist haben wir in ihr eine feste, aber sehr elastische Membran zu erblicken, welche durch innerhalb und außerhalb des Tierkörpers wirkende Kräfte weitgehende Deformationen erfahren kann; infolge der Elastizität nimmt aber das Tier, wenn die deformierenden Kräfte zu wirken aufhören, seine Eigenform wieder an. Solche Formänderungen werden unter der Bezeichnung „Metabolie“ zusammengefaßt (Fig. 57). Sie sind besonders auffallend bei Organismen, bei denen sie regelmäßig durch innere Kräfte, d. h. durch Plasmabewegungen, veranlaßt auftreten, z. B. bei gewissen Flagellaten. Infolge der Starrheit der Pellicula kommt es bei solchen Formen (im Gegensatz zu den Amöben mit dicker, aber weicherer Pellicula) nicht zu Pseudopodienbildung. Die Pellicula läßt eine besondere innere Struktur, z. B. Schichtung aus verschiedenen Lagen, nicht erkennen. Dagegen ist auf der Außen- und Innenseite vielfach eine komplizierte Skulptur vorhanden, welche [S. 48]aus Feldern, Gruben, Leisten, Furchen, Höckern u. dgl. (vgl. die Querschnitte Fig. 46 und 47) bestehen kann.
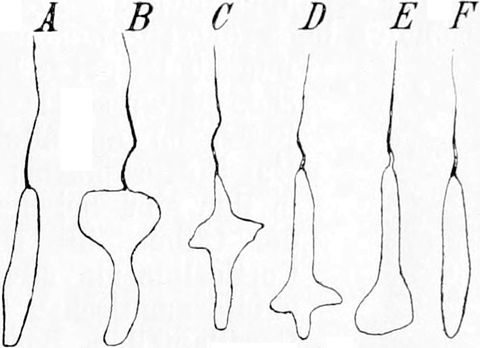
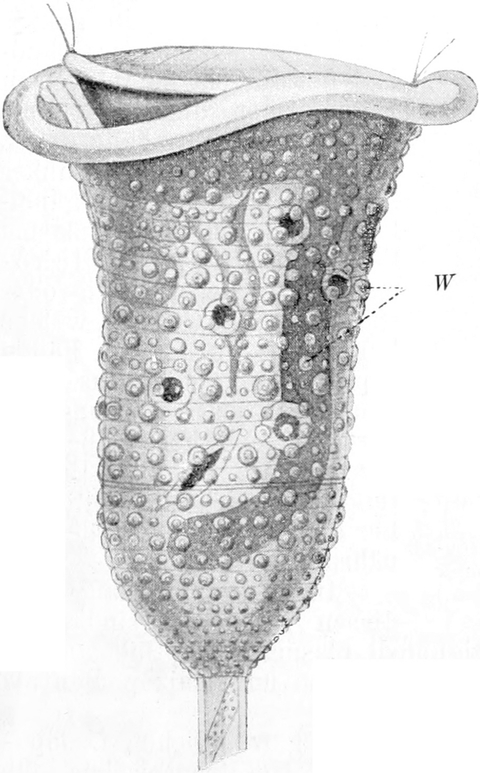
Die chemische Analyse läßt die Pellicula von allen chitinösen Bildungen deutlich unterscheiden und erweist ihre Zusammensetzung aus Eiweißsubstanzen.
Die auf die Pellicula folgende Schicht des Ektoplasmas, welche besonders bei größeren Formen (Ciliaten, Gregarinen) ausgebildet ist und als Corticalplasma bezeichnet wird, ist in manchen Fällen scharf von der Pellicula getrennt, in anderen Fällen ist ein allmählicher Uebergang zu konstatieren. Das Corticalplasma kann vielerlei Einlagerungen zeigen; in ihm sind bei den Ciliaten meist die Basalkörperchen der Cilien, die Myoneme usw. eingebettet. Mit dem Corticalplasma stehen in engstem Zusammenhang jene ektoplasmatischen Stützbildungen, wie Basalwülste, Basallamellen, Basalfasern etc., welche wir oben schon erwähnt haben (vgl. auch Fig. 54). Bei manchen Formen, so gewissen Ciliaten kann man noch verschiedene weitere Schichten im Ektoplasma unterscheiden.
Diese starren plasmatischen Bildungen stellen mit der Pellicula zusammen z. B. bei den Ciliaten ein ganzes System dar, welches die Grundlage der oft sehr komplizierten Eigenformen dieser Gruppe, sowie ihrer Formänderungen bildet und die fixen Punkte für ihre Lokomotionsorganellen liefert. Im Corticalplasma liegen auch die sog. Trichocysten, ovale, stäbchen- oder spindelförmige Gebilde, welche bei Druck zu langen Fäden explodieren und aus der Oberfläche des Protozoons hervortreten. Näheres über die Trichocysten und ihre Bedeutung findet sich im Kapitel IV, bei den Anpassungen der Ernährungsweise.
Im Zusammenhang mit diesen Bildungen sind auch jene schon oben erwähnten Verfestigungen plasmatischer Substanz zu betrachten, welche in der Achse von Filopodien und Rhizopodien als vorübergehende Stützgebilde vorkommen.
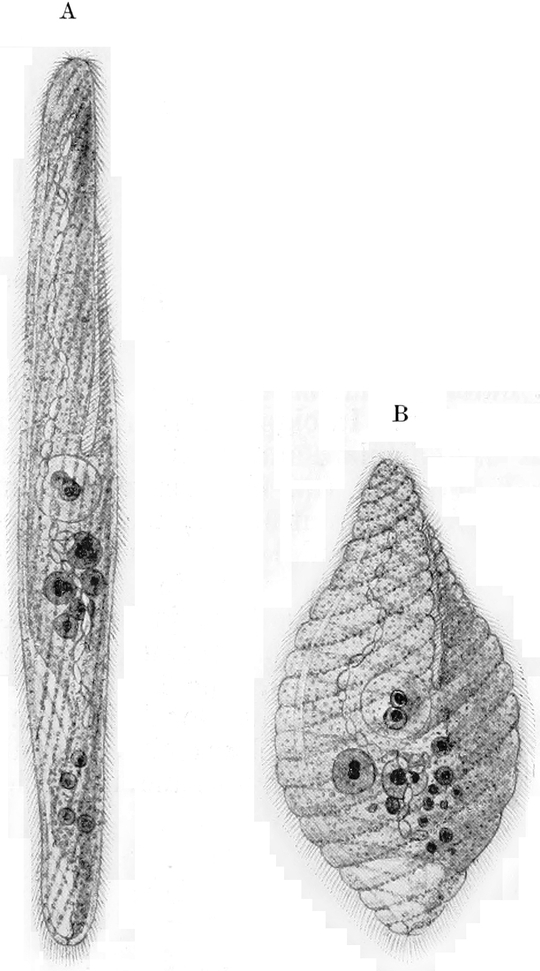
Während die Bildung und Bewegung der gewöhnlichen Lobopodien und Filopodien nach den physikalischen Gesetzen, welche für Flüssigkeiten Geltung haben, speziell nach den Gesetzen der Oberflächenkräfte erklärbar ist, stellen sich dem Verständnis der Rhizopodien mit sogenannter Körnchenströmung (vgl. S. 33) viel größere Schwierigkeiten entgegen. Die auf der einen Seite des Rhizopodiums zentrifugal erfolgende Körnchenwanderung, welcher gleichzeitig eine [S. 49]zentripetale Rückwanderung auf der anderen Seite entspricht, ist nur verständlich, wenn wir eine feste oder gelatinös starre Achse im Zentrum des Rhizopodiums annehmen. Eine solche ist in vielen Fällen mit unseren Hilfsmitteln nicht wahrzunehmen; manchmal jedoch ist sie mit Leichtigkeit erkennbar, so bei den Pseudopodien der Heliozoen. Sie stellt sich dort als stark lichtbrechende, wohlabgegrenzte axiale Bildung dar, welche aus eiweißartiger Substanz besteht, leicht in gewöhnliches Protoplasma umgewandelt werden kann und bei der Neubildung eines Pseudopodiums neu sich verdichtet. Die Substanz kann also vom Gel- in den Solzustand übergehen und umgekehrt. In anderen Fällen, in denen man am lebenden Tier eine solche Achse nicht wahrnehmen kann, ist sie bei geeigneter Fixierung und Färbung darstellbar (Fig. 34 und 35, S. 36).
Solche skleroplasmatische Bildungen können bestimmend für die Form eines Protozoons sein. So ist dies bei den Heliozoen der Fall. Die vielkernigen Heliozoen sind zu ziemlich weitgehenden Formveränderungen befähigt, indem bei ihnen die skleroplasmatischen Pseudopodienachsen frei im Plasma stecken. Die einkernigen Formen sind dagegen relativ sehr formkonstant, da die Pseudopodienachsen bei ihnen entweder an der Kernmembran oder an einem Zentralkorn inserieren. Für Formänderungen solcher Tiere sind stets Formänderungen dieser zentralen Gebilde maßgebend.
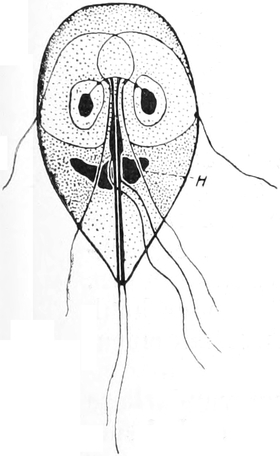
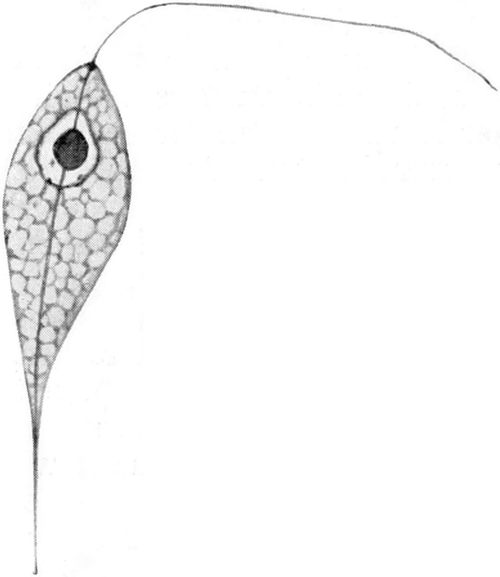
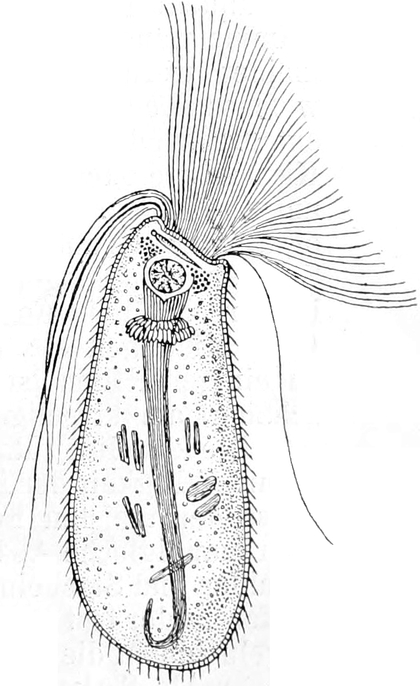
An dieser Stelle wird auch am geeignetsten der Zentralkapselmembranen der Radiolarien zu gedenken sein. Es sind dies kugelschalenförmige oder komplizierter gestaltete Membranen, welche im lebenden oder gut konservierten Körper vieler Radiolarien eine Trennung zwischen dem das Entoplasma und den Kern enthaltenden intrakapsulären Weichkörper und dem aus einem plasmatischen Netzwerk und meist reichlicher Gallertsubstanz bestehenden extrakapsulären [S. 50]Weichkörper herbeiführen (vgl. Fig. 53, S. 44). Die Membran besteht meist aus einer chitinartigen Substanz und wird bei der gewöhnlichen Zweiteilung mitgeteilt. Sie kann mannigfache Formveränderungen und Skulpturen aufweisen, besonders in der Nachbarschaft der Oeffnungen.
Von besonderer Bedeutung ist die Zahl und Anordnung dieser Oeffnungen, welche entweder als einzige größere Perforation der Zentralkapselwand oder in größerer Anzahl, aber dann in Form von feinen Poren den intra- und extrakapsulären Weichkörper verbinden.
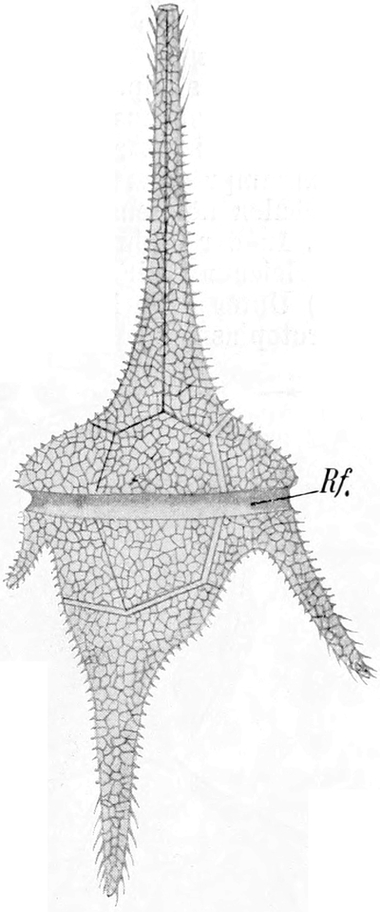
2) Innere Skelettbildungen sind ebenfalls bei den Protozoen weitverbreitet und in verschiedenartigen Formen und mancherlei chemischen Zusammensetzungen ausgebildet. Den skleroplasmatischen Bildungen schließen sich die Fibrillen und Strahlen an, die sich im Körper vieler Protozoen finden.
Solche festen Strukturen sind überall dort vorauszusetzen, wo das flüssige Plasma des Protozoenkörpers in einer mehr oder weniger konstanten Eigenform auftritt. Da sehen wir die Form der stets zur Annahme der Kugelgestalt strebenden Flüssigkeit durch Fibrillen etc. beherrscht, wie das auch bei anorganischen Flüssigkeiten experimentell auf Grund der von Plateau u. a. genauer erforschten Kapillaritätsgesetze dargestellt werden kann. (Vgl. Fig. 61 und 62.)
Solche Stützgebilde können manchmal stabförmig sein und als Achse für die ganze Körpergestalt des Protozoons dienen (Fig. 61 B). Bei den Ciliaten stützen sie nicht selten als sog. Reusenapparat die Schlundröhre.
Indem die äußeren Teile der aus kohlensaurem Kalk gebildeten Kammerwände von Foraminiferen beim Ansatz neuer Kammern umkleidet werden, werden sie zu Bestandteilen eines Innenskelettes, welches aber seiner Entstehung entsprechend keine Funktion und keine entsprechende Struktur besitzt. Anders verhält es sich bei den aus Kieselsäure oder Strontiumsulfat bestehenden Skeletten der Radiolarien und Heliozoen. Wahrscheinlich sind dieselben ebenfalls stets auf eine organische Grundlage zurückzuführen, in welcher die mineralische Substanz eingelagert ist. Diese verkieselten Elemente sind einfachlichtbrechend, in Form von Stacheln, Strahlen, Kugeln, Mehrstrahlern, Gitterbildungen etc. ausgebildet. Sie sind entweder solide oder hohl. In einigen Fällen ist sogar Beteiligung von Fremdkörpern (Diatomeenschalen) am kieseligen Innenskelett nachgewiesen.
Die kieseligen Radiolarienskelette weisen eine geradezu wunderbare Mannigfaltigkeit der Formen auf. Entsprechend der pelagischen Lebensweise der meisten Formen herrscht ein radiärer Bauplan vor, welcher aber mannigfache Abänderungen erfahren kann. Radiäre Anordnung von Strahlen und Stacheln, sowie einhüllende Kugelschalen aus einem Gerüst lockerer oder fest verbundener mehrstrahliger Kieselnadeln, auch Gitterkugeln bilden die wichtigsten Elemente der überaus zierlichen Skelette.
3) Als Sekretionsmembranen oder cuticulare Bildungen stellen wir den pellicularen Hüllen alle jene Hüllbildungen gegenüber, welche einem an der Oberfläche des Ektoplasmas erfolgenden Sekretionsvorgang ihre Entstehung verdanken. Theoretisch ist diese Unterscheidung insofern von Bedeutung, als wir vom lebenden Plasma hervorgebrachte tote Bildungen solchen gegenüberstellen, welche dem lebenden Plasma selbst angehören. Dabei verkenne ich nicht, daß wohl schrittweise Uebergänge zwischen beiderlei Bildungen vorkommen, [S. 51]indem wohl cuticulare Hüllen aus pellicularen durch Umwandlung hervorgehen können. Als praktisch wichtig erweist sich diese Unterscheidung dadurch, daß alle cuticularen Bildungen im Gegensatz zu den pellicularen die Teilungen des lebenden Zellinhaltes nicht mitmachen, sondern bei Fortpflanzungsvorgängen oft als leere Hüllen zurückbleiben.
Die durch Sekretion entstehenden Hüllbildungen können aus sehr verschiedenen Substanzen bestehen und dementsprechend alle möglichen Härtegrade von gallertiger Weichheit bis zu mineralischer Härte besitzen. Ihnen allen gemeinsam ist aber die Eigentümlichkeit einer organischen Grundlage, welche vom Protoplasma in ähnlicher Weise sezerniert wird, wie wir dies oben bei den Amöben und den Gregarinen (S. 42) für gallertartige Sekrete kennen lernten. Die chemische Zusammensetzung der Hüllbildungen ist eine sehr wechselnde: entweder bestehen sie aus Gallerte, aus keratin- oder pseudochitinähnlichen Albuminoïden oder aus Cellulose; die organische Grundlage kann mit Calcium-, Silicium-, Strontium- u. a. -Salzen imprägniert sein oder Fremdkörper der verschiedensten Art enthalten, welche durch Kittsubstanz zu festen Bildungen vereinigt sind. Durch Imprägnierung mit verschiedenen Salzen, Eisensalzen etc. können Hüllbildungen außerdem intensiv gefärbt sein, wobei gelbe und braune Farbtöne vorherrschen.
Morphologisch unterscheiden wir folgende Typen von einhüllenden und stützenden Bildungen, deren Entstehung auf Sekretionsvorgänge zurückzuführen ist:
|
1) Hüllen
|
{
|
a) Membranen
|
|
b) Schalen
|
||
|
2) Gehäuse
|
||
|
3) Stiele
|
||
1) Die Hüllen umgeben den Plasmakörper, indem sie seiner äußeren Schicht, von welcher sie sezerniert worden sind, dicht anliegen. Alle direkten Beziehungen des Plasmakörpers mit der Außenwelt müssen durch Oeffnungen vor sich gehen, welche diese Hülle durchbohren. Bestehen die Hüllen aus Gallerte, so sind sie weich und folgen den Bewegungen des Protoplasmas; bestehen sie aus Pseudochitin oder Cellulose, so sind sie fest und starr und geben dem Protozoon eine formbeständige Gestalt; sie erinnern dann an die Membranen der Pflanzenzellen. Wie diese, bleiben sie nach dem Absterben der Zellen als leere Hüllen zurück. Sie können durch [S. 52]mannigfache Skulpturen ausgezeichnet sein, welche die Oberfläche in Form von Furchen, Leisten, Höckern, Stacheln usw. zieren. Die Cellulosehüllen, welche der Mehrzahl der Dinoflagellaten eigentümlich sind, bestehen aus einer größeren Anzahl von Einzelplatten, welche in gesetzmäßiger Anordnung den Körper umschließen. Auch sie können reich skulptiert und mit Fortsätzen versehen sein.
Indem eine aus pseudochitiniger Substanz bestehende Hülle sich mit Mineralsalzen, also z. B. Calciumcarbonat oder einer Siliciumverbindung imprägniert, entsteht eine harte Schale; diese Kiesel- oder Kalkschalen können sich im übrigen vollkommen wie Membranen verhalten. In der Mehrzahl der Fälle sind sie aber eher den Gehäusen zu vergleichen. Wir betrachten sie daher im Zusammenhang mit diesen.
2) Unter Gehäusen verstehen wir Hüllbildungen, von denen der Protoplasmakörper sich, nachdem er sie ausgeschieden hat, zurückzieht, so daß zwischen ihm und der Gehäusewand ein Zwischenraum entsteht. Mit der Wandung hängt der Protoplasmakörper an einer oder mehreren Stellen durch Fortsätze zusammen. Gehäuse besitzen zur Kommunikation mit der Außenwelt eine oder mehrere Oeffnungen, durch welche der Protozoenkörper selbst oder seine Fortsätze weit vorgestreckt werden können: der freie Zwischenraum innerhalb des Gehäuses erlaubt bei Gefahren ein vollkommenes Zurückziehen des ganzen Tieres in den Schutz der Schale.
Gallertgehäuse sind weit verbreitet unter den Flagellaten und Ciliaten. Indem bei solchen Formen die Gehäuse nach der Teilung der Tiere vereinigt bleiben, entstehen oft große Protozoenkolonien, welche in Gallertklumpen eingeschlossen sind.
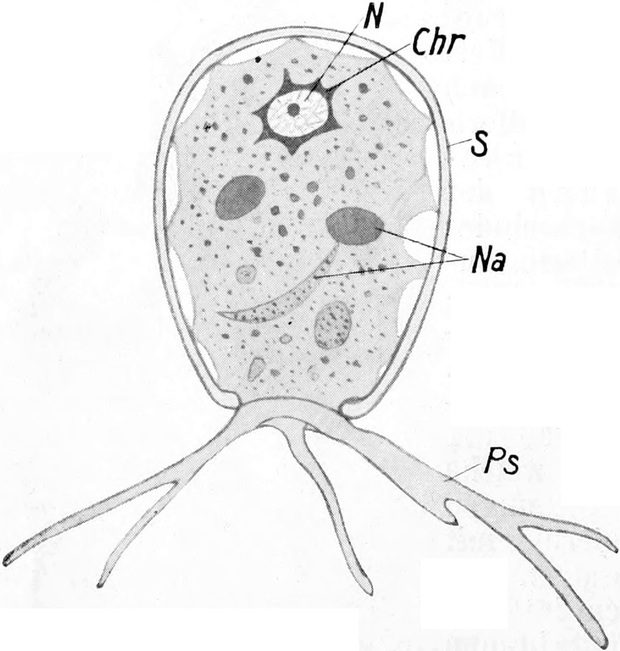
Bei den häutigen Gehäusen, welche meist aus chitinartigen Substanzen bestehen (s. auch Fig. 64), finden wir ähnliche Kolonienbildungen, nur daß hier infolge der Zartheit der Hüllbildungen keine solchen massigen Klumpen entstehen, wie bei den Gallertgehäusen. Die gallertigen und häutigen Gehäuse, welche hauptsächlich bei Flagellaten und Ciliaten vorkommen, sind meist in Form von röhrenförmigen Stielhüllen oder von schüssel-, becher-, urnen- und röhrenförmigen Aufnahmegefäßen für den Tierkörper ausgebildet.
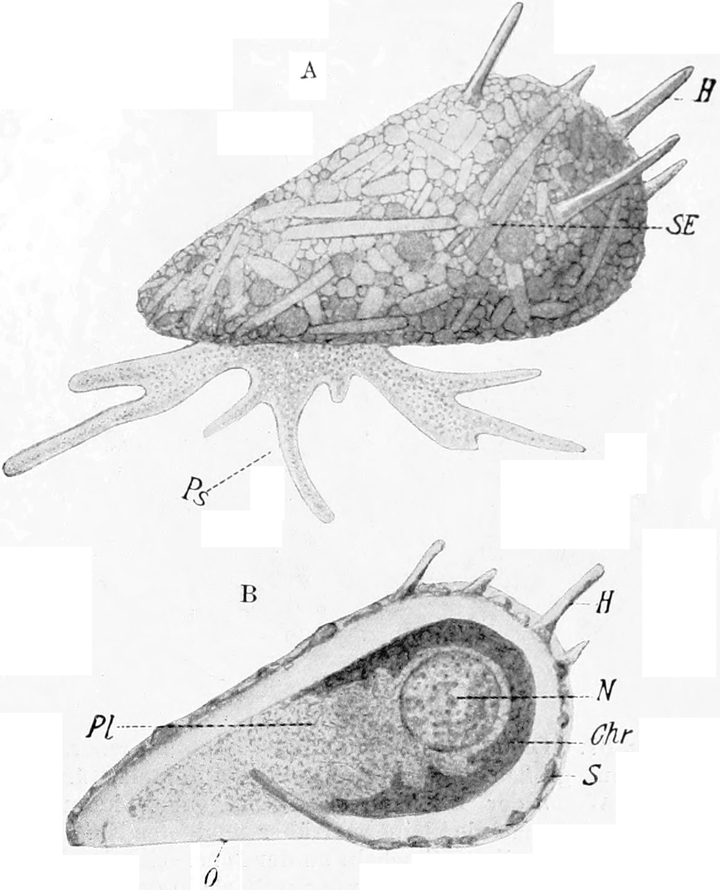
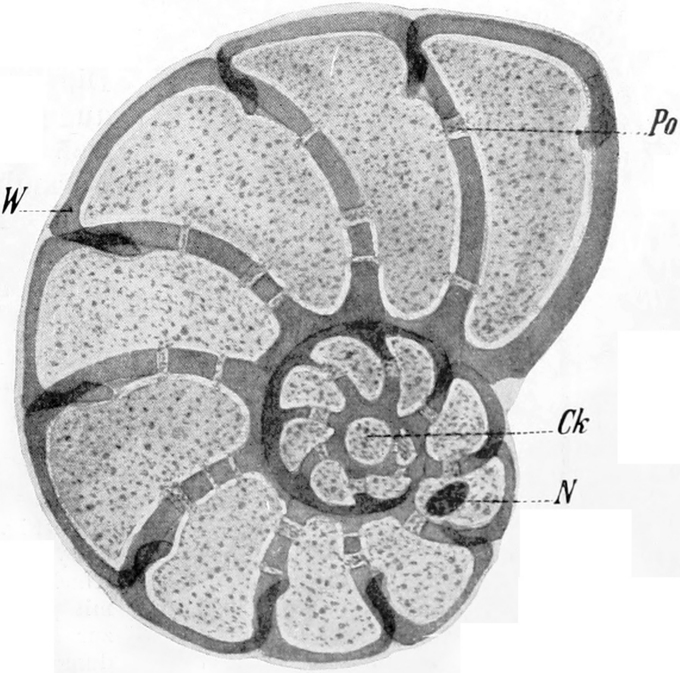
Viel mannigfaltiger sind die Formen bei den Gehäuse- und Schalenbildungen der Rhizopoden. Hier finden wir alle Uebergänge [S. 53]von Hüllen zu Gehäusen und die mannigfachsten chemischen Zusammensetzungen dieser Gebilde. Das Gehäuse kann rein aus organischer Substanz bestehen (Pseudochitin nach Awerinzeff) und dann mehr oder weniger zart und biegsam sein (Fig. 64); in diesem Fall ist eine feinwabige Struktur der Gehäusewandung nachweisbar. Oder es kann zu einer zarten inneren organischen Lage eine äußere Wandschicht hinzukommen, welche durch mineralische Substanzen eine Verfestigung erfahren hat. Vielfach handelt es sich dabei um die Verwendung von Fremdkörpern. Kleine Steinchen, Sandpartikel, Schlamm, Schalen von anderen Organismen (Diatomeen, Peridineen etc.) werden an der Außenseite der organischen Hülle angeklebt oder dort selbst durch eine ebenfalls organische Kittsubstanz zu einer festen Schale vereinigt. Solche Fremdkörperschalen (Fig. 65) kommen bei Süßwasserthalamophoren, marinen Foraminiferen, bei Flagellaten und Ciliaten vor. Vielfach geschieht die Schalenbildung einfach in der Weise, daß an die [S. 54]weich ausgeschiedene Hüllsubstanz zufällig im Wasser suspendierte Partikel sich ansetzen und kleben bleiben. Bei den Rhizopoden erfolgt eine aktive Aufnahme von Fremdkörpern durch die Pseudopodien in das Innere des Protoplasmas und eine nachträgliche Ablagerung an der Oberfläche. Andere Formen vermögen in ihrem Protoplasma im Innern des Körpers Schalenelemente zu produzieren; dieselben bestehen meist aus Kieselsäure und werden in der Regel in Form von Plättchen oder Schüppchen ausgeschieden und später (bei der Teilung) an der Oberfläche zu einer einheitlichen Schale zusammengefügt. Diese aus Kieselsäure bestehenden Skelette sind einfachlichtbrechend und dadurch wesentlich von den doppeltlichtbrechenden Quarzstückchen etc. unterschieden, welche meist einen großen Anteil an den Fremdkörperskeletten haben. Die kompliziertesten Schalenbildungen sind die Kalkschalen, welche nur bei den marinen Foraminiferen bekannt geworden sind. Bei ihnen ist die organische Grundlage der Schale meist nicht sehr dicht und daher in manchen Fällen schwer nachweisbar. Um so mächtiger kann die Ablagerung von kohlensaurem Kalk werden; während manche Schalentypen durchscheinend [S. 55]oder glasartig durchsichtig sind, können andere Formen eine Schalensubstanz von porzellanartiger Undurchsichtigkeit und opakem, weißem Aussehen besitzen. Diese Unterschiede beruhen hauptsächlich auf Verschiedenheiten in der feineren Struktur der Schalenmasse.
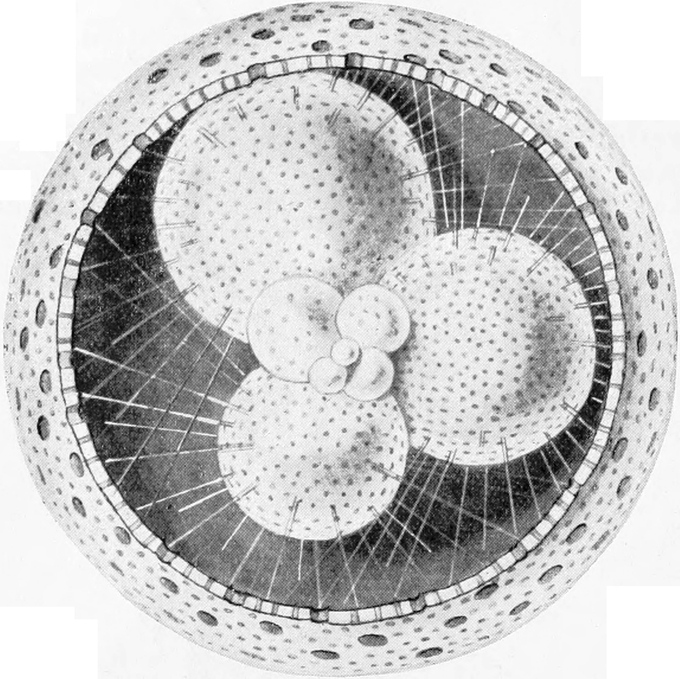
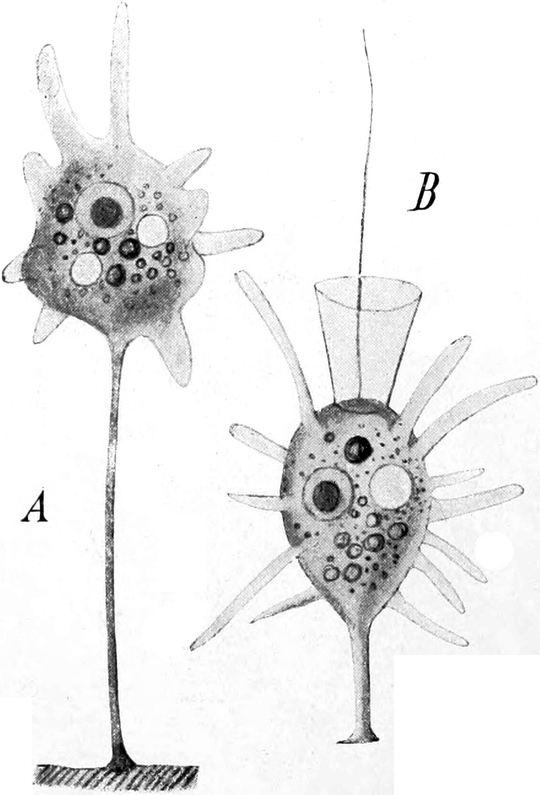
Unter den Kalkschalen finden wir zwei Haupttypen: entweder sind die Schalen mit nur einer Mündung versehen und sonst allseitig als kompakte Schalen ausgebildet, oder sie sind außerdem noch von zahlreichen feinen Oeffnungen durchbohrt (Fig. 67). Danach unterscheidet man imperforate und perforate Schalen.
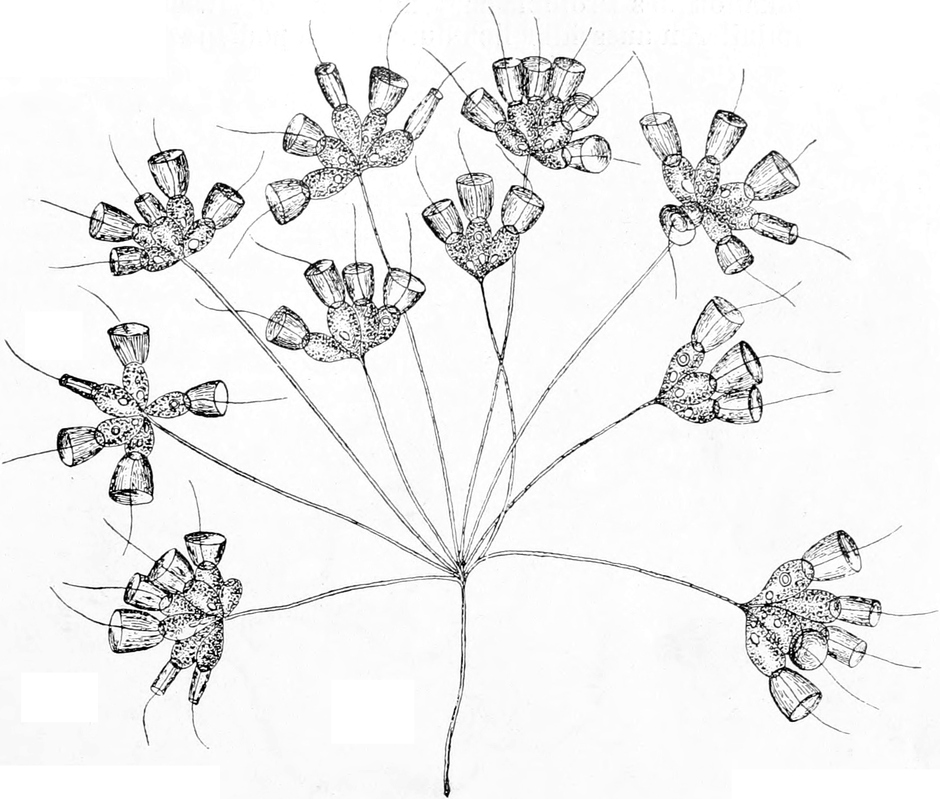
Diese feinen Oeffnungen sind die äußeren Mündungen der Porenkanäle, welche die Dicke der Schalenwand durchsetzen und eine Verbindung zwischen dem Schaleninnern und der Außenwelt herstellen. Diese Porenkanäle sind sehr fein, ihre Weite schwankt zwischen ½ µ und 15 µ. Die Kalkschalen können Schichtungen ihrer Substanz und an der Außenseite die verschiedenartigsten Strukturen aufweisen, unter denen die Bildung langer Stacheln die auffallendste ist.
Die merkwürdigste Erscheinung an den Kalkschalen ist das Auftreten der Kammerung (Fig. 66 und 67), welche sich sowohl bei perforaten als bei imperforaten Schalen zeigt. Die eine Protozoenzelle, welche nach einem Fortpflanzungsakt das junge Foraminifer darstellt, umhüllt sich mit einer einfachen Kalkschale. Bei den einkammerigen Formen oder Monothalamen bleibt es bei der Bildung dieser [S. 56]einen Schale; bei den vielkammerigen Formen oder Polythalamen jedoch tritt beim Wachstum des Tieres ein Teil seines Plasmas aus der oder den Schalenöffnungen hervor und bildet eine neue Schale, welche sich in einer gesetzmäßigen Weise an die alte Schale anlegt und mit derselben verschmilzt. Indem dieser Vorgang sich öfter wiederholt, entstehen die vielkammerigen Schalen, deren außerordentlich mannigfaltige Formen später Erwähnung finden sollen. Da die Kalkschale vollkommen starr ist, so dienen die Mündungen und Poren zur Kommunikation des Protoplasmas mit der Außenwelt, welche hier bei den Foraminiferen ausschließlich durch Rhizopodien vermittelt wird.
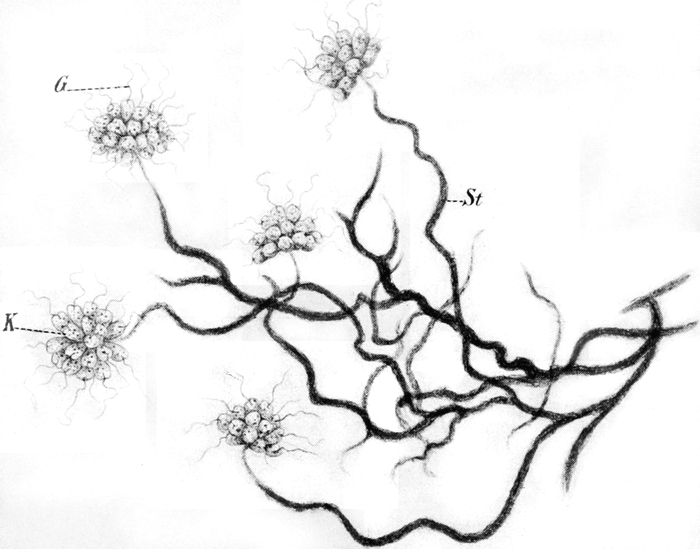
3) Stiele sind bei den Protozoen weit verbreitet; denn fast in allen Abteilungen finden wir festsitzende Formen. Vielfach besteht die Stielbildung nur in einer stielförmigen Verlängerung desjenigen Teiles des Protozoenkörpers, mit welchem die Festheftung an einer Unterlage stattgefunden hat. Meist wandelt sich dann das Plasma in eine feste Substanz um, oder es scheidet an seiner Oberfläche Hüllbildungen aus, welche ähnlich wie die oben behandelten sezernierten Hüllbildungen aus ganz verschiedenartigen Substanzen bestehen können. Wir unterscheiden demnach:
- a) protoplasmatische Stiele,
- b) pelliculare Stiele,
- c) Stiele aus Hüllsubstanzen.
a) Protoplasmatische Stiele kommen bei niederen Rhizopoden, bei Flagellaten und Ciliaten häufig vor. Meist entsprechen sie [S. 57]in Substanz, Struktur und sonstigem Verhalten einem Pseudopodium (Fig. 68). Aehnlich wie ein solches können sie eingezogen werden; doch scheint in den meisten Fällen die freie Beweglichkeit nicht mehr vorhanden zu sein. Flagellaten benutzen manchmal eine Geißel zu stielartiger Festheftung.
b) Pelliculare Stiele sind oft von denjenigen aus Hüllsubstanzen schwer zu unterscheiden. Sie bestehen aus Eiweißsubstanzen, zeigen im Aufbau deutlich alveoläre Struktur und lassen sich entwicklungsgeschichtlich vielfach auf plasmatische Stiele zurückführen.
c) Die Stiele aus Hüllsubstanzen sind am weitesten bei den Protozoen verbreitet. Die einfachste Bildung repräsentieren Formen, welche in ähnlicher Weise Gallerte ausscheiden, wie wir dies oben bei den Gregarinen sahen (S. 42). Solche Gallertausscheidung führt zur Bildung eines sich stielartig verlängernden, weiterwachsenden Trägers, welcher bei der Teilung des Protozoons sich dichotomisch verästelt und im Verlauf der Zeit sich zur Bildung einer ansehnlichen Kolonie verzweigen kann (Fig. 70 und 71). Solche gallertige Stiele können sich mit Fremdkörpern inkrustieren.
Auch aus pseudochitinigen Substanzen werden sehr häufig Stiele gebildet, welche entweder starr sein können, wie bei den Choanoflagellaten, oder elastisch, wie bei den Vorticellinen. Bei ersteren sind die Stiele solid, bei letzteren hohl und beherbergen im Innern den Muskelfaden, welcher die spiralige Kontraktion des Stiels herbeiführt, während seine Expansion durch die Elastizität der Stielwand bewirkt wird.
Auch verkieselte Stielbildungen sind bekannt geworden, z. B. bei dem Heliozoon Clathrulina elegans.
Die Stiele sitzen meist mit einer tellerförmigen Verbreiterung der Unterlage auf, in anderen Fällen scheinen wurzelförmige Fäserchen vorzukommen. Während die Stiele bei manchen Formen sehr kurz sind und nur der Festheftung an der Unterlage dienen, dabei manchmal dem Körper eng anliegen oder in ihn sogar eingesenkt sind, erheben sie sich in anderen Fällen baumartig über die Unterlage und bieten dadurch ihren Besitzern bedeutende biologische Vorteile.
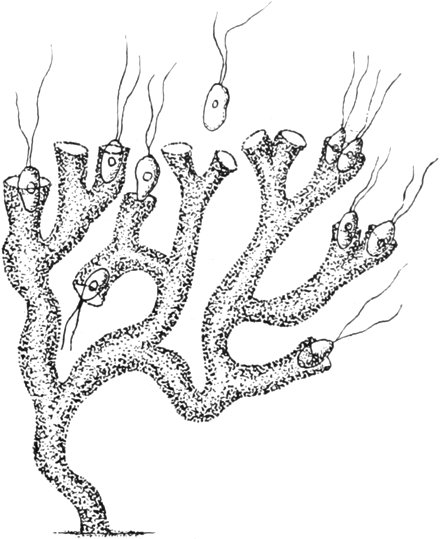
F. Die im Dienste der Ernährung stehenden Differenzierungen des Protozoenkörpers.
Die nackten Protozoen, also vor allem die Amöben, bedürfen zur Nahrungsaufnahme keiner besonderen Differenzierungen; jede Stelle des Ektoplasmas ist zu diesem Zweck geeignet. Unter den für [S. 58]die betreffende Art typischen Bewegungsformen umfließt das Protoplasma den Nahrungskörper und nimmt ihn in das Innere des Ektoplasmas auf, indem dabei in der Regel eine Flüssigkeitsvakuole entsteht. Die Protoplasmaströmung trägt die so entstandene Nahrungsvakuole durch alle Regionen des Amöbenkörpers, wobei sich allmählich die Verdauungsvorgänge abspielen; schließlich werden die unverdaulichen Reste in einer der Aufnahme entsprechenden Weise entleert, oder vielmehr einfach auf dem Weg der sich bewegenden Amöbe zurückgelassen, wobei ebenfalls eine beliebige Stelle des Ektoplasmas als Austrittsstelle funktioniert. In keiner Phase des ganzen Vorganges finden wir ihn an eine bestimmte Region des Amöbenkörpers gebunden.
Bei denjenigen Rhizopoden, welche mit fester Schale oder mit Gehäuse versehen sind, finden wir nur unwesentliche Modifikationen dieser Erscheinung. Eine gewisse Lokalisation der Aufnahme und Abgabe ist dadurch gegeben, daß bei den Schalenbildungen mit größerer Mündung Nahrungskörper, welche durch die Pseudopodien aufgenommen wurden, immer durch diese Mündung in das Innere des Plasmaleibes gezogen werden, und daß die Nahrungsreste auf dem Weg durch diese Region den Körper wieder verlassen müssen. Bei Formen mit sehr kleinen Oeffnungen, z. B. bei den perforaten Foraminiferen ist es oft ausgeschlossen, daß größere Nahrungskörper durch die Poren in das Innere des Körpers gelangen. In diesem Fall tritt eine Verdauung resp. Auflösung der brauchbaren Substanzen außerhalb der Schale ein. Die Rhizopodien heften sich in größerer Anzahl an eine Beute und umfließen sie allseitig, eine größere Plasmaansammlung strömt aus dem Schaleninnern um sie herum zusammen und funktioniert wie eine selbständige kleine Amöbe, welche, mit Nahrung beladen, unter Zurücklassung der Faeces später allmählich an den Rhizopodien entlang wieder in das Innere der Schale zurückkehrt. Hier wird also sozusagen ein temporäres Verdauungsorgan gebildet, welches aber an jeder Stelle des Rhizopodiennetzes zu jeder Zeit auf adäquaten Reiz hin gebildet werden kann (vgl. Fig. 96, S. 82).
Ganz anders müssen sich natürlich alle diejenigen Protozoen verhalten, welche allseitig durch eine feste Pellicula, Cuticula oder ähnliche Hüllenbildungen etc. eingeschlossen sind. Wenn sie, wie die Parasiten, sich nur durch osmotisch in ihren Körper eindringende flüssige Nahrung ernähren, haben sie allerdings keine Oeffnungen des Körpers notwendig. Sobald sie aber wie die Mehrzahl der freilebenden Protozoen feste, geformte Nahrung aufnehmen müssen, welche vielfach ebenfalls geformte Faeces zur Folge hat, bedürfen sie besonderer Mund- und Afteröffnungen. Mund und After (auch Cytostom und Cytopyge benannt) stellen also im einfachsten Fall eine weich und flüssig gebliebene Stelle der Oberfläche der protoplasmatischen Leibessubstanz des Tieres dar, welche ringsum von der Hüllbildung eingeschlossen ist und sich daher als abgegrenztes Zellorgan darstellt. Indem insbesondere die Mundöffnung vielfach von der Körperoberfläche in die Tiefe versenkt und mit allen möglichen Hilfsapparaten versehen wird, entstehen manchmal sehr kompliziert gebaute Cytostome.
Indem die Nahrung mit der weichen Protoplasmaoberfläche des Cytostoms in Berührung gebracht wird, wird sie in einer Art und Weise in das Innere des Tierkörpers aufgenommen, welche prinzipiell mit den Vorgängen übereinstimmt, welche wir bei den Rhizopoden [S. 59]oben kennen gelernt haben. Wenn der Nahrungskörper wider die Protoplasmaoberfläche gepreßt wird, sinkt er in dieselbe ein und wird, umgeben von einer Flüssigkeitsvakuole, der sog. Empfangsvakuole oder Freßvakuole, in das Innere des Plasmas aufgenommen, wo sie dann als Nahrungsvakuole durch die Protoplasmaströmung umhergetragen wird.
Um nun den Nahrungskörper in Berührung mit dem Plasma zu bringen, werden zwei prinzipiell verschiedene Methoden angewandt, welche aber vielfach miteinander kombiniert erscheinen. Entweder das Protozoon bewegt sich selbst zu seinem Nahrungsobjekt hin oder erteilt diesem eine passive Beweglichkeit, welche es in seinen Mund hineinstrudelt.
1. Erfassen der Nahrung durch aktive Beweglichkeit.
Im einfachsten Fall ist das Cytostom durch eine Grube am Vorderende des Tieres repräsentiert, in welche bei der durch die Bewegungsorganellen vermittelten Eigenbewegung die Nahrungspartikel hineingepreßt werden. Das ist der Fall bei zahlreichen Flagellaten, bei denen jedoch meist der Nahrungskörper auch noch durch die Geißel in Bewegung versetzt wird, indem er der Cytostomstelle zugeschleudert wird.
Bei den Ciliaten, welche oft in einer entsprechenden Weise ihre Nahrung aufnehmen, finden wir vielfach eine sehr erweiterungsfähige Mundöffnung, welche in der Regel geschlossen ist, bei der Nahrungsaufnahme aber weit geöffnet werden kann. Bei solchen Formen setzt sich das Cytostom vielfach in einen Cytopharynx fort, eine ebenfalls sehr erweiterungsfähige, schlundartige Röhre, deren Wand oft durch eine Schicht nahe aneinander gelagerter, paralleler skleroplasmatischer Stäbchen gestützt wird. Eine derartige Schlundbewaffnung wird als Reusenapparat bezeichnet. Sie kann es ihren Trägern auch ermöglichen, lebende Beute, besonders andere Protozoen, zu packen und allmählich herunterzuschlucken (Fig. 72 und 102).
Aber auch bei den Ciliaten ist häufig die Nahrungsaufnahme auf kombinierte Wirkung der Eigenbeweglichkeit und eines Strudelapparates zurückzuführen.
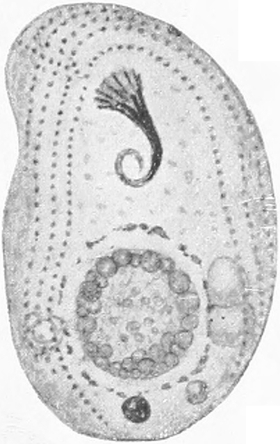
2. Nahrungsaufnahme durch Strudelapparate.
Sowohl bei den Flagellaten als auch bei den Ciliaten sehen wir nicht nur die gewöhnlichen Bewegungsorganellen in den Dienst der Nahrungsaufnahme treten, sondern wir finden auch besondere nach dem gleichen Typus gebaute, ausschließlich der Nahrungsaufnahme dienende Organellen. Das ist, wie leicht einzusehen, insbesondere bei den festsitzenden Formen der Fall. Bei den festsitzenden Flagellaten und Ciliaten sehen wir vielfach den ganzen Habitus der Tiere der Nahrungsaufnahme durch Strudelapparate angepaßt. [S. 60]Während nämlich der Teil des Körpers, mit welchem die Befestigung an der Unterlage erfolgt, meist verschmälert ist, oft einen dünnen Stiel bildet, ist der Teil, welcher den Strudelapparat trägt, oft trichterförmig erweitert, ja oftmals zu einem regelrechten weitmündigen Trichter umgebildet; auf diese Weise wird eine bedeutende Vergrößerung der Nahrung auffangenden Oberfläche erzielt. In sehr vollkommener Weise wird dieser Organisationstypus repräsentiert durch die Peristombildungen der Ciliaten Stentor, Folliculina und durch die Vorticelliden, bei welchen Cilien, Membranellen und undulierende Membranen zusammenwirken, um die zum Cytostom hinführende Wasserbewegung zu erzeugen. Es ist dann meist das vordere Ende des Tieres zu einer flachen oder vertieften Scheibe, der Peristomscheibe, erweitert, welche sich in eine meist exzentrisch gelegene röhren- oder trichterförmige Höhlung, das Vestibulum, zum Cytopharynx und zur Mundöffnung einsenkt (vgl. Fig. 4, S. 16). Eine oder mehrere Reihen von Cilien oder Membranellen sind in der Weise auf der Peristomscheibe angebracht, daß eine spiralige Reihe von Bewegungsorganellen entsteht, die sog. adorale Zone, deren Fortsetzung die Cilien, Membranellen oder undulierenden Membranen sind, welche sich in das Vestibulum hineinerstrecken. Ganz eigenartig ist die Trichterbildung bei der Vorticellide Spirochona, deren einzige Körpercilien, an der Innenseite des Trichters sitzend, die Strudelbewegung hervorrufen (Fig. 74).
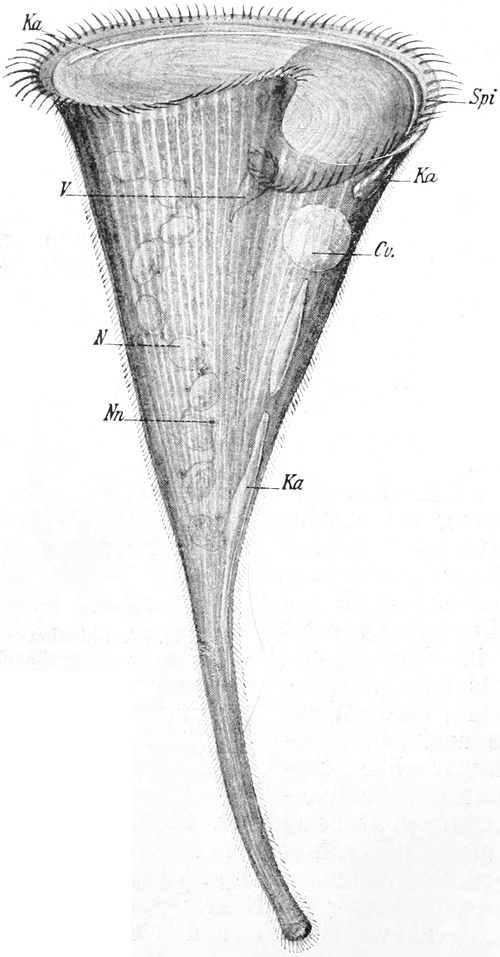
Eine hohe Ausbildung des Strudelapparates ist aber nicht auf die festsitzenden Formen beschränkt, sondern findet sich auch vielfach bei freibeweglichen; und zwar besitzen einen solchen vorwiegend Bakterienfresser und Omnivoren. Bei den freibeweglichen Formen liegt das Peristom sehr oft seitlich oder ganz ventral. Es kann auch [S. 61]hier trichterförmig eingesenkt und mit einer adoralen Zone und mit undulierenden Membranen versehen sein.
Während die Ciliaten mit Mundbewaffnung den Mund nur zur Aufnahme ihrer meist aus ganzen Protisten u. dgl., also relativ größeren Objekten bestehenden Nahrung öffnen, ist er bei den Formen mit Strudelapparaten kontinuierlich geöffnet, und durch den Wasserstrom werden beständig brauchbare und unbrauchbare Gegenstände dem Munde zugeführt.
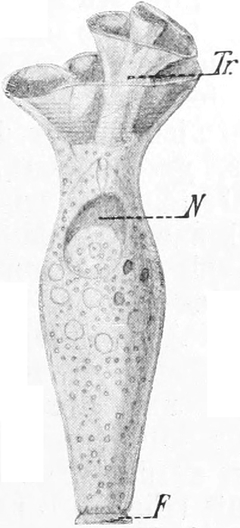
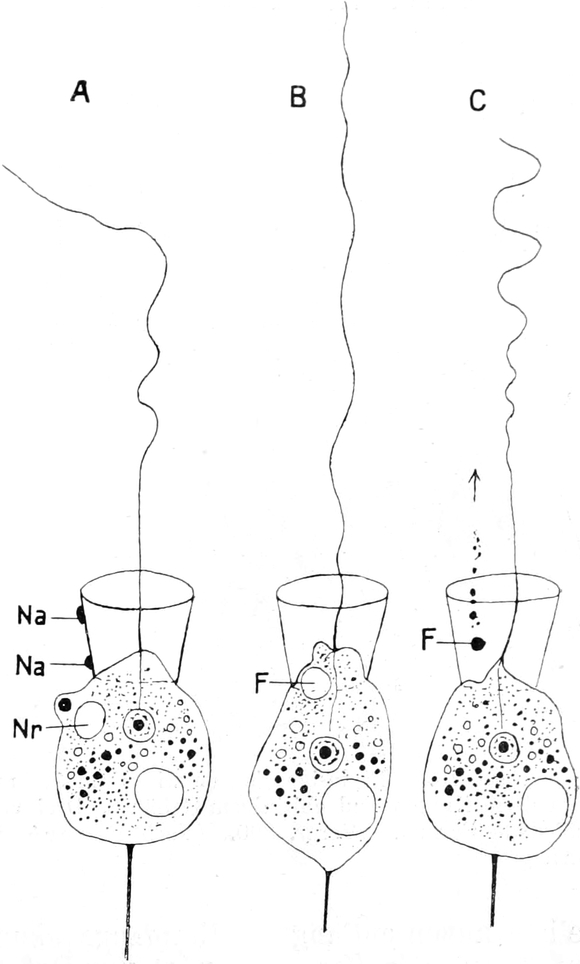
Nach einem ganz anderen Prinzip funktionieren die Strudelapparate der Flagellaten. Auch hier haben wir vielfach die Formen mit verschmälertem Stiel und verbreitertem Vorderende. Es sind aber nur eine oder wenige (2–3) Geißeln, welche an diesem Vorderende sitzen. Diese entspringen vielfach im Grunde oder an der Seitenwand einer mehr oder weniger tiefen Grube, welche als Cytopharynx gedeutet wird, ohne daß in allen Fällen ihre Beteiligung bei der Nahrungsaufnahme nachgewiesen wäre. Dieser Cytopharynx kann ähnlich wie bei den Ciliaten durch feste plasmatische Differenzierungen gestützt sein.
Die eigentlich als Strudelapparate zu bezeichnenden Einrichtungen bei den Flagellaten finden wir bei den Choanoflagellaten, deren meist festsitzender Körper seine trichterförmige Erweiterung durch die Ausbildung [S. 62]des sogenannten Kragens erfährt. Es ist dies ein sehr dünnes, zartes, meist glasartig durchsichtiges Plasmahäutchen, welches wie ein vollkommener Trichter den Basalteil der einzigen, apikal sitzenden Geißel des Tieres umgibt. Auch Doppeltrichter sind beobachtet worden (Fig. 76).
Dieser Kragen ist eine echte Plasmabildung, er ist fähig, seine Gestalt zu verändern, sich zu verkürzen und zu verlängern, sich zu erweitern und zu verengern. Er kann eingezogen und wieder neugebildet werden.
Durch die Geißelbewegung werden Nahrungspartikel gegen die Körperwand des Tieres außerhalb des Kragens, an eine Stelle dicht hinter dessen Basis, geschleudert, woselbst ähnlich wie bei den kragenlosen Monaden jederzeit eine Empfangsvakuole gebildet werden kann. Auch können sie außen am Kragen ankleben und durch strömende Bewegung desselben außen entlang zur Empfangsvakuole geführt werden (Fig. 75 A). Im Innern des Kragens findet nur Defäkation statt (Fig. 75 B und C). Die Bewegungen der Geißel befördern Faeces mit Vehemenz weit weg vom Tiere.
Die Saugröhren der Suctorien.
Die zu den Ciliophoren gehörigen Suctorien sind zur Nahrungsaufnahme mit besonderen, eigenartigen Organellen ausgestattet. Es sind dies die Saugröhren (auch Tentakel, Saugfüßchen genannt), meist sehr dünne, zylindrische, röhrenförmige Fortsätze des Ektoplasmas. Sie sind hyalin, fast durchsichtig, auffallend geradegestreckt, von einer geraden inneren Röhre durchzogen, welche tief ins Ektoplasma des Körpers hineinreicht; am distalen Ende sind sie vielfach „geknöpft“, d. h. knopfförmig verdickt (Fig. 77). Vielfach sind sie am Körper auf lappenartigen Fortsätzen in Büscheln vereinigt. In eigenartiger Weise werden sie bei Dendrocometes von den sog. Armen getragen, Fortsätzen des Körpers, welche wie aus verschmolzenen Saugröhrchen gebildet erscheinen.
Als protoplasmatische Fortsätze sind die Saugröhrchen beweglich, wenn auch alle Bewegungen sehr träge sind. Sie können gekrümmt, geschwungen, eingezogen und neugebildet werden.
[S. 63]
Sie dienen der Ernährung der Suctorien, indem sie andere Protisten, welche an ihrer klebrigen Oberfläche hängen geblieben sind, aussaugen, wobei der Körperinhalt der Beute durch die Röhren in das Entoplasma der Suctorie geleitet wird.
Zellafter.
Wo eine präformierte Stelle als normale Austrittstelle der Fäkalien dient, bildet sie meist eine rundliche oder schlitzförmige Durchbrechung der Körperhülle. Eine besondere Stützung oder sonstige Verfestigung des Zellafters (der Cytopyge, auch Cytoprokt genannt, Fig. 78) scheint nicht vorzukommen.
Präformierte Organe für die verschiedenen Etappen der Verdauung sind bisher im Protozoenkörper nicht nachgewiesen worden, wenn auch bei manchen Protozoen mit konstanter Eigenform die Nahrungskörper resp. Nahrungsvakuolen regelmäßig einen bestimmten Weg im Plasmakörper zurücklegen, währenddessen gewöhnlich in derselben Körperregion dieselben Umsetzungsvorgänge an den Nahrungskörpern erfolgen. Bei den meisten Formen ist aber eine solche Regelmäßigkeit nicht wahrnehmbar, und die Lokalisation der Verdauungsvorgänge ist durch die äußeren Bedingungen jeweils beeinflußt.
G. Exkretionsorganellen.
(Die kontraktilen Vakuolen.)
Fast alle im Süßwasser lebenden Protozoen besitzen ein sehr charakteristisches Zellorgan, dem man wohl mit Recht sowohl respiratorische als auch exkretorische Funktion zuschreibt. Es ist dies die sog. kontraktile oder pulsierende Vakuole.
[S. 64]
Bei vielen Formen mit reichlich vakuolisiertem Plasma ist sie äußerlich nicht von den übrigen größeren Zellsaftvakuolen unterscheidbar. So z. B. bei Actinosphaerium, wo die über die Oberfläche sich vorwölbenden kontraktilen Vakuolen an beliebigen Stellen auftreten können, um zu platzen, sobald sie eine gewisse Größe erreicht haben (Fig. 2, S. 10). In ähnlicher Weise sind die kontraktilen Vakuolen bei den meisten Formen mit amöboider Beweglichkeit an keine bestimmte Stelle des Körpers gebunden, während ihrer Bildung und Füllung können sie von den Strömungen im Protoplasma des ganzen Tieres herumgeführt werden.
Je konstanter die Eigenform eines Protozoons ist, um so konstanter pflegt auch die Lokalisation der kontraktilen Vakuole zu sein. Besonders bei den Ciliaten und Flagellaten mit derben Körperhüllen pflegen die kontraktilen Vakuolen an ganz bestimmten Stellen des Körpers oberflächlich im Plasma zu liegen, an bestimmten Stellen sich nach außen zu öffnen und durch bestimmt gelagerte und geformte Zuführungskanäle gefüllt zu werden.
Während bei vielen Formen mehrere kleine Bildungsvakuolen unregelmäßig angeordnet im Umkreis der kontraktilen Vakuole auftreten, um jedesmal, nachdem dieselbe ihren Inhalt nach außen entleert hat, zur Neufüllung der Hauptvakuole verwendet zu werden, kommen bei anderen Arten in konstanter Anzahl regelmäßig kanal- oder birnförmige Bildungsvakuolen vor (vgl. z. B. Paramaecium Fig. 43, S. 37). Paramaecium besitzt 6–10 birnförmige Bildungsvakuolen, welche rosettenartig die Hauptvakuole umgeben. Bei anderen Formen, z. B. Ophryoglena (Fig. 79), ist eine große Anzahl feiner zuführender Kanäle (bis 30) vorhanden, welche aus dem ganzen Körper in die zentral gelegene Vakuole zusammenstrahlen; während sie sich füllen, schwellen ihre zentralen Enden an, die distalen kollabieren, so daß schließlich ein ähnliches Bild wie bei Paramaecium auftritt. Bei Frontonia leucas sind die 8–12 zuführenden Kanäle über die ganze Körperoberfläche ausgebreitet und in ihrem Verlauf stark geschlängelt; sie sind eng kanalförmig, distal wenig verengert.
Bei anderen Formen, z. B. Spirostomum und Stentor (vgl. Fig. 73) ist die Zahl der zuführenden Kanäle auf 1–2 reduziert, welche eine konstante Lage haben.
Ebenso konstant ist bei vielen Ciliophoren und manchen Flagellaten die Entleerungsstelle, durch welche die kontraktile Vakuole ihren Inhalt nach außen spritzt: der Exkretionsporus, welcher, wenn eine Pellicula oder eine verfestigte Hautschicht von anderer Art vorliegt, in derselben ausgespart ist. Derselbe liegt vielfach in der Nähe des Zellafters. — Manchmal kommt auch ein konstantes Porenkanälchen vor.
Bei Vorticelliden und Eugleniden ist an Stelle des letzteren ein Reservoir eingeschaltet, ein der Harnblase vergleichbarer, bald [S. 65]beutelförmig weiter, bald kanalartig enger Hohlraum, welchen die Flüssigkeit passieren muß, ehe sie ins Freie gelangt. Das Reservoir ist bei den Vorticelliden mit einer festeren Membran ausgekleidet, bei manchen Formen ist die Wand sogar, wie es scheint, mit kontraktilen Fibrillen versehen. Das Reservoir mündet bei den Vorticelliden in das Vestibulum, bei den Eugleniden in den sog. Cytopharynx. Bei der Vorticellide Campanella sind an Stelle des Reservoirs 2 konstante, mit fester Hüllschicht versehene Entleerungskanäle vorhanden (Fig. 81 A und B). Noch komplizierter sind die Exkretionsorganellen der Dinoflagellaten. Bei diesen münden in die Geißelspalte zweierlei [S. 66]flüssigkeitssammelnde Hohlräume aus, welche wahrscheinlich immer getrennte Ausführungsgänge besitzen. Die eine Sorte erinnert in ihrer Konfiguration sehr an die kontraktilen Vakuolen der Euglenen. Eine Sammelvakuole ist von einem Ring zuleitender Vakuolen umgeben, welche ihren Inhalt in die erstere ergießen, während diese selbst durch einen Ausführgang mit der Geißelspalte in Verbindung steht. (Fig. 82 1 sp. Sammelpusule nach Schütt.)
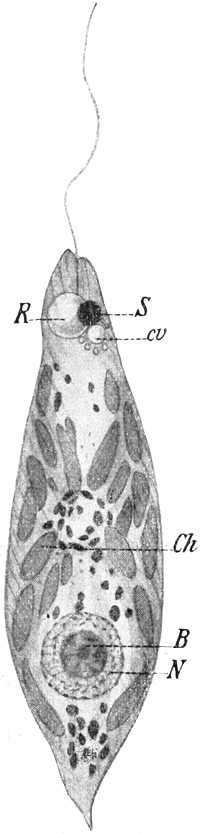
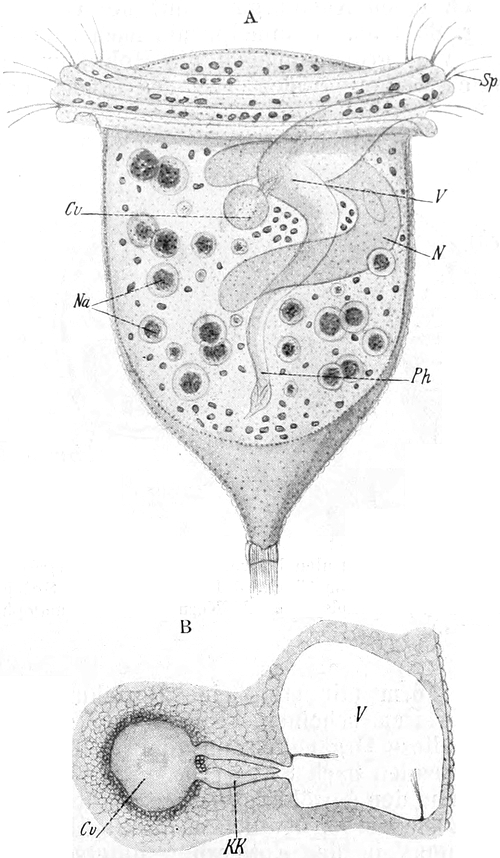
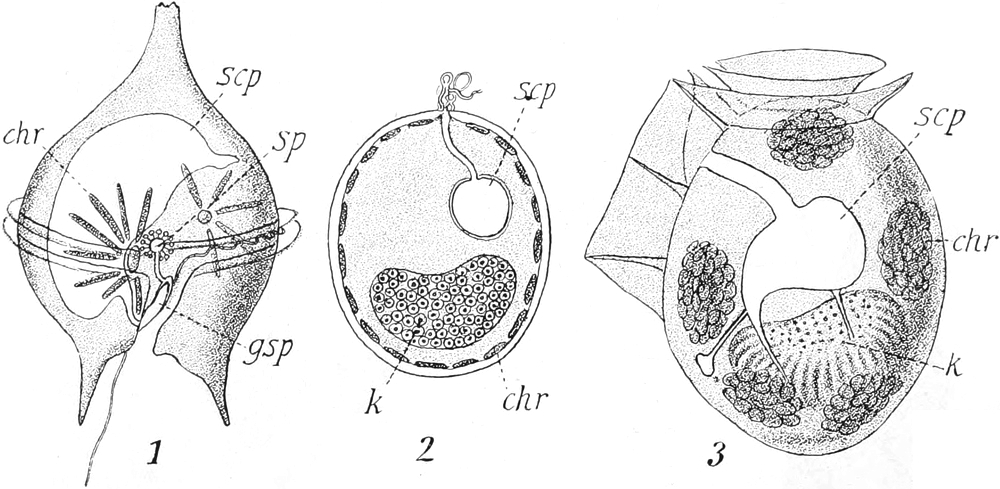
Viel größer pflegen die Hohlräume des zweiten Typus zu sein, welche einen großen Teil des Innern des Tieres ausfüllen und in ihrer Form mir stets eine Beziehung zur Form des Gesamttieres aufzuweisen scheinen. Ein oft nur schmaler Ausführgang verbindet auch diese Organellen mit der Geißelspalte. (Fig. 82 2 und 3 scp Sackpusulen nach Schütt.)
Von den gewöhnlichen kontraktilen Vakuolen sind diese Organellen durch die derbe, deutlich sichtbare Hautschicht und den mangelnden Rhythmus in der Entleerung unterschieden. Nach Schütt ist nur gelegentliches Wachsen und Abnehmen zu konstatieren. Dieser Autor hat sie daher als „Pusulen“ von den gewöhnlichen kontraktilen Vakuolen unterschieden. (Möglicherweise dienen diese Sackpusulen als hydrostatische Organe bei den vertikalen Wanderungen dieser typischen Planktonorganismen.)
Die konstante Lage, Form und Ausmündungsweise vieler kontraktiler Vakuolen und ihrer Zuführungskanäle veranlassen, daß sie den Eindruck von morphologisch fest differenzierten Zellorganen machen. Tatsächlich sind sie oft von verdichteten Plasmapartien (Fig. 81 B) umgeben; manche Autoren haben auch Auskleidung ihres Lumens durch membranartige Häutchen angegeben (so Schütt für die Pusulen der Dinoflagellaten).
Eine genaue Untersuchung der kontraktilen Vakuolen und ihrer Funktion ergibt jedoch, daß für die Mehrzahl der Fälle eine solche Annahme nicht zulässig ist. Vielmehr entstehen die kontraktilen [S. 67]Vakuolen nach ihrer Entleerung immer wieder als neue Gebilde. Allerdings sind sie bei den Ciliaten durch ihre Lage in dem dichten Corticalplasma dem Einfluß der Plasmabewegungen entzogen, und da sie immer nahe der Körperoberfläche liegen, durch die Struktur und Form der sie umgebenden Körperteile in ihrer Form beeinflußt.
Während die meisten Protozoen nur wenige kontraktile Vakuolen besitzen (1, 2 oder mehrere), kommen bei manchen Ciliaten größere Mengen von solchen vor, bis zu 100 und vielleicht sogar noch mehr.
Wichtigste
Literatur[5]
zum Kapitel
Allgemeine Morphologie der Protozoen.
|
1. Lehr- und Handbücher.
|
|
|
1.
|
Bütschli, O., Protozoen in: Bronn, Klassen und
Ordnungen des Tierreichs. Vol. 1. 1.-3. Abt. 1880–1889.
|
|
2.
|
Blochmann und Kirchner, Die mikroskopische
Tier- und Pflanzenwelt des Süßwassers. 1. Teil. Die Tierwelt. 2. Aufl.
1895.
|
|
3.
|
Calkins, G. N., The Protozoa. New York, Macmillan
& Co., 1901.
|
|
4.
|
Delage, Y., et Hérouard, E., Traité de
Zoologie concrète. Tome I. La cellule et les Protozoaires. 1896.
|
|
5.
|
Hertwig, R., Lehrbuch der Zoologie. 9. Aufl. 1909.
|
|
6.
|
Gurwitsch, A., Morphologie u. Biologie der Zelle.
Jena 1904.
|
|
7.
|
Lang, A., Lehrbuch der vergleichenden Anatomie der
wirbellosen Tiere. 2. Aufl. Vol. 1. Abt. 1. 1901.
|
|
2. Protoplasma.
|
|
|
8.
|
Bütschli, O., Untersuchungen über mikroskopische
Schäume im Protoplasma. Leipzig 1892.
|
|
9.
|
— Meine Ansichten über die Struktur des Plasmas und
einige ihrer Gegner. Archiv für Entwicklungsmechanik. Bd. 11. 1901. p.
499.
|
|
10.
|
Rhumbler, L., Der Aggregatzustand und die
physikalischen Besonderheiten des lebenden Zellinhalts. In: Zeitschr. f.
allg. Physiol. Vol. 1. 1902. p. 279. Vol. 2. 1902. p. 183.
|
|
11.
|
Schultze, M., Das Protoplasma der Rhizopoden und
der Pflanzenzellen. Leipzig 1863.
|
|
3. Zellkerne.
|
|
|
Die wichtigsten Auseinandersetzungen über die Natur der Protozoenkerne sind in Spezialarbeiten zerstreut, auf welche man bei Benutzung folgender Arbeiten verwiesen wird: |
|
|
12.
|
Calkins, G. N., The phylogenetic significance of
certain protozoan nuclei. In: Ann. New York Ac. Sci. Vol. 11. 1898. p. 379.
|
|
13.
|
|
|
14.
|
Hertwig, R., Ueber Kernteilung,
Richtungskörperbildung und Befruchtung von Actinosphaerium Eichhorni.
Abhandl. der phys.-math. Klasse d. K. Akad. d. Wiss. München. Vol. 19.
1899. p. 633.
|
|
4. Karyosome.
|
|
|
15.
|
Hartmann, M. u. Prowazek, S., Blepharoplast,
Karyosom und Centrosom. In: Arch. f. Protistkde. Vol. 10. 1907. p. 306.
|
|
15a.
|
Hartmann, M., Die Konstitution der Protistenkerne
und ihre Bedeutung für die Zellenlehre. Jena, G. Fischer, 1911.
|
|
[S. 68]
16.
|
Schaudinn, F., Untersuchungen über den
Generationswechsel bei Coccidien. In: Zool. Jahrb. Anat. Vol. 13. 1900.
p. 197.
|
|
17.
|
— Generations- u. Wirtswechsel bei Trypanosoma u.
Spirochäten. In: Arbeit. a. d. K. Gesundheitsamt. Vol. 20. 1904. p. 387.
|
|
18.
|
Siedlecki, Ueber die Bedeutung des Karyosoms. In:
Bull. Ac. Sc. Krakau. 1905.
|
|
5. Chromidien.
|
|
|
19.
|
Hertwig, R., Ueber Encystierung und Kernvermehrung
bei Arcella vulgaris. In: Festschrift f. C. v. Kupffer. Jena 1899. p. 367.
|
|
20.
|
— Die Protozoen und die Zelltheorie. In: Arch. f.
Protistkde. Vol. 1. 1902. p. 1.
|
|
21.
|
— Ueber physiologische Degeneration bei Actinosphaerium
Eichhorni. In: Festschrift f. E. Haeckel. Jena 1904. p. 303.
|
|
22.
|
Goldschmidt, R., Der Chromidialapparat lebhaft
funktionierender Gewebszellen. In: Zool. Jahrb. Anat. Vol. 21. 1904.
p. 1.
|
|
23.
|
— Die Chromidien der Protozoen. Arch. f. Protistkde.
Vol. 5. 1904. p. 126.
|
|
24.
|
Goldschmidt u. Popoff, Die Karyokinese der
Protozoen und der Chromidialapparat der Protozoen- u. Metazoenzelle.
Ibid. Vol. 8. 1907. p. 321.
|
|
25.
|
Mesnil, F., Chromidies et questions connexes. In:
Bull. Inst. Pasteur. Vol. 3. 1905. No. 8. p. 1–10.
|
|
26.
|
Schaudinn, F., Untersuchungen über die
Fortpflanzung einiger Rhizopoden. In: Arb. aus dem K. Gesundheitsamte.
Vol. 19. 1903. p. 547.
|
|
6. Centrosomen.
|
|
|
27.
|
Doflein, F., Zell- u. Protoplasmastudien. 1. Heft:
Zur Morphologie und Physiologie der Kern- und Zellteilung. Nach
Untersuchungen an Noctiluca und anderen Organismen. Jena 1900 (auch
Zool. Jahrb. Anat. Vol. 14. p. 1).
|
|
28.
|
Hertwig, R., Ueber Centrosom und Centralspindel.
In: Sitzbr. Ges. Morph. u. Physiol. München. 1895. p. 41.
|
|
29.
|
Schaudinn, F., Ueber den Zeugungskreis von
Paramoeba eilhardi. In: Sitzber. Ak. Wiss. Berlin. 1899. p. 31.
|
|
30.
|
— Ueber das Centralkorn der Heliozoen, ein Beitrag zur
Centrosomenfrage. In: Verh. Deutsch. Zool. Ges. 1896. p. 113.
|
|
31.
|
Schewiakoff, W., Ueber die karyokinetische
Teilung der Euglypha alveolata. In: Morph. Jahrb. Vol. 13. 1888. p. 193.
|
|
Vgl. dazu noch die No. 14, 15, 17 und 24 dieser Liste. Besonders in 15 und 24 finden sich ausführliche Literaturangaben. |
|
|
7. Blepharoplaste.
|
|
|
32.
|
Prowazek, S. v., Untersuchungen über einige
parasitische Flagellaten. In: Arb. Kais. Gesundheitsamt. Vol. 21. 1904.
p. 1.
|
|
33.
|
Senn u. Wasielewski, Beiträge zur Kenntnis
der Flagellaten des Rattenblutes. In: Zeitschr. Hyg. u. Inf. Vol. 35.
1900. p. 444.
|
|
34.
|
Senn, G., Der gegenwärtige Stand unserer
Kenntnisse von den flagellaten Blutparasiten. In: Arch. f. Protistkde. Vol.
1. 1902. p. 344.
|
|
Vgl. hierzu ferner die No. 15, 17, 23 dieser Liste, sowie weiter unten die über Flagellaten. |
|
|
8. Bewegungsorganellen.
|
|
|
35.
|
Goldschmidt, R., Lebensgeschichte der Mastigamöben
Mastigella vitrea u. Mastigina setosa. In: Arch. Protistkde. Suppl.
1. 1907. p. 83.
|
|
36.
|
Prowazek, S. v., Flagellatenstudien. In: Arch. f.
Protistkde. Vol. 2. 1903. p. 195.
|
|
37.
|
Maier, N., Ueber den Wimperapparat der Infusorien.
In: Arch. f. Protistkde. Vol. 2. 1902. p. 73.
|
|
38.
|
Rhumbler, L., Physikalische Analyse von
Lebenserscheinungen der Zelle. I. In: Arch. f. Entwickl.-Mech. Vol.
7. 1898. p. 103.
|
|
39.
|
Schuberg, A., Ueber Cilien u. Trichocyten einiger
Infusorien. In: Arch. f. Protistkde. Vol. 6. 1905. p. 61.
|
|
40.
|
Schultze, M., Der Organismus der Polythalamien.
Leipzig 1854.
|
|
41.
|
|
|
9. Bewegung durch Zellprodukte.
|
|
|
42.
|
a) Bütschli, O., Bewegung der Diatomeen. In: Vhdl.
Naturh.-med. Vereins Heidelberg. N. F. Vol. 4. 1892. p. 580.
|
| [S. 69] |
b) Lauterborn, R., Untersuchungen über Bau,
Kernteilung u. Bewegung der Diatomeen. Leipzig 1896.
|
|
43.
|
a) Crawley, H., The progressive movement of
Gregarines. In: Proc. Acad. Nat. Sci. Philadelphia 1902. p. 4.
|
|
— The movements of Gregarines. Ibid. 1905. p. 89.
|
|
|
44.
|
Müller, O., Die Ortsbewegung der Bacillariaceen.
Mehrere Aufsätze in den Berichten der Deutsch. Bot. Ges. 1889–1897.
|
|
45.
|
Schewiakoff, W., Ueber die Ursache der
fortschreitenden Bewegung der Gregarinen. In: Zeitschr. wiss. Zool. Vol.
58. 1894. p. 340.
|
|
Weitere Angaben im Kapitel Diatomeen, in: Oltmanns. Die Algen. Jena 1905–1906. |
|
|
10. Bewegungserscheinungen im Plasma.
|
|
|
46.
|
Hertwig, R., Der Organismus der Radiolarien. In:
Jenaische Denkschrift. Vol. 2. 1879.
|
|
47.
|
Schröder, O., Beiträge zur Kenntnis von
Campanella umbellaria. In: Arch. f. Protistkde. Vol. 7. 1906. p. 75.
|
|
48.
|
— Beiträge zur Kenntnis von Stentor coeruleus u. St.
roeselii. Ibid. Vol. 8. 1907. p. 1.
|
|
49.
|
Schuberg, A., Zur Kenntnis des Stentor coeruleus.
In: Zool. Jahrb. Anat. Vol. 4. 1891. p. 197.
|
|
No. 47–49 zitieren die wichtigste Literatur über kontraktile Fibrillen. Für Plasmabewegung sind vor allem wichtig die No. 1, 8, 10, 11, 38, 40, 41 dieser Liste. |
|
|
11. Stützsubstanzen.
|
|
|
50.
|
Klebs, G., Flagellatenstudien. Zeitschr. wiss.
Zool. Vol. 55. 1893. p. 265.
|
|
51.
|
Awerinzeff, Ueber die Struktur der Kalkschalen
mariner Rhizopoden. Ibid. Vol. 74. 1903. p. 478.
|
|
52.
|
— Beiträge zur Kenntnis mariner Rhizopoden. In: Mitteil.
Zool. Stat. Neapel. Vol. 16. 1903/4. p. 349.
|
|
53.
|
— Die Struktur und die chemische Zusammensetzung der
Gehäuse bei den Süßwasserrhizopoden. In: Arch. Protistkde. Vol. 8. 1907.
p. 95.
|
|
54.
|
Rhumbler, L., Beiträge zur Kenntnis der Rhizopoden
III. IV. V. In: Zeitschr. f. wiss. Zool. Vol. 61. 1895–96.
|
|
55.
|
Winter, F. W., Zur Kenntnis der Thalamophoren. I.
Untersuchungen über Peneroplis pertusus. In: Arch. f. Protistkde.
Vol. 10. 1907. p. 1.
|
|
Außerdem ist zu verweisen auf die zahlreichen Angaben in No. 1, 2, 7. |
|
|
12. Ernährungsorganellen.
|
|
|
56.
|
Stein, F. v., Der Organismus der Infusionstiere. 3.
Abt. Leipzig 1859–1883.
|
|
57.
|
Francé, R., Der Organismus der Craspedomonaden.
Budapest 1897.
|
|
Die wichtigsten Angaben finden sich in No. 1 der Liste. |
|
|
13. Exkretionsorganellen.
|
|
|
Siehe die No. 1, 2, 3, 7, 11, 38, 40, 41, 47, 50, 56 dieser Liste, außerdem: |
|
|
58.
|
Schütt, F., Ueber Organisationsverhältnisse des
Plasmaleibs der Peridineen. Sitzber. K. pr. Akad. Wiss. Berlin. 1892.
|
|
59.
|
— Die Peridineen der Plankton-Expedition. Ergebn. der
Plankton-Exp. Vol. 4. 1895.
|
[1] Nur die großen Plasmamassen der Myxomycetenplasmodien sind ein günstiges Material für die chemische Analyse; sie sind zu solchem Zweck auch wiederholt ausgenützt worden.
[2] Vergl. hierzu das Kapitel über Technik der Protozoenuntersuchung.
[3] Deshalb vermeide ich auch solche in wissenschaftlichen Arbeiten und Lehrbüchern viel angewandten Ausdrücke wie Plastin und Nukleïn, welche von den Autoren immer wieder für nur morphologisch charakterisierbare Kernbestandteile angewandt werden, während sie in der Literatur für ganz bestimmte, gut definierte chemische Verbindungen festgelegt sind.
[4] Solche Protoplasmaströmungen findet man auch vielfach als „Cyklose“ bezeichnet.
[5] Entscheidend für die Auswahl der Arbeiten ist nicht immer deren Wichtigkeit für den Fortschritt der Wissenschaft, sondern deren Geeignetheit zur Orientierung über Probleme und Spezialliteratur gewesen.
[S. 70]
II. Allgemeine Physiologie der Protozoen.
Einführung.
Wir erkennen lebende Organismen als solche an der chemischen Besonderheit der ihren Körper aufbauenden Substanzen, an Form und Struktur des Körpers und seiner Teile und an gewissen nur den lebenden Körpern eigentümlichen Vorgängen, welche an und in den Organismen ablaufen. In dem ersten Teil dieses Buches wurde das materielle Substrat, an welchem sich die Erscheinungen des Lebens der Protozoen abspielen, geschildert. Nur wenig konnte dabei über die stoffliche Eigenart der Körpersubstanzen ausgesagt werden, die Hauptsache unseres Wissens besteht in der Kenntnis von Formverhältnissen. Dies muß bei der Beurteilung der im Nachfolgenden gegebenen Skizze der allgemeinen Physiologie der Protozoen im Auge behalten werden. Auch ich hielt es für dem Zweck dieses Buches entsprechend, die Darstellung hauptsächlich auf die morphologisch sich äußernden Prozesse zu konzentrieren. Für eingehenderes Studium muß ich auf Verworns „Allgemeine Physiologie“ und auf Prowazeks Einführung in die Physiologie der Einzelligen (Protozoen) verweisen.
Die Protozoen werden als besonders geeignet zur Erforschung der Lebensprozesse angesehen, da in den vielfach durchsichtigen Körpern auf kleinem Raum sich alle jene Vorgänge abspielen, welche bei den Metazoen auf viele Organe und Zellen verteilt sind. Auch bringt es die relativ geringe Komplikation im Körperbau der niederen Formen mit sich, daß viele sekundäre Prozesse fehlen, welche bei den Metazoen und Pflanzen das eigentliche Wesen des Lebens verschleiern.
Die Physiologie unterrichtet uns von den Lebensvorgängen und klärt uns über das Verhältnis der Erscheinungen an den lebenden Wesen zu den übrigen Erscheinungen in der Welt auf. Die für uns nachweisbaren Lebensvorgänge stellen sich dar als in relativ kleinen Zeiteinheiten vor sich gehende gesetzmäßige Veränderungen an den belebten Körpern. Diese Veränderungen sind:
- 1) chemische Prozesse,
- 2) Bewegungen (der ganzen Organismen oder von Teilen ihrer Substanzen).
Beim Studium dieser Veränderungen machen wir die gleiche Erfahrung, wie ich sie vorher für unser Wissen vom Aufbau der Protozoen erwähnte. Wir wissen viel mehr von den morphologisch sich [S. 71]bemerkbar machenden Vorgängen als von den Stoffumsetzungen, den chemischen Prozessen, welche ja für erstere die Grundlage darstellen müssen.
A. Der Stoffwechsel der Protozoen.
I. Ueber die „lebende Substanz“ in den Protozoen.
Wir sahen früher, daß die Stoffe, welche den Protozoenkörper aufbauen, der Elementaranalyse zugänglich sind und sich erweisen als aus denselben Elementen zusammengesetzt, welche wir auch sonst in der anorganischen und organischen Welt finden. Von den aus ihnen zusammengesetzten Substanzen ist das „Protoplasma“ der den Protozoen wie allen lebenden Wesen gemeinsame Bestandteil. Weil wir diesen Bestandteil überall da vorfinden, wo sich Lebensvorgänge abspielen, nehmen wir an, daß er die notwendige Grundlage des Lebens darstellt.
Ferner haben wir früher gesehen, daß wir das Protoplasma nur nach physikalischen und morphologischen Kriterien allgemein definieren können, daß wir aber in den Chemismus desselben nicht sehr tief eingedrungen sind.
Wenn wir nun das Protoplasma mit den uns zugänglichen Methoden untersuchen, so erweist es sich als ein Gemisch von verschiedenen Substanzen. Eine Untersuchung darüber, welcher von diesen Bestandteilen des Protoplasmas der eigentliche Träger des Lebens sei, erscheint wenig aussichtsvoll. Die in der Natur überall gleichartig verlaufenden Vorgänge weisen uns vielmehr darauf hin, daß das Gemeinsame bei allen Lebensvorgängen am Protoplasma gewisse chemische Wechselwirkungen zwischen seinen Komponenten sind. Wir haben daher kein Recht das Protoplasma „die lebende Substanz“ zu nennen und mit diesem Ausdruck irgendwelche mystischen Vorstellungen zu verbinden. Vielmehr ergibt sich aus den Erfahrungen, daß wir in der Wechselwirkung zwischen gewissen Substanzen, welche voneinander getrennt, jede für sich, keine Kennzeichen des Lebens erkennen lassen, die wichtigste Grundlage der Lebenserscheinungen zu erblicken haben.
Zur Klärung der Probleme, welche die stoffliche Eigenart und die Stoffumsetzungen der Protozoen für uns enthalten, ist es ohne Vorteil, mit einer „lebenden Substanz“ zu rechnen, zu deren Annahme uns auch keinerlei Tatsachen nötigen.
II. Ernährung.
Wie alle lebenden Organismen, so sind auch die Protozoen dadurch ausgezeichnet, daß die in ihrem Körper enthaltenen Substanzen unter Arbeitsleistung einem unablässigen Verbrauch unterliegen, welcher durch Aufnahme geeigneter Stoffe in den Tierkörper immer wieder kompensiert werden muß.
Zeitweise kann der Bedarf durch Stoffe gedeckt werden, welche als „Reservematerial“ wie Fremdkörper im Protoplasma liegen und nach und nach in den Stoffwechsel einbezogen werden können. Stets muß aber nach einiger Zeit dann wieder Stoffaufnahme von außen erfolgen.
Je nach der Beschaffenheit der Stoffe, welche von außen aufgenommen werden, pflegt man die Organismen in „plasmodome“ [S. 72]und „plasmophage“ Formen einzuteilen, indem man unter ersteren solche versteht, welche die Bestandteile des Protoplasmas mit Hilfe von anorganischen „Nährstoffen“ herstellen, während die plasmophagen Formen dazu nicht imstande sind, sondern organische Verbindungen als Ausgangsmaterial verwenden müssen. Diese Bezeichnungsweise ist insofern eine nicht sehr glückliche, als beide Gruppen aus dem Nährmaterial, welches sie chemisch verarbeiten, neues Protoplasma „aufbauen“; die plasmodomen Formen verwenden dazu jedoch nur Wasser, Kohlensäure und Mineralsalze, während die plasmophagen Formen auf organische Verbindungen angewiesen sind, welche in der freien Natur nur aus Bestandteilen von Organismen entstammen können. Für unsere Auffassung besteht also nur ein gradueller Unterschied zwischen den Organismen, welche zur Herstellung der für sie charakteristischen Protoplasmabestandteile die organischen Komponenten durch Synthese aus unorganischem Material selbst fabrizieren, und denjenigen Organismen, welche als Rohmaterial in ihrer Fabrikation von vornherein auf organische Verbindungen angewiesen sind.
Im ersteren Fall ist der wichtigste der von außen zugeführten Stoffe die Kohlensäure, welche zur Synthese von zuckerähnlichen Substanzen verwandt wird, aus welchen wiederum die weitergehenden Synthesen zur Bildung von Eiweißsubstanzen führen. Die zu den ersten Synthesen notwendige Energie wird bei den Pflanzen durch das Sonnenlicht oder durch chemische Vorgänge geliefert. Man unterscheidet danach photosynthetische Plasmabildung[6] und chemosynthetische Plasmabildung[6] (letztere im speziellen Fall der Nitrobakterien).
1. Die Ernährung der plasmodomen Protozoen
(holophytische Ernährung).
Wie bei den chromophyllhaltigen Pflanzen, so erfolgt auch bei den plasmodomen Protozoen die Plasmabildung auf dem Wege über Photosynthese organischer Substanzen. Wegen der Uebereinstimmung mit den typischsten unter den Pflanzen nennt man diese Form der Ernährung auch holophytische Ernährung. Während die Tatsache, daß es zahlreiche Protozoen mit dieser Art des Stoffwechsels gibt, sichergestellt ist, gibt es nur eine geringe Zahl von Untersuchungen, welche die Einzelheiten dieses Stoffwechsels, seine Etappen, die Verwendung der erzeugten Materialien etc. zum Gegenstand haben.
Wie bei den Pflanzen, so ist auch bei den Protozoen die Umsetzung der strahlenden Energie des Lichtes in die bei den Synthesen notwendige chemische Energie an das Vorhandensein von farbigen Substanzen gebunden, Chromophyllsubstanzen, welche in der Regel in abgegrenzten Körpern von dichter Struktur und plasmaähnlichem Bau im Innern der Zelle auftreten. Solche Körper werden zusammenfassend als Chromatophoren bezeichnet. Selten ist Vorkommen von diffuser grüner Färbung des ganzen Protoplasmas angegeben worden (Engelmann: Vorticella campanula). Es wäre von großer Wichtigkeit, neue Aufschlüsse über diesen Punkt zu erhalten.
Die Chromatophoren gleichen durchaus denjenigen der Pflanzen. Sie kommen in sehr verschiedenen Formen vor: sie sind [S. 73]scheiben-, band-, spindel-, schlüssel- oder plattenförmig etc. Sie kommen in der Ein- und Mehrzahl in einem Individuum vor.
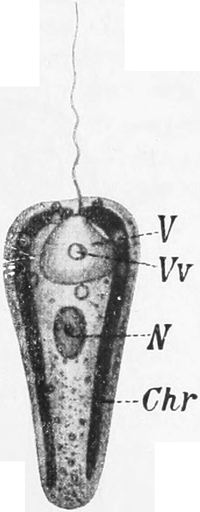
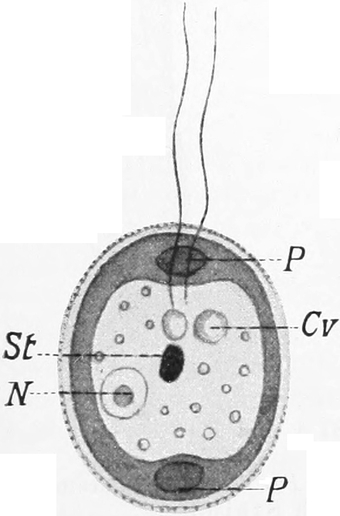
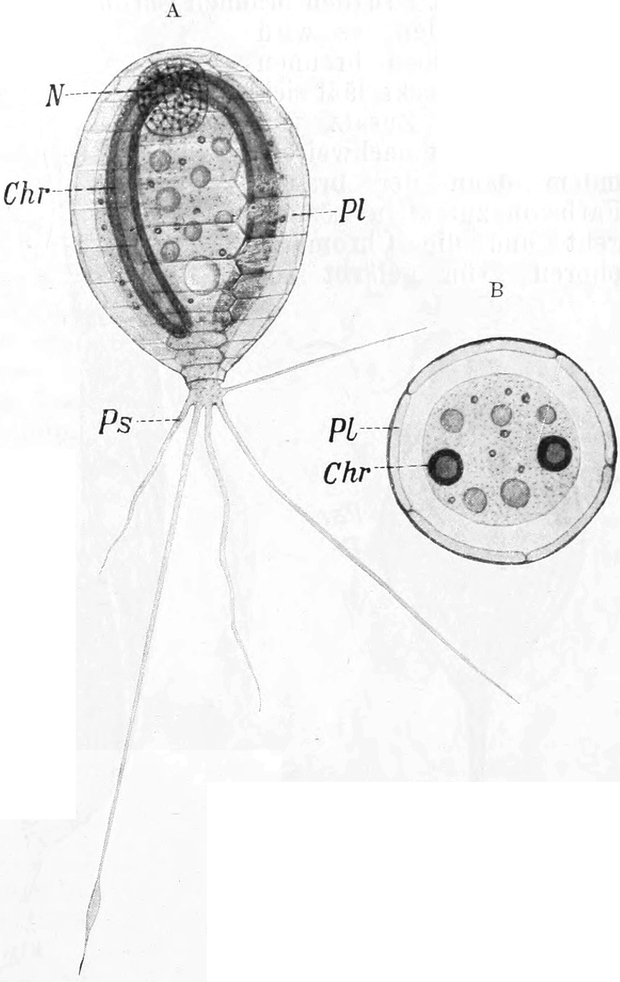
Chromatophoren finden wir fast ausschließlich bei den Flagellaten (vgl. jedoch Paulinella chromatophora Laut., ein Rhizopod, Fig. 85). Am weitesten verbreitet sind rein grüne Chromatophoren in verschiedenen Nuancen der grünen Farbe, welche Chlorophyll enthalten; sie kommen bei Eugleninen, Chloropeltinen, Cölomonadinen, Polyblephariden, Chlamydomonadinen und Volvocinen vor. Außerdem kann man gelb bis braun gefärbte bei den Chrysomonadinen und Cryptomonadinen, [S. 74]bläulich-grüne bei dem Rhizopoden Paulinella (Fig. 85) sehen. In der Mehrzahl der Fälle scheint der Farbstoff vollkommen identisch mit dem Chlorophyll der grünen Pflanzen zu sein. Doch ähnelt der gelbe Farbstoff mancher Formen (z. B. das Phykopyrin der Peridineen) dem Diatomin. In den braunen Chromatophoren ist ebenfalls Chlorophyll vorhanden, es wird nur durch einen braunen Farbstoff verdeckt, läßt sich jedoch durch Zusatz von Alkohol leicht nachweisen, indem dann der braune Farbstoff zuerst in Lösung geht und die Chromatophoren grün gefärbt zurückläßt. Fast stets ist neben dem grünen Farbstoff ein gelber vorhanden, dem Xanthophyll vergleichbar; daneben noch in manchen Fällen ein brauner, wasserlöslicher Farbstoff.
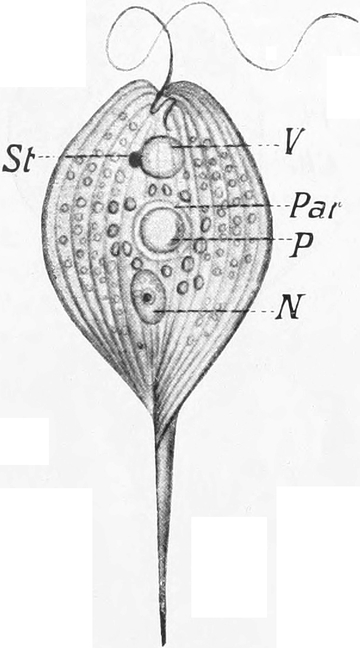
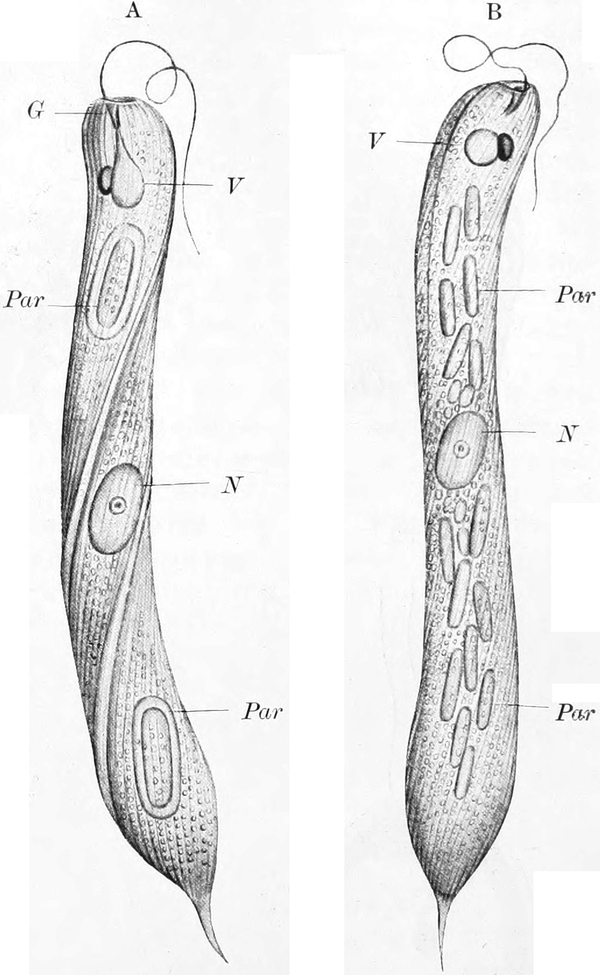
Der rote Farbstoff, welcher ähnlich wie bei Algen auch bei Flagellaten (vgl. Euglena sanguinea, Haematococcus) vorkommt, und zwar besonders in Ruhezuständen, scheint dem Karotin nahezustehen und ist vielleicht auch ein Umwandlungsprodukt des Chlorophylls. Er wird als Hämatochrom bezeichnet.
Das Hämatochrom tritt in manchen grünen Flagellaten in solchen Mengen auf, daß die betreffenden in großen Massen vorkommenden Arten das ganze von ihnen bewohnte Wasser rot färben (z. B. Euglena [S. 75]sanguinea, Haematococcus pluvialis, Chlamydomonas nivalis). So kommt das Phänomen der Blutseen in den Alpen und des roten Schnees zustande. Durch neuere Untersuchungen ist festgestellt, daß die Anreicherung des Hämatochroms durch Armut des Nährmediums an Stickstoff und Phosphor bedingt ist. Daher ergrünt Euglena sanguinea in den Blutseen der Alpen, wenn mit Erhöhung der Temperatur im Sommer durch Fäulnis etc. das Wasser an organischen Verbindungen reicher wird (Reichenow 1909). Das Hämatochrom löscht das Ende des Spektrums vollkommen aus. Daher dachte man an eine schützende Wirkung gegen Einflüsse der Lichtstrahlen. Solche sind nicht erwiesen, dagegen ist beobachtet worden, daß das Hämatochrom sich im starken Licht in der Zelle ausbreitet, im schwachen Licht zentral zusammenzieht. Wie schwaches Licht wirken rote, wie starkes weiße, blaue und besonders grüne Strahlen.
Die Chromatophoren vermehren sich durch Teilung. Wie bei den Algen, so findet man auch bei den Flagellaten vielfach in den Chromatophoren stark lichtbrechende und mit Kernfarbstoffen sich stark färbende, scharf umschriebene Körperchen, die Pyrenoïde (vgl. Fig. 84 und 85), welche sich ebenfalls durch Teilung vermehren. Infolgedessen wurden sie oft mit Kernen verglichen.
Pyrenoïde sind entweder „nackt“, oder mit einer Hülle oder Schale umgeben, welche aus Stärke resp. Paramylum besteht.
Pyrenoïdähnliche Körperchen kommen übrigens auch bei farblosen saprozoisch lebenden Flagellaten vor, z. B. Chilomonas paramaecium; dann liegt jedem dieser Körperchen ein Stärkekörnchen an.
Die Beobachtungen zeigen, daß viele Formen unter den farbigen Flagellaten ähnlich wie die Pflanzen Stärke als Produkt der Synthese aufweisen. Wir haben allen Grund anzunehmen, daß bei ihnen Zuckersynthese, ähnlich wie bei den grünen Pflanzen, erfolgt, d. h. daß bei Vorhandensein von Kohlensäure und der nötigen Mineralsalze in Wasser unter dem Einfluß der Sonnenstrahlen die nötigen Synthesen vor sich gehen. Die Experimente, welche zur Züchtung von grünen Flagellaten in den unten angegebenen anorganischen Nährlösungen (s. Abschnitt: Technik) angestellt wurden, bestätigen diese Annahme. Viele mit Chromatophoren versehene Protozoen vermögen ohne Zuführung organischer Verbindungen in wässeriger Lösung von Mineralsalzen am Licht zu existieren.
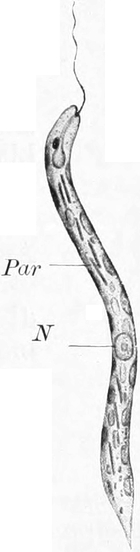
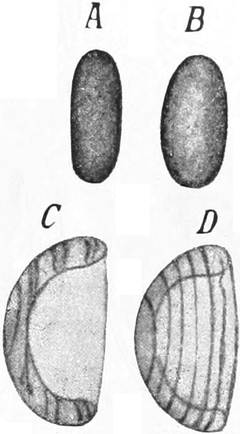
[S. 76]
Das Wasser mit den gelösten Mineralbestandteilen wird entweder durch die Hautschicht osmotisch oder durch den Zellmund aktiv ins Zellplasma aufgenommen, und nur im Licht erfolgt dann in den Chromatophoren die Synthese, deren Resultat in Form der verschieden gestalteten Körner (Fig. 89) stärkeähnlicher Substanzen nachweisbar wird. Von den Zwischenstufen ist uns nichts bekannt.
Das Produkt besteht, wie gesagt, aus Amylum (Stärke) oder Paramylum; das letztere (welches bei den Eugleninen vorkommt), hat dieselbe chemische Zusammensetzung wie das erstere, unterscheidet sich jedoch durch die Besonderheit, daß es sich mit Jod nicht blau färbt. (Nähere Angaben und Literatur bei: O. Bütschli, Beiträge zur Kenntnis des Paramylons, Arch. Prot., Bd. 7, 1906, p. 197.)
Exaktere Untersuchungen über die Bedingungen der Photosynthese bei den grünen Protozoen gibt es sehr wenige; doch dürfen wir annehmen, daß sie sich in den meisten Punkten ähnlich wie grüne Algen verhalten.
Die meisten Formen gedeihen besser in schwach alkalischem Medium; für viele sind schon Spuren von freien Säuren schädlich (z. B. Chlamydomonas). Für die untersuchten Formen hat sich Kalium und Calcium als unentbehrlich erwiesen. Im übrigen kommen große Schwankungen im Bedarf an Mineralsalzen vor, wie die Biologie der einzelnen Formen beweist.
Viele Formen gedeihen gut in künstlichen Lösungen, worüber sich Näheres im Kapitel über Technik der Protozoenuntersuchung findet.
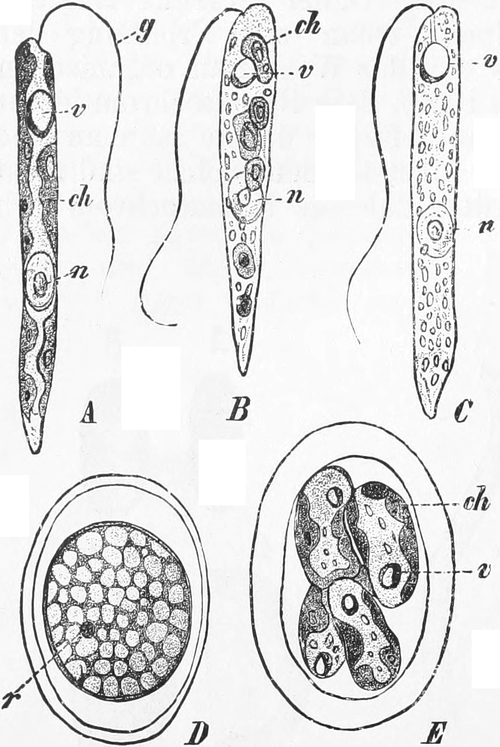
Auch über den Einfluß der verschiedenen Bestandteile des Lichtes haben wir keine Versuche, welche sich direkt auf Protozoen beziehen. Wir nehmen aber wohl mit Recht an, daß die Photosynthese bei den grünen Formen im roten Licht am intensivsten stattfindet.
Man kann verfolgen, daß bei geeigneten Lebensbedingungen bei Belichtung die Stärke- und Paramylumkörper zunehmen, daß sie im Dunkeln gelöst werden und partiell oder ganz verschwinden. Ihre Entstehung scheint nicht an die Chromatophoren gebunden zu sein, [S. 77]denen sie ja in der Regel anliegen, sondern kann auch frei im Plasma vor sich gehen.
Sehr bemerkenswert ist die Tatsache, daß eine Anzahl der Chromatophoren besitzenden Protozoen nicht gut oder gar nicht fortkommt, wenn ihnen nicht organische Nahrung geboten wird. Euglenen vermögen alle möglichen organischen Verbindungen zu verwerten, z. B. Euglena gracilis (nach Zumstein); vor allem zeigen sie aber eine direkte Vorliebe für Peptone, bei deren Vorhandensein sie besonders gut gedeihen. Solche Formen leiten uns zu den Saprozoen über. Vielfach finden wir auch mit farbigen Protozoen nächstverwandte Formen farblos (z. B. Polytoma uvella unter den Chlamydomonadinen, ferner Eugleninen). Solche Formen erzeugen zum Teil noch Stärke als Stoffwechselprodukt, wie das besonders auffällig bei der völlig farblosen Cryptomonadine Chilomonas paramaecium uns entgegentritt.
Sehr wichtig für die Beurteilung der nahen Verwandtschaft zwischen chromophyllhaltigen und farblosen Protozoen ist die Tatsache, daß manche grüne Formen sich in farblose Rassen umzüchten lassen. Das ist besonders bei Euglenaarten verfolgt worden.
Khawkine und später besonders Zumstein haben nachgewiesen, daß Euglena (gracilis bei Zumstein), eine Gattung, deren Angehörige ja ohnehin eine Neigung für organische Nährstoffe aufweisen, in Nährlösung, welche sehr reich an organischer Substanz ist, ihre grüne Farbe sogar am Licht verliert (Fig. 90). Bei geringerem Gehalt der Nährlösung an organischen Substanzen behalten die Kulturtiere im Licht die grüne Farbe, verlieren sie aber im Dunkeln. Durch abwechselndes Belichten und Verdunkeln kann man die Kulturen beliebig grün und weiß machen. Bei rein anorganischer Nährlösung behalten die Tiere jedoch auch im Dunkeln ihre grüne Farbe bei.
Bei solchen Experimenten verblassen die Chromatophoren im Dunkeln, sie verkleinern sich auch und sind schließlich als relativ winzige Gebilde nachweisbar, welche sehr an die Leukoplasten der höheren Pflanzen erinnern. Wir gelangen damit experimentell zu Formen, welche durchaus manchen der in freiem Zustand nur farblos nachgewiesenen Arten gleichen, z. B. sehr an Chilomonas paramaecium mit seinen kleinen Leukoplasten erinnern.
Die Symbiose mit Algenzellen bei den Protozoen.
Wie unter den Metazoen, so gibt es auch unter den Protozoen zahlreiche Arten, welche in ihrem Protoplasma Algenzellen beherbergen. Es sind dies teils Algen mit grünen, teils solche mit gelben Chromatophoren. Erstere werden als Zoochlorellen, letztere als Zooxanthellen zusammenfassend bezeichnet.
Zoochlorellen sind nachgewiesen bei Amöben, Heliozoen, Foraminiferen, Flagellaten (auch Noctiluca nach Weber-van Bosse in den Tropen) und zahlreichen Ciliaten. Es sind wahrscheinlich stets Algen aus der Gruppe der Protococcaceen.
Zooxanthellen hat man bei Radiolarien, Foraminiferen, Flagellaten und Ciliaten gefunden. Für die Zooxanthellen wird ebenfalls meist angenommen, daß es sich um Algen handle. Vielleicht sind es verschiedenartige Organismen; in einigen Fällen ist ihr Ausschwärmen in Form von cryptomonasartigen Flagellaten festgestellt (Cryptomonas Brandti Schaudinn bei Trichosphaerium Sieboldi, Cryptomonas Schaudinni Winter bei Peneroplis pertusus, Fig. 92).
[S. 78]
Die einzelligen kleinen Organismen kommen vorwiegend im Entoplasma ihrer Wirte in Zahlen von wenigen (5–10) bis zu mehr als 100000 Exemplaren vor. In demselben Protozoon findet man stets dieselbe symbiontische Algenart. Es sind ovale bis kugelige Körperchen von 5–20 µ Durchmesser; vielfach mit einer deutlichen Cellulosemembran, bandförmigen Chromatophoren und je einem Zellkern.
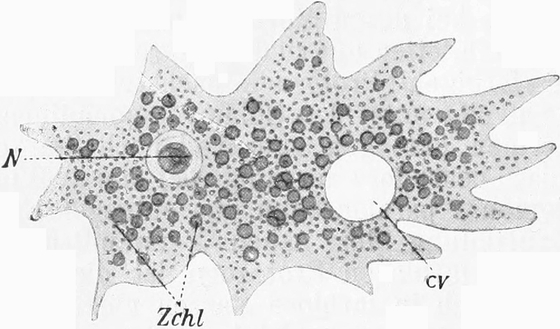
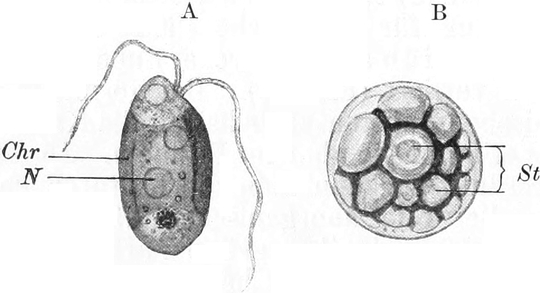
Mit manchen Protozoen stehen ihre Chlorellen oder Xanthellen in einem sehr engen Verhältnis, indem sie stets miteinander vergesellschaftet gefunden werden. In diesem Fall sind die Algen zu einem selbständigen freien Leben nicht befähigt, sie zeigen auch mancherlei Rückbildungen, z. B. Schwund der Cellulosemembran, so bei den Zooxanthellen der Acanthometriden. Neuerdings wird allerdings die selbständige Natur der letzteren bestritten und sie werden für Bestandteile des Acanthometridenkörpers erklärt.
In anderen Fällen ist der Zusammenhang beider Organismen ein lockerer. Die Chlorellen von Stentor viridis und von Paramaecium bursaria sind in künstlicher Kultur von Famintzin vom Körper ihrer Wirte isoliert gezüchtet worden, diejenigen von Frontonia durch Schewiakoff.
Schewiakoff konnte ferner die weiße Form von Frontonia leucas durch Fütterung mit zerdrückten Exemplaren der grünen Form mit ihren Chlorellen infizieren. Das gleiche gelang Doflein mit Amoeba vespertilio, die mit Zoochlorellen aus Frontonia, Awerinzew mit Dileptus anser, der mit solchen aus Stentor viridis infiziert wurde; Le Dantec infizierte Paramäcien.
Bei den Radiolarien, welche man fast stets mit „gelben Zellen“ infiziert findet, müssen sich wohl die jungen Individuen stets neu infizieren, da bei der Schwärmerbildung die Zooxanthellen den Wirtsorganismus verlassen und selbst geißeltragend ausschwärmen. Die Infektion geschieht jedenfalls erst, wenn das junge Individuum eine gewisse Größe erreicht hat; die Gelegenheit dazu ist für viele Arten wohl leicht gegeben, da Zooxanthellen im Plankton frei massenhaft vorkommen.
Hält man Exemplare solcher Protozoen im Dunkeln, so werden [S. 79]sie zum Teil nach einiger Zeit farblos. Das berichtet Famintzin für Stentor und Paramaecium bursaria, Gruber für Amoeba viridis, v. Graff für Vorticella viridis.
Die physiologische Bedeutung des Algenvorkommens in den Protozoenzellen scheint nach den Ergebnissen der verschiedenen Autoren folgende zu sein: Offenbar handelt es sich um eine eigenartige Form des Parasitismus, indem gewisse Algenarten, welche bei Vorhandensein von organischen Substanzen besonders gut gedeihen (vgl. oben S. 77), sich im Körper der Protozoen angesiedelt haben. Die Schädigung, welche sie dem Körper derselben zufügen, ist keine sehr bedeutende, im Gegenteil, es können die Wirte sogar einen gewissen Vorteil von ihnen ziehen. Die Algen speichern in der Regel keine Reservestoffe in Form von Stärke in größerer Menge auf, sondern geben dieselben offenbar in gelöster Form an den Wirt ab. Denn wenn man die Tiere in anorganischer Nährsalzlösung im starken Lichte hält, so speichern die Algen unter diesen sehr günstigen Ernährungsbedingungen Stärke auf.
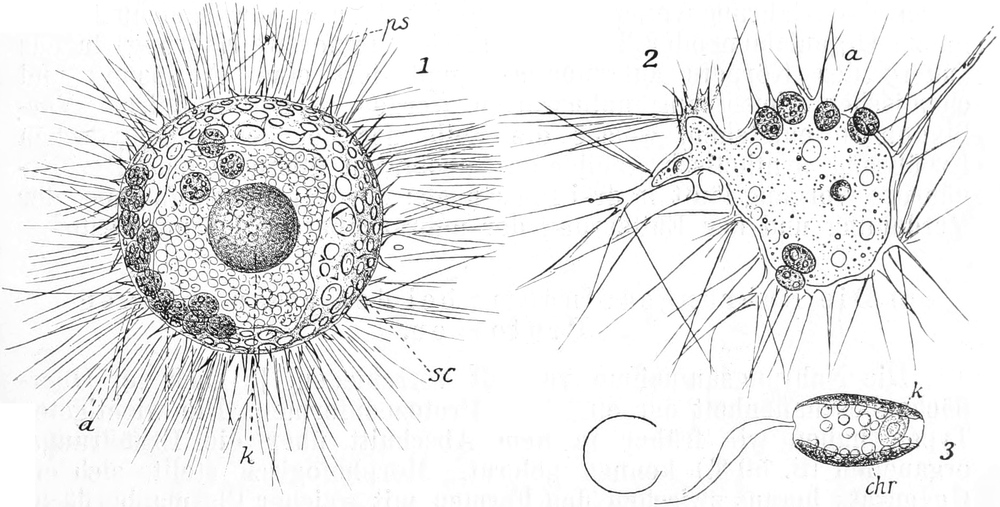
Ferner ist nachgewiesen, daß die Wirte stets einen Teil ihrer Algen aufzehren. Wir haben also einen ähnlichen Vorgang vor uns wie bei Abwehraktionen der Tierkörper gegen echte Parasiten. Indem im Licht stets eine reichliche Vermehrung der Algen stattfindet, werden die von der Wirtszelle aufgelösten immer wieder ersetzt; der Wirt, der keine wesentliche Schädigung von seinem Gast erfährt, erhält auf diese Weise einen erheblichen Zuschuß in seiner Ernährung. In keinem Fall ist allerdings nachgewiesen, daß das Protozoon dauernd auf Nahrung anderer Art verzichten kann. Doch können Kulturen längere Zeit bei fast völligem Mangel an fester Nahrung gehalten werden, wenn sie dem Licht ausgesetzt sind. Werden sie jedoch unter solchen Verhältnissen längere Zeit im Dunkeln gehalten, so verhungern [S. 80]sie, wobei in manchen Fällen ein Abblassen und Aufzehren der Algen erfolgt, in anderen nicht (vgl. hierzu oben S. 77).
Wir haben also in dieser Form des Parasitismus eine echte Symbiose zu erblicken, ein Gegenseitigkeitsverhältnis, welches bei manchen Formen mehr, bei manchen weniger gefestigt ist. Eine je längere Geschichte die Algensymbiose bei einer Art besitzt, um so inniger erscheinen Wirt und Gast miteinander verknüpft, bis schließlich Formen entstehen, welche unabhängig nicht zu existieren vermögen und in freier Natur nie anders gefunden werden als miteinander vergesellschaftet.
2. Die Ernährung der plasmophagen Protozoen
(holozoische Ernährung).
Den größten Gegensatz zur holophytischen Ernährung bildet die holozoische Ernährung, die für die Mehrzahl der Tiere charakteristische Form der Nahrungsversorgung. Sie ist dadurch ausgezeichnet, daß ganze Organismen oder Teile von solchen (geformte Nahrung) in das Innere des Körpers aufgenommen und dort einer Auflösung und chemischen Umsetzung unterworfen werden, wobei organische Verbindungen entstehen, welche die Rolle der bei der holophytischen Ernährung synthetisch gebildeten Substanzen übernehmen. Der Ernährungsvorgang läuft in drei Phasen ab: der Nahrungsaufnahme, der Verdauung und der Entleerung der unbrauchbaren Nahrungsreste.
a) Die Nahrungsaufnahme bei den plasmophagen Protozoen.
Die Nahrungsaufnahme verläuft verschieden, je nach der Oberflächenbeschaffenheit der einzelnen Protozoenformen. Die wichtigsten Typen haben wir früher in dem Abschnitt über die Ernährungsorganellen (S. 59 ff.) kennen gelernt. Morphologisch stellte sich ein Gegensatz heraus zwischen den Formen mit weicher Plasmaoberfläche und amöboider Beweglichkeit, welche an beliebigen Stellen der Oberfläche Gegenstände mit den Pseudopodien umfließen können, und den Formen, deren Oberfläche durch resistente Substanzen gebildet wird, und welche daher nur an einer oder einigen Mundstellen Nahrung aufzunehmen vermögen.
Diese morphologische Verschiedenheit entspricht aber nur insofern einer physiologischen Verschiedenheit, als in beiden Fällen verschiedene Bewegungstätigkeiten zur Aufnahme der Nahrung führen. Im ersten Fall erfolgen an beliebigen Stellen der nackten protoplasmatischen Oberfläche diejenigen Reaktionen, welche im zweiten Fall auf eine Stelle lokalisiert erscheinen. Diese Stelle ist dadurch gekennzeichnet, daß an ihr das Protoplasma ebenfalls nackt erhalten ist. Die Komplikationen der Nahrungsaufnahme ergeben sich nur durch die Tatsache, daß die lokalisierte Mundstelle zum Schutz ihrer zarten Oberfläche verschieden tief in das Innere des Protoplasmas eingesenkt ist, und daß die zur Herbeischaffung der Nahrungspartikel dienenden Bewegungsorganellen in verschiedener Weise in der Umgebung der Mundstelle angebracht sind.
Im allgemeinen wird angegeben, daß die Protozoen keine Auswahl zwischen den in ihrer Umgebung befindlichen Partikeln treffen, sondern wahllos organische und anorganische Partikel aufnehmen.
[S. 81]
Dazu ist zunächst zu bemerken, daß eine gewisse Auswahl durch die Morphologie der Tiere bedingt ist, indem z. B. Protozoen mit kleinen Mundöffnungen nur kleine Partikel aufzunehmen vermögen. Bei den Rhizopoden findet man jedoch vielfach, daß relativ sehr große Objekte aufgenommen werden, oft sogar Objekte, welche viel größer sind als das Protoplasma selbst. So kann man beobachten, daß Amöben, Vampyrellen etc. ganze Nematoden, Algen u. a. aufnehmen, so daß ihr Körper vollkommen deformiert wird, ihr Plasma oft nur mehr als ganz dünnes Häutchen das Opfer überzieht.
Speziell von den detritusfressenden Protozoen werden jedoch nutzbare und unnütze Partikel in den Plasmaleib aufgenommen, ähnlich wie schlammfressende Metazoen die Schlammmassen wahllos verschlingen. Aber auch bei solchen Protozoen reagiert das Plasma des Tieres in verschiedener Weise auf die aufgenommenen Partikel, je nach ihrer Natur, indem die brauchbaren, d. h. organischen Substanzen von einer Nahrungsvakuole umschlossen, während anorganische Substanzen ohne solche im Plasma liegen und bald wieder ausgestoßen werden.
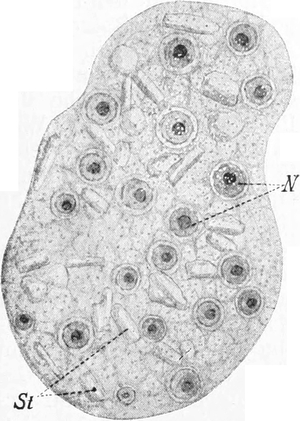
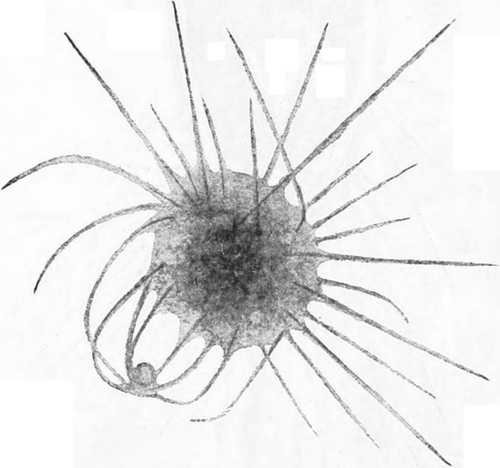
Bei der Mehrzahl der Formen muß aber schon von vornherein durch die chemische Beschaffenheit der Partikel, welche mit dem Plasma in Berührung kommen, ein Reiz ausgeübt werden, welcher je nach seiner Qualität zu einer besonderen Reaktion des Plasmas und dadurch zur Aufnahme oder Nichtaufnahme ins Plasma führt.
So finden wir denn manche Protozoen, welche mitten zwischen allerhand Detritus leben, dennoch nur mit den Exemplaren von einer oder wenigen Arten von Organismen angefüllt, die sie gefressen haben. Und besonders unter den Kommensalen und Ektoparasiten finden wir Formen, welche an eine ganz bestimmte Sorte geformter Nahrung angepaßt erscheinen.
[S. 82]
Das wird uns verständlich, wenn wir den Vorgang der Nahrungsaufnahme etwas genauer untersuchen.
1) Nahrungsaufnahme bei amöboiden Protozoen.
Bei Formen mit feinen verzweigten Pseudopodien kann man beobachten, wie kleine tierische Organismen gefangen werden. Infusorien, Rotatorien, kleine Crustaceen etc. geraten in Berührung mit den Pseudopodien eines Rhizopoden. An diesen bleiben sie hängen, wobei offenbar die schleimige Oberfläche des Pseudopodiums zur Wirkung kommt. In vielen Fällen wird das bewegliche Opfer zunächst durch eine Giftwirkung der Pseudopodien getötet (beobachtet schon durch Ehrenberg bei Actinophrys sol, durch Max Schultze bei Gromia und Polystomella, dann von vielen späteren Beobachtern bestätigt für Actinosphaerium, für Acineten etc., zuletzt noch von Winter für Peneroplis). Dann wird das Tierchen vom Protoplasma umflossen und in den Körper eingezogen. Nicht selten findet Verdauung schon im Pseudopodium statt, so daß die Nahrung im eigentlichen Plasmaleib schon in gelöstem Zustand ankommt (Fig. 95 und 96). Ist dies nicht der Fall, so wird im Körper eine Nahrungsvakuole um das Objekt gebildet.
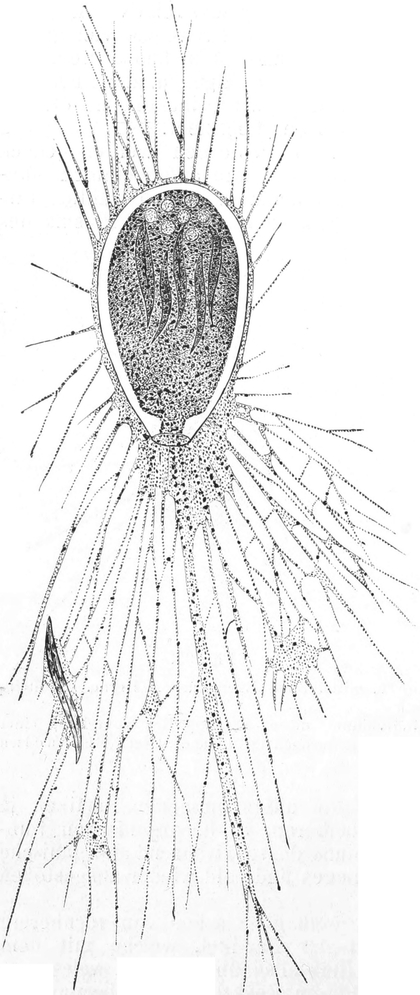
Bei den meisten Protozoen, welche geformte Nahrung zu sich nehmen, entsteht jedoch sofort eine Nahrungsvakuole, welche das Objekt einschließt. So bei den Amöben, deren Pseudopodien, wenn sie durch die chemische Beschaffenheit des [S. 83]Objekts einen Reiz erfahren haben, lebhafter herbeiströmen und das Objekt umfließen. Oft wird bei diesem Umfließungsvorgang ein Tropfen der umgebenden Flüssigkeit miteingeschlossen, und es entsteht so eine Nahrungsvakuole (Fig. 98). Die Menge der gleichzeitig miteingeschlossenen Flüssigkeit hängt von der Schwierigkeit des Umfließungsvorganges ab; lebende, sich sträubende Objekte veranlassen oft die Bildung einer sehr großen Vakuole. In anderen Fällen, besonders bei der Umfließung größerer, ruhender Objekte, erscheint eine solche erst nachträglich, wenn bei der Auflösung des eingeschlossenen Objekts sich ein Flüssigkeitstropfen bildet. Die Wand der Nahrungsvakuole ist zuerst von dem noch deutlich erkennbaren dichten Ektoplasma gebildet, welches allmählich sich in Entoplasma verflüssigt.
Sehr bemerkenswert ist die Art und Weise, wie lange, fadenförmige Gebilde, z. B. Algenfäden, Pilzfäden, Würmer etc. von amöboïden Organismen aufgenommen werden.
[S. 84]
Man kann diesen Vorgang an Amöben, Heliozoen, aber auch an gehäusetragenden Rhizopoden (z. B. Arcella) in allen seinen Stadien verfolgen. Die Amöbe (z. B. Amoeba verrucosa nach Rhumbler, vgl. Fig. 99) legt sich mit ihrem in die Länge gestreckten Körper dem Algenfäden an und umhüllt ihn mit einer Ektoplasmafurche, welche allmählich zu einer Röhre wird (in anderen Fällen kriecht sie vom einen Ende her allmählich über den Faden). Indem das Ektoplasma sich in Entoplasma umwandelt, ist ein Teil des Fadens im Zellinnern aufgenommen, und allmählich wird der Rest nachgezogen, indem immer wieder ein Pseudopodium an dem Faden entlang vorgestreckt, dann eingeknickt (Fig. 99 B) und mit dem Hauptteil des Körpers verschmolzen wird.
In anderen Fällen kann man beobachten, daß Amöben nur einen Teil eines Algenfadens umfließen und ein Stück aus dessen Mitte heraus verdauen (Fig. 101).
Wir unterscheiden demnach im Anschluß an Rhumbler folgende Methoden der Nahrungsaufnahme bei amöboïden Organismen:
1) Nahrungsaufnahme durch Umfließung (Zirkumfluenz), der Nahrungskörper wird von dem sich dicht anschmiegenden Plasma überflossen (Fig. 96):
2) durch Import, d. h. der Nahrungskörper, der mit der Oberfläche der Amöbe in Kontakt gebracht ist, rückt, ohne daß aktive Bewegungen der Amöbe hierzu notwendig sind, in deren Körper hinein (Fig. 99 F, G);
3) durch Zirkumvallation, der Nahrungskörper wird „eingefangen“, d. h. die Pseudopodien bilden, ohne ihn zu berühren, zunächst einen Wall um ihn (Fig. 98); die Beute wird förmlich „eingekerkert“;
4) durch Invagination, der Nahrungskörper klebt an der Oberfläche des Rhizopoden fest, wird nebst einem ihn umhüllenden Schlauch aus Ektoplasma in das Innere des Entoplasmas gezogen, worauf die ektoplasmatische Hülle allmählich aufgelöst wird (Fig. 97).
2) Nahrungsaufnahme bei Protozoen mit lokalisierten Mundöffnungen.
Läßt die feste Oberflächenbedeckung bei einem Protozoon nur eine oder wenige Mundstellen für die Nahrungsaufnahme frei, so muß die Nahrung in bestimmter Weise zu diesen Mundstellen hingelangen. Wie wir früher bei Betrachtung der Organellen sahen, verhalten sich manche von diesen Protozoen ähnlich wie die amöboïden Formen, indem sie ihren Körper oder Teile desselben zu dem Nahrungsobjekt hinbewegen und dasselbe mit der Mundöffnung packen (vgl. Coleps hirtus, Fig. 102). Bei den Ciliaten, welche sich in dieser Weise der Beute bemächtigen, erkennt man eine Mitwirkung des Plasmas am Grunde der Mundöffnung, indem dasselbe sich in Form einer Grube vertieft und den Nahrungskörper gleichsam einsaugt. Diesen „Packern“ oder „Schlingern“ stehen die „Strudler“ gegenüber, welche mit Hilfe ihrer Bewegungsorganellen oder eigens dazu dienender Organellen das Objekt zur Mundöffnung hinbewegen (vgl. S. 59).
[S. 85]
Wie die Beobachtung lehrt, vermögen solche Formen, also Flagellaten und Ciliaten, durch ihre strudelnden Bewegungen die kleinen Partikel in einem weiten Umkreis in wirbelnde Bewegung zu versetzen, wie Fig. 103 veranschaulicht (vgl. S. 88).
Auch bei solchen Formen erfolgt die Aufnahme der Nahrung in das Plasma unter Bildung einer Nahrungsvakuole. Die Details des Vorganges sind am genauesten bei Carchesium durch Miss Greenwood und bei Paramaecium durch Nirenstein studiert worden.
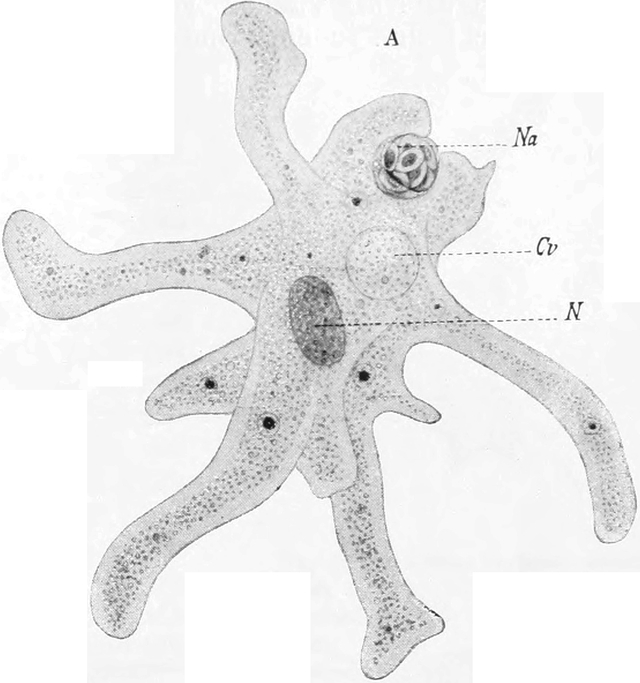
Das Plasma, welches bei solchen Infusorien am Grunde des Schlundes nackt zutage tritt, wird wohl unter dem Einfluß des Reizes, welchen die gegen seine Oberfläche gestrudelten Partikelchen ausüben, halbkugelig ausgehöhlt. Allmählich bildet sich ein Tropfen, [S. 86]welcher in das Entoplasma hineinragt, umgeben von einer dem Ektoplasma entsprechenden verdichteten Schicht, der Vakuolenhaut. Allmählich löst sich die Vakuole vom Schlund ab, indem sie sich in die Länge streckt und in eine Spitze auszieht. Offenbar steht sie unter dem Einfluß einer Zugwirkung, welche von dem umgebenden Entoplasma ausgeübt wird. Schließlich reißt sie vom Schlund ab, die Vakuolenhaut schließt sich rings um sie herum, und sie wird in den Strom des rotierenden Plasmas mitgerissen, wo sie allmählich kugelige Form annimmt.
[S. 87]
Handelt es sich um kleine Objekte (kleine Flagellaten, Bakterien etc.), welche im umgebenden Medium in geringer Menge vorhanden waren, so wird die Vakuole in dieser Weise gebildet und stets eine gewisse Quantität des umgebenden Wassers mitaufgenommen. Je mehr Nahrungsobjekte aufgenommen werden, um so kleiner ist die gleichzeitig entstehende Flüssigkeitsvakuole; bei Aufnahme von großen Objekten (Infusorien, größeren Flagellaten, kleineren Metazoen etc.) wird aber (z. B. bei Stentor) kein oder wenig Wasser mitaufgenommen. Das ist auch in der Regel der Fall bei den oben unterschiedenen „Packern“ oder „Schlingern“.
Bei solchen Formen, welche lebende Objekte aufnehmen, findet nach Bildung der Vakuole erst die Abtötung des Opfers statt. Man kann leicht bei Stentoren, Amöben etc. beobachten, daß aufgenommene Tiere noch längere Zeit im Innern der Vakuolen leben und sich lebhaft bewegen.
[S. 88]
Die Abtötung findet statt unter Ausscheidung einer giftigen Substanz und einer schleimigen Masse, welche die Objekte überzieht. Wir sehen also diejenigen Vorgänge, welche bei Rhizopoden vielfach außerhalb des Körpers vor sich gehen (S. 82) in diesen Fällen in die Nahrungsvakuole und damit in das Innere des Protozoenkörpers verlegt.
Näheres über die Ausscheidungen innerhalb der Vakuole folgt im nächsten Abschnitt (S. 92).
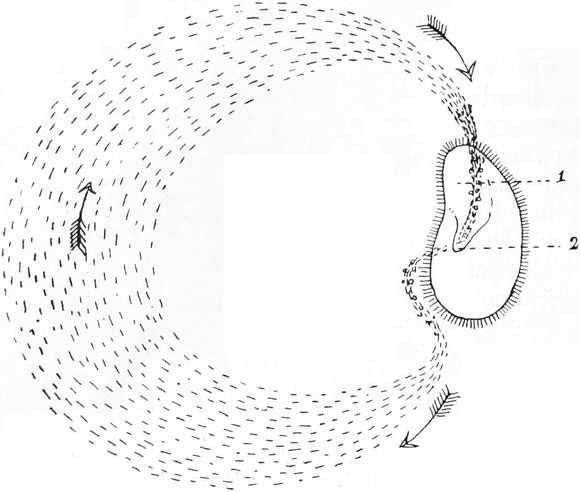
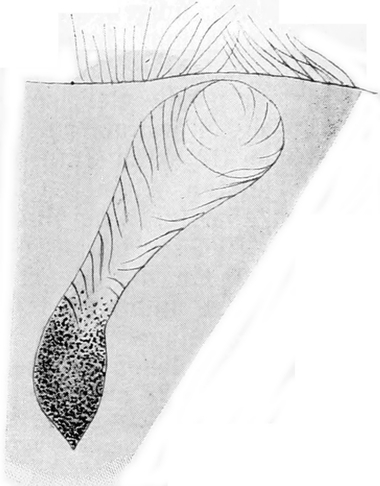
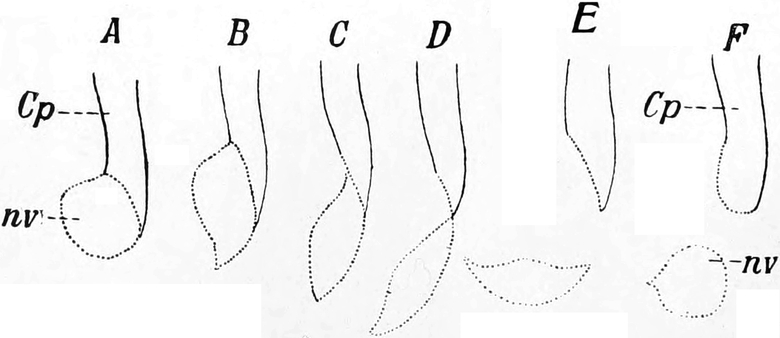
3) Nahrungsaufnahme durch Saugröhren.
Die bei den Suctorien oder Sauginfusorien vorkommende Methode der Nahrungsaufnahme durch Saugröhrchen stellt einen Fall dar, bei welchem durch ausgeschiedenes Gift die bewegliche Beute zuerst gelähmt [S. 89]wird, um sodann mit Hilfe der hohlen Röhrchen ausgesaugt zu werden (Fig. 106). Man kann die Körpersubstanz des Opfers durch das Lumen der Röhrchen bis in das Innere des Plasmas des Räubers wandern sehen. Das Opfer, meist ein gefangenes Infusor, kollabiert allmählich, nur die festen Bestandteile bleiben übrig, alles Flüssige wird aufgesaugt. Der ganze interessante Vorgang bedarf noch sehr der genauen Durchforschung.
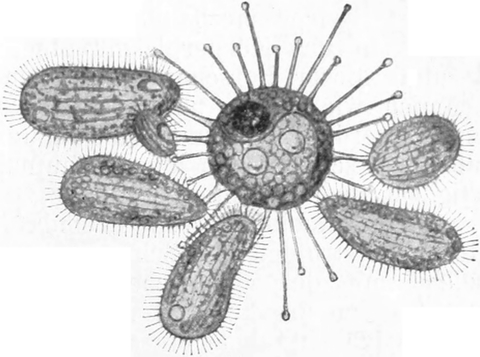
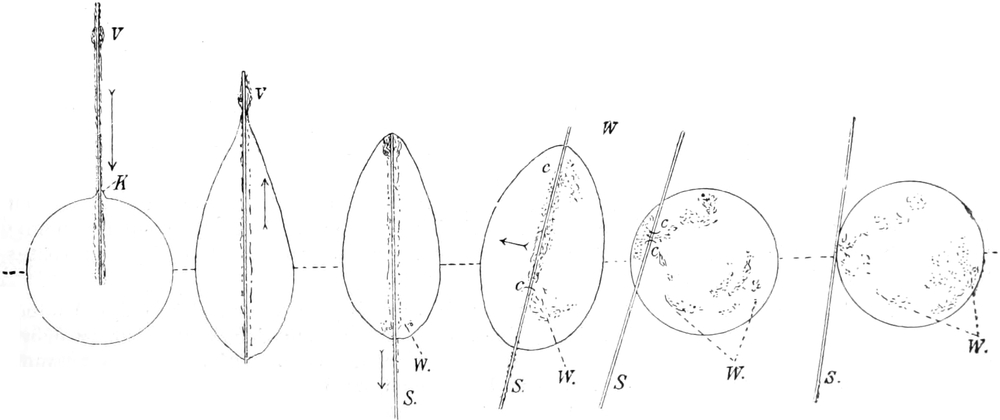
Aus der Gesamtheit der in der Literatur vorliegenden Angaben und eigenen Beobachtungen scheint mir hervorzugehen, daß über die Aufnahme eines geformten Körpers in das Protoplasma der chemische und mechanische Reiz entscheidet, welchen dieser Körper auf das Plasma ausübt. Gewisse anorganische und organische Substanzen (Quarzstückchen, Kieselpanzer, Ruß, Karmin etc.) scheinen für das Plasma jedoch chemisch vollkommen indifferent zu sein und werden oft in großen Mengen in diesem gespeichert, wenn sie in der Umgebung des Tieres im Ueberfluß vorhanden sind. So erklären sich die Beobachtungen mancher Autoren, nach denen z. B. Amöben sich so voll Karmin pfropfen, daß sie verhungern, weil sie keine andere Nahrung mehr aufzunehmen vermögen. Man hat aus solchen Beobachtungen geschlossen, daß es keinen „Sättigungszustand“ bei den Protozoen gäbe. Gegen eine solche Annahme spricht jedoch die Tatsache, daß manche Protozoen nach Aufnahme einer gewissen Quantität von Nahrung eine sog. [S. 90]Verdauungscyste bilden, aus welcher sie wieder — zu neuer Nahrungsaufnahme bereit — hervorkriechen, sobald sie fertig verdaut haben.
Neuere Untersucher haben sich auch vielfach mit der Frage beschäftigt, welche mechanischen Gesetze die Aufnahme eines Gegenstandes in das Körperplasma eines Protozoons herbeiführen. Das Resultat dieser Forschungen können wir etwa so zusammenfassen: Aehnlich wie wir es unten bei den Bewegungserscheinungen kennen lernen werden, ist durch Nachahmung in Modellen gezeigt worden, daß die Erscheinungen der Stoffaufnahme — so kompliziert und eigenartig sie auch auftreten — nichts spezifisch Vitales sein müssen.
Das Aufnehmen von Fremdkörpern erfolgt auch in leblosen Flüssigkeitstropfen und Schäumen unter bestimmten Voraussetzungen, welche mit der chemischen Beschaffenheit und den Oberflächenverhältnissen der beteiligten Substanzen zusammenhängen. So erfolgt z. B. aktive Aufnahme eines mit Schellack überzogenen Glasstäbchens in einen Chloroformtropfen (vgl. Fig. 107 nach Rhumbler); sobald aber — da Schellack in Chloroform löslich ist — die Oberflächenverhältnisse sich wieder geändert haben, erfolgt Ausstoßung des Glasfadens aus dem Chloroformtropfen.
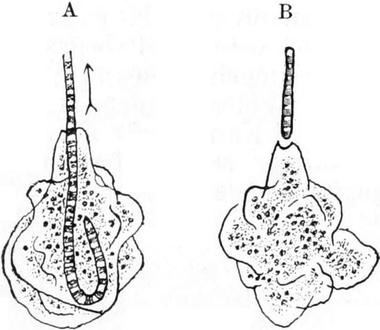
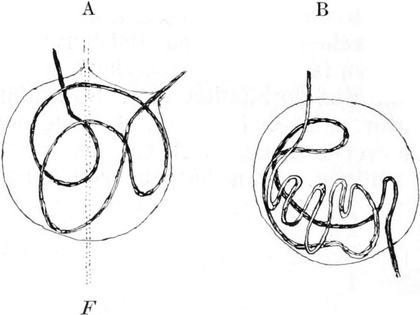
Selbst die komplizierten Aufrollungsvorgänge beim Import eines Algenfadens in einen Amöbenkörper lassen sich künstlich nachahmen; Fig. 109 stellt wiederum nach Rhumbler die aktive Aufnahme eines Schellackfadens durch einen im Wasser liegenden Chloroformtropfen dar. Auch in diesem Fall wird die erhebliche Kraft, welche zur Aufnahme des Objektes führt, durch die Oberflächenspannung geleistet, wobei analog der beginnenden Verdauung des Algenfadens der Schellackfaden durch die lösende Wirkung des Chloroforms allmählich weich wird.
Aus diesen Beispielen ersehen wir, daß ein Körper von einem unbelebten Flüssigkeitstropfen umflossen resp. „verschluckt“ wird, [S. 91]wenn zwischen diesem und ihm die notwendigen physikalischen und chemischen Beziehungen bestehen. Das Modell liefert uns also eine mechanische Analogie zu dem Vorgang des Stoffimports bei den plasmophagen Protozoen. Damit ist deren Nahrungsaufnahme allerdings noch nicht erklärt, sondern nur unserem Verständnis näher gerückt. Denn bei der Nahrungsaufnahme der Protozoen sind mannigfache Komplikationen gegeben, indem z. B. die Masse des Protozoenkörpers nicht stofflich gleichartig ist, also in den einzelnen Regionen (Ekto- und Entoplasma) verschiedenartige Kräfte wirksam sind, indem ferner infolge des Stoffwechsels beständige Aenderungen in chemischer Beschaffenheit und damit im Zusammenhang in den Oberflächenkräften erfolgen. Außerdem wirkt im Innern des Protoplasmas der aufgenommene Gegenstand je nach seiner Beschaffenheit von neuem als Reiz, welcher „Kontraktionen“ des Protoplasmas und chemische Wirkungen herbeiführen kann; diese können dem Import förderlich sein oder ihm entgegenwirken.
b) Die Verdauung bei den Protozoen.
Die in dem Plasma der Protozoen eingeschlossenen Nahrungskörper werden im Protoplasma von dessen Strömungen fortgeführt und allmählich verdaut. Während bei manchen Formen die Nahrungsballen, in einer bestimmten Region angelangt, zur Ruhe kommen und dort liegen bleiben, bis ihre unbrauchbaren Reste wieder hinausbefördert werden (Thalamophoren, Colpidium etc.), ist bei anderen Formen ein längeres Umherwandern zu beobachten. Der zurückgelegte Weg ist bei den amöboïden Formen vielfach ein unregelmäßiger, bei den formbeständigen Protozoen können wir jedoch häufig einen bestimmten Weg feststellen, den normalerweise der Nahrungskörper im Protozoenleib durchläuft. Dieser Weg ist auf den Figg. 101 und 111 für Paramaecium nach Nirenstein und für Carchesium nach Greenwood eingetragen. In beiden Fällen ist die Bahn dadurch ausgezeichnet, daß sie nicht einfach der Körperwandung parallel verläuft; sondern bei Carchesium kommt ein eigenartiger Umweg vor, bei Paramaecium wird häufig nur die bezeichnete „kleine Umlaufsbahn“ durchmessen, in anderen Fällen, nachdem diese mehrmals durchlaufen worden ist, die „große Umlaufsbahn“ eingeschlagen, worauf im hinteren Ende an der Analstelle die Ausstoßung der unbrauchbaren Reste erfolgt.
Der Umlauf erfolgt nicht kontinuierlich, sondern es ist charakteristisch, daß die Nahrungsballen in der Gegend hinter dem Kern regelmäßig eine Zeitlang zurückgehalten werden.
Während des Umlaufes erfährt nun der Nahrungskörper ganz charakteristische Veränderungen, welche sich morphologisch nachweisen lassen, und welche bei allen indifferenten, ins Plasma geratenen Körpern nicht auftreten. In den Schicksalen der Nahrungsobjekte im Protozoenkörper und in der Reaktion der Vakuolenflüssigkeit lassen sich nach den Untersuchungen von Greenwood, Greenwood und Saunders, Metalnikoff und neuerdings von Nirenstein verschiedene Perioden unterscheiden; letzterer gibt für die von ihm untersuchten Ciliaten 2 Perioden an.
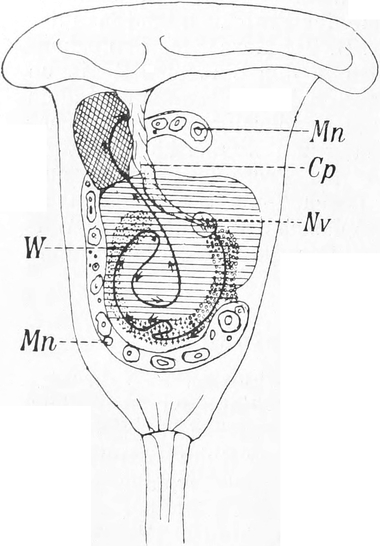
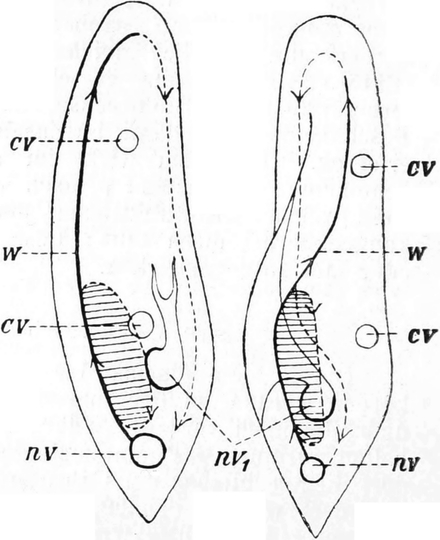

|
Entoplasmaregion, in welcher die Verdauung stattfindet.
|

|
Indifferenter Teil des Weges.
|

|
Teil, in welchem die Nahrungsvakuolen ruhen und sauer
reagieren.
|

|
Region, wo die neutrale Reaktion beginnt.
|

|
Defäkationszone.
|
Handelt es sich um kleine Objekte, welche von vornherein mit einer Wasservakuole umschlossen waren, so erfolgt in der ersten [S. 92]Periode Verkleinerung der Vakuole durch Wasserverlust, Ballung des Inhalts, Ausscheidung einer schleimigen Substanz in die Vakuole aus dem umgebenden Plasma, wobei in der Vakuole eine saure Reaktion auftritt, welche durch das nachgewiesene Auftreten (Reaktion auf Dimethylamidoazobenzol) freier Mineralsäure bedingt ist. Durch Vitalfärbung wies Nirenstein ferner nach, daß in dieser Periode aus dem umgebenden Entoplasma feine Körnchen in die Vakuole eindringen, welche sich mit Neutralrot stark färben und mit deren Eindringen auch der Inhalt der Vakuole starke Färbung annimmt. Dieser Moment ist auch der Moment der Abtötung in der Vakuole eingeschlossener lebender Organismen. Bei anderen Formen (Colpidium, Colpoda, Glaucoma, vielen Peritrichen) jedoch wird eine Substanz in Form einer ziemlich resistenten Hülle um den Vakuoleninhalt ausgeschieden und backt denselben zu einem Nahrungsballen zusammen. Auch um größere Objekte, welche zuerst ohne Vakuole [S. 93]im Plasma lagen, tritt allmählich eine solche auf. Doch sind die feineren Vorgänge in solchen Fällen noch nicht hinreichend genau studiert.
In der zweiten Periode vergrößert sich die Vakuole wiederum durch Wasseraufnahme, es tritt Zerfall der Nahrungsballen in Granula, dann deren Auflösung ein. In dieser zweiten Periode reagiert ferner die Flüssigkeit in der Vakuole alkalisch. War der Inhalt durch Neutralrot gefärbt, so tritt Entfärbung ein.
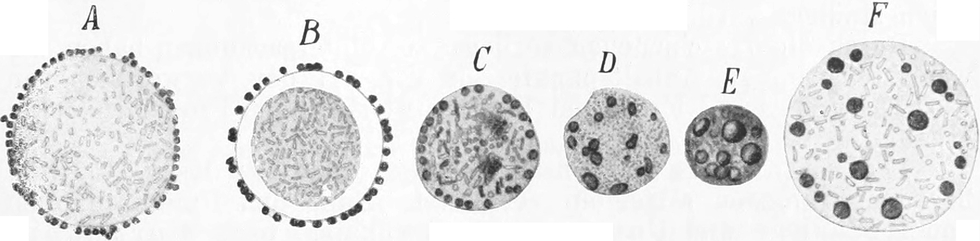
In der ersten Periode geht also bei sauerer Reaktion die Abtötung der gefangenen Organismen vor sich, in der zweiten Periode erfolgt bei alkalischer Reaktion die Eiweißverdauung.
Diese zunächst für die Ciliaten festgestellten Tatsachen scheinen bei den Protozoen eine weitere Verbreitung zu haben. Sehr vielfach ist eine saure Reaktion in der ersten Periode der Existenz von Nahrungsvakuolen beobachtet worden. Doch auch das nicht überall; saure Reaktion in den Vakuolen wurde von Miss Greenwood bei Amoeba proteus und Actinosphaerium Eichhorni vollkommen vermißt, ebenso von Metschnikoff bei Noctiluca miliaris und Euplotes.
Eine Bestätigung der früheren Annahme, daß die Verdauung bei den Protozoen bei saurer Reaktion durch Vermittelung eines peptischen Ferments erfolgte, hat sich also bisher nicht finden lassen. Vielmehr ergab sich eine Bestätigung der Angaben von Greenwood und Saunders, daß die Verdauung bei alkalischer Reaktion erfolge.
Damit steht in guter Uebereinstimmung der Befund von Mouton, welchem es gelang, bei einer aus Gartenerde kultivierten Amöbenart ein bei alkalischer Reaktion wirksames, auch Gelatine verflüssigendes und koaguliertes Eiweiß angreifendes tryptisches Ferment zu isolieren, welches er als Amöbendiastase bezeichnete. Dasselbe wird durch Erwärmen auf 60° C unwirksam. Nach Glaessner läßt sich auch bei Balantidium coli ein diastatisches Ferment leicht nachweisen.
Außerdem wurden allerdings auch peptische Fermente aus Protozoen gewonnen. Krukenberg gewann ein solches aus den Plasmodien von Aethalium septicum, Hartog und Dixon aus Pelomyxa palustris, daneben letztere auch ein diastatisches. Es ist also nicht unmöglich, daß verschiedene Formen von Verdauung vorkommen.
[S. 94]
Dagegen entbehren die bisher untersuchten Protozoen, nämlich Amöben und Paramaecium nach Mesnil und Mouton der fettzersetzenden Lipase.
Versuche über die Verdauung der wichtigsten Substanzen liegen in größerer Anzahl vor (von Meissner, Lister, Wortmann, Greenwood, Celakowski, Stolc, Nirenstein u. a.). Sie wurden in der Weise angestellt, daß gewisse fein verteilte Stoffe, wie Eiweißkörper, Kohlehydrate, Fette, organische und anorganische Stoffe verschiedener Art, an Protozoen verfüttert und die Veränderungen an ihnen studiert wurden.
Durch die verschiedenen vorliegenden Untersuchungen haben wir wenigstens einige Anhaltspunkte für die Art der Verwertung von Kohlehydraten, Fett und Eiweißstoffen im Protozoenkörper erhalten.
1) Kohlehydrate. Das Vermögen, Stärke zu lösen, ist wohl bei den Protozoen allgemein verbreitet. Nach den Untersuchungen von Meissner und Fabre vermögen Ciliaten, nach Wortmann, Lister und Celakowski Myxomyceten, nach Stolc Pelomyxa und Amoeba proteus Stärke aufzulösen. Und zwar dürfen wir wohl annehmen, daß dabei diastatische Enzyme wirksam sind. Bei Pelomyxa hat Stolc gefunden, daß die sogenannten Glanzkörper in direkter Beziehung zur Kohlehydratnahrung standen. Sie sind mit Glykogen erfüllt, welches zunimmt, wenn die Tiere mit Stärke gefüttert werden, welches abnimmt, wenn sie hungern. Im ersteren Falle können sie auf das Vierfache ihres ursprünglichen Umfanges anwachsen, im letzteren Falle vollkommen leer werden.
2) Fett. Wir haben kein Beispiel einer tatsächlichen Ausnutzung von Fett durch Protozoen. Vielmehr kann man nach meinen Erfahrungen Fetttropfen tagelang als träge Massen im Plasma von Protozoen unverändert liegen sehen. Doch ist es immerhin möglich, daß gewisse Fettarten ausgenützt werden, oder daß kleinere Quantitäten verwertet werden. Bisher ist dies jedoch in keinem Fall nachgewiesen; auch die neueren Untersuchungen von Nirenstein beweisen Fettverdauung nicht, wie aus den Experimenten von Staniewicz hervorgeht.
3) Eiweißkörper. Eiweißkörper unterliegen im Protozoenkörper einem Auflösungsvorgang, bei welchem in die Nahrungsvakuole ein Sekret abgesondert wird, welches, wie wir oben sahen, wenigstens im zweiten Abschnitt des Vorganges alkalisch reagiert und wahrscheinlich ein tryptisches Ferment enthält.
Manche Protozoen vermögen sehr intensiv und in großer Menge Körper von anderen Organismen aufzulösen und ihnen die Eiweißsubstanzen zu entziehen.
Da nur kernhaltige Stücke von Protozoen die Verdauung regelrecht durchführen, während dieselbe in kernlosen Stücken bald — offenbar wenn die vorhandenen Fermente verbraucht sind — sistiert, schließt man mit Recht, daß der Kern eine wichtige Rolle bei der Produktion der Fermente spielt.
c) Stofftransport und Defäkation.
Im Körper der Protozoen muß natürlich ein Transport der in den Nahrungsvakuolen gelösten Stoffe an den Ort der jeweiligen Verwendung [S. 95]erfolgen. In die Umgebung findet ein Vordringen wohl durch Diffusion statt; bei dem Wandern der Vakuole findet nun Abgabe von Stoffen an verschiedenen Orten statt, und für eine ausgiebige Durchmischung der Substanzen sorgen meist mehr oder minder heftige Protoplasmaströmungen.
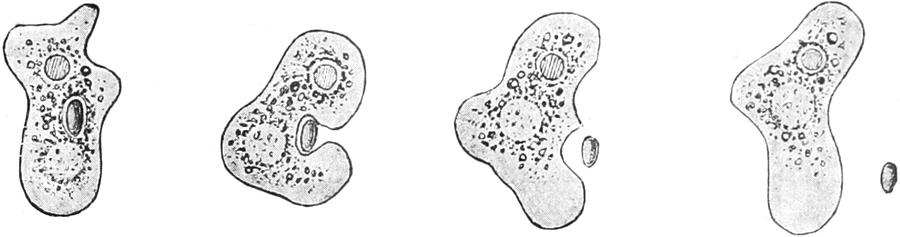
Die bei der Ernährung als unbrauchbar zurückgelassenen Bestandteile sowie manche der unten zu behandelnden Exkrete werden bei Rhizopoden durch einen Vorgang, der umgekehrt der Bildung einer Nahrungsvakuole entspricht, aus dem Plasma ausgeschieden. Bei formbeständigen Protozoen findet die Defäkation, wie oben geschildert, meist an einer bestimmten Afterstelle statt. Vielfach werden die relativ festen (durch den Schleim der Nahrungsvakuolen verklebten) Fäkalmassen unter heftigen Kontraktionserscheinungen ausgeschleudert, so bei den Infusorien Colpoda, Colpidium, Glaucoma (vgl. Fig. 114).
Vielfach sind sie zu eigenartigen Massen zusammengebacken: Sterkome der Foraminiferen.
Manche Formen entledigen sich periodisch der Fäkalmassen und sind dann von einer ganzen Wolke ausgestoßener Partikel umgeben (Peneroplis nach Winter).
3. Die Ernährung bei Saprozoen und Parasiten.
Die Ernährung mancher Protozoen, welche in organische Verbindungen enthaltenden Flüssigkeiten saprozoisch oder in anderen Organismen parasitisch leben, unterscheidet sich nicht sehr von den in den vorstehenden Abschnitten behandelten Ernährungsarten. Wie es Chromatophoren besitzende Flagellaten gibt, welche außerdem noch geformte Nahrung aufnehmen (Peridineen, Chrysamoeba), so gibt es auch solche, welche trotz solchen Besitzes organische Verbindungen aufnehmen; und so gibt es auch zahlreiche in anderen Organismen schmarotzende Formen, welche genau wie typische plasmophage Organismen Teilchen von den Geweben des Wirtes oder Detritus aus dessen Körperhöhlen fressen.
Ganz anders muß aber die Ernährung derjenigen Formen verlaufen, welche ohne Import geformter Nahrung in Flüssigkeiten [S. 96]organischer Art leben und sich ausschließlich von deren Bestandteilen ernähren, d. h. vorwiegend von hoch zusammengesetzten organischen Verbindungen. Bei ihnen muß die ernährende Flüssigkeit durch Diffusion die Körperwandung durchdringen, um im Innern vom Plasma verwertet zu werden. In manchen Fällen sehen wir dann im Körper des Protozoon sich festere Stoffe aus der Lösung wieder niederschlagen und in Form von Klumpen und Ballen auftreten (so das Pigment der Malariaparasiten, welches ein Umwandlungsprodukt des aus den roten Blutkörperchen aufgenommenen Hämoglobins darstellt.) Diese Flüssigkeit muß Stoffe enthalten, welche etwa so vorbereitet sind, wie die Stoffe, welche bei den plasmophagen Protozoen aus der Nahrungsvakuole in das umgebende Plasma dringen. Für diese Protozoen ist also das umgebende Medium sozusagen eine große Nahrungsvakuole.
Somit werden sich diejenigen, welche in freien Flüssigkeiten leben, etwas anders verhalten, als diejenigen, welche in Geweben und Zellen leben. Wir wissen nichts über die Substanzen, welche sie ihrer Umgebung entziehen, ob sie elektive Fähigkeiten besitzen, ob sie durch Ausscheidung von Substanzen an der Präparierung der umgebenden Flüssigkeit mitwirken. Letzteres müssen wir wohl annehmen, wo wir Gewebeparasiten „lösende“ Wirkung auf die Umgebung ausüben sehen. Und es ist nach meiner Ansicht wahrscheinlich, daß die schädigende Wirkung von Parasiten vielfach auf der Wirkung solcher ausgeschiedener Substanzen beruht. Die Giftausscheidung, welche wir oben an den Pseudopodien und an den Innenflächen der kontraktilen Vakuolen kennen lernten, wird vermutlich bei solchen Formen von der ganzen Oberfläche ausgehen. Eine merkwürdige Beziehung zwischen dem Kern des Parasiten und dem der Wirtszelle ist bei Caryotropha festgestellt worden. Es scheint, daß der Parasitenkern sich hier die Stoffwechselarbeit des Wirtskerns direkt zunutze macht.
Im ganzen ist die Verdauungsphysiologie derartiger Formen noch vollkommen unbekannt. Wie wir unten sehen werden, darf man wohl vermuten, daß solche Protozoen ihre wichtigste Kraftquelle in der Zersetzung organischer Verbindungen, besonders von Zuckerarten, finden.
III. Die Atmung bei den Protozoen.
Ueber die Atmung bei den Protozoen wissen wir sehr wenig, vor allem existieren keine exakten Versuche über dies Gebiet.
Die Erfahrungen bei der Zucht von Protozoen und die Beobachtung ihres natürlichen Vorkommens zeigen uns, daß die einzelnen Formen in verschieden hohem Grade von dem Sauerstoffgehalt der Umgebung abhängig sind. Während manche Formen nur bei hohem Sauerstoffgehalt des Wassers fortkommen (viele Peridineen, Volvox, manche Thalamophoren, Radiolarien, Foraminiferen), kommen andere in sehr sauerstoffarmen Gewässern fort; so die Bewohner fauliger Wasseransammlungen, der Jauche, des Schlammes. Und ähnlich verhalten sich zahlreiche der in anderen Organismen als Kommensalen und Parasiten vorkommenden Protozoen. Diejenigen Parasiten, welche in der Haut und im Blut leben, mögen ihren Bedarf an Sauerstoff wohl aus den sie umspülenden Flüssigkeiten in elementarer Form [S. 97]entnehmen. Die Zell- und Gewebeschmarotzer werden wohl in derselben Weise mit Sauerstoff versorgt werden, wie jeweils die sie umgebenden Teile ihres Wirtes.
Besondere Schwierigkeiten bietet nun dem Verständnis die Atmung aller der Formen, welche an Orten ohne jeglichen freien Sauerstoff ein anaerobiontisches (= anoxybiontisches) Leben führen, z. B. der Darmparasiten, der Gallenblasenbewohner, der sapropelischen Schlammbewohner.
Bei den gewöhnlichen, oxybiontischen Formen müssen wir uns wohl vorstellen, daß die Atmung in der Weise erfolgt, daß der Sauerstoff aus dem umgebenden Medium in gelöster Form durch die Körperhüllen hindurch zu den zu oxydierenden Substanzen dringt, und daß umgekehrt CO2 auf dem gleichen Wege den Protozoenkörper verläßt. Bei den Formen mit kontraktiler Vakuole und mit aktiver Nahrungsaufnahme wird wohl durch die Nahrungsvakuolen auch Sauerstoff mit dem Wasser in den Körper gebracht, Kohlensäure dagegen mit anderen Stoffwechselprodukten bei der Funktion der kontraktilen Vakuolen ausgeschieden werden. Sicher ist, daß die oxybiontischen Protozoen erhebliche Mengen von CO2 in ihre Umgebung abscheiden. Exakte Messungen über die in Betracht kommenden Quantitäten liegen nicht vor, vgl. Barrat, welcher bei Paramaecium auffallend große Zahlen für die Kohlensäureabscheidung angibt.
Ob Stoffe im Protozoenkörper vorhanden sind, welche auf Sauerstoff eine besondere Attraktion ausüben, ist unbekannt.
Wie wir oben sahen, kommt bei zahlreichen Protozoen Anoxybiose vor. Solche Formen, denen also kein freier Sauerstoff zur Verfügung steht, müssen die für ihre Lebensfunktionen nötige Energie durch andere Mittel erzielen. Wir haben allen Grund, wie ich schon 1901 hervorhob, anzunehmen, daß bei diesen anoxybiontischen Protozoen sogenannte „intramolekulare Atmung“ vorkommt.
Die hierher gehörigen Formen sind vielfach durch Aufspeicherung von Reservesubstanzen in ihrem Protoplasma ausgezeichnet: von Glykogen, Paraglykogen etc. (s. unten). Nun wissen wir, daß Metazoen von entsprechender Lebensweise analoge Substanzen in ihrem Körper anhäufen. Die Untersuchungen von Weinland (1900) haben gezeigt, daß bei metazoischen Darmparasiten (Ascariden) die Energie durch Spaltung einer solchen Reservesubstanz gewonnen wird; in dem von ihm untersuchten Fall wird Glykogen unter Bildung von Valeriansäure und CO2 gespalten. Die so gewonnene Energiemenge ist allerdings erheblich geringer als die durch die gewöhnliche Zuckerverbrennung bei Sauerstoffzutritt erzielte (erzielte Kalorienzahl nur ca. ¼). Es ist sehr wahrscheinlich, daß bei Gregarinen, manchen Infusorien etc. analoge Spaltungen vorkommen. Doch liegen für Protozoen keine exakten Untersuchungen vor; die Untersuchungen von Pütter, welcher bei verschiedenen Infusorien (Paramaecium etc.) Fähigkeit zur Anoxybiose und Anhäufung von Glykogen nachgewiesen zu haben glaubt, erscheinen mir nicht einwandfrei.
Bei den freilebenden Protozoen äußert sich Sauerstoffmangel oder vollkommene Sauerstoffentziehung meist nach relativ kurzer Zeit (Amöben nach Kühne nach 24 Minuten, Rhizopoden nach Verworn nach 1½-3 Stunden). In besonders drastischer Weise macht [S. 99]sie sich durch Beeinflussung der Beweglichkeit des Plasmas bemerkbar. Bei Rhizoplasma Kaiseri z. B. (Fig. 115) hört im Wasserstoffapparat zuerst die zentrifugale Bewegung der Pseudopodien auf, die zentripetale dauert noch eine Zeitlang an, um dann auch zu sistieren, so daß die Pseudopodien in halbausgestrecktem Zustand, starr, mit eigentümlichen dreieckigen Anhäufungen an den Verzweigungsstellen verharren, bis erneute Sauerstoffzufuhr sie zu neuer Beweglichkeit anregt.
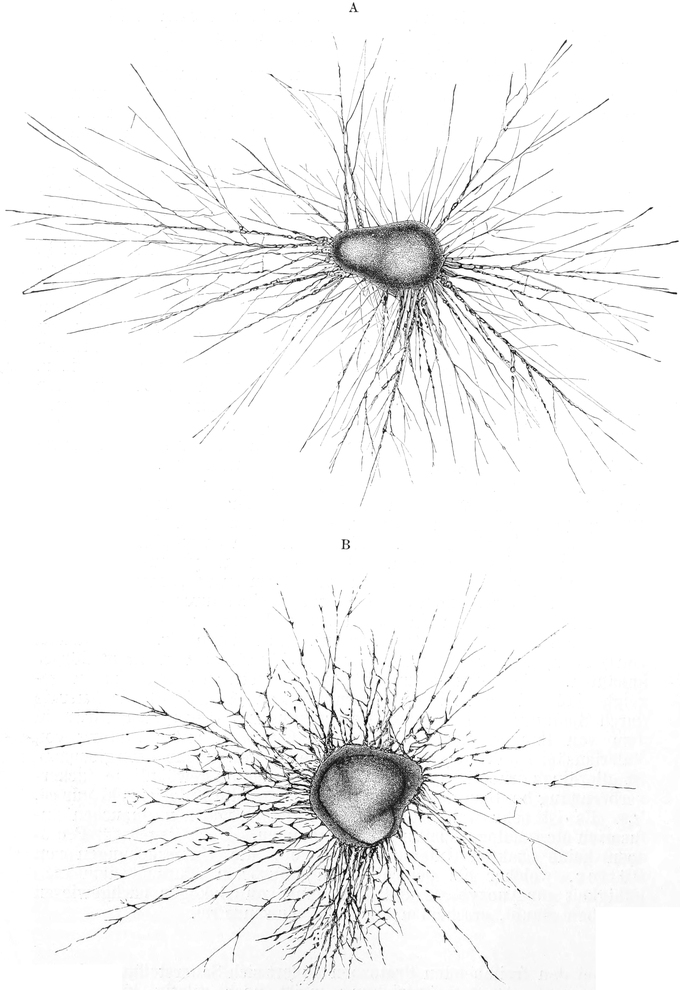
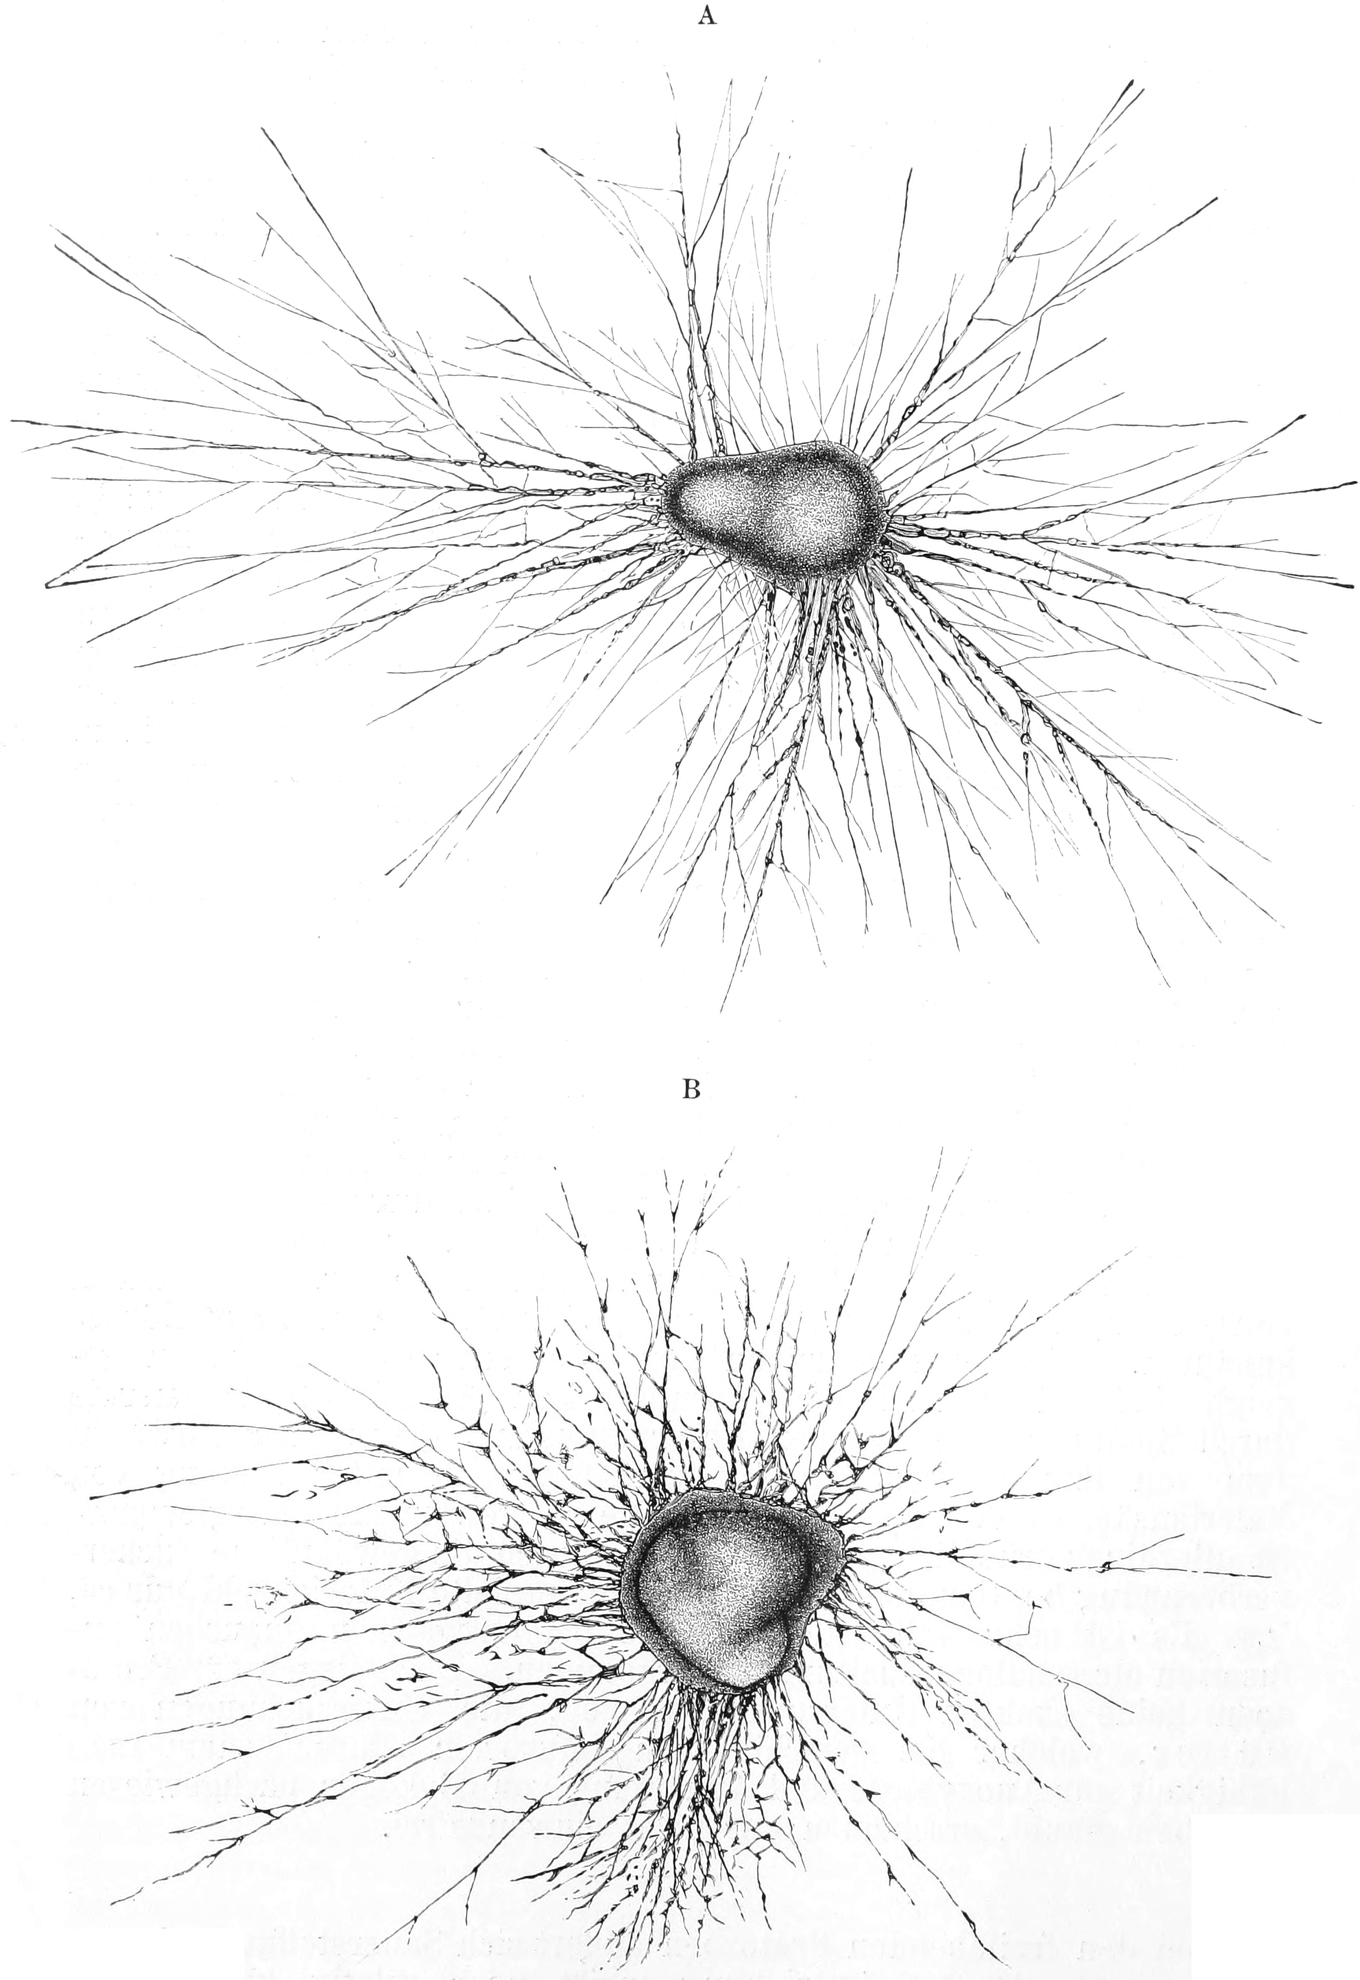
Loeb hat die interessante Theorie entwickelt, daß der Kern ein Oxydationszentrum der Zelle sei. Die Versuche an Protozoen sind dieser Annahme nicht günstig, da kernlose Fragmente von solchen oft viel länger leben als kernhaltige. Beide Sorten von Fragmenten verhalten sich nach Verworn bei der Erstickung gleich. Versuche, welche über das Verhalten des Kerns bei oxydativen Synthesen unterrichteten, liegen allerdings noch nicht vor.
IV. Die Reservestoffe der Protozoen.
Im Körper der Protozoen finden sich vielfach Anhäufungen von organischen Substanzen, welche während des Stoffwechsels entstehen und bei besonderen Beanspruchungen der Zelltätigkeiten verbraucht werden. Als solche Reservestoffe lernten wir oben schon die Amylum- und Paramylumkörner der Eugleniden kennen, welche nicht nur als erste sichtbare Assimilationsprodukte, sondern auch als Reservestoffe zu bezeichnen sind. Echte Stärke kommt ferner bei Cryptomonadinen und Peridineen vor.
Bei Ciliaten, Gregarinen und in den Cysten von Flagellaten finden sich im Plasma zahlreiche rundliche Körner von doppelter Lichtbrechung, welche sich mit Jod braun bis braunviolett, nach Zusatz von starker Schwefelsäure bei Anwesenheit von Jod weinrot färben. Die Substanz ist in kaltem Wasser, Alkohol, Aether unlöslich, wird jedoch von heißem Wasser zur Quellung und dann langsam zur Lösung gebracht. Längeres Kochen in verdünnter Schwefelsäure verwandelt sie in reduzierenden Zucker. Die auf Grund dieser Reaktionen vom Glykogen unterscheidbare Substanz bezeichnet Bütschli, welcher sie als erster genau untersucht hat, als Paraglykogen, sie wird auch Zooamylum genannt.
Auch bei Hexamitus, Urophagus und anderen Flagellaten findet sich ein glykogenartiger Körper. Ebenfalls als Kohlehydrat wird eine Substanz angesehen, die sich bei Chrysomonadinen und einigen Monadinen findet, das Leukosin, welches in Form farbloser, stark lichtbrechender Ballen meist am Hinterende der Tiere angesammelt ist.
Aehnlich wie bei den Diatomeen sind auch bei den Flagellaten fette Oele weit verbreitet. Sie finden sich bei sehr vielen der Formen mit Chromatophoren, und zwar treten sie besonders reichlich bei der Bildung von Dauerzuständen auf. Vielfach sieht man sie lebhaft rot gefärbt durch das Auftreten von Hämatochrom (s. oben S. 74). [S. 100]Oele sind auch sehr verbreitet bei Cystoflagellaten (Noctiluca) und Peridineen, ferner bei Radiolarien in Form der charakteristischen Oelkugeln. Letztere werden bei der Schwärmerbildung verbraucht. Sicherlich spielen sie aber auch eine Rolle bei den hydrostatischen Bewegungen der Radiolarien. Auch bei Ciliaten ist Fett nachgewiesen worden, so bei Nassula aurea, bei Opalina ranarum, ferner bei Sporozoen (Gregarinen und Myxosporidien). Fettspeicherung findet im Körper von Protozoen (besonders untersucht bei Infusorien durch Nirenstein) nach Fütterung mit Eiweiß oder auch Kohlehydrat statt. Nach den Untersuchungen von Roessle bei Paramaecium und von Doflein bei Trypanosoma tritt bei längerer Kultur in serumhaltigen Flüssigkeiten Fett in großer Menge in diesen Protozoen auf (Fig. 116).
Borgert hat bei dem Radiolar Aulacantha scolymantha fettige Degeneration beschrieben. Unter Degenerationserscheinungen treten in der Zentralkapsel, auch eventuell sonst im Plasma, Fettkugeln auf, welche ihrer Entstehung nach teils auf das Plasma, teils auf den Kern zurückzuführen sind (Fig. 117).
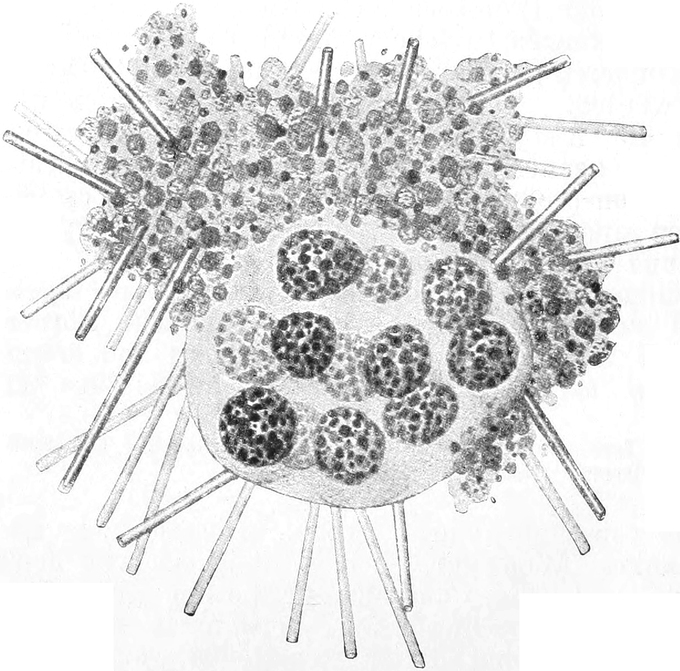
Eiweißsubstanzen sind ebenfalls als Reservesubstanzen weit verbreitet. Bei Amöben, Radiolarien (Thalassicolla) etc. werden sog. „Eiweißkugeln“ beschrieben, welche zähflüssig sind, sich mit Millons Reagens rot färben und bei starker Hitze verkohlen.
Für Verbindungen der Nukleïnsäure hält A. Meyer gewisse Gebilde, welche er mit dem Namen Volutin belegt hat; es handelt sich um sehr kleine Körnchen, welche sich mit Jod gelblich, mit Methylenblau und 1-proz. Schwefelsäure schön blau färben. Sie sind bei Diatomeen, Pilzen, Hefen, Cyanophyceen und Bakterien beschrieben und wahrscheinlich weit verbreitet. So scheinen die eben erwähnten „Eiweißkugeln“ in mancher Beziehung an Volutine zu erinnern.
[S. 101]
Nach Guillermond sind die Volutinkörner identisch mit den von Babes und ihm schon früher beschriebenen metachromatischen Körnern, sowie mit den von Bütschli entdeckten sog. roten Körnern. Sie färben sich meist sehr stark, stärker als die Kerne. Unter den Protozoen sind es die Flagellaten, bei denen sie am häufigsten gefunden wurden, so bei Euglenen, Trypanosomen, Chlamydomonaden etc., aber auch bei Rhizopoden, z. B. Amöben, kommen sie vor. Bei Haematococcus hat Reichenow nachgewiesen, daß sie bei Zucht in phosphorfreiem Medium verschwinden, was für die Auffassung von A. Maier spricht, daß es sich um phosphorhaltige Substanzen handelt, wie die Nukleïnsäure. Jedenfalls weisen alle Beobachtungen darauf hin, daß die Körner Reservesubstanzen darstellen. Und zwar scheinen sie vor allem der Kernernährung zu dienen und ihm bei der Teilung die zu seinem Chromatinwachstum nötigen phosphorreichen Eiweißstoffe zuzuführen.
Manche der Reservestoffgebilde sind zusammengesetzter Natur. So finden sich in den „Eiweißkugeln“ der Radiolarien Konkretionen und Eiweißkristalle. Die Oelkugeln derselben Tiere haben offenbar ebenfalls eine eiweißartige Grundlage.
Ich bin ferner geneigt, in dem Chromatin der Kerne und besonders in den färbbaren Bestandteilen der Chromidien zum Teil Reservesubstanzen zu erblicken. Dafür spricht das Verhalten bei der Teilung, bei Wachstum etc., auch das Vorhandensein eines glykogenartigen Kohlehydrats in manchen Chromidien. Im speziellen Teil wird ferner noch sehr häufig von Reservestoffen die Rede sein, deren Funktion wir wohl morphologisch feststellen können, deren chemische Eigenschaften aber sehr unvollkommen bekannt sind.
V. Die Ausscheidung (Exkretion) bei den Protozoen.
Da die Defäkation bei den Protozoen in größeren Intervallen erfolgt, so dürfen wir wohl annehmen, daß sie nicht ausreicht, um gleichzeitig mit geformten Nahrungsresten auch die Endprodukte des Stoffwechsels insgesamt aus dem Körper zu entfernen. Wir nehmen vielmehr an, daß ähnlich wie für die Atmung, so auch für die Exkretion die kontraktilen Vakuolen von besonderer Bedeutung sind. Mit dem ausgepumpten Wasser werden sicherlich mancherlei gelöste Stoffwechselprodukte den Körper der Protozoen verlassen. Frühere Angaben, daß gleichzeitig durch den Exkretionsporus feste Bestandteile, „Exkretkristalle“, ausgestoßen werden (Rhumbler), sind nicht bestätigt worden. (Höchstens erfolgt solche Ausstoßung bei der Encystierung?)
Außerdem kommt für alle Protozoen, insbesondere aber für diejenigen ohne kontraktile Vakuolen, Entfernung von Stoffwechselprodukten direkt durch die Körperoberfläche hindurch in Betracht. Daß umgekehrt auch Aufnahme von Wasser durch die Körpermasse hindurch bei mundlosen Formen stattfindet, geht mit Sicherheit aus der Tatsache hervor, daß z. B. zahlreiche der parasitischen Opalininen ein kompliziertes, gut funktionierendes Vakuolensystem besitzen. Während nämlich bei freilebenden Protozoen des Süßwassers kontraktile Vakuolen allgemein verbreitet sind, fehlen sie bei marinen Formen und bei Parasiten in der Regel. Da die Flüssigkeiten, in denen Formen ohne kontraktile Vakuole leben, durch einen hohen Gehalt [S. 102]an gelösten Stoffen, besonders Salzen, ausgezeichnet sind, so sind wir zur Annahme berechtigt, daß bei der Bildung von kontraktilen Vakuolen der osmotische Druck eine wichtige Rolle spielt. Man könnte sich vorstellen, daß im Plasma eine gegenüber der Umgebung hypertonische Lösung entsteht, welche zur Aufnahme von Wasser führt (Bildung der kontraktilen Vakuole); jedesmal, wenn die Wasseraufnahme einen gewissen Grad übersteigt, erfolgt entweder durch Ueberhandnahme des Spannungsdruckes im Protoplasma oder durch ein Gefälle in den Oberflächenspannungen zwischen den Vakuolentropfen und der umgebenden Flüssigkeit eine Ausstoßung des gebildeten Flüssigkeitstropfens (Entleerung der kontraktilen Vakuole). Der dadurch erfolgte Ausgleich des osmotischen Druckes wird aber alsbald durch Neubildung der betreffenden Substanz wiederum gestört, und es folgt die Entstehung einer neuen Vakuole. Wenn bei Meerwasserprotozoen und Parasiten ein solches Exkretionsorgan fehlt, so würde dies darauf beruhen, daß in ihrem Körper die periodische Bildung einer solchen gegenüber ihrer Umgebung sehr stark hypertonischen Lösung nicht stattfindet; daß vielmehr infolge der hohen Konzentration der umgebenden Flüssigkeit ein allmählicher Ausgleich durch die gesamte Oberfläche stattfindet. Damit stimmen die Versuche von Marg. Zülzer gut überein, welche nachgewiesen hat, daß Amoeba verrucosa bei Uebertragung aus Süßwasser in Meerwasser nicht nur ihre kontraktile Vakuole verliert, sondern auch eine erhöhte Konzentration (offenbar Wasserverlust) des gesamten Zellinhalts aufweist. Klebs hat gezeigt, daß bei Euglena durch verdünnte Lösung verschiedener Neutralsalze eine sehr ansehnliche Vergrößerung der Vakuole und damit Stillstand derselben herbeigeführt werden kann, was Massart auch bei Ciliaten beobachtete, jedoch erst bei einer bestimmten Konzentration der Lösung. Bei höherer Konzentration tritt aber allgemein eine Verkleinerung der Vakuolen ein; dieselben können sogar vollkommen verschwinden. Alle diese Beeinflussungen sind reversibel.
Mit den oben dargelegten Anschauungen über die Natur der kontraktilen Vakuolen stimmen weitere Ergebnisse experimenteller Beeinflussungen gut überein. Klebs hat festgestellt, daß bei Euglena durch mechanische Eingriffe, durch hohe Temperaturen sowie durch Strychnin zuerst die Bewegungen des Tieres und die Plasmaströmungen zum Stillstand gebracht werden, während die kontraktilen Vakuolen noch eine Zeitlang arbeiten; bei Wiederherstellung normaler Verhältnisse beginnen die Vakuolen zuerst ihre Tätigkeit wieder. Selbst nach Abtötung des Plasmas hält unregelmäßige Pulsation noch eine Zeitlang an. Aehnliches berichtet Rossbach von Ciliaten, bei denen durch elektrische Schläge sowie durch Alkaloide die Cilientätigkeit vor derjenigen der Vakuolen zum Stillstand gebracht wird. Ferner hat Hofer beobachtet, daß in kernlosen Stücken, die von Amöben abgeschnitten wurden, die kontraktilen Vakuolen noch eine Zeitlang fortschlugen.
Frequenz der kontraktilen Vakuolen. Die kontraktilen Vakuolen pulsieren vielfach in einem regelmäßigen Rhythmus, welcher allerdings von den äußeren Bedingungen abhängig ist. Bei einer gewissen optimalen Temperatur (30–35° C) erreicht die Pulsationsfrequenz ihren Höhepunkt, welcher bei weiterer Temperatursteigerung nicht mehr überschritten wird.
[S. 103]
Frequenzzahlen für die Pulsation der kontraktilen Vakuolen von Protozoen.
|
Art
|
Autor der
Beobachtung |
Intervall
zwischen je zwei auf- einander- folgenden Kon- traktionen |
Temperatur
°C |
|||||
|
Pyxidicula operculata
|
Doflein
|
100
|
Sek.
|
15
|
||||
|
Actinophrys sol
|
Weston
|
10–80
|
„
|
?
|
||||
|
Oicomonas termo
|
James-Clark
|
10
|
„
|
?
|
||||
|
Oicomonas termo
|
„
|
„
|
10–12
|
„
|
?
|
|||
|
Gonium pectorale
|
Cohn
|
26–60
|
„
|
?
|
||||
|
Euglena
|
deses
|
und
|
Ehrenbergii
|
Klebs
|
30
|
„
|
18–20
|
|
|
„
|
„
|
„
|
„
|
„
|
22
|
„
|
32 (Optimum)
|
|
|
„
|
„
|
„
|
„
|
„
|
30
|
„
|
42 (ca. 48–50 Maxim.)
|
|
|
Euplotes charon
|
Rossbach
|
31
|
„
|
15
|
||||
|
Coleps hirtus
|
Maupas
|
48–50
|
„
|
17
|
||||
|
Lagynus crassicollis
|
„
|
2
|
Min.
|
Zimmertemperatur
|
||||
|
Cryptochilum echini (Parasit!)
|
„
|
20
|
„
|
„
|
||||
|
Spirostomun teres
|
Stein
|
30–40
|
„
|
„
|
||||
Im allgemeinen erfolgt bei niedrigen Temperaturen (zwischen 4–15° C) eine raschere Frequenzsteigerung als bei höheren. Nach Rossbach ist z. B. das Intervall zwischen je zwei Vakuolenkontraktionen bei Stylonychia pustulata
|
bei
|
5° C
|
18
|
Sekunden
|
|
„
|
10° C
|
14
|
„
|
|
„
|
15° C
|
10–11
|
„
|
|
„
|
20° C
|
6–8
|
„
|
|
„
|
25° C
|
5–6
|
„
|
|
„
|
30° C
|
4
|
„
|
Nach Kanitz erfolgt die Steigerung der Pulsationsfrequenz nach der van’t Hoffschen Regel, welche besagt, daß die chemische Reaktionsgeschwindigkeit bei Temperatursteigerung um 10° (innerhalb gewisser Grenzen) verdoppelt oder verdreifacht wird. Es ist daraus zu schließen, daß bei der Tätigkeit der pulsierenden Vakuolen chemische Umsetzungen, welche dann ihrerseits die osmotischen Differenzen verursachen, eine wesentliche Rolle spielen.
Es scheint ferner, daß Zusatz von Stoffen, welche quellend auf das Plasma wirken, Vergrößerung der Vakuole und Verlangsamung der Pulsationsfrequenz herbeiführt; letzteres wird unter Verkleinerung der Vakuole auch von Stoffen hervorgerufen, welche Schrumpfung des Körpers bedingen.
Sauerstoffmangel führt wahrscheinlich stets eine Steigerung der Pulsationsfrequenz herbei, doch existieren über diesen Punkt einander widersprechende Angaben.
Nach Maupas stoßen Infusorien unter günstigen Verhältnissen in 2–46 Minuten ein Wasserquantum aus, welches dem eigenen Körpervolumen entspricht. Bei Protozoen ohne konstante Eigenform ist die Volumabnahme bei der Entleerung der Vakuole oft sogar direkt wahrnehmbar (vgl. Rhumblers Angabe für Amoeba proteus).
Bei manchen parasitischen Formen, bei denen keine kontraktilen Vakuolen bekannt sind, mögen dennoch solche vorhanden sein und mit der Zeit erst noch aufgefunden werden. So hat jüngst Metcalf bei den parasitischen Opalinen sehr deutliche „Exkretionsvakuolen“ [S. 104]beschrieben. Oder sollten diese nur durch Uebertragung in ein hypotonisches Medium erzeugt sein und so in diesen Beobachtungen ein Gegenstück zu den Experimenten von Zülzer vorliegen?
Eine Exkretion, sowie sonstiger Stoffaustausch durch die äußere Körperschicht hindurch findet ja wohl nicht nur bei den Formen ohne kontraktile Vakuole, sondern auch bei jenen mit solcher statt. Indem, wie überhaupt bei Niederschlagsmembranen, diejenigen Stoffe am raschesten diffundieren, welche in der Substanz der Hautschicht am leichtesten löslich sind, werden sich von manchen Substanzen Anhäufungen, eventuell Niederschläge an der Innenseite der Körperhülle bilden können. Als solche sind eventuell die von Prowazek bei Paramaecium beobachteten, mit Neutralrot färbbaren „Exkretperlen“ zu deuten (Fig. 118).
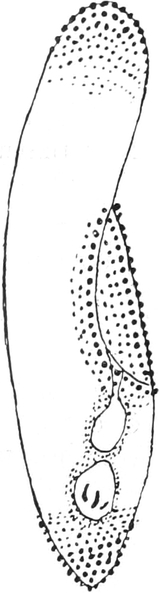
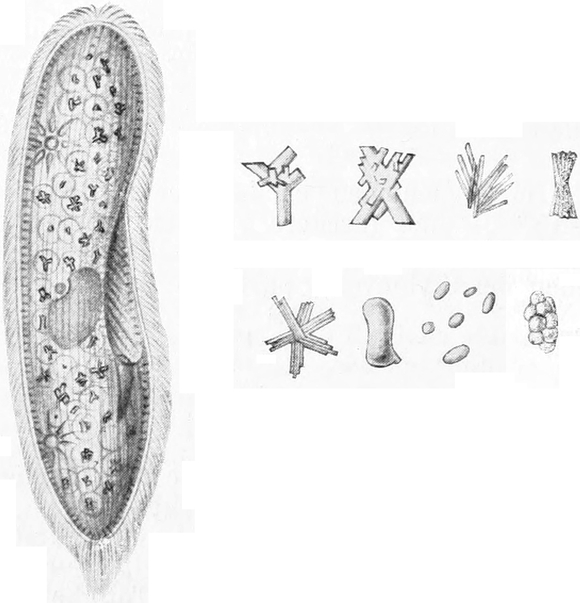
Bei vielen Protozoen aus fast allen Gruppen sind im Protoplasma Körner, Klumpen oder Kristalle beobachtet worden, welche von den Autoren allgemein für Exkretionsstoffe gehalten werden. Diese Exkretkörner, welche meist durch auffallendes Lichtbrechungsvermögen dunkel vom umgebenden Plasma abstechen, öfters auch farbig (gelb, grün, rotbraun, braun) sind, im polarisierten Licht bei gekreuzten Nicols hell aufleuchten, wurden früher allgemein auf Grund von Analogieschlüssen für harnsaure Salze gehalten. Von verschiedenen Autoren wurde auch positiv ausgefallene Murexidreaktion angegeben. Doch haben sich diese Annahmen und Angaben bisher nicht bestätigen lassen. Ebensowenig die Annahme von Bütschli, welcher wegen der Aehnlichkeit mit den in pflanzlichen Zellen vorkommenden Kristallen ein oxalsaures Salz vermutete.
Vielmehr ergaben die Untersuchungen von Schewiakoff, daß die in der Form vielfach wechselnden (schief abgestutzte Prismen, zu Garben und Drusen angeordnet, Nadeln, Biskuit- und Hantelformen, zylindrische, kugelige, ellipsoidische Körner etc.) Exkretkörner des [S. 105]Paramaecium caudatum aus phosphorsaurem Kalk, eventuell unter Beimischung einer organischen Substanz, bestehen. Zu einem ähnlichen Ergebnis gelangte neuerdings Schubotz für die Exkretkristalle von Amoeba proteus. Schaudinn hat bei Trichosphaerium Sieboldi dieselben Kristalle mit demselben Erfolg analysiert; er fand jedoch außerdem Reaktion auf Harnsäure, so daß man wohl annehmen darf, daß Exkretstoffe von verschiedener Art vorkommen.
Schewiakoff hat ferner beobachtet, daß Paramäcien, welche nur mit Bakterien ernährt wurden, in der Hauptsache kleine Exkretkörner enthalten, während bei Zusatz von faulendem Fleisch oder von Eiweißlösung massenhaft große Exkretkristalle auftraten. (Aehnlich konnte Schaudinn experimentell zeigen, daß in Foraminiferen nach Copepoden- und Infusoriennahrung reichlich Exkretkörner auftraten, welche bei Fütterung mit Diatomeen verschwanden.) Von diesen sind viele zu groß, um die Annahme einer Entleerung durch den After, für welche auch keine Beobachtungen vorliegen, zu gestatten.
Die Kristalle, welche nach ihrem Auftreten anfangs von einer Flüssigkeitsvakuole umgeben sind, findet man, wenn man die Tiere 1–2 Tage hungern läßt, frei im Ektoplasma. Bei weiterem Hungern sieht man sie sich allmählich am vorderen und hinteren Ende der Tiere, in der Nähe der kontraktilen Vakuolen ansammeln, dort langsam sich verkleinern und in Krümel zerfallen. Nach ca. 5–6 Tagen sind sämtliche Kristalle verschwunden, und die Hungertiere gehen zugrunde, wenn man sie nicht von neuem füttert.
Schewiakoff nimmt daher an, daß die Exkretkörner nicht im geformten Zustand bei der Exkretion oder Defäkation entleert werden, sondern daß sie vorher gelöst und dann ihre Substanz mit der Flüssigkeit der kontraktilen Vakuolen entleert werde. Er deutet diesen Vorgang als bedingt durch die Umwandlung des schwer löslichen neutralen Salzes des phosphorsauren Kalks in das leicht lösliche saure Salz.
So gut auch ein solcher Vorgang zu den oben gemachten Annahmen passen würde, wir müssen uns dennoch des hypothetischen Charakters dieser Annahmen bewußt bleiben und vor allem bedenken, daß es nicht gänzlich ausgeschlossen ist, daß die sog. Exkretkörner im Stoffwechsel der Protozoen eine ganz andere Rolle spielen. Zudem scheinen je nach der Nahrung die Exkretkörner aus verschiedenen Substanzen zu bestehen, worauf schon ihre außerordentlich wechselnde Form bei je der gleichen Species hinweist.
Hier wäre noch zu bemerken, daß in manchen Protozoen (marine Foraminiferen) die auftretenden Exkretkristalle und ähnliche wegen ihrer Färbung als Xanthosome bezeichnete Exkretkörper vielfach mit allen möglichen Fäkalmassen zu den sog. Sterkomen zusammengebacken werden. Es sind dies Gebilde, welche durch die Bewegungen des Protoplasmas oft sehr regelmäßige Formen (kugelig, ellipsoidisch etc.) annehmen, oft membranartige Hüllen besitzen, deren Substanz den Schalenkittsubstanzen ähnelt (eisenhaltig ist), und welche bei der Defäkation entleert werden, wobei also die Exkretkörper das Protoplasma in ungelöstem Zustand verlassen.
Die Sterkome fallen durch ihre große Widerstandsfähigkeit gegen Säuren und Alkalien, überhaupt gegen chemische Einwirkungen, auf und bilden infolgedessen an Stellen, wo zahlreiche Foraminiferen vorkommen, ganze Ablagerungen.
[S. 106]
VI. Sekrete und Pigmente.
Wir hatten schon vielfach Gelegenheit, von Sekreten bei den Protozoen zu sprechen: von den Sekretionsmembranen, den Schleim- und Gallertabsonderungen, der Gift-, Enzym-, Säure- und Verdauungssaftproduktion etc. Hier wäre wohl auch die Produktion von kohlensaurem Kalk und Kieselsäure zu erwähnen. Die Sekretion von Antifermenten und von spezifischen Giften wird später bei Besprechung des Parasitismus zu erörtern sein. So begnügen wir uns denn hier mit der Erwähnung all dieser Sekrete, welche jeweils an anderem Orte im Zusammenhang mit den speziellen Lebensfunktionen ihre Würdigung fanden oder finden werden.
Die Pigmente der Protozoen, meist feinkörnige Niederschläge von verschiedener Farbe, finden sich weit verbreitet in allen Gruppen. Auch für sie lassen sich kaum einheitliche Gesichtspunkte bisher aufstellen, welche eine eingehendere Behandlung an dieser Stelle rechtfertigen würden. Vielfach scheinen sie als Nebenprodukte oder Endprodukte von Stoffwechselvorgängen zu entstehen. Indem sie dann in den Hüllen oder Außenschichten der Protozoen abgelagert werden, tragen sie oft sehr zu deren charakteristischer Erscheinung bei. Sie werden daher im speziellen Teil des öfteren erwähnt werden.
Gewisse bräunliche Pigmente entstehen beim Zerfall von Chromatin im Zellleib und sind daher für manche Zustände der Protozoen äußerst charakteristisch. So gehen nach R. Hertwig die Pigmentmassen in degenerierenden Actinosphärien aus Kernsubstanzen hervor.
B. Der Kraftwechsel bei den Protozoen.
In dem nachfolgenden Abschnitt soll in Kürze die produktive Leistung des Protozoons besprochen werden, mit Ausnahme der Vorgänge bei der Fortpflanzung, welche ja in ein besonderes Kapitel verwiesen sind. Wir werden daher folgende Gesichtspunkte zu behandeln haben:
- 1) die Bewegung der Protozoen,
- 2) die Erzeugung von Licht und Wärme etc.,
- 3) die Reizerscheinungen.
Dagegen sind die Wachstumserscheinungen im Kapitel über Fortpflanzung, die Widerstandsfähigkeit gegen äußere Einflüsse im biologischen Abschnitt, die Gestaltungsursachen bei Gelegenheit der Entwicklungsgeschichte erörtert.
I. Die Bewegung der Protozoen.
Das Deskriptive über die Bewegung ist bei Erörterung der Morphologie früher (S. 29 ff.) mitgeteilt worden.
Die verschiedenen Bewegungsformen der Protozoen, welche in der Regel zu einem für die Erhaltung der betreffenden Individuen zweckmäßigen Resultat führen, scheinen jedem unbefangenen Beobachter zunächst spezifische Eigentümlichkeiten lebender Wesen zu sein. Wenn uns in der Protoplasmaströmung, in der amöboïden Bewegung, in der Bewegung durch Geißeln oder Wimpern die primitivsten Bewegungsformen lebender Organismen entgegentreten, so ist gerade die Beobachtung der Bewegungserscheinungen für uns der [S. 107]augenfälligste Anhaltspunkt dafür, daß wir es mit lebenden Wesen zu tun haben, so sehr deren Gestalten uns auch manchmal an Formen der anorganischen Welt erinnern mögen. So ist denn auch jetzt noch vielfach die Ansicht verbreitet, daß in diesen Bewegungserscheinungen etwas spezifisch Vitales zu erblicken sei. Die neueren Forschungen haben dieser Anschauung den Boden entzogen und uns zugleich die Möglichkeit gegeben, durch Nachahmung im Modell die Analyse der Bewegungserscheinungen zu fördern. Damit war auch die Möglichkeit gegeben, etwas tiefer in die Physiologie der Bewegung bei den Protozoen einzudringen. Im Nachfolgenden soll kurz skizziert werden, in welcher Weise man sich auf Grund der Forschungen von Berthold, Bütschli, Quincke, Verworn, Rhumbler und Jensen das Zustandekommen der protoplasmatischen Bewegungen vorzustellen hat. Indem wir uns an die vortrefflich geeignete Einteilung von Gurwitsch anschließen, unterscheiden wir:
- 1) apolare Bewegung des Protoplasmas,
- 2) polare Bewegung (Formwechsel bei der Muskelkontraktion).
Da wir über letztere speziell für die Protozoen nur morphologische Daten besitzen, so sei auf das früher (S. 44) Gesagte verwiesen; wir werden uns an dieser Stelle nur mit der apolaren Bewegung beschäftigen.
Anhangsweise wird noch auf die passive Bewegung hinzuweisen sein.
Apolare Bewegung.
Alle Erörterungen über die Bewegungserscheinungen im Protoplasma haben von der Tatsache des flüssigen Aggregatzustandes dieser Substanz auszugehen. Wir haben früher gesehen, daß je nachdem, ob der Protozoenkörper in seiner Hauptmasse flüssig ist, oder ob feste, formbestimmende Bestandteile vorhanden sind, die Bewegung verschieden verläuft. Doch muß es sich in jedem Fall grundsätzlich um die nämlichen Vorgänge handeln.
Gehen wir zunächst von der Bewegung einer Amöbe aus, indem wir sie als ein flüssiges Schaumgemisch betrachten, deren Körper in ein flüssigeres, an Granulationen und Vakuolen reiches Entoplasma und in ein festeres, hyalines Ektoplasma geteilt ist. Wenn sie aus der Ruhe zur Pseudopodienbildung übergeht, so sieht man bei den typischen Formen das Ektoplasma zuerst vorströmen, dann folgt meist, heftig nachströmend, das Entoplasma nach, und indem so die Masse des Körpers an einer oder mehreren Stellen vorströmt, an anderen dafür weggenommen wird, erfolgt die Lokomotion des Tieres.
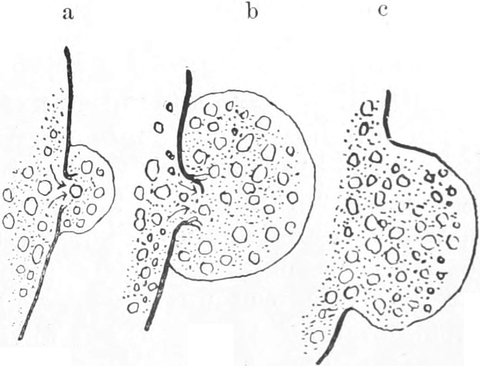
Einen interessanten Spezialfall stellen die Amöben mit sehr dichtem und festem Ektoplasma dar; bei ihnen kommt es z. B. vor, daß Entoplasma eruptiv das Ektoplasma durchbricht. Dann lagert es [S. 108]sich bruchsackartig vor das letztere; infolge der Berührung mit dem umgebenden Wasser verfestigt sich die äußerste Schicht des so gebildeten Pseudopodiums: es entsteht neues Ektoplasma aus Entoplasma. Hinter dem Pseudopodium läßt sich aber zunächst noch eine scharfe Grenze erkennen, das an einer schmalen Stelle durchbrochene alte Ektoplasma. Dasselbe schwindet in kurzer Zeit, indem es in das umgebende Entoplasma aufgeht (Fig. 120).
Dieser Spezialfall zeigt uns in klarster Weise einen der wichtigsten Vorgänge bei der Pseudopodienbewegung: den Ekto-entoplasmaprozeß. Bei allen Bewegungen der Amöben muß sich unablässig Entoplasma in Ektoplasma verwandeln und umgekehrt.
|
I.
Bewegungsleistungen von Protozoen[7]. |
||||||||
|
Tierart
|
In einer Sekunde zurückgelegte
Wegstrecke |
|||||||
|
Amoeba verrucosa
|
0,5
|
µ
|
(nach Rhumbler)
|
|||||
|
„ striata
|
1
|
µ
|
„ „
|
|||||
|
„ limax
|
1
|
µ
|
„ „
|
|||||
|
„ geminata
|
1,5–3
|
µ
|
„ „
|
|||||
|
(Gregarine)
Clepsidrina Munieri |

|
langsam
|
⅔
|
µ
|

|
(nach Schewiakoff)
|
||
|
mittel
|
1,5
|
µ
|
||||||
|
schnell
|
5,5
|
µ
|
||||||
|
(Myxosporidien)
Myxidium giganteum |
1,3
|
µ
|
(nach Doflein)
|
|||||
|
Ceratomyxa inaequalis
|
⅓
|
µ
|
„ „
|
|||||
|
Chloromyxum Leydigi
|
0,1
|
µ
|
„ „
|
|||||
|
II.
Frequenzbestimmungen für Geißeln und Wimpern[8]. |
||||||||
|
Tierart
|
Schläge in der Minute
|
|||||||
|
Monas sp.
|
|
große Geißel
|
78
|
|
(nach Prowazek, 1900)
|
|||
|
kleine „
|
94
|
|||||||
|
Polytoma uvella (bei 18° C)
|
29
|
„ „ „
|
||||||
|
Euglena viridis
|
67
|
„ „ „
|
||||||
|
Oikomonas vic. termo
|
14
|
„ „ „
|
||||||
|
Noctiluca miliaris (Bandgeißel)
|
5
|
(Vignal 1878; soweit zitiert
nach Pütter 1904). |
||||||
Bei allen Amöben mit dünnflüssigem Protoplasma und den Rhizopoden mit lobosen Pseudopodien ist die Bewegung eine fließende, während bei Formen mit zäher Oberflächenschicht außerdem rollende Bewegung vorkommt. Letztere, die rollende Bewegung, kommt dadurch zustande, daß Pseudopodien an der einen Seite des Tieres frei vorgestreckt werden, das Uebergewicht bekommen und niedersinken, so daß bei Wiederholung des Vorganges die Amöbe mit ihrer ganzen Substanz eine Rotation ausführt. Das gleiche Resultat wird auch dann erreicht, wenn die Amöbe (z. B. A. verrucosa) mit ihrem vorderen Ende an der Unterlage adhäriert, wobei die nach vorn an der oberen [S. 109]Seite nachströmende Plasmamasse immer am vorderen Ende sich überschlägt.
Die fließende Bewegung erfolgt in der vorher geschilderten Form, wobei meist ein klebriges Sekret das Tier an der Unterlage haften macht, wodurch die Bewegung bedeutend erleichtert wird. Am übersichtlichsten ist der Bewegungsvorgang bei Formen, welche einfache breite Lobopodien vorstrecken; bei ihnen kann man wahrnehmen, daß die Strömungen beim Vorwärtsfließen in der Gestalt einer Fontaine erfolgen, indem das Plasma in der Mitte des Pseudopodiums vorwärtsströmt, während an den Rändern Rückströme erfolgen. Der zentrale Vorwärtsstrom ist infolge der Körnigkeit des Entoplasmas leicht zu bemerken, während die rückläufigen Randströme leichter der Beobachtung entgehen. Manchmal lassen sie sich aber mit großer Deutlichkeit erkennen, nämlich dann, wenn Fremdkörper an der Außenfläche des Ektoplasmas kleben bleiben.
Das vorn an die Oberfläche tretende Entoplasma wandelt sich dort in Ektoplasma um, und nachdem es zurückgeflossen ist, tritt es am Grund des Pseudopodiums oder am Hinterende des ganzen Tieres wieder in das Innere des Körpers, wo es sich wieder in Entoplasma umwandelt.
Bei der rollenden Bewegung fehlen die rückläufigen Randströme; hier findet Umwandlung von Ekto- in Entoplasma wohl in der Nähe des Vorderendes an der Unterseite statt, da, wo die Tiere auch an der Unterlage haften.
Bei den dünneren lobosen Pseudopodien und besonders bei manchen Filopodien spielt jedenfalls die Tatsache eine wichtige Rolle, daß das relativ feste oder sogar kolloidal starre (im Gelzustand befindliche) Ektoplasma sich wie ein deformierbarer Sack verhält, welcher unter dem Druck des einfließenden Entoplasmas in einen Spannungszustand versetzt wird.
Bei solchen Pseudopodien findet sich offenbar auch kein fortwährendes zentrales Zufließen kombiniert mit rückläufigen Randströmen, sondern das gesamte Pseudopodium wächst der Hauptsache nach, wie Jennings hervorhob, von der Basis aus nach, indem ein Teil der Oberflächenschicht des Körpers auf das Pseudopodium verlagert und so dessen Oberfläche gebildet wird.
Während man früher nach kontraktilen Elementen oder anderen geformten Gebilden suchte, um diese eigenartigen Bewegungserscheinungen zu erklären, haben die experimentellen Untersuchungen der neueren Zeit eine Möglichkeit der Erklärung gezeigt, welche uns die Annahme einer komplizierten Architektur des Plasmas erspart; denn eine solche Annahme würde ja bei den beständigen Durchmischungen in den Bestandteilen des Plasmas, welche wir direkt beobachten können, auf große Schwierigkeiten stoßen.
Wie alle Flüssigkeitsmassen, so stehen auch die flüssigen Körper der Amöben unter dem Einfluß der Oberflächenspannung, welche bestrebt ist, den ganzen Körper zu einer Kugel abzurunden. Infolge der unablässig wechselnden Verhältnisse der Umgebung und der ebenso sehr der Veränderung unterworfenen chemischen Prozesse im Innern des Amöbenkörpers ist die Oberflächenspannung nicht konstant, sondern einem fortgesetzten Wechsel unterworfen. „Wo auf der lebenden Oberfläche des Amöbenkörpers auf Grund äußerer oder innerer chemischer oder physikalischer Einflüsse die Oberflächenspannung verringert [S. 110]wird, dahin fließt der Zellinhalt, sich zum sog. Pseudopodium vorwölbend, unter einem ganz bestimmten Strömungsbild vor, weil er vor dem Oberflächendruck der übrigen in ihrer Spannung nicht erniedrigten Oberflächenstellen nach der Seite des niederen Druckes notwendig abfließen muß, bis ihm der sog. Krümmungsdruck der vorgeflossenen Pseudopodienmasse das Gleichgewicht zu halten vermag“ (Rhumbler).
Die Oberflächenspannung ist also nach dieser Theorie, welche hauptsächlich an die Namen von Berthold, Bütschli und Rhumbler gebunden ist, die Energiequelle für die Amöbenbewegung. Die Entstehung der jeweiligen Spannungsdifferenzen wird von den verschiedenen Forschern in verschiedener Weise erklärt. Mir scheint die Ansicht von Quincke und Bütschli die größte Wahrscheinlichkeit zu besitzen, nämlich die Ansicht, daß „lokale Ausbreitungszentren von Substanzen mit geringerer Oberflächenspannung den mechanischen Ausgangspunkt zur Pseudopodienbewegung“ bieten. Berthold nahm differente Adhäsionsverhältnisse zum Untergrund an, Verworn sieht in lokalen Oxydationen der Oberflächenmoleküle den Grund der Spannungserniedrigung. Neuerdings wurde auch die Art der elektrischen Ladung der Substanzteilchen des Protozoenkörpers zum Versuch einer physikalisch-chemischen Erklärung herangezogen.
Es war Bütschli, welcher zuerst an Modellen zeigte, daß die theoretischen Voraussetzungen zutreffend sind: von ihm hergestellte Flüssigkeitsgemische (Oelseifenschäume, mit Wasser ausgewaschen, in Wasser beobachtet) krochen bei seinen Experimenten bei lokalen temporären Spannungsherabsetzungen an ihrer Oberfläche 6 Tage lang selbsttätig herum, wobei sie wie Amöben aussahen, wie Amöben sich bewegten und dieselben Strömungsbilder in ihren „Pseudopodien“ zeigten, wie solche. (Vgl. Fig. 121.)
An solchen „künstlichen Amöben“ lassen sich die Bewegungen durch verschiedenartige Mittel beeinflussen, welche alle das gemeinsam haben, daß sie die Oberflächenspannung verändern: chemische Veränderungen, Temperatur, Elektrizität, Berührung mit anderen Körpern. Die Bewegungsintensität nimmt z. B. bei Erwärmung auf 40–50° C sehr zu.
Da nun bei den amöboïden Organismen mit leichtflüssigem Ektoplasma die gleichen Einwirkungen entsprechende Folgen erzeugen, wie bei den Schaumtropfen, so erblickt man in diesen Tatsachen eine weitere Stütze der Theorie, daß infolge der flüssigen Beschaffenheit solcher Tierkörper die Oberflächenspannung ihre Form und Formänderung und damit ihre Bewegung beherrscht.
Bei den Amöben mit festem Ektoplasma, also mit einer gelatinierten Oberflächenschicht (einer Pellicula), wird nach Rhumbler durch ein verwandtes Prinzip die zur Bewegung nötige Energie geliefert: indem an einer bestimmten Stelle des Körpers eine Verwandlung von Ektoplasma in Entoplasma (eventuell unter Uebergang aus dem Gel- in den Solzustand) stattfindet; und umgekehrt wird der Gelatinierungsdruck wirksam, welcher in solchen Fällen die Oberflächenspannung ersetzt.
Beide Arten der Wirkung können bei derselben Amöbenart kombiniert sein, auch in den verschiedenen Zuständen des Tieres sich ablösen. Ebenso wird dies der Fall sein bei der Bildung von Filopodien, wo besonders die oft vorkommende Einknickung und spiralige Einziehung auf eine Verfestigung der äußersten Schicht hinweist.
[S. 111]
Bei den Rhizopodien haben wir, wie wir schon früher (S. 33) auseinandersetzten, insofern den umgekehrten Prozeß vor uns, als bei ihnen die inneren Teile des Pseudopodiums starr resp. sehr dickflüssig sein müssen, während die äußerste Schicht dünnflüssig ist. Hier muß also in vielen Fällen Gelatinierung der Achse (Umwandlung in Skleroplasma) bei der Aussendung des Pseudopodiums erfolgen. Wir sehen auch tatsächlich bei Bildung eines Axopodiums den Achsenfaden aufschießen wie einen Kristall; der Uebergang in den Gelatinierungszustand ist ein sehr rascher und erfolgt offenbar unter dem Einfluß von chemischen Vorgängen im Plasma, wie wir denn auch die Strömungen und sonstigen Bewegungen im Innern von Plasmakörpern auf chemische Ausgleichserscheinungen zurückführen müssen.
Sowohl bei Filopodien, als auch bei Axopodien kann man gelegentlich schwingende Bewegung beobachten: in dem einen Fall offenbar veranlaßt durch Schwankungen im Strömungsdruck des flüssigen Inhalts, im anderen durch Wirkung der flüssigen Außenschicht auf den starren, eventuell elastischen Achsenfaden.
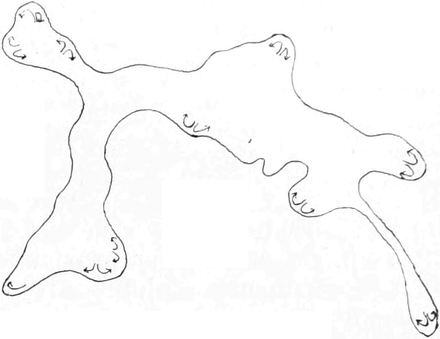
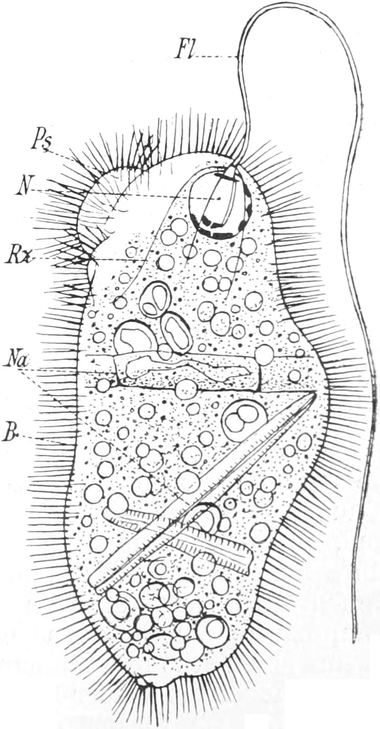
Das leitet uns über zur Betrachtung der spezifischen schwingenden Organellen, der Geißeln und Cilien. Durch eine ganze Reihe von Beobachtungen von Bütschli, Fischer, Prowazek, Fabre, Domergue, Kölsch u. a. ist festgestellt, daß einzelne abgerissene Cilien und Geißeln noch zu schwingen vermögen. Daher müssen wir die Ursache der Bewegungsfähigkeit in ihnen selbst suchen. Bütschli, Koltzoff, Pütter, Gurwitsch, Prowazek, Schuberg u. a. nehmen nun an, daß bei Axopodien, bei Geißeln von Flagellaten, bei Spermatozoen und bei den Cilien von Infusorien übereinstimmende Grundlagen für die Bewegungserscheinungen vorliegen. Das Gemeinsame bei all diesen Typen von Organellen wäre die Kombination [S. 112]einer elastischen und formbestimmenden Stütze mit einer zweiten Substanz, welche, leichter flüssig, zur „Kontraktion“ fähig ist. Demnach wäre anzunehmen, daß die gestreckte Stellung der Geißeln und Cilien (resp. ihre gekrümmte oder spiralige Ruhestellung) durch elastische Fäden gewährleistet werde, welche als feste Achsen das Innere des Organells stützen, während flüssiges Protoplasma die Hülle bildet. Wir sahen früher, daß die morphologischen Tatsachen bei den Geißeln in vielen Fällen dieser Annahme günstig sind. Auch bei den Cilien hat Schuberg Verhältnisse nachgewiesen, welche sich gut mit dieser Vorstellung in Einklang bringen lassen. Er hat festgestellt, daß z. B. bei Paramaecium, Frontonia, Stentor, Cyclidium die Geißeln insofern eine Differenzierung erkennen lassen, als der distale Teil von dem proximalen als „Endstück“ scharf abgesetzt ist. Er faßt nun dieses Endstück als den frei hervorragenden Teil eines Achsenstabes auf, welcher in dem proximalen Teil der Cilie noch vom weniger festen Plasmamantel umhüllt wäre. Die Krümmung des Achsenstabes und damit des ganzen Organells wird nach der Annahme von Gurwitsch durch spiral gerichtete Strömungen des plasmatischen Mantels bewirkt, gegen welche die Plastizität des Achsenstabes als Antagonist in Tätigkeit tritt (vgl. hierzu Fig. 36 und 38, S. 34 und Fig. 42, S. 37).
Wie wir oben sahen, haben wir Anhaltspunkte dafür, daß z. B. bei Trypanosomen die Geißel- (und die entsprechende Körper-)bewegung durch einen solchen elastischen Stab im Zusammenwirken mit kontraktilen Fibrillen erzeugt wird. Doch ist jedenfalls diese spezialisierte Ausbildungsform nicht die Regel. — Eine weitere Modifikation ist wohl bei Formen gegeben, bei denen die äußere Schicht der schwingenden Organellen zäher ist, als die innere. Dagegen werden wir im speziellen Teil sehen, daß die Spirochäten zum Teil Organismen zu sein scheinen, welche mit ihrem ganzen Körper nur einer einzigen Geißel mit Achsenstab und Plasmahülle entsprechen; indem ähnlich wie bei den Cilien der Infusorien der Achsenstab hervorragt, bildet er die sogenannte Geißel der Spirochäten, deren inkonstante Lage dadurch erklärt werden könnte, daß die Plasmahülle bald hinten, bald vorn ein Stück des Achsenstabes frei hervorragen läßt.
So scheint mir am wahrscheinlichsten, daß bei der Bewegung der flimmernden Organellen verschiedene einander nahestehende Prinzipien die Ursache der Bewegung darstellen, ähnlich wie wir dies für die amöboïde Beweglichkeit feststellten. Gemeinsam ist wohl all diesen Bewegungsformen, daß die bewegende Kraft einem festen, resp. elastischen Gebilde entgegenarbeitet, welches in eine Ruhelage zurückzukehren strebt, wenn es aus derselben gebracht worden ist. Wir haben früher schon gesehen, daß solche Stützbildungen Widerlager im Körper ihres Besitzers haben müssen, und daß solche in um so komplizierterer Form vorhanden sind, je weicher die gesamte Körpersubstanz ist, daß sie um so eher entbehrt werden können, je fester die Körperhüllen oder andere Körperbestandteile sind, an denen dann die Organellen ihre Stütze finden. Als Beispiel führe ich hier noch Mastigella vitrea nach Goldschmidt an, deren Geißel nicht nur im Kern verankert ist, sondern auch noch durch komplizierte Wurzelfasern dem ganzen System in dem flüssigen Protoplasma einen erhöhten Reibungswiderstand verschafft (Fig. 122). Trotzdem wandert bei dieser Form der Kern mit dem Geißelapparat relativ unbehindert im Plasma des amöboïden Tieres umher.
[S. 113]
Ich benütze die Gelegenheit, um zu erwähnen, daß man vielfach aus der Befestigung von Geißeln und Cilien an Kernen oder Basalkörpern, Blepharoplasten etc. den Schluß gezogen hat, daß diese Gebilde eine Bedeutung als Energiereservoire für die Bewegung haben. Es ist durchaus zuzugeben, daß diese Möglichkeit vorliegt, daß sie auch dann nicht ausgeschlossen ist, wenn wir an der Deutung, daß die Verbindung beider Zellbestandteile zunächst die Bedeutung eines Stützapparates besitzt, festhalten.
Wir könnten annehmen, daß Stoffe, welche die Oberflächenspannung ändern, oder Enzyme, welche den Gelatinierungsprozeß beeinflussen, oder sonstwie wirksame Stoffe von ihnen für den Bewegungsapparat geliefert werden. Doch liegen keine Beobachtungen vor, welche etwa bewiesen, daß bei intensiver Bewegung ein Stoffverbrauch in diesen Gebilden eintritt.
Passive Bewegung bei Protozoen.
Bei einigen Formen, vor allem solchen mit schwebender Lebensweise, läßt sich ein periodisches Auf- und Absteigen nachweisen. Bei Arcella und Difflugien, auch bei Radiolarien ist Aufsteigen durch Ausbildung von Gasblasen im Plasma beobachtet worden.
Bei Radiolarien werden durch die Aenderung in der Zusammensetzung der Vakuolenflüssigkeit hydrostatische Bewegungen vermittelt. Das Protoplasma dieser pelagischen Protozoen ist schwerer als das Meerwasser; sie werden dadurch schwebfähig erhalten, daß die Vakuolenflüssigkeit leichter als dasselbe ist. Wahrscheinlich bedingt nach Brandt die im lebenden Organismus beständig bei der Atmung gebildete Kohlensäure, daß das Molekulargewicht der in den Schwimmvakuolen enthaltenen Salzlösung verringert wird, so daß der ganze Körper des Tieres spezifisch leichter wird. Schwankungen in dem Verhältnis von Plasmagewicht zu dem spezifischen Gewicht der Vakuolenflüssigkeit bedingen je nachdem das Auf- oder Absteigen der Radiolarien.
II. Ueber Produktion von Licht, Wärme und Elektrizität bei den Protozoen.
1. Licht.
Die im Organismenreich weit verbreitete Fähigkeit des Leuchtens, welche bei Wassertieren nur bei Meeresbewohnern beobachtet worden ist, findet sich auch bei zahlreichen marinen Protozoen. Soviel mir bekannt ist, handelt es sich dabei ausschließlich um pelagische Formen, vor allem um Flagellaten: Dinoflagellaten und Cystoflagellaten; auch für Radiolarien finden sich ältere Angaben, doch sind neuere Untersuchungen über diesen Punkt nicht vorhanden. Besonders für Thalassicolla wird Leuchtvermögen beschrieben.
Das Leuchten ist bei Noctiluca miliaris und bei den Peridineen an umschriebene Regionen gebunden, welche meist in größerer Menge im Plasma verteilt sind. In allen genauer untersuchten Fällen finden sich im Plasma der leuchtenden Protozoen Oele oder Fette, so bei Noctiluca, bei Pyrodinium bahamense nach Plate. Diese Oeltropfen sind die „Photogene“.
Man nimmt wohl mit Recht an, daß deren Oxydation in Beziehung zum Leuchtvorgang zu bringen ist — in Uebereinstimmung [S. 114]mit den Untersuchungen von Radziszewski, welcher nachgewiesen hat, daß im Reagenzglas eine ganze Reihe von organischen Verbindungen (vor allem Fette, ätherische Oele, Kohlenwasserstoffe, Alkohole), wenn sie in alkalischer Lösung sich langsam mit aktivem Sauerstoff verbinden, mehr oder weniger lebhaft phosphoreszieren.
In den meisten genauer beobachteten Fällen erfolgt das Leuchten nur auf Reize hin, welche das Tier treffen: Berührung, Schütteln, Temperaturerhöhung, Aenderung der osmotischen Beziehungen zur Umgebung, chemische Reize, vor allem auch Zusatz von Alkalien. Da auch das Vorhandensein von Meerwasser (nach der Verbreitung der Leuchttiere zu schließen) eine der Vorbedingungen für das Leuchten darstellt, so ist es wahrscheinlich, daß in den meisten Fällen das Leuchten gebunden ist an einen Stoff, welcher auf Reiz aus dem Körper des Protozoons ausgestoßen wird. Dafür spricht auch die Beobachtung in freier Natur: jede Aenderung im Zustand des Meerwassers, welches die Leuchttiere enthält, Wellengang, Ruderbewegung, Regen etc., steigert plötzlich das prachtvolle Schauspiel, welches durch das Aufleuchten zahlloser, dem bloßen Auge verborgener Organismen erzeugt wird.
2. Wärme und Elektrizität.
Ueber die Produktion von Wärme und Elektrizität bei den Protozoen wissen wir nichts. Produktion von Wärme ist ja theoretisch anzunehmen, aber es existieren keine genauen Messungen, welche naturgemäß sehr schwierig sind.
III. Die Reizerscheinungen.
Wie alle Organismen, so sind auch die Protozoen an ein gewisses Mittel der Lebensbedingungen angepaßt, welches nicht immer für die ganze Art konstant zu sein braucht, sondern oft schwankt, je nach der „Rasse“, der „Kultur“ oder dem Individuum, welches man vor sich hat. Man kann sagen, jedes organische Individuum befindet sich in jedem Moment seines Lebens entweder in einem Gleichgewichtszustand zu der Gesamtheit der Lebensbedingungen oder strebt einem solchen zu.
Jede Veränderung der auf den Organismus einwirkenden Faktoren führt nun zu einer Aenderung der Vorgänge im Organismus. Die Aenderung der einwirkenden Faktoren bezeichnen wir als Reiz, indem wir die Aenderung des Ablaufs der im Organismus im Gang befindlichen Vorgänge als Reizerscheinung beschreiben.
Naturgemäß sind unserer Beobachtung nur relativ intensive Aenderungen der Lebensbedingungen, also relativ grobe Reize, und relativ schnelle und ausgiebige Reaktionen, also sinnfällige Reizerscheinungen zugänglich.
In dem dargelegten Sinne sind ja alle Erscheinungen, welche wir in den vorhergehenden Kapiteln beim Stoff- und Kraftwechsel der Protozoen kennen lernten und alle später bei Gelegenheit der Fortpflanzungvorgänge zu erörternden Vorgänge in und an den Protozoenkörpern [S. 115]Reizerscheinungen. Denn in dem beständigen Wechsel von Substanz, Form, Energiemenge beruht ja das Charakteristische der lebenden Wesen.
Somit ist es klar, daß in nachfolgendem im allgemeinen nur von intensiveren Reizen und ihren Wirkungen die Rede sein wird. Die Worte „Reiz“ und „Reizerscheinung“ sind für uns beschreibende Formeln, durch welche wir vorläufig alle jene Reaktionen zusammenfassen, welche uns an die Reizerscheinungen bei den höheren Tieren erinnern. Wir bleiben uns aber dessen bewußt, daß wir möglicherweise heterogene Erscheinungen zusammenfassen.
Die Reizerscheinungen bei den Protozoen, welche vor allem von Pfeffer, Loeb, Verworn, Jennings und vielen anderen studiert worden sind, haben eine sehr große Literatur hervorgerufen. Im nachfolgenden Abschnitt wird nur in aller Kürze von den wichtigsten Erscheinungen berichtet werden; die wichtigen Theorien der Reizerscheinungen und vor allem der Tropismen können hier nicht erörtert werden. Für deren Studium weise ich auf die Lehrbücher und zusammenfassenden Schriften der oben genannten Autoren hin.
Die Reize gehen ausschließlich von chemischen, mechanischen, thermischen, photischen und elektrischen Veränderungen im Lebensraum des Individuums aus. Diese Reizquellen geben uns die übersichtliche Einteilung des zu behandelnden Stoffes in die Hand.
Wir werden in nachfolgendem ausschließlich von den Reizerscheinungen handeln, welche durch das Auftreten von Bewegungen erkennbar werden. Die durch Reiz hervorgerufenen Aenderungen in den chemischen Vorgängen im Protozoenkörper sind zu wenig erforscht — viele der zu schildernden Bewegungserscheinungen sind ja wahrscheinlich auf Beeinflussung des Chemismus im Protozoenkörper zurückzuführen. Die sog. „formativen Reize“ werden, soweit schon Forschungen über sie vorliegen, im Kapitel über Fortpflanzung und Entwicklungsgeschichte erwähnt werden.
Von großer Bedeutung für die Beurteilung von Experimenten über die Reizbarkeit der Protozoen sind die Beobachtungen Steinachs, aus denen hervorgeht, daß einzelne schwächere Reize für sich unwirksam sein können, aber dennoch durch Summationswirkung einen Effekt zur Folge haben, der sich z. B. in einer tetanischen Kontraktion äußert.
1. Reizleitung.
Es erhebt sich zunächst die Frage, ob wir bei Protozoen keinerlei Reizerscheinungen kennen, welche den bei höheren Tieren untersuchten an die Seite zu stellen sind, bei denen das Charakteristische des Vorganges darin besteht, daß durch eine relativ geringe Aenderung in der Umgebung ein fertiger Mechanismus ausgelöst wird, so daß ein plötzlicher relativ bedeutender Effekt an dem Organismus erfolgt.
Während im allgemeinen bei Plasmodromen solche Vorgänge nicht bekannt sind, scheinen die komplizierter gebauten Ciliophoren die nötigen morphologischen Grundlagen zu solchen Phänomenen zu bieten. Reizleitung ist ja eine allgemeine Eigenschaft des Protoplasmas. Trifft ein Reiz die Oberfläche des Pseudopodiums irgend eines Plasmodromen, so sieht man in einer Kräuselung der Oberfläche, in Tröpfchenbildung etc. die Folgen dieses Reizes, welche sich je nach der Stärke des Reizes mehr oder weniger weit an dem [S. 116]Pseudopodium ausbreiten. Stets ist aber diese Form der Reizleitung eine sehr langsame und wenig weitreichende.
Bei den Infusorien dagegen kennen wir Fälle, in denen eine sehr rasche Weiterleitung eines Reizes zu einer plötzlichen komplizierten Bewegung führt, bei welcher verschiedene Bestandteile des Körpers zusammenwirken müssen; man denke z. B. an das Zusammenzucken von Stentor und Spirostomum, an die Reizbewegungen einer Carchesiumkolonie.
Bei manchen Infusorien beobachten wir starre cilienartige Gebilde, welche nicht schlagen; dieselben sind gegen Berührung außerordentlich empfindlich: d. h. ein Reiz, den sie erfahren, löst eine heftige Bewegung des ganzen Tieres aus. Man bezeichnet sie daher als Tasthaare oder Tastborsten. Solche finden sich z. B. auf der Rückenseite der hypotrichen Infusorien. Es scheint, daß vielfach jede Cilie, wenn sie stillsteht, die Eigenschaft erlangt, welche sie zu einer plötzlichen Entladung und Weiterleitung ihrer Bewegungspotenzen befähigt. Das hat z. B. Johnson bei Stentor beobachtet. Auch kennen wir zahlreiche Infusorien (z. B. Pleuronema chrysalis, Fig. 124), welche normalerweise längere Zeit im Wasser mit starren Cilien ruhig liegen, auf einen Reiz hin jedoch plötzlich mit einem Satz dahinschnellen. (Vielleicht sind, nebenbei gesagt, diese Fälle geeigneter, uns über den Mechanismus der Cilienbewegung aufzuklären, als die kontinuierlich schlagenden Cilien.)
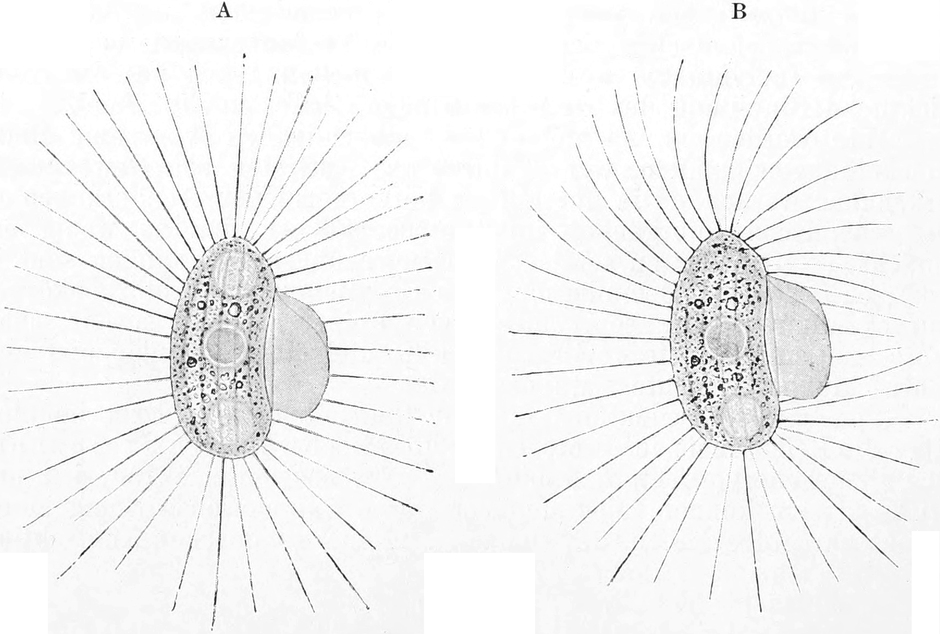
Diese Fälle von rascher Reizleitung und die Beobachtungen an vielen Infusorien, welche auf Reize stets durch gewisse automatische Bewegungen reagieren, veranlassen uns, nach Apparaten uns umzusehen, welche etwa geeignet wären, die Cilien eines Infusors zu einer koordinierten Bewegung untereinander in Verbindung zu setzen.
[S. 117]
Als solche „reizleitenden Strukturen“ betrachtet Neresheimer eigenartige fibrillenartige Bildungen, welche er zwischen den Myophanen von Stentor nachwies und welche er als Neurophane bezeichnet (Fig. 125). Gerade bei den von ihm untersuchten Formen (Stentor coeruleus und Spirostomum ambiguum) konnte er auch eine auffallende Empfindlichkeit gegen typische „Nervengifte“ nachweisen (Morphin, Strychnin, Coffeïn etc.). Auch Schuberg hat bei Paramaecium caudatum und Frontonia leucas eigenartige Strukturen beobachtet, welche die Basalkörper der Cilien verbinden, und von denen er auch anzunehmen geneigt ist, daß sie die Koordination der Wimperbewegung vermitteln.
Jennings hat gezeigt, daß bei thermischen, osmotischen, chemischen Reizen Ciliaten den Reiz wahrscheinlich zuerst und am stärksten in dem nackten Plasma der Mundstelle perzipieren. Ist dies richtig, so muß die durch den Reiz ausgelöste Bewegung, welche sehr plötzlich viele Cilien des Körpers beansprucht, eine Weiterleitung des Reizes voraussetzen. Scheinbar ist das ganze Plasma des Vorderendes stärker reizbar als der übrige Körper und daher auch imstande, schwächere Reizintensitäten wahrzunehmen.
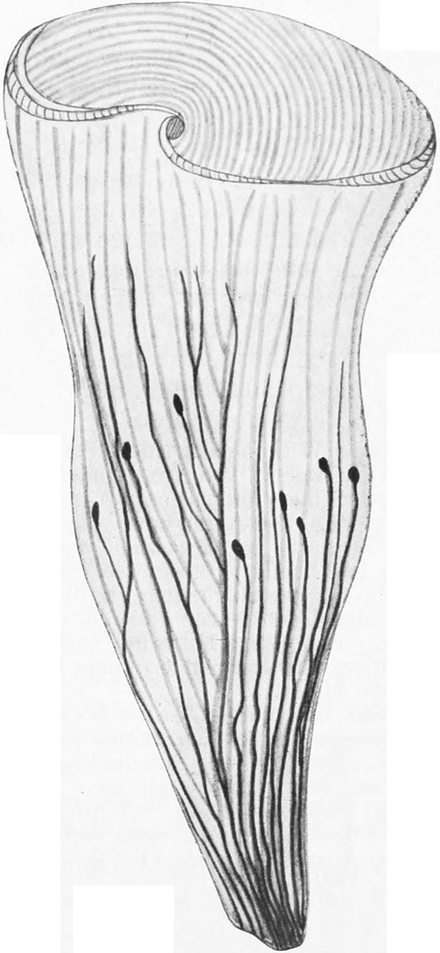
2. Reize und Reizfolgen.
Zunächst soll in diesem Kapitel ein knapper Ueberblick über das empirische Material, welches uns die Forschungen des letzten Jahrzehnts kennen gelehrt haben, gegeben werden; in einem weiteren Abschnitt über „Reizempfindlichkeit“ soll dann eine Zusammenfassung der Resultate folgen.
a) Chemische Reize.
Chemische Veränderungen im Medium, in welchem ein Protozoon lebt, äußern ihren Einfluß, indem die Bewegungen des Tierkörpers eine Aenderung erfahren. Pseudopodien ändern ihre Form, ihre Bewegungsrichtung und Bewegungsintensität, Cilien und Geißeln ändern den Charakter ihrer Bewegungsform, ändern die Intensität ihres Schlages. Verschiedene Substanzen wirken verschieden auf die einzelnen Protozoenarten ein, die gleiche Substanz wirkt verschieden je nach dem Konzentrationsgrad der Lösung.
[S. 118]
Bei Protozoen mit Pseudopodien äußert der chemische Reiz seine Wirkung auf die Oberflächenentfaltung. Sauerstoff z. B. führt eine Oberflächenvergrößerung der Pseudopodien herbei und damit deren „Expansion“, also eine erhöhte Beweglichkeit des Tieres (vgl. das S. 99 beim Kapitel „Atmung“ Erwähnte).
Viele Stoffe (Salze, Alkalien, Säuren, z. B. Kohlensäure) führen dagegen eine Oberflächenverkleinerung der Pseudopodien, Einstellung der Bewegung, Einziehung der Pseudopodien und Abkugelung der Tiere herbei.
Auf Cilien- und Geißelbewegung haben viele Säuren, Alkalien, Salze, Alkaloïde eine außerordentlich beschleunigende Wirkung, so daß die betroffenen Protozoen mit sehr gesteigerter Schnelligkeit dahinschwimmen. Formen mit Myonemen werden durch die nämlichen Reize zu lang anhaltenden Kontraktionen veranlaßt.
Dagegen werden durch Narkotika (z. B. Alkohol, Aether, Chloroform, Alkaloïde) bei kurzer Einwirkung zwar vielfach Erregungserscheinungen ausgelöst, bei etwas längerer Einwirkung aber deutliche Lähmungserscheinungen herbeigeführt. Das gilt wie für Plasmodromen so auch für Ciliophoren.
Diese Wirkung der Narkotika ist für diejenigen eine erfreuliche Stärkung ihrer Ansichten, welche von ganz anderen Ausgangspunkten aus die Theorie entwickelt haben, daß die Protoplasmabewegungen bedingt sind durch anomogene Oberflächenspannungen. Die Auffassung vom Bau des Protoplasmas, welche die Grundlage für diese Theorie ist, setzt nämlich voraus, daß die äußerste Schicht des Protoplasmas jeweils aus lipoïden Substanzen gebildet ist (vgl. auch S. 11), welche durch physikalische Gesetzmäßigkeiten gezwungen sind, sich (wie alle Arten von „verunreinigenden“ Substanzen) an der Oberfläche der Emulsion anzusammeln. Protoplasma, welches stets Fette und Oele enthält, muß also stets ein Oberflächenhäutchen aus fettiger Substanz bilden; man nimmt gegenwärtig an, daß lecithinartige Stoffe dieselben bilden.
Nun haben aber Hans Meyer und besonders Overton gezeigt, daß alle narkotisierend wirkenden Stoffe in Fetten und Oelen leichter löslich sind als in Wasser. Ihre Wirkung auf die Plasmabewegung ist dadurch uns viel verständlicher geworden, wenn wir es mit dem soeben Dargelegten in Zusammenhang bringen; denn die Erfahrung zeigt, daß Aufnahme, eventuell chemische Bindung von Stoffen die Oberflächenspannung stark beeinflußt.
Die Wirkung chemischer Reize auf die Bewegung der Protozoen äußert sich nun in besonders auffallender Weise in der Beeinflussung ihrer Verteilung im Medium. Gewisse Stoffe haben die Wirkung, alle Individuen der betreffenden Protozoenart zur Fortbewegung aus dem Wirkungsbereich ihrer Lösung zu veranlassen, andere üben den umgekehrten Effekt aus, indem Protozoen durch sie angelockt werden.
Bei der Untersuchung der hierher gehörigen Tatsachen ging man von biologischen Beobachtungen aus, welche zeigten, daß Protozoen z. B. durch Nahrungskörper angelockt werden, ferner von Beobachtungen, welche an Bakterien und anderen Organismen gewonnen worden waren. Um die Erforschung dieses Gebietes haben sich besonders Engelmann, Stahl, vor allen Pfeffer, ferner Loeb, Massart, Jennings Verdienste erworben. Pfeffer hatte entdeckt, daß die Farnspermatozoen durch die Archegonien infolge einer Ausscheidung von Apfelsäure angelockt werden. Er verwandte bei seinen Experimenten ein einseitig zugeschmolzenes Kapillarröhrchen, welches er, mit der zu prüfenden Flüssigkeit gefüllt, unter ein Deckglas in das mit den zu untersuchenden Organismen erfüllte Wasser brachte. Indem die Lösung allmählich in das Wasser diffundierte, übte sie einen Reiz auf die Organismen aus, welcher dieselben entweder nach einiger Zeit [S. 119]alle in die Kapillarröhre hineinlockte oder sie aus der Umgebung derselben in immer größerem Umkreis, der mit dem Fortschreiten des Diffusionsvorganges wuchs, vertrieb.
Eine andere Methode schlug Massart ein, welcher die Kulturflüssigkeit und die zu prüfende Substanz in je einem Tropfen nebeneinander auf den Objektträger brachte und beide nun durch eine schmale Wasserbrücke verband, durch welche die Diffusion erfolgt.
Jennings brachte mit einer kapillar ausgezogenen Pipette einen Tropfen der zu untersuchenden Flüssigkeit mitten in die Kulturflüssigkeit unter das Deckglas (Fig. 126 A). Da an den Rändern des Tropfens die Diffusion erfahrungsgemäß ziemlich langsam vor sich geht, so ist diese Methode die zweckmäßigste, da für die freie Bewegung der Tiere kein mechanisches Hindernis vorliegt und doch der Tropfen vor Verdunstung geschützt ist.
Durch die nach diesen Methoden ausgeführten Experimente wurde festgestellt, daß z. B. Flagellaten sich folgendermaßen verhalten: Chlamydomonas pulvisculus, Polytoma, Bodo saltans werden nach Pfeffer besonders durch Kalisalze angezogen (Kaliumphosphat schon bei 0,0018 Proz.), ebenso stark durch Pepton, kräftig durch Asparagin, viel schwächer durch Harnstoff, Kreatin und Kohlehydrate. Chlamydomonas tingens ist nach Frank indifferent gegen Eisen, Manganverbindungen, Rohrzucker, Traubenzucker, Asparagin, Pepton; dagegen wird dies Flagellat von Kohlensäure stark angezogen. Ammoniak wirkt aber schon in ganz schwachen Lösungen verjagend.
Euglenen suchen nach Aderhold den Sauerstoff energisch auf; die Ansammlung vieler Protozoen um Luftblasen und an den Rändern der Deckgläser ist ja eine jedem Mikroskopiker bekannte Erscheinung.
Amöben reagieren auf die meisten Reize durch Zurückziehen und Flucht, überhaupt ist bei Rhizopoden Aufsuchen einer Substanz auf chemischen Reiz hin in keinem Fall experimentell erwiesen. Auszunehmen sind die Mycetozoen: an den Plasmodien der Lohblüte (Aethalium septicum) hat Stahl gezeigt, daß sie durch Sauerstoff und durch Wasser, ebenso durch den Saft der Gerberlohe, also dem Nährmaterial des Plasmodium angezogen, durch Kochsalz, Traubenzucker, Glyzerin, Salpeter etc. abgestoßen werden.
Paramäcien werden nach Jennings von schwachen Säuren und sauer reagierenden Salzen angezogen, ebenso von destilliertem Wasser: von Alkalien, alkalisch reagierenden Salzen, starken Säuren etc. abgestoßen. Merkwürdig ist die Tatsache, daß ihre eigene alkalisch reagierende Kulturflüssigkeit verjagend, daß dagegen verdünnte Kohlensäurelösung anziehend, stärkere Kohlensäurekonzentration dagegen abstoßend wirkt (Fig. 126 D und E). Zucker- und Glyzerinlösung sind ohne Einfluß auf die Bewegungsrichtung.
Diese Beispiele werden genügen, um zu zeigen, eine wie große Bedeutung die Reizbarkeit durch Aenderung in der chemischen Zusammensetzung des Mediums für die Biologie der Protozoen haben muß. Die Ansammlung der Tiere um Nährstoffe, ihr geselliges Vorkommen (Anlockung der Paramäcien untereinander durch die ausgeschiedene Kohlensäure), das Aufsuchen der geeigneten Gewebe durch Parasiten, z. B. der Speicheldrüsen der Mücken durch die Sporozoiten der Malariaparasiten usw. werden der Forschung durch diese Erkenntnisse zugänglich gemacht. Wir werden im speziellen Teil öfter auf das hier Gesagte verweisen müssen, z. B. bei Besprechung von [S. 120]Befruchtungserscheinungen. Hat doch z. B. Schaudinn gezeigt, daß bei Coccidium Schubergi die Mikrogameten erst dann von dem Makrogameten angelockt werden, wenn derselbe die Substanz seines Kernbinnenkörpers (Karyosoms) in die umgebende Flüssigkeit ausgeschleudert hat.
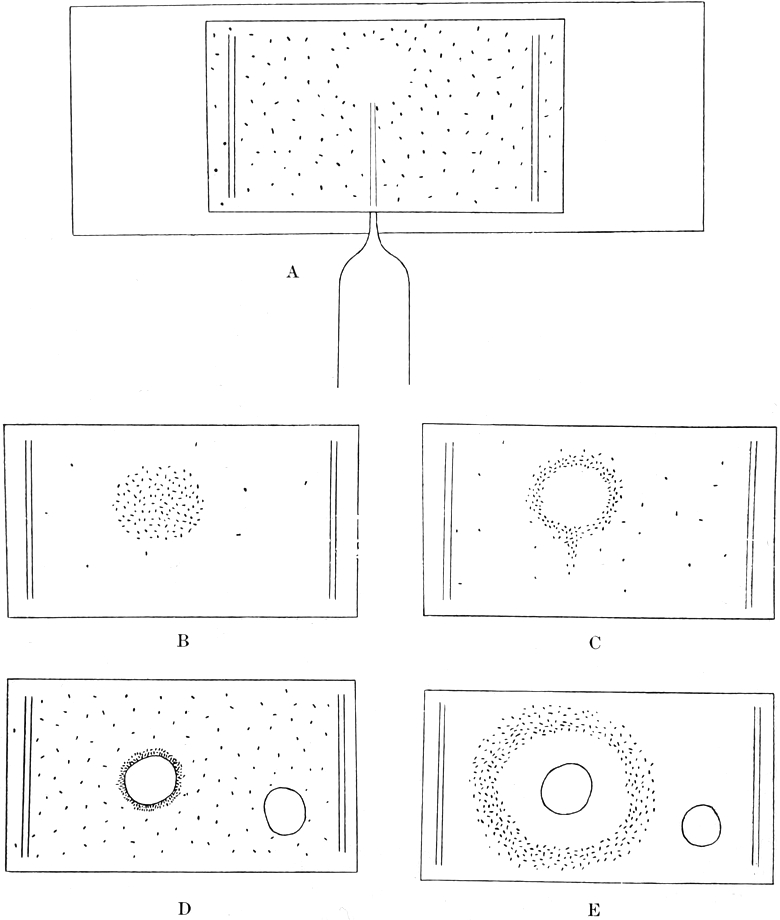
Wichtig ist die Tatsache, daß manche Stoffe in konzentrierten Lösungen umgekehrt wirken als in schwachen, also z. B. abstoßend [S. 121]statt anziehend. Ferner, daß die Reaktion des Protozoons verschieden ausfallen kann, je nach dem Medium, in welchem es lebte, ehe es dem Reiz ausgesetzt wurde.
In naher Beziehung zur chemischen Reizung und oft praktisch kaum von ihr zu unterscheiden ist die Empfindlichkeit der Tiere für verschiedene Konzentration des Mediums. Manche Organismen suchen aus verdünnten Lösungen in konzentriertere zu gelangen, doch sind z. B. Ciliaten nach Jennings für Unterschiede im osmotischen Druck viel weniger sensitiv, als für Verschiedenheiten in der stofflichen Zusammensetzung des Mediums.
b) Lichtreiz.
Daß das Licht auch bei vollkommener Ausschaltung der Wärmestrahlen auf alle chromophyllbesitzenden Protozoen einen wesentlichen Einfluß haben muß, ist ohne weiteres klar; ebenso daß der Einfluß in diesen Fällen einen deutlichen Zusammenhang mit den chemischen Umsetzungen im Organismus erkennen läßt. Daher ist es nicht erstaunlich, daß bei solchen Protozoen Aufhören oder Beginn der Lichtwirkung verschiedentliche Aenderungen im Lebensverlauf und in den Bewegungen derselben auslöst. So ist es eine viel beobachtete Tatsache, daß z. B. Euglenen, Peridineen beim Aufhören der Lichtwirkung leicht in Ruhezustand übergehen, daß die Teilungen vorwiegend im Dunkeln vor sich gehen etc. Auch haben wir oben erwähnt, daß der Lichtreiz verschiedene Bewegungen des Hämatochroms in der Zelle auslösen kann (S. 75). Die Lichtreizbarkeit ist bei zahlreichen Eugleninen, Chlamydomonadinen, Cryptomonadinen, Volvocinen etc. nachgewiesen worden. Auch nichtfarbige Protozoen reagieren übrigens ähnlich auf Lichtreize. Darauf werden wir später noch zurückkommen müssen. Auch werden wir später noch zu erörtern haben, daß bei Parasiten, welche im Innern von Tierkörpern schmarotzen, eine merkwürdige Beziehung zum periodischen Wechsel von Tag und Nacht gefunden worden ist, indem z. B. bei gewissen Trypanosomen und Hämosporidien die freien beweglichen Stadien nur nachts im Blut gefunden werden.
Von den farblosen Protozoen reagieren sehr viele, soviel wir bis jetzt wissen, gar nicht auf den Wechsel von Helligkeit und Dunkelheit. Dagegen sind manche Formen sehr empfindlich; so kontrahiert sich nach Engelmann Pelomyxa palustris bei plötzlicher Belichtung zur Kugelform. Verworn hat gezeigt, daß senkrecht auf eine Hälfte einer Amöbe (sp. ?) fallendes Licht keine Reaktion zur Folge hat, Davenport hat gefunden, daß schief einfallendes Licht eine Rückzugsbewegung zur Folge hat; nach Harrington und Leaming hören die Bewegungen in starkem weißen Licht auf, fangen aber in rotem Licht wieder an. Entsprechende Beobachtungen hat ganz neuerdings Mast bei Amoeba proteus gemacht. Er fand, daß Steigerung der Lichtintensität die Beweglichkeit hemmt, daß die Amöbe starkes Licht flieht. Im allgemeinen wirkt nach seinen Beobachtungen blaues Licht wie weißes, während die anderen Strahlenarten nur schwach reizen. Doch gibt es bemerkenswerterweise individuelle Verschiedenheiten, indem manche Tiere intensiver auf violette, grüne, gelbe oder auch rote Strahlen reagieren. Mycetozoenplasmodien reagieren [S. 122]auf Lichtreiz. Nach Verworn führen manche Infusorien auf den Lichtreiz hin Springbewegungen aus (z. B. Pleuronema chrysalis, Fig. 124). Die dabei wirksamen Strahlen des Spektrums sind die blauen und violetten. Nach Engelmann reagieren manche Ciliaten (Paramaecium bursaria) mit symbiotischen grünen Algen auf Lichtreiz, nach Davenport u. a. auch Stentor coeruleus.
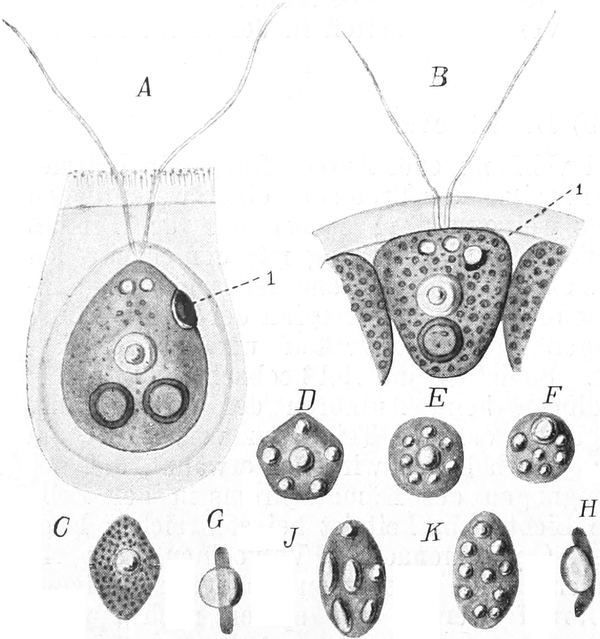
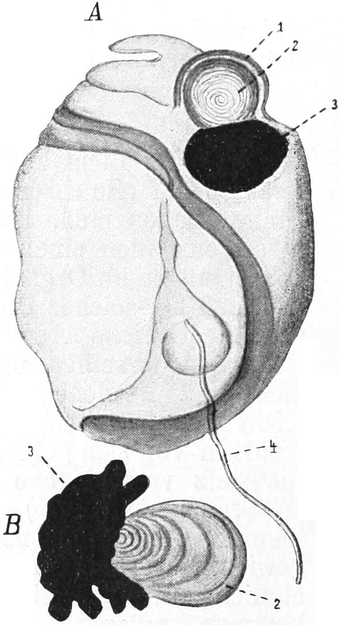
Während im allgemeinen das Plasma des ganzen Körpers für Lichtreize gleichartig empfänglich ist, lassen sich bei manchen Formen Unterschiede feststellen, so z. B. bei Euglena, bei welcher nach Engelmann das farblose Vorderende stark für Belichtung empfindlich ist, das Hinterende jedoch unempfindlich; man kann oft beobachten, daß eine im beleuchteten Feld schwimmende Euglena, wenn sie dessen Rand erreicht, Reaktion durch Umkehr zeigt, zu einer Zeit, wo erst das Vorderende ins Dunkel getaucht ist.
Da nun am Vorderende ein eigenartiger roter Fleck gelegen ist, den schon früher Autoren als „Augenfleck“ bezeichneten, den wir besser mit dem indifferenten Namen „Stigma“ belegen, so ist vielfach [S. 123]die Vermutung geäußert worden, daß in diesem roten Fleck ein Organ der Lichtperzeption zu erblicken sei.
Diese Stigmen sind bei chromophyllführenden Flagellaten und ihren farblosen nahen Verwandten (bei Eugleniden, Dinoflagellaten), sowie bei den Schwärmsporen von Algen weit verbreitet. Sie sind bei zahlreichen Flagellaten von Francé, bei Euglena neuerdings sehr genau von Wager untersucht worden. Nach Francé bestehen die Stigmen aus einer plasmatischen Grundsubstanz von feinmaschiger Anordnung, in welche sich zahlreiche ölartige rote (bei manchen Formen schwarzrote oder schwarze) Kugeln eingelagert finden. Die rote Substanz steht nach der Meinung anderer Forscher dem Karotin offenbar nahe oder ist mit diesem identisch.
Von den diesen Pigmentflecken aufgelagerten Amylum- oder Paramylumkörnern glaubt nun Francé, daß sie linsenartige Funktion ausüben. Bei Pouchetia-Arten findet sich nach Schütt ein ausgesprochen linsenartiger Körper, wie ihn ähnlich R. Hertwig zuerst bei seiner Erythropsis beschrieben hatte, über dessen Substanz allerdings in beiden Fällen nichts bekannt ist (vgl. Fig. 127 und 128).
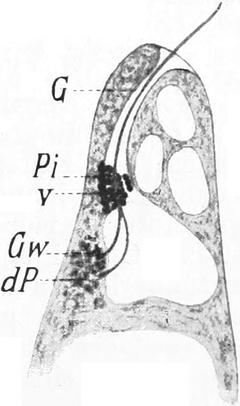
Nach einer genauen neueren Untersuchung von Wager ist die Geißel mit zwei Wurzeln in einer Plasmaverdichtung befestigt: in der Mitte ihres basalen Teiles besitzt sie eine eigenartige Verdickung (Fig. 129). Diese Verdickung ist von dem Pigment schirmartig umkleidet. Es ist daher gar nicht unmöglich, daß bei dieser Einrichtung der Lichtreiz direkt das Bewegungsorgan trifft, und daß durch den Pigmentschirm veranlaßt wird, daß die Strahlen die reizbare Stelle nur von einer Seite treffen. Die Folge davon würde natürlich eine ausgesprochen richtende Einwirkung des Strahleneinfalls des Lichtes auf die Bewegung des Tieres sein. (Vgl. hierzu auch Haberland, Physiologische Pflanzenanatomie, 3. Aufl., 1904.)
Bütschli hatte übrigens seinerzeit schon vermutet, daß bei den holophytischen Flagellaten schon die Form und Lagerung der Chromatophoren im Körper durch ihren Einfluß auf den Stoffwechsel zur Orientierung der Tiere in Beziehung zum Lichteinfall beitragen könnten.
Tatsächlich können wir bei zahlreichen Protozoen bemerken, daß sie sich zu einer Lichtquelle hinbewegen, während andere durch einfallendes Licht umgekehrt zu einer Wanderung von der Lichtquelle hinweg veranlaßt werden. Ueber diese auffallende Erscheinung, welche schon früh bemerkt wurde, gibt es viele eingehende Untersuchungen, von denen wohl die grundlegenden von Strasburger herrühren. Wichtige Beiträge rühren ferner von Pfeffer, Rothert, Jennings, Oltmanns, Jost u. a. her.
In der Regel findet man lichtempfindliche Protozoen, welche in einem Tropfen Kulturflüssigkeit auf den Objektträger gebracht worden waren, nach kurzer Zeit entweder alle an dem Lichtrand oder Schattenrand des Tropfens angesammelt, wenn das Licht einseitig, [S. 124]z. B. von einem Fenster aus einfällt. Ganz das Entsprechende kann man in größeren Kulturgefäßen beobachten.
Aus den Versuchen, welche man mit zum Teil sehr fein ausgedachten Methoden vorgenommen hat, geht hervor, daß jedes Individuum auf eine gewisse Lichtintensität abgestimmt ist, welche es nun aufzusuchen strebt. Viele Organismen suchen daher weder das grellste Licht noch den tiefsten Schatten auf, sondern eine bestimmte Abstufung des Halbschattens, in welchem sie dann ruhig oder in tanzenden Bewegungen verharren. Dieses jeweilige „Optimum“ hängt von den Verhältnissen ab, unter denen das Tier sich vorher befunden hat. Zunächst von der Beleuchtung: starke Beleuchtung rückt das Lichtbedürfnis hinauf[9], schwache setzt es herab. Chemische Zusammensetzung des Mediums, Temperatur, osmotische und mechanische Einflüsse können die Lichtreizbarkeit eines Organismus stark beeinflussen, eventuell in den Wirkungen umkehren. Wir nehmen an, daß eine durch die verschiedenartigen Einflüsse herbeigeführte Veränderung in den physiologischen Verhältnissen resp. in der stofflichen Zusammensetzung der Teile des Körpers diese verschiedene „Lichtstimmung“ bedingt.
Schließlich sei hervorgehoben, daß speziell bei Flagellaten der Reiz vorwiegend von den stark brechbaren Teilen des Spektrums ausgeht, also den blauen und violetten Strahlen. Nach Hertel reagieren manche Protozoen, z. B. Paramaecium, sogar nur auf ultraviolette Strahlen.
c) Temperaturänderungen als Reiz.
Wie die chemischen Vorgänge überhaupt, so muß die Temperatur auch die Stoffwechselvorgänge erheblich beeinflussen. Daß dies tatsächlich der Fall ist, entnehmen wir aus der Aenderung der Bewegungserscheinungen. Amöben (Amoeba proteus) werden bei steigender Temperatur immer lebhafter, um schließlich bei Temperaturen, welche bei 35° C (bei anderen Formen höher) liegen, sich abzukugeln und bewegungslos zu werden. Infusorien zeigen nach Rossbach schon bei 25° C stark gesteigerte Bewegungsschnelligkeit, bei 30–35° C sind sie „förmlich rasend“; bei höheren Graden bleiben die Wimpern stehen. Bei sinkender Temperatur werden Amöben kältestarr (bei wenig über 0°), wobei sie vielfach sich nicht abkugeln sollen. Nach Pütter wird bei Infusorien (Stylonychia) durch Abkühlung (von 16° C auf 5° C) die Bewegung der Wimpern zunächst sehr gesteigert, um bei weiterer Abkühlung schnell aufzuhören.
Auch die Temperaturänderungen wirken auf Amöben und Paramäcien, wenn sie von einer Seite her die Tiere treffen, bestimmend auf ihre Bewegungsrichtung. Paramäcien z. B., welche in einer länglichen Wanne gehalten werden, deren eines Ende erwärmt und abgekühlt werden kann, fliehen aus dieser Region, wenn die Temperatur des Wassers auf mehr als 24–28° C steigt; wird dagegen abgekühlt, so suchen sie die wärmere Region auf, solange deren Temperatur die angegebenen Grade nicht erreicht. Amöben kontrahieren sich an der vom Reiz betroffenen Seite, das Plasma strömt nach der entgegengesetzten [S. 125]Seite, wo Pseudopodien sich entwickeln und das Tier von der Reizquelle hinwegbewegen. (Nach Verworn und Jennings.)
Gerichtete Bewegungen von Amöben auf Abkühlung von einer Seite her sind bisher nicht nachgewiesen worden.
d) Mechanische Reize.
Die Folgen mechanischer Reize auf Protozoen sind vielfach sehr augenfällig und daher jedem Mikroskopiker wohlbekannt. Mechanisch durch Stoß, Schütteln, Berührung gereizte Rhizopodien sondern jenen früher öfter erwähnten Schleim ab; sie ziehen ferner ihre Pseudopodien ein, kugeln sich ab, fallen eventuell von den Wänden des Kulturgefäßes herunter. Flagellaten und Ciliaten führen auf die gleichen Reize plötzlich starke Schläge mit ihren Bewegungsorganellen aus, und bei Besprechung der Reizleitung erwähnten wir oben, daß bei Vorticelliden, Stentoren etc. durch solche Reize die plötzliche Kontraktion der Myophane herbeigeführt wird. Die biologische Bedeutung dieser Form der Reizbarkeit ist ersichtlich, wenn wir sehen, wie Rhizopodien anprallende Infusorien oder kleine Crustaceen einfangen, wie Infusorien einem Verfolger entfliehen etc.
Viele Protozoen reagieren schon auf sehr zarte mechanische Reizung und zwar insbesondere dann, wenn dieselbe nur einen Teil ihres Körpers trifft, wenn sie einseitig wirkt. Das Gemeinsame aller hierher gehörigen Reize besteht darin, daß die Tiere auf eine entstehende Druckdifferenz reagieren. So beginnen Pseudopodien (z. B. von Amöben nach Jennings), wenn sie leise einen Gegenstand berühren, sich demselben anzuschmiegen, das Tier haftet an der Unterlage. Das gilt auch für Ciliaten, deren Wimperschlag durch Berührung mit einem festen Gegenstand sistiert wird, so daß die Tiere wie festgebannt bewegungslos verharren und dadurch sogar direkt geschützt werden können. Nach den interessanten Untersuchungen von Pütter können die „Kontaktreize“ sogar die Wirkungen von thermischen und galvanischen Reizen aufheben, indem Tiere, welche auf die letzteren Reize hin sogleich davonschwimmen würden, infolge des Kontaktreizes festgebannt bleiben, so daß sie bei steigender Temperatur eventuell absterben. Bei Paramäcien allerdings überwindet bei 37° C die ungeheuer gesteigerte Wimperbewegung den Kontaktreiz; die Tiere reißen sich los und schwimmen davon.
Druckdifferenz kommt auch in Flüssigkeitsströmen in Betracht; bekanntlich ist die Folge einer solchen Reizwirkung, daß die Plasmodien von Myxomyceten dem Strom entgegenwandern. Das gleiche wird für verschiedene der aus Stroh- und Heuinfusen gezüchteten Amöben angegeben, von denen ich daher vermute, daß sie nur Entwicklungszustände von Myxomyceten seien. Lühe hat darauf aufmerksam gemacht, daß für manche Blutparasiten, welche durch blutsaugende Arthropoden übertragen werden, eine derartige Reizbarkeit wahrscheinlich sei, da sie zum Zweck der Infektion dem gesaugten Blutstrom entgegen schwimmen müßten. Doch scheint mir nicht sicher, ob solche Formen wirklich während des Saugens übertragen werden, ob sie nicht vielmehr im Anfang oder in Pausen des Saugaktes mit dem Speichel in die Wunde gespritzt werden.
Druckdifferenz ist es auch, welche, wie die Untersuchungen von Jensen zeigen, die Reizquelle bei den Wirkungen der Schwerkraft [S. 126]auf die Protozoen darstellt. Während manche Protozoen — in eine mit Wasser gefüllte, senkrecht aufgestellte Röhre gebracht — den Boden aufsuchen, steigen andere an die Oberfläche und bleiben dort. Daß dabei die einen Orte höheren, die anderen Orte niederen Druckes aufsuchen, dürfen wir nach Jensens Versuchen annehmen, welcher Paramäcien auf der Zentrifuge untersuchte. Diese Infusorien halten sich in Kulturgefäßen stets in der Nähe der Oberfläche. Bei nicht zu schnellem Drehen der Zentrifuge sammeln sie sich am zentralen Ende der Röhre, also im Gebiet niederen Druckes.
Diese Reizbarkeit durch die Schwerkraft ist besonders wichtig für alle schwebenden Formen, wovon wir im biologischen Kapitel spezielle Beispiele kennen lernen werden. Bei solchen spielen eventuell Tropfen leichterer Substanzen (Oele) oder schwerere Exkretkristalle etc. eine Rolle, die derjenigen der Statocysten der Metazoen vergleichbar ist.
Starke einseitige mechanische Reize wirken umgekehrt, wie die angeführten leichten Reize. Die Protozoen entfernen sich von der Reizquelle: Amöben sistieren ihre Bewegung und strecken ihre Pseudopodien in abgewandter Richtung aus, häufig nicht direkt entgegengesetzt, sondern in einem Winkel zur früheren Bewegungsrichtung. Flagellaten und Ciliaten springen vielfach zurück und bewegen sich in einer Richtung, welche sie jedenfalls von der Reizquelle wegführt (Näheres s. unten S. 129).
Elektrische Reize.
Galvanische Ströme, welche man durch Flüssigkeiten leitet, in denen sich Protozoen befinden, haben auf dieselben eine eigenartige Wirkung. An der Eintrittsstelle wie an der Austrittsstelle, also an der Anode und an der Kathode, äußern sich Reizwirkungen. Dieselben sind offenbar je nach stofflicher Zusammensetzung und Organisation der Tiere sehr verschiedenartig. Meist tritt an der Anode eine Kontraktion, [S. 127]an der Kathode vielfach eine Expansion ein. Doch lassen sich scheinbar vorläufig keine allgemeinen Regeln aufstellen.
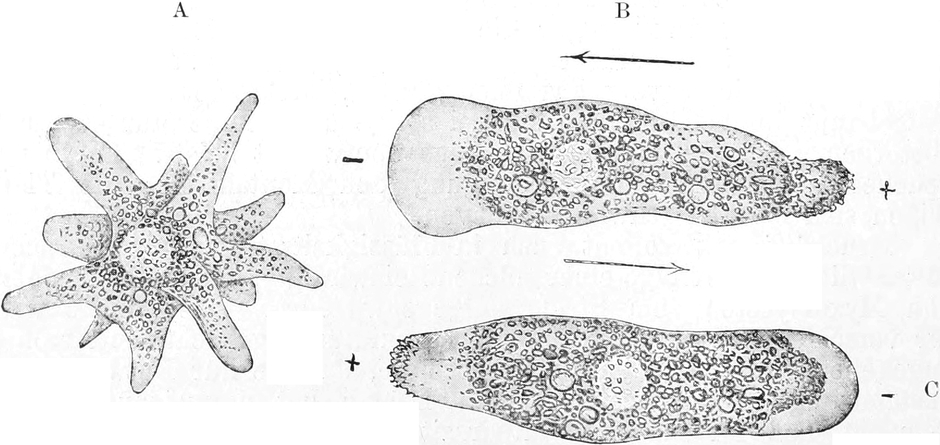
Die Lokomotion der Tiere wird in auffallendster Weise durch die Stromrichtung beeinflußt. Paramäcien schwimmen zur Kathode, ebenso kriechen Amöben zur Kathode. Flagellaten wie Polytoma uvella schwimmen zur Anode, das Infusor Spirostomum ambiguum stellt sich transversal zur Stromrichtung und verharrt in dieser Einstellung unter Zuckungen am Ort, solange der Strom geschlossen ist.
Für unseren Zweck müssen diese kurzen Andeutungen genügen. Weitere Details finden sich bei Verworn, welcher auch die Literatur zitiert. Von besonderem Interesse für die Bewegungsphysiologie der Protozoen sind die Untersuchungen Pütters, welcher die interessanten Wirkungen untersucht hat, welche sich aus der Kombination der galvanischen Reize mit Kontaktreizen ergeben. Sehr wichtig sind ferner für die Beurteilung des ganzen Phänomens die Arbeiten von Wallengren und von Statkewitsch.
3. Die Reizempfindlichkeit der Protozoen.
Die Einflüsse der geschilderten Reize auf die Bewegungen der Protozoen haben zu vielen Erörterungen Anlaß gegeben. Im Zusammenhang mit den wichtigen Entdeckungen der Botaniker über die „Tropismen“ der höheren Pflanzen hat man sie als Anzeichen für eine direkte Beeinflussung der Tiere durch „Richtungsreize“ gehalten. Tatsächlich besteht eine weitgehende Uebereinstimmung in den Reizerscheinungen bei Pflanzen und bei niederen Tieren: es erfolgt durch einen einseitig wirkenden Reiz eine „Orientierung“ der Organismen, welche durchaus einen automatischen Eindruck macht. Große Scharen von Protozoen, welche sich regellos umherbewegten, werden durch einseitig auffallendes Licht oder einen anderen einseitig wirkenden Reiz an eine Stelle versammelt und dort beisammen gehalten: ein ganz analoger Anblick, wie er durch ein von oben verdunkeltes Beet voll junger Pflanzen dargeboten wird, welche dem von einer Seite einfallenden Licht ihre Keimblätter sämtlich zukehren. So hat man dann in Analogie zu den Tropismen der Pflanzen die zum Reiz orientierten Bewegungen der Tiere auch als Tropismen bezeichnet, später sie aber mit den gleichartigen Bewegungen von Schwärmsporen, Spermatozoen, freibeweglichen Pflanzen von den Tropismen der festgewachsenen Pflanzen als Taxien unterschieden. Man hat in der Folge nach den Reizen unterschieden (wobei man je nachdem der Reiz eine Bewegung gegen die Reizquelle oder von ihr weg verursachte, positive und negative Taxien unterschied):
- 1) Chemotaxis (inkl. Osmotaxis).
- 2) Phototaxis.
- 3) Thermotaxis.
- 4) Barotaxis (inkl. Geotaxis, Thigmotaxis und Rheotaxis).
- 5) Galvanotaxis
Wenn wir also oben gesehen haben, daß Euglena der Lichtquelle in der Richtung der Lichtstrahlen zuschwimmt, so wurde dies als positive Phototaxis bezeichnet. Bei bedeutender Steigerung der Lichtintensität schwimmt Euglena jedoch von der Lichtquelle weg: negative Phototaxis hat sich eingestellt. Diese bequeme Terminologie wendet man für das ganze Gebiet der durch Reize gerichteten Bewegungen [S. 128]an. Für ebenso einheitlich, wie man es durch die Terminologie ausdrückte, hielt man auch den kausalen Zusammenhang bei diesen Erscheinungen.
Man dachte sich zunächst die taktischen Bewegungen bedingt dadurch, daß der einseitig auffallende Reiz die Bewegungsorgane der getroffenen Seite des Tieres zu besonders gearteten Bewegungen veranlasse, welche das Tier mit seinem Vorderende zur Reizquelle oder von ihr abwendeten. In dieser Weise wirkt jedenfalls der vom galvanischen Strom auf die Organismen ausgeübte Reiz. Und nach der Annahme von Pfeffer, Verworn, Loeb u. a. wirken die übrigen Reize auf andere Mikroorganismen in einer analogen Weise.
Neuere Forschungen haben jedoch gezeigt, daß ein Faktor, der früher schon von Loeb u. a. beobachtet worden war, einen sehr wesentlichen Einfluß für die Orientierung der Tiere im Verhältnis zu einer Reizquelle besitzt. Es ist dies — wie vor allem aus Untersuchungen von Jennings, Rothert u. a. hervorgeht — die „Unterschiedsempfindlichkeit“ für verschiedene Reizintensitäten.
Infolge solcher Unterschiedsempfindlichkeit für die chemische Zusammensetzung des Mediums schreckt ein Tier, wenn es aus einem Medium in ein anderes übertritt, welches eine andere chemische Zusammensetzung hat, zurück, wenn der Unterschied ein derartiger ist, daß er auf das Tier überhaupt einen Einfluß besitzt. Jennings hat für Paramaecium, Oxytricha, Stentor, für Euglena, Cryptomonas etc. genau untersucht, wie sich das einzelne Individuum so gearteten Reizen gegenüber verhält. Er hat festgestellt, daß die von einem abstoßenden Reiz betroffenen Tiere sich durchaus nicht vollkommen umdrehen und von der Reizquelle wegschwimmen, als ob von dort ausgehende parallele Strahlen sie bewegten, sondern daß sie in der Schreckbewegung ein Stück zurückfahren, dann aber in einem Winkel schief vorwärts weiterschwimmen. Wiederholt sich diese Schreckbewegung mehrmals hintereinander, so kann das Tier natürlich vollkommen gegen die ursprüngliche Bewegungsrichtung gedreht erscheinen. Der Effekt entspricht vollkommen der theoretischen Annahme der „negativen Chemotaxis“, aber der Weg, auf welchem dieser Erfolg erreicht worden ist, stimmt in seinen Etappen nicht mit der Theorie überein.
Es reagiert vielmehr das Protozoon immer in derselben Weise, einerlei von welcher Seite der Reiz das Tier trifft: eine Oxytricha z. B. zuckt nach rechts herum, einerlei ob der Reiz von links oder von rechts, von vorn oder von hinten das Tier trifft. Die Form der Schreckbewegung und ihre Richtung ist vorausbestimmt durch die Körperform des Tieres, die Stellung und die Bewegungsrichtung der Cilien etc. Also innere Faktoren, die Organisation bestimmen den Reizerfolg, derselbe ist nicht oder doch erst in zweiter Linie von besonderen Qualitäten des Reizes bedingt.
Alle Reize wirken nach dieser Vorstellung in gleicher Weise auf das Tier. Auch der Effekt, den man in der Regel der „positiven Chemotaxis“ zuschreibt, ist nach Jennings auf demselben Weg erzielt, indem die Tiere bei ihrem rastlosen gelegentlichen Umherschwimmen in die scheinbar anziehend wirkende Lösung geraten und dann nicht mehr herauskommen, indem sie an der Grenze gegen das gewöhnliche Medium zurückschrecken.
[S. 129]
Hat man z. B. nach der Methode von Jennings (s. oben S. 119) einen Tropfen einer die Paramäcien sammelnden Flüssigkeit (Lösung eines schwach sauren Salzes)[10] unter das Deckglas gebracht und beobachtet man die umherschwimmenden Paramäcien, so bemerkt man, daß sie zunächst fortfahren regellos umherzuschwimmen und keinen richtenden Einfluß durch die diffundierende Flüssigkeit erfahren. Alle Individuen aber, welche auf ihren rastlosen Wanderungen zufällig in den Tropfen der Salzlösung geraten, bleiben in ihr wie in einer Falle gefangen. Die Fig. 131 zeigt den Bewegungsvorgang, welcher der Erscheinung zugrunde liegt. Das Tier reagiert auf den Eintritt in den Tropfen gar nicht; sobald es aber, in der Sekante hindurchschwimmend, den jenseitigen Rand des Tropfens erreicht hat, macht sich die Unterschiedsempfindlichkeit geltend. Es erfolgt die Schreckbewegung rückwärts mit gleichzeitiger typischer Drehung des Körpers. Dann folgt erneutes Vorwärtsschwimmen wiederum bis zum Tropfenrand, Schreckbewegung, Rückwärtsschwimmen, Drehung etc. und so fort, bis durch die Diffusion die Differenz am Tropfenrand für das Tier „unwahrnehmbar“ wird.
Ist die Lösung zu konzentriert, so erfolgt auf Grund der gleichen Erscheinungen eine Ansammlung der Tiere in einem Ring, der von der Region der optimalen Konzentration eingenommen wird, in dem die Tiere sowohl gegen die zu große als auch gegen die zu geringe Konzentration die Schreckbewegung ausführen. Naturgemäß erweitert sich dieser Ring immer mehr, je weiter die Diffusion nach außen fortschreitet. (Vgl. hierzu auch die Fig. 126 B–E auf S. 120).
Jennings hat gezeigt, daß sich in ähnlicher Weise Temperaturfallen und Lichtfallen für die Tiere einrichten lassen. Seine Beobachtungen, sowie diejenigen von Rothert zeigen, daß das Verhalten auf „Richtungsreize“ sich jedenfalls nicht bei allen Organismen so einfach erklären läßt, als es die Theorie von den Tropismen voraussetzt.
Nach dem gegenwärtigen Stand der Untersuchungen müssen wir feststellen, daß galvanische Ströme auf viele Organismen direkt die Bewegung richtend wirken. Aber auch da kommt nach Wallengren vielfach der spezifische Umdreh- und Schwimmmechanismus des betreffenden Protozoons als wesentliches Erklärungsmoment für die Bewegungsrichtung [S. 130]in Betracht. Für die übrigen Reize ist nachgewiesen, daß bei einer ganzen Reihe von Organismen der scheinbar direkt richtende Einfluß der einseitig wirkenden Reize auf einen einfachen automatisch wirkenden Mechanismus zurückzuführen ist. Ob bei anderen Formen direkte Taxien vorkommen, ist nicht mit der gleichen Sicherheit nachgewiesen, erscheint mir aber wahrscheinlich. Ich glaube annehmen zu dürfen, daß die Art der Reaktion eines Organismus von der Höhe resp. Kompliziertheit seiner Organisation abhängt. Eine Amöbe mit ihrem apolaren Formwechsel, ihrer inkonstanten Körperform, dem flüssigen Plasma ohne feste Differenzierungen reagiert anders, als ein Infusor mit konstanter Eigenform, mit festgelegtem Bewegungstypus, mit starrer Oberfläche, bei welchem die Aenderungen der Plasmaoberflächenspannung und der chemischen Aenderungen im Innern erst auf Umwegen zur Wirkung gelangen. Trotz dieses Umwegs kann bei ihnen infolge des Vorhandenseins von spezifischen Differenzierungen die Reaktion viel prompter erfolgen, als bei den Amöben.
Zwischen diesen beiden Extremen gibt es alle möglichen Uebergänge, welche bei der Beurteilung der Experimente berücksichtigt werden müssen. Und solche Experimente werden noch in großer Zahl gemacht werden müssen, ehe die Probleme alle gelöst sind, welche die geordneten Bewegungen der Protozoen uns darbieten.
Die durch Reize ausgelösten Bewegungen der Protozoen sind im allgemeinen für deren natürliche Existenz zweckmäßig: sie führen sie zu den für ihr Leben notwendigen Gegenständen und entfernen sie aus dem Bereich von Schädigungen. Unter Bedingungen, welchen die Protozoen natürlicherweise selten oder gar nicht ausgesetzt sind, sehen wir sie bei Experimenten aber gerade infolge ihrer Reaktionen zugrunde gehen. So werden sie nicht nur zu Substanzen ohne Nährwert hingezogen, sondern sie werden sogar von Lösungen angezogen, welche entweder schädlich oder gar tödlich sind, z. B. von salizylsaurem Natron, Morphium, ferner 20% Rohrzuckerlösung, 10% Glyzerin, 10% Fleischextrakt, 10% Kaliumacetat, etc. Ebenso eigenartig ist die Tatsache, daß Paramäcien, wenn sie durch Thigmotaxis an einem Gegenstand haften und man in ihrer Nähe einen Tropfen einer ihnen schädlichen Substanz diffundieren läßt, nicht etwa davonschwimmen, sondern automatisch die für sie festgelegte nach rückwärts gerichtete Schreckbewegung ausführen. Diese führt sie in die konzentrierte Lösung der für sie tödlichen Substanz hinein.
Wichtigste Literatur
zum Kapitel
Allgemeine Physiologie der Protozoen.
|
1. Lehr- und Handbücher.
|
|
|
60.
|
Fürth, O. v., Vergleichende chemische Physiologie
der niederen Tiere. Jena 1903.
|
|
61.
|
Loeb, J., Vorlesungen über Dynamik der
Lebenserscheinungen. Leipzig 1908.
|
|
62.
|
Oltmanns, F., Morphologie und Biologie der
Algen. Vol. 2. Jena 1905.
|
|
[S. 131]
63.
|
Pfeffer, W., Pflanzenphysiologie. 2. Aufl.
Leipzig 1900–1904.
|
|
64.
|
Verworn, M., Allgemeine Physiologie. 4. Aufl.
Jena 1907.
|
|
Ferner No. 1 der Liste auf S. 67. |
|
|
2. Ernährung.
|
|
|
65.
|
Driesch, H., Die organischen Regulationen.
|
|
a) Holophytische
Ernährung.
|
|
|
66.
|
Bütschli, O., Beiträge zur Kenntnis des Paramylons.
In: Arch. f. Protistenk. Vol. 7. 1906. p. 197. (Daselbst ist weitere
Literatur zitiert.)
|
|
67.
|
Engelmann, Th. W., Ueber tierisches Chlorophyll.
Pflügers Arch. f. d. gesamte Physiologie. Vol. 32. 1883. p. 80.
|
|
68.
|
Frank, A. B., Kultur und chemische
Reizerscheinungen der Chlamydomonas tingens. In: Bot. Zeitg. Vol. 62.
1904.
|
|
69.
|
Khawkine, W., Recherches biologiques sur l’Astasia
ocellata et l’Euglena viridis. In: Ann. d. Sci. nat. Zool. Sér. 6.
Vol. 19. 1885 und Sér. 7. Vol. 1. p. 319.
|
|
70.
|
Klebs, G., Ueber die Organisation einiger
Flagellatengruppen und ihre Beziehungen zu Algen und Infusorien. In:
Unters. a. d. botan. Inst. Tübingen. Vol. 1. 1883. p. 233.
|
|
71.
|
Lauterborn, R., Protozoenstudien. II. Paulinella
chromatophora, ein beschalter Rhizopode des Süßwassers mit blaugrünen
chromatophorenartigen Einschlüssen. In: Zeitschr. f. wiss. Zool. Vol.
59. 1895. p. 537.
|
|
72.
|
— Protozoenstudien. IV. Flagellaten aus dem Gebiet des
Oberrheins. Ibid. Vol. 65. 1899. p. 369.
|
|
72a.
|
Reichenow, E., Untersuchungen an Haematococcus
pluvialis nebst Bemerkungen über andere Flagellaten. In: Arb. a. d. Kais.
Gesundheitsamt. Vol. 33. 1909. p. 1.
|
|
73.
|
Zumstein, H., Zur Morphologie und Physiologie der
Euglena gracilis Klebs. In: Pringsheims Jahrb. Vol. 34. 1900. p. 176.
|
|
Dazu ferner No. 1, 56, 59 der Liste auf S. 67. — No. 62, 63 dieser Liste. |
|
|
b) Symbiose
mit Algen.
|
|
|
74.
|
Brandt, K., Die Färbung lebender einzelliger
Organismen. In: Biol. Centralb. Vol. 1. 1881. p. 202.
|
|
75.
|
— Die morphologische und biologische Bedeutung des
Chlorophylls bei Tieren. 1. Arch. f. Anat. u. Physiol. Physiol. Abt. 1882.
p. 125. 2. Mitteil. Zool. Stat. Neapel. 1883. p. 191.
|
|
76.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. V. Amöbenstudien. In: Arch. Protistenk. Suppl.-Bd. 1907.
p. 250.
|
|
77.
|
Famintzin, A., Beiträge zur Symbiose von Algen
und Tieren. In: Mém. de l’Acad. Imp. des Scienc. de St. Pétersbourg. 1 und
2 in Vol. 36. 1889. p. 1; 3 in Vol. 38. 1891 der 7. Sér. (No. 4. 1892.)
|
|
78.
|
Gruber, A., Ueber Amoeba viridis Leidy. In: Zool.
Jahrb. Suppl. Vol. 7. 1904. Festschr. f. Weismann. p. 67.
|
|
79.
|
Le Dantec, F., Recherches sur la symbiose des
algues et des protozoaires. Ann. de l’Inst. Pasteur. Vol. 6. 1892. p. 190.
|
|
80.
|
Schaudinn, F., Untersuchungen über den
Generationswechsel von Trichosphaerium Sieboldi. In: Ann. z. d. Abh. d.
Kgl. preuß. Akad. Wiss. Berlin. 1899. p. 1.
|
|
81.
|
Schewiakoff, W., Bemerkung zu der Arbeit von Prof.
Famintzin über die Zoochlorellen. Biol. Centralbl. Vol. 11. 1891. p.
475.
|
|
82.
|
Winter, F., Zur Kenntnis der Thalamophoren. 1.
Untersuchung über Peneroplis pertusus (Forsk.). In: Arch. Protistenk.
Vol. 10. 1907. p. 1.
|
|
c) Holozoische
Ernährung.
|
|
|
83.
|
Čelakovsky, L. jun., Ueber die Aufnahme lebender
und toter verdaulicher Körper in die Plasmodien von Myxomyceten. In: Flora.
Ergänzungsband. 1892. p. 242.
|
|
84.
|
Fabre-Domergue, P., Recherches anatomiques et
physiologiques sur les Infusoires ciliés. In: Ann. d. Scienc. nat.
Zoologie. Vol. 5. 1888.
|
|
85.
|
a) Greenwood, On the digestive process of some
Rhizopods. I. In: Journ. of Physiol. Vol. 7. 1886. p. 255.
|
|
b) — On the digestive process of some Rhizopods. II.
In: Journ. of Physiol. Vol. 8. 1887. p. 263.
|
|
|
86.
|
— On the constitution and the mode of formation of
„foodvacuoles“ in Infusoria etc. Philos. Transact. Roy. Soc. London.
1894. p. 185.
|
|
[S. 132]
87.
|
Greenwood and Sounders, On the role of
acid in protozoan digestion. In: Journ. of Physiol. Vol. 16. 1894. p. 441.
|
|
87a.
|
Grosse-Allermann, W., Studien über Amoeba
terricola Greeff. In: Arch. f. Protistenk. Vol. 17. 1909. p. 203.
|
|
88.
|
Hartog and Dixon, On the digestive ferments
of a large Protozoon. In: Rep. Brit. Assoc. Vol. 63. 1893. p. 801.
|
|
89.
|
Hemmeter, On the role of acid in the digestion of
certain Protozoa. In: The Amer. Nat. Vol. 30. 1896. p. 619.
|
|
90.
|
Jennings, H. S., The movements and reactions of
Amoeba. In: Contributions to the study of the behaviour of lower organisms.
Washington. Carnegie Inst. 1904.
|
|
91.
|
a) Krukenberg, Ueber ein peptisches Ferment im
Plasmodium der Myxomyceten. In: Unters. Physiol. Inst. Heidelberg. Vol. 2.
1878. p. 273.
|
|
b) — Vergleichend-physiologische Vorträge. Leipzig 1886.
p. 48.
|
|
|
92.
|
Lister, In: Ann. of Bot. Vol. 2. 1880–1889.
p. 89 (zitiert nach Fürth).
|
|
93.
|
Metalnikoff, S., Ueber die intracelluläre
Verdauung. In: Bull. Acad. St. Pétersbourg. Vol. 19. 1903. p. 187.
|
|
94.
|
Meissner, Beiträge zur Ernährungsphysiologie der
Protisten. In: Zeitschr. wiss. Zool. Vol. 46. 1888. p. 498.
|
|
95.
|
Metschnikoff, E., Recherches sur la digestion
intracellulaire. In: Ann. Inst. Pasteur. 1889. p. 25.
|
|
96.
|
Mouton, H., Recherches sur la digestion chez les
Amibes et sur leur diastase intracellulaire. Thèse prés. à la Fac. de
Scienc. Paris. Sceaux. Imprimerie Charaire. 1902.
|
|
97.
|
Neresheimer, E., Ueber vegetative
Kernveränderungen bei Amoeba Dofleini. In: Arch. f. Protistenk. Vol. 6.
1905. p. 147.
|
|
98.
|
a) Nirenstein, E., Beiträge zur
Ernährungsphysiologie der Protisten. In: Zeitschr. f. allg. Physiol.
Vol. 5. 1905. p. 433.
|
|
b) — Ueber Fettverdauung und Fettspeicherung bei
Infusorien. In: Zeitschr. allg. Phys. Vol. 10. 1909. p. 137.
|
|
|
99.
|
Prowazek, S. v., Vitalfärbungen mit Neutralrot an
Protozoen. In: Zeitschr. f. wiss. Zool. Vol. 63. 1897. p. 187.
|
|
100.
|
Rhumbler, L., s. No. 38 der Liste S. 67.
|
|
100a.
|
— Die verschiedenartigen Nahrungsaufnahmen bei Amöben als
Folge verschiedener Colloidalzustände ihrer Oberflächen. In: Arch. f.
Entw.-Mech. Vol. 30. I. 1910. p. 194.
|
|
100b.
|
Staniewicz, W., Etudes expérimentales sur la
digestion de la graisse dans les infusoires ciliés. In: Bull. Acad. Scienc.
Cracovie. Cl. math. et nat. Ser. B. 1910. p. 199.
|
|
101.
|
Štolc, A., Beobachtungen und Versuche über die
Verdauung und Bildung der Kohlehydrate bei einem amöbenartigen Organismus,
Pelomyxa palustris. In: Zeitschr. wiss. Zool. Vol. 68. 1900. p. 625.
|
|
102.
|
Verworn, M., Psychophysiologische Protistenstudien.
Jena 1889.
|
|
103.
|
Wortmann, bei de Bary, Vergl. Morphologie und
Biologie der Pilze, Mycetozoen und Bakterien. Leipzig 1884. p. 487.
|
|
Außerdem No. 1, 6, 7, 35, 38, 40, 55, 56 der Liste auf S. 67 und No. 60, 64 dieser Liste. |
|
|
3. Atmung.
|
|
|
104.
|
Barrat, J. O. W., Die Kohlensäureproduktion von
Paramaecium aurelia. In: Zeitschr. f. allg. Physiol. Vol. 5. 1905. p.
66.
|
|
105.
|
Pütter, A., Die Atmung der Protozoen. In: Zeitschr.
f. allg. Physiol. Vol. 5. 1905. p. 566.
|
|
106.
|
Ritter, G., Abhängigkeit der Plasmaströmung und
Geißelbewegung vom freien Sauerstoff. In: Flora. Vol. 86. 1899. p.
329.
|
|
107.
|
Weinland, E., Ueber Kohlehydratzersetzung ohne
Sauerstoffaufnahme bei Ascaris, ein tierischer Gärungsprozeß. In:
Zeitschr. f. Biol. Vol. 42. 1901. p. 55.
|
|
4. Reservestoffe.
|
|
|
107a.
|
Borgert, A., Ueber Erscheinungen fettiger
Degeneration bei tripyleen Radiolarien. In: Arch. f. Protistenk. Vol. 16.
1909. p. 1.
|
|
108.
|
a) Bütschli, O., Notiz über das Vorkommen einer
dem Amyloid verwandten Substanz in einigen niederen Tieren. In: Arch. f.
Anat. u. Physiol. 1870. p. 362.
|
|
b) — Bemerkungen über einen dem Glykogen verwandten
Körper in den Gregarinen. In: Zeitschr. f. Biol. Vol. 21. 1885. p. 603.
|
|
|
[S. 133]
109.
|
Certes, A., Sur la glycogenèse chez les
Infusoires. In: Compt. rend. Ac. Paris. Vol. 90. 1880. p. 77.
|
|
110.
|
a) Maupas, E., Sur la glycogène chez les
Infusoires ciliés. In: Compl. rend. Ac. Paris. Vol. 101. 1885. p. 1504.
|
|
b) — Sur les granules amylacées du cytosoma des
Grégarines. Ibid. Vol. 102. 1886. p. 120.
|
|
|
111.
|
Meyer, Arth., Orientierende Untersuchungen über
Verbreitung, Morphologie und Chemie des Volutins. In: Botan. Ztg.
Vol. 62. 1904. p. 113.
|
|
Dazu noch die Angaben in No. 1 (S. 67), No. 60, 62, 63, ferner No. 66, 70, 98a, 100a und 105 (S. 130 und 132). |
|
|
5. Exkretion.
|
|
|
112.
|
Siehe Literaturzusammenstellung in Fürth. p. 269 (s. No.
60 dieser Liste).
|
|
112a.
|
Degen, A., Untersuchungen über die kontraktile
Vakuole und die Wabenstruktur des Protoplasmas. In: Bot. Zeitg. Vol. 63.
Abt. 1. 1905. p. 163 ff.
|
|
112b.
|
Kanitz, A., Der Einfluß der Temperatur auf die
pulsierenden Vakuolen der Infusorien und die Abhängigkeit biologischer
Vorgänge von der Temperatur überhaupt. In: Biolog. Centralbl. Vol. 27.
1907. p. 11.
|
|
113.
|
Schewiakoff, W., Ueber die Natur der sogenannten
Exkretkörner der Infusorien. In: Zeitschr. wiss. Zoologie. Vol. 57.
1894. p. 32.
|
|
114.
|
Schubotz, Beiträge zur Kenntnis der Amoeba
blattae u. A. proteus. In: Arch. f. Protistenkde. Vol. 6. 1905. p. 1.
|
|
6. Sekrete und Pigmente.
|
|
|
115.
|
|
|
7. Bewegung der Protozoen.
|
|
|
116.
|
Bernstein, J., Chemotropische Bewegungen
eines Quecksilbertropfens. In: Arch. f. d. ges. Physiol. Vol. 80. 1900. p.
628.
|
|
117.
|
Berthold, G., Studien über Protoplasmamechanik.
Leipzig 1886.
|
|
118.
|
Bütschli, O., Untersuchungen über mikroskopische
Schäume und das Protoplasma. Leipzig 1892.
|
|
118a.
|
Hirschfeld, L., Versuch, einige
Lebenserscheinungen der Amöben physikalisch-chemisch zu erklären. In:
Zeitschr. f. allg. Physiol. Vol. 9. 1909. p. 529.
|
|
119.
|
Jennings, H. S., The movements and reactions of
Amoeba. In: Contributions to the study of the behaviour of lower organisms.
Washington 1904. p. 129.
|
|
120.
|
Jensen, P., Untersuchungen über
Protoplasmamechanik. In: Arch. f. d. ges. Physiol. Vol. 87. 1901. p. 361.
|
|
121.
|
— Die Protoplasmabewegung. In: Ergebn. d. Physiol. Vol. 1.
1902. p. 42.
|
|
122.
|
Kühne, W., Untersuchungen über das Protoplasma
und die Kontraktilität. Leipzig 1864.
|
|
123.
|
Quincke, G., Ueber periodische Ausbreitung von
Flüssigkeitsoberflächen und dadurch hervorgerufene Bewegungserscheinungen.
In: Sitzber. K. Pr. Ak. Berlin. Vol. 34. 1888. p. 791.
|
|
124.
|
Rhumbler, L., Physikalische Analyse von
Lebenserscheinungen der Zelle. I. Arch. f. Entw.-Mech. d. Org. Vol.
7. 1898. p. 103.
|
|
125.
|
— Der Aggregatzustand und die physikalischen
Besonderheiten des lebenden Zellinhaltes. In: Zeitschr. f. allg. Physiol.
Vol. 1. 1902. p. 279; Vol. 2. 1902. p. 183.
|
|
126.
|
Verworn, M., Die Bewegung der lebendigen Substanz.
Jena 1892.
|
|
8. Reize.
|
|
|
127.
|
Aderhold, R., Beitrag zur Kenntnis richtender
Kräfte bei der Ortsbewegung niederer Organismen. In: Jen. Zeitschr. f.
Nat. Vol. 22. 1888. p. 310.
|
|
127a.
|
Carlgren, O., Der Galvanotropismus und die innere
Kataphorese. In: Zeitschr. f. allg. Physiol. Vol. 5. 1905. p. 123.
|
|
128.
|
Davenport, C. B., and Carmon, W. B., On
the determination of the direction and rate of movement of organisms by
light. In: Journ. of Physiol. Vol. 21. 1897.
|
|
129.
|
Engelmann, Th. W., Ueber Licht- und
Farbenperzeption niederster Organismen. In: Arch. f. d. ges. Physiol. Vol.
29. 1882. p. 387.
|
|
130.
|
Francé, R., Zur Morphologie und Physiologie der
Stigmata der Mastigophoren. In: Zeitschr. wiss. Zool. Vol. 56. 1893.
p. 138.
|
|
[S. 134]
131.
|
— Experimentelle Untersuchungen über Reizbewegungen und
Lichtsinnesorgane der Algen. In: Zeitschr. f. d. Ausbau der
Entwicklungslehre. Vol. 2. 1908.
|
|
132.
|
Harrington, N. R., u. Leaming, E., The
reaction of Amoeba to light of different colors. In: Amer. Journ. Physiol.
Vol. 3. 1900. p. 9.
|
|
133.
|
Holmes, S. J., Phototaxis in Volvox. In: Biolog.
Bulletin of the Marine Biolog. Labor. Woodshall. Vol. 4. 1903. p. 319.
|
|
134.
|
Holt und Lee, Ueber Volvox. In: Amer.
Journ. of Physiol. Vol. 4. (Nach Oltmanns.)
|
|
135.
|
Jennings, H. S., Contributions to the study of the
behaviour of lower organisms. Washington. Carnegie Inst. 1904 (daselbst
sind die früheren Arbeiten des gleichen Autors zitiert).
|
|
136.
|
Loeb, J., Zur Theorie der physiologischen Licht-
und Schwerkraftwirkungen. In: Arch. f. d. ges. Physiol. Vol. 66. 1897. p.
439.
|
|
137.
|
— Concerning the theory of tropisms. In: Journ. of
experim. Zoolog. Vol. 4. 1907. p. 151 (daselbst ist frühere Literatur des
gleichen Autors zitiert).
|
|
138.
|
Massart, J., Recherches sur les organismes
inférieurs. In: Bull. de l’Acad. Belg. Sér. 3. Vol. 12. 1891.
|
|
138a.
|
Mast, S. O., Reactions in Amoeba to light. In:
Journ. exper. Zool. Vol. 9. 1910. p. 265.
|
|
139.
|
Mendelssohn, Maurice, Recherches sur la
thermotaxie des organismes unicellulaires. In: Journ. Physiol. et Pathol.
gén. Vol. 4. 1902. p. 393.
|
|
140.
|
— Recherches sur l’interférence de la thermotaxie avec
d’autres tactismes et sur le méchanisme du mouvement thermotactique. Ibid.
p. 475.
|
|
141.
|
— Quelques considérations sur la nature et le rôle
biologique de la thermotaxie. Ibid. p. 489.
|
|
142.
|
Ostwald, Wolfg., Zur Theorie der
Richtungsbewegungen schwimmender niederer Organismen. In: Arch. f. d. ges.
Physiol. Vol. 95. 1903. p. 23.
|
|
143.
|
Oltmanns, F., Ueber die photometrischen
Bewegungen der Pflanzen. In: Flora. Vol. 75. 1892. p. 183.
|
|
144.
|
— Ueber positiven und negativen Heliotropismus. In:
Flora. Vol. 88. 1897. p. 1.
|
|
144a.
|
Pearl, R., Studies on electrotaxis. In: Amer.
Journ. Physiol. 1901.
|
|
145.
|
Pfeffer, W., Ueber chemotaktische Bewegungen von
Bakterien, Flagellaten und Volvocineen. In: Unters. Botan. Inst. Tübingen.
Vol. 2. 1888. p. 582.
|
|
146.
|
Pütter, A., Studien über Thigmotaxis bei
Protisten. In: Arch. f. Anat. u. Physiol. Physiol. Abt. Suppl.-Bd. 1900.
p. 243.
|
|
147.
|
Radl, E., Untersuchungen über den Phototropismus
der Tiere. Leipzig 1903.
|
|
148.
|
Rothert, W., Beobachtungen und Betrachtungen über
taktische Reizerscheinungen. In: Flora. Vol. 88. 1901. p. 371.
|
|
149.
|
Stahl, E., Zur Biologie der Myxomyceten. In:
Botan. Ztg. Vol. 40. 1884. p. 146, 162, 187.
|
|
149a.
|
Statkewitsch, P., Galvanotropismus und
Galvanotaxis der Ciliata. Mitteil. 1–4. In: Zeitschr. f. allg. Physiol. I.
Vol. 4. 1904. p. 296; II u. III. Vol. 5. 1905. p. 511; IV. Vol. 6. 1907.
p. 13.
|
|
150.
|
Strasburger, E., Wirkung des Lichtes und der
Wärme auf Schwärmsporen. In: Jenaische Zeitschr. N. F. Vol. 12. 1878.
p. 551. Auch selbständig Jena 1878.
|
|
151.
|
Verworn, M., Psychophysiologische Protistenstudien.
Jena 1889.
|
|
152.
|
— Die polare Erregung der Protisten durch den
galvanischen Strom. In: Arch. f. d. ges. Physiol. Vol. 46. 1890. p. 281;
Vol. 65. 1897. p. 47.
|
|
153.
|
Wager, H., On the eyespot und flagellum of
Euglena viridis. In: Journ. Linn. Soc. London. Zool. Vol. 27. 1900.
p. 463.
|
|
154.
|
Wallengren, H., Zur Kenntnis der Galvanotaxis. In:
Zeitschr. f. allg. Physiol. Vol. 2. 1902. p. 341; Vol. 2. 1903. p. 516;
Vol. 3. 1903. p. 22.
|
|
Dazu ferner die No. 1, 6, 7 des Literaturverzeichnisses auf S. 67 und die No. 60 bis 64, 68 dieses Verzeichnisses. |
|
[6] Der Ausdruck „Assimilation“ ist wegen der unklaren Vorstellungen, welche historisch an ihm haften und leicht Verwirrungen stiften können, absichtlich vermieden.
[7] „Ein Paramaecium von 250 µ Körperlänge vermag ein Gewicht von 0,00158 mg noch zu heben, d. h. etwa das 9-fache seines eigenen Körpergewichts.“ Um 1 mg zu heben, bedarf es der Kraft von etwa 600 Paramäcien (nach Jensen).
[8] Angaben über die Schnelligkeit der Bewegungen von Ciliaten und Flagellaten gibt es sehr wenige, da diese Formen infolge der großen Variationen im Bewegungstempo Beobachtung und Beurteilung sehr erschweren.
[9] Doch sind auch Fälle bekannt, in denen durch bedeutende Reizung der Lichtintensität das vorher der Lichtquelle zustrebende Tier umgewandelt wurde in ein solches, welches die Lichtquelle floh; vgl. die Versuche von Stahl an Euglena.
[10] Aehnlich wirkt nach Nowikoff Schilddrüsen- und Nebennierenextrakt in bestimmter Konzentration.
[S. 135]
III. Die Fortpflanzung der Protozoen.
I. Teilung bei den Protozoen
A. Die Teilung des Körpers.
Die typische Vermehrungsweise der Protozoen ist die Zweiteilung. Wie die Zellen der Metazoen, so teilen sich die meisten Protozoenzellen unter bestimmten Bedingungen, indem aus dem einen Muttertier unter Durchschnüren des Protoplasmaleibes und des Zellkerns zwei etwa halb so große Tochtertiere hervorgehen. Im einfachsten Fall liefert die Teilung zwei dem Muttertier vollkommen ähnliche Tochtertiere, und der Fortpflanzungsakt ist damit abgeschlossen; in den meisten Fällen sind aber ergänzende Neubildungsvorgänge notwendig, um die Tochtertiere in allen ihren Teilen den Muttertieren ähnlich zu machen.
Das morphologische Bild der Teilung bei den Protozoen ist bedingt durch den Bau des sich teilenden Individuums; infolgedessen finden wir eine außerordentlich große Mannigfaltigkeit der Teilungserscheinungen. Prinzipiell haben wir aber immer den gleichen Vorgang festzustellen, wobei der wichtigste Unterschied in den Massenverhältnissen der Teilungsprodukte zu erblicken ist. Danach unterscheiden wir Teilung und Knospung.
Während bei der Teilung gleich große Teilungsprodukte entstehen, trennt sich bei der Knospung ein kleineres Tochterindividuum von einem größeren Mutterindividuum.
Als multiple Teilung bezeichnen wir einen Vermehrungsvorgang, bei welchem der ganze Körper eines Mutterindividuums in mehrere bis viele Tochterindividuen zerfällt.
Bei der multiplen Knospung gehen aus einem bei dem Vermehrungsvorgang zurückbleibenden Mutterorganismus mehrere bis viele in der Regel kleinere Tochterindividuen hervor.
Die Vermehrungsvorgänge führen zu ganz verschiedenen Teilungs- oder Knospungsbildern — je nachdem es sich um Protozoen mit oder ohne konstante Eigenform handelt.
Bei den Protozoen ohne konstante Eigenform geht die Vermehrung im frei beweglichen Zustand oder im ruhenden Zustand (innerhalb einer Cyste) vor sich. Als Beispiel der Zweiteilung in beweglichem Zustand wähle ich eine Teilung einer einkernigen Amöbe (Fig. 132). In der Amöbe teilt sich, während die Pseudopodienbildung ihren Fortgang nimmt, zunächst der Kern in zwei Tochterkerne. Schon während des Kernteilungsvorgangs spricht sich eine Polarität am Amöbenkörper aus, indem an zwei entgegengesetzten Polen, entsprechend der Achse der Kernteilungsfigur, lebhaftere Pseudopodienbildung beginnt, [S. 136]während sie im äquatorialen Teil des Tieres sich vermindert. Nach vollzogener Kernteilung zerschnürt sich allmählich der Plasmaleib in zwei Tochterhälften, indem die beiden polaren um je einen Tochterkern angesammelten Teile mit Hilfe ihrer Pseudopodien nach verschiedenen Richtungen kriechen. Dabei bleiben sie zuletzt durch einen dünnen Plasmafaden verbunden, welcher schließlich durchreißt. Die kontraktile Vakuole gerät dabei in eine beliebige Hälfte, in der anderen bildet sich schon vor der Durchtrennung eine neue.
Manche Protozoen ohne konstante Eigenform nehmen bei der Teilung vorübergehend eine Eigenform an; ihnen schließen sich die in der Cyste sich teilenden Formen an.
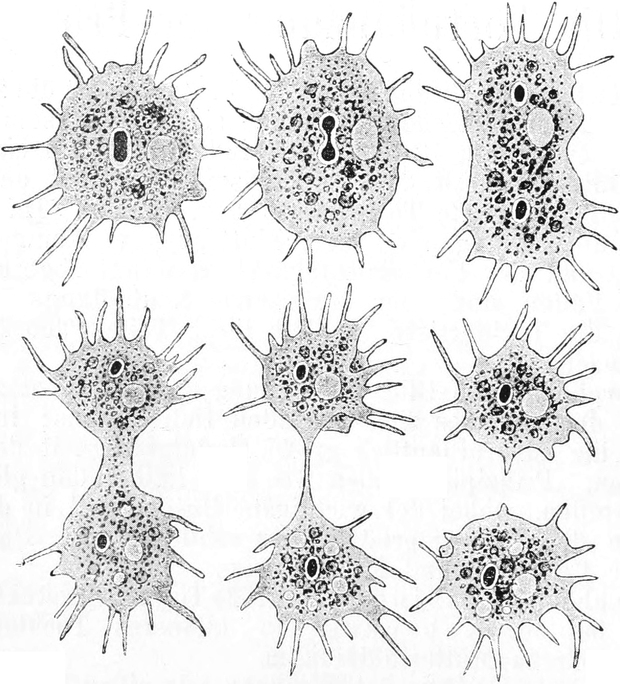
Die der gewöhnlichen Amöbenteilung entsprechende Form der Knospung ist z. B. bei Entamoeba histolytica beobachtet worden; sie unterscheidet sich von der Teilung nur dadurch, daß das eine Tochtertier viel kleiner ist, als das andere.
Als Beispiel einer multiplen Teilung (ohne Encystierung) bei einem Protozoon ohne konstante Eigenform wähle ich Plasmodium vivax. In dem beweglichen Plasmakörper vermehrt sich der Kern durch Teilung; wenn eine größere Anzahl von Tochterkernen (12–24) vorhanden ist, zerfällt das Tier in entsprechend viele Sprößlinge, indem sich um jeden Kern eine Portion Plasma sondert, und indem durch von außen nach innen eindringende Furchen eine Durchtrennung erfolgt (Fig. 133).
Multiple Knospung kommt bei Rhizopoden und amöboïd beweglichen Sporozoen vor. Sehr charakteristisch ist sie z. B. bei den [S. 137]vielkernigen Myxosporidien. Es wölben sich da Partien des Plasmas in eigenartiger Weise vor, indem sie bruchsackartig hervorquellen. Jede solche Knospe ist mehrkernig und löst sich unter Erscheinungen los, welche den Vorgängen bei der gewöhnlichen Teilung und Knospung amöboïder Organismen entsprechen (s. Fig. 135).
Die Protozoen mit konstanter Eigenform zeigen stets eine polare Differenzierung im Bau ihres Körpers. Diese Polarität ermöglicht es, bei ihnen eine Hauptachse des Körpers zu unterscheiden, welche bei den beweglichen Formen parallel ist oder zusammenfällt mit der Bewegungsachse bei geradliniger Bewegung.
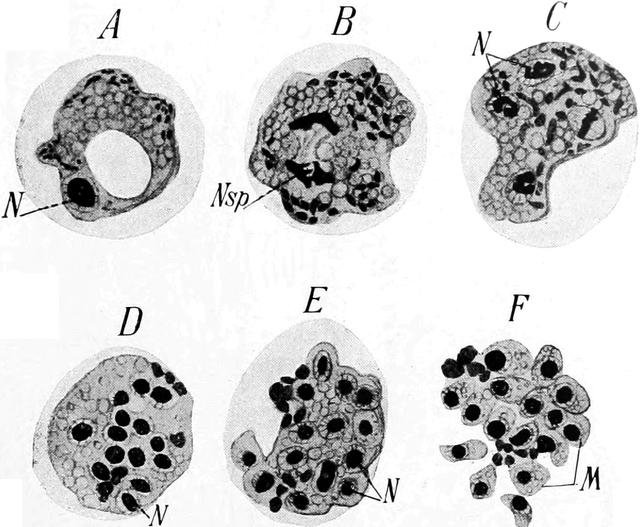
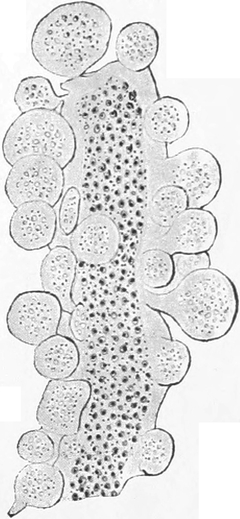
Im Verhältnis zu dieser Hauptachse kann die Zweiteilung entweder als Querteilung oder als Längsteilung erfolgen. Bei der Querteilung zerfällt der Körper in zwei Hälften, wobei die Trennungsebene senkrecht auf der Hauptachse des Körpers steht; bei der Längsteilung liegt die Hauptachse in der Teilungsebene selbst. Im ersteren Fall wird die Halbachse halbiert, im letzteren entstehen zwei neue untereinander und mit der alten gleich lange Hauptachsen.
Die Querteilung ist allgemein verbreitet bei den Ciliaten und bei vielen Rhizopoden. Sie ist unter den niederen Mikroorganismen bei den Bakterien ganz allgemein vorherrschend.
Die Längsteilung ist die typische Teilungsform bei den Flagellaten, bei manchen Rhizopoden und besonders deren geißeltragenden Stadien. Längsteilung ist auch bei den Spirochäten festgestellt worden.
[S. 138]
Die Querteilung schließt sich im einfachsten Fall ziemlich eng an die oben geschilderte Zweiteilung der Protozoen ohne konstante Eigenform an. In der äußeren Erscheinung erinnert sie durchaus an den Teilungsprozeß der ebenfalls mit starrer Form ausgestatteten Bakterien. Durch eine Querfurche erfolgt die Zerlegung in zwei Tochtertiere, wobei Protoplasma- und Kernmaterial des Muttertieres auf beide verteilt wird (Fig. 136). Der Vorgang wird aber durch eine polare Differenzierung des Tieres kompliziert.
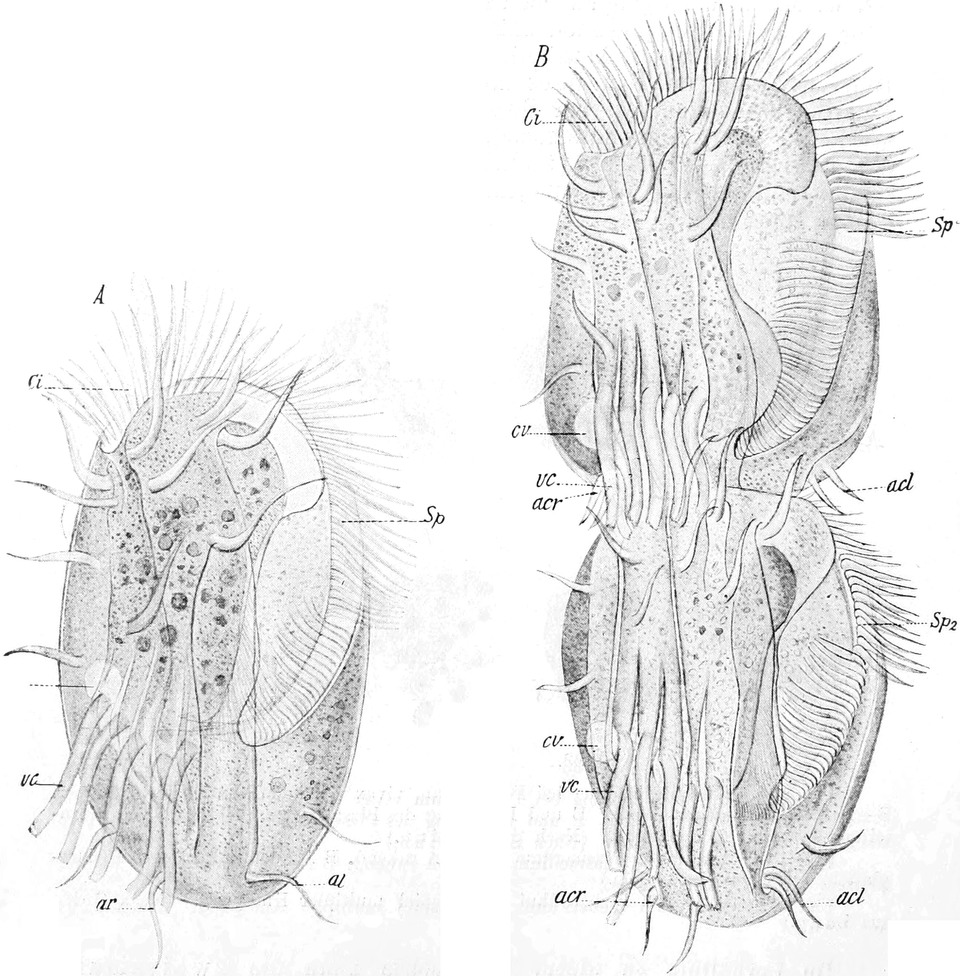
Schon bei den Amöben sahen wir, daß das eine Tochtertier eine neue Vakuole bilden mußte. Bei den polar differenzierten Protozoenkörpern muß nach der Querteilung viel mehr neugebildet werden: das eine Tier muß ein neues Vorderende und das andere ein neues Hinterende bilden. Und je nach der Höhe der Differenzierung kann sich der Neubildungsvorgang auf eine große Anzahl kompliziert gebauter Organellen erstrecken: kontraktile Vakuole, Mundöffnung mit ihren Hilfsapparaten, Bewegungsorganellen der verschiedensten Art, [S. 139]Panzer- oder sonstige Skelettbildungen usw. Zur Veranschaulichung diene die Abbildung von Euplotes harpa, einem kompliziert gebauten hypotrichen Infusor.
Zu diesen Neubildungsprozessen kommen aber ferner noch sehr eigenartige Resorptions- und Umschmelzungsvorgänge, durch welche alte Organellen eingeschmolzen und neugebildet werden, und zwar in derart verkleinerten Dimensionen, daß sie zur Größe der kleiner gewordenen Tochtertiere im richtigen Verhältnis stehen.
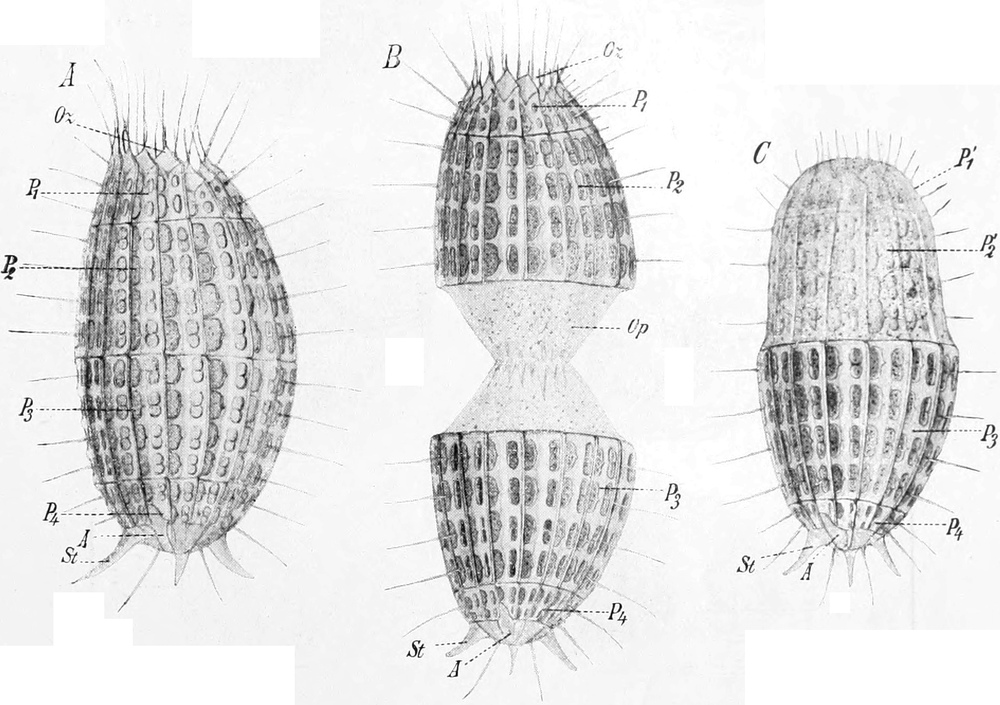
Wir sehen, daß die Fortpflanzung durch Zweiteilung bei den Protozoen ein sehr komplizierter Prozeß sein kann, welcher dem Verständnis viel größere Schwierigkeiten bereitet, als man früher glaubte.
Einen bedeutenden Einfluß auf den Ablauf der Teilung hat die Beschaffenheit der Körperhülle. Wenn eine zum lebenden Körper gehörige Hülle z. B. in Form einer Pellicula vorhanden ist, so wird diese mit dem Zellleib geteilt und an den Stellen, an denen sie infolge des Teilungsvorganges fehlt, ergänzt. Eine geeignete Illustration dieser Erscheinung bietet die Teilung des gepanzerten Infusors Coleps hirtus, dessen Panzer eine pelliculare Bildung ist. Da werden von den vier Reihen von Panzerplatten je zwei auf jedes Tochtertier verteilt und die fehlenden werden dann neugebildet (Fig. 137 A–C).
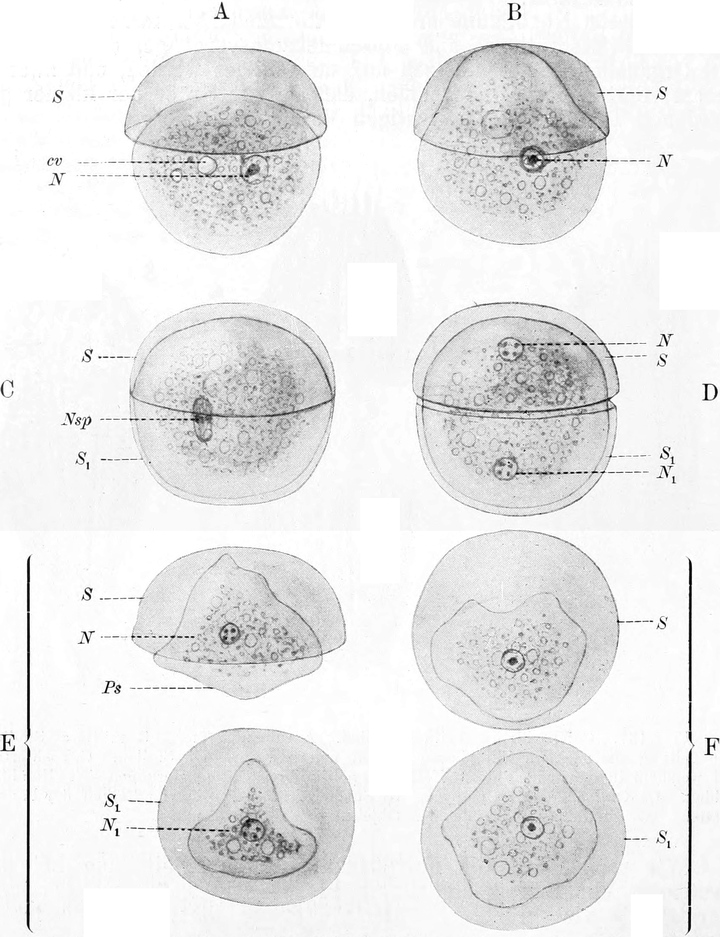
Bei Formen mit Schalenbildung oder leblosem Außenskelett muß bei der Teilung ein anderer Modus eingeschlagen werden. Bei den [S. 140]Süßwasserthalamophoren z. B. strömt ein Teil des Körperplasmas aus der Schalenöffnung hervor und bildet eine neue Schale. Besteht dieselbe aus fein verteiltem organischen Material, so entsteht sie durch einen plötzlichen Absonderungsvorgang und hat sofort ihre definitive [S. 142]Größe (Pyxidicula, Fig. 138). Besteht sie aus zahlreichen Elementen, entweder vom Tierkörper abgeschiedenen Plättchen oder aufgesammelten Fremdkörpern, so kann die Abscheidung allmählich erfolgen. Während die Plasmamasse aus der Mündung der Schale hervorfließt und langsam die Form des Tochtertieres annimmt, ordnen sich die Schalenelemente auf ihrer Oberfläche zur Tochterschale an. Erst wenn diese fertig ist, erfolgt die Zweiteilung als Querteilung (Fig. 139.)
Einen ganz anderen Weg zum gleichen Ziel schlagen Formen ein, wie Microgromia socialis oder die in einer kieseligen Gitterkugel eingeschlossene Heliozoe Clathrulina elegans, welche innerhalb ihres Skeletts sich teilen: nach der Teilung bleibt nur das eine Individuum, gleichsam das Muttertier, in seiner Schale zurück, während das andere als (meist geißeltragender) Schwärmsprößling die Hülle verläßt, um erst später ein eigenes neues Skelett abzusondern (Fig. 140 A–C).
In gewissen Sinn leiten die letztgenannten Vermehrungsformen zur Knospung über (s. unten).
Die Längsteilung bei den Protozoen mit beständiger Form scheint in einer engen Beziehung zur Ausbildung von Geißeln und entsprechenden Bewegungsorganellen zu stehen. Zwar finden wir sie bei gewissen weichschaligen Rhizopoden (Pseudodifflugia Fig. 141, Cochliopodium), vor allen Dingen charakteristisch ist sie aber für die Flagellaten und die geißeltragenden Stadien von anderen Protozoen. Wir sehen bei solchen fast immer den ganzen Bewegungsapparat des Tieres sich zuerst verdoppeln, worauf der Länge nach eine Spaltung der Individuen erfolgt. Diese pflegen zuletzt noch mit den Hinterenden zusammenzuhängen, wobei ihre nach entgegengesetzten Enden wirkenden Bewegungsapparate sie bald voneinander trennen. Trypanosomen sehen in diesen letzten Stadien der Teilung [S. 143]aus, als wären sie in einer Querteilung begriffen (Abbild. im spez. Teil). Ein genaueres Studium des ganzen Teilungsvorganges zeigt, daß diese Auffassung irrtümlich ist.
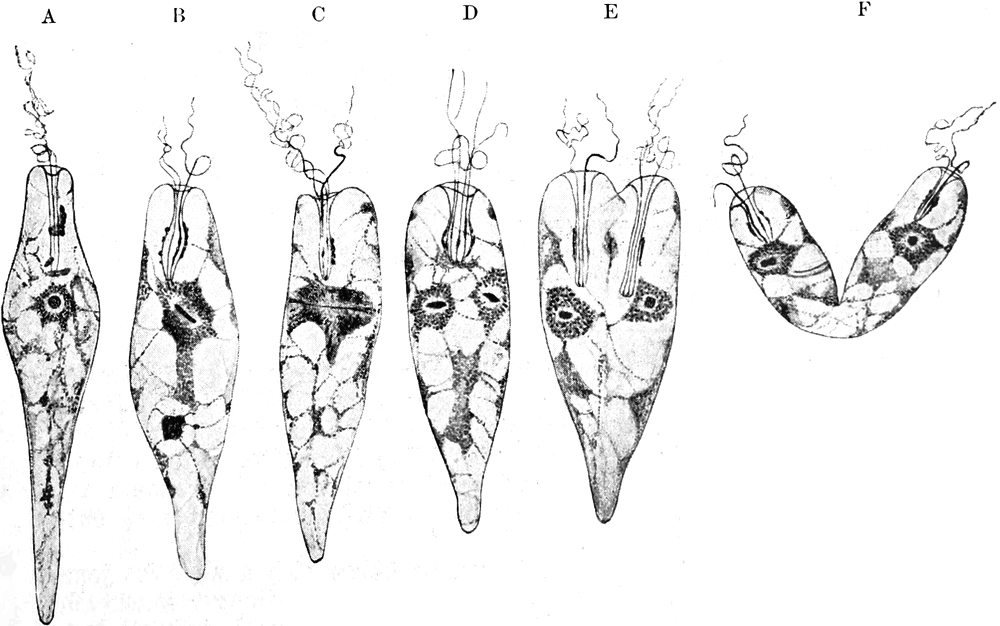
Es scheint, daß die Geißeln bei der Längsteilung nicht gespalten werden, sondern daß das eine Tochtertier von basalen Bildungen aus die fehlenden Geißeln neu bildet; eventuell geschieht solches auch bei beiden Tochtertieren, wenn eine etwaige größere Zahl von Geißeln [S. 144]gleichmäßig auf beide verteilt worden ist, so z. B. wenn bei der Teilung einer viergeißeligen Form jedes Tochtertier 2 Geißeln erhält und 2 neu bilden muß.
Aehnlich verläuft der Längsteilungsvorgang bei Flagellaten der verschiedensten Gruppen, z. B. Monas guttula, Euglena viridis, Codosiga botrytis (Eutreptia viridis Fig. 142), wobei ähnlich wie bei den Querteilungsvorgängen weitgehende Neubildungen vorkommen.
Multiple Teilung kommt besonders häufig bei Protozoen mit starren Hüllen, Skeletten oder Gehäusen vor. Gewöhnlich verhindert ein komplizierter Bau dieser Gebilde eine häufige Aufeinanderfolge von gewöhnlichen Zweiteilungen. Dann pflegt statt dessen eine multiple Teilung den Plasmakörper in zahlreiche Sprößlinge zu zerlegen, die sämtlich das Hüllgebilde, welches leer zurückbleibt, verlassen. Eine solche multiple Teilung pflegt in der Weise vor sich zu gehen, daß der Kern des betreffenden Protozoons durch irgendeinen Vermehrungsmodus zahlreiche Kerne aus sich hervorgehen läßt; um jeden derselben sondert sich eine Plasmaportion, welche sich in einen Schwärmsprößling umwandelt; dieser ist mit Bewegungsorganellen ausgestattet, welche es ihm ermöglichen, den Ort seiner Entstehung zu verlassen.
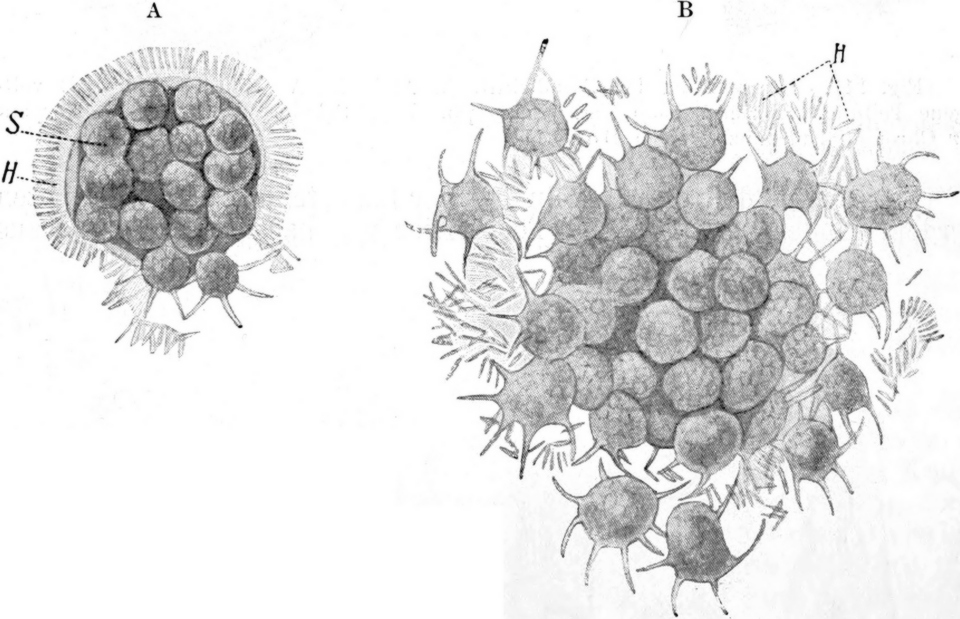
Derartige multiple Teilung ist bei Foraminiferen und Radiolarien verbreitet und führt sowohl zur Bildung von gewöhnlichen Individuen als auch von Gameten. Als Beispiel sei Trichosphaerium Sieboldi angeführt (vgl. Fig. 143); von Radiolarien bilde ich weiter unten eine in multipler Vermehrung befindliche Zentralkapsel von Sphaerozoum ab. Auch bei Sporozoen, besonders Coccidien und Gregarinen sind entsprechende Vorgänge häufig.
Mit diesen Vermehrungsvorgängen berühren sich ganz nahe jene Fortpflanzungsformen, bei denen gewöhnliche Zweiteilungen innerhalb einer Cyste oder sonstigen Hülle in größerer Anzahl aufeinanderfolgen. Als Beispiel dieser in allen Abteilungen als Anpassung an besondere Lebensverhältnisse häufig vorkommenden Vermehrungsart [S. 145]führe ich an: von Flagellaten Polytoma uvella, von Ciliaten Colpoda cucullulus und Ichthyophthirius multifiliis.
Die Knospung bei Protozoen mit konstanter Eigenform ist besonders dadurch charakteristisch, daß die Knospen in ihrem äußeren Aussehen gewöhnlich gar keine Aehnlichkeit mit dem Muttertier besitzen und erst im Laufe der Zeit alle jene Differenzierungen herausbilden, welche jenem eigentümlich sind. Die Entwicklungsgeschichte kann beginnen, noch ehe die Knospe vom Muttertier losgelöst ist, sie kann aber auch erst viel später einsetzen. Prinzipiell haben wir denselben Vorgang, wie wir ihn bei den Neubildungen nach der Teilung z. B. bei Euplotes (Fig. 136, S. 138) oben kennen lernten, nur macht er bei solchen Knospungen einen viel größeren Eindruck, weil die Knospen oft ganz undifferenziert sind und sehr komplizierte Bildungen an sich entstehen lassen müssen, um dem Muttertier ähnlich zu werden. Als Beispiel sei die Knospung des ciliaten Infusors Spirochona gemmipara angeführt, dessen Spiraltrichter und Haftscheibe von der Knospe ganz neugebildet werden müssen (s. auch unten bei Entwicklungsgeschichte).
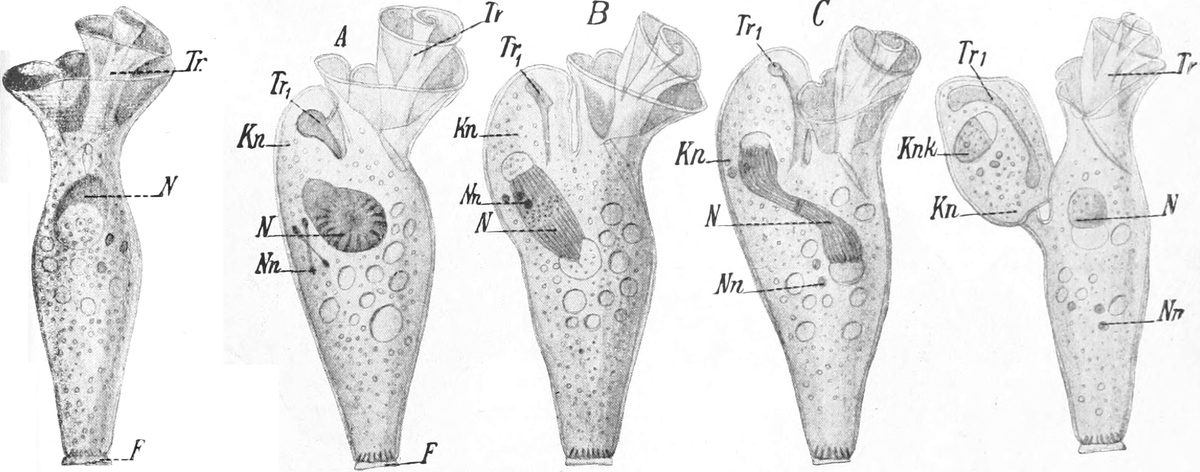
Aehnliches liegt bei der Knospung der Suctorien vor, wo oft sehr schwer verständliche Bilder dadurch entstehen, daß die Knospen nicht frei vom Körper des Muttertieres emporragen, sondern in eine Bruthöhle eingeschlossen sind. Eine solche entsteht, indem sich die knospende Region allmählich in den Körper des Muttertieres einsenkt, wobei die umgebenden Partien die Knospe vollkommen umwallen, so daß ihr nur eine kleine Oeffnung zum Ausschlüpfen bleibt (Fig. 145). Multiple Knospung führt in ganz analoger Weise statt zur Bildung einer einzigen Knospe zur Bildung von mehreren oder vielen auf einem Mutterkörper. Das ciliate Infusor Kentrochonopsis multipara und die Suctorie Podophrya gemmipara illustrieren uns diese Verhältnisse (Fig. 146). Bei Suctorien kommt auch multiple Knospung innerhalb von Bruträumen vor.
[S. 146]
In manchen Fällen sind die Knospen größer als die Mutterkörper. Durch fortgesetztes Knospen können letztere schließlich so klein werden, daß sie nicht mehr fähig sind, am Leben zu bleiben.
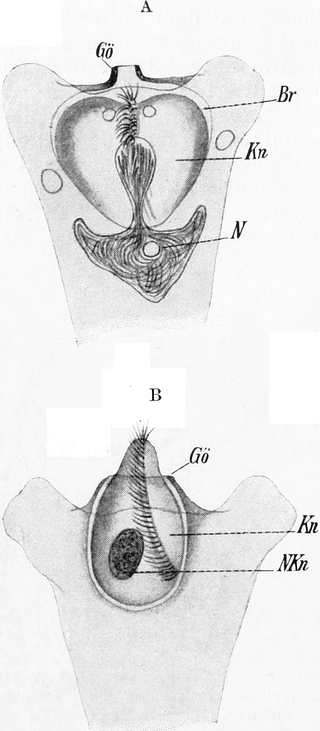
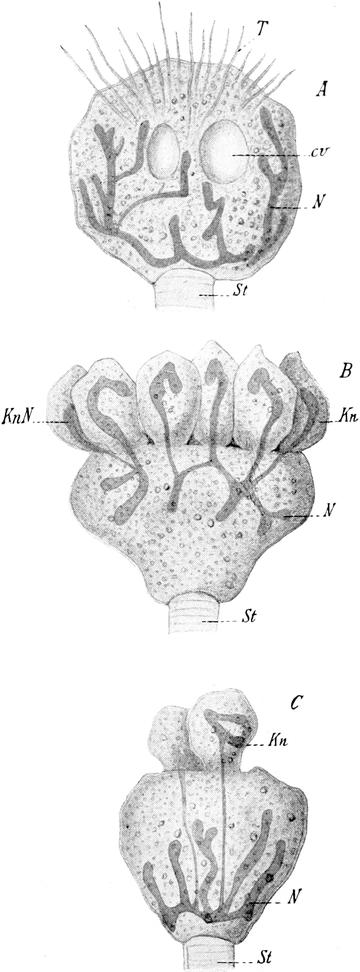
Theoretisch von Wichtigkeit ist die Tatsache, daß unter Umständen durch Knospung sich fortpflanzende Protozoen, ohne sich zu vermehren, ihren ganzen Körper nach Art einer Knospe in einen Schwärmer verwandeln können, welcher davonschwimmt, um einen anderen Ort zur Festsetzung aufzusuchen.
[S. 147]
B. Plasmotomie.
Bei dieser Schilderung der Vermehrungsvorgänge ist zur Aufstellung von Gruppen ausschließlich auf die Massen- und Formverhältnisse des Plasmaleibes Rücksicht genommen. Unter Umständen kann es auch von Bedeutung sein, zu unterscheiden zwischen den Vermehrungsvorgängen, welche aus einem einkernigen Tier einkernige Sprößlinge hervorgehen lassen, und zwischen solchen, bei welchen sich ein mehrkerniger Körper in verschiedene mehrkernige Teilstücke zerlegt. Diesen letzteren Vorgang, welcher zelltheoretisch zu besonderen Ueberlegungen Anlaß gibt, bezeichne ich als Plasmotomie. Als Beispiel diene die plasmotomische Teilung von Chloromyxum Leydigi (Fig. 147) und die plasmotomische Knospung bei Myxidium Lieberkühni (Fig. 135, S. 137); beide Vermehrungsformen kommen nach Schaudinn auch bei Trichosphaerium Sieboldi vor.
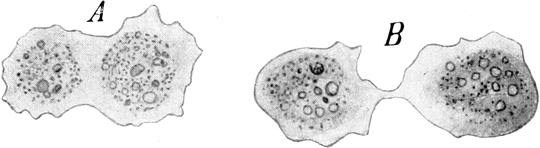
Die Plasmotomie ist eine Teilungsart, bei welcher die Teilung des Körpers ohne direkten Zusammenhang mit der Kernteilung erfolgt. Sie erinnert dadurch an die Teilungs- und Knospungsvorgänge bei vielzelligen Tieren.
Einen theoretisch sehr wichtigen und interessanten Gegensatz hierzu bilden jene vielkernigen Protozoen, bei denen sich sämtliche Kerne ganz genau gleichzeitig teilen (manchmal ohne sogleich zu einer Plasmateilung zu führen).
C. Die Kernteilung bei den Protozoen.
Bei der Körperteilung der Protozoen werden die meisten Zellbestandteile in der Regel auf die Tochtertiere verteilt, ohne in ihrem individuellen Aufbau geteilt worden zu sein. Der reguläre Typus der Teilung ist aber stets von einer Teilung des Kerns begleitet. Dieselbe geht oft der Teilung des Körpers mehr oder weniger weit voraus, manchmal erfolgen auch die Teilungserscheinungen am Zellleib und am Kern ungefähr gleichzeitig (vgl. Fig. 148 Ciliat). Für eine Anzahl von Fällen ist schließlich nachgewiesen, daß Teilungserscheinungen am Zellleib sich einstellen, ehe am Kern Vorbereitungen zu solchen erkennbar sind (vgl. Fig. 138 und 139 Pyxidicula und Euglypha).
Während die Kernteilung bei den Metazoen nur prinzipiell geringfügige Verschiedenheiten bei den einzelnen Formen erkennen läßt, ist bei den Protozoen eine Fülle von verschiedenartigen Teilungstypen beschrieben worden. Diese Mannigfaltigkeit hat Anlaß zu theoretischen Deutungen gegeben, welche vor allem in dieser Verschiedenheit die einzelnen Schritte der phylogenetischen Entwicklung der mitotischen Kernteilung wiederzufinden glauben.
[S. 148]
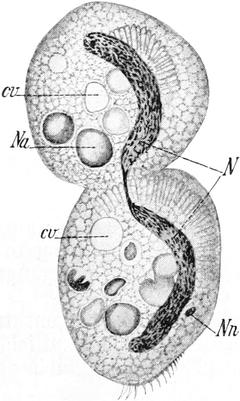
Unsere Kenntnisse über diesen Gegenstand sind aber noch nicht genügend groß und vertieft, um eine gut begründete Theorie aufzustellen. Mir scheint es gegenwärtig nur möglich, einen Zusammenhang zwischen dem Bau des ruhenden Kerns und der Art der Kernteilung festzustellen. Mit der Höhe der Differenzierung im ruhenden Kern steigt die Komplikation der Kernteilungserscheinungen. Ob daraus auf einen kausalen Zusammenhang zu schließen ist, kann noch nicht mit Sicherheit gesagt werden. — Die bei den Metazoen so deutlich geschiedenen Teilungsformen des Kerns, die Amitose und die Mitose, sehen wir bei den Protozoen vielfach durch Uebergänge miteinander verbunden, so daß wir oft nicht sagen können, ob wir eine komplizierte Amitose oder eine vereinfachte Form der Mitose vor uns haben. Ich gruppiere daher die Beschreibung der Teilungserscheinungen bei den Protozoen nicht nach diesen Gesichtspunkten, sondern nach dem Bau der ruhenden Kerne, wie er oben (S. 18) dargestellt wurde. Wir betrachten zuerst die einfache Zweiteilung, dann die multiple Teilung, und im Anschluß daran die einfache und multiple Knospung. Ich möchte aber nicht unterlassen hervorzuheben, daß nach meiner eigenen Ansicht die Unterschiede im Aussehen des ruhenden Kerns wie auch in den Teilungsbildern hauptsächlich auf dem Massenverhältnis der leicht- und dickflüssigen Substanzen in den Kernen beruhen. Je reicher ein Kern an dickflüssigen Substanzen (Chromatin und Nukleolarsubstanz) und je ärmer er an leichtflüssigen Substanzen (Kernsaft und Kerngerüstsubstanz) ist, um so mehr nähert sich seine Teilungsform der Amitose. So wird das Bild des Teilungsvorgangs des Kerns durch mechanische Faktoren beherrscht, ähnlich wie das auch für die Bewegungserscheinungen der ganzen Tiere der Fall ist.
Doch sei hier auch darauf hingewiesen, daß neuerdings Hartmann theoretische Anschauungen entwickelt hat (vgl. S. 22), welche die Teilungserscheinungen der Protozoenkerne von anderen Gesichtspunkten aus einer einheitlichen Betrachtungsweise zugänglich machen sollen. Er nimmt an, daß die Kerne der niederen Protozoen sämtlich Karyosomkerne seien oder von solchen abgeleitet werden können. Sie teilen sich unter dem Einfluß des als Teilungsorgan fungierenden Centriols auf dem Wege einer primitiven Mitose, welche als „Promitose“ bezeichnet wird (vgl. Fig. 18 S. 22). Bei den massigen Kernen ist dieser Teilungsmodus nur durch die größeren Chromatinmengen verdeckt.
Die komplizierten Teilungsbilder der großen Kerne hochdifferenzierter Protozoenformen glaubt Hartmann auf deren zusammengesetzten Bau zurückführen zu können. Die „polyenergiden Kerne“, wie z. B. der des Radiolars Aulacantha (Fig. 150 u. 160), sind aus einer größeren Anzahl monoenergider Kerne zusammengesetzt, welche [S. 149]bei besonderen Vermehrungsvorgängen wieder selbständig werden können.
Diese neuen theoretischen Anschauungen sind sicher sehr interessant, sie sind aber noch nicht so weit ausgebildet, daß sie die Gesamtheit aller Kern- und Kernteilungsbilder zu erklären vermöchten. Auch sind die Tatsachen, auf welchen sie basieren, noch nicht hinreichend begründet.
Daher scheint es mir geeigneter, vorläufig die Kernteilungsbilder bei den Protozoen einzuteilen, wie ich dies bisher getan hatte, d. h. ausgehend von dem Zustand der den Kern zusammensetzenden Substanzen und dem Bau des ruhenden Kerns. Dies Einteilungsprinzip umfaßt alle Typen von Kernen, auch die von Hartmann als polyenergid aufgefaßten. Ihr Teilungsbild ist auch nur durch die erwähnten mechanischen Bedingungen beherrscht; die polyenergide Zusammensetzung wird nur durch besondere Entwicklungsperioden angedeutet, nicht durch die Teilungsvorgänge.
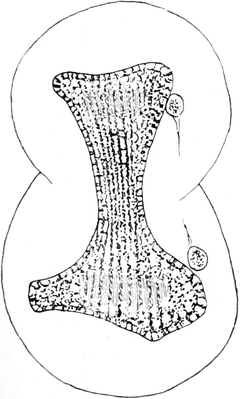
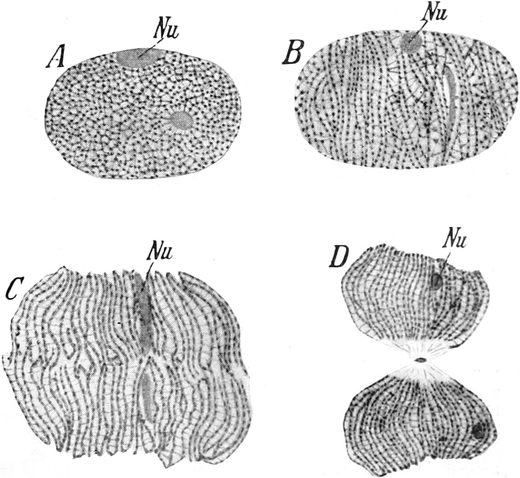
1. Teilung der massigen Kerne.
Die massigen Kerne teilen sich unter relativ sehr einfachen Erscheinungen; ihre Teilungsbilder entsprechen vielfach vollkommen der Amitose bei den Metazoen. Der Kern streckt sich — ohne daß eine wesentliche Umlagerung in seiner inneren Struktur erkennbar gewesen wäre — in die Länge; indem er in der Mitte sich einschnürt, wird er hantelförmig (Euplotes charon, Fig. 148). Nachdem er in seine beiden Hälften zerrissen ist, zieht jede Hälfte wie ein dickflüssiger Tropfen[S. 150] allmählich den Zipfel von der Durchrißstelle wieder ein und nimmt allmählich die Form wieder an, welche der Mutterkern vor der Teilung im ruhenden Zustand besaß. Die Teilung wird in der Regel eingeleitet durch eine Auflockerung im Bau und Vergrößerung des Kerns; es wird die alveolare Struktur des Achromatins deutlicher,[S. 151] die einzelnen Chromatinkörnchen werden leichter erkennbar, und indem die Alveolen eine Streckung erfahren, erscheint der ganze Kern längsstreifig (vgl. Nyctotherus, Fig. 149, und Euplotes, Fig. 148). Die etwa vorhandenen Nukleolen gelangen ungeteilt in die Tochterkerne. Sehr klar sind diese Vorgänge z. B. auch bei der Kernteilung des Dinoflagellaten Ceratium hirundinella zu verfolgen (Fig. 150). Ist eine Kernmembran oder eine ihr entsprechende verdichtete Randzone vorhanden, so bleibt dieselbe bei diesem Typus der Kernteilung in allen Phasen des Vorganges vollkommen erhalten.
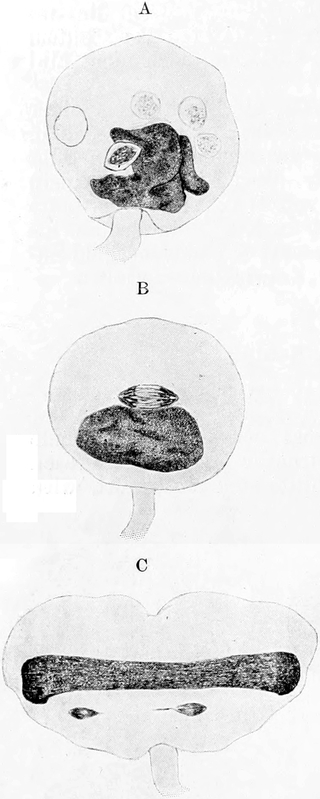
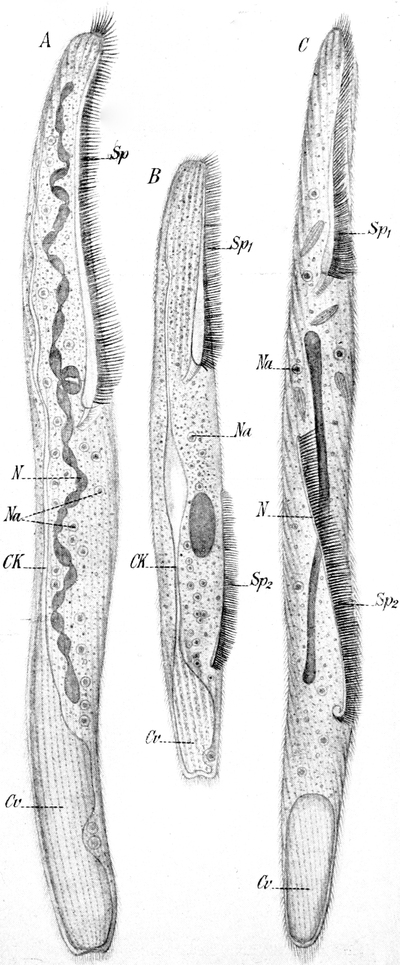
Komplizierter verlaufen die Vorgänge bei massigen Kernen von besonders eigenartigem Bau, z. B. bei verzweigten oder rosenkranzförmigen Kernen. Bei solchen erfolgt vielfach eine Kondensation der ganzen Kernmasse, so daß vor der Teilung der Kern einen ganz einfachen Umriß annimmt. Dann sind nach vollendeter Teilung Umformungsvorgänge notwendig, um den typischen Bau wieder herbeizuführen (vgl. Fig. 152 Spirostomum und Fig. 151 Carchesium).
Die Kerne, welche sich im Bau den bläschenförmigen Kernen nähern, haben auch einen etwas komplizierteren Kernteilungsmodus aufzuweisen. So der oben beschriebene Kern von Stylonychia (Fig. 10 S. 19), bei welchem die Kernspalten verschwinden, eine jede Kernhälfte vollständig durchsetzende, sehr deutliche Längsstreifung auftritt, worauf jede Hälfte des Kerns Hantelform annimmt. Dann erfolgt die Durchschnürung im Bereich des alten Verbindungsfadens zwischen den beiden Kernhälften. Nach vollendeter Teilung müssen beide Hälften eine ziemlich weitgehende Umorganisation erfahren.
Da im Bau der ruhenden Kerne alle möglichen Uebergangstypen zwischen den massigen und den bläschenförmigen Kernen existieren, so ist es verständlich, daß auch die Teilungserscheinungen zu Bildern führen, welche sehr mannigfaltig sind und alle Zwischenstufen zwischen der Mitose und der Amitose umfassen.
2. Teilung der bläschenförmigen Kerne.
Die Teilung der bläschenförmigen Kerne verläuft nach dem Typus einer einfachen oder einer komplizierten Mitose; dabei ergeben sich Verschiedenheiten bei den Kernen mit und ohne zentralen Binnenkörper.
a) Kerne ohne zentralen Binnenkörper.
Die Mitose wird stets von einer weitgehenden Umlagerung der Kernsubstanzen eingeleitet. Die Chromatinpartikel werden auf dem achromatischen Gerüst in Form von feinen Körnchen verteilt, etwaige Anhäufungen von Nukleolarsubstanz ebenfalls. Dann findet in einer äquatorialen Zone des Kerns eine Konzentrierung der färbbaren Substanz statt, während sie in den polaren Abschnitten des Kerns verschwindet. Statt dessen verdichtet sich die achromatische Substanz an den Polen des Kerns manchmal zu kompakten kappenförmigen Gebilden. In der „Aequatorialplatte“ bildet das Chromatin chromosomenähnliche Klumpen, welche sich in zwei allmählich auseinanderweichenden „Tochterplatten“ anordnen. Während diese sich voneinander entfernen, streckt sich der Kern in die Länge und wird oft ausgesprochen spindelförmig, manchmal gleicht er auch in der Form [S. 152]einer breiten Tonne; allmählich wird er hantelförmig und reißt in zwei Tochterhälften auseinander. Das Chromatin verteilt sich in den Tochterkernen, welche alsbald Bläschenform annehmen, auf der Gerüstsubstanz, die allmählich die für den ruhenden Kern jeweils charakteristische Anordnung annimmt.
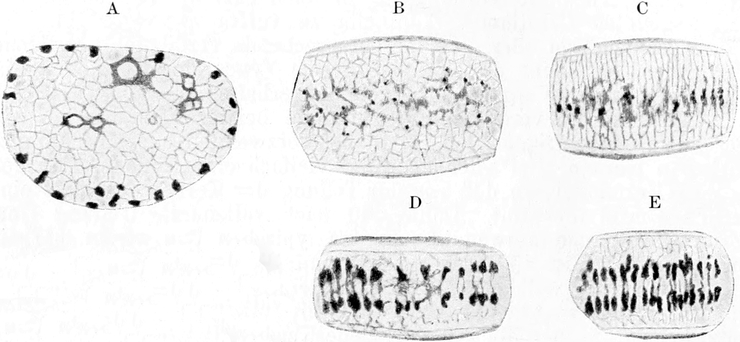
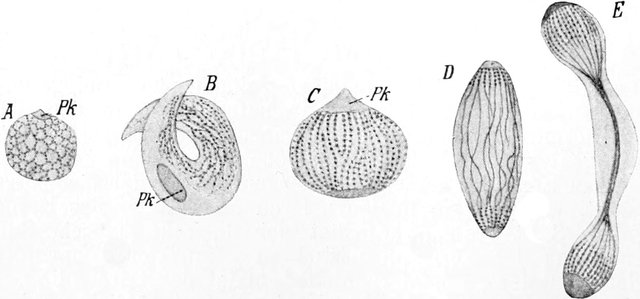
Nach diesem Typus geht z. B. die Teilung des Kerns bei Actinosphaerium (Fig. 153), Actinophrys, bei den Thalamophoren (Arcella, Pyxidicula etc.), bei Plasmodium (s. Fig. 134, S. 137) und mit gewissen Modifikationen auch beim Nebenkern der Ciliaten vor sich (Fig. 155). Bei letzteren spielt ein eigenartiger achromatischer Binnenkörper eine Rolle bei der Bildung von polaren Anhäufungen achromatischer Substanz. Bei manchen Arten macht der Nebenkern bei der Umwandlung in die Spindelform ein eigentümlich sichel- bis halbmondförmig gekrümmtes Stadium durch. [S. 153]Nicht bei allen Formen werden ferner die Chromatinmassen vor ihrer Verteilung zu einer Aequatorialplatte vollkommen zusammengedrängt.
Bei Thalamophoren und ähnlich auch bei Amoeba verrucosa und einigen anderen Amöben kann die Teilungsspindel durch sehr starke Anhäufungen stark färbbarer Substanz an beiden Polen ausgezeichnet sein. Bei Amoeba verrucosa ist dies die Hauptmasse der chromatischen [S. 154]Substanz des stark färbbaren Binnenkörpers. Dieselbe wird unter retikulärer Auflösung des Binnenkörpers auf die Spindelpole verteilt, denen sie allmählich zuströmt, während unterdessen im Aequator der Spindel Chromosomen auftreten, die dann zwei Tochterplatten bilden (Fig. 156 D u. E).
Bei Trichosphaerium Sieboldi, welches für den hier geschilderten Typus einer einfacheren Mitose sehr charakteristisch ist, ist zwar ein als Amphinucleolus zu deutender Binnenkörper periodisch vorhanden. Er verschwindet aber vor der Teilung, so daß die Kernteilung dieses Rhizopoden, welche durch die Fig. 157 illustriert wird, einen Uebergang zu den Formen der nächsten Gruppe bildet.
Aehnliches gilt für die viel komplizierter scheinende Kernteilung der Süßwasserthalamophoren, welche zuerst von Schewiakoff bei Euglypha alveolata (Fig. 158) genauer untersucht wurde. Bei dieser Art treten nicht nur sehr deutliche strangförmige Chromosomen auf, sondern es bilden sich auch an den Polen der Kernspindel achromatische Differenzierungen aus, welche an Centrosomen erinnern, ohne allerdings im Plasma Strahlungen hervorzurufen (Fig. 158 d–g). Der Kern teilt sich auch hier ohne Auflösung seiner Membran.
b) Kerne mit zentralem Binnenkörper.
Wir haben oben die zentralen Binnenkörper der Protozoenkerne als Amphinucleoli und als kernähnliche Binnenkörper unterschieden. Diese morphologisch oft im ruhenden Zustand kaum zu unterscheidenden Typen erweisen ihre Verschiedenheit bei der Kernteilung.
[S. 155]
Die Amphinucleoli zeigen beim Beginn des Teilungsvorganges starke Veränderungen, indem ihre Substanz meist im ganzen Kern auf dessen Gerüst fein verteilt wird. Das Chromatin und die Nukleolarsubstanz, aus denen sie bestehen, werden dabei fein verteilt miteinander vermischt. Sie liefern in den Kernen der freilebenden Actinosphärien[11] das ganze Material, aus dem sich die Chromosomen der Aequatorialplatte aufbauen; in diese zieht sich allmählich die gesamte färbbare Substanz des Kernes zusammen (Fig. 153). Dann erfolgt eine Spaltung in zwei Tochterplatten, und der vorher sehr stark linsenförmig [S. 156]abgeplattete Kern beginnt sich in die Länge zu strecken. Wenn er dann in zwei Tochterkerne zerfallen ist, rekonstruiert sich aus Nukleolarsubstanz und Chromatin in jedem derselben ein neuer Amphinucleolus. Auch der Kern von Actinosphaerium teilt sich ohne Schwund der Kernmembran; ähnlich wie beim Nebenkern der Ciliaten ist die Spindelbildung begleitet von einer starken Ansammlung von achromatischer Substanz in Gestalt der Polplatten an beiden Polen.
[S. 157]
Bei dem Radiolar Aulacantha scolymantha finden wir einen nicht so scharf abgegrenzten zentralen Amphinucleolus, welcher von größeren Massen im peripheren Kernraum verteilten Chromatins umgeben ist (vgl. Fig. 13, S. 20). Auch hier beginnt die Kernteilung mit einer feinen Verteilung und innigen Durchmischung der Kernsubstanzen. Sodann erfolgt die Bildung ganz scharf abgegrenzter bandförmiger Chromosomen, welche sich allmählich zu einer Aequatorialplatte anordnen (Fig. 160). Die Chromosomen machen einen sehr eigenartigen doppelten Längsspaltungsprozeß, ehe sie auf die Tochterplatten verteilt werden. Schon in den mittleren Stadien der Teilung schwindet die Kernmembran (Fig. 159 A). Die Kernmasse selbst nimmt bei der Teilung sehr eigentümliche Formen an, welche an gekrümmte Platten erinnern. Die auseinanderweichenden Tochterplatten, welche fast die Form von Gastrulen besitzen (Fig. 159), gehen allmählich wieder in die Bläschenform über, bilden eine Membran, und ihre färbbare Substanz verteilt sich wieder in den Amphinucleolus und das periphere Retikulum.
Die Kerne mit kernartigem Binnenkörper zeigen in ihren Teilungserscheinungen fast noch größere Verschiedenheiten, als die bisher geschilderten Kernformen, so daß es bei dem gegenwärtigen Stand unseres Wissens kaum möglich ist, sie unter einheitlichen Gesichtspunkten zu betrachten. In einer Beziehung verhalten sich aber alle in dieser Abteilung zusammengefaßten Kerne gleichartig: ihr Binnenkörper teilt sich bei der Zweiteilung des Kerns ebenfalls ganz regulär in zwei gleiche Teile, welche in übereinstimmender Weise auf die Tochterkerne verteilt werden und deren Binnenkörper bilden.
[S. 158]
α) Kerne mit retikulär gebautem Binnenkörper.
Die Amöben besitzen retikulär gebaute Binnenkörper, welche in ihrem ganzen Aufbau sehr an vollkommene Kerne erinnern und in der peripheren Substanz eingelagert sind, fast wie ein Radiolarienkern in einer Zentralkapsel. Diese Binnenkörper teilen sich nun auch ganz selbständig, wie Kerne, indem die Teilungsphasen an ihnen genau Schritt halten mit den Teilungsphasen der peripheren Kernsubstanz. Während nun die periphere Kernsubstanz sich meist amitotisch teilt, kann der Binnenkörper sich verschieden verhalten. Schaudinn hat bei Amoeba crystalligera eine amitotische Teilung derselben beschrieben (Fig. 161): Prowazek hat bei A. buccalis, Doflein bei A. vespertilio eine typische Mitose des Binnenkörpers mit Ausbildung von Chromosomen und Spindelfasern beobachtet (Fig. 162). Anzuschließen ist hier auch die Kernteilung von Chlamydophrys stercorea nach Schaudinn: bei diesem Rhizopoden teilt sich der Binnenkörper amitotisch, an den Polen der Binnenkörperspindel treten allerdings centriolartige Verdichtungen auf, welche lange persistieren (Fig. 163 A–E). Im peripheren Kernteil ordnet sich das Chromatin zu chromosomenartigen Bildungen (Fig. 163 C und D).
[S. 159]
β) Kerne mit dichtem Binnenkörper.
Bei den Kernen mit dichtem, tropfenartig gebautem Binnenkörper findet dessen Teilung einfach durch Längsstreckung und Durchschnürung statt. Dabei bleibt der Binnenkörper, soweit wir bis jetzt wissen, homogen und läßt keine besonderen Strukturen erkennen. Das ist der Fall bei vielen Flagellaten, bei Amöben (z. B. A. tachypodia, limax etc.) bei Coccidien, bei einigen Ciliaten, z. B. Chilodon. Ganz verschieden kann sich dabei der periphere Teil des Kerns verhalten, indem bald eine regellose Verteilung der Gesamtmasse (Coccidium, Fig. 165), bald eine sehr regelmäßige, an Chromsomenbildung erinnernde Anordnung der Chromatinbrocken in Reihen erfolgt (Euglena, Thylacomonas, Fig. 166). Bei dem Ciliaten Chilodon ist in der achromatischen Grundsubstanz das Chromatin in großen Brocken verteilt, welche bei der Teilung langgestreckt und vielleicht geteilt werden.
Ebenso wie bei den ganzen Kernen, so kommen auch bei den Binnenkörpern alle Zwischenstufen zwischen sehr dicht strukturierten und kernsaftreichen bläschenförmigen Gebilden vor. Ihre Teilungsbilder bringen alle Möglichkeiten von der Amitose zur wohlausgebildeten Mitose zur Anschauung.
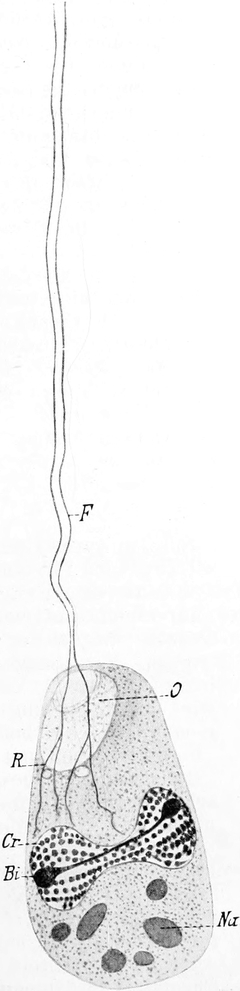
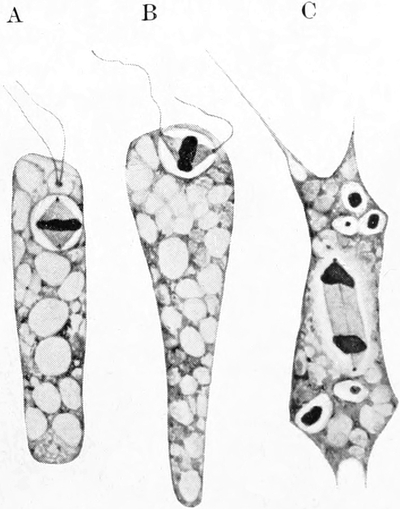
[S. 160]
γ) Karyosomkerne.
Wie wir schon oben (S. 22) hervorhoben, sind schließlich als weiterer Typus die Karyosomkerne zu unterscheiden. Das Charakteristische ist bei ihnen das Centriol, das bei den Teilungserscheinungen eine wichtige Rolle spielt. Es fungiert als Teilungsorgan, ähnlich wie ein Centrosom, indem es sich zuerst verdoppelt, wobei die zwei Tochtercentriolen zunächst durch einen Verbindungsstrang, die Centrodesmose, verbunden bleiben. Indem diese sich verlängert, nehmen die Centriolen ihre Stelle an den Spindelpolen ein, um beim Abschluß des Teilungsvorganges wieder den Mittelpunkt des ganzen Kerns zu bilden, da sich die Substanzen des Binnenkörpers und des Außenkerns konzentrisch um sie lagern (Fig. 18, S. 22). Nicht selten treten die Centriole dieser Kerne in Ruhe- und Teilungszuständen in Beziehung zu den Bewegungsorganellen der Zelle, so zu den Basalkörpern der Geißeln etc. (Fig. 167).
Die Karyosomkerne sollen bei den Protozoen weit verbreitet sein. Es ist aber nicht zu verkennen, daß diese Annahme noch nicht sehr gesichert ist. In einer Reihe von Fällen ist ja wohl das Vorkommen der Centriolen und ihr Verhalten bei der Teilung einwandfrei nachgewiesen. Viele der beschriebenen Centriolen, Centrodesmosen etc. machen aber durchaus den Eindruck von bei der Fixierung und Färbung entstandenen Kunstprodukten.
Daher sind zur Klärung dieser Fragen weitere Untersuchungen abzuwarten.
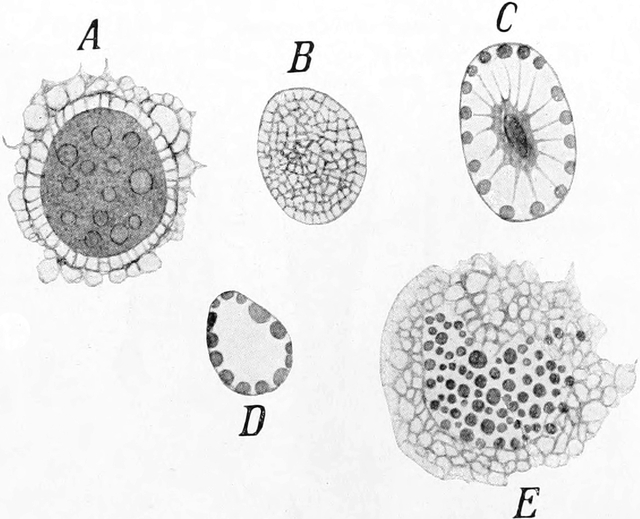
Multiple Kernteilung.
Multiple Kernteilung, d. h. ein Vorgang, bei welchem durch einen Teilungsakt ein Kern in mehrere Tochterkerne zerfällt, wird für eine Anzahl von Protozoen angegeben. Ob es sich dabei um eine weiter verbreitete reguläre Erscheinung handelt, oder um einen abnormen Prozeß, werden erst weitere Forschungen lehren müssen. Es wird dieser Teilungsmodus bei Amöben, Foraminiferen und Myxosporidien beschrieben. Bei Foraminiferen (Calcituba polymorpha Rob., Fig. 168) beschreibt Schaudinn den ruhenden Kern als fein strukturiert, mit körnig verteiltem Chromatin auf einem alveolären chromatischen Gerüstwerk. Bei der multiplen Teilung konzentriert sich das Chromatin zunächst in einem zentralen Klumpen, [S. 161]das Achromatin nimmt eine radiäre Anordnung an, dann wandert alles Chromatin allmählich peripher und lagert sich in gesonderten Klumpen der Kernmembran an, wohin ihm die achromatischen Radien folgen. Jeder der so entstandenen Klumpen liefert beim Zerfall des Mutterkerns einen Tochterkern. Aehnlich verhält sich nach Schaudinn der Kern von Entamoeba coli, nach Doflein der Kern von Myxobolus und Glugea-Arten.
Zu ähnlichen Bildern führt wohl auch der Zerfall der sog. polyanorganischen Kerne. Doch kann man deren Vermehrungsweise nicht als Teilung bezeichnen. Sie stellt einen Spezialfall dar, der unten im Kapitel über die Protozoen als einzellige Organismen besprochen werden wird.
Die Kernknospung.
Kernknospung kommt — meist in Zusammenhang mit Knospung des Zellkörpers — ziemlich häufig bei den Protozoen vor. Knospung liegt vor, wenn die Teilung des Kerns eine heteropole ist, wodurch eine Zerlegung des Mutterkerns in zwei ungleich große Tochterkerne herbeigeführt wird. Die Knospung kann sowohl einfache als auch multiple Knospung sein.
Einfache Kernknospung ist bei Amöben und anderen Rhizopoden, bei Ciliaten und ganz besonders häufig bei den Suctorien beobachtet worden. Wo sie genauer untersucht worden ist, handelt es sich fast stets um massige Kerne. Doch kommt sie auch bei bläschenförmigen Kernen vor.
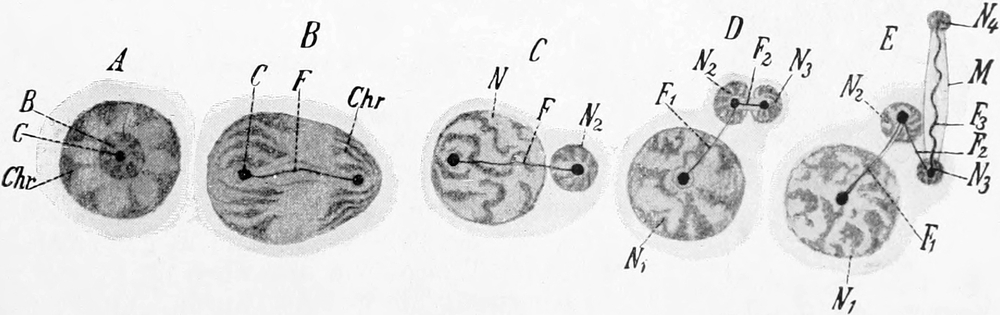
a) Einfache Kernknospung (heteropole Kernteilung).
Bei der inneren Knospenbildung der Suctorien (Fig. 145) streckt der massige Kern meist einen einzelnen fingerförmigen Fortsatz in die Knospe hinein, welcher sich unter ähnlichen Erscheinungen (Ausbildung der Längsstreifung etc.), wie sie oben für die gewöhnliche Teilung beschrieben wurden (Paramaecium, Euplotes, Fig. 148), vom [S. 162]Mutterkern abschnürt. Meist ist hier der Tochterkern viel kleiner als der Mutterkern.
Bei Spirochona gemmipara ist ähnlich wie bei Kentrochona die Kernteilung bei der Knospenbildung häufig sehr ausgesprochen heteropol, indem der in die Knospe hineinragende Kernteil kleiner ist als der im Muttertier verbleibende. Hier haben wir eine Kernknospung vor uns, welche durch die bemerkenswerten Umlagerungs- und Durchmischungsprozesse, welche ihr vorausgehen, sowie durch ihr Aussehen und ihre Bestandteile an eine mitotische Kernteilung erinnert. Die Knospungsspindel ist mit polaren, achromatischen Differenzierungen versehen, welche als Polplatten aufgefaßt werden.
Eine ausgesprochene mitotische Kernknospung ist die heteropole Kernteilung bei Haemoproteus noctuae, wie sie Schaudinn beschrieben hat. Es handelt sich um einen bläschenförmigen Kern mit zentralem Binnenkörper. Der Binnenkörper enthält sowohl Achromatin als auch Chromatin und Nukleolarsubstanz. Seine Mitte wird von einem feinen Korn eingenommen, welches ein heller Hof umgibt (Centriol nach Schaudinn). Durch Nukleolarsubstanz verbunden, liegen an seiner Peripherie 8 Chromatinpartikel. Der periphere Kernteil enthält ebenfalls 8 Chromatingebilde (Fig. 169). Bei der Teilung verschwinden zunächst Nukleolarsubstanz und Chromatin aus dem Binnenkörper und vereinigen sich mit den 8 Chromatinanhäufungen des peripheren Kernraums zu 8 chromosomenartigen Bildungen. Während das Zentralkorn hantelförmig wird, bilden letztere eine Aequatorialplatte. Die Chromosomen spalten sich und rücken auseinander, die Tochterplatten bildend, wobei die eine derselben erheblich kleiner als die andere ist. Diese heteropole Spindel führt zur Entstehung zweier verschieden großen Tochterkerne (Fig. 169 C), welche in der Regel neue Teilungen durchzumachen haben, ehe sie sich rekonstruieren können.
Die ganze Schilderung, welche Schaudinn von den Teilungsvorgängen am Kern von Haemoproteus gegeben hat, bedarf dringend der genauen Nachuntersuchung.
b) Multiple Kernknospung.
Multiple Kernknospung ist ebenfalls für eine Anzahl von Protozoen aus den Gruppen der Rhizopoden und Ciliaten angegeben. Am genauesten ist sie bei den Suctorien studiert worden, wo die massigen Kerne in ganz entsprechender Weise, wie dies oben für die einfache Knospung dargestellt wurde, mehrere Knospen treiben. Am bekanntesten ist dieser Vorgang bei Podophrya gemmipara (Fig. 170).
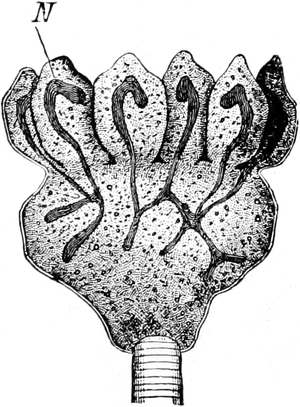
D. Beziehungen zwischen Kernteilung und Plasmateilung bei den Protozoen.
So verschiedenartig die beschriebenen Kernteilungstypen bei den Protozoen auch waren, in einem Punkt stimmten sie überein. Die [S. 163]Kernteilungsfigur entwickelte sich innerhalb der stets erhalten bleibenden Kernmembran, oder in denjenigen Fällen, wo eine solche fehlte oder während der Teilungsvorgänge schwand, blieb dennoch der Kern mit seinen Teilungsphänomenen auf sein Gebiet beschränkt; seine Teilungsstrukturen griffen nicht auf das Gebiet des Körperplasmas über, und der sich teilende Kern übte keinen sichtbaren Einfluß auf die Strukturen des Körperplasmas aus[12]. Im Zusammenhang damit konnten wir denn auch konstatieren, daß Kernteilung und Plasmateilung bei den Protozoen im Gegensatz zu dem Verhalten bei der Mehrzahl der Metazoenzellen einen ziemlich hohen Grad von Unabhängigkeit untereinander zeigten.
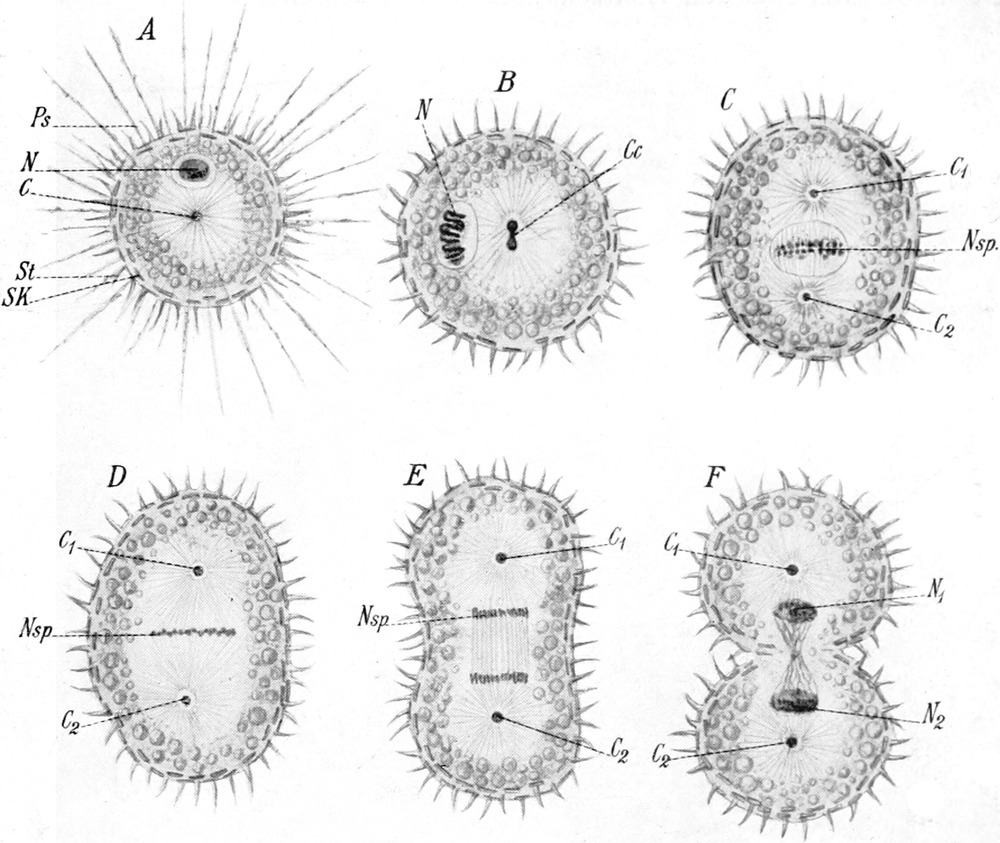
Dies gilt aber nicht für alle Protozoen; sehr bemerkenswert ist, daß diejenigen Formen, bei denen der engste Zusammenhang zwischen Kern- und Plasmateilung vorliegt, auch in der äußeren Erscheinung des Teilungsphänomens die größte Aehnlichkeit mit den Metazoenzellen aufweisen.
[S. 164]
Bei einer ganzen Anzahl der oben geschilderten Kernteilungstypen konnten wir bereits auf die längsstreifige Anordnung der Kerngerüstsubstanz und auf die Ansammlung derselben in Form von achromatischen Kappen oder Platten an den Polen der Kernteilungsfigur hinweisen. Offenbar sind diese Strukturen der Ausdruck von Bewegungserscheinungen, welche mit dem Teilungsvorgang zusammenhängen. Man hat daher ganz mit Recht schon längst die Längsfaserung, welche wahrscheinlich auf einer Längsstreckung der Kerngerüstalveolen beruht, mit den Spindelfasern der Metazoenkernspindel, die Polplatten mit den Zentren derselben verglichen.
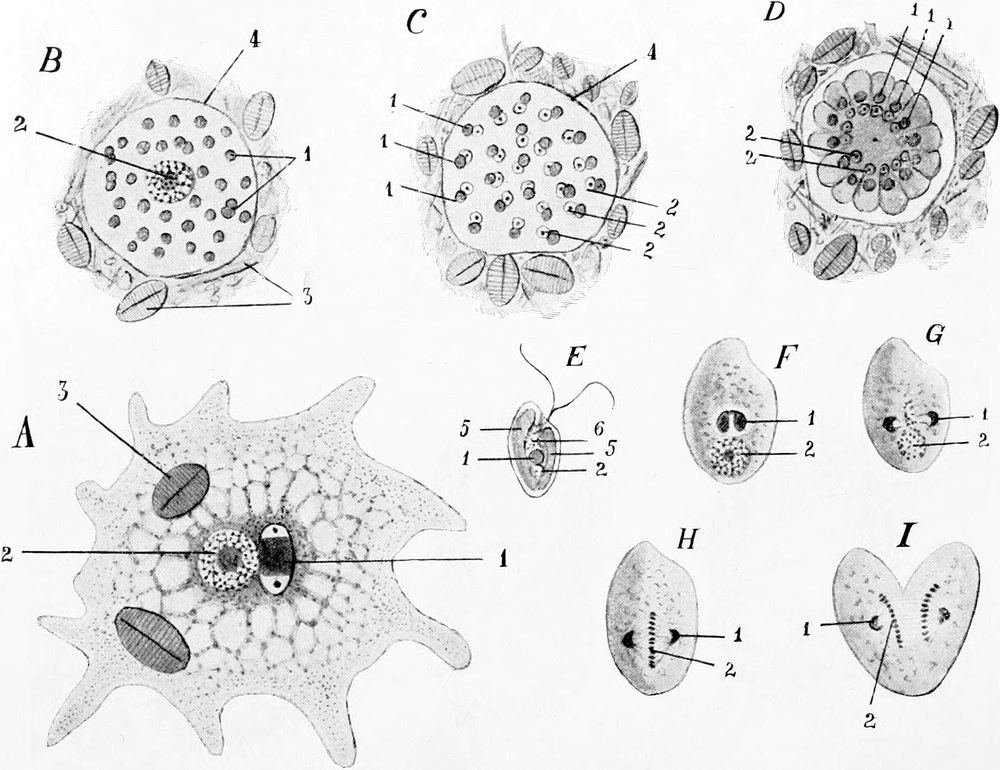
Für die Kernspindel der Metazoen ist es charakteristisch, daß die bei den Teilungsbewegungen beteiligten achromatischen Spindelbestandteile mit dem Zellplasma in Verbindung treten. Das verbindende und vermittelnde Organ ist dabei das Centrosoma, in welchem die Gerüstsubstanz des Zellkerns und diejenige des Zellplasmas bei den Teilungsbewegungen einen gemeinsamen Mittelpunkt finden.
Eine ganz ähnliche Erscheinung finden wir nach Schaudinn bei den mit Zentralkorn versehenen einkernigen Heliozoen (vgl. S. 26). Hier teilt sich das Zentralkorn, indem zugleich aus der einheitlichen Strahlung des Körperplasmas eine Doppelstrahlung entsteht. Gleichzeitig gehen im Kern vorbereitende Stadien vor sich, welche zur [S. 165]Bildung und Spaltung einer Aequatorialplatte führen. Der Kern hat sich ganz ähnlich, wie der Kern von Actinosphaerium, linsenförmig abgeplattet, er zeigt Längsstreifung und Polplatten. In diesem Stadium setzen an seinen beiden Polen die von den beiden Zentralkörnern ausgehenden Strahlensysteme an; indem die Kernmembran schwindet, entsteht eine mit dem Plasma in engster Verbindung befindliche Spindel, das Bild einer Mitose, welche einer typischen Metazoenmitose sehr ähnlich ist. In engstem Zusammenhang vollzieht sich nun die Teilung des Kernes und des Plasmaleibes. Wenn die Tochterplatten auseinanderrücken, zieht sich der Plasmaleib in die Länge und beginnt sich äquatorial einzuschnüren. Wenn die Kernspindel sich hantelförmig durchschnürt, erfolgt dasselbe am Plasmaleib, und während der Kern sich rekonstruiert und seine exzentrische Stellung einnimmt, rundet sich der Körper des Tieres wieder ab und entsendet von neuem seine Pseudopodien, welche in dem Zentralkorn den gemeinsamen Mittelpunkt ihrer Achsenfäden finden und durch diese Stütze die konstante Form des Tieres zu erhalten vermögen.
Aehnlich den Funktionen des Zentralkorns sind diejenigen des eigenartigen Nebenkörpers, den Schaudinn bei Paramoeba Eilhardi entdeckt hat. Derselbe bildet ebenfalls eine eigene „Spindel“, welche wie eine Zentralspindel die entstehende Kernspindel erfaßt und richtet, wodurch — wie aus den Figg. 172 hervorgeht — eine phasenweise übereinstimmende Teilung von Kern- und Plasmamaterial herbeigeführt wird.
Mit diesem Nebenkörper stimmt in Aussehen und Lokalisation während der Teilungsphänomene die sogenannte „Sphäre“ bei dem Cystoflagellaten Noctiluca miliaris in auffallender Weise überein. Als kompakter Körper in der unmittelbaren Nachbarschaft des Kernes auftretend, teilt sich diese Sphäre in Gestalt einer vollkommen der Kernspindel parallelen Spindel. Der Kern macht alle seine Teilungsschritte innerhalb der Kernmembran durch, wobei er in eigenartiger Form die Sphärenspindel umfaßt, welche mit ihrem zentralen Teil, sobald sie hantelförmig geworden ist, in einer Längsfurche des Kernes ruht (Fig. 173). Indem die Sphäre das Zentrum des strahlig angeordneten Körperplasmas bildet, ist sie von bestimmendem Einfluß auf dessen Teilung. Sie selbst steht aber in engstem Zusammenhang mit dem Kern, was sich schon bei ihrer Entstehung gezeigt hat, da sie durch Substanzaustritt aus dem Kern im Körperplasma hervorgerufen wird. Ob dabei ein Centrosoma auftritt, ist strittig.
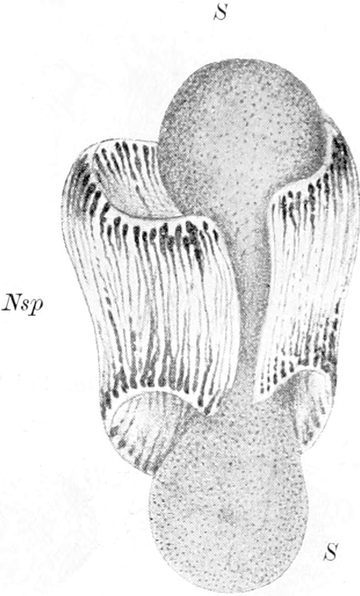
Dagegen ist in einigen anderen Fällen das Auftreten eines Centrosomas und zum Teil auch dessen Entstehung aus dem Kern nachgewiesen. So hat Hertwig bei Actinosphaerium die Entstehung eines Centrosomas aus dem Kern bei der Bildung des 1. Richtungskörpers [S. 166]nachgewiesen. Er hat auch gezeigt, in welch eigenartiger Weise sich dies zu den polaren Plasmakegeln in Beziehung setzt, jenen Bildungen, welche auch ohne Auftreten von Centrosomen bei der gewöhnlichen Kernteilung nicht encystierter Individuen vorhanden sind und auch dort auf eine — vielleicht die Teilung des Kernes unterstützende — Beeinflussung des Protoplasmas durch die Kernteilung hinweisen.
Schaudinn konnte zeigen, daß bei der Knospenbildung der einkernigen Heliozoen der Kern durch eine einfache Teilung, ohne Beteiligung des Zentralkorns sich vermehrt. Dann bildet sich aber im Kern der Knospe ein neues Zentralkorn, welches aus demselben heraustritt und den Mittelpunkt des Plasmaleibes einnimmt.
[S. 167]
Schließlich wären hier die sehr charakteristischen und gut ausgebildeten Centrosomen der Gregarinen zu erwähnen. Bei Monocystis magna z. B. (Fig. 174) erinnern sie in einer sehr auffälligen Weise an die Centrosomen in Metazoeneiern. Man sieht sie zuerst in der Einzahl neben dem Kern auftreten, dann sich teilen, auseinander und an die Spitzen der unter ihrem Einfluß sich bildenden Kernspindel wandern. Dabei üben sie auf das umgebende Zellplasma einen starken Einfluß aus, was sich aus der Bildung prachtvoller Strahlungsfiguren ergibt. Solche Strahlungen treten auch bei anderen Gregarinen auf, mit ihnen verbunden eigenartige polare Differenzierungen der Spindel, z. B. bei Urospora und Gonospora nach Brasil (Fig. 175).
Auch bei Centropyxis aculeata, einem beschalten Süßwasserrhizopoden, treten Strahlungen auf, welche ihren Mittelpunkt in Centrosomen (Fig. 176) besitzen; diese entstehen aus einem im Kern auftretenden Centriol. Und schließlich sei noch als ganz besonders interessante Erscheinung auf die Beziehungen zwischen Kernsubstanzen und wichtigen Bestandteilen des Zellkörpers hingewiesen, welche Schaudinn für Trypanosoma (resp. Haemoproteus) angibt. Nach seiner Deutung soll bei diesen Flagellaten der ganze lokomotorische Apparat aus einer Kernspindel hervorgehen, wie dies aus seinen schematischen Figuren (Fig. 177) ersichtlich ist. Dabei liefert die [S. 168]Zentralspindel den verdickten Rand der undulierenden Membran, die 8 zu den 8 Chromosomen gehörigen Spindelfasern liefern die Myoneme, welche zu je 4 sich auf den beiden flachen Breitseiten des Trypanosomas anordnen. Diese 8 Fasern samt der Zentralspindelfaser setzen sich in Form der Geißel auch über den Körper des Trypanosomas hinaus fort, indem diese Geißel aus einem dickeren exzentrischen Achsenfaden (der Zentralspindel) und 8 Mantelfibrillen gebildet wird; nur das distale verjüngte Ende der Geißel wird von dem Achsenfaden allein gebildet.
In einer ganzen Reihe von Fällen sind auch Beziehungen der Centriolen zu Regionen des Plasmas sowie zu Organellen des Protozoenkörpers nachgewiesen worden, welche bei der Teilung und bei den Neubildungsvorgängen nach der Teilung sich bemerkbar machen.
Die vielfältigen und verschiedenartigen Kernvermehrungstypen, welche wir hier kennen gelernt haben, erschöpfen noch bei weitem den Reichtum nicht, welchen das Protozoenreich auf diesem Gebiet aufweist. Wir werden später (weiter unten und im speziellen Teil) noch wiederholt auf weitere Kernvermehrungserscheinungen zu sprechen kommen. Hier seien noch einige mit der Kernvermehrung zusammenhängende Erscheinungen von allgemeinerer Bedeutung besprochen.
Wir erwähnten schon oben die relative Unabhängigkeit der Kern- und Plasmateilung. Ebenso unabhängig voneinander scheinen vielfach im gleichen Zellleib eingeschlossene Zellkerne in ihren Teilungsvorgängen zu sein. Bei Myxosporidien, bei vielkernigen Opalinen, bei Rhizopoden sehen wir nicht selten einen oder wenige Kerne in Teilung, während alle übrigen Kerne des gleichen Individuums im Ruhezustand verharren.
Umgekehrt läßt sich aber auch manchmal eine überraschende Uebereinstimmung im Teilungszustand aller im gleichen Zellleib eingeschlossenen Kerne feststellen. Dies gilt z. B. vielfach für die parallel sich teilenden Haupt- und Nebenkerne der Ciliaten, für die oft in größerer Anzahl vorhandenen Nebenkerne von solchen, welche häufig sich vollkommen simultan teilen. Sehr auffallend ist das gleichartige Verhalten der Kerne bei Trichosphaerium Sieboldi, bei Pelomyxa binucleata, bei Arcella vulgaris und einer neuerdings von mir entdeckten Difflugia binucleata; da können wir feststellen, daß die Kerne auch in den vegetativen Stadien immer gleichzeitig ausgebildet sind, und wenn sie zur Teilung schreiten, befinden sich immer sämtliche Kerne des gleichen Individuums beim gleichen Teilungsschritt, was ein sehr eigenartiges Bild ergibt.
Das verschiedene Verhalten der Kerne scheint darauf hinzuweisen, daß eine für uns allerdings optisch nicht nachweisbare verschieden weitgehende Individualisierung der „Energiden“ vorliegen kann. (Als Energide bezeichnet Sachs je einen Kern mit seinem Plasmabereich, einerlei, ob derselbe in einer vielkernigen Zelle oder in einem vielzelligen Verband enthalten ist.)
So habe ich ja auch bei Noctiluca nachgewiesen, daß, solange das Plasma einheitlich ist, die Kernteilungen bei der Knospenbildung simultan verlaufen, daß sie aber mit der steigenden Isolierung der Plasmakomplexe immer unabhängiger voneinander werden.
Schließlich ist hier noch als weiterer Beleg für den innigen Zusammenhang zwischen dem Zellleben und den Strukturen und Vorgängen am Kern anzuführen, daß bei manchen Protozoen die Kerne [S. 169]in verschiedenen Stadien des Zeugungskreises (s. unten) sich nach verschiedenen Typen teilen. So haben wir schon zwei verschiedene Kernteilungstypen bei Actinosphaerium erwähnt (es gibt ihrer 5), für Coccidium, Plasmodiophora, Amoeba, Entamoeba etc. sind ebenfalls 2 Typen, für Entamoeba coli sind 5 Typen nachgewiesen. Diesen Fällen ließen sich zahlreiche weitere anschließen. Sie zeigen alle, daß eine Beziehung zu besonderen Zuständen der Zelle vorliegt, ohne daß uns bisher die kausalen Zusammenhänge erkennbar wären. Doch scheint auch hier der relative Reichtum des Kerns an den einzelnen Substanzen, welcher ja offenbar vom physiologischen Zustand abhängig ist — die ausschlaggebende Rolle zu spielen.
E. Teilungsdauer und Vermehrungsrate.
Der Teilungsvorgang nimmt bei den verschiedenen Protozoenarten eine sehr verschieden lange Zeit in Anspruch, wie aus der beigedruckten Tabelle hervorgeht. Die Zeit, welche von den ersten Anzeichen der Teilung bis zur vollkommenen Durchtrennung und Rekonstruktion der Tochtertiere verstreicht, schwankt von wenigen Minuten bis zu vielen Stunden, selbst Tagen. Eine absolute Gesetzmäßigkeit in der Abhängigkeit dieser Dauer von gewissen konstanten Faktoren läßt sich bei dem gegenwärtigen Stand unserer Kenntnisse nicht feststellen. Doch ergibt sich ein deutlicher Zusammenhang zwischen Teilungsdauer und Größe des Individuums sowie dessen Organisationshöhe. Kleine Tiere teilen sich im allgemeinen schneller als große, und vor allem teilen sich einfach gebaute Formen schneller als solche mit hochdifferenzierter Organisation.
|
Art
|
Teilungsdauer
|
Autor der Angabe
|
|---|---|---|
|
Pelomyxa binucleata
|
7½ Stunden
|
Schaudinn
|
|
Amoeba crystalligera
|
3 Minuten
|
„
|
|
Amoeba vespertilio
|
1 Stunde
|
Doflein
|
|
Pyxidicula operculata
|
10 Minuten
|
„
|
|
Cochliopodium pellucidum
|
30 Minuten
|
„
|
|
Euglypha alveolata
|
2 Stunden
|
Schewiakoff
|
|
Hyalopus Dujardini
|
1–3 Wochen
|
Schaudinn
|
|
Euglena viridis
|
3–4 Stunden
|
Blochmann u. Keuten
|
|
Opalina ranarum
|
40–50 Minuten
|
Nußbaum
|
|
Paramaecium aurelia
|
ca. 2 Stunden
|
Ehrenberg
|
|
Stylonychia mytilus
|
1–2 Stunden
|
Stein
|
|
Vorticella microstoma
|
½ Stunde
|
Quennerstedt
|
Aehnlich verhält es sich mit der Vermehrungsrate. Wie weiter unten dargelegt wird, ist dieselbe ja von mancherlei inneren und äußeren Einflüssen abhängig: im allgemeinen ist aber das Tempo, in welchem eine Protozoenart unter normalen Bedingungen von einem Teilungsschritt zum nächsten eilt, für sie charakteristisch. In der umstehenden Tabelle ist für einige Arten die Anzahl der in einem bestimmten Zeitabschnitt beobachteten Teilungen und der dadurch erzielten Individuen aufgeführt. Auch hier ist eine gewisse Beziehung zur Größe und zur Organisationshöhe erkennbar. Von der Teilungsrate hängt die Massenentfaltung mancher Protozoenarten ab, bei denen wir, z. B. bei Paramaecium caudatum, aus wenig Individuen in wenig Tagen Hunderttausende heranzüchten können; von ihr hängt infolgedessen die Gefährlichkeit der Parasiten und Krankheitserreger ab, [S. 170]von ihr auch die Brauchbarkeit einer Art für ganze Kategorien unserer Beobachtungen und Experimente.
|
Art
|
Zahl der Teilungen
in 24 Stunden bei 15–20° C |
Erzielte Individuen
|
im Zeitraum
|
|||
|---|---|---|---|---|---|---|
|
Stylonychia
|
pustulata
|
3
|
91
|
in 6 Tagen
|
||
|
„
|
mytilus
|
2
|
ca. 50–60000
|
in 1 Monat
(berechnet) |
||
|
Spirostomum teres
|
1–2
|
|
|
|||
|
Paramaecium aurelia
|
|
bei 14–18°
1 |
|
ca. 1384416
|
in 42 Tagen
(berechnet) |
|
|
bei 18–20°
2 |
||||||
|
Chlamydophrys stercorea
|
zahlreiche
|
|
aus „wenigen“ viele
Hunderte |
in 24 Stunden
|
||
|
„viele Tausende“
|
„in einigen
Tagen“ |
|||||
Aeußere Einflüsse haben einen wesentlichen Einfluß auf das Tempo, in dem die Vermehrung der Protozoen vor sich geht. Vor allem kommt da die Temperatur in Betracht, wie schon aus der Tabelle hervorgeht. Neuere Untersuchungen zeigen, daß die Beschleunigung der Vermehrung bei Protozoen (z. B. Actinosphaerium) durch Erhöhung der Temperatur sich nach dem van’t Hoff’schen Gesetz richtet, welches besagt, daß chemische Reaktionen bei Erhöhung der Temperatur um 10° C mit doppelter bis dreifacher Schnelligkeit ablaufen.
Auch Veränderungen in der chemischen Zusammensetzung des umgebenden Mediums können die Teilungsrate erhöhen oder herabsetzen. Einzelheiten über diese Erscheinungen finden sich im Kapitel über die Biologie der Protozoen weiter unten gemeinsam mit den sonstigen Einflüssen des Mediums dargestellt (Kapitel IV E).
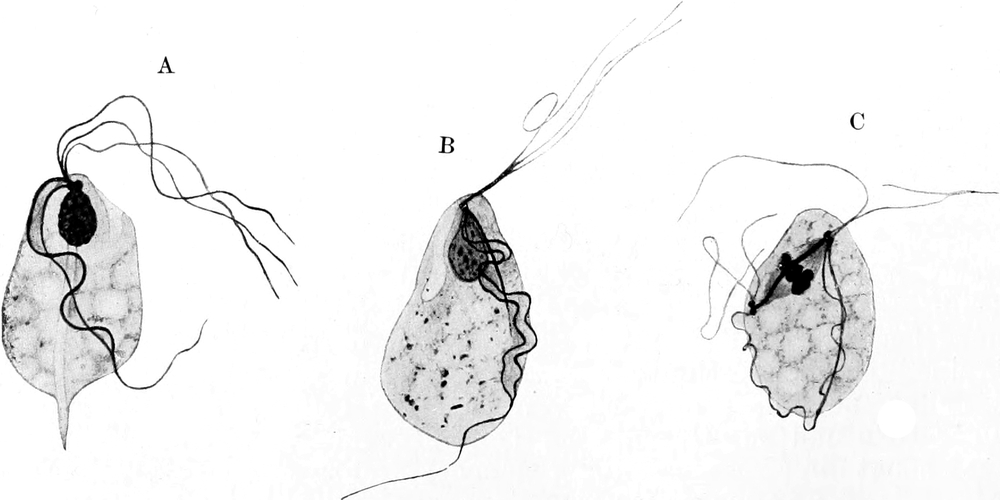
F. Teilung von anderen Zellbestandteilen.
Wir haben früher schon gehört, daß einige Kategorien von Zellbestandteilen, wie z. B. Chromatophoren, Pyrenoide, Stigmata, Blepharoplaste, [S. 171]undulierende Membranen etc. ebenfalls bei einem Teilungsakt geteilt werden können. Die Details solcher Teilungsvorgänge sind noch recht wenig erforscht.
Doch steht immerhin fest, daß Organellen, welche in der Längsrichtung parallel zur Teilungsebene verlaufen, vielfach längsgespalten werden, während solche, deren Längendurchmesser senkrecht zur Teilungsebene steht, quer gespalten werden. Als Beispiel führe ich eine Figur von Trichomonas ranarum an, bei welchem Tier man gleichzeitig Kern, Blepharoplast und undulierende Membran in Teilung sieht, während die Geißeln verteilt werden, so daß hier eine partielle Neubildung stattfinden muß. Das ist bei Cilien und Geißeln meistens der Fall, indem die eine Hälfte des Tieres neue Bewegungsorganellen erzeugen muß. Doch auch direkt geteilte Organellen erfahren oft Ergänzungen. So bei der Querteilung von Ciliaten mit lang durch den Körper sich erstreckendem Reusenapparat, welcher mitten durchgeteilt wird; da muß das vordere Tochtertier ein hinteres, das hintere ein vorderes Ende des Reusenapparates hinzuergänzen. Weiteres über diese Probleme findet sich unten im Kapitel über Entwicklungsgeschichte.
II. Die Befruchtung bei den Protozoen.
Bei den meisten Protozoen sehen wir durch die gewöhnlichen, im vorigen Kapitel geschilderten Teilungs- oder Knospungsvorgänge längere Zeit hindurch eine Vermehrung der Individuen erfolgen, wobei jedes Tochtertier mit dem Muttertier in allen Eigenschaften vollkommen übereinstimmt. Bei allen hinreichend genau studierten Protozoenformen hat sich aber diese Vermehrungsfähigkeit durch Teilung als nicht unbegrenzt erwiesen. Bei manchen Arten nach wenig Teilungen, bei anderen nach vielen hundert oder tausend Teilungen, durch welche Millionen von Individuen entstanden sind, werden in die regelmäßige Reihe der Teilungen Vorgänge eingeschaltet, welche eine große Aehnlichkeit mit der Befruchtung der Metazoen und Metaphyten besitzen. Das Wesentliche dieser Vorgänge, dasjenige, was ihnen bei allen Arten gemeinsam ist, besteht in der Verschmelzung von Kern- und Plasmabestandteilen zweier Individuen der gleichen Species. In der Regel sind es sogar ganze Individuen, welche mit ihrem Zellleib und ihrer Kernmasse untereinander verschmelzen.
Diese eigenartigen Vorgänge erfolgen unter Erscheinungen, welche im Protozoenreich eine außerordentlich große Mannigfaltigkeit besitzen. Wir glauben in ihnen aber gleichartige Zusammenhänge zu erkennen, welche mich veranlassen, meine Darstellung nach gewissen, gleichartigen Gesichtspunkten anzuordnen. Diese Gesichtspunkte sind wesentlich teleologischer Art, indem die Vorgänge so beschrieben werden, als seien sie von einem bewußten Wesen eingeleitet, um den gewünschten Endzweck — nämlich die Befruchtung — herbeizuführen.
Beim Befruchtungsakt unterscheiden wir 4 Phasen:
Die Phase der Annäherung kann vor oder nach der durch morphologische Umwandlungen gekennzeichneten Vorbereitungsphase der Individuen eingeschaltet sein. Auch sonst kommen bemerkenswerte Verschiedenheiten vor, welche wir zusammenfassend erörtern wollen, nachdem wir die Haupttypen der Befruchtung besprochen haben, wobei wir die einzelnen Phasen nicht trennen, sondern gemeinsam im natürlichen Zusammenhang behandeln wollen.
Tritt bei der Befruchtung eine vollständige Verschmelzung der beiden beteiligten Individuen ein, so nennen wir den Vorgang Kopulation. Als Konjugation bezeichnen wir dagegen die vorübergehende Vereinigung zweier Individuen, welche bei dieser Gelegenheit Kernsubstanzen untereinander austauschen. Dieser Befruchtungstypus kann allerdings Modifikationen erfahren, welche ihn sekundär in den wesentlichen Vorgängen der Kopulation sehr ähnlich machen.
A. Die Befruchtung durch Kopulation.
1. Gameten und Agameten.
Wenn die gewöhnliche Teilung bei einem Protozoon eine gewisse Zeit hindurch immer wieder gleichartige Individuen hervorgebracht hat, so entwickeln sich schließlich aus den Produkten einer Teilung Individuen, welche von den gewöhnlichen Vertretern der Species sich in ihren Lebensschicksalen sehr wesentlich unterscheiden. Statt sich in der üblichen Weise weiterzuteilen, sind sie entweder dazu bestimmt, als ganze Individuen sich mit je einem anderen in einem Befruchtungsakt zu vereinigen, oder sie liefern erst durch Teilungen besonderer Art solche zur Kopulation bestimmte Individuen.
Alle zur Vereinigung in einem Befruchtungsakt bestimmten Individuen bezeichnen wir als Gameten. Wir unterscheiden sie dadurch von den gewöhnlichen (vegetativen) Individuen, welche wir in der Regel einfach bei ihrem Namen nennen, indem wir von der Amöbe, dem Coccidium, dem Haemosporidium oder Trypanosoma sprechen. Vielfach genügt dies, um den Gegensatz zu den Gameten der betreffenden Form auszudrücken. Will man den Gegensatz noch präziser formulieren, so bezeichnet man die gewöhnlichen vegetativen Stadien als Agameten, wodurch ausgedrückt ist, daß es sich um Individuen handelt, welche nicht zur Kopulation bestimmt sind.
Wenn die beiden zur Vereinigung bestimmten Gameten in Bau, Größe und sonstigen Eigentümlichkeiten vollkommen gleichartig sind (soweit wenigstens gegenwärtig unser Unterscheidungsvermögen geht), so werden sie als Isogameten, der Befruchtungsakt, bei welchem sie sich vereinigen, als Isogamie bezeichnet.
Sind die Gameten durch Größe, Bau oder sonstige Eigentümlichkeiten unterscheidbar, so daß wir zwei Sorten erkennen können, von denen je ein Gamet der einen Sorte sich mit je einem Gamet der anderen Sorte vereinigt, so sprechen wir von Anisogameten und Anisogamie.
[S. 173]
2. Die isogame Kopulation.
Bei der Isogamie nähern sich zwei vollkommen gleichartig aussehende Gameten der betreffenden Protozoenart und verschmelzen miteinander. Vorher, d. h entweder vor der Annäherung, oder während die beiden Individuen schon aneinander gelagert sind, geht der Verschmelzung die Vorbereitung durch Ausstoßung von Substanzen aus beiden Gametenkernen voraus. Die Gameten verschmelzen mit ihren Plasmaleibern und ihren durch den Vorbereitungsakt „gereiften“ Kernen zur Zygote.
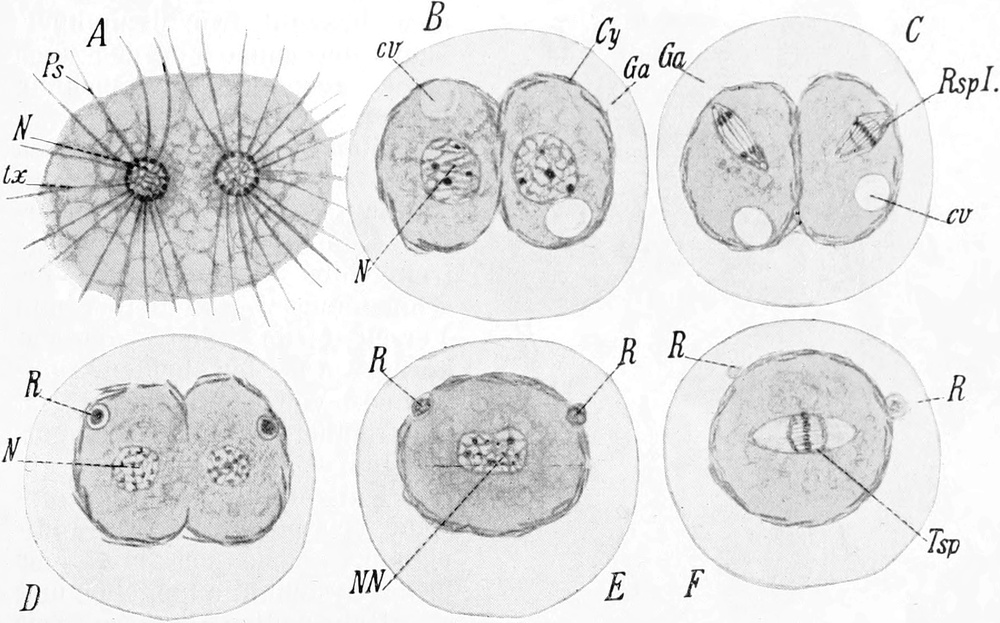
Der am besten beschriebene Fall von Isogamie ist die Kopulation bei dem Heliozoon Actinophrys sol (nach Schaudinn). In länger gezüchteten Kulturen dieser Art findet man Individuen mit noch ausgestreckten Pseudopodien paarweise miteinander verschmelzend (Fig. 179). Vielfach verschmelzen auch mehrere Paare zu einem größeren Komplex, welcher auch in der Folgezeit vereinigt bleibt, doch erfolgt die Kopulation immer nur zwischen je zwei zusammengehörigen Paarlingen.
Die vereinigten Individuen ziehen allmählich ihre Pseudopodien ein und sinken zu Boden, wo sie sich mit einer dicken, sehr durchsichtigen Gallerthülle umgeben. Der Protoplasmaleib wird dabei etwas bräunlich und stärker lichtbrechend. Mit der Einziehung der Pseudopodien schwinden auch die Achsenfäden, so daß das Protoplasma der Cyste keine Andeutung von radiärem Bau mehr aufweist. Längere Zeit sind noch die pulsierenden Vakuolen erkennbar. Innerhalb der Gallerthülle wird von jedem der beiden Individuen eine (kieselige) Hülle abgesondert.
[S. 174]
Darauf erfolgen in jedem der beiden Individuen Vorgänge, welche sehr an die Richtungskörperbildung bei den Metazoen erinnern. Es ist dies die Vorbereitungsphase, durch welche die beiden Individuen in kopulationsfähige Gameten umgewandelt werden.
Es rückt nämlich der Kern jedes der beiden in der Cyste vereinigten Individuen an die Oberfläche und teilt sich zweimal mitotisch, wobei jedesmal ein kleiner Körper, einem Richtungskörper vergleichbar, abgeschnürt wird[13]. Ob dabei eine Chromatinreduktion herbeigeführt wird, ist noch nicht bekannt, wie denn überhaupt der ganze Vorgang noch einer genauen Untersuchung bedarf.
Sind die beiden Gameten durch die Abschnürung der Richtungskörper gereift, so erfolgt die Auflösung der sie trennenden Membran, Verschmelzung der Zellleiber und Verschmelzung der Gametenkerne. Aus den beiden Individuen von Actinophrys ist eine einheitliche Zygote entstanden.
Kurz darauf teilt sich dieselbe von neuem in zwei Individuen, welche sich mit einer festen Cystenhülle umgeben und als Ruhestadien längere Zeit verharren. Ich muß hinzufügen, daß neuerdings Distaso angibt, daß von Anfang an nicht zwei Individuen zusammentreten, sondern daß die Gameten durch Teilung eines einheitlichen Individuums entstehen; danach würde es sich, ähnlich wie bei Actinosphaerium, um eine Autogamie (s. unten) handeln.
Ein sehr schönes Beispiel von Isogamie bietet auch das zu den Eugleniden gehörige Flagellat Copromonas subtilis dar. Wie Fig. 181 erkennen läßt, erfolgt hier die Reduktion des Kerns während des Verschmelzungsvorganges des Gameten (Fig. 181 B). Nach der Verschmelzung umgibt sich die Zygote mit einer Cystenhülle (Fig. 181 D u. E).
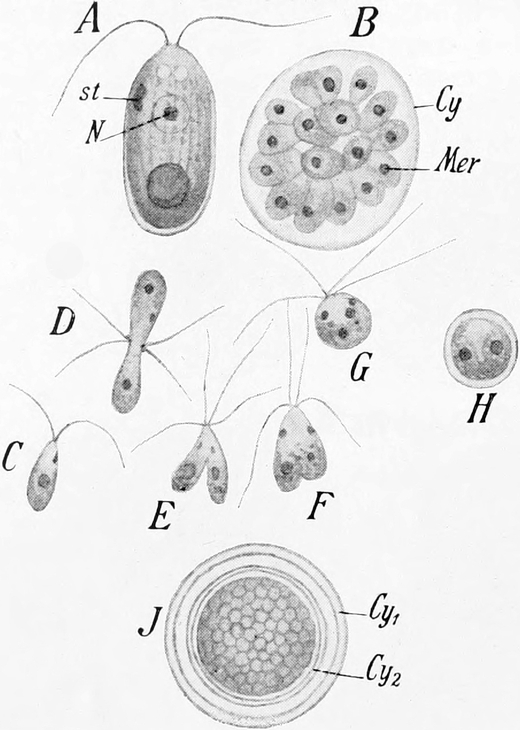
In diesen Fällen handelt es sich also um Kopulation von ganzen Individuen, nach erfolgter Reifung (Hologameten). In anderen Fällen erfolgt vor der Kopulation eine Zerteilung jedes Individuums [S. 175]in mehrere oder zahlreiche kleinere Gameten (Merogameten), so daß durch die geschlechtliche Periode zweier Individuen die Entstehung einer größeren Anzahl von Zygoten herbeigeführt wird.
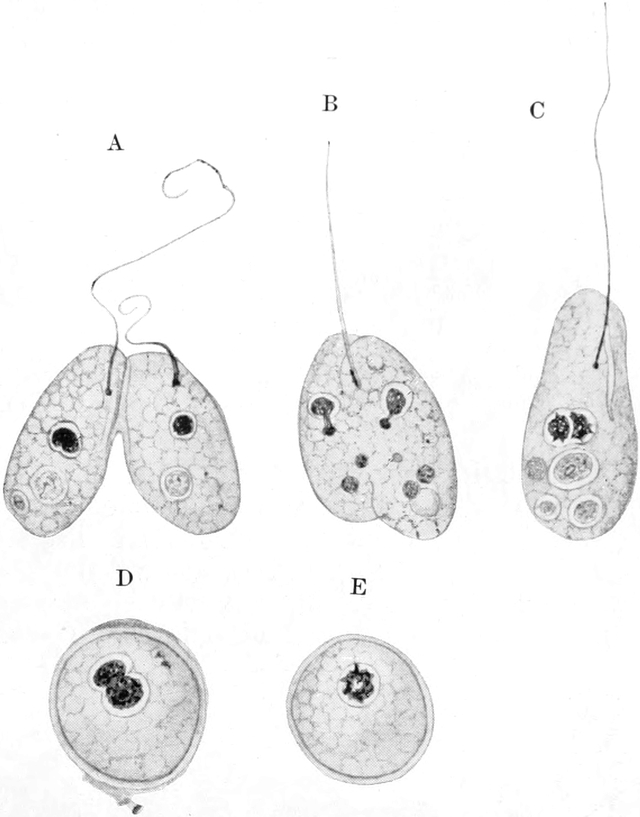
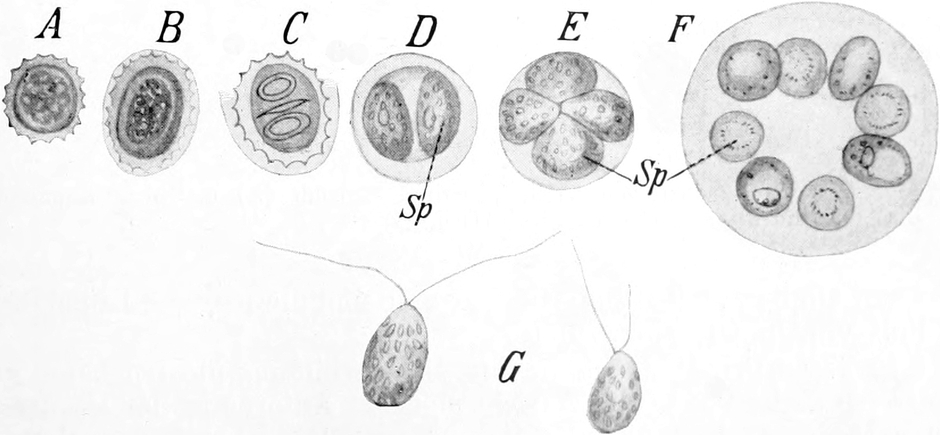
Das ist bei vielen Flagellaten und nach Schaudinn, Lister und Winter bei den Foraminiferen der Fall. Bei manchen Flagellaten, [S. 176]z. B. bei Polytoma uvella entstehen in jedem Individuum 4 Gameten, bei anderen Formen aber kommt es durch wiederholte Teilung zur Bildung einer viel größeren Anzahl von Gameten (vgl. Chlamydomonas Fig. 180 u. 182 und Stephanosphaera Fig. 183). So z. B. auch bei der Foraminifere Trichosphaerium (Fig. 184), wo die Isogameten durch Zerfall eines Individuums in zahlreiche mit je zwei Geißeln versehene Schwärmer entstehen. Zwei von verschiedenen Individuen abstammende Isogameten verschmelzen, nachdem sie ihre Geißeln abgeworfen haben, zu einer Zygote (Fig. 184 D), aus welcher sich ein junges Tier entwickelt. Dies letztere weicht, wie wir später sehen werden, in wichtigen Eigenschaften von dem Muttertier der Gameten ab.
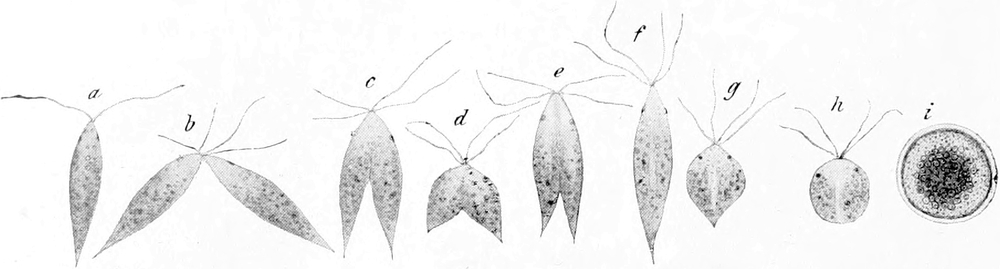
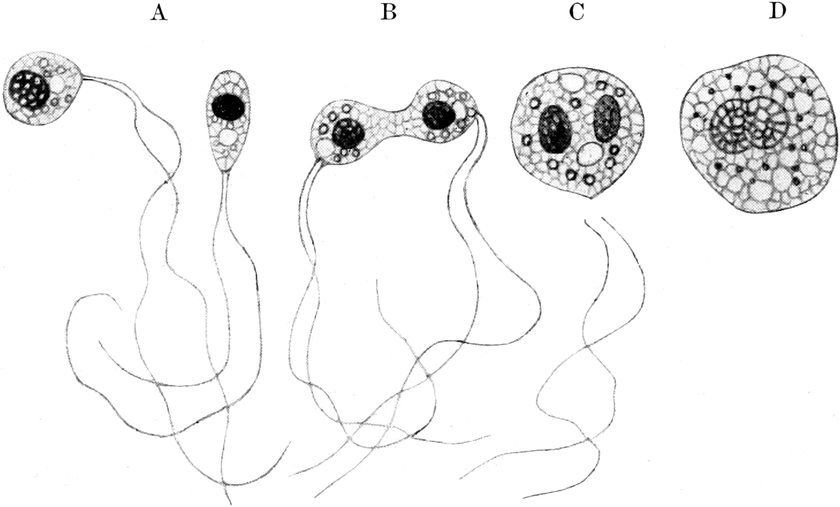
Ganz ähnlich verläuft die Gametogonie und die isogame Kopulation bei Polystomella und Peneroplis.
Bei diesen Prozessen ist Richtungskörperbildung nicht bekannt geworden; inwiefern nach der Ansicht mancher Autoren in der Vorbereitungsphase eine „Reifung“ der Gameten erfolgt, ist unten erörtert.
Prinzipiell ähnlich, aber in den begleitenden Umständen erheblich abweichend, ist die Isogamie mancher Gregarinen (Monocystis, Ophryocystis, Gregarina). Hier erfolgt zunächst eine Annäherung und [S. 177]Aneinanderheftung von zwei freien Individuen, welche, oft schon im Jugendzustand miteinander vereinigt, ihre Wachstumsperiode gemeinsam durchmachen, um sich schließlich gemeinsam zu encystieren (vgl. Fig. 186). Doch findet zwischen ihnen zunächst, soweit bisher bekannt ist, keinerlei Austausch oder Verschmelzung statt (was mir aber auf Grund von gewissen Beobachtungen dennoch wahrscheinlich erscheint). Vielmehr geht in jeder von ihnen ein Vermehrungsvorgang vor sich, welcher zur Bildung zahlreicher Gameten führt.
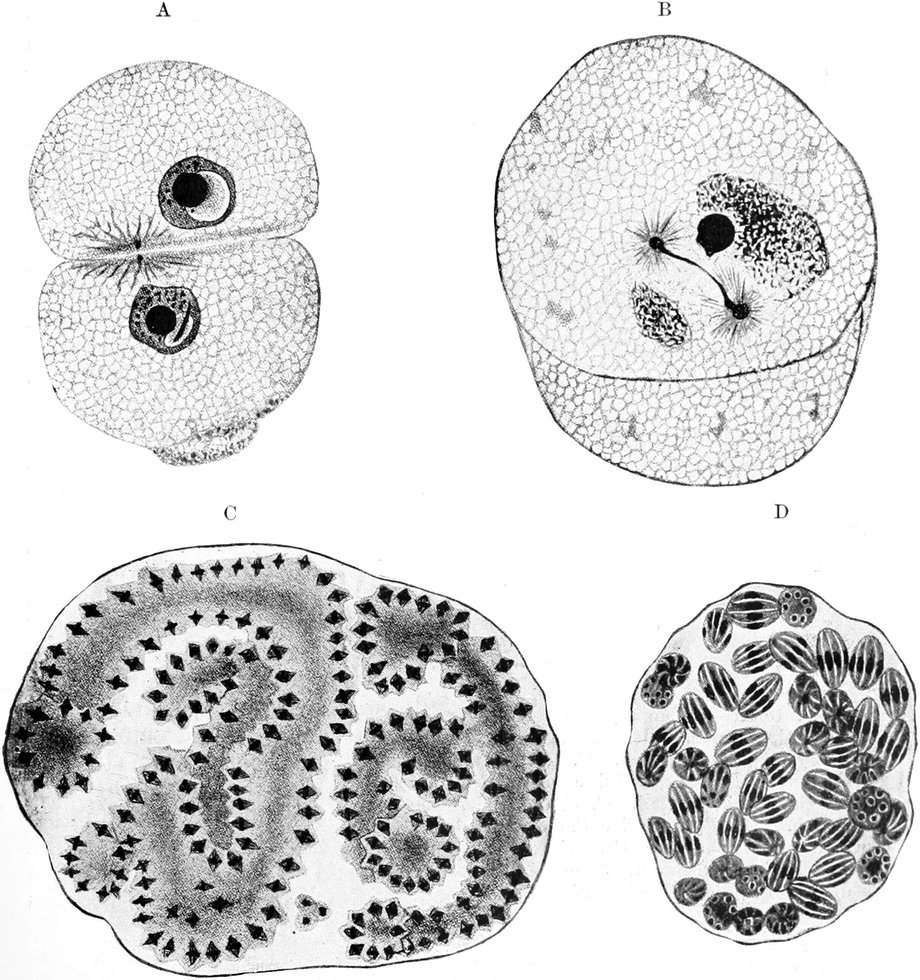
In jedem der beiden in der Cyste vereinigten Individuen, z. B. von Lankesteria ascidiae (nach Siedlecki), teilt sich der Kern, indem aus geringen Teilen des alten Kernes sich eine Spindel bildet, [S. 178]während der Hauptteil samt dem großen Amphinucleolus zugrunde geht, resp. im Zellplasma aufgelöst wird. Aus diesen winzigen Spindeln gehen Kerne hervor, welche sich fortgesetzt weiterteilen, so daß bald jedes der beiden encystierten Individuen von zahlreichen Kernen erfüllt ist (Fig. 185). Indem um jeden der schließlich resultierenden Kerne sich ein kleiner Plasmakörper sammelt, entstehen zahlreiche kugelige Gameten. Es sind Isogameten; sie sind in beiden gemeinsam encystierten Individuen, soweit wir bisher wissen, in Gestalt, Bau und Größe gleich. Sie lösen sich unter eigentümlich zitternden Bewegungen, deren Ursache noch nicht bekannt ist, von den vom Mutterorganismus übrig bleibenden umfangreichen Resten los, und durch ihre Vereinigung entstehen halb so viel Zygoten, als Gameten vorhanden waren. Es verschmelzen erst Zellplasma, dann alsbald die Kerne. Vor der Kopulation findet eine Reduktion der Kerne statt, in einzelnen Fällen eine sehr deutliche Reduktion der Chromosomenzahl. Die Gameten stammen auch bei den isogamen [S. 179]Gregarinen von je einem der in der Cyste sich vereinigenden Individuen ab.
In jeder Zygote vermehrt sich nach der Kopulation der Befruchtungskern; es entstehen 8 Kerne, dann umhüllt sich das ganze Gebilde mit einer Sporenhülle, und um jeden der 8 Kerne formt sich ein Sporozoit.
3. Die anisogame Kopulation.
Bei der anisogamen Kopulation sind die Gameten voneinander deutlich unterscheidbar: die Unterschiede können gering, sie können aber auch sehr groß sein. Sie können sich auf die Größe, auf die Form und den Bau der Gameten erstrecken. Mit dem Bau hängt die Bewegungsfähigkeit enge zusammen. In der Regel findet eine Differenzierung zwischen zwei Sorten von Gameten statt, von denen die eine größer, unbeweglicher, plumper in der Form und reicher an Reservestoffen ist, während die andere kleiner, beweglicher, schlanker gebaut und ganz arm an Reservestoffen ist.
Um den Ueberblick zu erleichtern, können wir 4 Gruppen unterscheiden:
a) Anisogamie zwischen Gameten von geringem Unterschied in Größe, Form und Beweglichkeit.
Es sind sowohl Fälle bekannt, in denen die wenig voneinander differenten Anisogameten beide Hologameten darstellen, als auch Fälle, in denen beide Merogameten sind. Mir ist dagegen kein Fall bekannt, in welchem bei geringen Unterschieden der eine Gamet einem ungeteilten [S. 180]Individuum entspräche, während der andere einer Zerteilung eines solchen seine Entstehung verdankte. Doch sind die hierhergehörigen Fälle noch wenig untersucht.
Prowazek beschreibt für Bodo lacertae (Grassi) die Kopulation von je zwei im Bau sehr ähnlichen, in der Größe ein wenig unterschiedenen Individuen (Hologameten). Diese verschmelzen miteinander, die Zygote kugelt sich ab und erhält späterhin eine Cystenhülle. Erst nach der Abkugelung erfolgt die Bildung von je zwei Reduktionskörpern durch jeden Gametenkern, worauf die letzteren verschmelzen (Fig. 188). Dann erfolgen mehrere Kernteilungen, durch welche zahlreiche junge Individuen entstehen, welche aus der Cyste ausschlüpfen und sich, nachdem sie herangewachsen sind, durch gewöhnliche Zweiteilung vermehren.
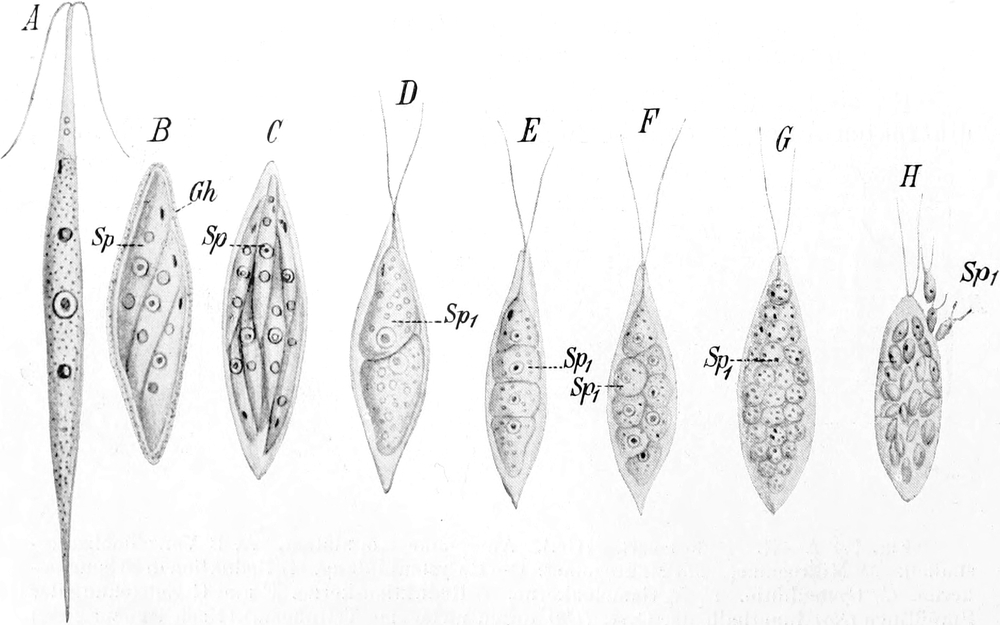
[S. 181]
b) Anisogamie zwischen Gameten von bedeutendem Unterschied in der Größe, geringem Unterschied in Bau und Bewegungsweise.
Die Erscheinungen in dieser Gruppe erscheinen mit denjenigen in der vorigen eng verbunden, indem nicht selten bei der gleichen Art beide Formen der Anisogamie vorkommen.
Als Beispiel führe ich die Kopulation bei Phacotus lenticularis an, welche von Carter (1858) studiert wurde. Da sie seither nicht nachuntersucht wurde, ist über das Verhalten der Kerne nichts bekannt. Die größeren Gameten entstehen aus den gewöhnlichen Individuen durch 2- oder 4-Teilung, die kleineren durch 64-Teilung.
Ganz ähnlich verhält sich Chlorogonium euchlorum Ehrb. nach Stein. Auch hier ist der Unterschied zwischen den Gameten fast nur in der Größe bedingt, welche durch den verschiedenen Teilungsmodus veranlaßt ist (Fig. 190).
Auch bei Chlamydomonadinen kommt diese Form der Anisogamie vor, wobei — wie aus Fig. 189 zu ersehen — vielfach der kleinere Gamet von dem größeren bei der Verschmelzung sozusagen aufgesaugt wird — ein Uebergang zu der unten behandelten vierten Gruppe von anisogamen Kopulationsvorgängen.
c) Anisogamie zwischen Gameten von geringem Unterschied in der Größe, von bedeutendem Unterschied in der Form und oft auch in der Beweglichkeit.
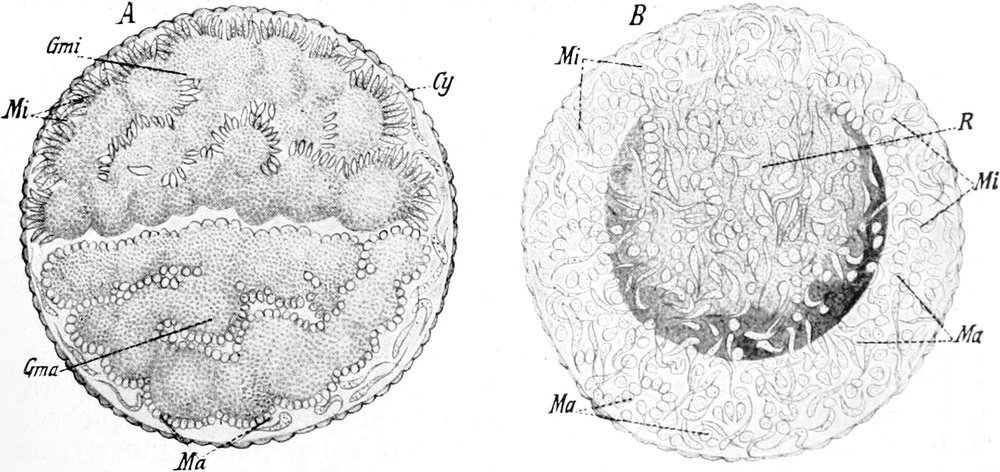
Bei den hierher gehörigen Formen finden wir vielfach schon sehr große Differenzierungen der Gametentypen. Damit im Zusammenhang ergibt sich eine große Mannigfaltigkeit im Bau der Gameten beider Typen. Es handelt sich stets um Merogameten, also Gameten, welche durch Vielfachteilung eines gewöhnlichen Individuums entstehen.
[S. 182]
Ein sehr gut studiertes Beispiel liefert die Anisogamie bei einigen Gregarinenfamilien, z. B. den Stylorhynchiden und Dactylophoriden (nach Léger). Bei Stylorhynchus longicollis F. St. legen sich, wie auch sonst bei den Gregarinen, zwei Individuen aneinander, bilden zusammen eine kugelige Cyste und zerfallen, nachdem bei ihnen immer deutlicher geschlechtliche Differenzierung erkennbar geworden war, in zahlreiche Gameten (Merogameten), welche die Oberfläche eines lappigen Restkörpers bedecken. Jede der beiden Gregarinen bildet eine besondere Sorte von Gameten. Die der einen sind kugelig; sie haben klares Plasma und einige stark lichtbrechende Granulationen, und sind vollkommen unbeweglich. Die Gameten, welche aus der zweiten Gregarine hervorgehen, sind lang und schlank, birn- oder spindelförmig, und besitzen einen schlanken, geißelartigen Schwanzfortsatz, welcher ihnen eine bedeutende Beweglichkeit verleiht[14]. Die schließlich zur Befruchtung gelangenden unter diesen beweglichen Gameten haben einen großen bläschenförmigen Kern und einen wohldifferenzierten, den Körper der Länge nach durchziehenden Faden im Innern (wohl eine formgebende Stütze). Wenn die Gameten ausgebildet sind, beginnen die beweglichen Gameten einen wilden Tanz, durch welchen die Gameten beider Sorten stark durcheinander gewürfelt werden. Dann erfolgt Kopulation zwischen je einem kugeligen, unbeweglichen und je einem birnförmigen, beweglichen Gameten, welche zur Abkugelung und Kernverschmelzung führt.
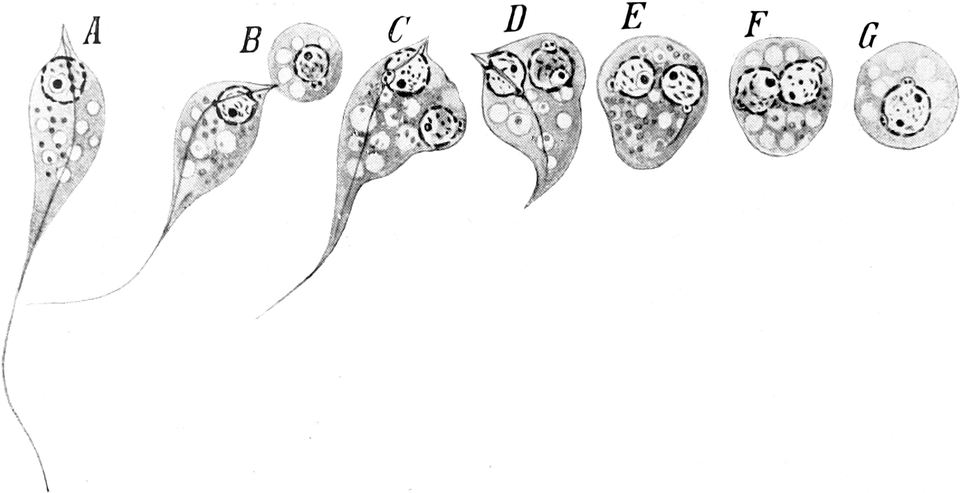
Die so entstandenen Zygoten nehmen eine längliche abgeplattet-dreieckige Form an; der Kopulationskern vermehrt sich durch Teilung auf 8, und indem die typische Gregarinensporocyste sich bildet, sondern sich um die Kerne die 8 Sporozoiten. Uebrigens ist hervorzuheben, daß bei den Gregarinen außer den geschilderten Befruchtungstypen noch eine große Zahl von Modifikationen der Gametendifferenzierung vorkommt. Man kann bei ihnen eine vollständige Reihe nachweisen, welche in kontinuierlichen Uebergängen von vollkommener Isogamie bis zu extremer Anisogamie führt. Details darüber, sowie über die theoretische Bedeutung dieser Uebergänge finden sich im speziellen Teil dieses Buches.
[S. 183]
Einen sehr eigenartigen Typus der Anisogamie hat Schaudinn bei Centropyxis aculeata beschrieben. Bei diesem Süßwasserthalamophoren kriecht aus den großen alten Individuen das gesamte Plasma mit der Chromidialmasse aus der Schale heraus, in welcher der degenerierende Kern zurückbleibt. Das von feinen Chromidialpartikeln durchsetzte Protoplasma zerfällt in eine größere Anzahl von kleinen Amöben, welche aus der Chromidialmasse je einen Kern rekonstruieren. Die Amöben aus den einzelnen Individuen verhalten sich verschieden. Die einen bilden direkt eine Schale, kriechen umher und häufen in ihrem Plasma Reservekörper an. Die anderen teilen sich und ihren Kern durch zwei Teilungsakte, so daß 4 kleinere Amöben entstehen, welche sich ebenfalls mit einer Schale versehen. Die Schalen weichen in der Form etwas von derjenigen der gewöhnlichen Individuen ab. Diese größeren und kleineren beschalten Individuen stellen die Gameten dar, welche sich — je ein großer und ein kleiner — paarweise mit den Mündungen aneinanderlegen, worauf die Plasmaleiber und die Kerne verschmelzen. Die Zygote wird von einer kugeligen Hülle in den Mündungen der leeren Gametenschalen umschlossen und verharrt längere Zeit im Ruhezustand. Dann kriecht aus ihr ein amöboider Organismus aus, der sich bald mit einer Schale umgibt, ein Chromidialnetz um den Kern herum ausbildet und sich zu einem typischen Agameten von Centropyxis entwickelt.
d) Anisogamie zwischen Gameten von bedeutendem Unterschied in Größe, Form und Beweglichkeit.
In dieser letzten Gruppe sind diejenigen Formen der Protozoenkopulation enthalten, welche am meisten an die Befruchtung bei den Metazoen erinnern. Während die eine, kleinere Sorte von Gameten immer mehr in Bau, Bewegung und Funktion an Spermatozoen erinnert, wird die größere, reservestoffreichere Gametenform einem Metazoenei immer ähnlicher.
Ein ausgezeichnetes Beispiel für die verschiedenen Stufen der Ausbildung dieses Kopulationsmodus bieten die Coccidien und Hämosporidien. Bei den Arten der Coccidiengattung Adelea z. B. differenzieren sich (nach Siedlecki) im Laufe der Entwicklung zweierlei Sorten von Individuen, aus denen die Gameten entstehen. Beide Sorten von Gameten entstehen durch Teilungsvorgänge als Merogameten. Die großen Gameten entstehen aus den zahlreichen kleinen Keimen, in welche sich ein Agamet geteilt hat; sie wandern in Zellen des Wirtes ein und wachsen zu großen reservestoffreichen Gameten heran. Die kleine Sorte entsteht durch Teilung eines Agameten in wenige reservestoffarme Individuen, welche je zu einem der großen Gameten hinwandern und sich an ihn anlegen, um die Kopulation zu vermitteln. Ehe diese eintritt, erfolgt in beiden Individuen ein Vorbereitungsprozeß, welcher sehr an die Reifungserscheinungen bei den Geschlechtszellen der Metazoen erinnert. In dem großen reservestoffreichen Gameten rückt der Kern an die Oberfläche und schnürt eine Art von primitivem Richtungskörper ab, indem er einen Teil seiner Substanz in Form eines Klumpens über die Zelloberfläche hinaus ausstößt. Unterdessen geht in dem kleineren Individuum eine zweimalige Kernteilung vor sich. Von den entstandenen 4 Kernen gehen 3 zugrunde, einer tritt in den großen [S. 184]Gameten ein und kopuliert mit dessen Kern, wobei ein eigenartiges Gebilde, die sog. Befruchtungsspindel, entsteht (Fig. 193). Sie kondensiert sich allmählich zum Befruchtungskern der Zygote, rückt in deren Mitte und teilt sich wiederholt. Indem um jeden der so entstehenden [S. 185]15–25 Kerne sich ein Protoplasmaklumpen absondert und dieser eine Schale ausbildet, entstehen die Sporen, in denen eine nochmalige Kernteilung zur Bildung der sichelförmigen Keime, der Sporozoiten führt.
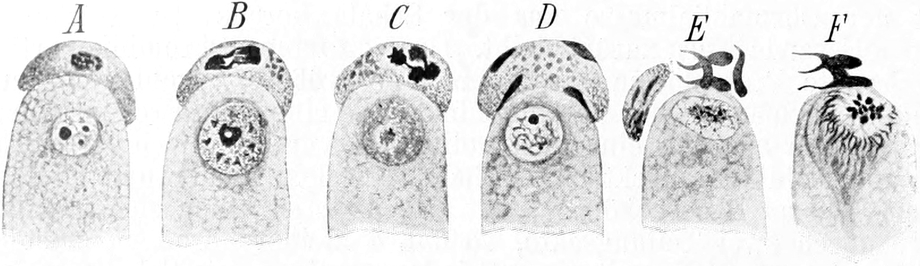
Bei Coccidium finden wir einen Fortschritt hauptsächlich darin, daß die sehr zahlreichen Gameten der kleinen Sorte durch die Konzentrierung des Chromatins, die Ausbildung zweier Geißeln und die lebhafte Beweglichkeit vollkommen den Eindruck von Spermatozoen machen. Sie entstehen durch einen eigentümlichen Kernteilungsvorgang und wandern erst nach ihrer vollständigen Ausbildung zum großen Gameten hin, mit dem ihr Kern alsbald verschmilzt, während der Bewegungsapparat abgeworfen wird und zugrunde geht (Fig. 194). Der Befruchtung schließt sich auch hier die Bildung von Sporen an.
Im Prinzip sehr ähnlich ist die Kopulation bei den Hämosporidien. Die zur Gametenbildung bestimmten Individuen wandeln sich, wenn sie aus dem Blut des Zwischenwirts in den Magen des blutsaugenden Wirts gelangt sind, in große und kleine Gameten um. Die letzteren, [S. 186]welche wiederum durch einen Teilungsvorgang aus einem größeren Gametocyten hervorgehen, sind fadenförmige, lebhaft bewegliche Gebilde. Je einer vereinigt sich mit einem der großen Gameten; der letztere streckt einen Plasmabuckel nach Art eines Empfängnishügels vor, und an dieser Stelle dringt der fadenförmige Gamet ein, und zwar mit seiner ganzen Substanz. Nachdem er sich mit dem Kern des großen Gameten vereinigt hat, wird die Zygote beweglich und wandert in die Darmwand des Blutsaugers ein, wo sie im Laufe der Zeit einer sehr großen Anzahl von Keimen den Ursprung gibt.
Noch mehr an die Befruchtung bei den Metazoen erinnert die Kopulation bei den Flagellaten aus der Familie der Volvociden. Wie die höheren Formen dieser Gruppe in ihrem ganzen kolonialen Bau den Uebergang zu Metazoen bilden, so sind auch ihre Gameten vollkommen den Eiern und Spermatozoen entsprechend.
Wir finden ja bei den Volvociden alle Uebergänge von der Isogamie bis zu derjenigen Form der Anisogamie, welche man wegen der eben erwähnten Aehnlichkeit mit der Metazoenbefruchtung auch als Oogamie bezeichnet. Wir haben oben (S. 176) die Isogamie bei Stephanosphaera kennen gelernt. Auch die Gameten von Pandorina morum sind noch recht primitiv und erinnern sehr an diejenigen der Chlamydomonaden; wir hätten sie oben S. 176 mitbehandeln können. Auch ist bei ihnen die vorhandene Größenverschiedenheit inkonstant (Fig. 195).
[S. 187]
Bei Eudorina ist der Unterschied zwischen den Gameten vollkommen ausgeprägt (Fig. 196). Die kolonialen Vereinigungen von 32 Individuen sind als Ganzes entweder „männlich“ oder „weiblich“ (Diöcie). Im letzteren Falle bleiben alle 32 Zellen als große Gameten ungeteilt, im ersteren teilt sich jede in zahlreiche kleine Gameten, welche etwa spindelförmig sind und 2 Geißeln am Vorderende tragen. Sie schwärmen als ganzes Paket aus, suchen weibliche Kolonien auf und bleiben an den Geißeln der großen Gameten hängen; dann zerfallen die Pakete von kleinen Gameten, dieselben dringen in die Kolonie der großen Gameten ein, und je einer der ersteren befruchtet einen der letzteren. Das Resultat der Befruchtung ist auch hier eine ruhende Zygote. Ganz ähnlich verläuft der Befruchtungsakt auch bei den Volvoxarten.
B. Die Befruchtung durch Konjugation.
Während die zuletzt betrachteten Fälle von Kopulation die größte Annäherung an die Befruchtungsweise der Metazoen darstellten, entfernen sich die jetzt zu besprechenden Befruchtungsvorgänge sehr weit von diesem unter den Organismen am weitesten verbreiteten Typus und stellen einen sehr interessanten Spezialfall dar.
Die typische Konjugation besteht in der vorübergehenden Vereinigung zweier Individuen von gleicher oder verschiedener Größe, welche untereinander Kernsubstanzen austauschen. Bei denjenigen Formen, bei denen die sexuelle Differenzierung (extreme Größenverschiedenheit der Konjuganten) den höchsten Grad erreicht hat (Peritrichen), verschmelzen die Konjuganten dagegen dauernd und der Befruchtungsvorgang gewinnt dadurch eine große äußere Aehnlichkeit mit der anisogamen Kopulation.
Die Individuen, welche sich bei der Konjugation der Infusorien zu einem Geschlechtsakt vereinigen, verhalten sich nicht wie Geschlechtszellen, sondern eher wie Geschlechtstiere, welche Geschlechtsprodukte hervorbringen. Die letzteren sind nicht freiwerdende Zellen, sondern nur Kerne. Obwohl sie uns nun fast wie von dem Infusor produzierte Gameten erscheinen, sind sie doch von solchen zu unterscheiden; denn durch ihre Vereinigung wird das ganze Infusor „befruchtet“, nicht nur der Mikronucleus. Um aber Unklarheiten zu vermeiden, nennen wir die konjugierenden Tiere nicht „Gameten“, sondern verwenden den indifferenten Ausdruck Konjuganten.
1. Die isogame Konjugation.
Die Konjugation der Ciliaten ist in ihren Erscheinungen vor allem durch das Vorhandensein zweier Kernarten, des Makro- und Mikronucleus (vgl. unten) kompliziert. Wir betrachten zunächst eine Form mit je einem Makro- und Mikronucleus.
Bei den häufigsten, freilebenden Infusorien findet man in den Kulturen in der Regel nach einiger Zeit Individuen paarweise vereinigt, welche sich äußerlich von den gewöhnlichen vegetativen Individuen höchstens durch etwas geringere Größe unterscheiden lassen. Gewöhnlich sind diese Individuen in der Region der Cytostome miteinander verschmolzen; während der Konjugation schwinden meist die Differenzierungen der Cytostomregion, vor allem der Cytopharynx. In[S. 188] den Konjuganten wandeln sich die Kerne folgendermaßen um: Der Makronucleus, der hauptsächlich für die vegetativen Funktionen von Bedeutung ist, zerfällt allmählich in kleine Partikel, welche resorbiert werden, und [S. 189]zwar erfolgt Zerfall und Resorption häufig erst gegen den Schluß der Konjugationsperiode; bei dem von uns abgebildeten Infusor Paramaecium putrinum geht der Zerfall des Makronucleus so ziemlich [S. 190]parallel mit den Veränderungen am Mikronucleus. Der Mikronucleus spielt seine wichtigste Rolle während der Konjugation. Er teilt sich zunächst in jedem der beiden Gameten durch zweimalige Mitose in 4 Mikronuclei (Fig. 197 A–D). Diese gehen nun sämtlich wieder in Spindelbildung über, in jedem Konjuganten wird die Teilung jedoch nur von einem von ihnen vollendet, während die 3 anderen Spindeln regressive Umwandlungen erleiden und resorbiert werden.
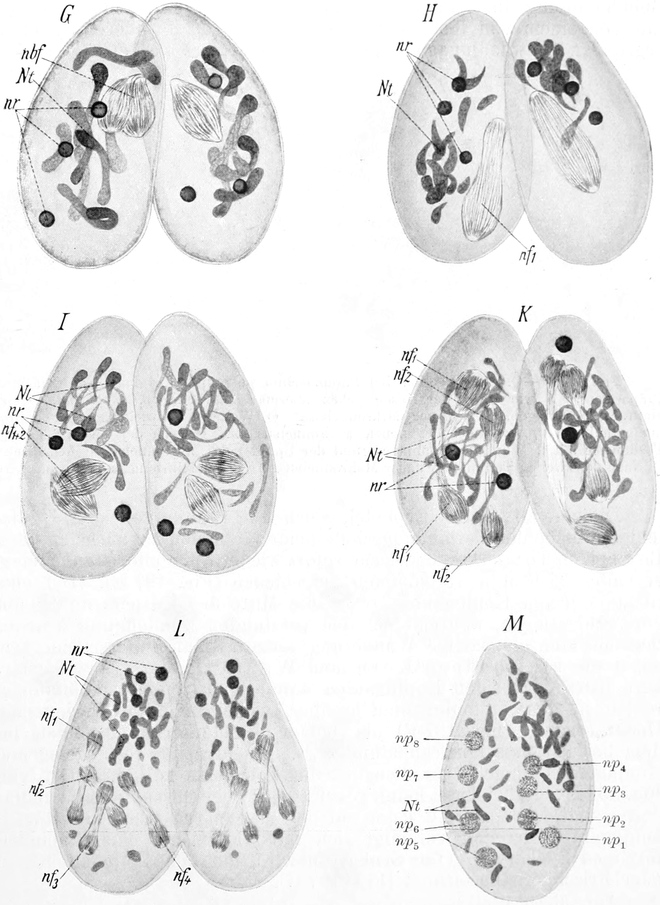
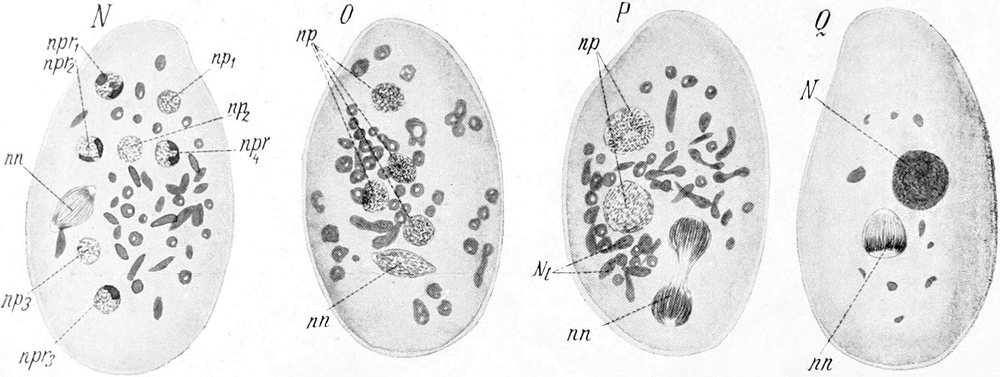
Die eine Mikronucleusspindel, welche die Teilung vollendet, ist diejenige, welche der Verbindungsstelle beider Gameten am nächsten liegt. Ihre beiden Tochterkerne, welche sofort wieder Spindelform annehmen, verhalten sich nun vollkommen verschieden (Fig. 197 E). Der eine rückt in jedem Konjuganten gegen die Mitte des Körpers und bleibt dort ruhig liegen, während der den vereinigten Mundöffnungen näher liegende eine eigenartige Wanderung antritt. Man unterscheidet sie daher als stationären Kern und Wanderkern. Der Wanderkern jedes der beiden Konjuganten wandert durch die Mundöffnungsregion in den Mitkonjuganten hinüber, wobei in dieser Region eine Ueberkreuzung (Fig. 197 E) der beiden Wanderkerne stattfindet, indem bei Paramaecium caudatum z. B. derjenige des rechtsgelegenen Konjuganten immer über dem des linksgelegenen vorbeiwandert (vgl. Fig. 197 F). Dabei findet keine gegenseitige Beeinflussung der Wanderkerne statt, vielmehr eilt jeder auf den stationären Kern des Gegenkonjuganten los und vereinigt sich mit diesem zu einem spindelförmigen Synkaryon. (Das Synkaryon wird auch als Konjugationskern oder Frischkern bezeichnet (Fig. 197 G).)
Auf diese Weise ist jeder der beiden Konjuganten befruchtet worden. Jeder der beiden Konjuganten hat dann nur einen organisierten Kern, alle übrigen Kernreste sind schon resorbiert oder in der Resorption begriffen. Um diesen Zeitpunkt herum lösen sich meist die konjugierenden Individuen wieder voneinander, bei manchen, so bei Paramaecium putrinum, in der Regel erst etwas später. Aus der Konjugation gehen also zwei wechselseitig befruchtete Individuen [S. 191]hervor, zwei Zygoten entsprechende Individuen. Freilich ist hervorzuheben, daß jedes Individuum zur Befruchtung seines Partners nur durch Abgabe von Kernsubstanz beigetragen hat.
Es müssen nun weitere Vorgänge eintreten, um den normalen Bau des Infusors wieder herbeizuführen. Zunächst rekonstruiert sich in den Fällen, wo er resorbiert worden war, der Cytopharynx wieder, so daß die Tiere wieder Nahrung aufnehmen können. Bei manchen Formen scheint er übrigens während des ganzen Konjugationsvorganges intakt zu bleiben, wenn auch nicht zu funktionieren. Im Kernapparat wird die normale Organisation erst in der zweiten oder dritten Generation der Nachkommen des befruchteten Konjuganten erreicht.
Es teilt sich nämlich nicht etwa das Synkaryon einfach in eine Mikronucleus- und eine Makronucleusanlage, sondern es entstehen durch drei Teilungsakte 8 Kerne vom Typus des Mikronucleus, von denen bei manchen Arten (z. B. Paramaecium caudatum, jedoch nicht bei dem abgebildeten P. putrinum) 4 in der vorderen und 4 in der hinteren Hälfte des Tieres liegen. Von den 4 hinteren gehen 3 zugrunde und werden resorbiert, einer wird zum ständigen Mikronucleus. Die 4 vorderen werden sämtlich, indem sie wachsen und chromatinreich werden, zu Makronucleusanlagen, welche aber nicht für das eine Individuum bestimmt sind, sondern durch zwei Teilungsschritte auf 4 Individuen verteilt werden.
24–30 Stunden nach der Trennung der Konjuganten teilt sich nämlich jeder derselben, wobei sein neuer Mikronucleus sich mitotisch auf zwei vermehrt, während von den 4 Makronuclei jedes Tochtertier 2 erhält. Nach weiteren 20 Stunden etwa erfolgt die zweite Teilung, bei welcher nun jedes Individuum nur einen Makronucleus erhält. Damit ist die normale Organisation wieder erreicht, wenn auch manchmal noch bei der 2. und 3. metagamen Teilung sich Reste der in der Resorption begriffenen Teile der vernichteten Kerne erkennen lassen. Bei den letzterwähnten Vorgängen lassen sich mannigfache Variationen nachweisen, indem die Verteilung der Makronucleusanlagen durchaus nicht immer ganz gleichmäßig vor sich geht.
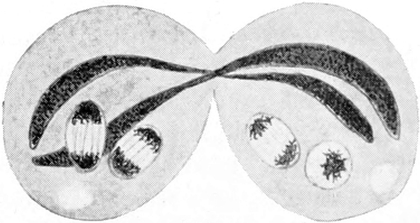
Nicht bei allen Formen sind die Vorgänge gleichartig. So wird z. B. für die im Blute von Krebsen parasitierende Anoplophrya branchiarum angegeben, daß bei ihr von den 4 Teilprodukten, welche aus dem Synkaryon hervorgehen, je einer den definitiven Mikro- und Makronucleus liefert, während die beiden anderen zugrunde gehen. Diese interessante Form sei auch deswegen hier erwähnt, weil bei ihr nach der ganz normal verlaufenden Befruchtung des stationären Mikronucleus durch den Wanderkern, in jedem der Konjuganten der kuglige Makronucleus zu einem langen Strang auswächst und mit seiner einen Hälfte in den anderen Konjuganten eindringt (Fig. 198). Die getrennten Exkonjuganten besitzen also zwei halbe Makronuclei und die eine Hälfte rührt von ihrem Partner her. Die Teilstücke verschmelzen aber nicht, sondern gehen zugrunde und [S. 192]werden resorbiert, während sich der Kernapparat in der üblichen Weise rekonstruiert.
Bei Lionotus parvus Prow. bilden 2 der 4 aus dem Synkaryon hervorgehenden Produkte die miteinander verschmelzenden Anlagen des zweiteiligen Makronucleus, einer den Mikronucleus, während nur einer zugrunde geht.
Der ganze Konjugationsvorgang nebst Folgeerscheinungen dauert bei Paramaecium caudatum (bei 20–25°):
|
Konjugation
|
12
|
Stunden
|
|
Rekonstruktionsphase bis zur
1. metagamen Teilung
|
24–30
|
„
|
|
von da zur 2. metagamen
Teilung
|
20
|
„
|
|
Total
|
56–62
|
Stunden.
|
Sehr bemerkenswert ist, daß oft nach der Konjugation lange Zeit vergeht, ehe eine neue Teilung eintritt, und ferner, daß sich beide Individuen in ihrer Teilungsfähigkeit nach der Konjugation oft sehr verschieden verhalten.
2. Die anisogame Konjugation.
Bei den ciliaten Infusorien kommt vielfach auch anisogame Konjugation vor, wie wir unten sehen werden, in viel weiterer Verbreitung, als gewöhnlich beobachtet wird. Der extremste Fall liegt bei den Vorticelliden vor, bei welcher nur ein Individuum befruchtet wird, im Gegensatz zur wechselseitigen Befruchtung der gewöhnlichen Ciliaten.
Bei den Vorticelliden unterscheiden wir eine große und eine kleine Sorte von Konjuganten. Erstere sind von den gewöhnlichen Individuen nicht zu unterscheiden, letztere entstehen aus solchen durch zwei rasch aufeinanderfolgende Teilungen, also durch Vierteilung eines Individuums, wobei die Größenverringerung nicht durch Wachstum ausgeglichen wird. Diese kleinen Individuen ziehen ihre Peristomscheibe ein, entwickeln einen hinteren Wimperkranz, und nachdem sie sich vom Stiel losgelöst haben, schwärmen sie umher.
Sie suchen einen der großen Konjuganten auf, legen sich an dessen Seitenwand an und beginnen mit seinem Körper zu verschmelzen. Der kleine Konjugant verliert seine hohe Organisation, indem zahlreiche seiner Organellen, zum Teil durch Resorption verschwinden. Sein Entoplasma und sein Kernapparat treten jedoch gänzlich in das Innere des großen Konjuganten, während ektoplasmatische und pelliculare Bestandteile außerhalb bleiben und zugrunde gehen (Fig. 199).
Die Vorgänge an den Kernen führen unter ganz ähnlichen Erscheinungen, wie wir sie bei der isogamen Konjugation kennen lernten, zur Befruchtung, aber es kommt keine wechselseitige Befruchtung zustande, sondern es handelt sich um eine Befruchtung des großen Konjuganten durch den kleinen.
Die Makronuclei beider Konjuganten zerfallen in zahlreiche kleine Granulationen, welche resorbiert werden. Der Mikronucleus des großen Konjuganten teilt sich in 4 Kerne, von denen 3 zugrunde [S. 193]gehen, während der vierte durch Spindelbildung zur Entstehung eines stationären und eines Wanderkernes führt. Der Mikronucleus teilt sich in 8 Deszendenten, von denen 7 zugrunde gehen, während der 8. durch Teilung den Wanderkern bildet, der sich mit dem stationären Kern des großen Konjuganten zum Synkaryon vereinigt. Sein stationärer Kern wird jedoch von dem Wanderkern des großen Konjuganten nicht befruchtet, sondern sie gehen beide, nachdem sie sich einander genähert haben, zugrunde und unterliegen der Resorption.
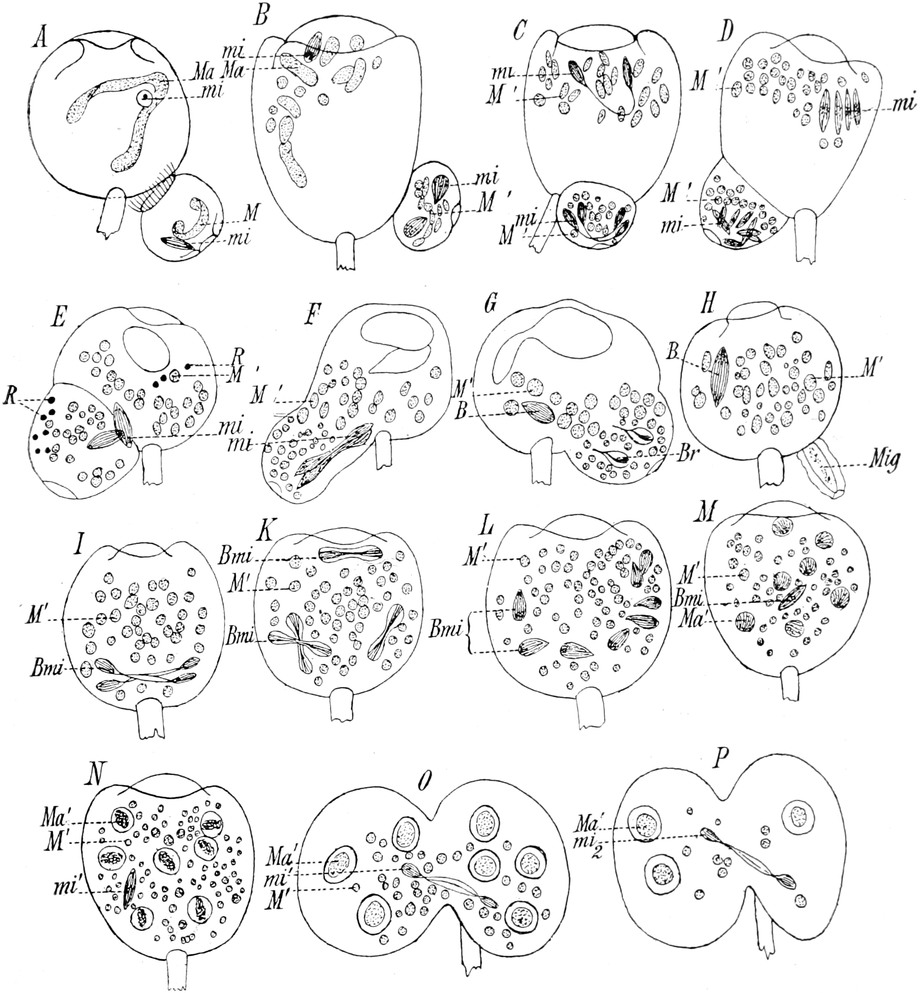
[S. 194]
Es entsteht also nur eine Zygote aus dem Befruchtungsvorgang, während das andere Individuum zugrunde geht. Dessen Synkaryon, der einzige organisierte Kern, den das Tier enthält, teilt sich in 8 Kernanlagen, von denen eine sofort als Mikronucleus funktioniert, während die 7 anderen sich allmählich zu Makronuclei ausbilden. In ähnlicher Weise wie bei der isogamen Konjugation werden sie durch die drei ersten metagamen Teilungen auf 7 Individuen verteilt, so daß also dann 7 gewöhnliche Individuen mit je einem Mikro- und einem Makronucleus vorhanden sind. Es entsteht zuerst ein Individuum mit 3 und eines mit 4 Makronuclei. Während das letztere sich gleichmäßig (2 : 2, dann 1 : 1) weiterteilt, erfolgt bei dem ersteren erst eine Teilung mit Verteilung 2 : 1; dann teilt sich das Individuum mit den zwei Makronuclei noch einmal in der atypischen Weise und verteilt seine Makronuclei auf die zwei Nachkommen. Das 7. Individuum hat also, um die normale Kernorganisation zu erreichen, eine Teilung weniger durchzumachen als seine Mitsprößlinge. Im übrigen kommen bei der Verteilung ähnliche Variationen vor wie bei der isogamen Konjugation.
C. Allgemeines über die Befruchtung bei den Protozoen.
Nachdem wir in dem vorhergehenden Abschnitt die wichtigsten Typen der Befruchtung bei den Protozoen an konkreten Beispielen kennen gelernt haben, wird es sich nützlich erweisen, die Befruchtungserscheinungen bei den Protozoen nach einheitlichen Gesichtspunkten zusammenfassend zu erörtern. Dabei soll zunächst wiederum rein deskriptiv vorgegangen werden, theoretische Erörterungen sind in ein spezielles, später folgendes Kapitel verwiesen.
I. Die Gameten der Protozoen.
Wir haben bei den verschiedenen Formen der Befruchtung bei den Protozoen eine verschieden hohe Differenzierung der Gameten kennen gelernt, wobei in der von uns durchgeführten Anordnung die bei der Isogamie beiden Gameten gleichmäßig zukommenden Eigenschaften in steigendem Maße auf zwei Sorten von Gameten verteilt erschienen. Bei dem gegenwärtigen Stand unseres Wissens können wir uns kaum entscheiden, ob wir die vollkommen übereinstimmende Ausbildung beider Gameten oder ihre weitgehende Differenzierung für den ursprünglichen Zustand erklären sollen, zumal uns die Verteilung der Befruchtungstypen bei den verschiedenen Gruppen der Protisten keinen Anhaltspunkt gewährt. Vielmehr kommen bei höheren und niederen Protozoen Isogamie und Anisogamie vor, ohne daß wir eine Gesetzmäßigkeit für das Vorkommen bisher erkennen könnten.
Wir gehen daher bei unserer Darstellung zunächst einmal von der heuristischen Hypothese aus, daß die ursprünglichste Gametenform die Isogameten seien. Dafür scheint die Tatsache zu sprechen, daß die Isogameten vielfach als fakultative Gameten aufzufassen sind, während mit steigender Differenzierung die Anisogameten immer mehr zu spezifischen Gameten werden; d. h. sie sind Individuen, welche nur durch die erfolgreiche Befruchtung der Erhaltung der Art zu dienen vermögen. Die vollkommensten Anisogameten vermögen sich nur in beschränktem Maße oder gar nicht selbst zu [S. 195]ernähren, und sie haben keine Fähigkeit, sich durch Teilung fortzupflanzen. Infolgedessen gehen sie zugrunde, wenn sie nicht zur Vereinigung untereinander gelangen (z. B. Coccidiengameten).
Demgegenüber finden wir in der Literatur vielfach Angaben, daß Isogameten von wenig differenziertem Bau sich, ehe sie zur Vereinigung gelangen, längere Zeit selbständig zu ernähren und durch mehrfache Teilungen zu vermehren vermögen. Dies gibt z. B. Schaudinn für die Gameten von Paramoeba Eilhardi, Prandtl für diejenigen von Cryptodifflugia an etc. Zwar scheinen uns diese Fälle etwas zweifelhaft. Aber sowohl in der älteren als auch in der neueren Literatur, besonders über Flagellaten, wird in einer ganzen Anzahl von Fällen für Isogameten oder für kaum differenzierte Anisogameten eine ziemlich weitgehende selbständige Vermehrungsfähigkeit mit großer Bestimmtheit beschrieben (z. B. bei Bodo lacertae nach Prowazek).
Diesen schließen sich die Fälle mit fakultativer Anisogamie an; bei Polytoma uvella z. B. entstehen aus gewöhnlichen Individuen durch Vierteilung die Gameten. Dieselben kopulieren meist isogam; manche von ihnen wachsen aber heran, und so kommt es nicht selten zu einer wenigstens in der äußeren Erscheinung anisogamen Kopulation, indem ein großer und ein kleiner Gamet sich zu einer Zygote vereinigen. Auch können die Gameten von Polytoma nach Krassilstschik sich durch gewöhnliche Teilung vermehren, ehe sie zur Kopulation schreiten. Aehnliches scheint auch bei anderen Chlamydomonadinen vorzukommen. Ebenso sehen wir bei einer Anzahl von Ciliaten, z. B. Chilodon, Stylonychia etc., nicht selten kleinere Individuen mit größeren konjugieren, eine Erscheinung, deren theoretische Bedeutung wir sogleich noch zu erörtern haben werden.
In all diesen Tatsachen zeigt sich eine geringe Fixierung der Gameteneigentümlichkeiten. Bei den ganz hoch differenzierten Gameten dagegen, bei den kleinen, spermatozoenähnlichen Gameten von Sporozoen und Flagellaten sind die Fähigkeiten zur selbständigen Ernährung und Vermehrung erloschen.
Dagegen sind bei den gleichen Protozoenarten die den Metazoeneiern ähnlichen großen Gameten in vielen Fällen zu einer selbständigen Entwicklung ohne vorhergehende Kopulation fähig. Es sind das die Fälle, welche man als „Parthenogenesis der Gameten“ beschrieben hat. Bekanntlich führt Schaudinn die Malariarezidive auf eine solche Parthenogenesis der im Blut des Zwischenwirts noch befindlichen Gameten zurück. Die großen Gameten vermehren sich in Ausnahmefällen wie gewöhnliche Individuen, nachdem sie einen Teil ihres Kerns eliminiert haben. (Wenn Schaudinns kurze Angabe sich bestätigt, daß bei Plasmodium vivax ähnlich wie bei dem Haemoproteus noctuae diese Parthenogenesis auf einem komplizierten Selbstbefruchtungsakt beruht, dann haben wir in diesem Vorgang wohl doch einen Beweis für hohe spezifische Differenzierung des Gameten zu erblicken.)
Wir haben in einem der vorigen Abschnitte (S. 179 u. ff.) die wichtigsten anisogamen Befruchtungstypen beschrieben, ohne die verschieden weit differenzierten Gameten durch einheitliche Bezeichnungen zu homologisieren. Für unsere weiteren Betrachtungen wird aber ein Versuch hierzu notwendig sein.
[S. 196]
Man hat sich gewöhnt, bei den Formen mit hochdifferenzierten Anisogameten die kleinen, lebhaft beweglichen, spermatozoenähnlichen Formen als Mikrogameten von den großen, eiähnlichen Formen, den Makrogameten zu unterscheiden. Wenn wir die verschiedenen Bautypen der weniger hoch differenzierten Gameten untersuchen, so sehen wir, daß eine Definition zum Teil auf große Schwierigkeiten stößt. Wenn wir von der oben begründeten Fiktion ausgehen, daß es sich bei der Ausbildung von Anisogameten um eine immer strengere Verteilung von Eigenschaften ursprünglich gleichartiger Isogameten auf zwei Sorten von Gameten handelt, so ist leicht zu verstehen, daß die Kombination von Eigenschaften für jede der Gametensorten bei manchen Arten von der häufigsten Verteilungsnorm abweichen kann.
Die Mikrogameten sind in der Regel klein, viel kleiner als die zugehörigen Makrogameten und als die agamen Individuen, sie sind beweglich, auch wenn letztere unbeweglich sind, sie sind arm an Reservestoffen. Sie besitzen die Fähigkeit, die Makrogameten aktiv aufzusuchen und sich mit ihnen zu vereinigen. Im Bau gleichen sie in der Regel Flagellaten. Man unterscheidet an ihnen einen ovalen oder länglich-gestreckten Plasmaleib, einen meist bläschenförmigen Kern, als Fortbewegungsorganellen eine oder mehrere Geißeln (vgl. Fig. 200 A–F) (selten ist amöboide Beweglichkeit). Je differenzierter die Mikrogameten sind, um so mehr gleichen sie in ihrem Bau den Spermatozoen der Metazoen. Sie werden sehr langgestreckt, der Plasmaleib [S. 197]wird immer unbedeutender, und die Kernsubstanz überwiegt an Masse. Auch ist der Kern dann nicht mehr bläschenförmig, sondern die Kernsubstanz stellt einen dichten, kompakten Körper dar, oder sie ist sogar in dem Mikrogametenkörper in Chromidienform verteilt. Die Fortbewegungsorganellen nehmen einen immer größeren Anteil am Aufbau des Mikrogameten; in manchen Fällen ist der ganze Körper spirochätenähnlich beweglich (vgl. Fig. 200 G–M).
Je mehr die Mikrogameten differenziert sind, je ähnlicher sie Spermatozoen geworden sind, um so mehr weichen sie in Größe, Form und Beweglichkeit von den zugehörigen Makrogameten ab.
Die Makrogameten sind in der Regel groß, sie übertreffen oft die agamen Individuen an Größe, sie sind meist weniger beweglich als die zugehörigen Mikrogameten, ihr Plasma ist reich an Reservestoffen. Sie werden von den Mikrogameten aufgesucht und scheiden vielfach Stoffe aus, welche auf diese chemotaktisch anlockend wirken.
Während die beweglichen Mikrogameten sich vielfach morphologisch kaum von den zugehörigen Mikrogameten unterscheiden, also z. B. wie Flagellaten gebaut sind (vgl. Fig. 201 A u. B), können wir unter den unbeweglichen eine Reihe aufstellen, welche in allmählicher Progression zu vollkommen eiähnlichen Makrogameten führt. Solche [S. 198]eiähnliche Makrogameten, bei denen auch die Befruchtungsvorgänge sehr an diejenigen der Metazoen erinnern, finden wir hauptsächlich bei den Flagellaten und Sporozoen (vgl. Fig. 201 C–L).
Nicht immer sind die Makrogameten größer als die Mikrogameten. Bei der Gregarine Stylorhynchus (Fig. 201 E) sind z. B. durch Léger kleine, unbewegliche Gameten mit geringem Reservestoffmaterial nachgewiesen worden, welche von größeren, beweglichen, reservestoffhaltigen Gameten (Fig. 200 E) befruchtet werden. Es ist daher Willkür, wenn wir die ersteren Makro-, die letzteren Mikrogameten nennen. Solche Fälle lehren uns, daß die Natur sich nicht in das Schema zwängen läßt, welches wir zur Erleichterung des Ueberblicks aufstellen.
Bei dem gleichen Stylorhynchus tritt auch noch eine zweite Sorte von beweglichen Gameten auf (Fig. 200 E2), welche nach Léger nie zur Kopulation gelangen, und von denen dieser Autor daher annimmt, daß sie nur zur Durcheinanderwirbelung der Mikro- und Makrogameten in der Cyste dienen (Mikrogametoïde).
II. Männlicher und weiblicher Typus der Gameten.
Die am weitesten differenzierten Gameten, welche wie Spermatozoen und Eier gebaut sind, veranlassen zum Vergleich mit den Geschlechtszellen der Metazoen und damit zur Annahme von zwei Geschlechtern. Unzweifelhaft ist eine der Differenzierung in männliche und weibliche Individuen bei den Metazoen analoge Erscheinung bei den Protozoen nachweisbar. Die theoretischen Zusammenhänge sollen weiter unten erörtert werden. Hier sei nur hervorgehoben, daß wir wegen der einfachen und verständlichen Terminologie, welche sich daraus ergibt, Mikrogameten als männliche und Makrogameten als weibliche Elemente bezeichnen. Daher werden also auch Individuen, aus denen Mikrogameten sich entwickeln, als männliche den weiblichen Individuen gegenübergestellt, welche Makrogameten aus sich hervorgehen lassen.
III. Die Reifungserscheinungen bei den Protozoengameten.
Unter „Reifung“ verstehen wir bei den Geschlechtsprodukten der Metazoen eine Anzahl von Erscheinungen, welche 1) der Geschlechtszelle ihre spezifische Differenzierung geben und 2) sie in ihrem Kernbau von einer somatischen Zelle verschieden machen. Die spezifische Differenzierung wird durch Wachstums- und Entwicklungsvorgänge erreicht, welche von ähnlichen Vorgängen an somatischen Zellen nicht abzuweichen scheinen. Die Kernveränderungen jedoch, die „Reduktionserscheinungen“, sind für die Geschlechtszellen charakteristisch. Das Resultat der Reduktionserscheinungen ist, daß der große chromatinreiche Kern des unreifen Eies in einen kleinen, relativ chromatinarmen Kern verwandelt wird, welcher nur halb so viel Chromosomen enthält, wie eine somatische Zelle. Bei diesem Vorgang ist vor allem bei der weiblichen Geschlechtszelle ein großer Teil von Substanz des Eikerns in das umgebende Protoplasma ausgestoßen worden; die Reduktion der Chromosomenzahl erfolgte durch die Richtungskörperbildung des verkleinerten Kerns in der bekannten Weise. An den Kernen der Spermamutterzellen gehen analoge Veränderungen vor sich, so daß bei der Befruchtung durch Vereinigung von zwei Geschlechtskernen [S. 199]mit je der halben Normalzahl von Chromosomen in dem befruchteten Ei die volle Normalzahl wieder erreicht wird.
Auch bei den Protozoen sind entsprechende Erscheinungen beobachtet worden. Allerdings erlauben unsere noch sehr lückenhaften Kenntnisse noch keine durchgehende Homologisierung aller Vorgänge, und es ist bei der Beurteilung der Befunde noch große Vorsicht angezeigt. Vor allen Dingen ist im Auge zu behalten, daß wir, durch teleologische Deutung der Reifungserscheinungen bei den Metazoen veranlaßt, bei den Protozoen nach entsprechenden Vorgängen suchen und infolgedessen verleitet werden können, heterogene Erscheinungen zusammenzufassen, wenn morphologische Berührungspunkte mit den uns bekannten Erscheinungen vorliegen.
Wenn wir die sog. Reifungserscheinungen bei den Protozoen kritisch überblicken, müssen wir vorerst eine Sonderung vornehmen zwischen denjenigen Vorgängen, welche nur eine Verringerung der Masse färbbarer Substanzen in den Gameten herbeiführen, und denjenigen Vorgängen, durch welche eine Halbierung der Chromosomenzahlen erzielt wird.
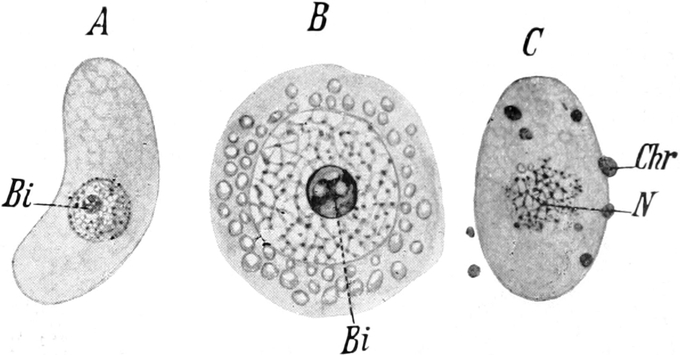
Vorgänge der ersteren Art sind bei Amöben (Entamoeba coli nach Schaudinn), Coccidien (Coccidium Schubergi nach Schaudinn, anderen Arten nach verschiedenen Autoren), Gregarinen (Gregarina ovata nach Kuschakewitsch, Aggregata nach Moroff, Lankesteria ascidiae nach Siedlecki, verschiedenen Arten nach Léger etc. etc.) und bei anderen Formen mit genügender Sicherheit in den Vorbereitungsstadien der Gameten nachgewiesen worden. Die Massenverringerung erfolgt bei dem Makrogameten von Coccidium Schubergi z. B. (Fig. 202 A–C) durch Ausstoßung des Binnenkörpers des Kerns. Unter eigenartigen Kontraktionserscheinungen des Coccidienkörpers tritt der Binnenkörper aus dem Kern aus und zerstäubt explosionsartig in feine Tröpfchen, welche aus dem Weichkörper herausgeschleudert werden. Der befruchtungsreife Makrogamet enthält in seinem Kern keinen Binnenkörper (Karyosom) mehr.
Bei anderen Coccidien werden nur Teile des Binnenkörpers ausgestoßen, wieder bei anderen bleibt er während der Befruchtungsvorgänge erhalten, um später erst aufgelöst zu werden.
Für eine Reihe von Protozoen wird eine den Befruchtungsstadien vorausgehende Auflösung des Gametenkerns beschrieben, welcher eine Rekonstruktion eines kleineren, chromatinärmeren Kerns nachfolgt (Entamoeba, Gregarinen; bei letzteren in den Mutterzellen der Gameten).
[S. 200]
Vielleicht sind mit diesen auch die merkwürdigen Kernveränderungen in Beziehung zu setzen, welche bei einer Anzahl von Rhizopoden von Schaudinn, R. Hertwig, Goldschmidt beobachtet worden sind. Bei Foraminiferen und Thalamophoren z. B. sollen chromatische Substanzen aus dem Kern austreten, und während dieser selbst zugrunde geht, sollen aus diesen Chromidien die viel kleineren Kerne der Gameten entstehen.
Es handelt sich also in all diesen Fällen nur um Verringerung der Masse färbbarer Substanzen im Gametenkern. Das regelmäßige Vorkommen dieser Erscheinung weist auf ihre Bedeutung für das Zustandekommen des Befruchtungsvorganges hin.
Ein Vergleich dieser Vorgänge mit der Reifung der Metazoengeschlechtszellen darf sich demgemäß nur auf die auch bei solchen nachgewiesene Ausstoßung von ungeformten chromatischen Substanzen aus dem Kern und dessen damit zusammenhängende Verkleinerung erstrecken.
Als „Reduktion“ im eigentlichen Sinne wird aber bei den Metazoen die durch zwei eng verknüpfte, rasch aufeinander folgende Kern- und Zellteilungen bewirkte oder wenigstens in ihrem Verlauf sichtbar werdende Reduktion der Chromosomenzahl bezeichnet. Unsere Kenntnis von solchen Vorgängen bei den Protozoen ist noch viel zu gering, als daß wir aufklärende Beziehungen zu dem Geschehen bei den Metazoen nachweisen könnten. Sie liefern uns daher kein Material zu den bekannten Chromosomen-Vererbungstheorien.
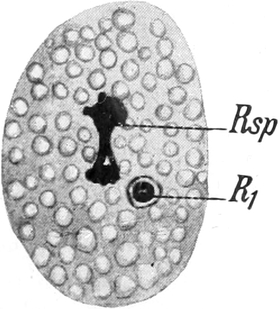
Bei den meisten Formen schließen wir auf das Vorkommen von Reduktionsteilungen nur aus dem gesetzmäßigen Auftreten von zwei rasch aufeinander folgenden Teilungen, welche der Gametenreife vorausgehen, und welche in den äußeren Modalitäten sehr an die Richtungskörperbildung oder an die Spermareifung erinnern.
Wir haben z. B. Richtungskörperbildung oben schon kennen gelernt bei den Isogameten von Actinophrys (S. 173, Fig. 179), bei Actinosphaerium (s. unten Fig. 212, S. 207). Bei der Coccidie Cyclospora caryolytica werden ebenfalls zwei „Reduktionskerne“ im Makrogameten gebildet, welche allerdings längere Zeit im Plasma desselben verweilen, ehe sie ausgestoßen werden (Fig. 203). Bei Herpetomonas, Bodo lacertae und Trichomastix lacertae werden nach v. Prowazek die Richtungskerne ebenfalls noch längere Zeit im Plasma zurückgehalten und dann resorbiert. Bei Hämosporidien scheinen ganz typische Richtungskörper gebildet zu werden (Plasmodium vivax nach Schaudinn, vgl. Fig. 215, S. 212). Bei den Volvociden, deren Makrogameten [S. 201]ja vollkommen an Metazoeneier erinnern, kommen nach Hartmann echte Reifungsteilungen vor.
Bei den Myxosporidien schließt man aus dem Zugrundegehen gewisser Kerne bei der Sporenbildung darauf, daß es sich um Reduktionskerne handle.
Die Mikrogameten der Coccidien und Hämosporidien werden meist in größerer Anzahl gebildet. So z. B. bei Coccidium Schubergi, bei welcher Art Schaudinn Auflösung des Kerns und Rekonstruktion von kleinen Gametenkernen ohne Benutzung des Binnenkörpers beobachtet hat. Er deutet diesen Vorgang als Chromatin-Massenreduktion in dem oben dargelegten Sinn (Fig. 204).
Bei den Adelea-Arten jedoch, bei denen aus einem Mikrogametocyten nur vier Mikrogameten entstehen, haben wir Teilungsvorgänge vor uns, welche mit größerem Recht den Reduktionsteilungen angereiht werden (Fig. 193, S. 184).
Schon Maupas und R. Hertwig haben infolge der Regelmäßigkeit, mit welcher bei der Konjugation der Infusorien jeder der Mikronuclei der Konjuganten vor der Karyogamie zwei Teilungen durchmacht, gefolgert, daß es sich dabei um Reifungsteilungen handele. Auch hat Hertwig festgestellt, daß bei Paramaecium aurelia in den Geschlechtskernen weniger Chromatinelemente (etwa die Hälfte) als in den gewöhnlichen Nebenkernen vorhanden sind. Prandtl war der erste, welcher bei Didinium nasutum nachwies, daß es sich wirklich dabei um eine Zahlenreduktion der Chromosomen handele, indem deren Zahl vor diesen Teilungen im Mikronucleus 16, nach denselben aber nur 8 beträgt, so daß infolgedessen durch die Karyogamie die Normalzahl wiederhergestellt werden kann.
Diese Ergebnisse wurden neuerdings bestätigt, so von Popoff, welcher bei Carchesium polypinum eine Chromosomenreduktion im Mikronucleus ebenfalls von 16 auf 8 feststellte, von Collin, welcher bei Anoplophrya branchiarum ebenfalls im Mikronucleus Reduktion von 6 auf 3 Chromosomen bei der zweiten Reifeteilung fand, ferner von Enriquez, der bei Chilodon eine Reduktion von 4 auf 2 Chromosomen angibt.
Diese Befunde lassen also die Deutung der ersten Mikronucleusteilungen bei den Infusorien als Reifungsteilungen durchaus berechtigt erscheinen.
Dabei bleibt es allerdings zweifelhaft, in welcher Weise die dritte Teilung der Mikronuclei vor der Befruchtung, also die Teilung in stationären und Wanderkern zu erklären sei. Boveri faßt sie als eine verfrühte „erste Furchungsteilung“ resp. deren Homologon auf, während Bütschli der Ansicht ist, daß sie eine besondere Anpassung [S. 202]an die besonderen Anforderungen der partiellen Konjugation mit wechselseitiger Befruchtung darstellt.
Auch bei Gregarinen sind wiederholt Reduktionsteilungen angegeben worden. Ein sehr klares Beispiel hat neuerdings Mulsow beschrieben, der bei Monocystis rostrata bei der Gametenbildung eine Reduktion von 8 auf 4 Chromosomen nachwies (Fig. 205).
Infolge der sehr knappen Form der Publikation sind die von Schaudinn und Prowazek für Flagellaten angegebenen Fälle von Chromosomenreduktion nicht vollkommen sicher zu beurteilen. Schaudinn hat bei Haemoproteus noctuae eine Reduktion von 8 auf 4 „Chromosomen“, bei Leucocytozoon Ziemanni eine solche von 16 auf 8 beschrieben, Prowazek bei Herpetomonas, Trypanosoma Lewisi und Brucei Reduktion von 8 auf 4. Nach Schaudinn wird bei seinen Objekten „durch eine Reihe komplizierter Reifungsvorgänge unter Bildung von Vierergruppen, die dann bei den Reduktionsteilungen aufgeteilt werden“, bei beiden Geschlechtern die Normalzahl der Chromosomen auf die Hälfte reduziert.
Reifungserscheinungen sind also bei den Protozoen vielfach beobachtet. Die Vorgänge dabei und ihre Bedeutung sind noch wenig erforscht. Es ist daher sicherlich ein Fehler, wenn manche Autoren die hier auseinandergehaltenen Erscheinungen ohne weiteres homologisieren, wenn sie z. B. Ausstoßung des Karyosoms und Richtungskörperbildung für gleichwertige Erscheinungen halten. Gerade der Umstand, daß bei nahe verwandten Arten (z. B. Coccidium Schubergi und Cyclospora caryolytica) bei der einen nur Ausstoßung des Karyosoms, bei der anderen nur Richtungskörperbildung beim Makrogameten nachgewiesen ist, beweist, daß die Erforschung der Reifungsvorgänge noch sehr lückenhaft ist.
IV. Die Annäherung und Verschmelzung der Gameten.
Die Tatsache, daß die Gameten, welche zur Vereinigung kommen, sich gegenseitig auffinden, ist vielfach durch komplizierte Vorgänge bedingt. In der gesamten lebenden Natur zeigt sich eine Tendenz, die Befruchtung zwischen „blutsverwandten“ Gameten zu vermeiden und die Vereinigung von Gameten von verschiedener Abstammung[15] [S. 203]zu befördern. Diese teleologische Formulierung der an vielen Objekten gemachten Erfahrungen ist nur als deskriptiv und vorläufig anzusehen. Vielleicht werden die hier zu behandelnden Tatsachen mit der Zeit wichtige Kausalzusammenhänge in den Befruchtungsvorgängen aufhellen.
Auch bei den Protozoen ist in manchen Fällen eine auffällige Neigung zur Fremdbefruchtung und zur Vermeidung der Verwandtenbefruchtung angegeben worden. So berichtet Schaudinn, daß bei Foraminiferen (Polystomella) die aus dem gleichen Individuum stammenden Gameten nicht zur Kopulation gelangen, sondern umherschwärmen, bis sie zugrunde gehen. Dagegen tritt sogleich Kopulation ein, wenn man Gameten aus verschiedenen Mutterindividuen zusammenbringt. Das gleiche gibt er für Chlamydophrys stercorea an. Hieronymus hat bei Stephanosphaera pluvialis beobachtet, daß zwar innerhalb derselben Kolonie Kopulation von Gameten stattfindet, aber nur, wenn letztere verschiedenen Einzelzellen entstammen. Und so existieren in der Literatur noch mancherlei Angaben, welche aber meist der Kontrolle bedürfen. Z. B. wird auch angegeben, daß in Infusorienkulturen eine erhöhte Neigung zur Konjugation sich zeigt, wenn man verschiedene Kulturen miteinander mischt. Dem stehen jedoch Angaben von Bütschli, Calkins u. Jennings gegenüber, welch letzterer z. B. zeigte, daß die Abkömmlinge eines Individuums von Paramaecium in denselben Zeitabständen konjugieren, wie diejenigen der Stammkultur.
Wenn in der Natur in der Regel nur Abkömmlinge verschiedener Individuen kopulieren, so müssen die Gameten die Möglichkeit besitzen, einander zu finden. Das ist, wie die Erfahrung lehrt, durch ganz verschiedenartige Mittel, verwirklicht. Aber nur in einer beschränkten Zahl von Fällen kennen wir bereits diese Mittel.
Bei Gregarinen erfolgt zum Teil sehr frühzeitig eine Vereinigung von zwei Individuen, welche später die Gameten aus sich hervorgehen lassen (Fig. 207). Diese Individuen sind also wahrscheinlich schon frühzeitig männlich resp. weiblich differenziert. Bei einigen Formen ist diese Differenzierung an den verschiedenen Reservesubstanzen und dem Verhalten gegen Farbstoffe schon in recht frühen Stadien durch Léger und Duboscq nachgewiesen worden. Sie wachsen gemeinsam heran, indem sie mit je einem Ende aneinander geheftet sind, und lassen nach gemeinsamer Encystierung die Gameten aus ihrem Körper hervorgehen.
Bei Coccidien aus der Gattung Adelea beobachtet man eine Verklebung der Mikrogametencysten mit den Makrogametencysten, wobei [S. 204]die Reifeerscheinungen erst nach der Verklebung an beiden erfolgen; von den 4 entstehenden Mikrogameten gelangt meist nur der eine zum Eindringen in den Makrogameten (Fig. 184, S. 193).
Aber auch in diesen Fällen muß schon frühzeitig eine Differenz zwischen beiderlei Individuen vorliegen, und es müssen daher besondere Gesetzmäßigkeiten sein, welche je ein weibliches Individuum mit einem männlichen zusammenführen.
Am leichtesten lassen sich diese Gesetzmäßigkeiten noch verstehen in den Fällen, wo beiderlei Gameten sich erheblich unterscheiden. Wo bewegliche Mikrogameten einen unbeweglichen Makrogameten befruchten, haben wir vielfach Grund, anzunehmen, daß die Abscheidung einer Substanz durch den Makrogameten eine chemotaktische Anlockung der Mikrogameten zur Folge hat: so wie die Apfelsäure, welche im Archegonium der Farnprothallien ausgeschieden wird, auf deren Spermatozoiden anlockend wirkt.
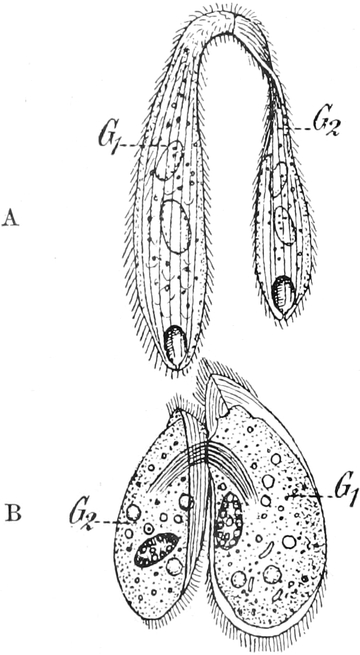
Damit stimmen die Beobachtungen (vor allem Schaudinns) überein, welcher eine deutliche Anlockung der Mikrogameten durch den Makrogameten bei Coccidien und Hämosporidien dann eintreten sah, wenn durch Ausstoßung des Karyosoms Substanz aus dem Makrogameten in seine Umgebung entleert war. Exakte Versuche über diese Frage existieren jedoch noch nicht.
Daß die zur Vereinigung gelangenden Individuen in der Zeit vor der Befruchtung sich in einem besonderen chemischen Zustand befinden, welcher vor allem ihre Oberflächen betrifft, und welcher sie zu Verschmelzungen besonders geeignet macht, dafür sind Beobachtungen an verschiedenen Protozoen ein Beweis. Infusorien verkleben vor der Konjugation sehr leicht mit ihren Oberflächen untereinander, und es kommt gar nicht selten vor, daß 3–4 Individuen zu einer abnormen Konjugation sich vereinigen.
Bemerkenswert ist ferner, daß sich selbst bei meist als isogam beschrieben Formen nicht selten eine Verschiedenheit der beiden zur Vereinigung kommenden Konjuganten in Gestalt und Größe erkennen läßt; so z. B. bei vielen holotrichen und hypotrichen Infusorien, wie die Abbildungen Fig. 208 A und B zeigen. So können wir wenigstens vermuten, daß die Vereinigung bei solchen Formen durch eine substantielle Verschiedenheit der Konjuganten veranlaßt wird.
Eine solche substantielle Verschiedenheit könnte entweder bedingt sein durch verschiedene Abstammung oder durch die Verschiedenheit der während der Entwicklung einwirkenden äußeren Bedingungen oder schließlich durch erbungleiche Teilung.
Den wenigen Beobachtungen, welche für Kreuzbefruchtung zwischen Individuen von verschiedener Abstammung bei den Protozoen sprechen, [S. 205]stehen zahlreiche Erfahrungen gegenüber, welche zeigen, daß die in einer Kultur gehaltenen Infusorien, die in einem Wirt lebenden Coccidien und Hämosporidien in großer Anzahl die zur Kopulation geeigneten beiden Sorten von Gameten aus sich hervorgehen lassen, obwohl sie oft nur von einem Individuum abstammen können (reine Linien bei Paramaecium nach Jennings). Auch kommt bei ihnen Kopulation zustande. Schaudinn hat allerdings für einige Formen angegeben, daß sich in allen Stadien die männlichen und weiblichen Individuen unterscheiden lassen, so für Cyclospora caryolytica, Leucocytozoon Ziemanni und Haemoproteus noctuae. Bei Cyclospora caryolytica sind diese verschiedenen Formen auch als Agameten sehr leicht voneinander zu unterscheiden, nicht nur durch den verschiedenen Gehalt an Reservestoffen, sondern auch durch die verschiedene Form der Zellteilung und das Vorhandensein eines Restkörpers im weiblichen (Fig. 210 C) und dessen Fehlen im männlichen Geschlecht (Fig. 209 C).
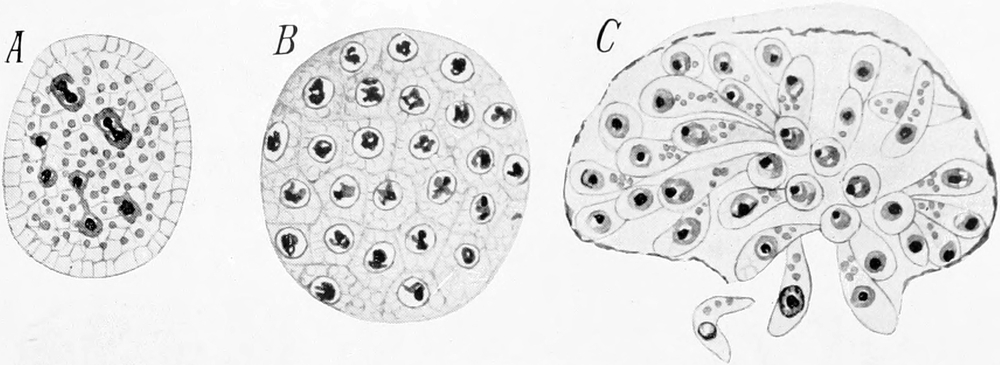
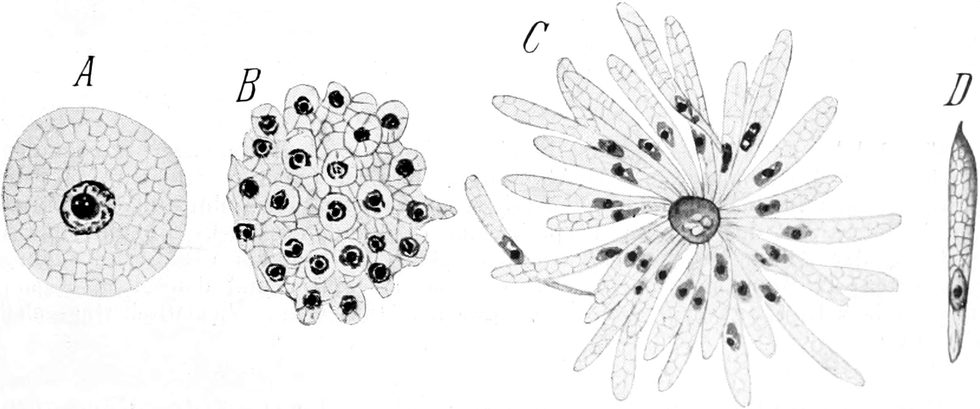
Aber auch in diesem Falle müßte es sich um nichts anderes handeln, als um eine frühzeitig erfolgte Determinierung des Geschlechts, wobei wohl der Einfluß äußerer Faktoren wirksam gewesen sein kann. Daß solche geschlechtlich determinierte Agameten sich, ehe sie geschlechtsreif werden, noch einigemal ungeschlechtlich fortpflanzen, würde sich an die oben (S. 195) erwähnten Fälle von Fortpflanzung von Gameten anschließen. In jedem Fall stammen aber solche weiblichen und männlichen „Agameten“ von befruchteten weiblichen Individuen ab.
[S. 206]
Das Bemerkenswerte ist eben, daß sich in allen genannten Fällen unter natürlichen Bedingungen am gleichen Orte immer die beiden differenten Formen von Gameten bilden, so daß die Befruchtung ermöglicht wird. Es muß also ein gewisser Zusammenhang zwischen den an einem Ort vereinigten Individuen vorliegen, welcher das Auftreten der beiden Geschlechter bedingt. Es frägt sich nun, ob diese Gesetzmäßigkeit durch innere oder äußere Faktoren bedingt ist.
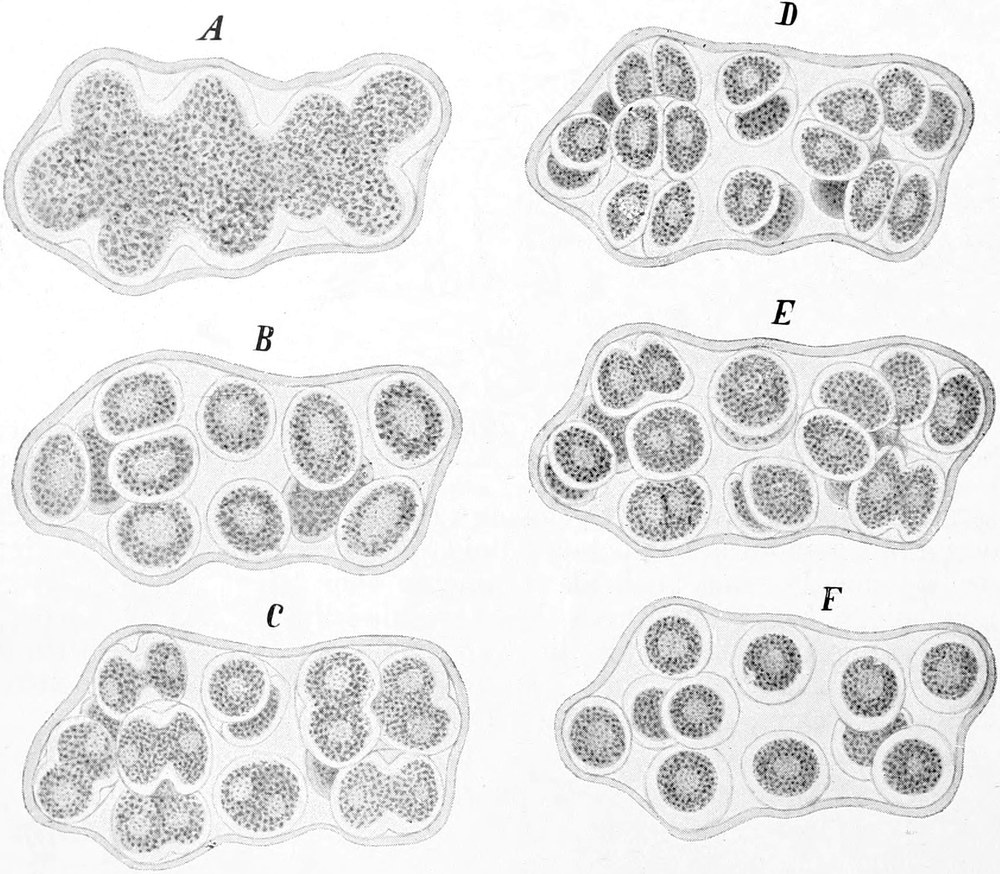
Was am meisten gegen die versuchte Erklärung der Vereinigung von Gameten infolge von substantieller Verschiedenheit sprechen könnte, das sind die Fälle von Autogamie, welche bei einer ganzen Anzahl von Protozoen beschrieben worden sind.
Autogamie ist bei Protozoen erst in der letzten Zeit nachgewiesen worden. Man versteht unter der Bezeichnung Autogamie einen Befruchtungstypus, bei welchem alle wesentlichen Vorgänge sich im Protoplasma einer Zelle abspielen. Autogamie in diesem Sinne ist also eine extreme Ausbildung des Befruchtungstypus, welcher Automixis genannt wird und in welchem alle Fälle von Selbstbefruchtung zusammengefaßt werden. Charakteristisch für [S. 207]Automixis ist die Produktion beider zur Kopulation gelangenden Gameten durch ein Individuum.
Der am besten bekannte Fall von Automixis bei den Protozoen ist die Kopulation bei Actinosphaerium Eichhorni. Bei diesem vielkernigen Heliozoon geht der Befruchtung eine Auflösung eines Teiles der Zellkerne voraus. Das Tier encystiert sich, indem es sich abkugelt, die Pseudopodien einzieht und eine Gallerthülle abscheidet. Innerhalb dieser „Muttercyste“ wird die Zahl der Kerne von 20–500 auf ca. 5 Proz. dieser hohen Zahlen reduziert; diese Verminderung der Kernzahl erfolgt durch Auflösung und Resorption. (Doch sollen vorher sämtliche Kerne paarweise verschmolzen sein.)
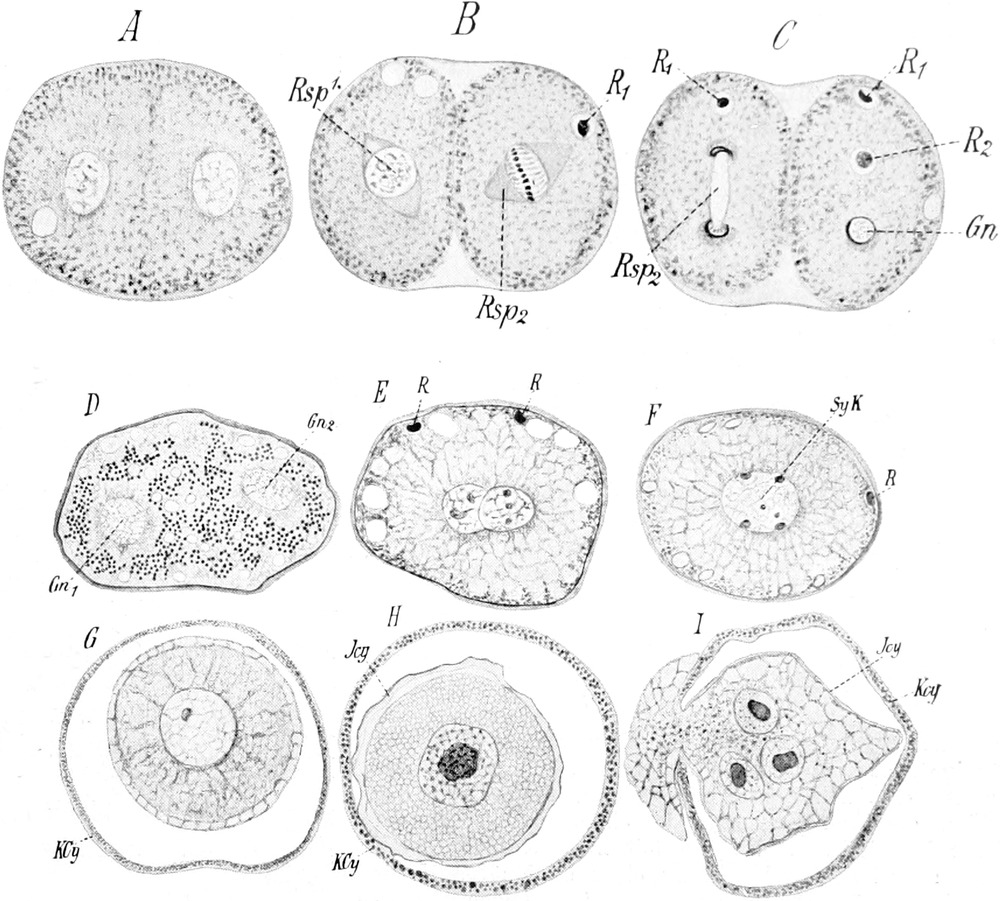
Nachdem die Kernzahl vermindert ist, zerfällt die Muttercyste in ebensoviel Tochtercysten, wie nunmehr Kerne vorhanden sind. Nach einer Mitose des Kerns zerfällt sodann jede Tochtercyste in zwei Nachkommen, die Gameten. In jedem derselben erfolgt nun eine Vorbereitung der Kopulation durch Bildung von zwei „Richtungskörpern“; der Gametenkern teilt sich mitotisch, von den entstehenden Kernen schrumpft alsbald der eine zusammen, er wird aus dem [S. 208]Plasma herausgedrängt und geht zugrunde. Nachdem der Gametenkern wieder gewachsen ist, wiederholt sich der Vorgang, wodurch der zweite Reduktionskörper gebildet wird. In der Aequatorialplatte der ersten Richtungsspindel lassen sich doppelt soviel chromosomenähnliche Verdichtungen von Chromatin nachweisen, wie in derjenigen der zweiten Richtungsspindel. Somit liegt hier offenbar ein Fall von echter „Reduktion“ vor.
Die durch den Reduktionsvorgang gereiften Gameten, von denen, wie erwähnt, je zwei Schwesterindividuen in einer gemeinsamen Gallerthülle vereinigt sind, verschmelzen darauf miteinander, und ihre Kerne nähern sich einander und verschmelzen, so daß wir in der Zygote einen großen, mit stattlichem Binnenkörper versehenen Kopulationskern (das Synkaryon) vorfinden. Die Zygote scheidet noch eine Gallerthülle und eine dem Protoplasma dicht anliegende Cystenwand ab; im Innern der komplizierten Umhüllungen liegen die Zygoten oft mehrere Wochen im Ruhezustand. Dann erfolgen Teilungen des Kerns, und aus der Cyste kriechen junge Actinosphärien mit einigen Kernen aus.
Wir haben also hier Kopulation von zwei nächstverwandten Individuen (Schwestertieren) vor uns, welche in einwandfreier Weise durch zusammenhängende Beobachtung am Lebenden sichergestellt wurde. Diese Beobachtung weicht vollkommen von all unseren sonstigen Erfahrungen in der organischen Welt ab.
Diese Form der Kopulation bezeichnet man auch als Pädogamie, um dadurch zum Ausdruck zu bringen, daß die kopulierenden Gameten erst ganz frisch aus einer Vermehrung der Mutterzelle hervorgegangen waren. Es sind noch eine ganze Anzahl ähnlicher pädogamer Befruchtungsvorgänge bei Protozoen beschrieben worden, so bei Polytoma, bei Mycetozoen, bei Myxomyceten, ferner bei Protophyten und Bakterien.
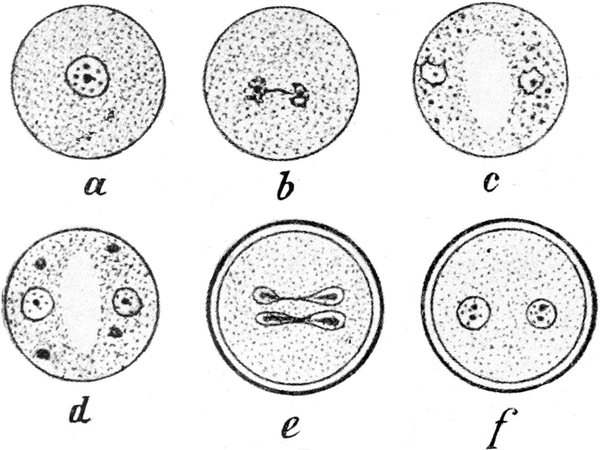
Die Pädogamie leitet direkt über zur eigentlichen Autogamie. Der am genauesten studierte Autogamievorgang kommt bei den parasitischen Darmamöben vor. Schaudinn hat ihn zuerst für Entamoeba coli beschrieben, und seither sind seine Befunde an einigen anderen parasitischen Amöben bestätigt und in einigen weniger wichtigen Punkten berichtigt worden. Bei Entamoeba coli encystiert sich ein einzelnes Tier, dessen Kern sich in zwei Tochterkerne teilt, welche an zwei Pole der Cyste rücken. Im Plasma bildet sich zwischen ihnen eine Lücke. Dann treten Chromidien aus den Kernen aus: letztere [S. 209]bilden je 2 Reduktionskerne, die zugrunde gehen (Fig. 213 d). Die beiden reduzierten Kerne vereinigen sich nicht sogleich, sondern, ähnlich wie wir dies bei der Konjugation der Infusorien kennen gelernt haben, teilt sich jeder von ihnen in einen stationären und einen Wanderkern; d. h. durch Verlängerung der Kernspindel bei der Teilung wird je einer der Tochterkerne in die gegenüberliegende Hälfte der Cyste geschoben, wo er mit dem zurückgebliebenen Tochterkern der anderen Spindel verschmilzt (Fig. 213 e u. f). Hier liegt also eine Doppelbefruchtung vor, es resultieren zwei befruchtete Kerne.
Die vorübergehend auftretende Lücke im Plasma kann wohl als die Andeutung einer unterdrückten Teilung gelten. Es zeigt uns also dieser Typus der Befruchtung zugleich, wie die Autogamie aus der Pädogamie abgeleitet werden kann.
Bei Trichomastix lacertae ist nach der Darstellung von Prowazek ein typischer Verlauf der Autogamie leicht zu konstatieren. Wie Fig. 214 erkennen läßt, geht hier aus einem einkernigen Individuum durch die autogame Befruchtung wieder eine einkernige Zygote hervor.
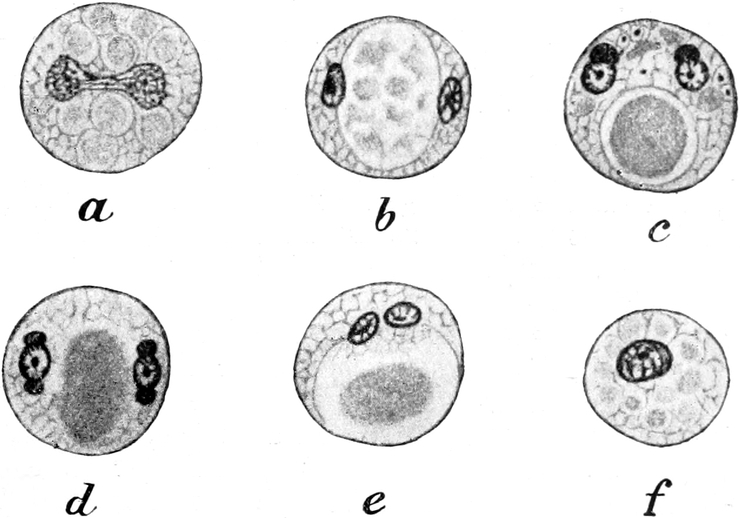
Typische Fälle von Autogamie werden nun ferner bei einigen Amöben, Flagellaten, Myxosporidien angegeben.
Pädogamie und Autogamie machen, wie Hartmann ganz mit Recht hervorhebt, durchaus den Eindruck, als seien sie durch Rückbildung aus einer typischen Befruchtung, einer Amphimixis von Geschlechtszellen verschiedener Herkunft, abzuleiten.
Das gilt in noch ausgesprochenerer Weise für die sogenannte Parthenogamie. Als solche ist eine Automixis (eine Selbstbefruchtung) in einer geschlechtlich differenzierten Gametenzelle zu bezeichnen. Unter Umständen sieht man Gameten zu einer intensiven Vermehrung und Produktion von Agameten schreiten, ohne daß eine Befruchtung durch Amphimixis vorausgegangen wäre. Sie vermehren sich also „parthenogenetisch“. Der Parthenogenesis soll nun ein Vorgang der Selbstbefruchtung vorausgehen, wie er ja auch bei der Parthenogenese von Metazoen beobachtet worden ist, bei denen z. B. ein Reduktionskern [S. 210]mit dem Eikern in einem Selbstbefruchtungsakt verschmelzen kann.
Nach Schaudinn kommt Parthenogamie bei Haemoproteus noctuae und bei Plasmodium vivax vor. Für Haemoproteus gibt es in beiden Wirten dieses Parasiten, in der Eule und in der Stechmücke, für Plasmodium im Menschen ungünstige Perioden, in welchen die vorhandenen Individuen massenhaft zugrunde gehen. Dann bleiben nur gewisse (weibliche) Individuen übrig und halten sich längere Zeit am Leben. Kommen dann wieder günstigere Zeiten, so treten „Rezidive“ der durch das Protozoon erzeugten Krankheit ein, indem die Zahl der Parasiten sich wieder stark vermehrt. Die Fähigkeit zu dieser Vermehrung sollen nach Schaudinn die wenigen vorhandenen Individuen durch einen Akt der Selbstbefruchtung erhalten; es sollen der Blepharoblast und ein aus dem Zellkern austretender kleiner Kern je zwei Richtungskerne abschnüren, nach dieser Reifung sollen sie in den großen Kern eintreten, verschmelzen und seinen neuen Binnenkörper bilden. Nach diesem Vorgang soll dann die intensive Vermehrung beginnen.
Weitere Fälle von Parthenogamie werden bei Amöben, Flagellaten und dem ciliaten Infusor Ichthyophthirius beschrieben.
Es muß übrigens hervorgehoben werden, daß die meisten in den letzten Abschnitten erwähnten Beispiele von Selbstbefruchtung noch genauerer Prüfung bedürfen. Vielfach handelt es sich um sehr kleine Organismen, und da die Vorgänge fast ausschließlich an konservierten Präparaten untersucht wurden, so haben wir mit zahlreichen Fehlerquellen zu rechnen. Auch das lebende Objekt kann nicht in allen Fällen vor Täuschungen bewahren.
Bei der hohen theoretischen Bedeutung der beschriebenen Befunde scheint mir daher große Vorsicht bei ihrer Auslegung angebracht. Weitere Untersuchungen werden unter anderem festzustellen haben, ob es sich nicht in manchen Fällen um abnorme, nur in künstlichen Kulturen auftretende Vorgänge handelt, und ferner ob es sich wirklich um echte Autogamie im Sinne von „extremster Inzucht“ handelt. Manche Formen, bei denen Autogamie bekannt geworden ist, sind nämlich Organismen, bei denen Plasmogamie häufig beobachtet wird. Somit könnten wohl die Kernsubstanzen von verschiedenen Individuen stammen, resp. es könnte die Autogamie durch Plasmogamie ergänzt werden, indem letztere als regulärer Vorgang für die „Kreuzung“ sorgte. Die Plasmogamie wäre dann biologisch ähnlich zu bewerten wie die oben (S. 203) geschilderte Syzygienbildung bei den Gregarinen.
Plasmogamie. Unter Plasmogamie (auch oft Plastogamie geschrieben) versteht man die Verschmelzung zweier oder mehrerer agamer Individuen mit ihren Plasmaleibern, wobei man meist annimmt, daß keine Vereinigung der Kerne eintritt. Plasmogamie ist vielfach bei Amöben, Heliozoen, Foraminiferen etc. festgestellt worden. Bei Actinosphaerium, Actinophrys, bei Amoeba proteus, bei Arcella, Platoum, Chlamydophrys etc. kann man sie leicht beobachten. Auch bei ciliaten Infusorien sind Fälle bekannt geworden (Stylonychia, Paramaecium putrinum), und es ist nicht unwahrscheinlich, daß manche Formen, welche in allen Gruppen der Protozoen als besondere Arten und Gattungen beschrieben worden sind, auf Plasmogamie zurückzuführen sind (Formen mit verdoppelten Kern- oder Organzahlen [vierkernige Arcellen, zweikernige Difflugien, Octomitus [S. 211]etc.?]). In der Regel bleiben plasmogamierte Individuen nicht dauernd vereinigt, sondern sie trennen sich nach längerer oder kürzerer Zeit wieder. Doch können sie generationenlang vereinigt bleiben. Das klassische Beispiel für Plasmogamie bieten die Mycetozoen, bei denen oft viele tausend einkernige Myxamöben sich zu großen, vielkernigen „Plasmodien“ vereinigen, welche unter Umständen sich wieder in die einzelnen Komponenten auflösen können.
Eine Lösung der Schwierigkeiten, welche die Entstehung der beiden Gametenformen unter scheinbar gleichen äußeren Bedingungen der Deutung bereitet, könnte sich eventuell ergeben, wenn sich die Angaben über erbungleiche Teilung bestätigen. So hat Enriquez angegeben, daß bei dem Infusor Opercularia durch eine inäquale Teilung aus einem vegetativen Individuum je ein Makro- und ein Mikrogamet entstehen, welche sofort konjugationsreif sind.
V. Der Befruchtungsvorgang.
Das allen Befruchtungsvorgängen Gemeinsame ist die Vereinigung von Kernsubstanzen, welche aus zwei verschiedenen Zellen stammen. Damit ist aber die morphologische Charakterisierung des Befruchtungsvorganges nicht erschöpft; denn wir kennen manche Kernvereinigungen, welche wir bei dem gegenwärtigen Stand unserer Kenntnisse nicht als Befruchtung betrachten. Bei plasmogamischen Vereinigungen kommt es nicht selten gleichzeitig mit der Verschmelzung der Zellleiber auch zur Verschmelzung der Kerne. Es resultieren dann Individuen, welche in ihrem ganzen Bau, je nachdem zwei oder mehr Individuen plasmogamiert haben, die doppelten bis mehrfachen Dimensionen eines normalen Individuums aufweisen. Auch die Kerne solcher Individuen, welche in allen Formdetails mit normalen Tieren übereinstimmen, sind von doppelter bis mehrfacher Größe. Beobachtungen dieser Art sind an Thalamophoren, Foraminiferen und Infusorien gemacht worden.
Die zahlreichen oben angeführten Tatsachen machen es nun wahrscheinlich, daß die Reifungserscheinungen es sind, welche den Unterschied zwischen solchen plasmogamischen Totalverschmelzungen und echten Befruchtungen darstellen.
Bei der Befruchtung vereinigen sich Kernsubstanzen aus verschiedenen Zellen, welche durch Reifungserscheinungen in einen von den Kernsubstanzen agamer Individuen abweichenden Zustand gebracht worden sind.
Die Verschmelzung der Gameten erfolgt im einfachsten Fall, indem sie wie Tropfen von Flüssigkeiten zusammenfließen. Sind beide Gameten durch Geißeln oder Cilien beweglich, so geht der Verschmelzung ein lebhaftes Umeinandertanzen der Gameten voraus, wobei dieselben sich aneinander schmiegen und offenbar ihre Eigenform aufgeben, indem sie in einen flüssigeren Zustand übergehen. In allen Fällen von Isogamie und in der Mehrzahl der Fälle von Anisogamie ist daher die Zygote kugelig.
Nur in den extremen Fällen der Anisogamie, welche nach dem Typus der Oogamie verlaufen, besitzt oft der Makrogamet eine von der Kugelgestalt abweichende Eigenform, welche durch die Befruchtung nicht alteriert wird. Doch auch in diesen Fällen pflegt der [S. 212]Mikrogamet bei der Befruchtung nicht der einzige aktive Teil zu sein. Zwar hat er die wesentliche Bewegungsleistung auszuführen, indem er den Makrogameten aufzusuchen und sich in dessen Substanz einzubohren hat. Aber der Makrogamet sendet ihm z. B. bei Coccidien und Hämosporidien einen Empfängnishügel entgegen, eine plasmatische Vorwölbung, welche den Mikrogameten aufnimmt. Bei manchen Coccidien erfolgt das Eindringen stets an derselben Stelle, welche für diesen Zweck in gewissem Sinne präformiert erscheint.
Die Vereinigung der Gameten ist in manchen Fällen (z. B. bei Plasmodium vivax nach Schaudinn) von heftigen plasmatischen Strömungen begleitet, welche offenbar nach vollständiger Durchmischung resp. Vereinigung der Bestandteile beider Gameten zur Ruhe kommen.
Nach der Vereinigung der Plasmaleiber wandern die Kerne (der männliche und der weibliche Gametenkern) aufeinander los, um sich nach kürzerer oder längerer Zeit zu vereinigen (Karyogamie). Das Synkaryon (wie man die vereinigten Gametenkerne auch nennt) bildet entweder sogleich einen kugeligen Ruhekern (z. B. bei Actinosphaerium, Entamoeba), oder es bildet sich ein spindelförmiger Körper (die Befruchtungsspindel der Coccidien, die direkt in Teilung übergehende Befruchtungsspindel der Infusorien). Während meist eine wenigstens für unser gegenwärtiges Unterscheidungsvermögen vollständige Durchmischung der beiden Kernanteile stattfindet, kann man in anderen Fällen noch eine Zeitlang die mütterlichen und väterlichen Anteile des Synkaryons gesondert nebeneinander erkennen. Das ist z. B. bei den Infusorien vielfach noch während der Ausbildung der ersten metagamen Teilungsspindel der Fall (Gonomerie).
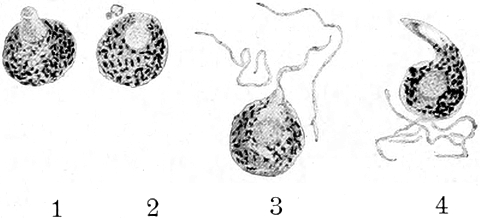
Aehnlich wie bei den Metazoeneiern finden wir auch bei den Protozoengameten Einrichtungen zur Verhütung der Mehrfachbefruchtung. So bildet sich bei den Makrogameten der Coccidien unmittelbar nach erfolgter Befruchtung an der Oberfläche die Cystenhülle aus. Bei Hämosporidien wird an ihrer Stelle eine weich bleibende Gallerthülle abgesondert, an welcher die abgehaltenen Mikrogameten verkleben und zugrunde gehen (Plasmodium vivax nach Schaudinn). Ausgeschiedene Flüssigkeiten oder gallertige Massen umhüllen nach der Befruchtung bei anderen Coccidien und Hämosporidien nicht selten die abgestorbenen, nicht zur Befruchtung gelangten Mikrogameten, was von manchen Autoren als ein Zeichen von Giftwirkung der Ausscheidungen der Makrogameten betrachtet wird.
In ganz entsprechender Weise erfolgt die Bildung von Hüllen in zahlreichen anderen Fällen in unmittelbarem Anschluß an die Befruchtung [S. 213](vgl. Actinosphaerium, Chlamydomonaden, Flagellaten, Coccidien, Gregarinen etc.).
Wie wir aber bei manchen Metazoen physiologische Polyspermie als besonderen, seltenen Fall kennen, scheinen auch bei manchen Protozoen ähnliche Vorgänge vorzukommen. Schaudinn hat bei Cyclospora caryolytica beobachtet, daß anders als bei den meisten Coccidien nicht sofort nach dem Eindringen des befruchtenden Mikrogameten vom Makrogameten eine Hülle gebildet wird; es dringen vielmehr eine größere Anzahl von Mikrogameten ein, welche aber nicht mit dem Makrogametenkern verschmelzen, sondern im Plasma liegen bleiben, schrumpfen, zerfallen und resorbiert werden (vgl. Fig. 218 auf S. 215).
Bei anderen Formen bleibt die Zygote zunächst ohne feste Hülle und ist sogar beweglich, z. B. in Form des sogenannten Ookineten der Hämosporidien und mancher Trypanosomen, welcher erst nach einer Wanderung zur Ruhe gelangt und zu Vermehrungsakten schreitet. Manche Mastigophoren und die Mehrzahl der Ciliaten lassen an die Befruchtung keine Ruhe-(Cysten-)stadien anschließen, wenigstens soweit wir bisher wissen.
VI. Die Folgeerscheinungen der Befruchtung. Entwicklungsgeschichte der Protozoen.
Bei den Metazoen ist die Befruchtung der Ausgangspunkt für die Entstehung eines neuen Individuums. Durch sie wird eine Periode lebhaftester Zellvermehrung eingeleitet, wobei eine große Menge von Kernsubstanzen neu gebildet wird. In der Folge differenzieren sich die Zellen in den einzelnen Geweben des neuen Individuums. Auf Grund dieser Vorgänge kam man dazu, Entwicklung zu definieren als „Teilung und Differenzierung“ von Zellen. Und man faßte die Befruchtung als den Auslösungsvorgang auf, welcher die latenten Potenzen des Eies weckt (abgesehen natürlich von der Vermischung der Eigenschaften zweier Individuen, deren Bedeutung für die Vererbung nicht verkannt wurde).
Das Studium der Protozoen hat zu einer anderen Auffassung genötigt. Vor allem wurde im Zusammenhang mit den Loebschen Forschungen über die künstliche Parthenogenesis beim Metazoenei erkannt, daß beim Befruchtungsvorgang der auslösende Entwicklungsreiz und ein zweiter Faktor voneinander getrennt betrachtet werden müssen. Beide Faktoren finden wir bei der Befruchtung der Metazoen fast stets vereinigt.
Bei den Protozoen stellt die Befruchtung jedoch vielfach keinen Entwicklungsreiz dar. Vielmehr folgt ihr z. B. bei den Infusorien eine Verlangsamung der Teilungsschritte, bei vielen Plasmodromen, besonders bei Flagellaten, umgibt sich die Zygote nach erfolgter Befruchtung mit einer Cystenhülle und verharrt oft lange Zeit im Ruhezustand, ohne daß zunächst überhaupt Zellteilungen erfolgen (Actinosphaerium, Chlamydomonadinen, Volvocineen, Diatomeen etc.). Vorausgesetzt also, daß in diesen Fällen der Befruchtungsvorgang richtig erkannt ist, können wir ihn hier nicht als Entwicklungsreiz betrachten.
Wir werden am Schluß des Kapitels auf diese Unterscheidung zurückkommen. Zuerst müssen wir aber erörtern, in welchem Sinne überhaupt bei den Protozoen von Entwicklung gesprochen werden kann.
[S. 214]
„Unter Entwicklung verstehen wir den Ablauf jener Formveränderungen, durch welche organische Gestaltung erzeugt wird.“ (Korschelt und Heider.)
Um diese Definition auf die Protozoen anwenden zu können, müssen wir dem Begriff „Gestaltung“ eine umgrenzte Fassung zugrunde legen; denn es ist klar, daß wir die der Bewegung oder Nahrungsaufnahme dienenden Formveränderungen eines Rhizopoden nicht unter den Begriff der Entwicklung einbeziehen können, wenn auch vielleicht die Zukunft lehren wird, daß auch hier ähnliche Kausalzusammenhänge vorliegen.
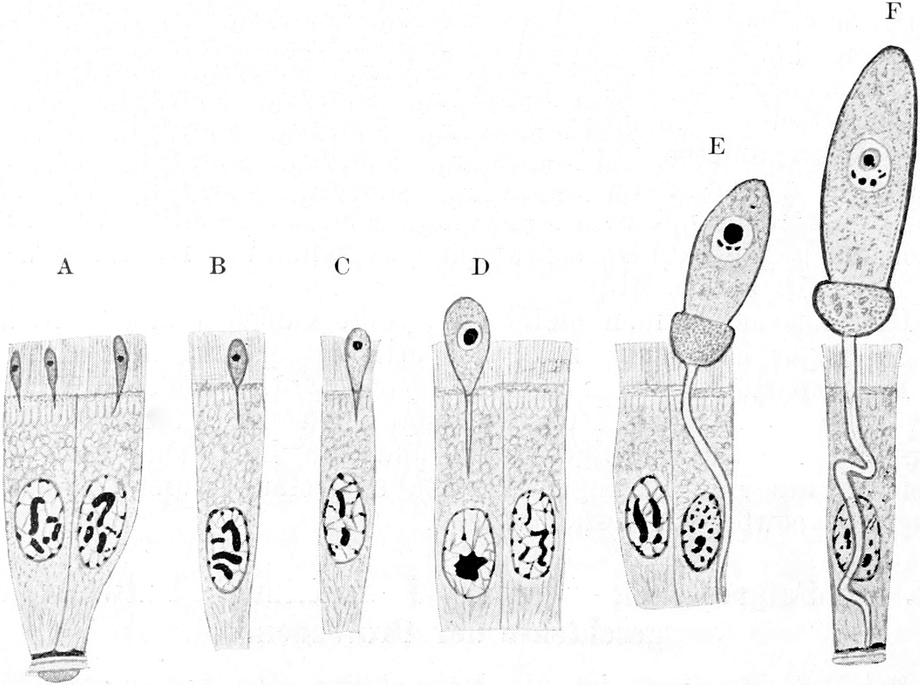
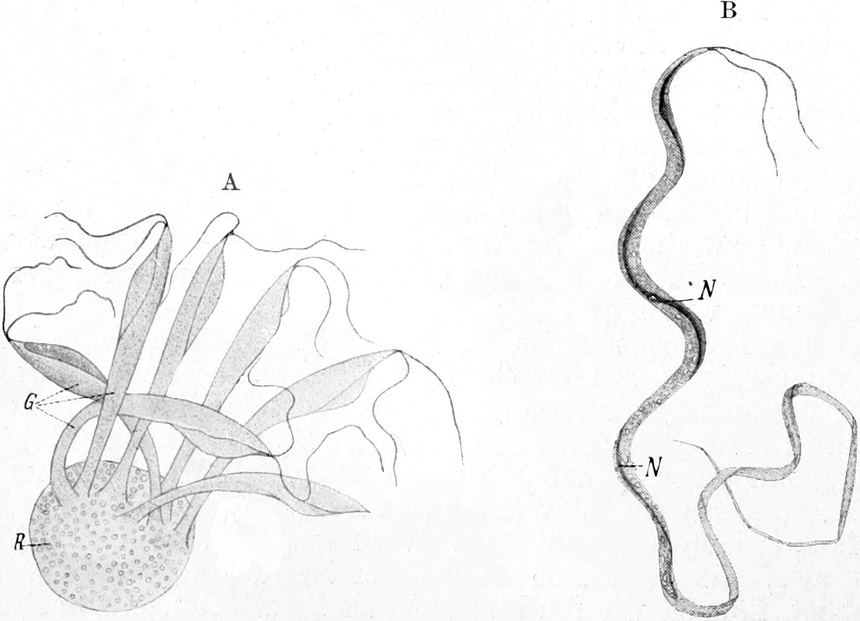
Entwicklungsvorgänge sind als solche um so eher erkennbar, je komplizierter die Organisation des betreffenden Protozoons im „erwachsenen“ Zustand ist. Am meisten werden wir an die Entwicklung der Metazoen [S. 215]erinnert, wenn es sich um einen relativ kleinen Keim handelt, welcher unter gleichzeitig erfolgendem Wachstum Formveränderungen durchmacht, deren Beendigung den Abschluß einer Phase im Leben des Tieres bedeutet. Als lehrreiches Beispiel sei die Entwicklung einer Gregarine aus dem Sporozoiten angeführt (z. B. Pyxinia, Fig. 216). Der in eine Wirtszelle eindringende oder an eine solche sich anhängende Keim dieser Protozoen stellt ein ganz indifferentes, etwa würmchenförmiges Stück Protoplasma mit einem Kern dar; er wächst allmählich heran und unterdessen differenzieren sich an seinem Körper Haftorgane, Cuticula und Myoneme etc. Es tritt eine Sonderung von Epi-, Proto- und Deutomerit ein. Kurz, das herangewachsene Tier ist vollkommen von seinem Keim verschieden gestaltet.
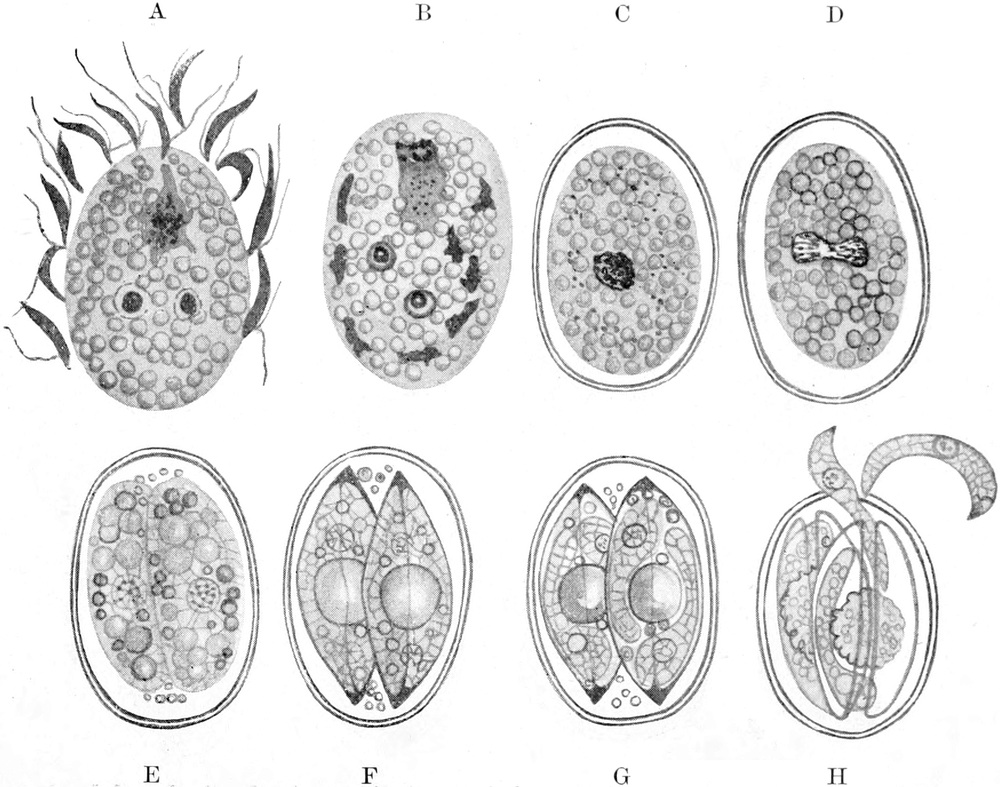
Und noch ein weiterer Umstand erinnert uns in der Gregarinenentwicklung an die Metazoenontogenie: während die erwachsenen Gregarinen bei den verschiedenen Arten außerordentlich mannigfaltige Gestaltungen besitzen, sind die Keime vielfach voneinander kaum unterscheidbar.
Ganz Entsprechendes läßt sich bei vielen Sporozoen und anderen Plasmodromen beobachten, wenn auch entsprechend der einfacheren Organisation die Vorgänge meist nicht so in die Augen fallen.
[S. 216]
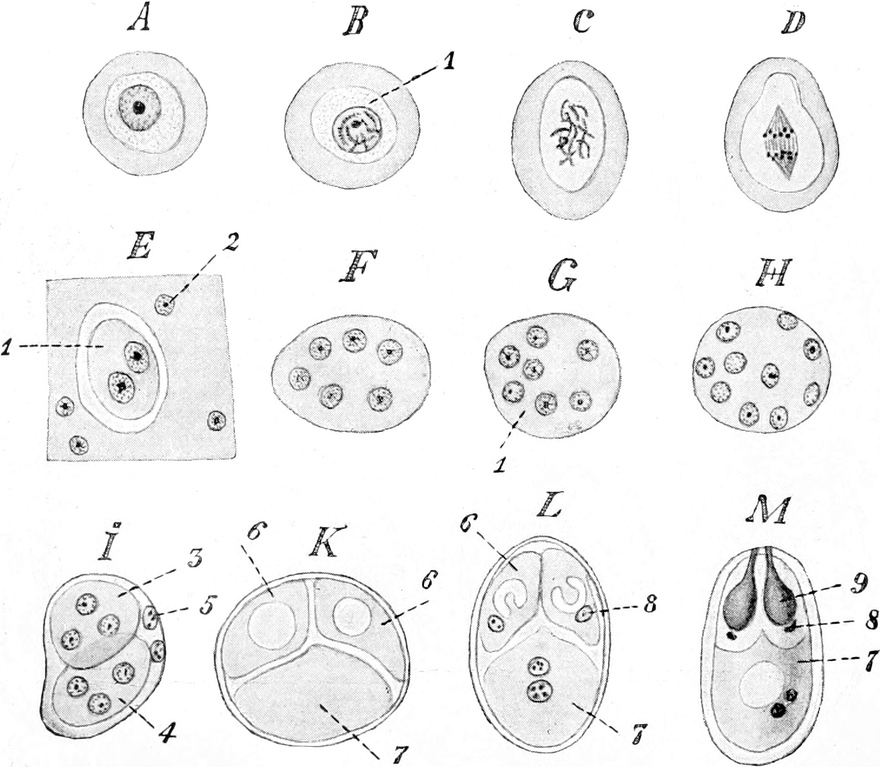
Aehnliche Entwicklungsvorgänge kommen im Leben zahlreicher Protozoen vor, vielfach jedoch ohne Kombination mit Wachstumsvorgängen. Das vorhandene Körpermaterial erfährt gewisse Umwandlungen, welche als Formdifferenzierungen in die Erscheinung treten. Wir finden solche Vorgänge:
1) bei der multiplen Teilung, und zwar bei der Bildung von agamen Schwärmern, von Sporen und von Gameten. Ein Protozoenkörper kann in bestimmten Stadien des Lebens durch Kernteilungsvorgänge in eine größere Zahl von Protoplasmaklümpchen mit je einem Kern zerfallen. Aus jedem solchen Klümpchen differenziert sich dann ein Gebilde von spezifischer Eigenform. So entstehen bei Coccidien die zur Neuinfektion von Zellen des gleichen Wirts bestimmten Agameten (vgl. Fig. 194 A–C, S. 184); bei vielen Flagellaten zerfällt der Körper innerhalb der Membran in zahlreiche junge Tiere, welche jedes eine neue Membran etc. bilden, um dann die alte Hülle, welche tot und leer zurückbleibt, zu verlassen (Fig. 188 F. u. G, S. 179). Aehnlich kompliziert sind die Differenzierungen, welche die Gametenbildung bei den verschiedenen Protozoengruppen begleiten, und welche besonders den speziellen Bewegungsapparat betreffen (vgl. Fig. 217). Noch viel [S. 217]weitergehender sind die Differenzierungen bei der Bildung von Sporen. Bei Sporozoen „entwickelt“ das Protoplasma Hüllbildungen und Hilfsapparate, welche oft sehr kompliziert gebaut sind, und welche insofern eine prospektive Bedeutung haben, als sie nicht so sehr für das Sporenprotoplasma selbst als für die spätere Fortsetzung der Entwicklung zweckmäßig sind. Als Beispiele führe ich die allmähliche Entwicklung der Sporen einer Coccidie und eines Myxosporidiums an. Bei den Coccidien umgibt sich das Protoplasma des Sporoblasten mit einer oder mehreren Hüllen. Der Sporoblast selbst teilt sich in eine Anzahl von Keimen, in denen Reservestoffe abgelagert sind, die Hülle erhält mannigfache Form und Skulptur der Oberfläche und ist entweder durch ihre Zusammensetzung [S. 218]aus Schalenhälften oder durch präformierte Oeffnungen für die Entleerung der Keime vorbereitet (Fig. 218).
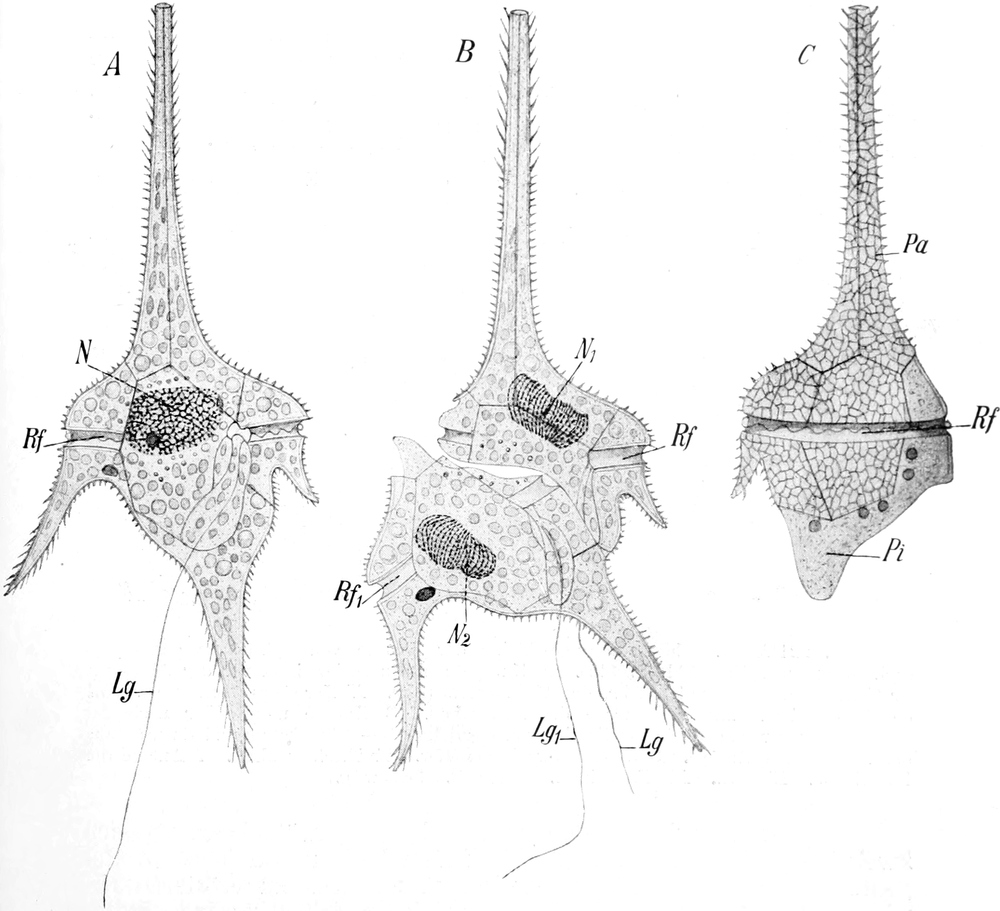
Die hier genannten Vermehrungsvorgänge haben alle das gemeinsam, daß sich aus einem Individuum Nachkommen entwickeln, welche von dem Mutterindividuum in Form und eventuell auch Schicksalen mehr oder minder stark abweichen. Sie können durch Wachstum und Entwicklung dem Mutterindividuum ähnlich werden, oder müssen erst eine weitere Vermehrung durchmachen, ehe sie das dem Muttertier ähnliche Stadium erreichen.
Bei den Myxosporidien entwickeln sich die Sporen als geradezu vielzellige Gebilde, indem der Sporoblast in mehrere kernhaltige Protoplasmaklümpchen zerfällt, von denen einer den Keim darstellt, während die anderen die Schalen und die Polkapseln bilden (Fig. 219). Details über diese Vorgänge finden sich im speziellen Teil.
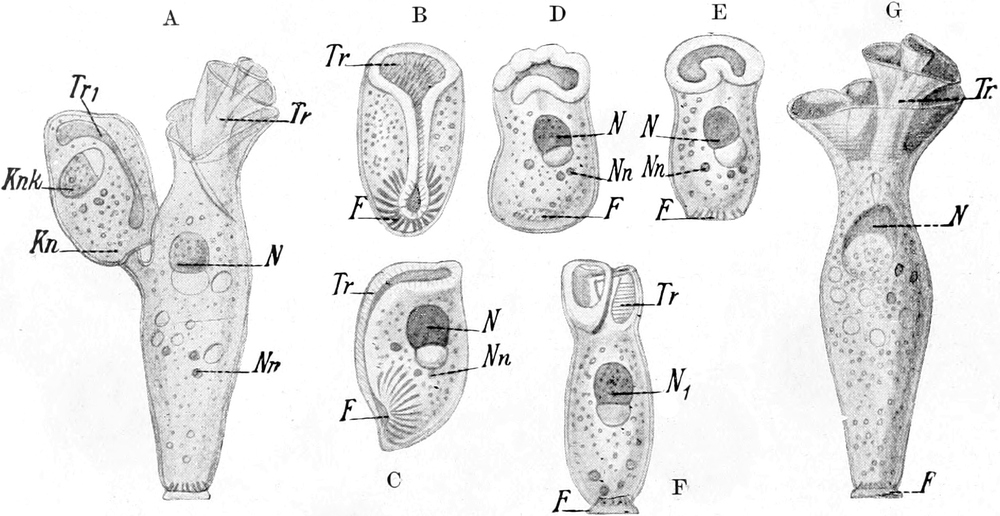
2) finden Entwicklungsvorgänge bei der gewöhnlichen agamen Zweiteilung statt. Sie erinnern in ihrem Verlauf durchaus an Regenerationserscheinungen, wie weiter unten noch zu erörtern sein wird, und laufen darauf hinaus, daß bei jeder Teilhälfte eines Protozoons der fehlende Teil ersetzt wird. Sie sind um so auffallender, je komplizierter der Bau des sich teilenden Protozoons ist und je langsamer die Ergänzungsvorgänge stattfinden. Sie finden natürlich bei jeder Teilung einer Amöbe oder eines Heliozoons statt, sind aber bei solchen nicht so auffällig (weil mehr quantitativ als qualitativ), wie bei Formen mit konstanter Eigenform und mit starren Skelettelementen, z. B. Infusorien, Dinoflagellaten, Radiolarien und Thalamophoren.
Bei Flagellaten werden oft von der einen Teilhälfte Geißeln, Stigmata, Pyrenoide etc. neugebildet, von den Geißeln vielfach nur [S. 219]die Hälfte der beim Muttertier vorhandenen Anzahl symmetrisch neugebildet; bei Chlamydomonadinen jedoch bilden alle Sprößlinge ihre Geißeln neu, während die Geißeln des Muttertiers noch weiterschlagen, längst nachdem sie von den neuentstandenen Körpern der Sprößlinge abgetrennt sind (vgl. Chlorogonium S. 180, Fig. 190 G, H).
Bei dem Ciliaten Coleps hirtus sieht man bei der Teilung eine vollkommene Zerlegung des aus einzelnen Platten bestehenden Panzers in eine vordere und eine hintere Hälfte erfolgen. Das vordere Tochtertier muß nun die hintere Panzerhälfte, dazu die sonstigen Strukturen der hinteren Körperhälfte, Cilien, Anus, die analen Stachelfortsätze usw. neu bilden, während die hintere Hälfte, indem sie eine neue Vorderhälfte erzeugt, außer dem Panzer und den Cilien den ganzen Mundapparat neu bilden muß. Dabei ist im Moment der Durchschnürung an beiden Tochtertieren der Ergänzungsvorgang erst eingeleitet, und ganz allmählich sieht man auf dem anfänglich nackten Protoplasma die Panzerstücke sich „entwickeln“.
Fast noch auffallender sind die Ergänzungsvorgänge bei den kompliziert gebauten hypotrichen Ciliaten, z. B. bei Euplotes harpa (Fig. 136, S. 138), bei welcher nicht nur eine neue Mundöffnung mit adoraler Spirale, sondern auch die mannigfachsten Cilien, Cirren und Membranellen neugebildet werden müssen. Der Entwicklungsvorgang ist dabei sehr bemerkenswert, indem nicht nur die neugebildeten Teile in den für die Species charakteristischen Größenverhältnissen zum Ganzen angelegt werden, sondern auch die stehen gebliebenen Teile eine Einschmelzung und Neuaufbau in den richtigen Dimensionen erfahren.
Aehnliche Rekonstruktionen, über deren Verlauf wir aber noch sehr wenig unterrichtet sind, kommen auch bei den Radiolarien und ihren komplizierten Kieselskeletten vor. Bei den Flagellaten und anderen Formen mit Längsteilung muß das Tochtertier seine rechte oder linke Hälfte regenerieren, was besonders leicht bei Formen mit Panzerung zu erkennen ist, vgl. z. B. Ceratium hirundinella Fig. 220.
Sehr eigenartig gestaltet sich der Entwicklungsvorgang bei der Zweiteilung der Süßwasserthalamophoren, indem er nicht so langsam wie bei den meisten anderen größeren Protozoen vor sich geht, sondern indem er gleichzeitig mit einem plötzlichen Wachstum in sinnfälliger Weise rasch abläuft. Bei Euglypha alveolata z. B. erfolgt ein bruchsackartiges Hervorströmen von Protoplasma aus der Schalenöffnung, wobei sich gleichzeitig um das auf diese Weise entstehende Tochterindividuum eine neue Schale bildet. Der Körper des neuen Tiers und seine Schale verdanken ihre rasche Entstehung den im Muttertier aufgespeicherten Reservematerialien: letztere den Reserveschalenpättchen, ersterer den organischen Reservestoffen, welche unter Flüssigkeitsaufnahme das mächtige Protoplasmawachstum ermöglichen (vgl. Fig. 139, S. 141).
Sehr wichtig für die Auffassung der Protozoenentwicklung sind ferner die Ergänzungsvorgänge, welche bei knospenden Formen an den Tochtertieren vor sich gehen. Zwar sind bei Formen wie den Infusorien Spirochona (Fig. 221) und Kentrochona alle wichtigen Organe in der Anlage schon vorhanden, wenn die Knospe vom Muttertier abschwärmt. Sie sind aber meistens nicht durch Teilung der betreffenden Organe des Muttertiers entstanden, sondern sie haben sich fern von denselben „herausdifferenziert“ und machen erst nach [S. 220]der Ablösung und der nach dem Umherschwärmen erfolgenden Festsetzung die Veränderungen durch, welche das Tochtertier dem Muttertier ähnlich machen: also die Entwicklung des Trichterkragens, der Haftscheibe resp. des Stiels etc.
3) sind Entwicklungsvorgänge, welche in diesem Zusammenhang betrachtet werden müssen, die Vorgänge der Entdifferenzierung und Neudifferenzierung bei der Encystierung vieler Protozoen, sowie die Umdifferenzierungen bei der Konjugation der Ciliaten. Die meisten Protozoen verlieren bei der Cystenbildung ihre Hautskulpturen, ihre Bewegungsorganellen etc. Dieselben werden entweder eingeschmolzen oder abgeworfen. Beim Verlassen der Cyste entstehen die verschiedenen Gebilde von neuem, indem sie sich in ganz ähnlicher Weise entwickeln, wie bei Vermehrungsvorgängen. Bei der Konjugation der Infusorien werden vielfach die der Verschmelzungsstelle benachbarten Organellen, z. B. Peristomteile, Cytopharynx und dessen Bewaffnung etc. resorbiert, um nach beendeter Konjugation wieder neu zu entstehen;
4) müssen wir schließlich hierher die biologischen Formänderungen rechnen, welche bei manchen Protozoen vorkommen. Gewisse Rhizopoden vermögen z. B. ohne für uns bisher erkennbare Ursache aus dem heliozoenartigen mit Pseudopodien beweglichen Zustand in den Flagellatenzustand überzugehen (z. B. Ciliophrys infusionum), und ähnlich die Schwärmer der Myxomyceten, welche in wenigen Minuten aus Myxamöben zu Myxoflagellaten werden können, und umgekehrt. Vergleichbar sind die Erscheinungen bei den Hämosporidien, wo aus der abgerundeten Zygote im Darm des blutsaugenden Wirts der wurmartig bewegliche Ookinet entsteht, oder bei den Trypanosomen, wo aus einem solchen ein geißeltragendes, lebhaft bewegliches Individuum sich entwickelt. — Und ferner sind hier die Veränderungen anzuschließen, welche zeigen, daß Trypanosomen aus dem Blut von Wirbeltieren bei der Kultur in Nährlösungen wichtige Aenderungen im morphologischen Aufbau und in der Größe erfahren.
Alle diese besprochenen Entwicklungsvorgänge haben das Gemeinsame, daß Formveränderungen durch chemische Veränderung und durch Verlagerung der Substanzen eines einheitlichen Zellindividuums vor sich gehen. Sie unterscheiden sich dadurch wesentlich von denjenigen Vorgängen der Metazoenembryologie, welche in der beschreibenden Entwicklungsgeschichte eine Hauptrolle spielen, und welche in der Vermehrung und spezifischen Verlagerung von Zellen bestehen. Sie finden aber ihr Analogon in der Differenzierung der embryonalen Zellen, in dem Aufbau der Gewebe, welche Erscheinungen ebenfalls charakterisiert sind durch Abscheidung bestimmter Teile aus der Substanz der Zellen, durch Neugestaltung der Zellen und in manchen Fällen auch durch Umschmelzungen und Neudifferenzierungen.
Aber auch die ontogenetische Zellvermehrung vermissen wir bei vergleichender Betrachtung der Protozoenentwicklung nicht. Am klarsten erkennen wir sie bei jenen Ausläufern des Protozoenstammes, welche den Uebergang zu vielzelligen Organismen vermitteln. Schon bei den gewöhnlichen Koloniebildungen der Protozoen fordern die agamen Teilungen, welche aus einem Individuum in Form einer [S. 221]Kolonie ein Individuum höherer Ordnung entstehen lassen, zum Vergleich mit den ontogenetischen Zellteilungen der Metazoen heraus. Das ist noch mehr hervorzuheben bei jenen Formen, bei denen die Kolonie eine individuell geschlossene Form mit Arbeitsteilung der an ihrem Aufbau beteiligten Individuen darstellt, also bei den Volvociden. Schon bei Gonium (Fig. 222), Stephanosphaera (Fig. 226, S. 227), Pandorina (Fig. 195, S. 185) erinnert die Entwicklung eines kolonialen Individuums, eines Zellstockes aus einer Einzelzelle an die Furchung eines Metazoeneies. In noch höherem Maß ist dies der Fall bei Formen wie Platydorina (Fig. 255), bei welcher eine morphologische Verschiedenheit der Zellen des Stockes vorliegt, oder Volvox (Fig. 223), bei welchem eine Differenzierung in vegetative und generative Zellen erfolgt ist, alles Verschiedenheiten, die sich im Lauf der Entwicklung herausbilden müssen.
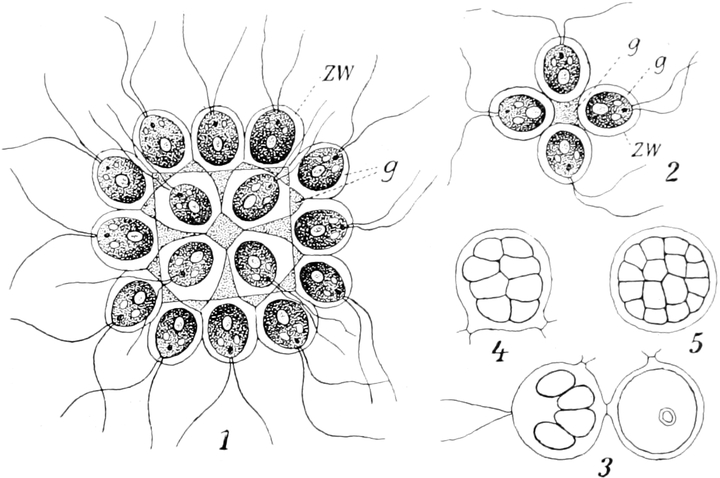
Aber auch bei den Sporozoen finden wir schon Fälle, in denen die Entwicklungsgeschichte nicht immer den rein protozoenmäßigen Charakter beibehält. So stellt die Entwicklung der Sporen bei den Myxosporidien und Actinomyxiden, bei denen eine ganze Anzahl von Zellen sich als Schutz- und Hilfsapparate des Keims mit diesem vereinigen, einen Schritt zu höherer Komplikation dar. Ganz ähnliche Besonderheiten finden sich bei der Sporenbildung der Schizogregarinen.
Auch bei den Myxomyceten und der Mehrzahl der Eugregarinen finden wir in den Sporangien eigenartige Gebilde mit Einrichtungen zum Ausschleudern der Sporen, welche infolge ihres komplizierten Baues und ihrer Entwicklungsgeschichte eine eigenartige Stellung einnehmen. Bei den Gregarinen speziell werden die Sporangien von den Gametenmutterzellen gebildet, indem an den Perforationsstellen der Cyste Apparate zur Entleerung der Sporen in Form von Schläuchen sich zuerst in ihrem Plasma anlegen, um später nach außen vorgestülpt zu werden. — Vergleichbar diesen Sporangien der Gregarinen sind die oft viel komplizierteren, von dem Capillitium als Ausschleuderungsmechanismus durchsetzten Sporangien der Myxomyceten.
[S. 222]
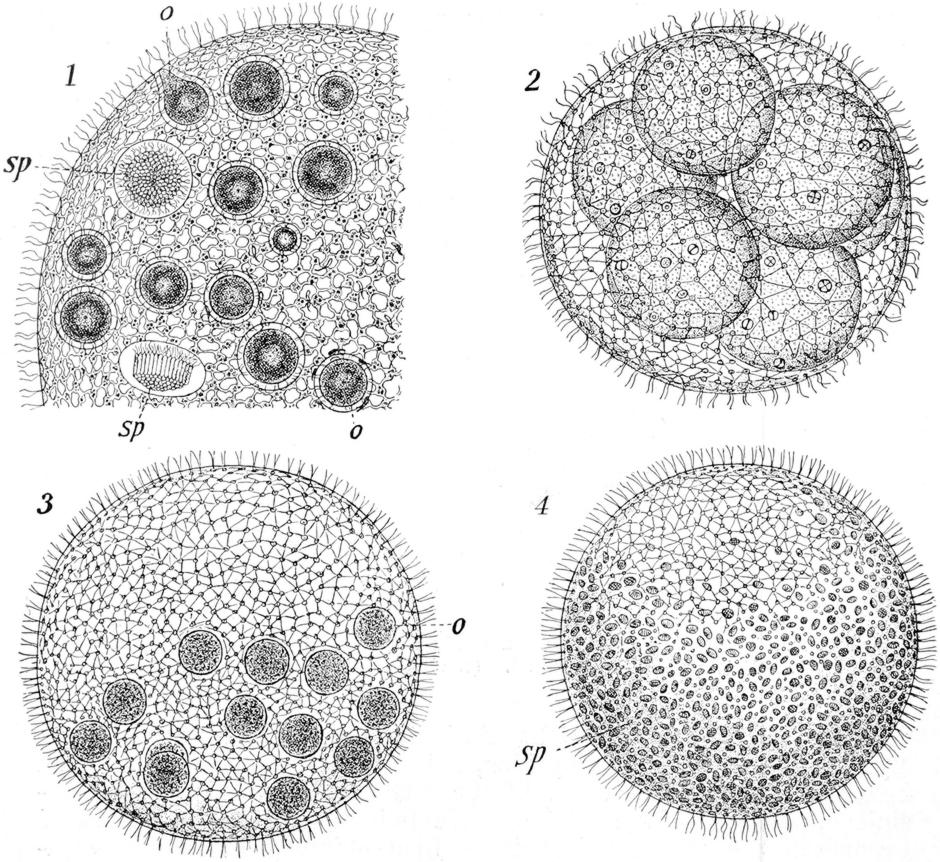
Der oben (S. 220) für die koloniebildenden Protozoen durchgeführte Vergleich der agamen Teilungen mit den embryonalen Zellteilungen kann aber auf alle Protozoen ausgedehnt werden. Bei manchen Formen sehen wir aus den Teilungen stets gleichartige Individuen hervorgehen; wir sehen nur die Folge der Teilungen manchmal durch Befruchtungserscheinungen und Ruhestadien unterbrochen (Infusorien, Actinosphaerium). Bei anderen Protozoen gehen aus einem Muttertier sehr heterogene Nachkommen hervor, welche selbst wieder nach neuen Teilungen den Muttertieren ähnliche Formen erzeugen können (z. B. Coccidien, Hämosporidien). Verfolgen wir jedoch die Schicksale eines Protozoenindividuums und seiner Nachkommen, so stellen wir fest, daß — so verschieden voneinander die einzelnen Stadien, welche bei den Fortpflanzungsvorgängen entstehen, auch sein mögen — sie doch stets in gesetzmäßiger Folge zur Entstehung der Formen, von denen wir ausgingen, zurückführen. Die [S. 223]verschiedenen Stadien eines Protozoons schließen sich zu einem „Zeugungskreis“ aneinander, wie uns vor allen Dingen durch die Untersuchungen Schaudinns klar geworden ist.
Als Beispiel diene uns der Zeugungskreis von Trichosphaerium Sieboldi nach Schaudinn. Bei diesen vielkernigen foraminiferenähnlichen Rhizopoden sind die gewöhnlichen agamen Individuen mit einer aus zahlreichen stäbchenartigen Bildungen aus kohlensaurem Magnesium bestehenden Hülle umgeben (Fig. 225 I). Sie teilen sich entweder durch Plasmotomie, indem sie in vielkernige Stücke zerfallen, oder durch multiple Teilung, indem ebenso viele kleine Rhizopoden, wie Kerne im Muttertier vorhanden waren, aus der leer zurückbleibenden Hülle ausschwärmen. Diese Individuen wachsen heran, entwickeln sich dabei insofern anders als ihre Muttertiere, als sie keine Stäbchenhülle bilden. Auch gehen aus ihrer multiplen Teilung kleine geißeltragende Individuen hervor, die Gameten, welche zu je zweien kopulieren. Aus der Zygote entwickelt sich wieder ein Individuum mit Stäbchenhülle. Damit ist also der Zeugungskreis geschlossen. Wir haben hier einen Zeugungskreis mit sehr gut charakterisiertem Generationswechsel vor uns, wobei die eine Generation sich rein ungeschlechtlich vermehrt, während die andere bei der Teilung Gameten produziert, deren weitere Entwicklung die Befruchtung voraussetzt. Beide Generationen sind ferner hier durch ihre Morphologie deutlich zu unterscheiden.
Wie man sieht, spricht man in diesem Fall von Generationswechsel, indem man die Teilungen, welche zur Bildung von zahlreichen ungeschlechtlichen Individuen in einem Fall, zur Bildung von zahlreichen Gameten im anderen Fall führen, mit den zahlreichen Zellteilungen vergleicht, welche beim Generationswechsel der Metazoen ein einzelnes ungeschlechtliches und ein einzelnes geschlechtliches Individuum hervorbringen. Insofern ist diese Ausdrucksweise als deskriptive Abkürzung durchaus zulässig. Bei der Uebertragung auf andere Protozoen stellt sich die Bezeichnung des abwechselnden Auftretens von geschlechtlichen und ungeschlechtlichen Individuen als Generationswechsel als ungeeignet heraus, indem sie zu falschen Vorstellungen Anlaß gibt.
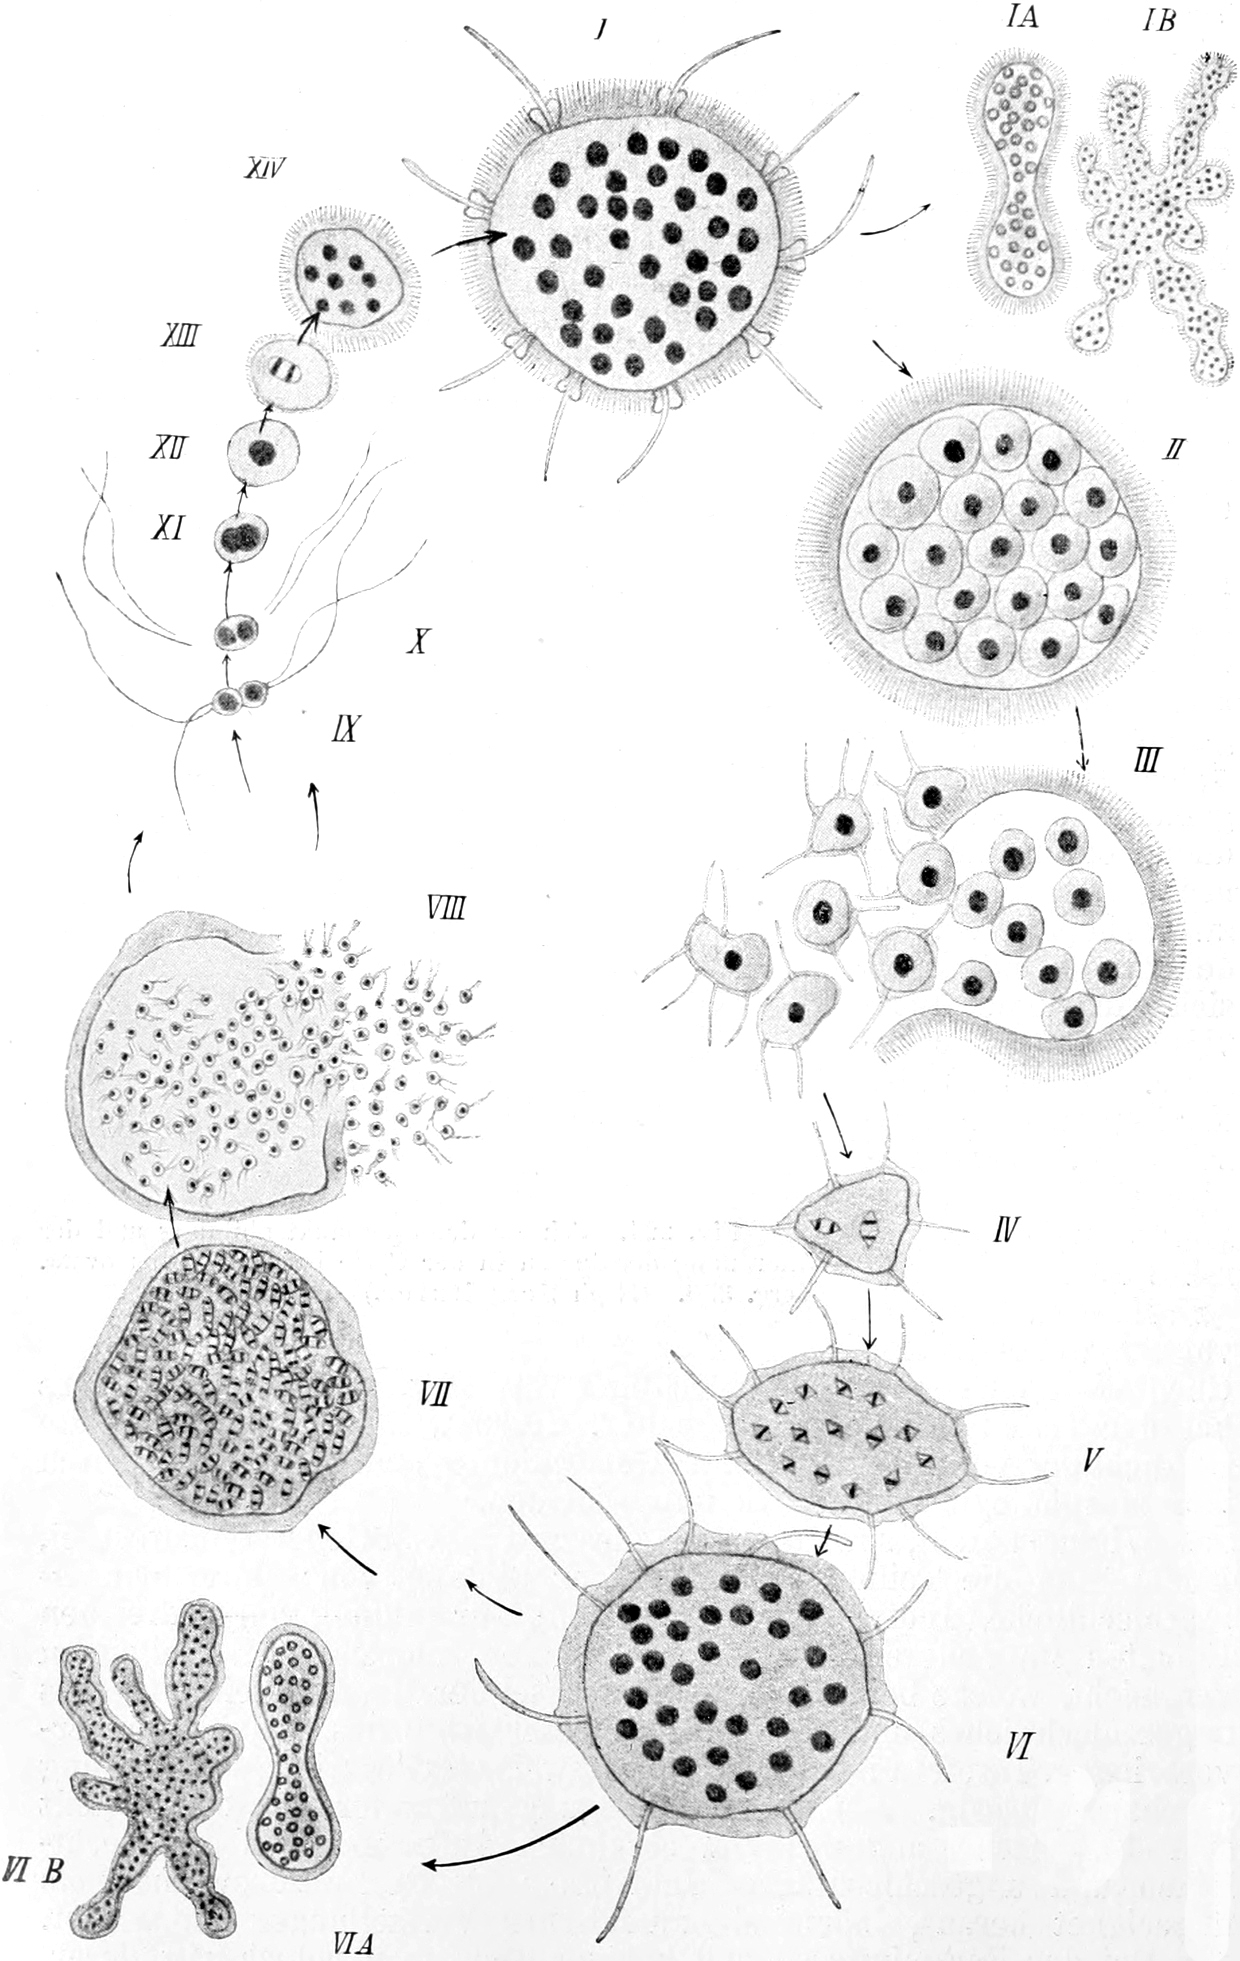
Bei den Foraminiferen und bei den Sporozoen jedoch tritt dieser, durch zweierlei Vermehrungsweisen gekennzeichnete „Generationswechsel“ [S. 225]so klar zutage, daß er nicht übersehen werden kann. Es lag infolgedessen nahe — bei Berücksichtigung analoger Vorgänge bei pflanzlichen Organismen — an eine tiefere Bedeutung und weitere Verbreitung solcher Erscheinungen zu denken. Möglicherweise sind aber die Tatsachen so zu deuten, daß bei den schalentragenden Foraminiferen und bei den parasitischen Sporozoen, infolge der biologischen Besonderheiten, die allgemein verbreitete Erscheinung der Gametenbildung besondere Modifikationen erfahren hat.
Die besonderen Lebensbedingungen dieser Formen haben dazu geführt, daß starke Differenzen bei den Individuen, welche aus den „progamen“ (der Kopulation vorangehenden) und den „metagamen“ (der Kopulation nachfolgenden) Teilungen hervorgehen, sich finden. Dadurch ist der ausgeprägte „Generationswechsel“ entstanden.
Wir sind daher nicht genötigt, anzunehmen, daß Generationswechsel im üblichen Sinne des Wortes bei allen Protozoen (oder gar bei allen Organismen) vorkommt. Eine solche Auffassung würde zu einer künstlichen Zusammenfassung heterogener Erscheinungen führen.
VII. Terminologie der Protozoenentwicklung.
Die verschiedenen Auffassungen der Autoren vom Wesen der Protozoenentwicklung und von den einzelnen Etappen derselben haben ein reichhaltiges Lexikon der Terminologie zur Folge gehabt. Indem die einzelnen Forscher Bezeichnungen für die einzelnen Stadien und Vorgänge wählten, welche jeweils dem von ihnen untersuchten Objekt am besten entsprachen, entstand eine den Ueberblick erschwerende statt erleichternde Fülle von Bezeichnungen. Durch die Bemühungen von Schaudinn, Lühe, Lang, Grassi, Hartmann u. a. ist allmählich ein einheitliches System in die Terminologie gekommen, so daß man sich auf eine für sämtliche Organismen geeignete Bezeichnungsweise der Fortpflanzungserscheinungen einigen kann. Ich schließe mich in diesem Buch im wesentlichen der Terminologie von Hartmann an, weil sie auf alle Organismen anwendbar ist und keine theoretische Bindung enthält, indem ich sie nur in einigen Punkten etwas vereinfache. Doch scheint es mir nützlich, um dem Anfänger das Einarbeiten in die Literatur zu erleichtern, eine vergleichende Tabelle der in den wichtigsten Schriften allgemeinen Inhalts zur Anwendung gebrachten Terminologie zu geben (im Anschluß an Hartmann.)
Die Hartmannsche Terminologie geht im Anschluß an Schaudinn von der Betrachtung der Entwicklungsgeschichte als Zeugungskreis aus. Dies hat für die generelle Darstellung den Nachteil, daß „vor lauter Stadien das Tier selbst verschwindet“. Es kommt dabei nicht zum Ausdruck, daß bei fast allen Protozoen ein Stadium, nämlich [S. 226]dasjenige des vegetativen Wachstums und der agamen Vermehrung, nach Zeitdauer, Häufigkeit der Beobachtung und Wichtigkeit für die Wirkung auf die umgebende Natur eine Hauptrolle spielt. In diesem Stadium sind die meisten Protozoen zuerst beobachtet und beschrieben worden, an dies Stadium denken wir immer zunächst, wenn wir von einer Foraminifere, einem Radiolar, einer Gregarine etc. sprechen. In diesem Buch werde ich nun stets zur Bezeichnung der agamen Individuen den gewöhnlichen Gruppennamen verwenden und die Bezeichnung als Agamet nur dann heranziehen, wenn dies im Interesse der Klarheit bei speziellen Auseinandersetzungen notwendig erscheint. (Es sei an dieser Stelle erwähnt, daß in vielen neueren — vor allem englischen — Arbeiten der Agamet als Trophozoït bezeichnet wird.)
Der Nutzen einer einheitlichen Terminologie ist ersichtlich beim Vergleich der Zeugungskreise verschiedener Organismen. Sehr klar stellt sich die Anwendung bei der Volvocacee Stephanosphaera pluvialis dar, deren Kolonie aus 8 Agamonten besteht. Durch Agamogonie entsteht aus jedem derselben eine neue Kolonie (Fig. 226 I–III), dieser Vorgang kann sich wiederholen. Gelegentlich aber tritt die Gamogonie ein (Fig. 226 IV–VI). Jede der Zellen der Kolonie wird zu einem Gamonten, welcher zahlreiche Gameten (Isogameten) aus sich hervorgehen läßt. Aus deren Kopulation entsteht eine Zygote, welche heranwächst und durch Teilung in 8 Zellen (Agamonten) einen neuen Zellstock bildet.
|
Schaudinn
(1899, 1900) Lühe (1900) |
Lang (1901)
|
Grassi (1902)
|
Hartmann (1903)
(Auffassung I) |
Meine Modifikationen
der letzteren |
|
|---|---|---|---|---|---|
|
Schizont
|
Monont
|
Monont
|
Agamont (agames
Individuum) |
das „Coccidium“,
die „Gregarine“ etc. |
|
|
Schizogonie
|
Monogonie
|
Monogonie
|
Agamogonie
|
||
|
Merozoit
|
Gymnospore
(monogonisch) |
Sporozoit
(monogonisch) |
Agamet
|
||
|
Gametogene
Monontengeneration |
Geschlechtliche
Individuen (= Gamonten) |
||||
|
Gamogonie
|
progame Teilungen
der Gamonten |
||||
|
Makrogamet
|
Makrogamet
(Oogonium) |
Makrospore
|
Makrogamet
|
||
|
Mikrogametocyt
|
Antheridium
|
Antheridium
|
Mikrogametocyt
|
||
|
Mikrogamet
|
Mikrogamet
|
Mikrospore
|
Mikrogamet
|
||
|
Kopula
Sporont (Oocyste) |
|
Cystozygote
Amphiont |
Amphiont
|
Zygote
|
|
|
Sporogonie
|
Amphigonie
|
Amphigonie
|
Metagame
Teilungen |
(der Zygote)
|
|
|
Sporozoit
|
Gymnospore
(amphigonisch) |
Sporozoit
(amphigonisch) |
Sporozoit
|
||
|
Schizont
|
Monont
|
Monont
|
Agamont
|
||
[S. 227]
Auf Grund dieser Terminologie ist z. B. die Lebensgeschichte der Coccidien (Coccidium Schubergi nach Schaudinn) folgendermaßen zu beschreiben (Fig. 227): Ein junges Coccidium wandert in eine Wirtszelle ein (I und II), wächst dort heran (III und IV)[16] und vermehrt sich durch multiple Teilung (V–VII), die Nachkommen infizieren neue Zellen (VIII–X). Nachdem sich dieser Vorgang mehrmals wiederholt hat (nach mehreren agamen Generationen), treten junge Individuen auf (Gamonten), welche beim Heranwachsen zweierlei verschiedene Wege einschlagen (XI und XII). Die einen (XII a-XII e) liefern die Mikrogameten, wir nennen sie die Mikrogametocyten, die anderen (XI a-XI c) liefern die Makrogameten, wir nennen sie die Makrogametocyten. Nachdem je zwei Gameten kopuliert (XIII–XIV) haben und die Karyogamie (XIV) eingetreten ist, umgibt sich die Zygote (XV) mit einer Hülle (Cyste). Innerhalb derselben erfolgen Teilungen, welche zur Bildung von jungen Coccidien führen, von denen in diesem Falle je zwei in eine besondere Sporenhülle eingeschlossen sind. [Der Inhalt der Zygote zerfällt zunächst in 4 Sporenmutterzellen (XVI–XVIII), deren jede sich in zwei junge Coccidien (Agameten) teilt (XIX–XX), nachdem sie sich mit einer festen Sporenhülle umgeben hat.]
Diese Terminologie kann im Spezialfall noch durch Beziehungen besonderer Art ergänzt werden, indem man bei Coccidien z. B. die jungen, aus den Sporen auskriechenden Agameten als Sporozoïten [S. 229]den Agameten der späteren Generationen gegenüberstellt usw. Ganz vermieden wird jedoch der theoretisch nicht zu haltende Begriff der geschlechtlichen Fortpflanzung resp. Vermehrung. Die Vermehrung steht bei den Protozoen nicht in direktem Zusammenhang mit dem Geschlechtsakt. Doch schließt sich in speziellen Fällen, z. B. gerade bei den Coccidien, eine besondere Art der Vermehrung als biologische Anpassung an die Befruchtung direkt an. Es empfiehlt sich dann, diese Vermehrungsweise als metagame Vermehrung den progamen Teilungen gegenüberzustellen.
Bei unserer Betrachtung sind wir von einem Fall ausgegangen, bei welchem aus Individuen, die nach unserem gegenwärtigen Wissen vollkommen gleichartig sind, männliche und weibliche Gameten sich entwickeln können. Nach Schaudinn, Prowazek, Hartmann u. a. kann man jedoch bei einigen Coccidien und Flagellaten (vgl. S. 195) durch alle Stadien hindurch männliche und weibliche Individuen unterscheiden.
Es frägt sich nun, ob es angezeigt ist, auch in diesen Fällen die gleiche Terminologie durchzuführen. Ich bin der Ansicht, daß dies geschehen kann. Wenn wir die oben (S. 172) gegebene Definition konsequent anwenden, indem wir als Gameten nur die zur Vereinigung in einem Befruchtungsakt bestimmten Individuen bezeichnen, so können wir, indem wir alle anderen Stadien als Agameten benennen, ohne Gefahr einer Verwirrung von männlichen und weiblichen Agameten sprechen. Genau entsprechend kennen wir ja agame Vermehrung durch Knospung bei rein männlichen oder rein weiblichen Hydroidenstöcken, auch sind analoge Verhältnisse im Pflanzenreich bekannt.
III. Regeneration.
Die Regenerationserscheinungen bei den Protozoen sind geeignet, uns Einblicke in das Wesen der Lebenserscheinungen und speziell der entwicklungsgeschichtlichen Formwandlungen zu verschaffen.
In Stücke zerschnittene Protozoen bleiben unter bestimmten Vorbedingungen nicht nur am Leben, sondern sie ersetzen sogar die verloren gegangenen Teile, wachsen und pflanzen sich fort, wie normale Tiere. Schon vor mehr als 25 Jahren hat man begonnen, die Regenerationserscheinungen bei den Protozoen zu studieren, und seither sind vor allem durch die Arbeiten von Balbiani[17], Nußbaum, Gruber, Verworn, Hofer, Lillie, Johnson, Morgan und Prowazek wichtige Ergebnisse erzielt worden, welche zeigen, daß die Regeneration im wesentlichen bei Protozoen ebenso vor sich geht, wie bei Metazoen. Erfahrungen über Regeneration sind bei allen Protozoengruppen, mit Ausnahme der Sporozoen, gewonnen worden.
Wenn man eine einkernige Amöbe in Stücke zerschneidet, so verhalten sich die verschiedenen Stücke verschieden (Fig. 228). Alle Stücke können zwar eine gewisse Zeit am Leben bleiben, auch können sie nach anfänglicher Abkugelung wieder Pseudopodien bilden und [S. 230]sich bewegen; ihre kontraktile Vakuole funktioniert weiter. Während aber die kernlosen Stücke nicht fressen und vor allem nicht verdauen und daher nicht wachsen, übt das kernhaltige Stück bald diese Funktionen in vollkommen normaler Weise aus. Es lebt weiter und vermag sich später fortzupflanzen, während die kernlosen Stücke nach einiger Zeit absterben. Dies ist vor allem klar erwiesen worden durch die Experimente von Hofer (an Amoeba proteus) und von Verworn (an der Foraminifere Polystomella crispa). Hofer zeigte ferner bei seinem Objekt, daß der Schleim, welcher bei der Bewegung der Amöben eine so wichtige Rolle spielt (vgl. S. 109), von den kernlosen Stücken nicht mehr produziert wird. Polystomellastücke ohne Kern reparieren ihre Schale nicht, während die kernhaltigen dies tun. Aus den verschiedenen Experimenten können wir schließen, daß die lebenswichtigen chemischen Prozesse in kernlosen Stücken nach kurzer Zeit aufhören.
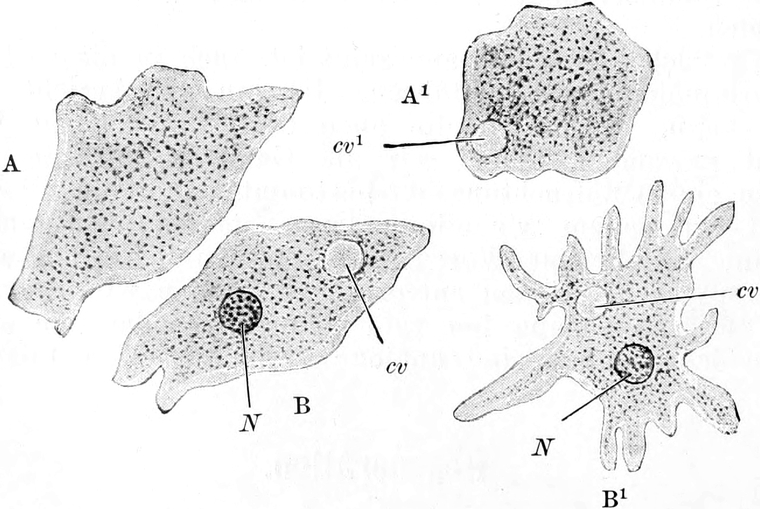
Uebrigens fehlt kernlosen Stücken nicht jede Fähigkeit zur Ausübung von lebenswichtigen Tätigkeiten. Ein begonnener Freßakt wird wenigstens eine Zeitlang fortgesetzt, die Verdauung und Defäkation ebenso. Pulsation der kontraktilen Vakuole findet ungestört statt. Ja Protozoen, deren Kerne durch Parasiten oder durch fettige Degeneration vollkommen zerstört sind, können oft noch lange weiter leben. Es scheinen also zu den lebenswichtigen Funktionen nur bestimmte Substanzen des Kerns, nicht dessen Gesamtstruktur notwendig zu sein. Uebrigens ist nach den oben erwähnten Analogien an unbelebten Flüssigkeiten (S. 90) nicht weiter verwunderlich, daß bei den kernlosen Plasmaportionen Aufnahme und Ausstoßung von Partikeln erfolgt. Sie folgen dabei nur den Gesetzen, welche für alle Flüssigkeiten gelten.
Daß der vom Plasma isolierte Kern bald abstirbt, ohne den Körper zu regenerieren, ist bei der schweren Verletzung und Störung der Lebensbedingungen nicht verwunderlich und daher nicht absolut [S. 231]beweisend für seine Abhängigkeit vom Plasma (vgl. die Versuche von Verworn an dem Radiolar Thalassicolla, 1891).
Eine eigentliche Regeneration ist bei der Amöbe auch bei dem kernhaltigen Stück nicht erfolgt. Aus dem vorhandenen Material ist an der Wundstelle, wo Entoplasma bloßgelegt wurde, neues Ektoplasma entstanden, oder es wurde sogar durch den Messerschnitt das Ektoplasma der Ober- und Unterseite vor der Wundöffnung zusammengepreßt und zum Verschmelzen gebracht, so daß eine offene Wunde gar nicht entstand.
Dagegen erfolgen bei den Protozoen mit konstanter Eigenform, vor allem bei den kompliziert gebauten Ciliaten, sehr bemerkenswerte Regenerationsvorgänge. Auch hier zeigt sich eine deutliche Abhängigkeit vom Kern. Einerlei ob die Stücke klein oder groß sind, wenn sie kernlos sind, so erfolgt zwar eine Verheilung der Wunden, und es zeigt sich eine Tendenz zur Wiederherstellung der Form, aber eine solche kommt nicht zum Abschluß. Die Teilstücke leben noch eine Zeitlang, ihre Bewegungsorganellen funktionieren noch; aber es werden die verloren gegangenen Organellen nicht neu gebildet. Nach einigen Tagen tritt Degeneration ein, die Stücke sterben ab.
Ganz anders verhalten sich die Stücke, welche Teile des Kerns (ob nur des Hauptkerns?) erhalten haben, was bei den Stentorarten mit ihrem langen rosenkranzförmigen Kern leicht zu erzielen ist (Fig. 230). Solche Tiere nehmen rasch eine dem normalen Tier ähnliche Form an, verheilen schnell die Wunden und regenerieren alle beim Schnitt ihnen nicht zugefallenen Teile. Nach 24 Stunden ist das Teilstück zu einem allerdings verkleinerten Stentor geworden. Teilstücke, welche bei reichlichem Protoplasma nur wenig Kernsubstanz enthalten, regenerieren nicht und gehen bald zugrunde.
Wie aus Fig. 231 ersichtlich ist, ergänzt jedes Teilstück diejenigen Bestandteile, welche ihm fehlen. Das Hinterstück ergänzt ein Vorderende, das Mittelstück Vorder- und Hinterende. Seitenstücke ergänzen die fehlende Seitenhälfte etc.
Die Teilbarkeit ist nicht unbeschränkt, aber es können noch sehr kleine kernhaltige Stücke zu vollständigen Tieren werden; so hat Lillie solche aus Stücken von 70–80 µ Durchmesser, bei ¹⁄₂₇ (nach Morgan sogar ¹⁄₆₄) des Volumens des ganzen Stentors hervorgehen sehen.
Sogar Superregenerationen sind festgestellt worden; so hat Prowazek bei Stylonychia die Bildung eines doppelten bis vierfachen Körperendes bei der Regeneration festgestellt; und zwar wurde dies [S. 232]an Tieren beobachtet, die infolge weitgehender Degeneration ihr Hinterende selbst abstießen.
Die bemerkenswerteste Tatsache für die Formbildung bei den Protozoen ist aber die eigenartige Erscheinung, daß das regenerierte Tier in allen seinen Bestandteilen entsprechend der Masse seiner Substanz kleinere Organellen besitzt, welche in denselben Proportionen untereinander stehen, wie die entsprechenden Organellen des normalen Tieres. Zu diesem Ziel müssen nicht nur erhebliche Verlagerungen in der Substanz des Tieres stattfinden, sondern es müssen sogar Organellen umgeschmolzen und neu gebaut werden. Teile der adoralen Spirale, der Körperbewimperung, Myoneme, Cytopharynx, Kern etc., kurz, alle Bestandteile des Infusors, welche eine feste Grundlage besitzen, können aufgelöst und neu differenziert werden.
Sehr bemerkenswert ist das verschiedene Verhalten der operierten Tiere je nach dem Zeitpunkt der Operation. Während ruhende, d. h. nicht sich teilende, Infusorien sofort regenerieren, verhalten sich in der Teilungsphase befindliche Individuen verschieden. In der Teilung befindliche Stylonychien regenerieren nach Popoff sofort, wenn sie operiert werden, ehe das Teilungswachstum eingetreten ist. Ist aber im Zeitpunkt der Operation das Teilungswachstum schon erfolgt, so teilt sich das Tier zuerst, und das eine Teiltier hat dann nachträglich zu regenerieren. Es entstehen dann sehr merkwürdige Bildungen; [S. 233]wenn z. B. das Hinterende weggeschnitten wurde, wird das hintere Teiltier ganz klein, da ein Teil der ihm gebührenden Hälfte der Körpermasse weggeschnitten wurde; das vordere Teiltier wird dagegen normal groß.
Alle diese Vorgänge schließen sich eng an die oben geschilderten, bei Teilung, Konjugation etc. auftretenden Umschmelzungen an. Auch bei Metazoen kommt ähnliches vor. Aber wie für das Verständnis der Protozoenform, so scheint für unsere Auffassung von der organischen Form überhaupt in diesen Vorgängen bei den Protozoen ein Schlüssel zu den wichtigsten Fragen zu liegen.
Auch Hyperregenerationen und Heteromorphosen sind bei Infusorien beobachtet worden. In einigen wenigen Fällen ist Transplantation bei verschiedenen Individuen der gleichen Art gelungen (Mycetozoen, Pelomyxa, Thalassicolla, Stentor).
IV. Form und Entwicklung bei den Protozoen.
Das biogenetische Grundgesetz.
Wir haben in den vorangehenden Kapiteln gesehen, daß die Formveränderungen im Leben der Protozoen von zwei Gruppen von Faktoren abhängen:
- 1) von äußeren Faktoren,
- 2) von inneren Faktoren.
Mit der Aenderung der Faktoren ändert sich die Form der Tiere in vielen Fällen sehr augenfällig, wenn die geänderten Faktoren den Tieren nur die zum Leben geeigneten Bedingungen lassen.
Die äußeren Faktoren, welche am meisten die Form zu beeinflussen vermögen, sind solche, welche die Oberflächenspannung verändern. So sehen wir bei Amöben die typische Form der Pseudopodien sich verändern, wenn das sie enthaltende Medium alkalisch gemacht wird; es kann dadurch eine Amöbe vom Habitus der Amoeba limax in eine solche vom Habitus der A. radiosa umgewandelt werden (Fig. 233).
[S. 234]
Die Loslösung der Vorticelle von ihrem Stiel hat die Entstehung eines hinteren Wimperkranzes an ihrem Körper in der Nähe der Festhaftungsstelle zur Folge. Dessen Basis erscheint zwar am Körper der Vorticelle präformiert, aber die Cilien selbst treten erst nach der Ablösung auf (Fig. 234).
Wenn die Gameten der Malariaparasiten aus dem Blut des Wirts in ein Medium von veränderter osmotischer Beschaffenheit, z. B. in verdünntes Blut kommen, so wird aus dem „Halbmond“ die Sphäre, d. h. der Makrogamet kugelt sich ab, und die Mikrogametocyten erzeugen Mikrogameten. Die Veränderung der Temperatur und der chemischen Zusammensetzung des Mediums ist vom größten Einfluß auf das Zustandekommen der Befruchtungsvorgänge.
Die inneren Faktoren, welche Formänderungen der Tiere herbeiführen, scheinen in der Hauptsache in Aenderungen der chemischen Zusammensetzung der den Körper aufbauenden Substanzen zu beruhen. So hat z. B. Neresheimer beobachtet, daß [S. 235]bei Amoeba Dofleini in einem bestimmten Stadium der Entwicklung aus dem Kern eigenartige kristallartige Körperchen austreten und das Plasma des Tiers erfüllen. Sobald diese Substanz auftritt, ändert das Tier seine vorher breitlappige Form und bekommt lange dünne Pseudopodien (Fig. 235).
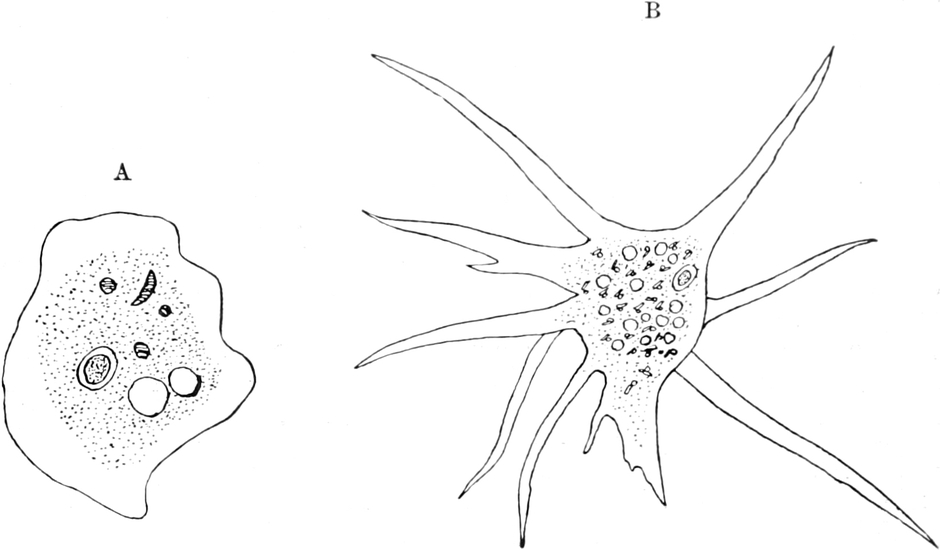
Fauré-Fremiet ist es gelungen, durch Darreichung ausschließlich vegetabilischer oder animalischer Nahrung verschiedene Formen von Vorticella microstoma zu züchten.
Sowohl eine Aenderung der inneren als auch der äußeren Faktoren scheint bei den bedeutenden Formänderungen vorzuliegen, welche Trypanosomen im künstlichen Medium (und bei Uebertragung auf eine neue Tierart) annehmen können, wobei nicht nur der Habitus des ganzen Tiers, sondern auch die Lage des Blepharoplasten und Kerns sich erheblich verändern können (vgl. unten im speziellen Teil Trypanosoma rotatorium nach Bouet und Doflein).
Wenn wir diese verschiedenen Fälle berücksichtigen, so werden wir wohl mit Recht annehmen dürfen, daß die Aufeinanderfolge der oft so verschieden aussehenden Stadien im Zeugungskreis mancher Protozoen durch die äußeren Faktoren bestimmt wird. Bei allen genauer studierten Formen fällt ja das Auftreten neuer Stadien zeitlich zusammen mit Veränderungen im äußeren Medium. Aber sie treten nicht ein, wenn nicht im Protozoon selbst eine Reihe von Vorgängen abgelaufen ist, d. h. wenn nicht im Protozoenkörper gewisse chemische und physikalische Aenderungen eingetreten sind. So sehen wir denn auch Individuen, welche in ihrer substanziellen Zusammensetzung auffallend verschieden geworden sind, beim Eintritt der gleichen Veränderung der äußeren Bedingungen sich ganz verschieden verhalten, z. B. die männlichen und weiblichen Gametocyten von Coccidien und Hämosporidien.
Da ich, wie aus diesen Darlegungen folgt, die theoretische Ueberzeugung habe, daß sich viele weitgehende Formänderungen bei den Protozoen aus der Variation der oben bezeichneten inneren und äußeren Faktoren auf physikalisch-chemischer Grundlage erklären lassen werden, so halte ich es für ratsam, bei der Deutung der Entwicklungsstadien [S. 236]von Protozoen für phylogenetische Spekulationen mit großer Vorsicht vorzugehen. Vor allen Dingen ist die Anwendbarkeit des sogenannten biogenetischen Grundgesetzes auf die Protozoen sehr zweifelhaft.
Es ist ja allerdings das Auftreten von bewimperten Schwärmern bei den mit den Infusorien nahe verwandten Suctorien sehr auffallend; ferner das Vorhandensein von geißeltragenden Stadien bei Rhizopoden und Sporozoen, von nackten amöboïden Fortpflanzungsstadien bei beschalten Rhizopoden — also vielfach das Auftreten von „Jugendstadien“ in Formen, welche denen gleichen, von denen wir die betreffenden Gruppen abzuleiten geneigt sind. Aber bewimperte Fortpflanzungsstadien sind ja auch bei Algen vorhanden, geißeltragende und amöboïde im Organismenreich weit verbreitet. Es ist sehr wohl möglich, daß ihr Auftreten von ganz anderen Bedingungen abhängt, welche nur indirekt von der phylogenetischen Geschichte der Art beeinflußt sein können. Wollen wir auch nicht annehmen, daß das Auftreten eines bestimmten Stadiums, z. B. des Geißelschwärmers, lediglich dadurch bestimmt werde, daß das Verhältnis der chemischen Beschaffenheit von Protozoen und Medium einen bestimmten Wert annimmt, so liegt es doch nahe, anzunehmen, daß die ähnlichen Formen durch Anpassung an ähnliche Lebensbedingungen entstanden sind.
So hat Bütschli schon im Jahre 1876 geschlossen: es fragt „sich doch sehr, ob die Ausbildung dieser Fortpflanzungskörper etwa als ein Rückschlag zu einer früheren Organisationsstufe der Protozoen aufgefaßt werden dürfe oder als eine bestimmter Zwecke wegen, allmählich erlangte besondere Ausbildung der Sprößlinge. Nur im ersteren Falle ließe sich die allmähliche Entwicklung der Organisation des Muttertiers an dem Fortpflanzungskörper (Sprößling, Spore etc.) als ein der ontogenetischen Entwicklung der höheren Organismen entsprechender Vorgang betrachten; in letzterem Falle hingegen könnte man höchstens von einer Metamorphose sprechen, in ähnlicher Weise wie ja viele Protozoen derartige Metamorphosen infolge des sich in ihren Entwicklungsgang häufig einschiebenden Encystierungsprozesses durchmachen.“
Ich bin mit Bütschli der Ansicht, das letzteres das Wahrscheinlichere ist, und daher habe ich alle die in den letzten Abschnitten dargestellten Vorgänge am Protozoenkörper (bei der Teilung, den verschiedenen Formen von Agameten- und Gametenbildung, bei Sporulation, Encystierung, Regeneration etc.) in diesem Zusammenhang vereinigt. Sie alle scheinen mir das Resultat der gleichen Kräfte zu sein; stets sehen wir die lebenden Körper der Protozoen bestrebt, auf Grund der ihren Körpersubstanzen innewohnenden Gestaltungskräfte bestimmte Formen anzunehmen, welche aber durch die Wirkung der äußeren Faktoren in bestimmten Schranken gehalten werden.
Ehe wir nun erörtern, welche Bedeutung diese Betrachtungen für die Auffassung von der Vererbung bei den Protozoen besitzen, müssen wir auf Grund der bisher gewonnenen Kenntnisse die Beziehungen der Protozoenorganisation zum Zellbegriff darlegen.
V. Die Protozoen als einzellige Organismen.
In der Einleitung hoben wir hervor, daß die Protozoen als einzellige Organismen aus einem Protoplasmaleib mit einem Zellkern [S. 237]bestehen. Wie überall in der organischen Natur Definitionen nur für einen gewissen Durchschnitt der betrachteten Individuen anwendbar sind und um so ungenauer werden müssen, einen je größeren Bereich sie umfassen sollen, so ist auch jene Definition nur für die typischen Protozoen anwendbar. Wir bezeichnen als typische Formen die große Mehrzahl der Protozoen, welche in ihrem morphologischen Aufbau tatsächlich einer einkernigen Zelle entsprechen (z. B. viele Rhizopoden, Flagellaten, Sporozoen).
Andere Protozoen bleiben jedoch wenigstens vorübergehend unter der Stufe der Organisation zurück, welche durch die typische Kernzelle repräsentiert wird, während andere vorübergehend oder dauernd in ihrer Organisation über die Stufe des einzelligen Organismus hinausgehen.
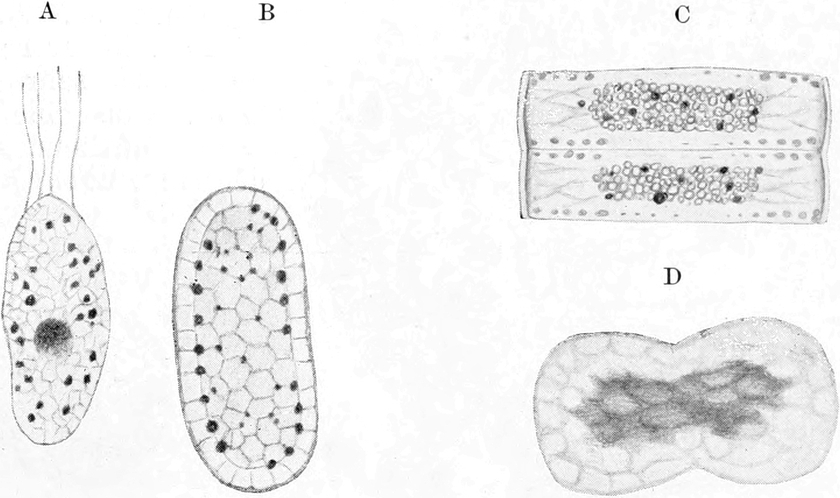
Organismen, welche in ihrem Bau nur eine der Kernzelle analoge Einheit repräsentieren, können kernlos sein. Sie müssen aber nicht derjenigen Substanzen entbehren, welche den Zellkern aufbauen. Vielmehr finden wir in ihnen mit denselben Methoden dieselben Substanzen, welche wir sonst vor allem im Zellkern lokalisiert sehen; aber dieselben, vor allem das Chromatin, sind nicht zu einer einheitlichen Bildung, einem Kern individualisiert, sondern in Brocken und Strängen im Protoplasma verteilt, sie bilden also Chromidien, wie wir sie früher schon kennen gelernt haben. Eine derart organisierte Zelle nennen wir eine Chromidialzelle.
Die größeren Bakterien und Spirochäten und ähnlich die Cyanophyceen unter den niederen Algen sind, soweit wir bis jetzt unterrichtet sind, solche Chromidialzellen. In ihrer Substanz erkennen wir stark lichtbrechende Granulationen, welche sich mit Kernfarbstoffen stark färben. Es scheint, daß aus diesen Chromidien sich zu Zeiten Kerne aufbauen können, wie dies Schaudinn bei der Sporenbildung [S. 238]von Bacillus Bütschlii oder wie es Vejdovsky bei langsam sich teilenden Bakterien beschrieben hat.
Die zellkernlosen Organismen bezeichnen wir im Anschluß an früher von Haeckel entwickelte Vorstellungen als Moneren.
Aber auch bei den Protozoen finden wir mitunter Zustände, in denen die Zelle kernlos ist und einer Chromidialzelle entspricht. R. Hertwig, der Entdecker der Chromidien, hat sie zuerst als Bildungen nachgewiesen, welche sowohl in normalen als auch in pathologischen Prozessen bei Actinosphaerium Eichhorni auftreten. Er hat bei dem gleichen Organismus gezeigt, daß in Hungerkulturen sämtliche Kerne aufgelöst und in Chromidien umgewandelt werden können, welche dann das Plasma der so entstandenen Chromidialzelle erfüllen. Dieselbe ist dann in ihrer ganzen Substanz sehr stark färbbar und bietet ein sehr auffallendes Bild dar (Fig. 237).
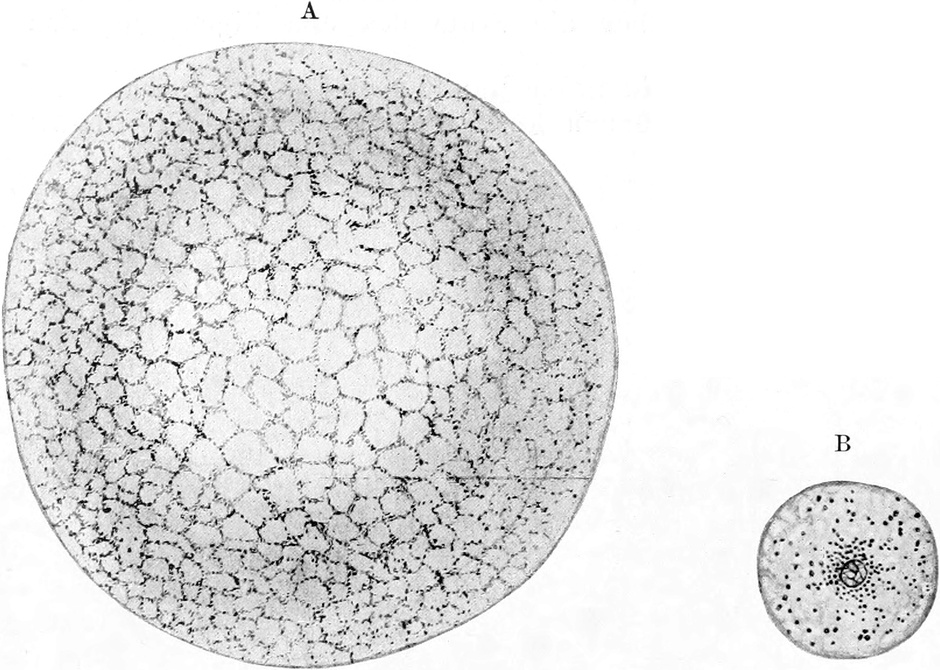
Als normaler Prozeß tritt nach Schaudinn u. a. die Umwandlung in eine Chromidialzelle bei einer ganzen Anzahl von Protozoen bei der Gametenbildung ein. Bei den Mikrogametocyten der Coccidien z. B. zerfällt der Kern nach Schaudinn, Siedlecki u. a. vollkommen, so daß schließlich die Zelle von einem staubförmig verteilten Chromatin erfüllt ist, aus welchem sich schließlich die Kerne der Mikrogameten rekonstruieren.
Bei Entamoeba, bei Foraminiferen, Gregarinen und Mastigamöben wird Austritt von Chromatin aus dem Kern und Ausbildung von fein verteilten Chromidien im Protoplasma beschrieben. Aus den Chromidien rekonstruieren sich nach den vorliegenden Angaben die Kerne der Gameten; bei Thalamophoren (Echinopyxis nach Schaudinn, Arcella nach Elpatiewski und Swarzewski) kriechen Sprößlinge im Zustand der Chromidialzelle längere Zeit umher, ehe die Bildung der Kerne aus den Chromidien erfolgt. (Vielleicht sind die vielfach früher beschriebenen Moneren Stadien von Protozoen im Zustand der Chromidialzelle gewesen, vgl. Fig. 238.)
[S. 239]
Hier ist auch der geeignete Ort, den Vorgang freier Kernbildung zu besprechen. Während längere Zeit die Meinung herrschend war, daß Kerne stets durch einen Teilungsvorgang aus anderen Kernen hervorgehen müssen, haben sich in neuerer Zeit die Angaben gemehrt, daß durch einen Verdichtungsvorgang aus Chromidien sich Kerne direkt bilden können.
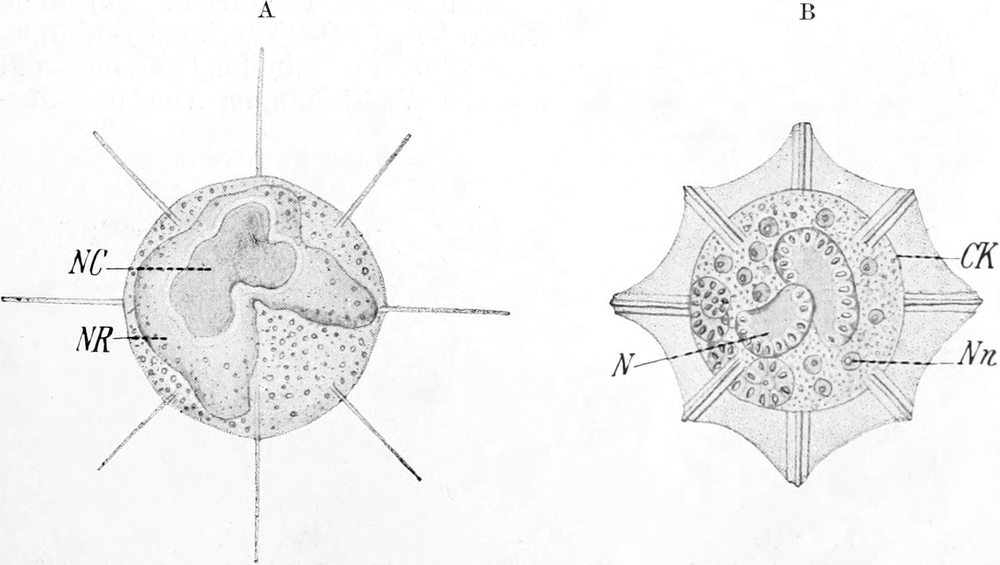
Solche freie Kernbildung hat schon früher im Jahre 1876 R. Hertwig bei Acanthometriden angegeben, bei denen eine mächtige „Rindenschicht“ am Kern ausgebildet ist; aus dieser gehen nach seinen Angaben zahlreiche kleine Kerne hervor, welche in ihr selbst gebildet werden, um darauf auszutreten (Fig. 239 A und B). Später (1899) hat er bei Arcella freie Kernbildung aus dem Chromidialnetz beschrieben (Sekundärkerne im Gegensatz zu dem ungeteilt bleibenden Primärkern), worauf dann von Schaudinn bei verschiedenen Rhizopoden, von Goldschmidt bei Mastigamöben die Bildung der Gametenkerne aus Chromidien angegeben wurde. Am eingehendsten hat Goldschmidt diesen Vorgang beschrieben. Bei Mastigella vitrea tritt bei der einen Fortpflanzungsform nach seinen Beobachtungen Chromatin aus dem Kern aus, es bildet sich neben dem Kern eine dichte Chromidialmasse, welche wächst, und in und aus welcher sich [S. 240]allmählich Kerne differenzieren. (Fig. 240 A–C). Die Kerne lösen sich dann von der Chromidialmasse los und verteilen sich im Plasma, welches von Gameten erfüllt ist, während der ursprüngliche Kern (der Primärkern) der Zelle vollkommen intakt geblieben ist (Fig. 241).
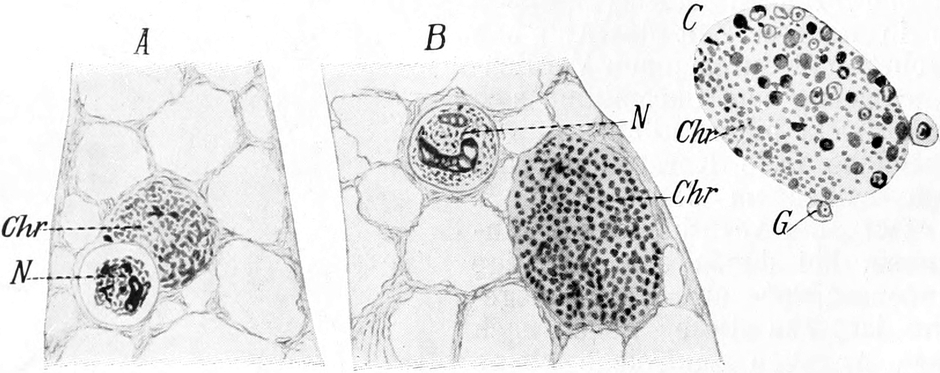
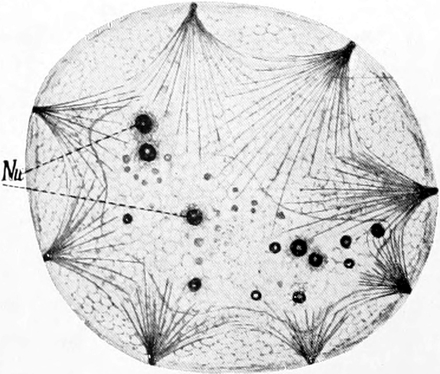
Diese Angaben über freie Kernbildung habe ich etwas ausführlicher dargelegt, weil sie für unsere Auffassung von der Protozoenzelle von großer Bedeutung sein müssen, wenn sie sich vollkommen bestätigen lassen. An sich würden sie ja sich sehr wohl mit unseren allgemeinen Vorstellungen vom Bau der Zellen vereinigen lassen, welche — wie R. Hertwig ganz mit Recht hervorgehoben hat — sich nicht allzusehr vom Schema der Metazoenzelle beeinflussen lassen dürfen. Vor allem würde eine solche freie Kernbildung sehr gut im Einklang stehen mit unseren Vorstellungen von der flüssigen [S. 241]Beschaffenheit der Zellbestandteile und von den verschiedenen Graden der Viskosität der Kernbestandteile. Es wäre sehr gut einzusehen, daß aus zähflüssiger Chromidialmasse durch Umwandlung in flüssigeren Zustand bläschenförmige Kerne entstehen. Doch möchte ich nicht unterlassen, hervorzuheben, daß ich die Angaben für nicht ganz beweisend halte, daß vor allem in einigen der beschriebenen Fälle eine Täuschung durch Parasitismus möglich ist.
Ferner kann in einigen der Fälle infolge der Feinheit der Strukturen und der Schwierigkeit der Konservierung die Beteiligung der Gerüstsubstanz an der Kernbildung der Beobachtung entgangen sein. So hat neuerdings Moroff bei Gregarinen gezeigt, daß nach Auflösung des großen Kerns die Gametenkerne sich rekonstruieren, indem die Teilung der Centrosomen für kleine Chromatinanhäufungen viele neue Zentren schafft (Fig. 242); bei der Kernneubildung nimmt also hier die achromatische Gerüstsubstanz einen Anteil, welcher die Kernvermehrung sehr dem üblichen Typus annähert.
Schließlich hat neuerdings Hartmann in seinen Anschauungen über polyenergide Kerne einen Weg gezeigt, auf welchem wir uns scheinbare freie Kernbildung durch das Selbständigwerden zeitweise verschmolzener monoenergider Kerne erklären können. Wir werden sogleich auf diese Theorie zurückkommen (S. 243).
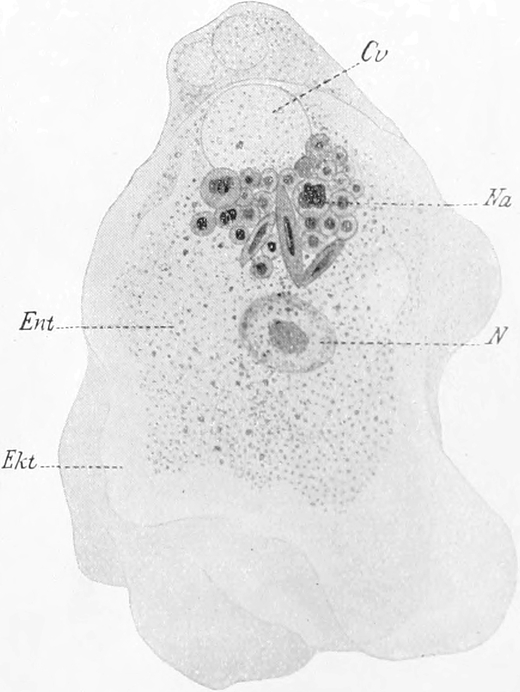
Den besprochenen Formen und Stadien, welche unter der Organisationsstufe einer Kernzelle stehen, können wir unter den Protozoen Formen gegenüberstellen, welche in ihrer Organisation über die Stufe der Einzelligkeit hinauszuragen scheinen; und zwar
- 1) durch Vielkernigkeit,
- 2) durch die Komplikation ihrer Leistungen als organische Individuen,
- 3) durch die Bildung von Zellstöcken, welche Individuen höherer Ordnung darstellen können.
In fast allen Gruppen des Stammes der Protozoen finden sich neben einkernigen Arten solche mit zwei oder mehreren bis vielen Kernen. Wir kennen z. B. neben einkernigen, zweikernige und vielkernige Amöbenformen (Fig. 243, 244 und 245). Wir sind gewohnt, solche mehrkernige Protozoen dennoch als einzellige Individuen aufzufassen und werden [S. 242]in dieser Auffassung durch das gesamte Verhalten dieser Formen unterstützt. Sie erscheinen uns stets als einheitliche Individuen; so sehen wir auch die Kernteilungen an den verschiedenen Kernen bei ihnen vollkommen gleichzeitig verlaufen (vgl. Fig. 244).
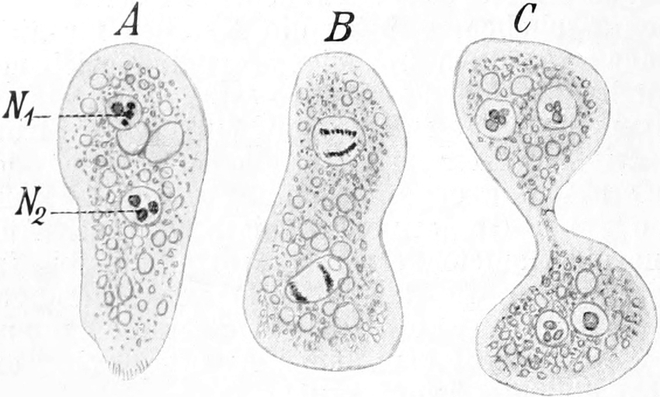
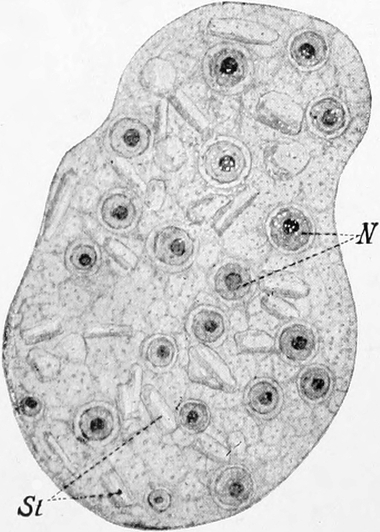
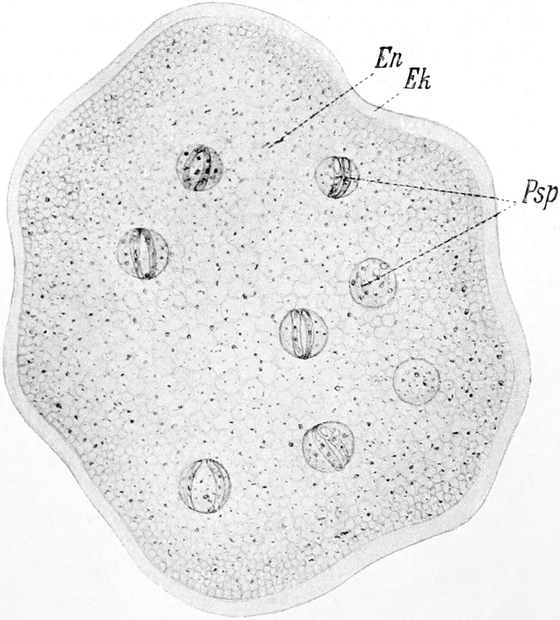
Bei anderen vielkernigen Formen sehen wir allerdings bisweilen einzelne der Kerne sich unabhängig von den anderen teilen. Wir schließen daraus auf eine viel größere Selbständigkeit des betreffenden Zellbezirks. Um die Beziehungen der Zellkerne zum Plasma und untereinander zu beschreiben, bedient man sich oft mit Vorteil des von Sachs und Koelliker eingeführten Begriffs der Energide. Unter einer solchen versteht man einen Kern samt dem funktionell zugehörigen Plasmabezirk; wo der Leib des Tieres in [S. 243]einkernige Zellen zerlegt ist, fällt der Begriff Energide mit dem Zellbegriff zusammen, in vielkernigen Zellen ist er eine theoretische Fiktion.
Bei den Protozoen können wir nun alle Abstufungen in der Selbständigkeit der Energiden finden. Während in manchen Fällen die einzelnen Energiden ganz unabhängig voneinander bleiben, so daß z. B. nach plasmogamischer Verschmelzung von Amöben, Heliozoen, Myxamöben etc. eine Auflösung der zusammengeflossenen Masse in sämtliche Komponenten erfolgt[18], sehen wir in anderen Fällen die Energiden nicht einmal bei der Fortpflanzung selbständig werden. Es kann die Abhängigkeit der Energiden voneinander so groß werden, daß der Organismus durchaus an ein vielzelliges Tier erinnert. Das ist der Fall z. B. bei den Myxosporidien (Fig. 246) und Actinomyxideen, welche im Innern ihres vielkernigen Körpers Sporen bilden, an deren Aufbau sich verschiedene Energiden beteiligen, welche ja fast den Charakter selbständiger Zellen besitzen (vgl. dazu die Details im speziellen Teil).
Polyenergide Kerne. In diesem Zusammenhang ist auch auf interessante Ideen hinzuweisen, welche neuerdings Hartmann über die Natur gewisser Protozoenkerne entwickelt hat. Er nimmt an, daß die riesigen Kerne von Radiolarien (Fig. 249), aber auch solche von Coccidien (Fig. 247), Heliozoen (Fig. 248), Amöben etc. aus zahlreichen „Energiden“ zusammengesetzt seien. Die Entstehung solcher polyenergider Kerne glaubt Hartmann im Anschluß an die Untersuchungen von Jollos, Zuelzer, Borgert, ihm selber u. a. vor allem auf Teilungen des Karyosoms zurückführen zu können. Die zahlreichen Chromosomen der Radiolarienkerne repräsentieren nach seinen Annahmen je einen kleinen Kern. Auch denkt er an die Zusammensetzung der Chromidien von Protozoen und der Makronuclei der Ciliaten aus zahlreichen Einzelkernen. Bei Vermehrungsvorgängen kann in verschiedener Weise aus dem „Polykaryon“ eine Menge von kleinen „Monokaryen“ hervorgehen. So erklären sich die eigenartigen multiplen Vermehrungsvorgänge, die freie Kernbildung, die Riesenmitosen der Radiolarien etc. (vgl. Fig. 159 u. 160 S. 155).
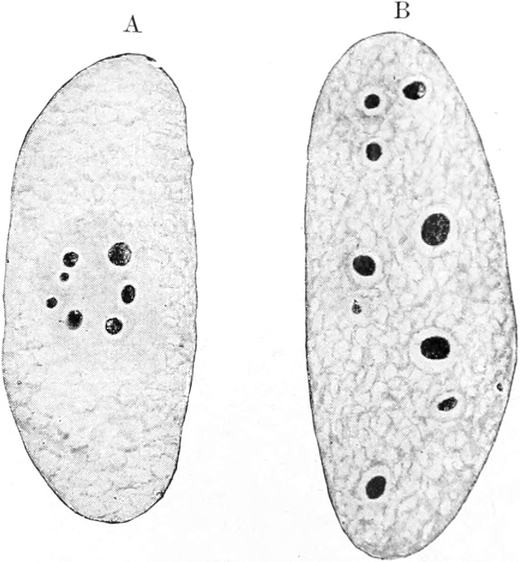
Die Hartmannsche Theorie ist ernsthaftester Beachtung wert und eventuell wohl geeignet, bisher sehr schwer verständliche Tatsachen einer einheitlichen Erklärung zugänglich zu machen. Doch [S. 244]erfordern die ihr zugrunde gelegten Beobachtungen noch genauere Prüfung und weitere Klärung.
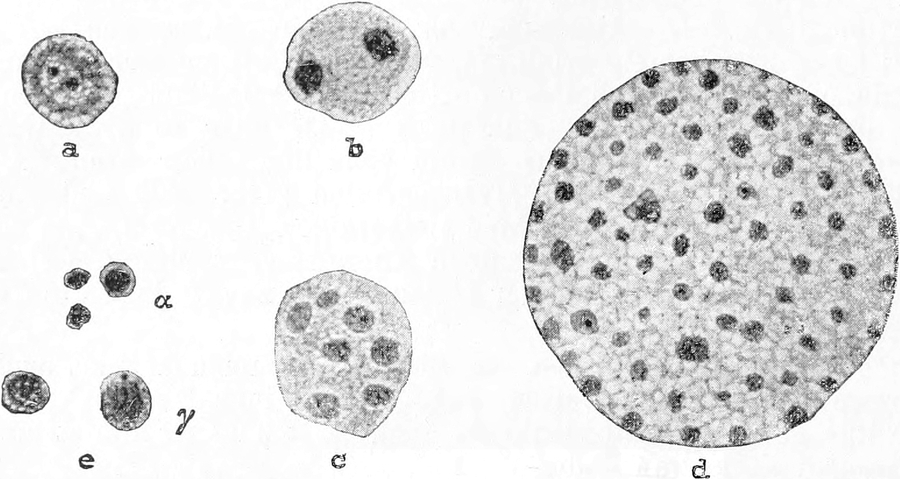
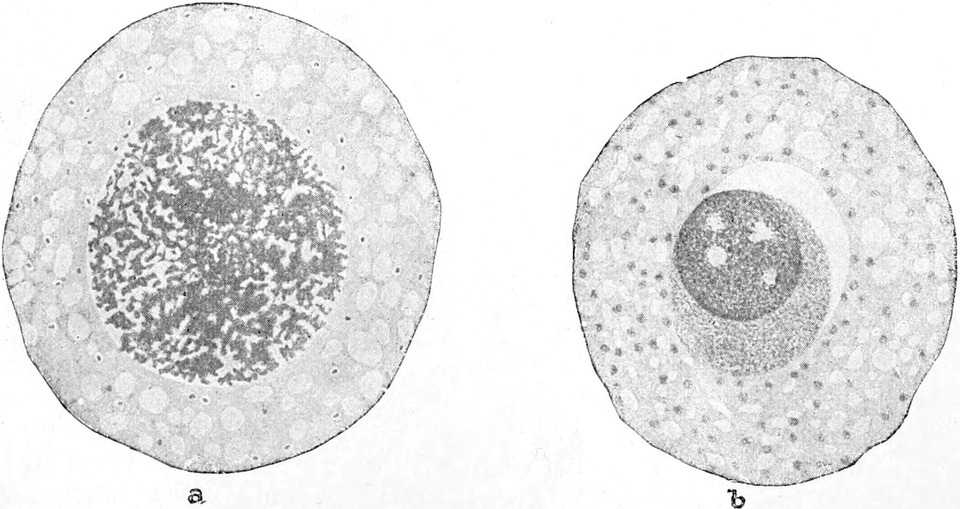
Die mangelnde Unabhängigkeit der Kerne innerhalb eines Protozoenindividuums tritt uns besonders in den Fällen klar entgegen, in denen eine Arbeitsteilung zwischen den einzelnen Kernen erfolgt ist. Bei den Ciliaten z. B. unterscheiden wir zwei Kerne als Makronucleus oder Hauptkern und Mikronucleus oder Nebenkern voneinander. Beide liegen in der Regel nahe beieinander und sind in Größe, Struktur und Funktionen sehr verschieden; so verschieden, daß wir hier den Energidenbegriff nicht anwenden können, indem nicht jeder der Kerne einer bestimmten Plasmapartie zugehört, sondern indem beide für das gesamte Protozoon gesonderte Funktionen zu erfüllen haben. Während der Hauptkern vor allem mit den Prozessen der Ernährung, Verdauung und des Wachstums zu tun hat, tritt der [S. 245]Nebenkern nur bei der geschlechtlichen Fortpflanzung in erhöhte Tätigkeit.
Dieser Dualismus zwischen einem Stoffwechselkern und einem Geschlechtskern ist in Beziehung gesetzt worden zu weit bei den Protozoen verbreiteten Erscheinungen, und dieser Vergleich hat Schaudinn zu einer Theorie Anlaß gegeben, welche von Goldschmidt weiter ausgebaut worden ist, und welche wir an dieser Stelle kurz besprechen müssen. Wir haben oben erwähnt (S. 239), daß bei Rhizopoden (ähnliche Angaben finden sich für Flagellaten und Sporozoen) aus den Chromidien Gametenkerne entstehen, während die Primärkerne der betreffenden Formen ähnlich wie die Makronuclei der Infusorien bei den Befruchtungsprozessen keine Rolle spielen und zugrunde gehen. Solche Chromidien hat Goldschmidt als Sporetien unterschieden, da er sie mit den Geschlechtskernen der Infusorien homologisierte.
Die Theorie von Schaudinn und Goldschmidt nimmt nun an, daß alle Protozoenzellen potentiell doppelkernig sind. Stets ist ein somatischer (vegetativer) und ein Geschlechtskern (generativer Kern) vorhanden, welche allerdings nicht immer getrennt erkennbar, sondern oft in einem Kernindividuum vereinigt sind, um nur während der Fortpflanzungsphasen sich zu trennen (z. B. bei Foraminiferen). Sind aber beide Kerne getrennt vorhanden, so kann jede der beiden Kernarten, sowohl in Form eines geschlossenen Kerns als auch in Form von Chromidien vorkommen. Während also z. B. bei den Thalamophoren neben einem somatischen Kern generative Chromidien vorkommen, sind die Chromidien bei Actinosphaerium rein somatischer Natur, die Kerne jedoch die generativen Elemente.
Nach dieser Theorie werden die generativen Kerne als eine Reserve für die Fortpflanzungsphasen, als ein am vegetativen Zellleben wenig oder gar nicht beteiligtes Keimplasma betrachtet.
Wenn wir aber bedenken, daß dieser extreme Fall wohl nur bei den Infusorien annähernd verwirklicht ist, während die Chromidien der Thalamophoren, die Kernrindensubstanz der Acanthometriden, kurz alle die sonstigen als generativ bezeichneten Kernelemente sicher einen bedeutenden Anteil an den vegetativen Vorgängen des Zelllebens nehmen, so müssen wir die Theorie des Kerndualismus der Protozoenzelle in ihrer extremen Fassung ablehnen. Sie ist mehr ein Bild, ein morphologisches Schema der Erscheinungen als eine Erklärung der Vorgänge. Sicherlich hat sie viel zur Deutung der beobachteten Tatsachen beigetragen und wird dies in Zukunft noch tun.
Mir scheint aber nur folgendes aus den von ihr herangezogenen Tatsachen zu folgen: Die für eine Art charakteristischen Kernsubstanzen können sowohl in geschlossenen Kernen als auch frei im Plasma, als Chromidien, auftreten. Sowohl in den Kernen als auch in den Chromidien ist aber nicht die ganze Masse der färbbaren Substanz „Chromatin“ im engeren Sinn des Wortes, also diejenige Masse, welche für das Zustandekommen und die Vererbung der spezifischen Lebenserscheinungen notwendig ist, sondern es färben sich in ähnlicher Weise auch andere Substanzen, Reservestoffe, Fällungsprodukte u. dgl. Das hat dazu geführt, daß man zwei Arten von Chromatin unterscheiden wollte: Idiochromatin (als Vererbungssubstanz) und Trophochromatin oder Somatochromatin (als funktionierende Kernsubstanz).
[S. 246]
Alle Tatsachen weisen aber darauf hin, daß es nicht zwei Arten von lebenswichtigen Kernsubstanzen gibt, sondern daß es dasselbe Stoffgemisch ist, welches sowohl das Funktionieren als auch die Vererbung in den Protozoenzellen vermittelt. „Somatochromatin ist Idiochromatin, dessen Anlagen zur Tätigkeit erwacht sind. Idiochromatin läßt sich nicht als etwas Besonderes, was neben dem Somatochromatin besteht, auffassen; es ist Somatochromatin, welches eine Hemmung seiner Wirkungsweise erfahren hat und, unter geeignete Bedingungen gebracht, diese Hemmung abstreift und erneut seine Wirkungsweise entfaltet.“ (R. Hertwig.) Solches einheitliches Chromatin kommt nun in den Protozoenzellen sowohl in Form von geschlossenen Kernen als auch in Chromidien vor. Beide können daher sowohl an den vegetativen Prozessen als auch an den generativen Erscheinungen teilnehmen. Selbst im extremen Fall des Kerndualismus der Infusorien kann der Mikronucleus den Makronucleus und der letztere den ersteren hervorbringen.
Bei den vegetativen Prozessen werden aber reichlich Substanzen erzeugt, welche nicht für das Zustandekommen der Funktionen der Kerne notwendig sind. Solche Substanzen werden bisweilen, da sie den Kern belasten und seine Teilungsfähigkeit behindern, vor dem Eintritt der Teilung ausgestoßen (z. B. die Hauptmasse des Gregarinenkerns vor der Bildung der 1. Teilungsspindel [Fig. 250]).
Die Theorie vom Kerndualismus bei den Protozoen bewährt ihren Charakter als Arbeitshypothese auch darin, daß sie einem fortwährenden Wechsel unterworfen ist. Wir können hier nicht alle Phasen ihrer Umbildungen schildern, welche sie vor allem in einigen neueren Arbeiten von Hartmann und Prowazek gefunden hat. Es genüge. hier auf die Grundlagen dieser Theorie hingewiesen zu haben.
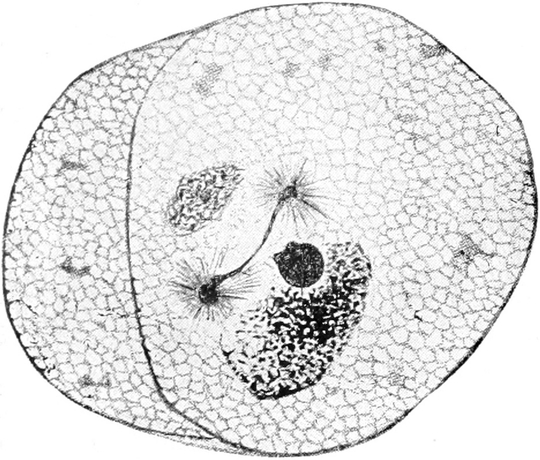
Aber selbst für diejenigen, welche die Theorie von der Doppelkernigkeit der Protozoenzelle angenommen haben, liegt darin kein Grund, in der so ausgestatteten Zelle einen Organismus von höherem Typus zu erblicken. Denn wie vor allem Goldschmidt ausgeführt hat, lassen sich entsprechende Tatsachen und Deutungen auch für die Metazoenzelle anführen.
Dagegen ist vielfach, so vor allem von Whitman und Gurwitsch, auf die Komplikation in Bau und Leistungen der Protozoen hingewiesen worden, um sie als organische Individuen höherer Art gegenüber der Zelle als dem Elementarorganismus zu charakterisieren. Gurwitsch hat ganz mit Recht hervorgehoben, daß wir einen Unterschied [S. 247]zwischen den einfachen Rhizopoden und den kompliziert gebauten Mastigophoren und Infusorien machen müssen. Während erstere, soweit wir die Lebenserscheinungen an ihnen bisher überblicken können, wohl als einzellige Wesen im Sinn von Elementarorganismen aufgefaßt werden können, zeigt ein kompliziertes Infusor dagegen, z. B. Stentor oder Stylonychia, dieselbe Unabhängigkeit der den Körper aufbauenden Elemente und ihrer Funktionen, wie wir sie sonst nur bei vielzelligen Organismen zu beobachten gewohnt sind. Wenn wir daher nach morphologischen Gesichtspunkten die von uns als höhere Formen gekennzeichneten Protozoen nach wie vor als einzellige Wesen betrachten, so dürfen wir dabei nicht aus dem Auge verlieren, daß wir sie biologisch nicht als Elementarorganismen bezeichnen können. Nur indem wir die Stufenleiter von „Elementarorganismen“ zu solchen zusammengesetzten Organismen innerhalb des Protozoenstammes ins Auge fassen, bezeichnen wir auch diese höchsten Formen als einzellige Tiere.
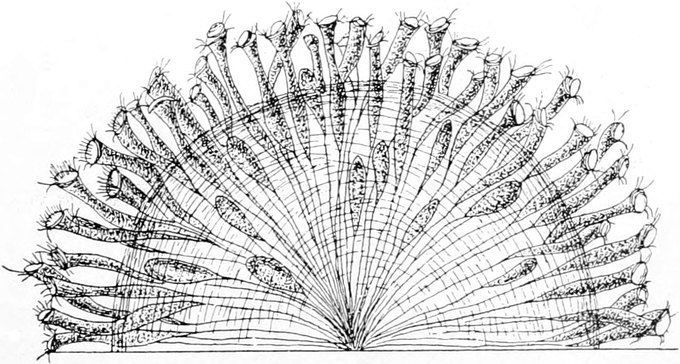
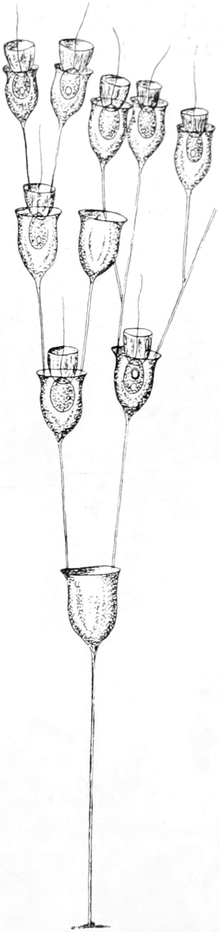
Und damit kommen wir zu dem dritten der oben bezeichneten Punkte. Nicht nur durch höhere Organisation der Einzelzelle, sondern auch durch Vereinigung von einzelligen Individuen zu einem Zellstock, zu einem Individuum höherer Ordnung sehen wir innerhalb des Protozoenstammes eine Vervollkommnung sich anbahnen.
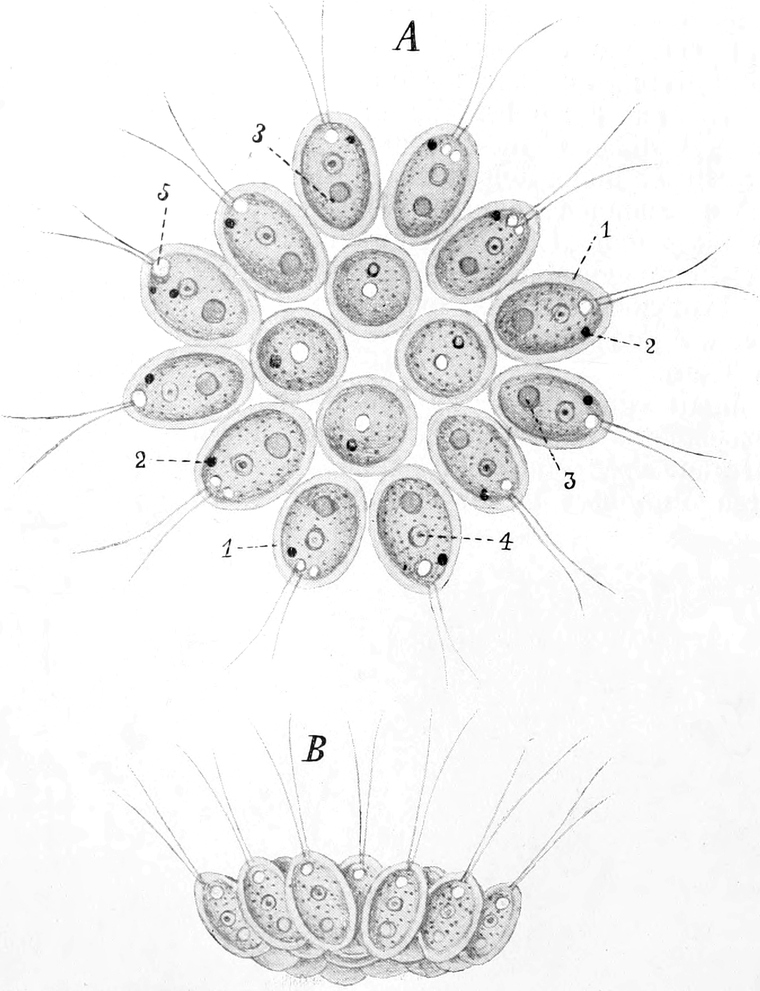
In allen Gruppen des Protozoenstammes kommt es zur Koloniebildung, indem die einzelligen Individuen sich nach der Teilung nicht voneinander trennen, sondern in einem mehr oder minder engen Konsortialverhältnis miteinander vereinigt bleiben. Diese gewöhnlichen [S. 248]Protozoenkolonien enthalten lauter gleichgeordnete Individuen, welche untereinander nur in einem sehr lockeren Zusammenhang stehen. Vielfach sind es nur die leblosen Teile des Körpers, Gehäuse, Stiele, Gallertmassen, durch welche sie miteinander verbunden sind. (So ist ein ganz unmerklicher Uebergang vermittelt zu den gesellschaftlich lebenden Formen, welche vielfach ähnlich wie Kolonien wachsen, indem jeweils ein frisch aus einer Teilung hervorgehender Sprößling das Gehäuse verläßt, in welchem das Schwestertier zurückbleibt, während er sich sofort auf der Außenfläche des Gehäuses ansetzt [Cothurnia socialis, Polioeca, Fig. 252, Bicosoeca, Dinobryon].) Die Kolonien pflegen sich auf Unterlagen krustenartig zu verbreiten oder sie wachsen bäumchenartig über die Unterlage in die Höhe. Bei freischwimmenden Protozoen kommt es bisweilen zur Ausbildung von kugeligen oder unregelmäßig geformten klumpenartigen Kolonien. Stets sind mit der Koloniebildung gewisse biologische Vorteile für die Tiere verbunden: jedes Individuum hat Nutzen von der Arbeit der Bewegungsorgane sämtlicher Koloniegenossen, indem Sauerstoffaufnahme, [S. 249]Nahrungserwerb und eventuell Ortsveränderung ermöglicht resp. erleichtert wird. Aber in allen ihren Funktionen sind die Einzelindividuen noch vollkommen unabhängig voneinander.
Demgegenüber bedeuten diejenigen Protozoenkolonien, welche ich als Zellstöcke oder Kolonialindividuen unterscheiden möchte, einen wesentlichen Fortschritt. Schon bei manchen der gewöhnlichen Kolonien sehen wir bei den Reaktionen der vereinigten Individuen eine Gemeinschaftlichkeit sich äußern. Die Kolonien mancher Vorticelliden z. B. reagieren als Ganzes auf Reize, welche nur ein einzelnes Individuum treffen. Wird ein Individuum von Carchesium polypinum berührt, so zieht sich die ganze, oft zentimetergroße, aus Hunderten von Individuen bestehende Kolonie zusammen. Das ist bedingt durch den Zusammenhang, in welchem sämtliche Individuen durch ihren Stielfäden stehen.
Bei den typischen Zellstöcken oder Kolonialindividuen tritt uns dagegen die ganze Vereinigung von Zellen wie ein einheitliches Individuum, ein Tier entgegen und nur die unmerklichen Uebergänge, durch welche die höchststehenden unter ihnen mit gewöhnlichen Kolonien verbunden sind, können uns verhindern, Formen, wie z. B. Volvox, ohne weiteres zu den Metazoen zu rechnen. Nicht nur, daß in Wachstumserscheinungen, Reizreaktionen etc. die zahlreichen Zellen des Volvox als fest vereinigte Einheit funktionieren, wir erkennen sogar eine Differenzierung in somatische Zellen und in Keimzellen; letztere haben ausschließlich (mit oder ohne Befruchtung) für die Fortpflanzung zu sorgen, während erstere zugrunde gehen. Und wie aus Fig. 223, S. 222 hervorgeht, sind die somatischen Zellen alle ganz klein, während die Fortpflanzungszellen eine bedeutendere Größe erreichen.
[S. 250]
Innerhalb der Reihe der Volvocaceen sehen wir die Differenzierung fortschreiten von Arten, deren Individuen aus Haufen gleichartiger Zellen gebildet werden (Spondylomorum, Fig. 254), zu solchen mit individuell geschlossener Körperform (Stephanosphaera, Gonium, Pandorina, Eudorina), ja zu solchen, bei welchen eine Differenzierung der Körperenden, eine eigenartige individuelle Form des Zellstocks resultiert (Platydorina, Fig. 255). Und schließlich gelangen wir zu Formen, bei denen die Verschiedenheit von Keimzellen und Soma durchgeführt ist: bei Pleodorina (Fig. 256) sind fast alle Zellen noch fortpflanzungsfähig, nur 4 sind somatisch, bei Volvox steht einer sehr großen Anzahl von somatischen Zellen (bis zu 22000) eine kleine Anzahl von Keimzellen gegenüber.
Theoretisches über die Vermehrung und Befruchtung bei den Protozoen.
Wir haben bei einer großen Anzahl von Protozoen aus allen Abteilungen dieses Tierstammes die Tatsache kennen gelernt, daß die [S. 251]Individuen sich längere Zeit durch Teilungen fortpflanzen können, daß sich aber stets nach Ablauf eines gewissen Zeitraums Befruchtungserscheinungen zwischen die Teilungen einschieben. Aus diesem regelmäßigen Wechsel hat man auf eine Notwendigkeit geschlossen und dieselbe in Analogie gesetzt zur Neuentstehung des Metazoenindividuums durch die auf die Befruchtung des Eies folgende Entwicklung.
Und zwar zog man zur Erklärung wesentlich teleologische Gedankengänge heran. Weismann hatte zuerst die bestechende und sehr interessante Theorie der (potentiellen) Unsterblichkeit der Einzelligen formuliert. Durch die Teilung der Protozoen-Individuen wird die Substanz derselben in ihrer Gesamtheit auf Nachkommen verteilt, welche eine Kontinuität des Lebens gewährleisten. Kein natürlicher Tod endet das Leben eines Individuums, in seiner Substanz lebt es weiter, wenn auch als erneute Individualität. Seit unendlichen Zeiten vollzieht sich ohne Unterbrechung dieser Vorgang, und er wird in Zukunft fortgesetzt, bis Krankheiten, Katastrophen, räuberische Feinde etc. der Fortpflanzung ein Ziel setzen.
So unterscheiden sich nach Weismanns Ansicht die Protozoen von den Metazoen, deren Keimzelle bei der Entwicklung einen vergänglichen Leib sich erbaut, in welchem sie selbst den Protozoen ähnlich für die Keimzellensubstanz (das Keimplasma), eine Kontinuität durchführt. Auch das Keimplasma ist potentiell unsterblich, während das Soma dem natürlichen Tod geweiht ist. Und dieser natürliche Tod des Leibes der Metazoen ist nach Weismanns Ansicht „eine Zweckmäßigkeitseinrichtung, eine Konzession an die äußeren Lebensbedingungen, keine absolute im Wesen des Lebens selbst begründete [S. 252]Notwendigkeit“. Er ist eine Neuerwerbung bei den Metazoen, welche an keine Erscheinung in den Lebensvorgängen bei den Protozoen anknüpft.
Diese geistvolle Theorie Weismanns fand beim genaueren Studium der Tatsachen von vielen Seiten Widerspruch. Unzweifelhaft richtig ist jedenfalls seine Gegenüberstellung der potentiell unsterblichen Keimzellen und des sterblichen Körpers bei den Metazoen. Es ist aber seither vielfach angegeben worden, daß bei den Protozoen sich analoge Vorgänge fänden, daß Altern und natürlicher Tod auch bei ihnen normale Erscheinungen seien. Und zwar haben sich diese Annahmen ergeben im Zusammenhang mit den Forschungen über die Befruchtungsvorgänge bei den Protozoen.
Während nämlich auf Grund der Weismannschen Anschauung die Befruchtung bei den Protozoen als eine nützliche Einrichtung betrachtet wird, um die Amphimixis, d. h. die Vermischung der Eigenschaften zweier Individuen zu ermöglichen, ist sie auf Grund der Anschauungen von Bütschli, Maupas, R. Hertwig als eine Notwendigkeit zu betrachten, berufen, den Eintritt des natürlichen Todes zu verhüten. Maupas hat zuerst verschiedene Infusorienformen viele Generationen lang gezüchtet; später ist dies dann auch von R. Hertwig, von Joukowsky, Kasanzeff, Calkins, Popoff u. a. ausgeführt worden. Dadurch, daß immer wieder einzelne Individuen isoliert und weitergezüchtet wurden, konnten Zuchten von ca. 450–860 Generationen in fast 2 Jahren kontinuierlichen Züchtens erzielt werden (Calkins). Maupas kam schon zu dem Ergebnis, daß nach einer längeren Reihe von Generationen erst die „Konjugationsreife“ eintritt.
Bütschli hat zuerst in klarer Weise die Ansicht ausgesprochen, daß durch die Lebensvorgänge eine Abnützung, ein Altern der Protozoenindividuen erfolge; der Befruchtungsprozeß bedeute eine Reorganisation, eine Verjüngung der gealterten Zelle. Speziell an Ciliaten hatte man beobachtet, daß nach Ablauf einer längeren Teilungsepoche „die Energie der Lebensäußerungen entschieden sinkt“, daß jedoch durch die eintretende Konjugation „sowohl die Funktionen der Assimilation, wie die des Wachstums und der Teilung wieder gesteigert werden“. Man dachte zunächst für die theoretische Erklärung der Erscheinungen an das Verbrauchtwerden und den Wiederersatz eines bestimmten, zum Ablauf der Lebensvorgänge notwendigen Stoffes.
Degenerative Erscheinungen ließen sich vielfach bei lange gezüchteten Kulturen nachweisen. So ist z. B. das Wimperkleid der Infusorien einer „Abnützung“ unterworfen; bei Stentor, Stylonychia usw. werden Teile des Wimperkleides, z. B. die adorale Spirale, periodisch abgeworfen und erneuert. In sehr alten Kulturen stellen sich Verkrüppelungen der ganzen Tiere und ihres Wimperapparates ein. Auch die Kerne verändern sich; meist wachsen die Hauptkerne sehr stark und zeigen eine Tendenz zum Zerfall. Solche Degenerationserscheinungen wurden als Anzeichen des „Alters“ betrachtet, und da „senile“ Individuen durch den Eintritt der Befruchtung vor dem Tod bewahrt werden und in vielen Fällen eine erhöhte Lebensenergie und Teilungsfähigkeit gewinnen, so wurde der Befruchtungsprozeß als Verjüngungsprozeß bezeichnet; dabei dachte man zunächst vor allem an die Neubelebung der Fortpflanzungsfähigkeit.
[S. 253]
Aber bei Versuchen von R. Hertwig an Infusorien (Paramaecium) stellte sich heraus, daß, wenn man Konjugationspaare trennt, ehe die Befruchtung eingetreten ist, die entkonjugierten Individuen sich sehr rasch und kräftig vermehren, während Individuen nach dem normalen Ablauf der Befruchtung und nach der natürlichen Trennung eine erhebliche Verlangsamung der Teilungsschritte erkennen lassen. Derselbe Autor wies ferner darauf hin, daß bei vielen Rhizopoden und Flagellaten auf die Befruchtung eine Cystenruhe folgt mit temporär gänzlich unterdrückter Teilung, so daß die Fälle eigentlicher „geschlechtlicher Fortpflanzung“ bei den Protozoen relativ wenig verbreitet sind (Sporozoen, Flagellaten etc. mit speziellen metagamen Teilungen).
So haben wir den Vorgang bei der Befruchtung nicht als eine Verjüngung mit spezieller Beziehung auf die Auffrischung der Fortpflanzungsfähigkeit zu betrachten, wohl aber jedenfalls als einen Reorganisationsvorgang der Zelle.
Was ist es aber, was reorganisiert wird? Offenbar gehen besonders intensive Vorgänge am Kernapparat vor sich. R. Hertwig ist denn auch durch vielerlei Tatsachen dazu geführt worden, im Befruchtungsvorgang eine Regulierung des durch den Lebensprozeß veränderten Massenverhältnisses von Kern und Protoplasma zu erblicken. Die Kernplasmarelation ist es, welche wiederhergestellt werden muß.
Kern und Protoplasma stehen nach seiner Ansicht in einem bestimmten Massenverhältnis zueinander; dasselbe ändert sich bei der Funktion der Zelle, indem das Plasma von Teilung zu Teilung durch Assimilation auf das Doppelte heranwächst, während das gleichzeitige Wachstum des Kerns („funktionelles Kernwachstum“) hinter dem Plasmawachstum zurückbleibt. Diese Störung der Kernplasmarelation wird in der Regel bei der gewöhnlichen Zellteilung ausgeglichen.
Daß die Teilung nicht eine einfache Folgeerscheinung des Wachstums über die individuelle Größe hinaus ist, wie man früher annahm, beweisen schon solche Fälle, in denen ein Protozoon sich zu Tode teilt, wie z. B. Spirochona gemmipara, welche manchmal bei fortgesetzter Knospung nur einen absterbenden Rest an der Stelle, wo sie festgewachsen ist, zurückläßt. Noch klarer zeigen dies die meisten Fälle von multipler Teilung, die Schwärmer- und Gametenbildung etc.
Nach R. Hertwig wird die Teilung vielmehr folgendermaßen bedingt: In der Zwischenzeit zwischen zwei Teilungen wächst der Kern (z. B. bei Infusorien) langsamer als das Plasma. Das hieraus resultierende Mißverhältnis zwischen Kern und Plasma (gegenüber der normalen Kernplasmarelation) führt zum Zustand der Kernplasmaspannung. Dieser abnorme Zustand wird ausgeglichen durch ein plötzliches Kernwachstum, welches im Gegensatz zum funktionellen Wachstum als das Teilungswachstum des Kerns bezeichnet wird.
Dabei wächst der Kern auf das Doppelte seiner vorherigen Größe an, wodurch das normale Verhältnis wieder hergestellt wird. Dieses wird durch den definitiven Vorgang der Teilung von Kern und Zelle nicht alteriert.
Da der Kern aber nicht ganz exakt zerteilt wird und noch dazu seine Masse durch funktionelles Wachstum bei fortwährendem Funktionieren der Zelle zunimmt, so entsteht allmählich bei fortgesetzter Kultur eine solche Störung der Kernplasmarelation, daß die Teilung [S. 254]immer mehr erschwert und schließlich unmöglich gemacht wird. Es tritt in dem Protozoenorganismus ein Zustand ein, welcher nach dem Vorschlag von Calkins als Depression bezeichnet wird.
Die Depression ist charakterisiert durch alle jene Kennzeichen, welche wir oben als sogen. Alterserscheinungen der Protozoenzelle anführten. Es sind infolge des übermäßigen Anwachsens des Kerns alle Funktionen der Zelle zum Stillstand gekommen.
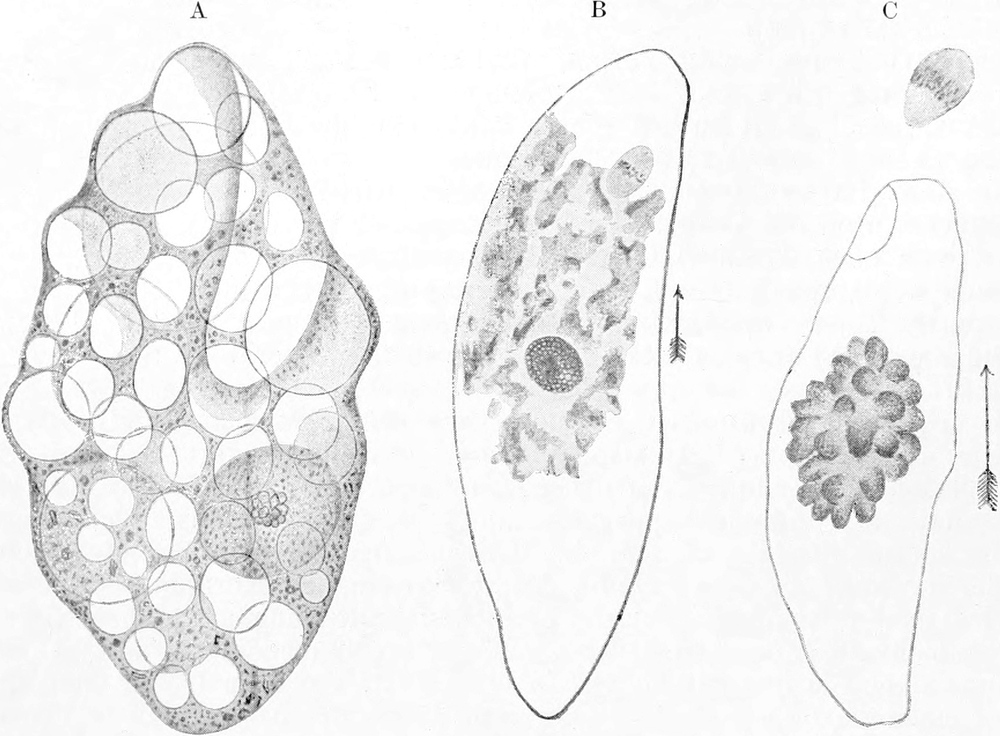
Die Depression kann durch mancherlei Einflüsse beschleunigt oder beseitigt werden. Hunger, Ueberernährung, Temperaturänderungen usw. befördern den Eintritt der Depression. Durch Hunger wird das Wachstum des Kerns ganz enorm befördert, wie Joukowsky, Kasanzeff, Wallengren u. a. gezeigt haben. Hungernde Infusorien zeigen sehr verringerte Körpergröße (Pleurotricha lanceolata z. B. nach Joukowsky normal 200 µ, hungernd 30 µ, ja selbst 15 µ). Das Entoplasma und Ektoplasma werden verringert, weniger dicht im Bau und büßen Bestandteile ein; es tritt eine mächtige Vakuolisierung ein. Und vor allem der Kern zeigt ein oft kolossal hypertrophisches Wachstum (bei Paramaecium bildet sich bei längerem Hungern ein eigenartiger Binnenkörper im Hauptkern). Schließlich kann das Protoplasma nur mehr einen dünnen Mantel um den Kern bilden. Da auch die Cilien leiden, so ist auch die Bewegungsfähigkeit hungernder Infusorien stark herabgesetzt. Kurz, es tritt infolge von Hunger in sehr hohem Grade jene [S. 255]Desorganisation der Zelle ein, welche für die Depression charakteristisch ist.
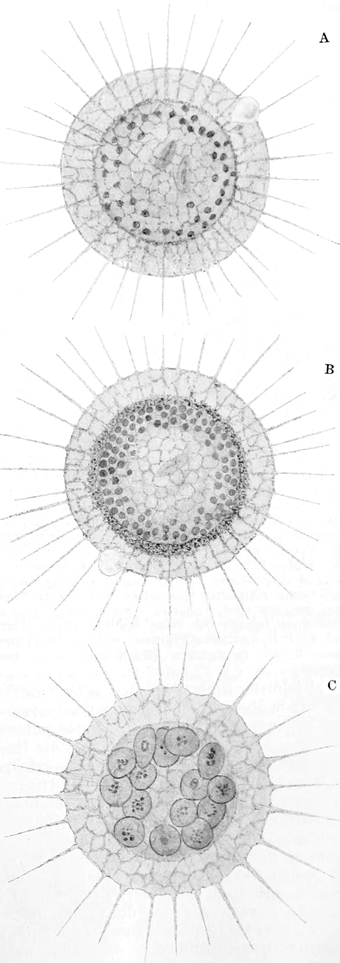
Aehnliches erfolgt bei Ueberfütterung. So konnte Hertwig bei Actinosphaerium zeigen, daß bei längerer Kultur bei Ueberfluß von Nahrung die Tiere in einen Depressionszustand gerieten, wobei die Kerne riesenhaft groß wurden (Fig. 259 C). Solche Kerne geben ihr Chromatin an das Protoplasma ab, dasselbe wird ausgestoßen und die kernlos gewordenen Tiere gehen zugrunde.
Besonders befördernd auf den Eintritt der Depression ist plötzlicher Wechsel der Existenzbedingungen, plötzliche Temperaturänderungen, rascher Wechsel von Hunger zu Ueberfütterung und umgekehrt.
Depressionen können zum Tod der Protozoen führen, wenn die Zellen nicht eine Selbstregulation durchzuführen vermögen. Eine solche [S. 256]wird befördert durch Aenderung der Ernährungsweise, mechanische Erschütterung, Temperaturänderungen usw.
Die Regulation besteht in Abstoßung von Protoplasmateilen oder von Kernbestandteilen. Durch Operation kann man sie auch künstlich herbeiführen. Am deutlichsten ist sie erkennbar an Kernveränderungen; bei Infusorien wird der Hauptkern oft gelappt, Teile werden von ihm abgeschnürt und vom Plasma resorbiert. Bei anderen Formen, z. B. bei dem vielkernigen Actinosphaerium, treten Kernsubstanzen aus den Kernen ins Protoplasma über, und es werden außerdem ganze Kerne aufgelöst und in Chromidien umgewandelt; letztere werden im Plasma in bräunliches Pigment verwandelt und schließlich ausgestoßen. In manchen Fällen lösen die in Depression befindlichen Actinosphärien allerdings ihre sämtlichen Kerne auf, werden zu Chromidialtieren (vgl. Fig. 237 A, S. 238) und gehen dennoch zugrunde. Solche Individuen jedoch, bei denen die Vermehrung der Kernsubstanz zur Bildung sehr zahlreicher kleiner Kerne geführt hat (Fig. 259 B), bleiben am Leben und sind zu energischen Lebensäußerungen befähigt.
In der freien Natur scheinen die extremen Depressionszustände und die daraus resultierenden Regulationserscheinungen, sowie die Degenerationen, welche zum Tod führen, zu den Ausnahmen zu gehören, während sie bei den in Kultur gehaltenen Protozoen infolge der Ueberernährung oder anderer ungünstiger Bedingungen häufig sind.
Das gilt wenigstens für freilebende Formen; bei parasitischen Protozoen, welche ja meist in einem Ueberfluß von Nahrung leben, kommen scheinbar Depressionszustände und damit zusammenhängende Zelldegenerationen häufiger vor. Von den meisten Untersuchern solcher Formen sind Fälle pathologischer Entwicklung und von Degeneration beschrieben worden. So hat z. B. Schaudinn bei Cyclospora caryolytica Makrogameten beschrieben, deren Reduktionskerne sich vermehren, ohne daß der Gametenkern befruchtet worden wäre, worauf unter Pigmentbildung eine anormale Entwicklung eintritt und die Makrogameten zugrunde gehen (Fig. 260), ohne Sporen gebildet zu haben.
Wahrscheinlich sind die sog. Rossschen Körper ebenfalls hier heranzuziehen. Es sind das Körper von wechselnder Form und Größe, welche am Darm von mit Proteosoma infizierten Culexarten oder von Anophelesarten, welche mit Plasmodiumarten behaftet sind, auftreten. Sie entstehen aus den Zygoten, indem dieselben oder Teile ihres Inhalts von einer braunen Masse umhüllt werden; in manchen Fällen sind es halb entleerte Zygoten, welche die Mehrzahl ihrer Sporozoiten schon entlassen haben, in anderen Fällen sind es im Lauf der Entwicklung degenerierte Zygoten.
Vielmehr scheint bei den unter natürlichen Verhältnissen lebenden Protozoen Depression meist in mäßigerem Grade aufzutreten und dann durch gewisse normal stets wiederkehrende Maßregeln reguliert zu werden. Eine dieser Maßregeln ist die Encystierung, bei welcher Kern und Protoplasma Ausgleichungen erfahren. Die wichtigste dieser Maßregeln ist aber die Befruchtung.
So hängt die Lehre von der Kernplasmarelation mit der Theorie der Befruchtung zusammen. Der physiologische Tod ist eine notwendige Folge der Lebenserscheinungen, er ist bedingt durch die Störung der Kernplasmarelation. Die Kontinuität des Lebens kann nur durch die Befruchtung dauernd gesichert werden. Die Protozoen, welche periodisch normalerweise in die Gefahr des natürlichen Todes geraten, werden vor ihm durch die Befruchtung gerettet.
R. Hertwigs Ideengang ist der folgende: In Kulturen gehaltene „Actinosphärien und alle daraufhin untersuchten Infusorien (Paramaecium, Dileptus, Oxytricha, Frontonia) zeigen Perioden, in denen [S. 257]sie stark fressen und entsprechend stark wachsen und sich vermehren. Mit den Futter- und Vermehrungsperioden alternieren Zeiten, in welchen Nahrungsaufnahme und Vermehrung vollkommen pausieren.“ Diese Depressionszustände sind zunächst leicht und können durch einfache Maßregeln (z. B. Auflösung von Kernteilen) geheilt werden, sie werden immer schwerer und können schließlich, wenn der Tod nicht eintreten soll, nur durch eine eingreifende Umwälzung des Kernapparates reguliert werden. Eine solche erfolgt bei der Konjugation. In tiefer Depression befindliche Infusorien sind daher konjugationsbedürftige Tiere. Aus der Konjugation gehen sie nach einer vollkommenen Umwälzung des Kernapparates als Individuen mit normaler Kernplasmarelation hervor: wiederum fähig zu einer langen Serie von Teilungen und zu allen Funktionen des Zelllebens.
Ganz ähnlich wie bei den Infusorien sind die Vorgänge bei den anderen Protozoen zu deuten.
Diese Lehre Hertwigs hat sich als heuristische Hypothese sehr bewährt und zu einer Anzahl wertvoller Untersuchungen geführt. Doch ist sie nicht unbestritten geblieben, und erst die Zukunft wird lehren, ob sie wirklich geeignet ist, uns tiefere Einblicke in den Zusammenhang der Lebenserscheinungen zu verschaffen.
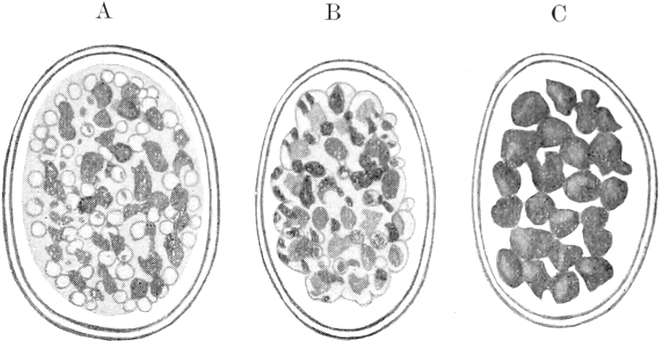
Von ganz anderen Gesichtspunkten ausgehend, hat Schaudinn versucht, eine Theorie der Befruchtung zu formulieren. Er basierte seine Anschauungen vorwiegend auf den morphologischen Befunden, während R. Hertwig in den physiologischen Vorgängen die wichtigste Stütze seiner Theorie findet. Für Schaudinn bieten seine oben (S. 245) erörterten Ansichten über den Kerndualismus der Protozoenzelle den natürlichen Ausgangspunkt seiner Schlußfolgerungen. Während bei den meisten untersuchten Formen sich nach seiner Anschauung ein Dualismus von somatischen und generativen Kernbestandteilen resp. Kernen findet, bringen die Kernverhältnisse der Trypanosomen eine weitere Komplikation. Nach Schaudinn stellt ja der Blepharoplast der Trypanosomen einen besonderen Kern dar. Die zweikernige Trypanosomenzelle enthält aber nicht einen somatischen und einen generativen Kern, sondern beide Kerne enthalten vielmehr beide Bestandteile gemischt; „in der Trypanosomenzelle ist ein doppelter Kerndimorphismus verwirklicht“. Beide Kerne enthalten aber die sie zusammensetzenden Substanzen in verschiedener [S. 258]Proportion. Der Hauptkern enthält vorwiegend vegetativ wirksame Bestandteile, der Blepharoplast vorwiegend animalisch wirksame Bestandteile.
Nun sehen wir aber, daß bei den Trypanosomen verschiedene Typen von Individuen auftreten; große, an Reservesubstanzen reiche, mit gering entwickeltem Bewegungsapparat ausgerüstete Individuen und kleine Individuen, welche arm an Plasma sind, dagegen einen enorm vergrößerten Bewegungsapparat besitzen. Und außerdem gibt es Individuen mit mittleren Eigenschaften. Während letztere auch im Kernbau die Mitte halten, haben die großen Individuen einen großen Kern und kleinen Blepharoplasten, die kleinen einen kleinen Kern und großen Blepharoplasten.
Die großen Individuen zeigen also ein Ueberwiegen der vegetativen Funktionen, die kleinen ein Ueberwiegen der animalen Funktionen; der erstere Typus entspricht nach allen Analogien der belebten Natur einer weiblichen Zelle, der letztere einer männlichen Zelle, während der mittlere Typus als indifferente Form zu bezeichnen ist.
Beide extreme Typen sind nun weiblich resp. männlich nicht auf Grund einer vollkommen gegensätzlichen Organisation, sondern sie unterscheiden sich von den indifferenten Formen, indem im einen Fall (bei dem weiblichen Trypanosoma) der weibliche Anteil der Organisation auf Kosten des männlichen die Oberhand gewinnt, während bei dem männlichen das Umgekehrte der Fall ist. Jedes Individuum ist also im Grunde genommen zwittrig.
Und aus dem Verhalten bei den Befruchtungserscheinungen schließt nun Schaudinn, daß dasselbe für die beiden Kerne der Trypanosomen gilt; beide sind im Grunde wiederum zwittrig, aber der Blepharoplast weist vorwiegend männliche, der große Kern vorwiegend weibliche Eigenschaften auf. Dem entspricht auch ihre jeweilige Ausbildung bei männlichen und weiblichen Individuen.
Bei den sehr komplizierten Befruchtungsvorgängen der Trypanosomen gleichen sich die großen Differenzen der Kerne aus[19].
Hier berühren sich nun die Theorien Hertwigs und Schaudinns. Auch für Schaudinn ist die Befruchtung eine notwendige Erscheinung, „ein für das Leben des Organismus nicht zu entbehrender Prozeß. Die innere Differenz der Kerne, und damit der ganzen Zellorganisation, die durch die äußeren Lebensbedingungen und durch die in den Organismen selbst gelegenen Unvollkommenheiten während des vegetativen Lebens nach den beiden Extremen der überwiegend vegetativen, weiblichen und der überwiegend animalischen, männlichen Formen führt, bewirkt eine Hemmung der Vermehrungsfähigkeit der Zelle; der Organismus würde zugrunde gehen, wenn nicht die Möglichkeit eines Ausgleichs der physiologischen Einseitigkeiten bestünde. Diesen Ausgleich der Extreme, die Schaffung wieder vermehrungsfähiger, indifferenter Formen, bei denen die vegetativen und animalischen Funktionen sich noch die Wage halten, bewirkt die Befruchtung“ (Schaudinn).
[S. 259]
Ich habe diese Theorie Schaudinns ausführlich dargelegt, da auch sie mir als heuristische Hypothese eine große Bedeutung zu haben scheint. Mehr noch als Hertwigs Theorie ist sie auf eine relativ geringe Anzahl von Tatsachen aufgebaut, welche noch dazu nicht genügend nachgeprüft und fest begründet sind, wie Schaudinn selbst hervorhob[20]. In ihrer logischen Durcharbeitung bietet sie uns aber ein Gleichnis des Naturgeschehens, welches uns eine der möglichen Deutungen in ihren Konsequenzen darstellt.
Beide Theorien zeigen uns insofern kausale Zusammenhänge, als sie verständlich machen, daß Zellen infolge von Veränderungen bei normalem Lebenslauf unfähig zu weiterer Fortpflanzung und zu weiterem Funktionieren werden müssen. Sie erklären auch, inwiefern durch die Befruchtung die zum Weiterleben geeignete Zellkonstitution wiederhergestellt wird. Nun aber zeigen beide Theorien eine Lücke, indem sie mit einer teleologischen Folgerung schließen: die funktionsunfähigen Zellen sind befruchtungsbedürftig, und daher tritt die Befruchtung ein.
Durch Vereinigung der Hauptpunkte beider Theorien mit Gedankengängen, welche vor Jahren Bütschli (angeregt durch Gespräche mit Askenasy) entwickelt hat, ist nach meiner Meinung eine dritte Theorie zu entwickeln, welche die Erscheinungen der Zellteilung und Befruchtung der Analyse erschließt.
Ich kann diese Theorie an dieser Stelle nur in ihren Umrissen andeuten. Alle lebenden Zellen bestehen hauptsächlich aus zwei Gruppen von lebenswichtigen Substanzen, von denen die eine von leichtflüssiger Konsistenz hauptsächlich die Bewegungserscheinungen (bei Zell- und Kernteilung, wie bei Lokomotion) vermittelt, während die andere Gruppe, aus zähflüssigen oder festen Substanzen bestehend, das Betriebsmaterial für die Leistungen der Zelle liefert.
Da nun bei den Teilungen der Zellen nie eine mathematisch genaue Verteilung der Substanzen auf beide Deszendenten erfolgen wird, so wird bei fortgesetzter Teilung eine Häufung der Ungleichheiten sich herausstellen. So würden mit der Zeit Individuen entstehen, welche gegensätzlich ausgebildet wären, indem die einen reicher an Reservesubstanz (weiblich), die anderen reicher an Bewegungssubstanz (männlich) wären. Bütschli dachte an größeren Reichtum für erstere an Chromatin, für letztere an Kerngerüstsubstanz. Vielleicht abstrahieren wir aber besser von morphologisch definierten Zellbestandteilen und nehmen nur an, daß jeder der beiden Typen von Zellen, die eine der Substanzgruppen angereichert enthält, deren Mischung die Lebenserscheinungen ermöglicht. So wäre zunächst (ähnlich wie durch die Schaudinnsche Theorie) erklärt, wie es kommt, daß sich normalerweise stets Männchen und Weibchen in annähernd gleichem Zahlenverhältnis finden. Wenn in der Zellteilung schon die Ursache ihrer Entstehung gegeben ist, so müssen aus einem indifferenten Protozoon annähernd so viel männliche und weibliche Individuen hervorgehen, als Zellteilungen erfolgen. Auch wird verständlich, warum erst nach Ablauf von mehreren oder zahlreichen Zellteilungen die Differenzierung sich bemerkbar macht.
[S. 260]
Ferner wäre aber ein Weg zum kausalen Verständnis des Zustandekommens der Befruchtung gegeben. Indem die beiden Sorten von Gameten Substanzen in sich aufgehäuft enthalten, welche chemisch miteinander intensiv reagieren, werden sie eine Anziehung aufeinander ausüben, welche auf Grund physikalisch-chemischer Gesetze zu verstehen ist. Die gleiche chemische Differenz, welche die Formverschiedenheit bedingt, würde auch die Ursache der Vereinigung der Gameten im Befruchtungsakt darstellen.
Das alles sind natürlich Theorien, deren Basis zum Teil nicht einmal sehr fest begründet ist. Gerade in den letzten Jahren hat die durch diese Theorien angeregte und geförderte Forschung viele Tatsachen festgestellt, welche ihnen nicht günstig sind.
So ist vor allem das Vorkommen von Depressionszuständen überhaupt bezweifelt worden, und es liegen sehr interessante Ergebnisse von Züchtungsversuchen vor, welche geeignet sind, Weismanns Unsterblichkeitshypothese von neuem zu stützen. Calkins, Woodruff, Enriquez, Jennings u. a. haben verschiedene Infusorienarten monatelang gezüchtet, ohne daß Depression oder Konjugation eingetreten wäre. Neuerdings ist es sogar Woodruff gelungen, 2000 Generationen von Paramaecium aurelia in ca. 3½ Jahren (41 Monaten) zu züchten, wobei er Depression und Konjugation durch die einfache Maßregel verhütete, daß er die Infusion abwechselnd aus verschiedenen Substanzen herstellte. Die sogenannten Depressionszustände wären nach diesen neueren Untersuchungen zum Teil, soweit sie leichterer Natur sind, normalerweise vorkommende, periodisch wiederkehrende Zeiten geringerer Teilungsintensität, soweit sie schwerer Natur sind, durch ungünstige Lebensbedingungen verursachte pathologische Zustände.
In den von Enriquez und Jennings untersuchten Fällen waren die Ursachen, welche die Konjugationsvorgänge auslösten, heterogener Art und nicht mit der Verjüngungs- oder Zellrekonstruktionshypothese in Einklang zu bringen; vorläufig läßt sich in den neu gefundenen Tatsachen noch keine allgemeine Gesetzmäßigkeit erkennen. Nach Jennings soll es bei Paramaecium caudatum verschiedene Rassen geben, welche sich in bezug auf die Konjugation sehr verschieden verhalten. Während manche dieser Rassen trotz jahrelanger Zucht überhaupt nicht konjugierten, sind andere alle 2–3 Wochen leicht zur Konjugation zu veranlassen. Die gleichen Maßregeln — Hunger, dann reichliches Futter, dann von neuem Hungern — welche bei den letzterwähnten Rassen ohne weiteres die Konjugation auslösen, sind bei anderen Rassen vollkommen wirkungslos.
Wie bei den leicht zur Konjugation zu bringenden Rassen von Paramaecium, so ist auch bei anderen Infusorien oft die Zahl der Generationen zwischen zwei Konjugationen auffallend gering. Nach Enriquez gehen sogar in manchen Fällen frisch entkonjugierte Tiere, ohne sich vorher geteilt zu haben, von neuem zur Konjugation über (bei Chilodon).
So ist denn vieles auf diesem Gebiet, was vor kurzem klare Zusammenhänge zu zeigen versprach, wieder ins Dunkel gerückt worden. Aber trotzdem erscheint es wahrscheinlich, daß wir hier in der nächsten Zeit tiefere Einblicke in das Wesen der Lebensvorgänge gewinnen.
[S. 261]
VII. Urzeugung, Artbegriff, Variation und Vererbung bei den Protozoen.
In den Anfängen der Protozoenforschung sah man in der Formenfülle dieser kleinen Organismen die Folge ihrer wechselnden, unbeständigen Konstitution. So wie man glaubte, daß eine Protozoenart leicht aus nicht organisierter Materie entstehen könne, so dachte man sich den Uebergang einer Art in die andere als ein täglich sich wiederholendes Ereignis; die kompliziertesten Formen sollten mit den einfachsten und andererseits auch mit höheren Tieren aufs engste zusammenhängen und in sie übergehen können. Im Laufe der Zeit hat man sich davon überzeugt, daß die Protozoen als Arten ebenso konstant sind, wie die höheren Organismen, und daß manche Arten heute genau noch ebenso aussehen, wie vor Tausenden von Jahren.
Diese Ueberzeugung wurde weniger aus der Untersuchung und Vergleichung rezenter und fossiler Protozoen gewonnen, als aus den Ergebnissen länger fortgesetzter Züchtung lebender Protozoen.
Schon Pasteurs Forschungen hatten gezeigt, daß die primitiven Anschauungen jener Zeit über die Urzeugung der Protozoen unrichtig waren. Die Tiere, welche in organischen Flüssigkeiten, in Infusionen, auftreten, sind nicht aus deren gelösten organischen Bestandteilen neu entstanden, sondern sie haben sich aus den überall mit dem Staub etc. verbreiteten Dauerzuständen, vor allem den Cysten entwickelt. Wenn die Flüssigkeiten durch Erhitzung oder andere Mittel keimfrei (steril) gemacht und so erhalten werden, daß keine Keime aus der Luft in sie gelangen können, dann entwickelt sich kein Leben in ihnen. Näheres über die Cystenbildung und die Entwicklung aus Cysten findet sich weiter unten im Kapitel über die Biologie der Protozoen. Die Idee einer fortgesetzten Urzeugung ist also aufgegeben worden, wenn auch an dem Postulat einer einstmals erfolgten Urzeugung meist festgehalten wird. Dabei wird angenommen, daß die ersten Lebewesen zwar den Protozoen nahe standen, daß sie aber jedenfalls niedriger organisiert waren, als die jetzt lebenden Protozoenarten, welche jeweils eine lange Geschichte hinter sich haben.
Wie für die anderen Organismen, so wird auch für die Protozoen vorausgesetzt, daß sie im Laufe dieser Geschichte Veränderungen erfahren, eine phylogenetische Geschichte durchgemacht haben. Ueber die Phylogenie der Protozoen gibt es mancherlei Vorstellungen, denen es aber vollkommen an realen Grundlagen fehlt. Vor allen Dingen bietet uns die Paläontologie wenig Anhaltspunkte für den Werdegang der rezenten Protozoenarten.
Es ist verständlich, daß wir nur von denjenigen Protozoen, welche Skelettgebilde aus fester Substanz ausscheiden, fossile Reste kennen. Solche Reste sind vor allem von Rhizopoden aus den Ordnungen der Foraminiferen und Radiolarien beschrieben worden.
Ganz außerordentlich reich ist die Formenfülle der fossilen Foraminiferen, welche schon in den ältesten Formationen auftreten; in diesen sind sie allerdings relativ spärlich nachgewiesen. Vom Karbon ab tritt uns aber eine Unmenge von Arten und Gattungen entgegen; sehr foraminiferenreiche Formationen sind ferner Jura, Kreide, Tertiär. Die fossilen Foraminiferen treten oft in gewaltigen [S. 262]Massen auf, so daß mächtige Kalksteinschichten zum größten Teil aus ihren Schalen zusammengesetzt sind.
Eine viel geringere Rolle spielen die fossilen Radiolarien, obwohl auch sie gesteinbildend auftreten, so in dem jungtertiären Tripelgestein von Caltanisetta in Sizilien. Wie bei den Foraminiferen, handelt es sich auch bei den Radiolarien teils um Ablagerungen aus Seichtwasser, teils um solche aus der Tiefsee.
Sonst sind nur wenige fossile Protozoenreste bekannt, welche auf Flagellaten (Coccolithophoriden, Silicoflagellaten), auf Infusorien (Tintinniden) und auf Heliozoen zurückzuführen sind.
Die fossilen Radiolarien und Foraminiferen gehören zum Teil zu Gattungen, welche rezent nicht mehr vorkommen und früher oder später ausgestorben sind. Andere Gattungen scheinen sich jedoch seit den ältesten Zeiten unverändert erhalten zu haben (Spirillina, Lagena).
Wir gewinnen jedoch aus dem Studium der fossilen Protozoenreste wenig Anhaltspunkte für die Ableitung der rezenten Formen in ihrer Gesamtheit. Zwar lassen sich für einzelne Gruppen besonders der Foraminiferen wohl geschlossene Stammreihen aufstellen, auch aus ihrer Betrachtung Andeutungen interessanter Gesetzmäßigkeiten erkennen, wie solche z. B. Rhumbler aufgezeigt hat, für die Ableitung der großen Gruppen der Protozoen sind wir aber gänzlich auf recht vage Hypothesen angewiesen.
Die Protozoen sind in demselben Sinn als Arten konstant, wie dies die höheren Tiere sind. Langdauernde Beobachtung und statistische Untersuchung zeigt jede Art als innerhalb gewisser Grenzen variabel. Untersuchen wir eine größere Anzahl Individuen der gleichen Protozoenart, so stellen wir fest, daß sie in gewissen Eigenschaften voneinander abweichen, daß sie variieren, so wie die höheren Organismen auch variieren. Messen wir z. B. die Hauptdimensionen des Infusors Paramaecium, so erhalten wir eine Variationsreihe, welche mit sehr großen Individuen (310 µ Länge) beginnt und mit sehr kleinen (42 µ Länge) endigt. Dabei stellt sich aber heraus, daß von den verschiedenen Größenkategorien sehr verschiedene Individuenzahlen vorkommen. Es sind von den Tieren mit den mittleren Maßen die meisten vorhanden, während besonders große und besonders kleine Individuen selten vorkommen. Es läßt sich also wie für andere Organismen auch für jede Protozoenart eine Galtonsche Variationskurve aufstellen. Und das gilt, wie für die Größenverhältnisse, für alle Eigenschaften, welche sich in Zahlen ausdrücken lassen.
Untersuchen wir aus der freien Natur stammende Individuen der gleichen Protozoenart, z. B. beliebige, aus der gleichen Gegend herrührende Exemplare von verschiedener Abstammung, also eine sogenannte Population, so wird es in den meisten Fällen sehr schwer sein, sich ein Urteil über die Ursachen der Variation zu bilden.
So finden wir z. B. bei dem Foraminifer Peneroplis pertusus gelegentlich unter den an einem Ort lebenden Exemplaren eine Menge von Individuen, welche in der Form der Schale von dem normalen Durchschnittstier stark abweichen. In Fig. 261 stellt C die Form dar, in welcher das Tier am häufigsten vorkommt, A, B und D sind Variationen, welche zum Teil so sehr vom Typus abweichen, daß man versucht sein könnte, sie als selbständige Arten zu bezeichnen, wenn [S. 263]man sie nicht durch kontinuierliche Uebergänge mit der typischen Form verbunden fände. Was diese Art veranlaßt, in dieser Weise gelegentlich zu variieren, ist vorläufig noch ganz rätselhaft.
Ebensowenig wissen wir über die Ursachen der großen Variabilität der Radiolarien, auf welche schon Haeckel nachdrücklich hingewiesen hatte, und welche neuerdings Haecker genauer zu untersuchen begonnen hat. Da kommen Variationen der Form, der Größe etc. besonders an den Skeletteilen vor, welche zum Teil wohl auf äußere Einflüsse zurückzuführen sind. Doch wissen wir über die gestaltenden Ursachen noch nichts Positives.
In manchen Fällen gelingt es nun, mit mehr oder weniger großer Klarheit zu zeigen, daß die Variation durch äußere Ursachen, durch die Lebensverhältnisse des Protozoons, bedingt ist. So hat neuerdings Wesenberg-Lund gezeigt, daß bei Ceratium hirundinella eigenartige Variationen in Umriß und Dimensionen im gleichen Süßwasserbecken vorkommen, welche eine deutliche Beziehung zu den Jahreszeiten zeigen. Aehnliche Variationen sind bei marinen Peridineen von Schütt, Schimper, Chun, Carsten beobachtet worden, und es ist bei denselben ersichtlich gewesen, daß gewisse Beziehungen zu Temperatur und Salzgehalt des Wassers vorliegen müssen. Andere mit den äußeren Bedingungen zusammenhängende Variationen sind im biologischen Teil erwähnt.
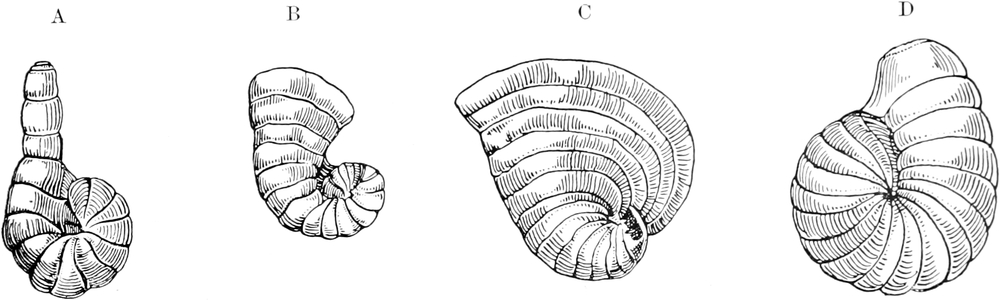
Man hat sich gewöhnt, solche Variationen als Standortsvarietäten zu bezeichnen, obwohl in den meisten Fällen der Einfluß der äußeren Lebensbedingungen nur vermutet wird, nicht erwiesen ist. Einige Fälle sind etwas genauer studiert worden: so haben Schaudinn und Doflein bei einigen Thalamophoren gefunden, daß durch Zusammensetzung des Mediums und durch die Art der Ernährung die Schale stark beeinflußt, eventuell ganz weggezüchtet werden kann (bei Calcituba, Trichosphaerium, Chlamydophrys, Pyxidicula).
Sehr deutlich ergab sich der Einfluß der äußeren Bedingungen bei Versuchen, welche Jennings an Paramäcien durchführte. Er konnte feststellen, daß die Art der Fütterung die Variationskurve der Tiere verschiebt. Nicht nur schwankten, je nach der Behandlung, die Mittelwerte für die Länge der Tiere zwischen 73 und 200 µ, für die Breite zwischen 16 und 84 µ, sondern es zeigte sich auch, daß der Betrag der Variabilität durch Wechsel in den Lebensbedingungen gesteigert, durch Konstanz jedoch vermindert wird.
[S. 264]
Die Unterschiede in Form und Organisation, welche unter verschiedenen Lebensbedingungen bei Protozoen auftreten, sind oft so bedeutend, daß sie den Gedanken nahelegen können, daß die Artgrenzen bei diesen niederen Organismen sich leichter verwischen als bei den höheren. Man konnte daran denken, durch geeignete Zucht eine Art in eine andere umzuwandeln.
Der nächstliegende Weg zu diesem Zweck schien durch die Selektionslehre gewiesen. So versuchte man denn durch konsequente Auslese extreme Formen zu züchten. Die Grundlage zu den Versuchen bildete eine genaue Untersuchung der Variabilität der gewählten Protozoenart Paramaecium caudatum. Dabei erhielt Jennings Resultate, welche sich aufs engste denjenigen anschließen, welche Johannsen bei höheren Pflanzen gewonnen hatte.
In einer Population von Paramäcien, also z. B. einem beliebigen aus der Freiheit gezüchteten Stamm, fanden sich Größendifferenzen der Individuen zwischen 310 und 45 µ. Diese Zahlen drücken nun aber, wie die Zuchtversuche ergeben, nicht die Grenzen aus, zwischen denen sich die Dimensionen der Nachkommen jedes Paramäcienindividuums der Stammkultur bewegen können. Nicht von jedem kann man ganz kleine oder ganz große Nachkommen erzielen. Die Kultur ist vielmehr ein Gemenge von einzelnen Rassen, deren jede ihre selbständige Variationskurve besitzt. Jennings wählte aus seiner Stammkultur einzelne Individuen heraus und züchtete deren Nachkommenschaft jeweils vollkommen isoliert. Durch lange fortgesetzte sorgfältige Zuchten gelang es ihm nun, acht Rassen oder reine Linien nachzuweisen, deren Variabilität so konstant war, daß ihr Mittelwert durch viele Generationen hindurch gleich blieb. Früher hatte schon Gruber bei Stentor und neuerdings Popoff solche konstant ihre Größe vererbende „Rassen“ bei Protozoen beobachtet.
In Fig. 262 sind die Maßverhältnisse der 8 von Jennings gezüchteten Rassen von Paramaecium angegeben. In jeder Rasse waren die Individuen wiederum variabel, wie das Fig. 263 für eine dieser Rassen angibt.
Wenn man die verschiedenen Rassen unter denselben Bedingungen züchtet, so bleibt bei allen der Mittelwert der Variationskurve konstant. Aendert man die Lebensbedingungen, so treten bei den verschiedenen [S. 265]Rassen korrespondierende, parallele Veränderungen ein. Die Rassen sind also sehr konstant, sie sind nicht durch das Auftreten von Standortsvarietäten vorgetäuscht, haben mit solchen zunächst gar nichts zu tun.
Die Variation in den einzelnen Rassen ist so erheblich, daß es Individuen mittlerer Größe gibt, denen man es gar nicht ansieht, welcher Rasse sie angehören. Nur die Zucht und die auf Grund vieler Nachkommen aufgestellte Variationskurve entscheidet, welcher Rasse ein solches Individuum entstammte. Die Uebersicht über die 8 Rassen in Fig. 264 veranschaulicht dies Verhältnis besser, als Worte dies könnten. Jede wagrechte Reihe gibt die Variationsreihe einer der 8 Rassen; dabei sind die gleich großen Individuen in senkrechten Reihen untereinander angeordnet.
In der ganzen Population schwanken die Längenmaße der Individuen zwischen 310 und 45 µ, der Mittelwert der ganzen Population beträgt 155 µ und ist durch die senkrechte Linie zwischen x und x angedeutet. Jede Rasse hat ihren eigenen Mittelwert, der jedesmal durch + angedeutet ist. Während die größte Rasse zwischen 310 [S. 266]und 105 µ schwankt, liegen die Maße der kleinsten zwischen 148 und 45 µ.
Es wurden Versuche gemacht, durch Auslese einen konstanten Typus von ganz großen oder ganz kleinen Individuen zu gewinnen. Aber die Selektion blieb vollkommen vergeblich; es gelang nur, die großen und kleinen Rassen zu isolieren, deren Variation konstant den gleichen Mittelwert behielt. Innerhalb der „reinen Linie“ bleibt die Selektion also ohne jeden Erfolg. Große Individuen aus einer „reinen Linie“ produzieren Nachkommenschaft vom selben Mittelwert der Größe wie die kleinen Individuen. Das Resultat, daß bei der Selektion schließlich stets doch wieder ein Rückschlag auf den Mittelwert erfolgt, stimmt also vollkommen mit den Erfahrungen überein, welche Johannsen u. a. bei höheren Organismen gemacht haben.
Innerhalb der reinen Linie ist die Variation, wie die Versuche ergeben, durch den Einfluß äußerer Bedingungen verursacht. Diese Variationen infolge von Ernährung etc. sind aber nicht erblich. Ebensowenig sind, wie Versuche von McClendon und Jennings ergaben, Verstümmelungen und Deformationen vererbbar. Sie übertragen sich zwar bei der Teilung meist eine Reihe von Generationen lang auf das eine oder beide Tochtertiere (je nach der Lage am Körper), verschwinden aber im Verlauf der weiteren Teilungsvorgänge vollkommen.
Wie bei höheren Organismen, so kommen auch bei Protozoen spontane, kongenitale, durch innere Bedingungen verursachte Variationen vor. Auf solche sind ja vielleicht auch die Rassen oder reinen Linien selbst zurückzuführen. Derartige Variationen können erblich sein. Sie entsprechen dann denjenigen Variationen, welche man in der neueren Zeit nach dem Vorbild von de Vries bei den höheren Organismen gewöhnlich als Mutationen bezeichnet. Solche sind bei den Protozoen auch wiederholt beschrieben worden; sie sind als solche bezeichnet worden, da sie das eine Merkmal der sogenannten Mutationen der höheren Organismen, die sprungweise Variation, erkennen ließen; d. h. sie waren in gewissen Merkmalen so sehr von den typischen Individuen ihrer Art verschieden, daß die kontinuierlichen Uebergänge fehlten, welche für die gewöhnliche fluktuierende Variation charakteristisch sind. So hat Haecker bei Radiolarien Mutationen dieser Art beschrieben, und Kofoid hat bei Peridineen sehr eigenartige Vorkommnisse beschrieben, welche er den Mutationen zurechnet. Diese Fälle sind alle nur gelegentliche Beobachtungen, denen das wichtigste Kriterium, nämlich der experimentelle Nachweis der Vererbung, fehlt. In den von Kofoid beobachteten Fällen liegt allerdings eine Verknüpfung besonderer Art vor, bei welcher wir auch ohne Kultur die Vererbung konstatieren können. Marine Ceratien bilden nämlich vielfach bei der Teilung, indem die Individuen aneinander hängen bleiben, längere oder kürzere Ketten, in denen die Abstammung der Individuen durch ihre Aufeinanderfolge gekennzeichnet ist (Fig. 265 A). In solchen Ketten fand nun Kofoid manchmal von einem Individuum zum nächsten einen solchen Variationssprung, daß er den Betrag erreichte, welcher sonst als genügend erachtet wird, um Arten voneinander zu trennen (Fig. 265 B).
Es muß aber betont werden, daß eine andere Deutung dieser Befunde nahe liegt. Es ist sehr wohl möglich, daß während des Wachstums der Kette dieselbe in andere Lebensbedingungen geriet, so daß eine Abänderung durch äußere Ursachen erfolgte. Wenn die in [S. 267]der Kette auf den ersten „Mutanten“ folgenden Nachkommen desselben seine neuen Eigenschaften geerbt zu haben scheinen, so kann dies dadurch vorgetäuscht sein, daß die Kette zunächst unter den entsprechenden, die Abänderung herbeiführenden äußeren Bedingungen weiter wächst.
Als Mutationen wurden schließlich auch die eigenartigen Umwandlungsprodukte pathogener Trypanosomen bezeichnet, welche bei Behandlung der infizierten Wirbeltiere mit verschiedenen Medikamenten entstehen. Ehrlich hatte zuerst gezeigt, daß pathogene Trypanosomen (z. B. Tr. Brucei, gambiense etc.) bei der Behandlung des sie beherbergenden Wirtstieres mit einem Arsenpräparat, dem Atoxyl, sich unter Umständen in eine atoxylfeste Rasse umwandeln können.
Dieser merkwürdige Vorgang geht in folgender Weise vor sich: Wenn das Blut des Wirtstieres mit Trypanosomen überschwemmt ist, so injiziert man die geeignete Dosis von Atoxyl. Die Folge ist ein plötzliches massenhaftes Absterben der Trypanosomen in dem kranken Tier. Die Krankheit scheint geheilt, die Trypanosomen verschwinden vollkommen aus dem Blut. Nach einiger Zeit beginnen sie jedoch von neuem aufzutauchen, sie vermehren sich wieder stark und erfüllen von neuem das Blut. Die Krankheit rezidiviert. Das ganz unerwartete und merkwürdige Merkmal der Trypanosomen des Rezidivs ist nun aber, daß sie für das gleiche Medikament, welches ihre Vorfahren beim ersten Anfall prompt abtötete, unempfindlich geworden sind. Sie sind jetzt atoxylfest.
Entsprechende Beobachtungen wurden bei Behandlung mit anderen Arsenverbindungen, organischen Farbstoffen (Trypanrot, Parafuchsin, Tryparosan), verschiedenen anderen Benzidinfarbstoffen, ferner Tartrat und anderen Antimonverbindungen gemacht. Es entstanden jeweils arzneifeste Trypanosomenstämme. Auch bei Spirochäten wurden analoge Resultate erzielt. Wie gegen Arzneien, so wurden die Stämme auch gegen spezifische Sera fest.
Die Arzneifestigkeit eines Trypanosomenstammes blieb selbst nach 400maliger Passage durch normale Mäuse (ohne erneute Behandlung mit dem Medikament) erhalten. Auch die serumfesten Stämme vererben ihre Resistenz dauernd weiter.
Es ist also bei diesen Protozoenformen eine neue Eigenschaft aufgetreten, und dieselbe wird durch Vererbung dauernd auf Nachkommen übertragen. Wie hat man sich die Entwicklung der neuen Rasse zu denken?
[S. 268]
Es kann wohl kein Zweifel darüber herrschen, daß bei der Entstehung der neuen Rasse Selektion mit im Spiel ist. Die erste Phase des ganzen Vorgangs ist ja durch eine enorme Dezimierung der Trypanosomen charakterisiert. Aus einigen wenigen Individuen, welche in den inneren Organen — etwa Milz oder Knochenmark — von dem allgemeinen Sterben verschont geblieben sind, wird die neue Ueberflutung des Blutes hergeleitet. Diese Individuen müssen sich wohl von vornherein in irgendwelchen Eigenschaften von den gewöhnlichen Individuen, aus denen sie durch den Kampf gegen das Medikament ausgelesen wurden, unterschieden haben. Es findet also wohl sicher eine Selektion auf Grund der natürlichen Variation statt.
Wir können aber kaum annehmen, daß jeweils die geeigneten Varianten in der das Blut erfüllenden Population von Trypanosomen vorhanden sind, welche derart angepaßt sind, daß sie dem Atoxyl, dem Trypanrot, dem Tartrat etc. widerstehen können. Es handelt sich bei diesen Medikamenten zum Teil um Mittel, welche von Menschen künstlich fabriziert sind und in der freien Natur nicht vorkommen. Wir können unmöglich annehmen, daß in der Variationskurve der Trypanosomen die jeweils für sie angepaßten Varianten stets zur Stelle sind.
Wir müssen uns vielmehr vorstellen, daß bestimmte Individuen die Fähigkeit haben, in ihren Körper, in ihre organische Substanz Bestandteile des Medikaments aufzunehmen, und daß sie infolgedessen irgendeine Veränderung erfahren, welche uns in Form der Anpassung erkennbar wird, und welche sich auf ihre Nachkommen vererbt. Es handelt sich also um willkürlich vom Menschen erzeugte neue Rassen von Protozoen mit erblichen neuen Charakteren.
Diese Versuchsergebnisse legen die Vermutung nahe, daß Mutationen oder andere Variationen, welche sich bei der Zucht in reiner Linie vererben, durch äußere Einflüsse herbeigeführt werden können.
Die Trypanosomen und andere parasitische Protozoen können uns auch in anderer Beziehung wichtige Aufschlüsse über die Gesetze der Art- und Rassenbildung bei den Protozoen liefern. Wenn wir bedenken, wie weitgehend die offenbar erworbenen Anpassungen der Parasiten an ihre Wirte sind, wie fein ihre Reaktionen auf die spezifischen Widerstandskräfte einander sehr nahestehender Arten und Rassen der Wirtstiere, wenn wir ferner beachten, daß die feinen Unterschiede physiologischer oder biologischer Art bei einander morphologisch sehr nahestehenden Arten von parasitischen Protozoen mit einer großen Konstanz vererbt werden, so müssen wir diese Formen für ein ergiebiges Feld für Forschungen über Variation und Artbildung halten. Welch interessante Resultate verspricht z. B. die Untersuchung der Frage, ob nicht manche der einander morphologisch so nahe stehenden Parasitenarten z. B. unter den Trypanosomen in reinen Linien sich fortpflanzende Rassen, ähnlich den Paramäcienrassen Jennings, sind, bei denen wir jedoch die Entstehung der Rasse willkürlich beeinflussen können.
So sehen wir denn, daß die großen Fragen der modernen Biologie auch bei den Protozoen vielfach in Angriff genommen worden sind; noch sind nicht allzu viel positive Resultate erzielt, aber für die Zukunft versprechen die leicht zu züchtenden, rasch sich vermehrenden und leicht experimentell zu beeinflussenden Protozoen der exakten Forschung wichtige Ergebnisse.
[S. 269]
Wichtigste Literatur
zum Kapitel über
die Fortpflanzung der Protozoen.
Als Literatur für alle in der nachfolgenden Liste bezeichneten Abschnitte kommen auch hier wieder die in Liste auf S. 67 unter No. 1, 2, 3, 4, 5, 6, 7 und auf S. 130 unter No. 62, 63, 64 bezeichneten Lehrbücher in Betracht.
|
1. Teilung.
|
|
|
155.
|
Bütschli, O., Ueber die Entstehung des
Schwärmsprößlings der Podophrya quadripartita. In: Jenaische Zeitschr. f.
Naturw. Vol. 10. 1876. p. 287.
|
|
156.
|
Cienkowski, L., Ueber einige Rhizopoden und
verwandte Organismen. In: Arch. f. mikr. Anat. Vol. 12. 1876. p. 15.
|
|
157.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. III. Ueber Myxosporidien. In: Zool. Jahrb. Abt. f. Anat. Vol. 11.
p. 281.
|
|
158.
|
— Ueber den Teilungsvorgang bei den Süßwasserthalamophoren
(mit speziellen Angaben über Pyxidicula, Pseudodifflugia und Cochliopodium).
In: Sitzber. Gesellsch. f. Morphol. u. Physiol. München 1907.
|
|
159.
|
Hertwig, R., Ueber Microgromia socialis, eine
koloniebildende Monothalamie des süßen Wassers. In: Arch. f. mikr.
Anat. Vol. 10. Suppl. 1874.
|
|
160.
|
— und Lesser, E., Ueber Rhizopoden und denselben
nahestehende Organismen. Ibid. 1874. Suppl.
|
|
161.
|
— Ueber Podophrya gemmipara, nebst Bemerkungen zum Bau und
zur systematischen Stellung der Acineten. In: Morpholog. Jahrb. Vol. 1.
1876. p. 20.
|
|
162.
|
— Ueber den Bau und die Entwicklung von Spirochona
gemmipara. In: Jenaische Zeitschr. f. Naturw. Vol. 11. 1877. p. 140.
|
|
163.
|
Schaudinn, F., vgl. No. 80. S. 131.
|
|
164.
|
— vgl. No. 26. S. 68.
|
|
165.
|
Schewiakoff, W., vgl. No. 31. S. 63.
|
|
166.
|
Schulze, F. E., Rhizopodenstudien. I u. II. In:
Arch. f. mikr. Anat. Vol. 10. 1874. — III, IV, V. Ibid. Vol. 11. 1875. — VI.
Ibid. Vol. 13. 1877.
|
|
167.
|
Wallengren, H., Zur Kenntnis des Neubildungs- und
Resorptionsvorgängen bei der Teilung der hypotrichen Infusorien. In:
Zool. Jahrb. Abt. f. Anat. Vol. 15. 1901. p. 1.
|
|
2. Kernteilung.
|
|
|
168.
|
Borgert, A., Untersuchungen über die Fortpflanzung
der tripyleen Radiolarien, speziell von Aulacantha scolymantha. I. In:
Zool. Jahrb. Abt. f. Anat. Vol. 14. 1900. p. 203. II. in: Arch. f.
Protistenk. Vol. 14. 1909. p. 134.
|
|
169.
|
Bütschli, O., Studien über die ersten
Entwickelungsvorgänge der Eizelle, die Zellteilung und die Konjugation der
Infusorien. In: Abhandl. der Senckenberg. Naturf. Gesellsch. Vol. 10. 1876.
|
|
170.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. IV. Amöbenstudien. 1. In: Arch. f. Protistenk. Suppl.-Bd. 1907.
p. 250.
|
|
171.
|
Hartmann, M., Die Konstitution der Protistenkerne.
1911. Jena.
|
|
172.
|
— und Hammer, Untersuchungen über die Fortpflanzung
der Radiolarien. In: Sitzb. Ges. Nat. Fr. Berlin 1909.
|
|
173.
|
Haecker, V., Ueber Chromosomen- und Sporenbildung
bei Radiolarien. In: Verhandl. Deutsch. Zool. Ges. zu Lübeck. 1907.
|
|
174.
|
Hertwig, R., Ueber die Kernteilung von
Actinosphaerium Eichhorni. In: Jenaische Zeitschr. Vol. 17. 1884. p. 490.
|
|
175.
|
— vgl. No. 14. S. 67.
|
|
176.
|
a) — vgl. No. 28. S. 68.
|
|
b) — Ueber Kernteilung bei Infusorien. In: Sitzber. der
Gesellsch. f. Morphol. u. Physiol. Vol. 3. 1887.
|
|
|
177.
|
— Ueber Karyokinese bei Actinosphaerium. In: Sitzber. der
Gesellsch. f. Morphol. u. Physiol. München. Vol. 13. 1897. p. 36.
|
|
178.
|
Keuten, L., Die Kernteilung von Euglena viridis.
In: Zeitschr. f. wiss. Zool. Vol. 60. 1895. p. 215.
|
|
179.
|
Lauterborn, R., Protozoenstudien. I. Kern- und
Zellteilung von Ceratium hirundinella. In: Zeitschr. f. wiss. Zool.
Vol. 59. 1895. p. 167.
|
|
180.
|
Prowazek, S. v., Entamoeba buccalis n. sp. In:
Arbeiten a. d. Kais. Gesundheitsamt. Vol. 21. 1904. S. 42.
|
|
[S. 270]
181.
|
181. Schaudinn, F., Ueber Kernteilung mit
nachfolgender Körperteilung bei Amoeba crystalligera. Sitzber. der Akad. d.
Wissensch. Berlin. 1894. p. 1029.
|
|
182.
|
— Untersuchungen über den Generationswechsel bei den
Coccidien. In: Zool. Jahrb. Abt. f. Anat. Vol. 13. 1900. p. 197.
|
|
183.
|
Schewiakoff, W., vgl. No. 31. S. 68.
|
|
184.
|
Stein, F., vgl. No. 56. S. 69.
|
|
3. Multiple Kernteilung.
|
|
|
185.
|
Doflein, F., vgl. No. 157, oben.
|
|
186.
|
Schaudinn, F., Untersuchungen an Foraminiferen. I.
Calcituba polymorpha. In: Zeitschr. f. wiss. Zool. Vol. 59. 1895. p.
191.
|
|
4. Kernknospung.
|
|
|
187.
|
Hertwig, R., vgl. oben No. 162.
|
|
188.
|
Schaudinn, F., vgl. No. 17. S. 68.
|
|
5. Kern- und Plasmateilung.
|
|
|
189.
|
Brasil, L., Recherches sur la réproduction des
Grégarines monocystidées. In: Arch. Zool. exper. et générale. Sér. 4. Vol.
3. 1905. p. 17.
|
|
190.
|
Calkins, G. N., Mitosis of Noctiluca miliaris and
its bearing on the nuclear relations of the Protozoa and Metazoa. In:
Journ. of Morphol. Vol. 15. 1899. p. 711.
|
|
191.
|
Cuénot, L., Recherches sur l’évolution et la
conjugaison des Grégarines. In: Arch. de Biologie. Vol. 17. 1900. p. 581.
|
|
192.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. IV. Zur Morphologie und Physiologie der Kern- und Zellteilung.
Nach Untersuchungen an Noctiluca und anderen Organismen. In: Zool. Jahrb.
Abt. f. Anat. Vol. 14. 1900. p. 1.
|
|
193.
|
Hertwig, R., vgl. No. 14, S. 67.
|
|
193.
|
a) — Ueber neue Probleme der Zellenlehre. Arch. f.
Zellforschung. Vol. 1. 1908. p. 1.
|
|
194.
|
Ishikawa, C., Studies of reproductive elements. II.
Noctiluca miliaris, its division and spore formation. In: Journ. of
the College of Science Tokyo. Vol. 6. 1894. p. 297.
|
|
195.
|
— Further observations on the nuclear division of
Noctiluca. Ibid. Vol. 12. 1899. p. 243.
|
|
196.
|
Léger, L., La réproduction sexuée chez les
Stylorhynchus. In: Arch. f. Protistenk. Vol. 3. 1904. p. 303.
|
|
197.
|
Mrazek, A., Studia o Sporozoích I. In: Vestnik
Ceske Spolec. Nauk 1899. p. 1.
|
|
198.
|
Prowazek, S. v., Zur Entwicklung der Gregarinen.
In: Arch. f. Protistenk. Vol. 1. 1902. p. 297.
|
|
199.
|
|
|
200.
|
— Ueber das Centralkorn der Heliozoen, ein Beitrag zur
Centrosomenfrage. In: Verhandl. Deutsch. Zool. Ges. 1896. p. 113.
|
|
201.
|
— Ueber den Zeugungskreis von Paramoeba Eilhardi. In:
Sitzber. der Akad. d. Wiss. Berlin. 1896. p. 31.
|
|
6. Befruchtung.
|
|
|
202.
|
Bruck, W. F., Beiträge zur Physiologie der
Mycetozoen. 1. Teil: Verschmelzungsvorgänge, Entwicklungsänderungen. In:
Zeitschr. allg. Physiol. Vol. 7. 1908. p. 505.
|
|
203.
|
Bütschli, O., Studien über die ersten
Entwicklungsvorgänge der Eizelle, die Zellteilung und die Konjugation
der Infusorien. In: Abhandl. der Senckenberg. Naturf. Gesellsch. Vol.
10. 1876.
|
|
204.
|
Carter, H. J., On fecundation in Eudorina elegans
and Cryptoglena. In: Ann. Mag. Nat. Hist. ser. 3. Vol. 2. 1858. p. 237.
|
|
205.
|
Cuénot, s. oben No. 191.
|
|
206.
|
Collin, B., La conjugaison d’Anoplophrya branchiarum
(Stein). In: Arch. Zool. expérim. Vol. 61. (sér. 5. Vol. 1.) 1909. p. 345.
|
|
207.
|
Goroschankin, Beiträge zur Morphologie und
Systematik der Chlamydomonaden. I. Chlamydomonas Braunii. In: Bull. Soc.
Imp. des Naturalistes de Moscou. 1890. p. 101.
|
|
208.
|
— II. Chlamydomonas Reinhardi Dang. und seine Verwandten.
Ibid. 1891. p. 1.
|
|
209.
|
Hertwig, R., Ueber die Konjugation der Infusorien.
In: Abhandl. d. K. b. Ak. Wiss. München. II. Kl. Vol. 17. I. Abt. 1889.
p. 1.
|
|
210.
|
— Ueber Befruchtung und Konjugation. In: Verhandl. d.
Deutsch. Zool. Ges. 1892. p. 95.
|
|
211.
|
— Ueber Befruchtung bei Rhizopoden. In: Sitzber. d. Ges.
f. Morphol. u. Physiol. Vol. 12. 1897. p. 83.
|
|
[S. 271]
212.
|
— vgl. No. 14. S. 67.
|
|
213.
|
Hartmann, M., Autogamie bei den Protozoen und ihre
Bedeutung für das Befruchtungsproblem. Arch. f. Protistenk. Vol. 15.
1909. H. 2.
|
|
214.
|
Hieronymus, G., Ueber Stephanosphaera pluvialis
Cohn. In: Cohns Beiträge zur Biologie. Vol. 4. 1884. p. 51.
|
|
215.
|
Léger, L., Les Schizogrégarines des Trachéates. I.
Le genre Ophryocystis. In: Arch. f. Protistenk. Vol. 8. 1907. p. 159.
|
|
216.
|
— Vgl. oben No. 196.
|
|
217.
|
Maupas, E., Recherches expérimentales sur la
multiplication des Infusoires ciliés. In: Arch. Zool. expérim. et génér.
Sér. 2. Vol. 6. 1888. p. 165.
|
|
218.
|
— Sur le rajeunissement karyogamique des Ciliés. Ibid.
Sér. 2. Vol. 7. 1889. p. 149.
|
|
219.
|
Paehler, Franz, Ueber die Morphologie,
Fortpflanzung und Entwicklung von Gregarina ovata. In: Arch. f. Protistenk.
Vol. 4. 1904. p. 64.
|
|
220.
|
Pringsheim, N., Ueber Paarung von Schwärmsporen.
Monatsber. d. K. Akad. Wiss. Berlin 1869.
|
|
221.
|
Prowazek, S. v., Die Entwicklung von Herpetomonas.
In: Arb. a. d. Kais. Gesundheitsamt. Vol. 20. 1904. p. 540.
|
|
222.
|
— Untersuchungen über einige parasitische Flagellaten.
Ibid. Vol. 21. 1904. p. 1.
|
|
223.
|
Schaudinn, F., Ueber die Kopulation von Actinophrys
sol. Sitzungsber. d. Akad. Wiss. Berlin. 1896. p. 83.
|
|
224.
|
— Untersuchungen über den Generationswechsel bei
Coccidien. In: Zool. Jahrb. Abt. f. Anat. Vol. 13. 1900. p. 197.
|
|
225.
|
— Untersuchungen über den Generationswechsel von
Trichosphaerium Sieboldi. Anh. z. d. Abh. d. K. pr. Akad. d. Wiss. Berlin.
1899. p. 1.
|
|
226.
|
— und Siedlecki, Beiträge zur Kenntnis der
Coccidien. In: Verhandl. Deutsch. Zool. Ges. 1897. p. 192.
|
|
227.
|
Schnitzler, H., Ueber die Fortpflanzung von
Clepsidrina ovata. In: Arch. f. Protistenk. Vol. 6. 1905. p. 309.
|
|
228.
|
Siedlecki, M., Étude cytologique et cycle évolutif
de l’Adelea ovata. Ann. Inst. Pasteur. Vol. 13. 1899. p. 167.
|
|
229.
|
— Ueber die geschlechtliche Vermehrung der Monocystis
ascidiae. Bull. de l’Acad. Scienc. de Cracovie. 1899. p. 515.
|
|
230.
|
Wallengren, Ueber die totale Konjugation bei
Vorticellinen. Biol. Centralbl. Vol. 19. 1899. p. 153.
|
|
231.
|
Winter, T., Zur Kenntnis der Thalamophoren I.
Untersuchung über Peneroplis pertusus. In: Arch. f. Protistenk. Vol.
10. 1907. p. 1.
|
|
7. Allgemeines über Befruchtung, Reifung
und Entwicklung bei den Protozoen.
|
|
|
232.
|
Bary, A. de, Untersuchungen über die Familie der
Conjugaten. Leipzig 1858.
|
|
233.
|
Cohn, F., Die Entwicklungsgeschichte der Gattung
Volvox. In: Cohns Beitr. z. Biol. Vol. 3. 1875. p. 93.
|
|
234.
|
Doflein, F., Beobachtungen und Ideen über die
Konjugation der Infusorien. In: Sitzungsber. d. Ges. f. Morphol. u. Physiol.
1907.
|
|
235.
|
— Vgl. oben No. 157.
|
|
236.
|
Goldschmidt, R., Lebensgeschichte der Mastigamöben.
In: Arch. f. Protistenk. Suppl.-Bd. 1. 1907. p. 83.
|
|
237.
|
Hartmann, Die Fortpflanzungsweisen der Organismen.
In: Biol. Centralbl. Vol. 24. 1904. p. 18.
|
|
238.
|
a) Karsten, G., Untersuchungen über Diatomeen.
I–III. Flora. Vol. 82. 1896. p. 286; Vol. 83. 1897. p. 33 und 203.
|
|
b) — Die Auxosporenbildung der Gattungen Cocconcis, Surirella
und Cymatopleura. Flora. Vol. 87. 1900. p. 251.
|
|
|
239.
|
a) Klein, L., Vergleichende Untersuchungen über
Morphologie und Biologie der Fortpflanzung bei der Gattung Volvox.
In: Ber. d. Naturf. Ges. Freiburg i. B. Vol. 5. 1888.
|
|
b) — Morphologische und biologische Studien über die
Gattung Volvox. Pringsheims Jahrb. Vol. 20. 1889. p. 132.
|
|
|
c) — Neue Beiträge zur Kenntnis der Gattung Volvox.
Berichte der Deutsch. bot. Ges. Vol. 7. 1889. p. 42.
|
|
|
240.
|
Korschelt und Heider, Lehrb. d. vergl.
Entwicklungsgesch. Allgem. Teil. 1. u. 2. Aufl. 1904.
|
|
241.
|
Krassiltschik, J., Zur Entwicklungsgeschichte und
Systematik der Gattung Polytoma. Anat. Anz. Vol. 5. 1882. p. 426.
|
|
[S. 272]
242.
|
Kuschakewitsch, S., Beobachtungen über vegetative,
degenerative und germinative Vorgänge bei den Gregarinen des
Mehlwurmdarms. In: Arch. f. Protistenk. Suppl.-Bd. 1. 1907. p. 202.
|
|
243.
|
Lauterborn, vgl. oben No. 179.
|
|
244.
|
Léger et Duboscq, O., Les grégarines et
l’épithélium intestinal chez les Trachéates. In: Arch. d. Parasit.
Vol. 6. 1902. p. 377.
|
|
245.
|
— Nouvelles recherches sur les Grégarines et l’épithélium
intestinal des Trachéates. In: Arch. f. Protistenk. Vol. 4. 1904. p. 335.
|
|
246.
|
— Études sur la sexualité chez les grégarines. Ibid. Vol.
17. 1909. H. 1.
|
|
247.
|
Migula, W., Beiträge zur Kenntnis des Gonium
pectorale. In: Bot. Centralbl. Vol. 43. 1890.
|
|
248.
|
Moroff, Th., Die bei den Cephalopoden vorkommenden
Aggregata-Arten als Grundlage einer kritischen Studie über die
Physiologie des Zellkerns. In: Arch. f. Protistenk. Vol. 11. 1908. p. 1.
|
|
249.
|
Overton, E., Beitrag zur Kenntnis der Gattung
Volvox. In: Bot. Centralbl. Vol. 39. 1889. p. 65.
|
|
250.
|
Popoff, M., Experimentelle Zellstudien. In: Arch.
f. Zellforsch. Vol. 1. 1908. Heft 2.
|
|
251.
|
Prandtl, H., Die Konjugation von Didinium nasutum.
In: Arch. f. Protistenk. Vol. 7. 1906. p. 229.
|
|
252.
|
— Der Entwicklungskreis von Allogromia sp. Ibid. Vol. 9.
1907. p. 1.
|
|
253.
|
Prowazek, S. v., Kernteilung und Vermehrung bei
Polytoma. In: Oesterr. bot. Zeitschr. Vol. 51. 1901. p. 51.
|
|
254.
|
— Nachträgliche Bemerkung zu dem Aufsatz „Kernteilung
etc.“ Ibid. Vol. 51. 1901. p. 400.
|
|
255.
|
Schaudinn, F., Studien über krankheitserregende
Protozoen. I. Cyclospora caryolytica, der Erreger der perniziösen
Enteritis des Maulwurfs. In: Arbeit. aus dem Kais. Gesundheitsamt
Berlin. Vol. 18. 1902. p. 378.
|
|
256.
|
— Dass. II. Plasmodium vivax Gr. und Fel., der Erreger des
Tertianfiebers beim Menschen. Ibid. Vol. 19. 1902. p. 169.
|
|
257.
|
— Beiträge zur Kenntnis der Bakterien und verwandten
Organismen. I. Bacillus Bütschlii. In: Arch. f. Protistenk. Vol. 1. 1902.
p. 305.
|
|
258.
|
Thélohan, P., Recherches sur les Myxosporidies.
In: Bull. scientif. de la France et Belg. Vol. 26. 1895. p. 100.
|
|
Hierzu alle Nummern des vorigen Abschnittes (6). |
|
|
8. Terminologie.
|
|
|
259.
|
Grassi, B., Die Malaria, Studien eines Zoologen. 2.
Aufl. Jena 1902.
|
|
260.
|
Hartmann, M., Die Fortpflanzungsweisen der
Organismen. In: Biol. Centralbl. Vol. 24. 1904. p. 18. (Das. weitere
Literatur.)
|
|
261.
|
Lang, A., Lehrbuch der vergleichenden Anatomie der
wirbellosen Tiere. 2. Aufl. Jena 1901. 2. Lief.
|
|
262.
|
Lühe, M., Ergebnisse der neueren Sporozoenforschung.
Jena 1900.
|
|
263.
|
— Die im Blut schmarotzenden Protozoen und ihre nächsten
Verwandten. In: C. Mense. Handbuch der Tropenkrankheiten. Vol. III.
Leipzig 1906. p. 69; vgl. bes. p. 217 u. 218.
|
|
264.
|
Prowazek, S. v., Studien über Säugetiertrypanosomen.
In: Arb. a. d. Kais. Gesundheitsamt. Vol. 22. 1905. p. 1.
|
|
265.
|
|
|
266.
|
— Der Generationswechsel der Coccidien und Hämosporidien.
Eine Zusammenfassung der neueren Forschungsergebnisse. In: Zool. Centralbl.
Vol. 6. 1899. p. 765.
|
|
9. Regeneration.
|
|
|
267.
|
Balbiani, E. S., Recherches expérimentales sur
mérotomie des Infusoires ciliés. In: Rec. zool. Suisse. Vol. 5. 1888. p. 1.
— Annales d. Micrographie. Vol. 4. 1892.
|
|
268.
|
Brandt, K., Ueber Actinosphaerium Eichhorni.
Inaug.-Diss. Halle 1893.
|
|
269.
|
Gruber, A., Ueber künstliche Teilung der Infusorien.
In: Biol. Centralbl. Vol. 4. 1884/5. p. 137.
|
|
270.
|
— Zur Physiologie und Biologie der Protozoen. In: Ber.
Naturf. Ges. Freiburg i. Br. Vol. 1. 1886. p. 33.
|
|
271.
|
— Mikroskopische Vivisektion. Ibid. Vol. 7. 1893. p. 47.
|
|
272.
|
Hofer, B., Experimentelle Untersuchungen über den
Einfluß des Kerns auf das Protoplasma. Jenaische Zeitschr. f. Naturw. Vol.
24. 1890. p. 105.
|
|
273.
|
Johnson, A contribution to the morphology and
biology of the Stentors. In: Journ. of Morphol. Vol. 8. 1893. p. 457.
|
|
[S. 273]
274.
|
Korschelt, E., Regeneration und
Transplantation. Jena 1907.
|
|
275.
|
Lillie, F., On the smallest parts of Stentor
capable of regeneration. In: Journ. of Morphol. Vol. 12. 1896. p. 239.
|
|
276.
|
Morgan, T. H., Regeneration of proportional
structures in Stentor. Biolog. Bulletin. Vol. 2. 1901. p. 311.
|
|
277.
|
Nussbaum, M., Ueber die Teilbarkeit der lebenden
Materie. I. Ueber spontane und künstliche Teilung der Infusorien. In: Arch.
f. mikr. Anat. Vol. 26. 1886. p. 485.
|
|
278.
|
Prowazek, S. v., Beiträge zur
Protoplasmaphysiologie. In: Biol. Centralbl. Vol. 21. 1901.
|
|
279.
|
— Beitrag zur Kenntnis der Regeneration und Biologie der
Protozoen. In: Arch. f. Protistenk. Vol. 3. 1903. p. 44.
|
|
280.
|
Stevens, N. M., Notes on regeneration in Stentor
coeruleus. In: Arch. f. Entw.-Mech. Vol. 16. 1903. p. 461.
|
|
281.
|
Verworn, M., Biologische Protistenstudien. In:
Zeitschr. f. wiss. Zool. Vol. 46. 1888. p. 455.
|
|
282.
|
— Psychophysiologische Protistenstudien. Jena 1890.
|
|
10. Form und Entwicklung.
|
|
|
283.
|
Bouet, G., Culture du Trypanosome de la grenouille
(Trypanosoma rotatorium). In: Ann. Inst. Pasteur. Vol. 20. 1906. p. 564.
|
|
284.
|
Bütschli, O., Ueber die Entstehung des
Schwärmsprößlings der Podophrya quadripartita. Jenaische Zeitschr. f.
Naturw. Vol. 10. 1876. p. 287.
|
|
285.
|
Fauré-Frémiet, Sur une variation expérimentale de
la Vorticella microstoma. In: Cpt. R. Soc. Biol. Paris. Vol. 59. 1905.
p. 424.
|
|
286.
|
Neresheimer, E., Ueber vegetative Kernveränderungen
bei Amoeba Dofleini. In: Arch. f. Protistenk. Vol. 6. 1905. p. 147.
|
|
287.
|
Weismann, A., Ueber Leben und Tod. (1864.) In:
Aufsätze über Vererbung. Jena 1892.
|
|
11. Einzelligkeit der Protozoen.
|
|
|
288.
|
Bütschli, O., Ueber den Bau der Bakterien und
verwandter Organismen. Leipzig 1890.
|
|
289.
|
— Weitere Ausführungen über den Bau der Cyanophyceen und
Bakterien. Leipzig 1896.
|
|
290.
|
— Bemerkungen über Cyanophyceen und Bakteriaceen. In:
Arch. f. Protistenk, Vol. 1. 1902. p. 41.
|
|
291.
|
Doflein, F., Fortpflanzungserscheinungen bei Amöben
und verwandten Organismen. Sitzber. der Ges. f. Morph. u. Phys. 1907.
|
|
292.
|
Elpatiewsky, W., Zur Fortpflanzung von Arcella
vulgaris. In: Arch. f. Protistenk. Vol. 10. 1907. p. 439.
|
|
293.
|
Enriquez, P., Il dualismo nucleare negli Infusori e
suo significato morfologico e funzionale. Biologica. Torino. Vol. 1. 1907.
No. 17. p. 325–351.
|
|
294.
|
Goldschmidt, R., Die Chromidien der Protozoen.
Arch. f. Protistenk. Vol. 5. 1904. p. 126.
|
|
295.
|
a) — Der Chromidialapparat lebhaft funktionierender
Gewebezellen. In: Zool. Jahrb. Abt. f. Anat. Vol. 21. 1904. p. 49.
|
|
vgl. No. 236.
|
|
|
296.
|
— u. Popoff, M., Die Karyokinese der Protozoen und
der Chromidialapparat der Protozoen- und Metazoenzelle. In: Arch. f.
Protistenk. Vol. 8. 1907. p. 322.
|
|
297.
|
Gurwitsch, A., Morphologie und Biologie der Zelle.
Jena 1904. Kapitel 10. p. 341.
|
|
298.
|
Haeckel, E., Monographie der Moneren. In: Jenaische
Zeitschr. f. Naturw. Vol. 4. 1868.
|
|
299.
|
Hartmann, M., Polyenergide Kerne. Studien über
multiple Kernteilungen und generative Chromidien bei Protozoen. In: Biol.
Centralbl. Vol. 29. 1909. p. 481.
|
|
300.
|
— und Jollos, Die Flagellatenordnung „Binucleata“.
Phylogenetische Entwicklung und systematische Einteilung der
Blutprotozoen. Arch. f. Protistenk. Bd. 19. 1910. No. 1.
|
|
301.
|
Hertwig, R., Zur Histologie der Radiolarien.
Leipzig 1876.
|
|
302.
|
— Der Organismus der Radiolarien. Jena 1878.
|
|
303.
|
— Ueber Encystierung und Kernvermehrung bei Arcella
vulgaris. In: Festschrift für C. v. Kupffer. Jena 1899.
|
|
304.
|
— Die Protozoen und die Zelltheorie. In: Arch. f.
Protistenk. Vol. 1. 1902. p. 1.
|
|
305.
|
— Ueber physiologische Degeneration bei Actinosphaerium
Eichhorni. Festschrift für E. Haeckel. Jena 1904.
|
|
[S. 274]
306.
|
Hertwig, R., Ueber den Chromidialapparat und den
Dualismus der Kernsubstanzen. In: Sitzber. Ges. f. Morphol. u. Physiol.
1907.
|
|
307.
|
— Ueber neue Probleme der Zellenlehre. In: Arch. f.
Zellforschung. Vol. 1. 1908. p. 1.
|
|
308.
|
Jollos, V., Multiple Teilung und Reduktion bei
Adelea ovata Schn. Arch. f. Protistenk. Vol. 15. 1909. p. 249.
|
|
309.
|
Kofoid, L. A., Plankton Studies. II. On Pleodorina
illinoisensis, a new species from the Plankton of the Illinois River. Bull.
Illinois State Lab. Nat. Hist. 1898. Vol. 5. p. 273.
|
|
310.
|
— On Platydorina a new genus of the family Volvocideae.
Ibid. 1899. Vol. 5. No. 9.
|
|
311.
|
Moroff, Th., Die bei den Cephalopoden vorkommenden
Aggregataarten als Grundlage einer kritischen Studie über die Physiologie
des Zellkerns. In: Arch. f. Protistkde. Vol. 11. 1908. p. 1.
|
|
312.
|
Merton, Hugo, Ueber den Bau und die Fortpflanzung
von Pleodorina illinoisensis Kofoid. Zeitschr. f. wiss. Zoolog. Vol. 90.
1908. p. 445.
|
|
313.
|
|
|
314.
|
Swarczewski, Ueber die Fortpflanzungserscheinungen
bei Arcella vulgans Ehrbg. Arch. f. Protistenk. Vol. 12. 1908. p. 178.
|
|
315.
|
Vejdovski, F., Bemerkungen über den Bau und
Entwicklung der Bakterien. In: Centralbl. f. Bakt., Paras. und
Infektionskrankh. II. Abt. Vol. 6. 1900. p. 577.
|
|
316.
|
Whitman, The inadaequacy of the cell-theory of
Development. In: Journ. of Morphol. Vol. 8. 1893. p. 639.
|
|
12. Theoretisches über die Fortpflanzung
der Protozoen.
|
|
|
317.
|
Boveri, Th., Befruchtung. Anat. Hefte. 2. Abt. Vol.
1. 1892. p. 385–485.
|
|
318.
|
Bütschli, O., Gedanken über Leben und Tod. In:
Zool. Anz. Vol. 5. 1882. p. 64.
|
|
319.
|
— In: Bronns Klassen und Ordnungen des Tierreichs.
Protozoa. III. Ciliata. p. 1642.
|
|
320.
|
Calkins, G. N., Studies on the life history of
Protozoa. I. The life cycle of Paramaecium caudatum. In: Arch. f.
Entwicklungsmech. Vol. 15. 1902. p. 139.
|
|
321.
|
— Dass. II. The effect of stimuli on the life cycle of
Paramaecium caudatum. Arch. f. Protistenk. Vol. 1. 1902. p. 355.
|
|
322.
|
— Dass. III. The 620th generation of Paramaecium caudatum.
Biol. Bull. Vol. 5. 1902.
|
|
323.
|
— Dass. IV. Death of the A series of Paramaecium caud.
Conclusions. In: Journ. of exper. Zool. Vol. 1. 1904.
|
|
324.
|
— The Protozoan life cycle. Biol. Bull. Vol. 11. 1906.
p. 229–244.
|
|
325.
|
— Protozoology. London 1910.
|
|
326.
|
— and Cull, S. W., The conjugation of Paramaecium
aurelia (caudatum). Arch. f. Protistenk. Vol. 10. Jena 1907. p. 375–415.
|
|
327.
|
Dobell, C. C., Some remarks upon the „Autogamy“ of
Bodo lacertae (Grassi). Biolog. Centralbl. Vol. 28. 1908. No. 17. p.
548–555.
|
|
328.
|
— Chromidia and the binuclearity Hypothesis. In: Quart.
Journ. Micr. Sci. Vol. 53. 1909. p. 279.
|
|
329.
|
Ehrlich, P., Roehl, W., und Gulbransen,
R., Ueber serumfeste Trypanosomenstämme. Zeitschr. f. Immunitätsforschg.
Teil 1. Orig. Vol. 3. 1909. No. 3. p. 296–299.
|
|
330.
|
Enriquez, P., Sulla cosí detta „degenerazione
senile“ dei Protozoi. Monitore Zoologico Italiano. Anno XIV. Dicembre 1903.
|
|
331.
|
— Della degenerazione senile negli infusorí. Rendiconti
della R. Accad. dei Lincei. Classe di science fisiche, math. nat. Vol. 14.
1905. Serie 5ᵃ. 2ᵒ sem. Fasc. 7ᵒ e 8ᵒ.
|
|
332.
|
— Sulle condizioni che determinano la coniugazione negli
Infusorî, e del differenziamento sessuale nei vorticellide. Bologna
1906. 60 pp. 3 Taf.
|
|
333.
|
— La coniugazione e il differenziamento sessuale negli
Infusorî. In: Arch. f. Protistenk. Vol. 9. 1907. p. 195–297.
|
|
334.
|
— Il dualismo nucleolare negli Infusorî e il suo
significato morfologico e funzionale. Biologica. Torino. Vol. 1. 1907.
p. 326–351.
|
|
335.
|
— Die Conjugation und sexuelle Differenzierung der
Infusorien. Zweite Abhandlung: Wiederkonjugante und Hemiscee bei Chilodon.
Arch. f. Protistenk. Vol. 12. 1908. p. 213–276.
|
|
336.
|
— Die Conjugation und sexuelle Differenzierung der
Infusorien. Ibid. Vol. 12. 1908. p. 213.
|
|
337.
|
La sexualité chez les Protozoaires. Scientia, Rivista di
Scienza. Vol. 6. Anno III. (1909). N. XI, 3.
|
|
338.
|
— La teoria di Spencer sulla divisione cellulare studiata
con ricerche biometriche negli Infusorî. Arch. Fis. Firenze. Vol. 7.
1909. p. 113–136.
|
|
339.
|
Giglio-Tos, E., Sull’interpretazione morfologica e
fisiologica degli Infusorî. Biologica. Vol. 2. 1908. No. 3. p. 1–79.
|
|
[S. 275]
340.
|
Goette, A., Ueber den Ursprung des Todes. Hamburg
und Leipzig 1883.
|
|
341.
|
Gregory, L. H., Observations on the life history
of Tillina magna. In: Journ. exp. Zool. Vol. 6.
|
|
342.
|
Hamburger, Cl., Die Konjugation von Paramaecium
bursaria Focke. Arch. f. Protistenk. Vol. 4. 1904. p. 199–239.
|
|
343.
|
— Zur Kenntnis der Konjugation von Stentor coeruleus,
nebst einigen allgemeinen Bemerkungen über die Konjugation der Infusorien.
Zeitschr. f. wiss. Zool. Vol. 90. 1908. p. 423–435.
|
|
344.
|
Hartmann, M., Tod und Fortpflanzung. München 1906.
|
|
345.
|
Hertwig, R., Was veranlaßt die Befruchtung der
Protozoen. In: Sitzungsber. d. Ges. f. Morph. w. Physiol. 1899. Heft 1.
|
|
346.
|
— Mit welchem Recht unterscheidet man geschlechtliche und
ungeschlechtliche Fortpflanzung? Ibid. 1899. Heft 2.
|
|
347.
|
— Ueber physiologische Degeneration bei Protozoen. Ibid.
1900. Heft 1.
|
|
348.
|
— Ueber Wesen und Bedeutung der Befruchtung. In:
Sitzungsber. d. K. b. Akad. d. Wiss. München. Vol. 32. 1902. Heft 1. p. 57.
|
|
349.
|
— Ueber das Wechselverhältnis von Kern und Protoplasma.
Sitzungsber. d. Ges. f. Morph. u. Physiol. 1902 und 1903.
|
|
350.
|
— Ueber Korrelation von Zell- und Kerngröße und ihre
Bedeutung für die geschlechtliche Differenzierung und die Teilung der Zelle.
In: Biol. Centralbl. Vol. 23. 1903. p. 49.
|
|
351.
|
— Ueber physiologische Degeneration bei Actinosphaerium
Eichhorni. In: Festschr. f. E. Haeckel. Jena 1904.
|
|
352.
|
— Ueber die Ursache des Todes. In: Allg. Zeitung. No. 88
u. 89. 1906.
|
|
353.
|
Jennings, H. S., Experiments on the effect of
conjugation on the life history in Paramaecium. (Amer. Soc. Zool.) Science.
N. S. Vol. 31. 1910. p. 466–467.
|
|
354.
|
— What conditions induce conjugation in Paramaecium?
Journ. exp. Zool. Vol. 9. 1910. p. 279–300.
|
|
355.
|
Joukowsky, Beiträge zur Frage nach den Bedingungen
der Vermehrung und des Eintritts der Konjugation bei den Ciliaten. In:
Verh. Nat. Ald. Verein Heidelberg. Vol. 6. 1898. p. 17.
|
|
356.
|
Kasanzeff, We., Experimentelle Untersuchungen über
Paramaecium caudatum. Inaug.-Diss. Zürich. 1901.
|
|
357.
|
a) Maupas, E., Sur la multiplication des Infusoires
ciliés. Arch. de Zoologie expér. et génér. Sér. 2. Vol. 6. 1888.
|
|
b) — Le rajeunissement karyogamique chez les ciliés. Ibid.
Sér. 2. Vol. 7. 1888.
|
|
|
358.
|
Popoff, M., Depression der Protozoenzelle und der
Geschlechtszellen der Metazoen. In: Arch. f. Protistenk. Suppl.-Bd.
1. 1907. p. 43.
|
|
359.
|
— Die Gametenbildung und die Konjugation von Carchesium
polypinum L. Zeitschr. f. wiss. Zool. Vol. 89. 1908. Heft 3. p. 478–524.
|
|
360.
|
— Ueber den Einfluß chemischer Reagentien auf den
Funktionszustand der Zelle. Sitzungsber. d. Ges. f. Morph. u. Phys.
München 1900. Vol. 25. p. 55–58.
|
|
361.
|
Prowazek, S. v., Die Sexualität bei den Protisten.
In: Arch. f. Protistenk. Vol. 9. 1907. p. 23.
|
|
362.
|
Russo, A., e Di Mauro, S., Differenziazioni
citoplasmiche nel Cryptochilum echini (Maupas). (Nota prel.) Boll. Accad.
Gioen. Catania. 1905. Fasc. 84. 5 pp.
|
|
363.
|
— Framentazione del macronucleo nel Cryptochilum echini
(Maupas) e sua significazione per la senescenza degli Infusorii. (Nota
prel.) Ibid. 1905. Fasc. 84. 46 pp.
|
|
364.
|
— La conjugazione ed il ringiovanimento nel Cryptochilum
echini Maupas (Ceronema echini, Cuénot) 3ᵃ Nota prel. Ibid. 1905. Fasc. 85.
6 pp.
|
|
365.
|
Schaudinn, F., Neuere Forschungen über die
Befruchtung bei Protozoen. In: Verhandl. d. Deutsch. Zool. Ges. 1905. p. 16.
|
|
366.
|
Versluys, Ueber die Konjugation der Infusorien.
Biolog. Centralbl. Vol. 26. 1906. p. 46–62.
|
|
367.
|
Wallengren, H., Inanitionserscheinungen der
Zelle. In: Zeitschr. f. allgem. Phys. Vol. 1. 1901. p. 67.
|
|
368.
|
a) Weismann, A., Ueber die Dauer des Lebens. Jena
1882.
|
|
b) — Ueber Leben und Tod. Eine biologische Untersuchung.
Jena 1884.
|
|
|
369.
|
Woodruff, L. L., An experimental study on the life
history of hypotrichous Infusoria. In: Journ. of exper. Zool. Vol. 2.
1905.
|
|
370.
|
— The life cycle of Paramaecium. Proc. Soc. exper. Biol.
Med. N. Y. Vol. 5. 1908. p. 124.
|
|
371.
|
— Duration of the cycle of Paramaecium. Science. N. S.
Vol. 29. 1909. p. 425.
|
|
372.
|
— Studies on the life cycle of Paramaecium. Proc. Soc.
exper. Biol. Med. N. Y. Vol. 6. 1909. p. 117–118.
|
|
373.
|
— Two thousand generations of Paramaecium. In: Arch.
f. Protistenk. Vol. 21. 1911. p. 263.
|
|
[S. 276]
374.
|
— and Morris S. Fine, The biological cycle of the
hay infusion. (Amer. Soc. Zool.) Science. N. S. Vol. 31. 1910. p. 467–468.
|
|
13. Artbegriff, Variation und Vererbung
bei den Protozoen.
|
|
|
375.
|
Calkins, G. N., Paramaecium aurelia and Paramaecium
caudatum. Biological studies by the pupils of William Thompson Sedgwick.
Chicago 1906.
|
|
376.
|
McClendon, J. F., Protozoan studies. Journ. exper.
Zool. Vol. 6. 1909. p. 265–283.
|
|
377.
|
Gruber, A., Einzellige Zwerge. Festschr. f.
Leuckart. Leipzig 1892. p. 74–76.
|
|
378.
|
Haecker, V., Die Radiolarien in der Variations-
und Artbildungslehre. In: Zeitschr. f. ind. Abstammungs- und
Vererbungslehre. Vol. 2. 1909. p. 1.
|
|
379.
|
Jennings, H. S., Heredity, variation and evolution
in Protozoa. I. The fate of new structural characters in Paramaecium, with
special reference to the question of the inheritance of acquired characters
in Protozoa. Journ. exper. Zool. Vol. 5. 1908. p. 577–632.
|
|
380.
|
— Heredity variation and evolution in Protozoa. II.
Heredity and variation of size and form in Paramaecium, with studies of
growth, environmental action and selection. Proc. Amer. Philos. Soc.
Vol. 47. 1908. p. 393–546.
|
|
381.
|
— Diverse races of Paramaecium and their relation to
selection and to conjugation. (Amer. Soc. Zool.) Science. N. S. Vol. 29.
1909. p. 424–425.
|
|
382.
|
— Heredity and variation in the simplest organisms. The
Amer. Natural. Vol. 43. 1909. No. 510. p. 322–337.
|
|
383.
|
— and Hargitt, G. T., Characteristics of the
diverse races of Paramaecium. Journ. of Morphology. Vol. 21. 1910. No. 4. p.
496–561.
|
|
384.
|
Popoff, M., Experimentelle Zellstudien. I; II. Ueber die
Zellgröße, ihre Fixierung und Vererbung; III. Ueber einige Ursachen der
physiologischen Depression der Zelle. Arch. f. Zellforsch. Vol. 1. 1908.
p. 245–379; Vol. 3. 1909. p. 124–180; Vol. 4. 1909. p. 1–42.
|
|
385.
|
Wesenberg-Lund, C., Plankton investigations of the
Danish lakes. 2 vols. Kopenhagen 1908. 389 pp. 37 pl.
|
[11] Bei welcher Art ein oder mehrere Amphinucleoli vorkommen.
[12] Mit Ausnahme von Actinosphaerium: Plasmakegel.
[13] Schaudinn hat in seiner Publikation (1896) die Bildung nur eines Richtungskörpers angegeben. Später hat er, wie er mir 1905 mündlich mitteilte, den zweiten auch nachgewiesen.
[14] An dieser Stelle lassen wir außer acht, daß es bei jeder Art zwei Sorten von solchen beweglichen Gameten gibt.
[15] d. h. von solchen, welche von den gemeinsamen Ahnen durch eine sehr große Zahl von Generationen getrennt sind.
[16] Da es durch ungeschlechtliche Vermehrung zur Bildung von Agameten führt, kann man es zum Unterschied von den Gamonten in diesem Stadium auch Agamont nennen.
[17] In der älteren Literatur, z. B. bei Balbiani, sind die Experimente unter der Bezeichnung „Merotomie“ beschrieben.
[18] Hierher sind auch alle vielzelligen Stadien zu rechnen, welche ihre Entstehung nur dem Umstand verdanken, daß die Kernteilung der Zellteilung vorangeeilt ist, z. B. bei der Gametenbildung, multiplen Teilung etc.
[19] Schaudinn ist der Ansicht, daß die bei den Trypanosomen besonders klar erkennbaren Gegensätze bei allen anderen Protozoen in einer allerdings oft schwer erkennbaren Form realisiert sind.
[20] Es muß an dieser Stelle darauf hingewiesen werden, daß trotz vielfacher Bemühungen die Angaben über die komplizierten Befruchtungsvorgänge bei den Trypanosomen, welche Schaudinn gemacht hat, von keiner Seite haben bestätigt werden können.
[S. 277]
IV. Biologie der Protozoen.
Unter der Bezeichnung „Biologie“ (im engeren Sinne) fassen wir die teleologischen Beziehungen des Baues und der Lebenserscheinungen von Organismen zu den Bedingungen ihres „Lebensraumes“ zusammen. Ueberall in der belebten Natur finden wir solche Beziehungen, welche wir als zweckmäßig beschreiben, weil wir sie als erhaltungsgemäß erkennen, d. h. als geeignet, einen Einzelorganismus oder die betreffende Art am Leben zu erhalten. Den unendlich vielgestaltigen Variationen, welche die Lebensverhältnisse der Organismen annehmen können, entsprechen ebenso mannigfaltige Besonderheiten der letzteren, durch welche sie instand gesetzt werden, den speziellen Gefahren ihres Lebensraumes zu entgehen, seine speziellen Vorteile auszunützen.
Wie bei allen anderen Organismen erkennen wir auch bei den Protozoen solche Besonderheiten, welche auf ihren Bau, auf Physiologie, Lebensgewohnheiten, Fortpflanzungsweise usw. sich erstrecken können. Wir bezeichnen sie als Anpassungen oder adaptive Merkmale und stellen sie den organisatorischen Merkmalen gegenüber. Wie eine Verkleidung, welche oft dem Scharfsinn des geübten Beobachters große Schwierigkeiten bereitet, umgeben sie das eigentliche Wesen jeder einzelnen Art. Wir sind durch viele Tatsachen genötigt, anzunehmen, daß die Vererbung mit größter Zähigkeit jene Merkmale festhält, welche wir als organisatorische betrachten: es sind das die generellen Merkmale, welche die Grundlage des natürlichen Systems bilden. Wir halten diese Merkmale für so wichtig und für organisatorische, weil sie vielen Formen gemeinsam sind, trotz des vielfachen Wechsels der Existenzbedingungen, welchem jene unterworfen sind. Wir betrachten sie als ererbt, als Anzeichen von Verwandtschaft, und machen sie daher zum Fundament des natürlichen Systems. Sie dienen uns vornehmlich zu Unterscheidungen der höheren Kategorien des Systems: der Klassen, Ordnungen, Familien.
Von den adaptiven Merkmalen nehmen wir an, daß sie in viel höherem Grade dem Einfluß der Lebensbedingungen unterworfen sind. Wir sehen sie mit den letzteren vielfach sich ändern, und so nehmen wir an, daß sie allmählich unter dem Einfluß der Lebensbedingungen entstanden sind und vielfach noch entstehen können. In den speziellen Anpassungen erkennen wir in der Regel die unterscheidenden Merkmale näher verwandter Formen. Wir müssen daher fast ebenso vielfältige Anpassungen unterscheiden, als wir Arten [S. 278]kennen. Es ist daher geraten, die Besprechung der biologischen Besonderheiten in den speziellen Teil dieses Buches zu verlegen und sie zugleich mit der speziellen Systematik abzuhandeln. Hier an dieser Stelle sollen nur die allgemeinen Fragen behandelt werden, soweit sie nach dem bisherigen Stand der Forschung eine zusammenfassende Schilderung ermöglichen. Dabei werden naturgemäß diejenigen Probleme etwas ausführlicher gewürdigt werden, welche mit dem speziellen Zweck dieses Buches zusammenhängen.
A. Vorkommen und geographische Verbreitung der Protozoen.
Die Protozoen sind Feuchtigkeitsbewohner, nur wo Wasser in flüssiger Form vorhanden ist, vermögen sie zu gedeihen. Vergeblich werden wir Protozoen in trocknem Sand und Staub, auf trocknen Oberflächen von Gesteinen oder Organismen suchen. Wir werden an solchen Stellen wohl gelegentlich Dauerzustände (s. unten) von Protozoen finden, aber die aktiven Stadien brauchen Wasser zum Leben und würden ohne dieses zugrunde gehen.
Wo aber Wasser vorhanden ist, da finden wir auf der ganzen Erde Protozoen, wenn nicht dessen Temperatur das Leben von Organismen überhaupt ausschließt und wenn nicht der Mangel oder das Vorhandensein von Beimengungen Schädigungen besonderer Art mit sich bringen. Die Meere aller Breiten und die süßen Gewässer von den Polen bis zum Aequator sind von der unendlichen Formenmannigfaltigkeit der Protozoen erfüllt. Und wo Schlamm, Erde, Sand Feuchtigkeit genug enthalten, um auch nur wenige Tage oder Stunden nachzuhalten, da finden wir — wenn auch in beschränkter Arten- und Individuenzahl — lebende Wesen aus dem Stamme der Protozoen. So hat Greef in der Amoeba terricola und anderen Formen häufige Bewohner feuchter Erde nachgewiesen. In dem Staub der Dachrinnen, in kleinen Regenwasseransammlungen in Löchern der Felsen, in dem voll Wasser gesogenen Polster der Moosrasen, überall finden wir Protozoen, welche oft nach einem Regenguß nur für kurze Stunden nach dem Verlassen ihrer Dauercysten das freie Dasein genießen. In den Wasser sehr intensiv zurückhaltenden Moosrasen findet man oft ziemlich viel Ciliaten und Flagellaten neben Rhizopoden. Die Ciliaten sind meist Formen, welche sich mit Hilfe ihrer Cysten leicht verbreiten (Colpoda cucullus, Chilodon cucullulus, Glaucoma scintillans, Stylonychien, Vorticellen etc.).
Diese weite Verbreitung von Protozoen selbst an so ungünstig scheinenden Oertlichkeiten gilt nicht nur für unsere regenreichen Gegenden, auch der Staub der trockenen Gebirge Zentralasiens und der Wüsten Asiens, Afrikas und Amerikas enthält die Dauerstadien von Protozoen, wie dies namentlich durch die Forschungen Ehrenbergs in der ersten Hälfte des vorigen Jahrhunderts nachgewiesen wurde. Der Staub auf den Gletschern der Hochgebirge und der Polarzonen und auf den Eisbergen kann unter günstigen Verhältnissen, wenn die Strahlen der Sonne an der Oberfläche des Schnees oder Eises eine dünne Wasserschicht entstehen lassen, eine üppige Protozoenfauna aus sich entstehen lassen; zu einer gewissen Berühmtheit ist der kleine Flagellat Haematococcus gelangt, welcher die Ursache zu dem Phänomen des „blutigen“ Schnees ist, indem er [S. 279]manchmal ganze Flächen mit einem blutroten Hauch überzieht, welcher aus Millionen der kleinen Organismen gebildet wird.
Diese weite Verbreitung verdanken Protozoen des süßen Wassers ihren Dauerstadien. Dieselben werden durch den Wind weithin verbreitet; sie können oft lange Zeit in der Luft schwebend zubringen, da sie nur kleine Bruchteile eines Milligramms wiegen. Vielfach werden sie auch durch Wasservögel und Wasserinsekten an den Beinen verschleppt, und aus dem Schlamm, der an den Beinen solcher Tiere hängt, kann man oft interessante Protozoenformen züchten. Diese weitgehende Verbreitungsmöglichkeit hat für die Protozoen des Süßwassers eine tiergeographische Tatsache von großer Bedeutung zur Folge: die Mehrzahl derselben ist ausgesprochen kosmopolitisch.
Dieselben Infusorien, Rhizopoden, Flagellaten, welche wir in Deutschland in unseren Tümpeln finden, gibt es auch in Indien und Afrika, in Süd- und Nordamerika, in Sibirien, Australien, Grönland und Feuerland. Das ist zuerst durch die Untersuchungen von Ehrenberg, dann durch Schewiakoff u. a. bekannt geworden. Zwar hat man von Zeit zu Zeit immer wieder geglaubt, Protozoenfaunen von besonderer Eigenart in klimatisch besonders eigenartigen Teilen der Erde zu entdecken. Aber immer wieder wurde diese Annahme dadurch widerlegt, das man dieselben Formen später auch bei uns auffand. Wenn auch vielleicht mit der Zeit einzelne Formen sich als spezifisch für bestimmte Gegenden der Erde werden nachweisen lassen, so ist das doch bis heute für keine Form gesichert. Vielmehr können wir daran festhalten, daß jedenfalls alle typischen Tümpelbewohner kosmopolitisch sind.
Anders verhält es sich scheinbar mit den Meeresprotozoen. Da treten uns Verschiedenheiten entgegen, welche uns z. B. manche Formen des Indischen Ozeans von solchen des Atlantischen, manche Formen der Tropen von denen der polaren Zonen zu unterscheiden erlauben. Doch sind die marinen Protozoen bisher viel zu wenig genau durchgearbeitet, um solche Verschiedenheiten mit aller Sicherheit feststellen zu lassen. Viele Formen sind dagegen auch im Meer weltweit verbreitet, ich erinnere nur an die Cystoflagellate Noctiluca miliaris.
Eine bemerkenswerte Tatsache der Tiergeographie der marinen Protozoen ist aber deren Abhängigkeit von der Temperatur des Meerwassers. Wie für die übrige Meeresfauna, so gilt auch für die marinen Protozoen, daß wir Warmwasser- und Kaltwasserformen unterscheiden können. In den warmen Meeresgebieten gibt es andere Radiolarien, Dinoflagellaten, Tintinnen, als in den kalten. Daß dies biologisch begründet ist, werden wir unten noch zu erörtern haben.
Teils mit der Temperatur, teils mit anderen biologischen Vorbedingungen hängt es zusammen, daß nicht nur die horizontale, sondern auch die vertikale Verbreitung der Protozoen nach Arten, Gattungen und Familien eine verschiedene sein kann. Im Meer gibt es an der Oberfläche andere Radiolarien und Foraminiferen als in der Tiefsee, und für die mittleren Regionen sind wieder andere charakteristisch. So schweben die großen Formen aus der Gruppe der tripyleen Radiolarien meist in den mittleren Regionen zwischen 200–1000 m Tiefe, und die Challengeriden, Tuscaroriden etc. wurden [S. 280]erst durch die großen Tiefsee-Expeditionen in relativ großen Tiefen gefunden.
Die Klassen des Protozoenstammes sind sämtlich sowohl im Meer als auch im Süßwasser verbreitet. Das gilt aber nicht mehr für die Ordnungen. So sind die Radiolarien gänzlich und die Foraminiferen fast vollkommen auf das Meer beschränkt. Dagegen sind die Heliozoen vorwiegend Süßwasserbewohner, wenige unter ihnen kommen im Meer vor. Die Ciliaten dominieren im Süßwasser viel ausgesprochener als im Meer, in welchem eine Familie, die Tintinnoideen aus der Ordnung der Peritrichen, allerdings in einer unvergleichlich größeren Formenfülle vorkommt als im Süßwasser. Das gleiche gilt für die Dinoflagellaten. Die übrigen Mastigophoren scheinen im Süßwasser einen größeren Formenreichtum zu entfalten, doch ist gerade diese Gruppe noch wenig auf ihre marinen Repräsentanten untersucht.
Die Sporozoen hängen in ihrer Verbreitung als Parasiten von der Verbreitung ihrer Wirte ab. In den außereuropäischen Ländern ist ihr Vorkommen noch kaum untersucht. Für manche Gruppen, so für die blutbewohnenden Hämosporidien, ist eine größere Formenfülle, besonders an pathogenen Arten, für die Tropen nachgewiesen, was mit ihrer speziellen Biologie (der Uebertragung durch blutsaugende Insekten) zusammenhängt.
B. Habitus und Lebensweise.
Wie bei allen Tieren, so spiegelt sich auch bei den Protozoen im Habitus der Art die Lebensweise wider, welche sie führt. Wir haben schon oben im physiologischen Kapitel erörtert, daß die „Packer“ sich von den „Strudlern“ im Habitus sehr wesentlich unterscheiden. Erstere schließen sich in ihrer Körpergestalt den raschbeweglichen Formen an, sie müssen, um zu ihrer Beute zu gelangen, rasch das Wasser durchschneiden, und so sehen wir denn ihr Vorderende in der Regel verschmälert, ihre Umrisse schlank ohne weit vorragende Fortsätze, welche durch Reibung die Vorwärtsbewegung beeinträchtigen könnten. Das gegenteilige Extrem repräsentieren die typischen Strudler, welche in ihrem Körperumriß um so mehr Trichterform annehmen, je mehr sie eine festsitzende Lebensweise annehmen. Ihr Vorderende, welches nicht mehr zum raschen Durchschneiden des Wassers bestimmt ist, ist oft zu weitausladenden Fortsätzen entwickelt, welche dem Tier, wenn es vorübergehend freie Beweglichkeit annimmt, nur eine plumpe, taumelnde Fortbewegung gestatten.
Ein anderer interessanter Gegensatz als der zwischen Packern und Strudlern ist der zwischen Schwebformen und Bodenformen. Während ersterer naturgemäß vor allem bei den Ciliaten und Mastigophoren repräsentiert ist, finden wir für letzteren die besten Paradigmen in der Klasse der Rhizopoden. Die Radiolarien sind so gut wie ausschließlich Schwebformen, während die Hauptmenge der Foraminiferen zu den Bodenformen gehört. Dementsprechend ist der Habitus der Ordnungen entwickelt. Die Radiolarien sind ausgesprochene Planktontiere; lange Fortsätze ihres Körpers vermindern durch Erhöhung des Formwiderstandes ihre Sinkgeschwindigkeit, während gleichzeitig die Ausbildung von Gallerte und die Ansammlung von Oelkugeln in ihrem Körper das spezifische Gewicht desselben herabsetzen. Die mannigfaltigen Formen der Radiolarien zeigen stets auffällige [S. 281]Beziehungen zu der Aufgabe, welche sie zu erfüllen haben. Die langen Stacheln der allseitig symmetrischen Formen, die Verzweigungen und Auswüchse solcher Stacheln und die bei den lebenden Tieren lang ausgestreckten Pseudopodien erhöhen in wirksamer Weise den Formwiderstand. Die Kieselskelette, welche dem zarten Protoplasmakörper seine Festigkeit verleihen, sind in Form von Gitterkugeln und reichlich durchbrochenen Gehäusen ausgebildet, so daß mit größter Festigkeit ein geringer Aufwand an Material und dadurch ein geringes spezifisches Gewicht verbunden sind. Oft sind diese Skelettbestandteile so ausgebildet, daß ihre Trichter- oder halbkugeligen Formen einen noch erhöhten Reibungswiderstand veranlassen.
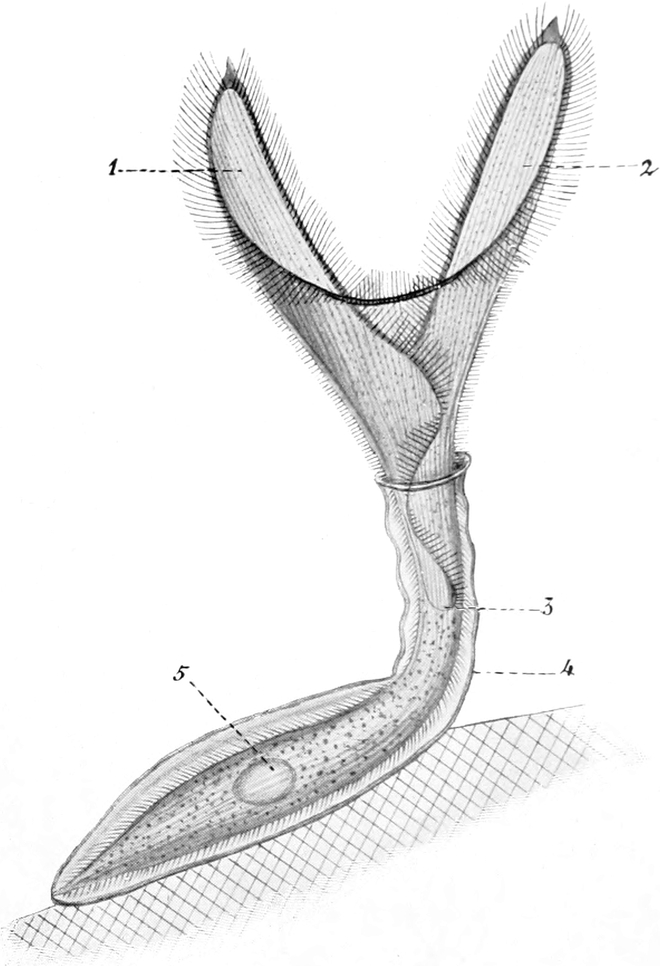
Die Foraminiferen sind dagegen reich an Formen, welche massige Schalen aus Sandkörnern und kohlensaurem Kalk besitzen, welche sie zum Schweben untauglich machen. Viele von ihnen haben ihre Beweglichkeit ganz oder temporär aufgegeben, indem sie an leblosen Gegenständen am Meeresboden oder auf Tieren und Pflanzen festgewachsen sind; andere bewegen sich langsam und träge am Boden der Gewässer.
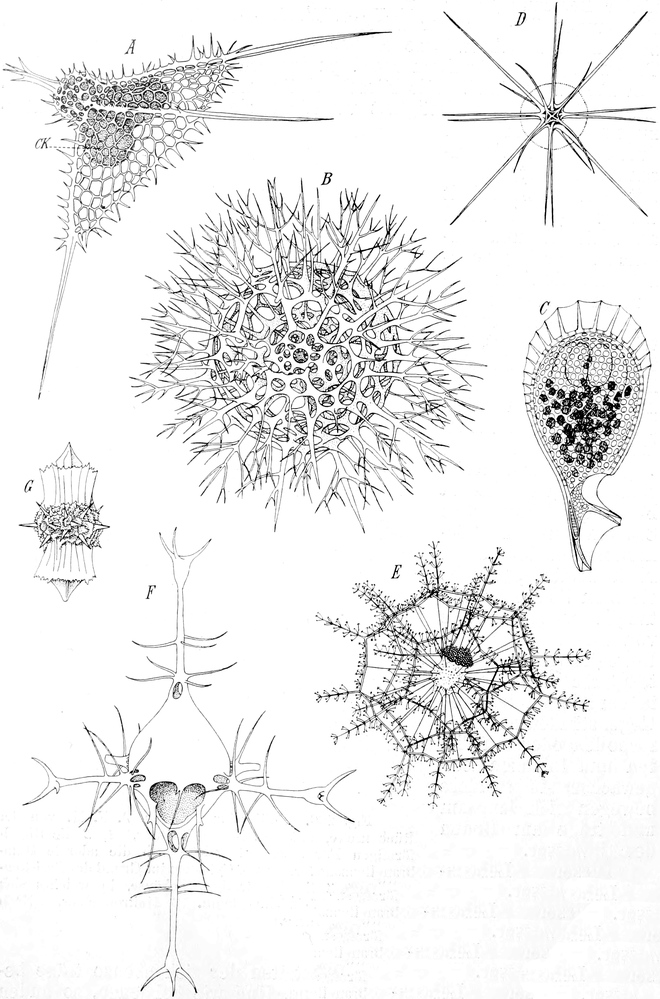
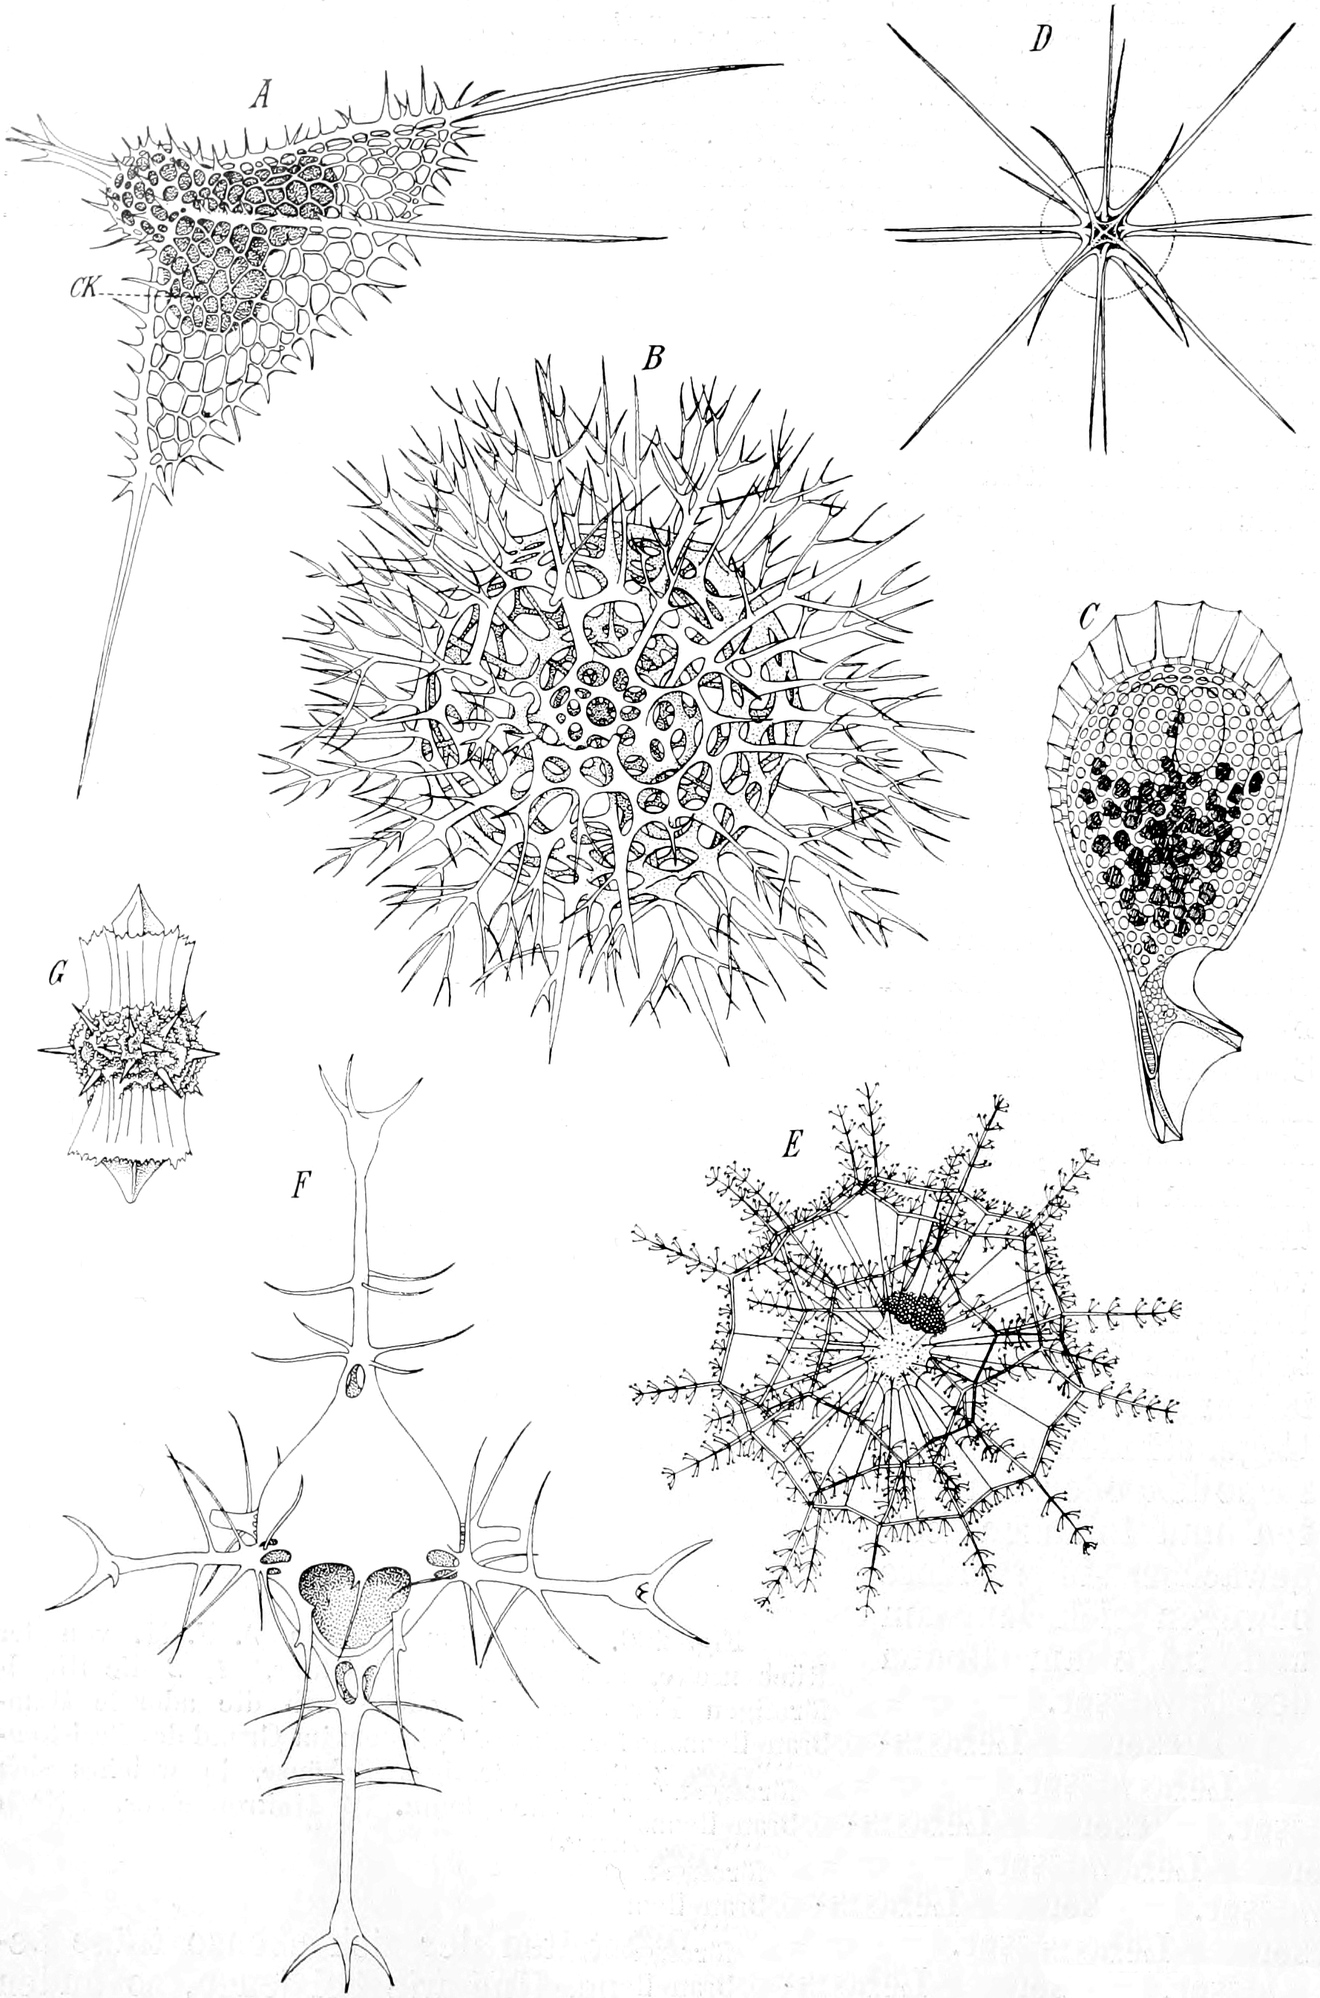
Dieser Lebensweise entspricht die Gestalt: in Platten-, Schüssel-, Napf-, Stern-, Schneckenformen usw. wiederholen diese Protozoen die Gestalten der sich ebenso träge bewegenden Mollusken des Meeresbodens. Und wie bei jenen, so finden wir bei ihnen mannigfache Modifikationen der Festigkeit der Gehäuse, je nach den Anforderungen, welche die Wasserbewegung ihres Aufenthaltsortes an deren Widerstandsfähigkeit stellt. Während die schwebenden Radiolarien, mit dem Wasser treibend, von dessen Gewalt keinen Schaden zu erwarten haben, sind die Foraminiferen [S. 283]der Brandungszone dem zerstörenden Anprall der Wogen ausgesetzt.
Rhumbler hat gezeigt, daß in sämtlichen Gruppen der Foraminiferen sich Entwicklungsreihen nachweisen lassen, indem sich eine zunehmende Festigkeit des Gehäuses heranbildet, wobei gleichzeitig ein möglichst großer Rauminhalt des Gehäuses und möglichste Einfachheit desselben „angestrebt“ wird.
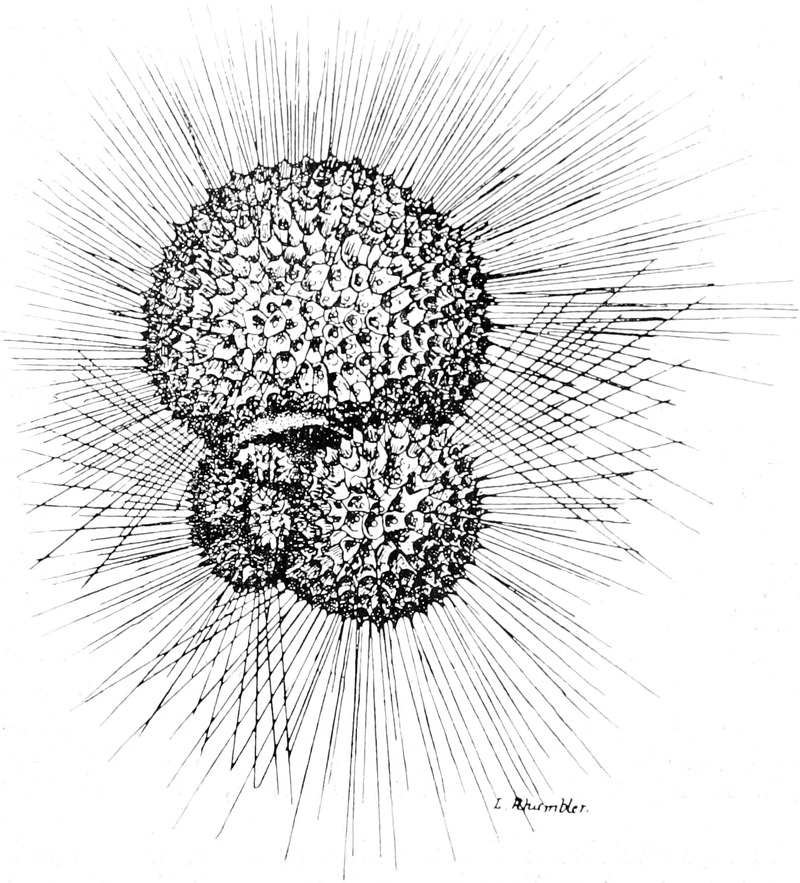
Formen mit besonders festem Gehäuse kommen nun vor allem auf dem Meeresgrund in geringer Tiefe vor: und daß an deren Schalen Festigkeitsansprüche gestellt werden, darauf weist eine Tatsache hin, welche schon Max Schultze hervorgehoben hat. In allen Grundproben findet man massenhaft zerbrochene und regenerierte Schalen. Und an solchen Stellen, wo starke Brandung herrscht oder wo die Wassertiefe sehr gering ist, ist der Prozentsatz regenerierter Exemplare ein sehr hoher (Peneroplis, Polystomella, Milioliden).
In den Tiefen des Meeres nimmt dagegen die Festigkeit der Schalen sehr ab, und in der Tiefsee finden wir Formen mit hinfälligem, zartem Schalenmaterial.
Eine Gruppe unter den Foraminiferen zeigt sogar mit der Anpassung an das planktonische Leben die entsprechenden Anpassungen, wie wir sie bei den Radiolarien kennen lernten. Es sind dies die Globigerinen, deren zarte Schalen durch feine lange Stachelfortsätze [S. 284]eine große Schwebfähigkeit gewinnen. Aber auch unter den Ciliaten und Flagellaten finden sich Formen, deren Habitus nicht weniger als durch die Art der Nahrungsaufnahme durch die Bewegungsweise beeinflußt ist. Unter den Ciliaten sind als Schwebformen die trichterförmigen Tintinnoideen, als spezialisierte Bodenformen die meisten der hypotrichen Infusorien hervorzuheben, deren dorsoventral abgeplatteter Körper die Bauchseite einer Unterlage zugewendet hält, indem die Cirren wie Beine hebelnd die Bewegung über diese Unterlage — den Boden, Steine, Pflanzen- und Tierkörper — vermitteln. Auch Formen aus anderen Gruppen (so Lionotus, Loxodes u. a. unter den Holotrichen) verbinden mit ähnlichem Aufenthaltsort eine ähnliche Gestalt. Unter den Flagellaten sind vor allem die Peridineen oder Dinoflagellaten in typischer Weise an ihre vorwiegend pelagische Lebensweise durch Ausbildung von Schwebfortsätzen etc. angepaßt. (Vgl. hierzu die Abbildungen im speziellen Teil.) Manche weiteren Beziehungen zwischen Habitus und Lebensweise werden unten und im speziellen Teil vor allem für die parasitischen Formen hervorzuheben sein.
Schließlich wäre in diesem Zusammenhang noch einer bemerkenswerten Abhängigkeit der Bewegungsform von der Gestalt, welche für viele Protozoen charakteristisch ist, zu gedenken. Sehr viele Flagellaten und Ciliaten sind durch eine mehr oder weniger auffallende Asymmetrie ihrer Körpergestalt ausgezeichnet; vielfach handelt es sich um keine eigentliche spiralige Torsion des Körpers, sondern nur um einen asymmetrischen Auswuchs, asymmetrisch gelagerte Organellen etc. Die Folge der Asymmetrie macht sich geltend, wenn bei der Vorwärtsbewegung der Reibungswiderstand des Wassers wirkt. Dann führen solche Formen eine rotierende Bewegung aus, sie bohren sich durch die von ihnen bewohnte Flüssigkeit hindurch. Ich erinnere nur an die zahlreichen Flagellaten mit dieser Bewegungsform: Eugleniden (vgl. Phacus), Trypanosomiden etc., ferner an ciliate Infusorien, wie Drepanomonas dentata, Urozona, Blepharisma und viele andere.
Solche asymmetrische Formen sind es auch, welche bei Schreckbewegungen ganz automatisch infolge ihres Baues eine charakteristische Aenderung ihrer Bewegungsbahn vornehmen, wie das schon oben im physiologischen Kapitel (S. 129 und 130) erörtert worden ist.
C. Anpassung der Ernährungsweise.
1. Allgemeines.
Die Packer und Strudler, welche wir oben unterschieden, zeigen, je höher ihre Gesamtorganisation ist, um so ausgesprochenere Anpassungen an die Art ihrer Nahrungsaufnahme. Während die Strudler in der Hauptsache Pflanzen-, Bakterien- und Detritusfresser sind, sind die Packer meistens Raubtiere, welche zur Bewältigung ihrer aus kleinen Metazoen und Protozoen bestehenden Beute einer gewissen Körperschnelligkeit und besonderer Modifikationen des Mundapparates bedürfen.
So finden wir bei manchen Formen die Fähigkeit entwickelt, ihre Mundöffnung und ihren Schlund ganz außerordentlich zu erweitern, um große Objekte verschlucken zu können (vgl. Coleps hirtus, S. 87, [S. 285]Fig. 102). Andere Formen sind durch besondere Anpassungen befähigt, größere Organismen, welche oft viel größer sind als sie selbst, zu bewältigen, indem sie deren Körper an einer Stelle anbohren und den flüssigen Inhalt heraussaugen. So verfahren die Vampyrelliden, welche vielfach pflanzliche Zellen (Algen, Diatomeen) anfallen. Auch Flagellaten (Colpodella pugnax) und Ciliaten (z. B. Didinium nasutum, Fig. 269) wenden diese Methode an. Bei letzteren ist der Bau der Mundregion, welche förmlich einen Saugrüssel darstellt, für diese Ernährungsweise sehr geeignet. Ueberhaupt besitzt eine ganze Anzahl der Ciliaten mit Reusenapparaten die Fähigkeit, diese in Form eines Mundzapfens vorzustülpen, um unter Erweiterung der Mundöffnung die Nahrung gegen das Entoplasma hineinzupressen. Manche Arten strecken dabei lippenartige Wülste vor (Trachelocerca). Mit Hilfe der die Mundröhre versteifenden Reusenstäbe vermögen sie im Verhältnis zu ihrer eigenen Körpergröße sehr umfangreiche Organismen zu überwältigen und hinabzuschlingen.
Wir erwähnten schon oben die Fähigkeit mancher Protozoen, durch Ausscheidung einer giftig wirkenden Substanz ihre Opfer zu lähmen. Wir führten dies für Rhizopoden und Suctorien an. Bei Ciliaten finden wir bisweilen ähnliche lähmende Einflüsse auf die Beute. Nach Blochmann u. a. ist die Lähmung bewirkt durch gewisse eigenartige Angriffswaffen der betreffenden Arten, durch „Trichiten“. Dieselben werden gewöhnlich mit den Trichocysten verglichen. Trichocysten sind im Corticalplasma liegende, besonders bei holotrichen Infusorien weitverbreitete stäbchen- und spindelförmige Gebilde, welche durch ihre starke Lichtbrechung auffallen. Sie sind vielfach in kleinen Gruppen an verschiedenen Stellen im Körper angehäuft oder ziemlich gleichmäßig über dessen Oberfläche verteilt, zu welcher sie senkrecht stehen. Bei Einwirkung von chemischen Reizen oder von Druck [S. 286]werden sie ausgeschnellt, wobei sie zu langen Fäden werden, deren Enden bei manchen Infusorien im Körper stecken bleiben (z. B. Lionotus), während sie bei anderen (z. B. Paramaecium [Fig. 270, 272]) ganz ausgestoßen werden. Man hat diese Bildungen als Angriffs- und Schutzwaffen gedeutet; doch ist diese Deutung unsicher, und es ist möglich, daß die Ausstoßung nur bei starken Reizen infolge von Quellungserscheinungen erfolgt.
Viel bestimmter sind die Angaben über die Trichitenapparate, welche sehr an die Reusenapparate erinnern und auch als deren morphologische Vorstufe betrachtet werden (vgl. Fig. 271 Enchelyodon farctus). Während die Reusenapparate auch bei starken Reizen nicht ausgeschnellt werden, werden die Trichiten bei Reizungen ausgeschnellt. Es sind wechselnde Zahlen von solchen meist in der Umgebung der Mundöffnung vorhanden, während Reservetrichiten im Körper an verschiedenen Stellen liegen können. Die Trichiten werden z. B. bei Trachelophyllum apiculatum nach Blochmanns Beobachtung [S. 287]beim Fang anderer Infusorien ausgeschleudert, worauf dieselben sofort wie gelähmt erscheinen, nur mehr zitternde Bewegungen mit den Bewegungsorganellen ausführen „und dann ganz bewegungslos allmählich hinabgewürgt“ werden.
Wie wir oben im Kapitel über die Physiologie der Protozoen (S. 81) schon erwähnten, fressen viele Protozoen alle möglichen organischen Bestandteile des umgebenden Wassers, lebende und tote Organismen, Teile von solchen und nehmen vielfach gleichzeitig anorganische Körper auf. Sie sind also im allgemeinsten Sinn omnivor. Ihnen stehen solche Formen gegenüber, welche nicht nur eine sehr spezialisierte Nahrung aufnehmen, wie die Chlamydodonten unter den Infusorien (fressen fast ausschließlich Diatomeen und Oscillarien), sondern manche Formen sind sogar extrem monophag. Amphileptus, Didinium, Lionotus, Dileptus u. a. fressen nur Ciliaten, Loxodes nur Protophyten, Amphileptus Claparedei sogar nur Vorticellinen. Die parasitischen Protozoen sind vielfach noch viel extremer spezialisiert, indem sie oft nur bestimmte Organe, Gewebe, Zellen oder sogar Zellkerne aufsuchen und deren Substanz zu ihrer Nahrung verwenden.
2. Saprozoen. Infusionstiere.
Wir haben oben gesehen, daß die Protozoen zur Entfaltung ihrer Lebenstätigkeit auf das Vorhandensein von Wasser angewiesen sind. Während nun aber an manchen Orten das Wasser von Protozoen wimmelt, ist es an anderen Orten von ihnen sehr spärlich bevölkert. Feuchter Sand z. B., den wir als gelegentlichen Wohnort von Protozoen angaben, enthält im besten Fall nur sehr spärliche Individuen. Das Wasser der Quellbäche und unserer gut angelegten Wasserleitungen ist ebenfalls sehr arm an Protozoen, es dürften sich kaum einige wenige Individuen im Kubikmeter finden.
Dagegen steigt die Zahl der Protozoen mit der Zunahme organischer Beimengungen; sie ist noch gering in den rascher fließenden Flüssen, aber schon in deren seichteren Uferregionen, den Sümpfen, Gräben, Seen, Teichen und Tümpeln finden wir normalerweise größere Zahlen. Besonders an den Stellen, wo Pflanzen verfaulen, wo dauernd oder gelegentlich Leichen von Organismen, organische Abfallstoffe u. dgl. ins Wasser geraten, da kann sich die Menge der Protozoen enorm steigern. In „gedüngten“ Teichen wimmelt es von solchen in großer Arten- und Individuenzahl.
Viele der Formen, welche an solchen Orten gedeihen, nützen die vorhandenen organischen Verbindungen nicht direkt aus; sie sind vielmehr Bakterienfresser. Die Bakterien ernähren sich von den gelösten organischen Verbindungen, und sie erst dienen vielen Rhizopoden und Ciliaten als Nahrung. So sind unter letzteren die Mehrzahl der Aspirotrichen (Paramaecium und Verwandte), der Peritrichen und manche Heterotrichen Bakterienfresser. Ihre kleine Mundöffnung, der geringer Erweiterung fähige Schlund erlaubt ihnen nicht, größere Organismen zu verschlucken, gestattet ihnen aber wohl die Aufnahme von allerhand anderen kleinen Organismen (z. B. Schwärmsporen) und von Trümmern organischen Materials (Fetzen von Tier- und Pflanzenleichen, Stärkekörnern, Fetttropfen etc.). Formen mit größeren Mundöffnungen und erweiterungsfähigem Schlund nehmen vielfach mit größeren Nahrungskörpern auch solche kleine Objekte auf.
[S. 288]
Wir können daher unter den Protozoen, welche geformte Nahrung aufnehmen, 4 Gruppen unterscheiden, welche aber nicht scharf geschieden sind:
- 1) Bakterienfresser,
- 2) Detritusfresser,
- 3) Pflanzenfresser (Algen- und Diatomeenfresser),
- 4) Kleinraubtiere.
Die meisten Formen nehmen eine gemischte Nahrung zu sich, relativ zahlreich sind Bakterien- und Detritusfresser, sehr wenige Formen sind reine Pflanzenfresser oder Kleinraubtiere.
Diesen Formen allen stehen die ohne Mundöffnungen sich ernährenden Protozoen gegenüber, welche also auf die Aufnahme gelöster Nährstoffe angewiesen sind. Die holophytischen Formen haben wir oben schon gewürdigt (S. 72).
Formen, welche ebenfalls ihre Nahrung in flüssiger Form durch Osmose durch die Körperwand aufnehmen, sind die Saprozoen (entsprechend dem Ausdruck Saprophyten, der angewandt wird, wenn es sich um pflanzliche Organismen handelt), viele Kommensalen und Parasiten. Wir haben ja oben (S. 77) gesehen, daß die holophytische Lebensweise direkt in die saprozoische übergehen kann. Bei solchen Formen wird organische Nahrung in gelöster Form aus der umgebenden Flüssigkeit aufgenommen. Wir finden derartige Protozoen in Wasseransammlungen, welche sehr reich an organischen Zersetzungsprodukten sind: in Mistjauche, in Dung und Kot, in Moorgräben, Sumpfwasser, in den Körperhöhlen größerer Tiere etc. Manche Formen kommen auch in den sogenannten Infusionen vor.
Es ist hier der Ort, über die Infusionen, welche in der Geschichte der älteren Protozoenforschung eine so große Rolle gespielt haben, einige Bemerkungen einzufügen. Unter Infusionen versteht man Aufgüsse von Wasser auf Heu, Stroh, Gras, Moos etc. Nach einigen Stunden bis Tagen treten in den Aufgüssen in großen Mengen die „Infusionstiere“ oder „Aufgußtiere“ auf, eine Anzahl von Protozoenarten, deren Dauerformen an und zwischen den verschiedenen übergossenen Gegenständen hafteten und durch den Einfluß des Wassers zu neuem Leben erweckt wurden.
Hauptsächlich sind es Ciliaten, und vor allem unter ihnen die Bakterienfresser, welche in solchen Infusionen auftreten. So vor allem Colpoda cucullus, Colpoda Steinii, Chilodon cucullulus, Paramaeciumarten, Vorticella microstoma usw.
Solche Formen sind es jedenfalls, welche stets in Infusionen von Protozoen als erste auftreten. Nachdem die organische Substanz der Infusion zuerst zahllose Bakterien hat keimen und wachsen lassen, erscheinen die bakterienfressenden Protozoen, auf solche folgen erst Formen, welche sich teils von Bakterien, teils von anderen Ciliaten ernähren (Stylonychia mytilus, Euplotes charon, Gastrostyla mystacea), und schließlich erscheinen die reinen Ciliatenfresser (Enchelys farcimen, Coleps hirtus etc.). Jede Gruppe erscheint erst dann in größerer Individuenmenge, wenn die nötige Nahrung für sie sich entwickelt hat.
Hat man durch Kochen Wasser und Infusionsmaterial keimfrei gemacht, so entstehen dennoch bevölkerte Infusionen, wenn man die Gefäße offen stehen läßt. Aus der Luft senken sich in das Gefäß Dauerstadien von Infusionsorganismen, welche — allerdings oft erst nach Verlauf einer geraumen Zeit — die Infusion reichlich beleben.
[S. 289]
Wie die Infusionen, so sind auch andere Wasseransammlungen von bestimmter Beschaffenheit durch eine Protozoenfauna von eigenartiger Zusammensetzung charakterisiert. In Mistjauche finden sich regelmäßig Euglena, Polytoma, Chlamydophrys stercorea und einige andere Formen. In natürlichen Wasseransammlungen, welche reichlich verwesende Pflanzenstoffe enthalten, und wo eine Entwicklung von Schwefelwasserstoff stattfindet, findet sich eine eigenartige Mikrofauna, welche Lauterborn als sapropelische Fauna bezeichnet hat. Die hierher gehörigen Formen müssen annähernd oder vollkommen anoxybiotisch (vgl. S. 97) sein. Zwischen zahlreichen Schwefelbakterien und Oscillarien findet man da hauptsächlich: Frontonia leucas Ehrb., Prorodon ovum Ehrb., Sprirostomum ambiguum Ehrb., Pelomyxa palustris Greef, Pelomyxa binucleata Gr. und andere Rhizopoden, dazu noch eine ganze Anzahl eigenartiger Ciliaten, welche bisher nur an solchen Orten gefunden worden sind: Dactylochlamys pisciformis Lauterb., Discomorpha pectinata Lev., Saprodinium dentatum Lauterb., Pelodinium reniforme Lauterb. usw. Diese Formen besitzen vielfach sehr auffallende, bizarre Gestalten und erinnern uns dadurch an die unter ähnlichen Verhältnissen vorkommenden Kommensalen bei Wiederkäuern und Insekten.
Die sapropelische Fauna ist nur biologisch, nicht physiologisch charakterisiert: wenn auch die extrem angepaßten Formen rein anoxybiotisch und saprozoisch leben werden, so sind doch viele Mitglieder dieser Fauna Bakterienfresser, Detritusfresser, Kleintierfresser, Allesfresser.
Wie schon vor längerer Zeit Bunge hervorgehoben hat, müssen wir annehmen, daß von ähnlich lebenden Formen die echten Parasiten sich entwickelt haben. Denn keine anderen Tiere leben in der freien Natur unter Verhältnissen, welche so sehr den Lebensbedingungen der in ganz oder fast ganz sauerstofffreiem Medium lebenden Darmparasiten ähneln, als die sapropelischen Formen. Und ähnlich wie bei letzteren finden wir auch bei den Parasiten alle Stufen der Ernährungsanpassung an die speziellen Lebensbedingungen. Wir können die Parasiten daher ebenfalls nur biologisch und nicht physiologisch charakterisieren, wie aus dem nachfolgenden Abschnitt hervorgehen wird.
3. Parasitismus bei den Protozoen.
a) Parasiten und Parasitismus.
Der Parasitismus ist, wie jede Eigenschaft, welche von Organismen der verschiedensten Abteilungen leicht erworben wird, sehr schwer scharf zu definieren. Denn es existieren die mannigfaltigsten Abstufungen und Uebergänge, welche z. B. räuberische Tiere mit Parasiten verbinden. Im Pflanzenreich ist die Abgrenzung durch die abweichende Form der Plasmasynthese gegeben; wollten wir dieselbe Definition, welche für den pflanzlichen Parasiten gilt, auf den tierischen übertragen, so müßte die Definition folgendermaßen lauten:
Parasitische Tiere sind solche, welche einem anderen Organismus Körpersubstanzen oder fertige Nährsäfte entziehen, indem sie dabei den Körper ihres Wirtes auf kürzere oder längere Zeit bewohnen.
Nun ist es aber üblich geworden, unter parasitischen Tieren alle diejenigen zu verstehen, welche sich „zum Zweck der Nahrungsaufnahme an oder in anderen lebenden Organismen aufhalten“.
[S. 290]
Unter diese Definition fallen aber eine ganze Menge von Tieren, welche dem Organismus weder etwas entnehmen, noch ihm irgendwie zur Last fallen.
Wir können nach ihrem Aufenthalt zwei große Gruppen unterscheiden:
- 1) Ektozoen, welche am Wirt, und
- 2) Entozoen, welche im Wirt sich aufhalten.
Nach der Ernährungsweise können wir sie weiter einteilen, und zwar in:
1) Symbioten, d. h. solche Gäste, welche zwar von ihrem Wirt einen Vorteil beziehen, ihm aber auch durch gewisse Eigentümlichkeiten ihrer Lebensweise nützen.
2) Kommensalen, d. h. solche, welche die Lebensweise ihres Wirtes zu ihrer Ernährung benützen, indem sie entweder von seinen Nahrungsabfällen oder von Stoffen sich nähren, welche unbenützt den Verdauungskanal des Wirtes passieren. Im letzteren Fall handelt es sich oft um Tiere, deren Lebensweise derjenigen der Pflanzen, welche sich von faulenden Substanzen ernähren, entspricht; man nennt ihre Lebensweise daher eine saprozoische. Alle diese Tiere stimmen darin überein, daß sie ihrem Wirt nichts entziehen, was zu seinem Gedeihen notwendig wäre.
3) Echte Parasiten, d. h. solche, welche der oben gegebenen ersten Definition entsprechen. Sie entziehen ihrem Wirt Körpersubstanz oder fertige Nährsäfte.
Wir können demnach insgesamt unterscheiden:
- 1) Ektokommensalen,
- 2) Entokommensalen,
- 3) Ektoparasiten,
- 4) Entoparasiten,
- 5) Ektosymbioten,
- 6) Entosymbioten.
Viele Parasiten besuchen ihren Wirt nur zur Nahrungsaufnahme; daher ist es manchmal praktisch, zwischen zeitweiligem (temporärem) und dauerndem (stationärem) Parasitismus zu unterscheiden.
Die wichtigsten in praktischer Beziehung sind die Entoparasiten, welche wir im speziellen Teil dieses Buches besonders ausführlich zu behandeln haben werden.
Nicht alle Gruppen der Protozoen waren gleich geeignet, Parasiten aus sich hervorgehen zu lassen; wir kennen bisher keine parasitischen Radiolarien und Foraminiferen. Und dies erscheint uns sehr natürlich, wenn wir bedenken, daß die typischen Vertreter dieser Gruppen des Protozoenstammes ebenso feste Anpassungen an ihre Lebensbedingungen aufweisen, wie etwa die Sporozoen an den Parasitismus; denn von diesen kennen wir wiederum keine nichtparasitischen Formen. Aus allen anderen größeren Gruppen der Protozoen sind aber Parasiten bekannt, sogar parasitische Dinoflagellaten sind neuerdings entdeckt worden.
Was die Wirte der parasitischen Protozoen anlangt, so ist hervorzuheben, daß keine Abteilung des Tierreiches von den letzteren verschont bleibt. Von den Protozoen selbst bis zum Menschen sind Angehörige aller Klassen und Ordnungen bisher schon als Wirte von parasitischen Protozoen nachgewiesen worden. Nur als Parasiten von Pflanzen scheinen sie selten in Betracht zu kommen. Das Vorkommen von gewissen amöbenartigen Formen bei holophytischen Flagellaten (Volvox, Haematococcus), sowie von Vampyrellen etc. bei Algen spricht nicht dagegen; denn diese Formen sind eigentlich als Zellräuber aufzufassen. [S. 291]Es blieben eigentlich nur die parasitischen Myxomyceten (Plasmodiophora) übrig. Die Ursache dieser merkwürdigen Tatsache ist nicht leicht zu verstehen.
In ihren Wirten bewohnen die Protozoen die verschiedensten Organe und Körperteile. Sie finden sich in der Haut, den Sinnesorganen, dem zentralen und peripheren Nervensystem, im Blut, im Darm und seinen sämtlichen Anhangsorganen, in Muskeln, Geschlechtsorganen usw. Ja sogar in Knochen und Knorpel sind jetzt parasitische Protozoen nachgewiesen. Je reicher an Flüssigkeit ein Organ ist, desto mehr scheint es dem Parasitismus ausgesetzt zu sein.
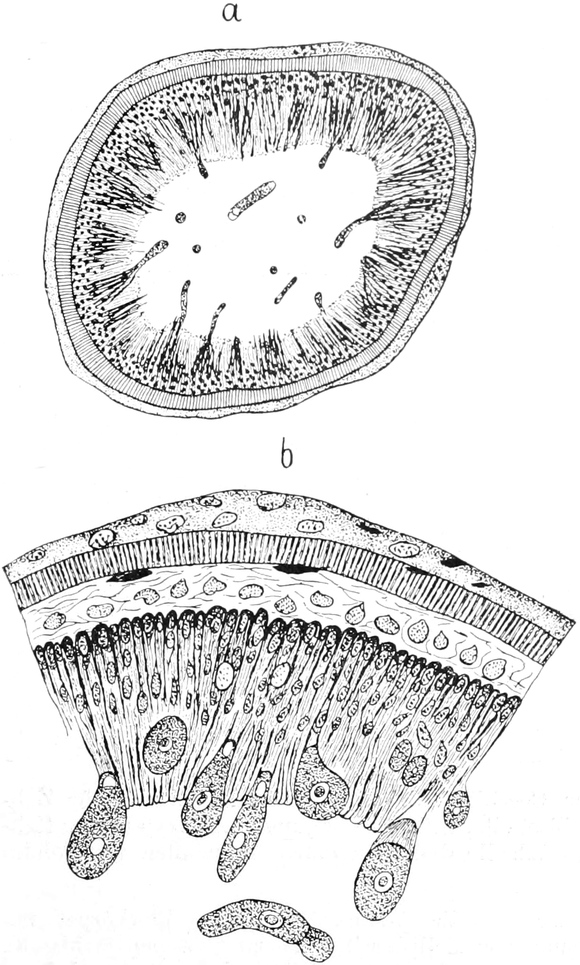
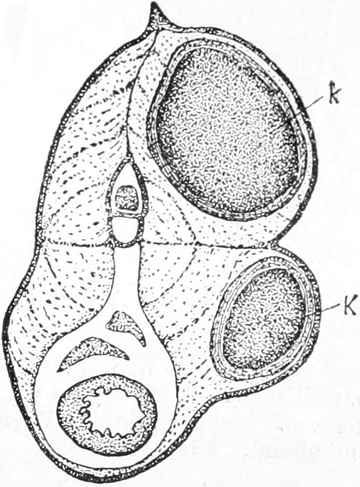
Nach dem speziellen Vorkommen können wir unter den Entoparasiten unterscheiden:
- 1) Organparasiten,
- 2) Gewebeparasiten und
- 3) Zellparasiten.
Organparasiten sind diejenigen Formen, welche die Hohlräume von Organen des Wirtskörpers bewohnen.
Gewebeparasiten bewohnen intercellular, entweder frei oder von Cysten, welche der Wirt aus Lagen von Zellen um sie herum bildet, umhüllt, das Innere von Geweben der Muskeln, des Nervensystems, der soliden Eingeweide usw.
Zellparasiten bewohnen die Substanz von Gewebezellen.
[S. 292]
Zu den Gewebeparasiten gehören beispielsweise auch Hautparasiten; soweit dieselben nicht ganz äußerlich nur aufsitzen, sondern im Gewebe schmarotzen, sind sie nicht als Ekto-, sondern als Entoparasiten zu bezeichnen.
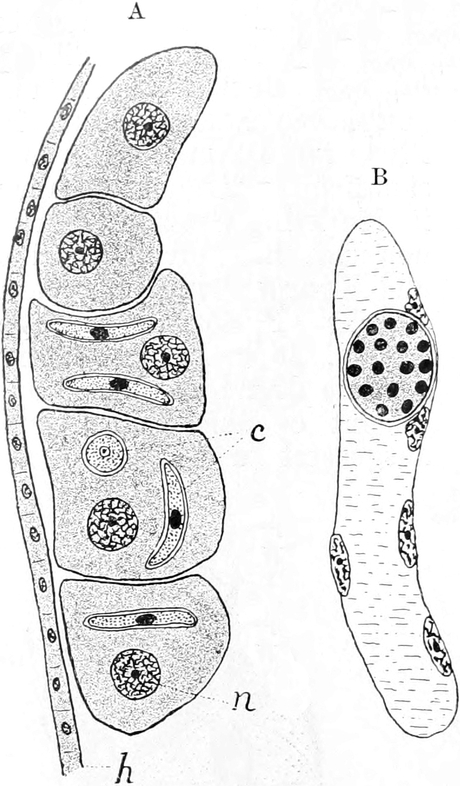
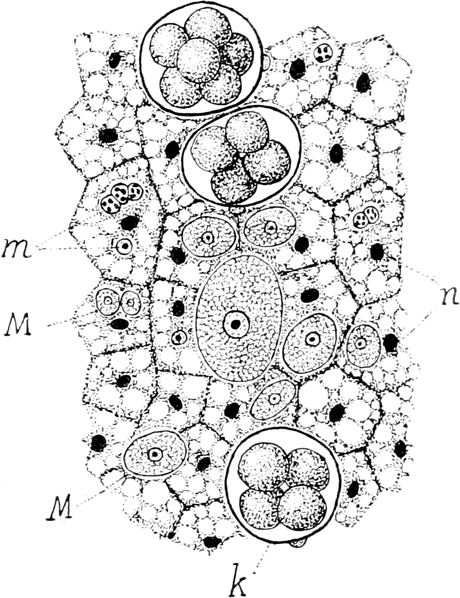
Eine besondere Spezialisierung unter den Zellparasiten sind die Kernparasiten, welche in den Zellkernen schmarotzen. Aber meist sind sie nicht obligatorisch an diesen Aufenthaltsort gebunden, sondern können ebensowohl den Zellleib bewohnen.
[S. 293]
Eine besondere Stellung nehmen auch Blutparasiten ein; dieselben sind natürlich, soweit sie in den Blutkörperchen schmarotzen, Zellparasiten (Hämosporidien); diejenigen aber, welche das Blutplasma bewohnen, sind als Organparasiten zu bezeichnen, mit welchen sie auch in der Lebensweise mehr übereinstimmen, als mit Gewebeparasiten (Trypanosomen).
Zellparasiten können zu Gewebeparasiten werden, indem die von ihnen bewohnten Zellen zugrunde gehen, so daß sie in den intercellularen Lücken liegen bleiben.
b) Einfluß des Parasitismus auf Parasiten im allgemeinen.
Die besonderen und eigenartigen Verhältnisse, unter welchen Parasiten leben, bringen es mit sich, daß sie sich oft ganz erheblich von ihren freilebenden Verwandten unterscheiden. Die Veränderungen sind umso bedeutender und tiefer greifend, je ausgebildeter der Parasitismus ist; sie sind also fortgeschrittener bei Entoparasiten als bei Ektoparasiten.
Sie können zweierlei Art sein: erstens erwerben die Parasiten neue Eigentümlichkeiten und zweitens bilden sie Organe und Fähigkeiten zurück oder verlieren sie gänzlich.
Rückgebildet werden Bewegungsorgane, Sinnesorgane, Schutzhüllen, aber auch ganze Entwicklungsstadien: sogar die Apparate zur Aufnahme, Zerkleinerung und Verdauung der Nahrung können der Rückbildung unterliegen. Denn alle diese Dinge sind für den Parasiten nicht mehr notwendig — je nach der Art seines Parasitismus — und sind auf einer mehr oder weniger fortgeschrittenen Stufe der Rückbildung, je nachdem das Tier an den Parasitismus mehr oder weniger hoch angepaßt ist.
Erworben werden von Parasiten zunächst Vorrichtungen, um sich im Wirt festzuhalten, also Haft- und Klammerorgane, welche Haken, Saugscheiben usw. darstellen können.
Die hauptsächlichen Veränderungen der Parasiten betreffen aber die Organe und Vorrichtungen, welche der Fortpflanzung dienen. Bei den Metazoen unter ihnen ist die Befruchtung durch Hermaphroditismus gesichert, Vervielfältigung der Geschlechtsorgane und andere Anpassungen wirken zum gleichen Ziel.
Vor allen Dingen pflegt aber bei den Parasiten die Fruchtbarkeit auf das ungeheuerlichste gesteigert zu sein. Parasiten bringen an Nachkommenschaft oft das Vieltausendfache von dem, was ihre freilebenden Verwandten produzieren, hervor.
Ganz selten nur entwickeln sich die Nachkommen parasitischer Organismen an dem Orte, wo sie entstanden sind. Meist verlassen sie ihre Eltern und damit ihren Wirt in einem Zustand, der eine Weiterentwicklung nicht zuläßt, ohne daß bestimmte Wanderungen und schließlich die Einwanderung in einen neuen Wirt erfolgt sind.
Eine der interessantesten Erscheinungen des Parasitismus stellen die Zwischenwirte dar. Zwischen die geschlechtsreifen Generationen eines Parasiten schalten sich Zwischengenerationen ein, welche in Wirten aus anderen Tierarten schmarotzen. Meist besteht auch zwischen den beiden Wirten ein Zusammenhang, indem z. B. der Wirt des jüngeren Zustandes des Parasiten die Jagdbeute des Wirtes des geschlechtsreifen Zustandes, eines Raubtieres, ist.
Wir sehen also, daß der Parasitismus einen sehr bedeutenden Einfluß auf die Gestaltung und Entwicklung der Parasiten hat.
[S. 294]
c) Die Protozoen als Parasiten.
Auch die parasitischen Protozoen zeigen zahlreiche Anpassungen, durch welche sie die Vorteile ihres nahrungsreichen Aufenthaltsortes ausnützen und seinen Nachteilen begegnen. Diese Anpassungen sind um so einseitiger, je mehr das Tier von seiner parasitischen Ernährungsweise abhängig geworden ist. Wir sehen ja bei den Protozoen alle Uebergänge von Kommensalismus zu echtem Parasitismus.
Sie sind um so einseitiger auch, je mehr die Parasitenspecies von der Wirtsspecies abhängig ist. Es sind ja die parasitischen Protozoen verschieden streng an ihren Aufenthaltsort gebunden. Während manche Formen sehr einseitig angepaßt sind, gibt es auch solche von weitgehender Vielseitigkeit.
Bemerkenswert ist schon die Tatsache, daß manche Gruppen von Parasiten auf bestimmte Gruppen von Wirten beschränkt sind: so die Sarcosporidien auf luftatmende Wirbeltiere, während Gregarinen bei Wirbeltieren noch gar nicht gefunden wurden.
Vielfach sind Sporozoen, Flagellaten usw. so eng an ihren Wirt angepaßt, daß wir aus der gleichen Parasitengattung verschiedene Arten bei den verschiedenen Arten einer Wirtsgattung finden; jede davon kommt nur in ihrem Wirt vor und kann auf seine Verwandten nicht übertragen werden.
Ein Beispiel von strenger Gebundenheit an den Wirt scheinen die Parasiten der menschlichen Malaria (die Agameten der Plasmodiumarten) darzustellen. Man findet sie ausschließlich beim Menschen. Die Befruchtung findet dagegen in einer ganzen Reihe von Anophelesspecies statt, in denen die metagame Vermehrung abläuft. Aber sie sind immer auf die Gattung Anopheles beschränkt und nicht imstande, bei den nächsten Verwandten dieser Schnakengattung, z. B. bei Culexarten, zu gedeihen.
Aehnliches gilt für zahlreiche Blut- und Darmparasiten usw.; vielfach sind solche in nahe verwandten Wirten unter ähnlichen Bedingungen vorkommenden Parasiten morphologisch wohl unterscheidbar (z. B. viele Myxosporidien der Fische). In anderen Fällen sind aber die morphologischen Unterschiede gering oder fehlen ganz (für unser Wahrnehmungsvermögen); dann sind aber z. B. bei Spirochäten und Trypanosomen deutliche biologische Unterschiede vorhanden, indem eine Art z. B. nur in ihrem eigenen Wirt sich gut vermehrt, während sie in allen anderen nur kümmerlich oder gar nicht gedeiht; auch sind durch die Methode der Blutbiologie dann chemische (Stoffwechsel-)Unterschiede der Formen nachweisbar. Die Versuche zeigen, daß bei solchen extrem angepaßten Parasiten die einseitige Anpassung verschieden streng fixiert sein kann. Wir vermuten, daß ein Parasit sehr innig an seine Wirtsspecies angepaßt ist, wenn er eine lange Reihe von Generationen nur in derselben gelebt hat, während Formen, welche oft ihren Wirt gewechselt haben, eine größere Labilität aufweisen.
Für manche Formen ist es ja bekannt, daß sie unter natürlichen Verhältnissen verschiedene Wirtsarten befallen, z. B. Trypanosoma Brucei, Coccidium cuniculi, Ichthyophthirius multifiliis usw.
Nahe verwandte Formen verhalten sich oft auffallend verschieden; während man z. B. Trypanosoma Brucei und Tr. Lewisi in Hunden nebeneinander im gleichen Blut züchten kann, verschwindet Tr. Brucei und nur Tr. Lewisi pflanzt sich lebhaft fort, wenn man von diesem Blut Ratten injiziert.
[S. 295]
Auch die Beziehungen der parasitischen Protozoen zu den Teilen des Wirtsorganismus sind je nach den Arten wechselnd. Während die einen nur ein Organ, nur ein Gewebe, ja nur eine bestimmte Zellenart aufsuchen, können andere in fast allen Teilen ihrer Wirte ihr Fortkommen finden.
So finden wir denn die merkwürdigen ciliaten Infusorienformen der Huftiere beim Pferd nur im Blinddarm, bei den Wiederkäuern nur im Pansen und Netzmagen vor. Die Mastigophore Lamblia intestinalis kommt nur im Dünndarm vor, die Gregarinen findet man nur in Darm, Cölom oder Geschlechtsorganen ihrer Wirte.
Die Coccidien sind stets Zellparasiten, und zwar kommen sie fast nur in Epithelzellen vor, die Hämosporidien sind in ihren agamen Stadien an die roten Blutkörperchen gebunden; die Sarcosporidien scheinen ausschließlich in Muskelzellen vorzukommen.
Im Gegensatz hierzu findet sich der Parasit der Barbenseuche, Myxobolus Pfeifferi, in fast allen Organen des Wirtes, im Bindegewebe des Darms, in Niere, Milz, Leber, Ovarium und vor allem in den Muskeln. Eine ähnlich weite Verbreitung in seinem Wirt hat der Erreger der Pébrinekrankheit der Seidenraupe, Nosema bombycis.
Im allgemeinen sind die Zellparasiten Arten, welche sich nur durch osmotische Stoffaufnahme ernähren, Organ- und Gewebeparasiten können sowohl diese Ernährungsform besitzen als auch geformte Nahrung aufnehmen; doch überwiegen unter den Organparasiten die Formen, welche geformte Nahrung aufnehmen, während unter den Gewebeparasiten die auf flüssige Nahrung angewiesenen Protozoen vorherrschen.
Je nach der spezifischen Form des Parasitismus, dem Ort, an welchem der Parasit seinen Sitz hat, und den Möglichkeiten, welche seine Lebensbedingungen für ihn darbieten, finden wir bei den parasitischen Protozoen jene Anpassungen ausgebildet, welche wir oben für die parasitischen Metazoen anführten.
Die Vorteile ihres Aufenthaltsortes, welcher ihnen fast immer einen Ueberfluß von Nahrung und Schutz vor äußeren Schädigungen darbietet, haben in der Regel eine Reihe von Rückbildungen zur Folge.
Bei vielen Formen finden wir Verlust der zur Nahrungsaufnahme dienenden Organellen.
Daß die meisten parasitischen Protozoen keine kontraktilen Vakuolen besitzen, ist wohl nicht als Rückbildung aufzufassen; denn sie teilen diese Eigenschaft mit vielen marinen Protozoen. Sie beruht wohl nur auf den osmotischen Druckverhältnissen.
Dagegen ist die Rückbildung des Ektoplasmas und seiner Differenzierungen, vor allen Dingen der Bewegungsorganellen, ein charakteristisches Kennzeichen vieler hoch angepaßten Parasiten. Wir sehen, daß bei ihnen die vegetativen Zustände unbeweglich sind, und nur in den Fortpflanzungsperioden tritt wieder das Bedürfnis nach Beweglichkeit und damit die Ausbildung der nötigen Organellen: Pseudopodien, Geißeln, Cilien ein.
Ebenso auffallend ist, daß z. B. bei Myxomyceten, Coccidien und Flagellaten Vermehrungsvorgänge, welche sich sonst in Cysten abspielen, frei vor sich gehen. Schutzhüllen brauchen eben diejenigen Zustände der parasitischen Protozoen, welche ganz im Körper des Wirts ablaufen, nicht, und daher sind auch keine solchen ausgebildet.
[S. 296]
Die Besonderheiten der einzelnen Aufenthaltsorte haben spezielle Anpassungen zur Folge. Werden die Parasiten z. B. von einem lebhaft bewegten Medium umspült, so verzichten sie entweder auf die freie Beweglichkeit oder sie besitzen besonders hoch entwickelte Bewegungsfähigkeit. Im ersteren Fall, bei Ektoparasiten und Darmparasiten, treten besondere Haftorgane auf, welche die Tiere an der Unterlage fixieren. So sind bei den Gregarinen oft komplizierte Haftapparate, Epimerite ausgebildet, mit denen sie während der längsten Periode ihres Lebens an dem Darmepithel ihres Wirts festhaften (vgl. Fig. 278 und 279). Manche Autoren (Léger) sind übrigens der Ansicht, daß die komplizierten Epimeritbildungen auch zum Aufsaugen von Nahrung aus den Zellen des Wirts dienen. Gemahnen uns diese Haftapparate der Gregarinen oft an die Hakenbildungen der Cestoden, so werden wir durch die Saugscheiben parasitischer Flagellaten und Ciliaten an Trematoden erinnert.
In der bewegten Blutflüssigkeit haften die Protozoen entweder an den Blutzellen oder in deren Innerem; oder sie besitzen eine geeignete Form, um mit Hilfe ihrer kräftigen Bewegungen im Blut schwimmen zu können. Im letzteren Fall befinden sich zahlreiche Blutparasiten: Spirochäten, Trypanosomen etc., welche alle durch eine langgestreckte, zu schlängelnden Schwimmbewegungen sehr geeignete Gestalt ausgezeichnet sind. Da nicht nur die Wanderformen von allerhand anderen parasitischen Protozoen, welche im Jugendzustand eine geeignete Entwicklungsstätte aufzusuchen haben, sondern auch zahlreiche andere unter ähnlichen Verhältnissen lebende Organismen einen solchen Formtypus besitzen, so ist es fraglich, ob wir ihn nicht stets als biologische Konvergenz ansehen müssen; das würde uns verhindern, vom Besitzer dieser Form auf Verwandtschaft der betreffenden Formen zu schließen.
[S. 297]
Die Wanderstadien von Zell- und Gewebeparasiten sind nicht selten durch Bohrerform des Körpers und Spitzen zum Eindringen besonders geeignet (vgl. z. B. Fig. 277).
Der Reichtum an Nahrung, welcher den Parasiten zur Verfügung steht, führt, wie wir sahen, oft zum Verzicht auf die Bewegungsfähigkeit. Auch dann kann noch eine erhöhte Ausnützung der Lebensverhältnisse dadurch gegeben werden, daß eine Vergrößerung der aufsaugenden Oberfläche eintritt. So erinnern uns darmbewohnende Gregarinen durch ihre langgestreckte Körperform an Bandwürmer (vgl. Fig. 280).
Die reichliche Nahrung äußert, wie ohne weiteres verständlich, ihren Einfluß vor allem bei der Vermehrung der parasitischen Protozoen: zunächst darin, daß entweder sehr zahlreiche Teilungen rasch aufeinander folgen (z. B. Trypanosomen), oder darin, daß die Individuen ein bedeutendes Wachstum zurücklegen, ehe sie mit einem Male in eine große Anzahl von Sprößlingen zerfallen. Die letztere Möglichkeit wird z. B. bei den Gregarinen verwirklicht, bei denen manche Arten eine Länge von 1 bis mehreren Millimetern erreichen (Porospora gigantea Taeniocystis).
So erreichen denn auch die parasitischen Protozoen jenen Grad von Fruchtbarkeit, welcher eine notwendige Voraussetzung ist, wenn eine Tierart, trotz der relativ geringen Chancen bei der Neuinfektion, sich als Parasit erhalten soll. Außer der Massenproduktion von Nachkommen bedarf aber ein Parasit noch besonderer Einrichtungen, um bei Lebzeiten seines Wirts oder nach dessen Tod seine Art auf andere Wirtsindividuen übertragen und damit erhalten zu können.
Bei Darmparasiten und anderen Formen, welche Organe bewohnen, die frei nach außen münden, genügt vielfach der bei den Protozoen so weit verbreitete Vorgang der Encystierung (s. unten), welcher den Tieren ermöglicht, in der Luft oder im Wasser (also in Medien, welche den freien Zuständen der Entoparasiten verderblich sind) zu verweilen, bis sie mit der Nahrung gelegentlich von einem neuen Wirtsindividuum aufgenommen werden.
Aehnlich werden die zur Neuinfektion bestimmten Individuen vieler Sporozoen mit einer festen Hülle umschlossen ins Freie entleert. Doch besteht gegenüber den gewöhnlichen Cystenbildungen der Unterschied, daß mit der Bildung der Dauerstadien ein Vermehrungsvorgang verbunden ist.
Der gewöhnlichen im Wirt vor sich gehenden Vermehrung — der multiplikativen Vermehrung — steht die propagative Vermehrung gegenüber.
[S. 298]
Die Cysten oder die Sporen können selbst wieder eine ganze Reihe von Anpassungen aufweisen: sie können Vorrichtungen zum Festhalten, zum Schweben, präformierte Oeffnungen etc. besitzen; alles Dinge, welche dazu beitragen, die Erhaltung und Ausbreitung der Arten zu sichern (vgl. unten S. 313).
Bei den meisten Formen ist auch dafür gesorgt, daß sie ins Freie gelangen können, ohne daß ihr Wirt zugrunde geht. Meist stehen die parasitischen Protozoen in sehr engen Beziehungen zu den Lebensverhältnissen ihres Wirts, so daß sie auf feine Schwankungen reagieren und mit seinem plötzlichen Tod zugrunde gehen, wenn nicht Zeit genug übrig war, um durch Bildung von Sporen oder Cysten Dauerzustände zu schaffen. Diese letzteren gelangen oft erst nach dem Zerfall der Leiche ihres Wirts ins Freie und damit in den Kreislauf ihrer Entwicklung. Viele Sporen und Cysten können lange Zeit unentwickelt liegen, ehe sie wieder in einen Wirt gelangen, während andere schon in kürzester Frist austrocknen und zugrunde gehen. Viele können erst durch den Darm von anderen Tieren unbehelligt hindurchwandern, ehe sie in den richtigen Wirt gelangen, um sich dort zu entwickeln.
Die Parasiten, welche die in sich geschlossenen Organe des Kreislaufs höherer Tiere bewohnen, können aber nicht ohne Vermittlung durch einen dritten Organismus eine neue Infektion verursachen. Bei ihnen kombiniert sich mit dem Generationswechsel (vgl. S. 223) noch der Wirtswechsel. Aehnlich wie bei parasitischen Metazoen verteilen sich die Stadien des Zeugungskreises dieser Formen auf zwei Wirte, von denen man denjenigen, in welchem die geschlechtlichen Vorgänge am Parasiten sich abspielen, als den eigentlichen Wirt, den Beherberger der agamen Stadien als den Zwischenwirt bezeichnet.
So werden die Malariaparasiten des Menschen und der Vögel durch blutsaugende Mücken aus den Gattungen Anopheles und Culex übertragen. Da nun die Geschlechtsreife, Befruchtung und metagame Vermehrung in den Insekten erfolgt, so bezeichnet man konsequenterweise den Menschen als den Zwischenwirt des Malariaparasiten.
Ein sehr interessantes Beispiel für die Verkettung eines Parasiten mit zwei Wirten sind die Aggregata-Arten unter den Schizogregarinen, deren agame Generationen in Krabben (detritus- und aasfressenden Tieren) vorkommen, während die geschlechtlichen Formen in Cephalopoden (also den Raubtieren, welche den Zwischenwirt fressen) gefunden werden.
An jeden der beiden Wirte, an seine Organisation und Lebensweise, sind solche Parasiten in allen ihren Stadien aufs innigste angepaßt. Nur durch das Zusammenwirken der Biologie der drei so verketteten Tierformen wird es dem Parasiten möglich, sich am Leben zu erhalten und fortzupflanzen. Ursprünglich ist diese Verkettung wohl sicherlich eine weniger enge gewesen, da die Blutparasiten mit Wirtswechsel von Parasiten der Blutsauger abgeleitet werden müssen, welche aus diesen in die Blutbahn des Zwischenwirts gerieten; dessen Blut bot ihnen wie eine künstliche Kulturflüssigkeit die Möglichkeit zu sehr bedeutender Vermehrung (multiplikativer Fortpflanzung), nicht aber die biologischen Vorbedingungen zur Befruchtung. Letztere finden sie auch jetzt noch in ihrem eigentlichen Wirt, in welchem allein die propagative Fortpflanzung stattfindet. Die Uebertragung [S. 299]auf neue Wirte ist bei solchen Parasiten von blutsaugenden Tieren sehr erschwert, da sie normalerweise nicht viel Nahrung aufnehmen, in welche Cysten oder Sporen geraten könnten; die große Verbreitung der Blutparasiten ist nur durch die ungeheure Vermehrung im Zwischenwirt gesichert. Aber es gibt bei ihnen noch eine zweite Uebertragungsform, welche es ihnen offenbar ermöglicht hat, sich in den blutsaugenden Tieren als Parasiten zu erhalten, auch solange noch keine Vermehrung im Zwischenwirt stattfand. Bei den meisten genauer untersuchten Formen finden wir Uebertragung durch direkte Vererbung. Bei Spirochäten (z. B. Duttoni), bei Herpetomonas muscae domesticae, bei Babesien, Plasmodien, Hämogregarinen, bei Haemoproteus, Leucocytozoon etc. wird Vererbung durch Einwanderung von Stadien des Parasiten in das Ovarialei des Wirts angegeben. Seit längerer Zeit ist ja Entwicklungsfähigkeit infizierter Eier schon bekannt, so bei den Seidenspinnern (Bombyx mori), deren Eier sich zu lebensfähigen, wenn auch kranken Raupen entwickeln, auch wenn sie durch den Erreger der Pébrinekrankheit, durch Nosema bombycis, infiziert sind. Ein Analogon hierzu bildet die Zellinfektion durch symbiotische Algen, welche ja in keiner Weise die normalen Entwicklungsvorgänge stört.
Während bei den Spirochäten die gewöhnlichen Stadien imstande sind, die Ovarialeier der Wirte zu infizieren, dienen hierzu bei den Malariaparasiten, wahrscheinlich auch bei Babesien u. a. besonders organisierte Stadien. Diese sind, wie es scheint, zu einer während der Entwicklung des jungen Wirtsorganismus vor sich gehenden Vermehrung befähigt.
So wird in Insekten, Zecken u. a. Wirten auch ohne Uebertragung auf den Zwischenwirt der Parasit eventuell generationenlang lebend erhalten. Es kann also der Fall eintreten, daß nicht diejenige Schnake, welche sich beim Menschen mit Plasmodien infiziert hatte, von neuem Menschen infiziert, sondern es kann auch vorkommen, daß dies erst durch ihre Nachkommen geschieht. Regelmäßig ist dies der Fall bei der Uebertragung der Babesien durch Zecken; die Babesien der Rinder werden stets erst durch die jungen Töchter derjenigen Zecke (Rhipicephalus annulatus), welche sich infiziert hat, übertragen. Dies ist ein sehr bedeutungsvoller Umstand, denn alte Zecken gehen nie von einem Wirt zum anderen; wenn sie von einem Rind, an welchem sie saugten, abfallen, so sterben sie nach kurzer Zeit. Einzelheiten über diese sehr interessanten und wichtigen Beziehungen der Parasiten und Wirte folgen im speziellen Teil.
Während die zahlreichen Anpassungen, welche wir bisher bei den parasitischen Protozoen kennen lernten, für jeden Fall spezifisch sind, müssen wir jetzt eine Gruppe physiologischer Anpassungen betrachten, welche eine weiter greifende Bedeutung haben. Alle Darmbewohner, alle Blutparasiten und wohl auch alle Zell- und Gewebeparasiten müssen in irgendeiner Weise gegen die chemischen Schutzmittel gefeit sein, welche den von ihnen bewohnten Teilen ihrer Wirte zur Verfügung stehen.
Eine schwer zu beantwortende und noch ungelöste Frage ist es, wie der Entoparasitismus überhaupt möglich ist, da doch sonst lebende Tiere im Innern, besonders im Darm, von anderen Tieren absterben und verdaut werden. Wie Frenzel schon hervorgehoben hat, berührt sich diese Frage innig mit der Frage, warum denn die lebenden Gewebe des Magens und des Darms selbst nicht verdaut werden.
[S. 300]
Nach neueren Untersuchungen scheint die Annahme sich zu bestätigen, nach welcher die Ursache zu diesem sehr merkwürdigen Verhalten der Parasiten in ihrer Fähigkeit zur Produktion von Antienzymen liegt. Unter einem Antienzym versteht man ein von dem Parasiten erzeugtes Enzym, welches z. B. bei Darmparasiten die Fähigkeit hat, die Verdauungsenzyme des Wirts unschädlich zu machen. Es würde sich dabei jeweils um ein bestimmtes Antienzym handeln, welches die Anpassung einer Parasitenspecies an ihren Wirt vermittelte.
Diese Antienzyme sind für die parasitischen Protozoen noch durchweg hypothetisch, dagegen sind sie für Metazoen in hohem Grade wahrscheinlich gemacht. Für Ascariden ist durch Weinland in der Tat nachgewiesen worden, daß durch ihre Körperextrakte die Verdauungsfermente ihrer Wirte unwirksam gemacht werden können.
Aehnliches wie für die Darmparasiten wird wohl auch für andere Organparasiten gelten.
Es verdient hervorgehoben zu werden, daß nach Prowazek parasitische Darmprotozoen (Flagellaten des Eidechsendarms) nicht als Individuen an die Verhältnisse im Darm des von ihnen bewohnten Wirtsindividuums angepaßt sind, sondern ohne Schaden den Darmsäften eines anderen Individuums der gleichen Art ausgesetzt werden können.
Wie dagegen andere Versuche verschiedener Forscher zeigen, werden Parasiten im Darm fremder Wirte zerstört; wenn sie in Cysten oder Sporen eingeschlossen sind, schlüpfen sie in der ungeeigneten Umgebung gar nicht aus.
Solche Wirte, welche durch fremde Parasiten nicht infiziert werden können, besitzen eine natürliche Resistenz gegen sie. So können Ratten nicht mit den Amöben der menschlichen Dysenterie infiziert werden[21]. Die natürliche Resistenz ist nicht stets sämtlichen Individuen der betreffenden Art gemeinsam.
Analoge Verhältnisse wie bei den Darmparasiten finden wir bei Gewebe-, Zell- und Blutparasiten. Wie im Darm nicht angepaßte Parasiten, wenn sie nicht in unverdauliche Hüllen eingeschlossen sind, verdaut werden, so werden in vielen Geweben des Tierkörpers durch die Gewebezellen, im Blut durch die Phagocyten, Parasiten aufgenommen und intracellulär verdaut. Gegen diese Form der natürlichen Resistenz der Gewebe sind wahrscheinlich viele Gewebe- und Zellparasiten angepaßt durch die Fähigkeit, ähnliche Antienzyme auszuscheiden, wie wir sie oben für die Darmparasiten anführten.
Solche Parasiten, welche gerade die natürliche Resistenz ihres Wirts auszugleichen vermögen, bilden die Masse der zahlreichen relativ harmlosen Parasiten, welche chronischen Parasitismus verursachen, ohne ihren Wirt erheblich zu schädigen. Wenn sie in geringer Zahl vorhanden sind, so haben sie nur einen geringen Einfluß; sind sie in größerer Menge eingedrungen oder hat eine erhebliche Vermehrung im Wirt stattgefunden, so können sie durch Gewebezerstörung und durch Materialentziehung ihren Wirt immerhin stark schädigen.
Die Krankheitserreger jedoch vermögen außer durch diese auch noch durch besondere Eigenschaften auf ihren Wirt, und zwar auf dessen Gesamtorganismus, einzuwirken. Wir sahen oben im [S. 301]Kapitel über die Verdauungsphysiologie der Protozoen, daß auch bei freilebenden Protozoen Giftausscheidung, welche zur Lähmung des Opfers, und Enzymausscheidung, welche zur Verdauung von dessen Leibessubstanzen führt, typische Vorkommnisse sind.
Nach meiner Ansicht müssen wir auch bei parasitischen Formen die entsprechenden Vorgänge voraussetzen. So kann denn die Schädigung des Wirts aus verschiedenen Vorgängen resultieren. In der Regel werden folgende in Betracht kommen:
- Mechanische Schädigung,
- Entziehung von Körpersubstanzen (Nährstoffe, Reservesubstanzen etc.),
- Auflösung resp. Verdauung der in der Umgebung des Parasiten vorhandenen Gewebsbestandteile, chemische Veränderung von Gewebssäften etc.,
- Giftwirkung auf die nähere Umgebung des Parasiten und eventuell auf ausgebreitete Gebiete des gesamten Wirtsorganismus oder bestimmte Zentren desselben.
1) Die mechanische Schädigung ist leicht nachweisbar bei Hautparasiten, wie Ichthyophthirius, welcher direkt die Epithelzellen zerstört und ihre Substanz frißt. Auch für Entamoeba histolytica wird angegeben, daß sie nicht nur direkt Teile des Gewebes aufnimmt, sondern auch bei ihren Bewegungen Zellen zur Seite drängt und so Schädigungen verursacht. Bei solchen Wanderungen durchbrechen derartige Parasiten eventuell den Schutzwall der Oberflächengewebe und ermöglichen dadurch anderen Parasiten das Eindringen. Ferner gehören hierher die Verstopfungen von feineren Blutgefäßen oder sonstigen Saftkanälen des Körpers (vgl. die Gehirnembolien bei Malaria).
2) Alle Gewebe- und Zellparasiten entziehen ihrer Umgebung die natürlicherweise zuströmenden Nährsäfte. Darauf ist es wohl zurückzuführen, daß bei Infektion durch Coccidien die Zellen substanzärmer werden; schließlich degenerieren sie gänzlich und zerfallen. Bei Muskelinfektionen, z. B. durch Myxobolus Pfeifferi, atrophieren die infizierten Muskelbündel und oft auch ihre Umgebung.
3) Die Auflösung der in der Nähe des Parasiten vorhandenen Gewebsbestandteile ist in manchen Fällen sehr deutlich. So z. B. bei der Infektion der Forellen durch die Lentospora der Drehkrankheit, bei welcher eine Auflösung und Zerstörung von Knochen und Knorpel stattfindet. In vielen anderen Fällen hat man den Eindruck, als fände eine Auflösung der umgebenden Gewebezellen durch den Parasiten statt, z. B. bei Entamoeba histolytica; aber es sind keine genaueren Untersuchungen darüber gemacht worden, und es ist bisher meist sehr schwer zu entscheiden, ob nicht Bakterien oder Körpersäfte des Wirts an der Auflösung schuld sind.
4) Eine Giftwirkung auf den Wirt findet in vielen Fällen unzweifelhaft statt, so bei Trypanosomen, Plasmodien, Babesien; die von ihnen erregten Krankheiten zeigen Symptome, welche mit Sicherheit auf eine Giftausscheidung schließen lassen. Auch sprechen die Abwehrvorgänge im Körper des Wirts dafür. Allerdings so intensiv wirkende Gifte wie bei den Bakterien kennen wir bisher bei Protozoen noch nicht. Der Krankheitsverlauf bei Protozoeninfektionen ist meist ein relativ langsamer. Es ist bisher erst in einem Fall gelungen, Protozoentoxine darzustellen. Ein solches typisches Gift haben Pfeiffer und Kasparek aus den Sarcosporidien gewonnen; dieses „Sarcocystin“ haben Laveran und Mesnil genauer [S. 302]untersucht und gefunden, daß es Kaninchen in kurzer Zeit tötete, wenn man es ihnen in Glyzerinlösung ins Blut injiziert.
Dagegen gelang es den letztgenannten Autoren ebensowenig wie früher Kanthack, Durham und Blanford, aus Trypanosoma Brucei ein spezifisches Gift darzustellen. Weder durch Gefrierenlassen, noch durch Austrocknen, noch durch Digerieren bei 42°C etc. konnten sie einen Impfstoff erhalten, der eine deutliche Giftwirkung ausübte. Novy und Mc Neal haben allerdings durch abgetötete Kulturen von Tr. Brucei, welche sie Meerschweinchen injizierten, Fieber, Gewichtsabnahme, lokale Ulzerationen herbeigeführt, was aber nicht ausschließlich Toxinwirkung zu sein braucht. Auch die neueren Versuche von Novy sind für diese Frage nicht entscheidend. Er hat allerdings gezeigt, daß Aufschwemmungen von Kulturen von Trypanosoma Lewisi in destilliertem Wasser, in denen die Körper der Trypanosomen vollkommen zerflossen waren, zu wiederholten Malen injiziert, eine deutliche Immunisierung herbeiführen. Das immune Blut so behandelter Ratten schützt auch gesunde Ratten gegen die Folgen einer simultanen oder separaten Injektion von infektiösem Blut. Daß es sich aber bei diesen Versuchen um echte Lösungen von Toxinen gehandelt habe, konnte nicht nachgewiesen werden, da Aufschwemmungen nach Filtration durch ein Berkefeld-Filter keine einwandfreien Resultate ergaben. Zudem ist einzuwenden, daß die Eiweißbestandteile der Trypanosomen an und für sich bei ihrer Injektion als körperfremdes Eiweiß Immunitätsreaktionen auslösen müssen. Nach Leber verursachen allerdings Trypanosomenextrakte beim Kaninchen eine parenchymatöse Entzündung der Cornea, was er auf das Vorhandensein eines Toxins zurückführt. Rosenau und seine Mitarbeiter geben an, daß filtriertes Blut von Malariakranken — aber nur dann, wenn es während der Höhe des Fieberanfalles entnommen würde — einen typischen Paroxysmus auslöst, obwohl derjenige, welchem es injiziert wird, parasitenfrei bleibt. Das deutet zwar auf das Vorhandensein eines durch die Zerstörung der parasitenhaltigen Blutkörperchen frei werdenden Toxins hin, aber es ist noch nicht sicher, ob dieser Giftstoff allein von dem Parasiten herrührt. Neuerdings mehren sich jedoch die Versuche, welche zeigen, daß bei den Trypanosomen Endotoxine vorkommen. Nach MacNeal, Martin, Plimmer, Leber u. a. ist die Temperatursteigerung und andere Symptome (z. B. Keratitis) nach erfolgreicher Medikamentbehandlung einer Trypanosomiasis dadurch zu erklären, daß aus den aufgelösten Trypanosomen Endotoxine ins Blut übertreten. Uhlenhuth, Hübener und Woithe geben an, daß Blut, welches Trypanosoma equiperdum enthält, wenn es bei 37° oder bei sehr großer Kälte getrocknet und dann wieder gelöst und injiziert wird, Ratten tötet; sie schreiben dies Endotoxinen zu. Beck erhielt toxische Wirkung durch Berkefeldfiltrate einer Aufschwemmung von Blut mit Trypanosoma gambiense in Kochsalzlösung. Ebenfalls ziemlich klare Beweise für das Vorkommen von Endotoxinen bei Tr. Evansi und Brucei erhielten Laveran und Pettit. Sie nahmen an, daß das Endotoxin nicht sehr giftig ist, daß es vom Körper meist sehr rasch eliminiert wird, daß es aber bei dauernder Einwirkung tiefgreifende Schädigungen verursacht. Ganz klargestellt sind also die Verhältnisse immer noch nicht.
Es sind also bisher bei Protozoen (mit der Ausnahme des Sarkocystins) weder Ektotoxine (d. h. in Wasser lösliche, durch die [S. 303]Körperwand des Organismus diffundierende Toxine) noch Endotoxine (d. h. an die Körpersubstanz gebundene, erst nach Zerstörung der Körperwand ins Freie geratende Gift) mit Sicherheit nachgewiesen und durch chemische oder biologische Methoden dargestellt worden. Bei Spirochäten ist es ja gelungen, durch Injektion abgetöteter Individuen Immunisierung herbeizuführen.
Daß aber giftig wirkende Substanzen in den infizierten Tieren auch durch die Trypanosomen und andere blutparasitäre Protozoen erzeugt werden, darauf weisen uns außer den Krankheitserscheinungen auch die Immunitätsreaktionen hin.
Wie der Parasit sich gegen die Verdauungsfermente des Wirts durch die Ausscheidung von Antifermenten verteidigt, so bildet der Wirt gegen die von dem Parasiten herrührenden schädlichen Stoffe als Abwehrreaktion „Antikörper“ verschiedener Art.
Wir wissen nicht, ob diese Antikörper, welche wir durch ihre Wirkungen nachweisen, und welche im Blutserum der Wirte in Lösung enthalten sind, eine Reaktion gegen die den Körper der Protozoen aufbauenden Eiweißsubstanzen oder gegen Verdauungsfermente oder gegen Gifte, welche von den Parasiten erzeugt werden, darstellen. In der Mehrzahl der Fälle erscheint letzteres wahrscheinlicher; es werden aber, wie auch bei den Bakterien, wohl alle 3 Möglichkeiten realisiert sein.
Auch freilebende Protozoen erzeugen in Kulturen wasserlösliche Stoffe, welche ihnen selbst und anderen Organismen schädlich sind. Es ist eine sehr auffallende Erscheinung, daß in sehr individuenreichen Protozoenkulturen bei längerer Kultivierung ein allgemeines Absterben eintritt, trotz genügender Sauerstoff- und Nahrungszufuhr, wenn man nicht häufig einen Teil der Kulturflüssigkeit wegnimmt und durch frische ersetzt. Nach dem Absterben der Kultur gelingt es auch nicht, in dem gleichen Wasser mit neuen Individuen eine gut gedeihende Zucht anzusetzen. Es ist also zu vermuten, daß in der Kulturflüssigkeit außer Kohlensäure und Exkretstoffen sich direkt schädigende Bestandteile anhäufen. — Uebrigens hat neuerdings Glaessner nachgewiesen, daß im Körper von Balantidium coli ein Hämolysin vorkommt. Landsteiner und Raubitschek haben angegeben, daß bei Trypanosomen eine hämolytische Substanz nachweisbar sei.
In den Wirtsorganismen entstehen nun durch die Wirkung der parasitischen Protozoen und die Reaktion des Wirts selber spezifische Antikörper, welche auf die betreffende Parasitenart eine schädigende Wirkung ausüben. Diese Antikörper lassen sich im Blutserum des Wirts nachweisen. Sie entstehen nicht nur bei Einwirkung von Parasiten oder Krankheitserregern auf den Wirt, sondern auch unter dem Einfluß von Protozoen, welche normalerweise nicht als Parasiten vorkommen. So hat Roessle nachgewiesen, daß nach subkutaner Injektion von Kulturen von Paramaecium caudatum und von Glaucoma scintillans bei Kaninchen ein spezifisches Serum gewonnen werden kann, welches je die betreffende Ciliatenart in charakteristischer Weise lähmt. Die Tiere verlieren die Bewegungsfähigkeit der Cilien, sinken in der Kulturflüssigkeit zu Boden und kleben an letzterem fest, ohne aber untereinander zu verkleben. Bei fortgesetzter Einwirkung wird auch die zur Einstrudelung der Nahrung dienende undulierende Membran gelähmt, die kontraktilen Vakuolen [S. 304]hören auf zu pulsieren, und die Tiere gehen allmählich zugrunde. Das spezifische Serum wirkt noch in 400-facher Verdünnung.
Dem gleichen Autor gelang es auch, durch intraperitoneale Injektion von vorher getrockneten und im Trockenschrank erhitzten Kulturen ein Serum von ähnlichen physiologischen Wirkungen zu erzielen. Während aber das erstere nach ½-stündiger Erwärmung auf 53° und darauf folgender Erhitzung auf 55–56° seine spezifischen Eigenschaften verliert, büßte das letztere merkwürdigerweise selbst bei Erhitzung auf 70° seine lähmende Wirkung nicht ein. Nach neuen Untersuchungen von Glaessner läßt sich auch durch Injektion von Balantidium coli ein ganz ähnlich wirkendes Serum erzielen.
Bei den parasitischen Formen müssen ähnliche Beziehungen zwischen ihnen und dem Wirt sich einstellen. Von Trypanosomen z. B. wissen wir, daß diejenigen Formen, welche nur leichte Erkrankungen hervorrufen, bei den geheilten Tieren aktive Immunität hinterlassen. So sind weiße und bunte Ratten, welche sich von einer Infektion mit Trypanosoma Lewisi aus der grauen Ratte erholt haben, immun gegen weitere Infektionen. Die Erkrankungen durch die eigentlichen pathogenen Trypanosomen (Tr. Brucei, Evansi, equiperdum etc.) verlaufen stets tödlich bei den hauptsächlich empfänglichen Tierarten; die etwas weniger empfänglichen Arten können sich (meist nach einer relativ leichten Erkrankung) erholen und erwerben dadurch ebenfalls aktive Immunität. Das gleiche gilt auch für Spirochäten; so tritt bei Spirochaete recurrentis nach der Heilung eine zwar kurz währende, aber deutliche Immunität ein, bei Sp. gallinarum ist sie absolut und langdauernd.
Das Blut von derart natürlich immun gewordenen Tieren vermag bei gesunden Tieren Immunität herbeizuführen, so daß sie einer Infektion widerstehen (sogen. passive Immunität). Auch können durch solches Immunserum bereits erkrankte Tiere geheilt werden. Gleichzeitige Injektion von Recurrensspirochäten, Hühnerspirochäten, Rattentrypanosomen und einer Dosis von gegen sie gewonnenem spezifischen Immunserum verhindert die Infektion, welche sonst prompt eingetreten wäre. — Aus den Erfahrungen der verschiedenen Forscher geht also hervor, daß wie bei Bakterienkrankheiten natürliche Immunität nicht eine schwere typische Erkrankung zur Voraussetzung hat, sondern daß zu ihrer Erzielung das Ueberstehen einer leichten Erkrankung genügt.
Es lag daher nahe, nach Analogie der Erfahrungen mit Bakterien zu versuchen, solche leichten Erkrankungen künstlich herbeizuführen, um dadurch künstliche Immunität zu erzielen. Eine solche leichte Erkrankung kann bedingt sein durch natürliche Verteidigungsmittel des infizierten Organismus und durch die geringe Virulenz der die Krankheit verursachenden Parasitenart.
Wie schon erwähnt, führt die natürliche Resistenz mancher Arten nach leichter Infektion zur Immunität. Auch die einzelnen Individuen einer Art sind für Protozoeninfektionen verschieden stark empfänglich. Doch lassen sich diese Tatsachen, wie wir gleich unten sehen werden, nur in indirekter Weise praktisch ausnützen.
Dagegen hat man die Tatsache, daß der jugendliche Organismus gegen die Protozoeninfektionen eine erhöhte Widerstandsfähigkeit besitzt, schon zur Erzielung von Immunität verwendet. Man hatte schon lange beobachtet, daß bei Infektionen mit Babesia, besonders der B. bigemina des Texasfiebers, die Kälber viel weniger schwer erkranken als die alten Tiere. Durch die leichte Jugendkrankheit erhalten [S. 305]die Rinder Immunität; allerdings sind in ihrem Blut dauernd spärliche Parasiten nachweisbar. Aber es kommt auch bei wiederholten Neuinfektionen nicht zu einem schweren Ausbruch der Krankheit. Aehnliches liegt bei dem afrikanischen Küstenfieber der Rinder vor, welches durch Babesia parva hervorgerufen wird.
Robert Koch hat in Neu-Guinea die wichtige Entdeckung gemacht, daß in Gegenden, in welchen Malaria das ganze Jahr hindurch herrscht, und in denen sie nicht mit Chinin behandelt wird, in ähnlicher Weise Immunität der Erwachsenen entsteht. Schon längst hatte man beobachtet, daß in solchen Gegenden von Fremden aller Rassen Malaria zu jeder Jahreszeit akquiriert wird, während die Eingeborenen alle scheinbar malariafrei sind. Das gilt aber nur für die erwachsenen Eingeborenen; Koch hat gezeigt, daß in solchen Gegenden (es ist seither für Afrika und andere Ländergebiete bestätigt worden) ein sehr hoher Prozentsatz der Kinder an Malaria erkrankt ist. Es resultiert eine hohe Sterblichkeit der Kinder an Malaria. Diejenigen Kinder, welche genesen, erlangen eine temporäre Immunität, welche zu einer dauernden wird, wenn sie in Gegenden bleibend wohnen, in denen sie immer wieder Neuinfektionen ausgesetzt sind. Es scheint auch, daß bei ihnen allmählich die Parasiten vollkommen aus dem Organismus verschwinden.
Analoge Erfahrungen hat Koch in Ostafrika bei dem durch Spirochaeta Duttoni erregten afrikanischen Zeckenfieber gemacht.
Auch sonst sprechen die Erfahrungen bei manchen parasitischen Protozoen dafür, daß bei chronischem Verlauf der Erkrankung eine gewisse Immunität eintreten kann. Nach Ueberstehung einer akuten Infektion gehen nicht alle Parasiten im Wirt zugrunde, das Tier wird zum „Parasitenträger“; ohne selbst mehr schwer krank zu sein, kann es jederzeit die Infektionsquelle für andere werden. Eine solche „Immunitas non sterilisans“ ist die Regel beim Trypanosoma Lewisi der Ratte, beim Froschtrypanosoma und den Trypanosomen des afrikanischen Wildes.
Man hat nun begonnen, diese Kenntnisse zur Erzielung von künstlicher Immunität zu verwenden. So hat man z. B. Rindern Blut von Tieren injiziert, welche einen Anfall von Texasfieber überstanden haben; und zwar eignen sich dazu besonders Kälber, denen man einige Wochen nach einem Anfall Blut entnimmt, in welchem sich dann nur ganz spärliche Parasiten nachweisen lassen. Von den in dieser Weise künstlich infizierten Tieren sterben weit weniger Exemplare als bei natürlicher Infektion; man nimmt an, daß die einverleibten Entwicklungsstadien der Babesien eine relativ geringe Virulenz besitzen.
Beim Küstenfieber verfährt man ebenso: die genesenen Tiere erweisen sich als immun und behalten ihre Immunität, solange sie in den verseuchten Gegenden bleiben, also so lange sie immerfort neuen Infektionen ausgesetzt sind.
Beim Texasfieber und Küstenfieber beherbergen die immunisierten („gesalzenen“) Tiere die Babesien dauernd in ihrem Blut. Sie stellen also eine stetige Infektionsquelle dar. Infolgedessen sind diese Immunisierungsverfahren, wenn auch lokal sehr nützlich, doch in ihrer Anwendung nicht unbedenklich. Nach Kleine und Möllers ist es aber möglich, bei solchen Tieren eine erbliche Immunität zu erzielen. Meines Wissens hat man bei Malaria noch keine Immunisierungsversuche [S. 306]mit Kindermalaria gemacht, welche auch großen technischen und ethischen Schwierigkeiten begegnen dürften.
Diese Immunisierungsverfahren beruhen also auf Schwankungen in der Virulenz der Parasiten; solche Schwankungen kommen nicht nur im Verlauf der Erkrankung eines Individuums vor, sondern es hat sich gezeigt, daß bei Babesien, Trypanosomen, Spirochäten „Stämme“ von verschiedener Virulenz „natürlich“, d. h. bei nicht experimentell erzeugten Erkrankungen vorkommen. Das gleiche gilt sicherlich auch für die Malariaplasmodien, deren Arten in manchen Fällen relativ leichte Erkrankungen verursachen.
Für Trypanosomen hat zuerst Koch bei Trypanosoma Brucei das Vorkommen verschieden virulenter Stämme hervorgehoben, was dann von Schilling, Martini u. a. bestätigt wurde. Schwach virulente Stämme kommen nicht nur natürlich vor, sondern lassen sich auch künstlich erzielen. Und zwar hat sie Koch z. B. dadurch gezüchtet, daß er Trypanosoma Brucei von Rindern auf Ratte, dann auf Hund und dann wieder auf gesunde Rinder impfte. Durch solche Passagen erzielte er eine Abschwächung der Virulenz, welche zu einer schwachen Erkrankung und im Gefolge zur Immunisierung führt. Die Trypanosomeninfektion bleibt allerdings chronisch, noch nach Jahren lassen sich, ähnlich wie bei der Immunität nach Jugendbabesiosis, im Blut so behandelter Rinder Parasiten nachweisen.
Schilling hat die mir durchaus berechtigt erscheinende Idee geäußert, „daß auch die natürlich vorkommenden Virulenzunterschiede bei Trypanosomen durch zufällige durch die Stiche der Tsetsefliege verursachte, abschwächende Passagen erfolgen könnten“ (zitiert nach Nocht und Mayer).
Vielleicht sind nicht nur Virulenzunterschiede bei Plasmodien, Babesien, Trypanosomen und Spirochäten, sondern auch viele der scheinbaren Speciesunterschiede durch den Einfluß von Passagen durch verschiedene Wirte und Zwischenwirte bedingt.
Außer der Passage durch minderempfängliche Tiere hat man auch andere Methoden zur Abschwächung der Virulenz pathogener Protozoen versucht. Einige Erfolge hat Novy bei Trypanosoma Brucei erzielt, indem er Kulturen vor der Injektion ca. 2 Tage bei 34° C züchtete. Doch wurde nur eine Verlängerung des Lebens der Versuchstiere, keine in Heilung übergehende Krankheit und keine Immunität erreicht.
Angesichts der kurzen Zeit, in welcher solche Forschungen betrieben werden, und der Schwierigkeiten, welche gerade die pathogenen Protozoen darbieten, ist es nicht erstaunlich, daß über die Natur der auftretenden Antikörper wenig Positives bekannt ist. Wir nehmen wohl mit Recht an, daß Antitoxine unter ihnen vorkommen, wie die oben gemachten Angaben zeigen. Lysine sind nur bei Spirochäten nachgewiesen worden; eine Auflösung von Körpern echter Protozoen unter dem Einfluß eines spezifischen Serums ist von keinem Forscher angegeben worden; dagegen ist, wie oben erwähnt, bei Balantidium ein Hämolysin gefunden worden.
Ueber das Vorkommen von Agglutininen können wir uns noch keine ganz klaren Vorstellungen machen.
Roessle hat bei seinen Versuchen mit Paramaecium und Glaucoma eine lähmende und die Tiere an der Oberfläche klebrig machende [S. 307]Wirkung des spezifischen Serums beobachtet, welche er mit der Agglutination in Parallele zu stellen geneigt ist. Bei Trypanosomen erfolgt nach Laveran und Mesnil (und später anderen Forschern) eine eigentümliche Verklebung der Individuen zu oft großen Rosetten unter dem Einfluß der Immunsera. Die Vereinigung erfolgt mit dem Hinterende in der Region des Blepharoplasts. Die gleiche Erscheinung wird auch unter dem Einfluß anderer Schädigungen beobachtet, und da die so vereinigten Tiere nicht immobilisiert, nicht abgetötet und nicht abgeschwächt werden, so unterscheidet man die Reaktion von der Agglutination und bezeichnet sie als „Agglomeration“. Agglomeration mit dem Vorderende hat bei anderen Arten („Stadien von Haemoproteus“) Schaudinn beschrieben; auch da tritt sie unter dem Einfluß verschiedener Schädigungen auf. Die Agglomeration erfolgt sowohl im Blut des lebenden Tiers als auch in vitro. In letzterem Falle konnte man beobachten, daß die agglomerierten Tiere sich später ohne bemerkenswerte Schädigung wieder voneinander lösen. Die Ursache, aus welcher die Verklebung der Trypanosomen mit dem Hinterende stattfindet, liegt nach Prowazek in der Rolle, welche der Blepharoplast bei diesem Phänomen spielt. Es verquillt dabei scheinbar ihre Pellicula zum Teil, und vor allem in der Region des Blepharoplasts tritt eine Art von Schleim auf, welcher zwischen den Tieren durch Färbung deutlich nachweisbar ist und sie miteinander vereinigt.
Bei Spirochäten tritt deutliche, echte Agglutinierung unter der Wirkung von Immunseren auf. So hat Zabolotny gezeigt, daß Spirochaeta pallida durch das Serum von Spätsyphilitikern zu großen Knäueln und Quasten agglutiniert wird; die agglutinierten Individuen zerfallen und werden aufgelöst.
Für Spirochäten wird von einzelnen Autoren eine abtötende Wirkung der Immunsera angenommen. Doch wird eine solche von guten Beobachtern (Levaditi) vollkommen in Abrede gestellt.
Bei typischen Protozoen ist eine solche ebenfalls angenommen worden; jedenfalls stimmen die Autoren in der Hervorhebung der wichtigen Rolle, welche die Phagocyten bei der Bekämpfung der Protozoenkrankheiten spielen, überein. Bei Trypanosomen wird zum Teil vorausgehende Lähmung durch die Wirkung der Antikörper angegeben (von anderer Seite bestritten), worauf Umfließung durch den Phagocyten und Verdauung in dessen Innern erfolge. Jedenfalls tritt durch hochwertige Immunsera nach den Versuchen von Laveran und Mesnil Immobilisierung der Trypanosomen ein. Auch bei Malaria nimmt man Absterben von Parasiten infolge des Vorhandenseins von Antikörpern an; aber es ist nachgewiesen, daß nicht nur tote Parasiten, sondern auch lebende Individuen von Leukocyten aufgenommen werden (vgl. z. B. Ruge). Es scheint mir aus der Gesamtheit der Beobachtungen hervorzugehen, daß auch hier wie bei den Bakterien die im Blut vorhandenen Antikörper die Protozoen durch eine gewisse, oft nicht wahrnehmbare Schädigung zur Aufnahme in die Phagocyten vorbereiten, worauf den letzteren die eigentliche Vernichtung zufällt. In einigen Fällen ist der erste Teil des Vorgangs ausgeprägter, in anderen schwächer.
Wenn ein Protozoon in einen anderen Organismus gerät, so beginnt alsbald ein Kampf zwischen beiden, welcher mit dem leichten Sieg des größeren, vielzelligen Tiers endet, wenn das Protozoon kein [S. 308]Parasit ist und wenn das vielzellige Tier über seine normale natürliche Resistenz verfügt. Ist das Protozoon aber an den Parasitismus angepaßt, so wird der Kampf ernsthaft. Und in diesem Kampfe siegt derjenige Organismus, welcher mit seinen Kampfmitteln den anderen zu überbieten vermag. Wir haben gesehen, das jeweils der eine Organismus den Angriffswaffen des anderen neue Verteidigungsmittel entgegenzustellen vermag. Und so kann schließlich der Parasit gegen die Schutzstoffe des Wirts selbst wiederum Immunität erwerben.
Das ist nicht eine auf Parasiten beschränkte Eigenschaft, sondern, wie Roessle bei seinen Paramäcien und Glaucomen gezeigt hat, gelingt es meist einem Teil der mit dem spezifischen Serum behandelten Infusorien sich gegen dessen Wirkung zu „immunisieren“. Individuen, welche sich von den Schädigungen durch das Immunserum erholt haben, werden auch durch stärkere Lösungen desselben nicht mehr geschädigt.
Ehrlich hat bei Trypanosomen gezeigt, daß sie sich mit der Zeit gegen die vom Wirt gegen sie aufgebotenen chemischen Verteidigungsmittel immunisieren (vgl. hierzu die früheren Darlegungen S. 267); und das gilt nicht nur für die gewöhnlichen Antikörper, es bilden sich auch „Stämme“ von Trypanosomen, welche fest sind gegen die schädigenden Wirkungen des Atoxyls, sowie der als Heilmittel angewandten Benzidinfarbstoffe und anderer chemischer Substanzen[22]; solche „Stämme“ bleiben auch nach Einführung in einen neuen Wirtsorganismus in dieser Weise giftfest.
[S. 309]
Die Rezidive bei Babesiosis und Malaria können eventuell auf ähnliche Ursachen zurückgeführt werden. Die Individuen, welche das Ausgangsmaterial für das Rezidiv bilden, müssen den Immunisierungsvorgängen getrotzt und für sich und ihre Nachkommenschaft eine Gegenimmunität erreicht haben.
Bei Spirochäten (speziell Spirochaeta recurrentis) hat Levaditi es direkt bewiesen, daß die Individuen des Rückfalls gegenüber denen des ersten Anfalls einen chemisch differenten Stamm darstellen. Das Immunserum gegen die Spirochäten des ersten Anfalls ist wirkungslos gegen die des Rückfalls; sie bewahren diese Eigentümlichkeit auch während mehrerer Passagen durch Tierkörper. Im Verlauf des Rückfalls treten neue Antikörper auf, welche gegen die Rückfallspirochäten, aber gleichzeitig auch gegen diejenigen des ersten Anfalls wirksam sind.
Es ist einleuchtend, daß pathogene Protozoen, welche durch rapide Vermehrung und starke Toxinbildung zu sehr akuten Erkrankungen Anlaß geben, mehr Aussichten zur Bildung kräftiger Antikörper und damit — wenn der Wirt überhaupt die Infektion übersteht — zum rezidivlosen Abschluß der Krankheit bieten. Dagegen müssen Formen mit relativ langsamer Vermehrung und geringer Toxinbildung chronische Erkrankungen bewirken; die geringe Erzeugung von Antikörpern wird eine große Chance für die immerwährende Anpassung der Parasiten und damit zum chronischen, eventuell rezidivreichen Verlauf der Krankheit bieten. (Vgl. als steigende Reihe beim Menschen: Febris recurrens, Malaria, Trypanosomiasis, Syphilis.) Aehnliches wird wohl auch für die Bakterienerkrankungen gelten.
d) Die Parasiten der Protozoen.
Auch die Protozoen selbst sind vielfach Opfer von Parasiten, welche Bakterien, Pilze oder Protozoen sein können.
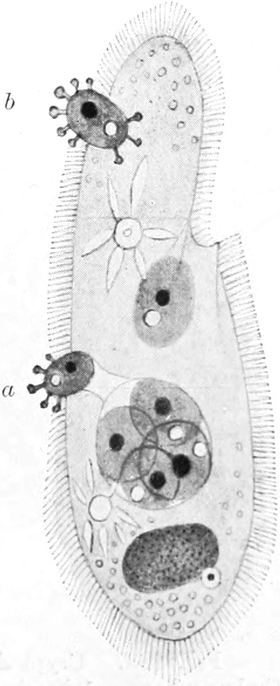
Wir finden da Formen, welche wir als Zellparasiten bezeichnen müssen, und Kernparasiten. Es ist bei diesen Protozoenparasiten oft ganz besonders schwer, einen Unterschied zwischen räuberischen Formen und echten Parasiten zu machen. Manche Parasiten dringen von außen direkt in das Innere von Protozoen ein (vgl. Fig. 282) und erinnern dadurch sehr an räuberische Formen, andere Arten werden mit der Nahrung aufgenommen. Alle diese Protozoenparasiten [S. 310]sind noch sehr wenig studiert worden. Ihnen allen gemeinsam ist, daß, obwohl sie im Plasma ihres Wirtes liegen, obwohl oft Vakuolen um sie herum entstehen, sie dennoch den Wirkungen der Gifte und Verdauungssäfte widerstehen.
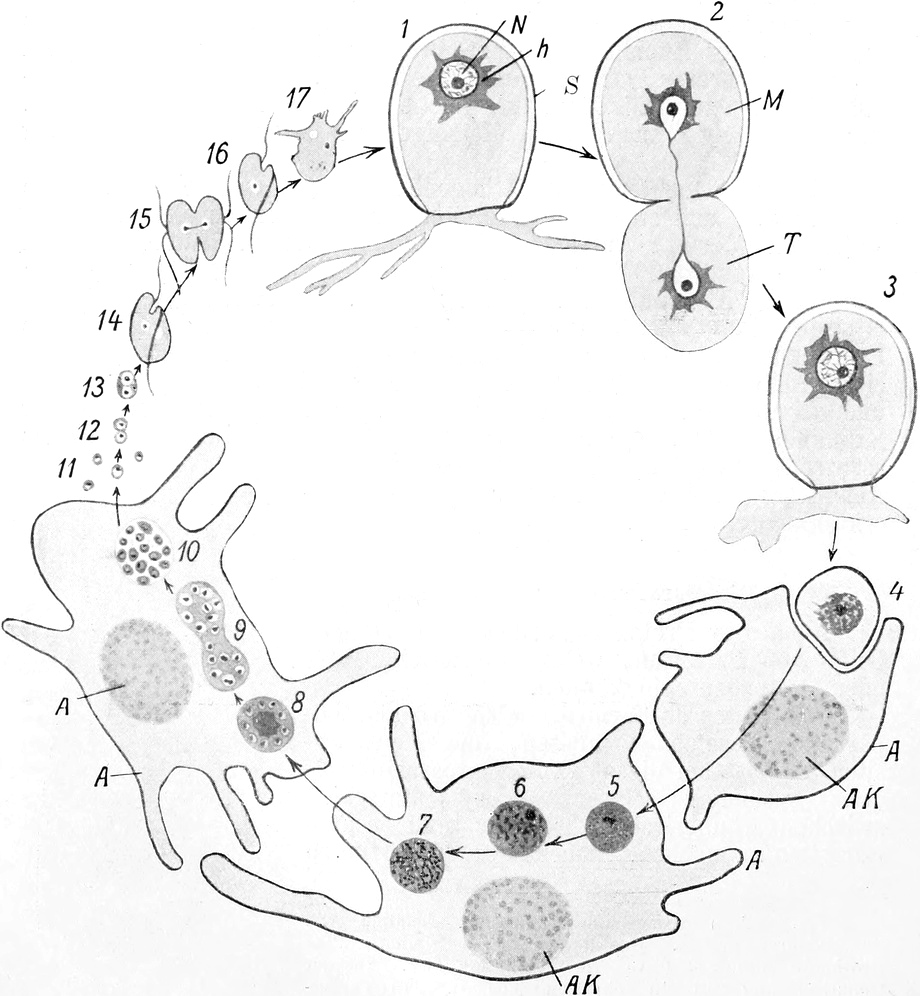
Wie solcher Parasitismus entstehen kann, davon gibt die Entwicklung von Cryptodifflugia Aufschluß, wenn der hier abgebildete Entwicklungszyklus dieser Form sich bestätigen läßt. Nach Prandtl [S. 311]wird diese kleine Thalamophore gelegentlich von Amoeba proteus aufgenommen; ist sie dann im Zustand der Kopulationsreife, so zerfällt jedes Individuum nach interessanten Entwicklungsvorgängen im Innern der Amoeba proteus in zahlreiche Gameten; letztere verlassen ihren Wirt und kopulieren im freien Wasser; aus der Zygote entsteht dann das ebenfalls frei lebende Thalamophor. Nach Prandtl vollzieht sich die Gametenbildung in der Regel in der Amoeba proteus, gelegentlich aber auch im freien Wasser.
Jedenfalls handelt es sich aber um eine Form, welche auch ohne den Schutz fester Cystenhüllen mindestens fakultativ zu parasitieren vermag. Das gleiche gilt wohl auch für eine ganze Anzahl der übrigen beschriebenen Parasiten von Protozoen.
Die Zell- und Zellkernparasiten der Protozoen haben schon vielfach zu Verwechslungen mit Fortpflanzungsstadien ihrer Wirte geführt. Sie seien daher in Kürze hier in der Reihenfolge ihrer Wirte besprochen.
Bei Amöben sind wiederholt von Dangeard, Penard, Doflein u. a. eigenartige Zellkernparasiten beschrieben worden, welche zu Riesenkernbildung Veranlassung geben. Es sind wohl Chytridiaceen, um welche es sich da handelt (vgl. Fig. 284).
Bei Thalamophoren und Foraminiferen sind Bakterien, Chytridiaceen, Saprolegniaceen beobachtet worden. Bei Heliozoen hat schon Brandt eigenartige Parasiten, welche zweigeißelige Schwärmer bilden, beobachtet; er hält sie für Saprolegniaceen. Auch bei Radiolarien sind Zellparasiten beobachtet worden, ich erwähne nur die eigenartige Amoebophrya.
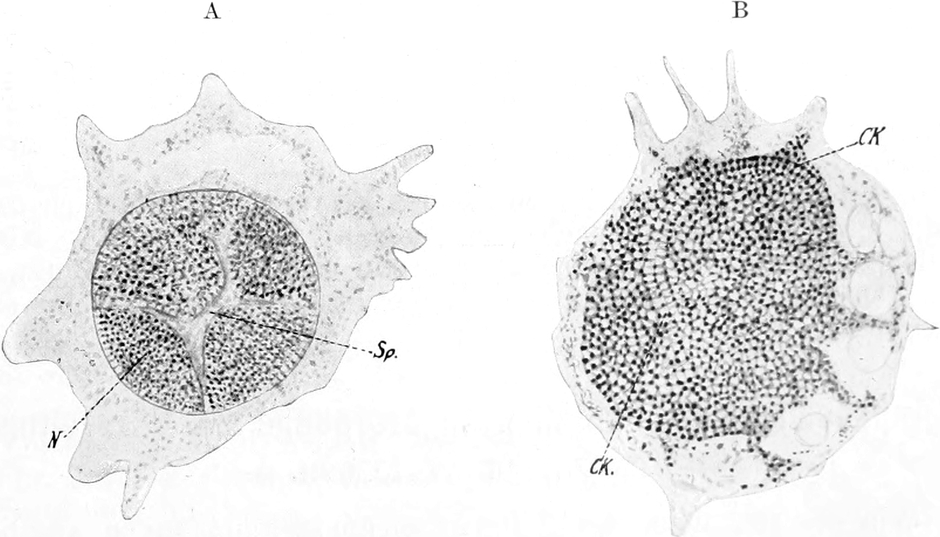
Bei Flagellaten (auch bei Dinoflagellaten) sind sehr häufig Parasiten beobachtet worden. Ento- und ektoparasitische Chytridiaceen sind vielfach bei Eugleniden und bei Chlamydomonadinen beschrieben worden, bei denen sie ähnlich schmarotzen, wie bei Algen. Sie kommen aber auch in Plasma und Kern der Flagellaten in Formen vor, welche sehr an die oben erwähnten Parasiten der Amöben (Fig. 283 und 284) erinnern, und welche schon wiederholt zu Verwechslung [S. 312]mit Fortpflanzungsstadien der Wirtsorganismen Anlaß gegeben haben.
Solche Irrtümer sind in früherer Zeit auch vielfach bei der Untersuchung der Fortpflanzung der Ciliophoren vorgekommen, indem parasitische Suctorien (vgl. Fig. 282) und Flagellaten für „Embryonen“ der Ciliaten gehalten wurden. Nicht selten findet man Stentor coeruleus ganz von kleinen Mastigamöben erfüllt; die Infusorien sind dann verfärbt, etwas kontrahiert, immerhin lebhaft beweglich. Bei starker Infektion (vgl. Fig. 285) platzen sie nach einiger Zeit, worauf die Parasiten frei im Wasser umherschwärmen. Ebenso sind Chytridiaceen vielfach beobachtet worden. Vor allem wichtig sind aber die Bakterieninfektionen der Ciliaten, welche bei manchen Arten, z. B. Paramaecium, Stentor, Stylonchia, ziemlich häufig vorkommen. Die Bakterien treten in Form zerstreuter Stäbchen und Fäden im Plasma auf, auch in kompakten Klumpen; nicht selten ist starke Infektion und Zerstörung des Mikro- und Makronucleus.
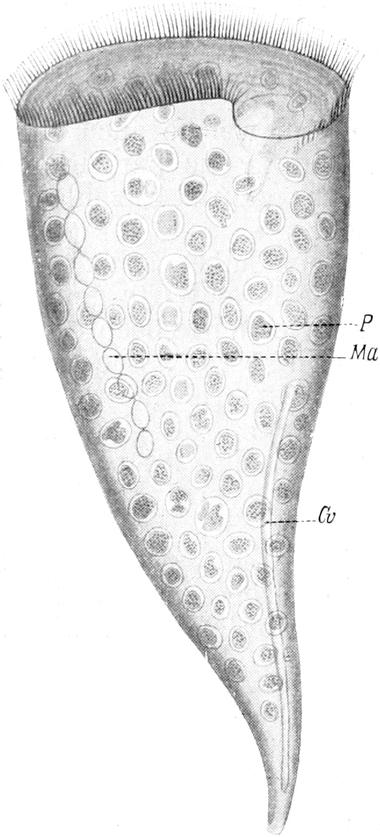
Bei allen diesen Infektionen können Protozoen oft ziemlich lange leben, manchmal selbst nach weitgehender Zerstörung des Kerns. Schließlich gehen sie aber zugrunde, wenn es ihnen nicht gelingt, die Parasiten abzutöten, mit einer Nahrungsvakuole zu umgeben und dann zu verdauen.
D. Anpassungen der Fortpflanzungsvorgänge und Verbreitungsmittel der Protozoen.
Wie die Parasiten, deren Fortpflanzungserscheinungen wir oben schon im Zusammenhang mit ihren übrigen Anpassungen besprachen, so sind auch Protozoen unter anderen biologischen Verhältnissen besonderer Art durch mancherlei Einrichtungen befähigt, die ihrer Fortpflanzung entgegenstehenden Hindernisse zu überwinden. So ist die Encystierung bei Protozoen, welche leicht austrocknende Süßwassertümpel bewohnen, vielfach mit Fortpflanzungsvorgängen verknüpft. Oft endet eine Periode häufiger Teilungen nach vorhergegangener Befruchtung mit der Bildung einer encystierten Zygote, welche erst, nachdem sie eine Austrocknung überstanden hat, bei Wasserzufluß keimt und eine neue Periode von Teilungen eröffnet. Die große Anzahl der so gebildeten und geschützten Zygoten führt [S. 313]zu einer ausgiebigen Vermehrung und Verbreitung der betreffenden Arten. Andere Formen vollziehen ihre gewöhnlichen Teilungen innerhalb einer schützenden Cyste, so sehr viele Ciliaten, Flagellaten etc.; die Teilungsprodukte können die Cyste entweder sofort verlassen oder bei eintretender Austrocknung innerhalb derselben (meist noch von Sekundärcysten umhüllt) verweilen.
Alle diese besonderen Anpassungserscheinungen fehlen den spezifischen Bewohnern großer Seen und des Meeres. Marine Foraminiferen und Radiolarien bilden niemals solche schützende Hüllen um ihre Fortpflanzungskörper.
Besondere Anpassungen, welche die Verbreitung der jungen Tiere sichern, sind bei marinen Protozoen nicht beschrieben worden, obwohl solche jedenfalls vorkommen.

Bei Parasiten sind außer dem Wirtswechsel und der Ausbildung von Wanderformen bei Jugendzuständen später seßhafter Schmarotzer (vgl. S. 296, 297) einige besondere Anpassungen der Sporen von Sporozoen zu erwähnen, welche die Verbreitung befördern können. So kommen bei Sporen von Coccidien Fortsätze und Strukturen vor, welche das Festhaften an Fremdkörpern befördern müssen. Das gleiche gilt von den Sporen der Myxosporidien mit ihren Fortsätzen und den Polkapseln, deren ausgeschleuderter Faden die Sporen anheftet. Auch habe ich die Ansicht ausgesprochen, daß die Fortsätze von Myxosporidiensporen, wie sie Fig. 287 bei Ceratomyxa linospora zeigt, das Schweben im Wasser erleichtern und dadurch die Verbreitung der Arten befördern.
Bei denjenigen Protozoen, welche die Luft zur Verbreitung benützen, können besondere Methoden in Betracht kommen; die leichten und mit rauher Oberfläche versehenen Sporen der Myxomyceten werden durch besondere Vorrichtungen aus dem Sporangium ausgeschleudert; die sogen. Capillitien, dehnbare [S. 314]Fäden, zersprengen die Hülle des Sporangiums und schleudern die Sporen in die Umgebung.
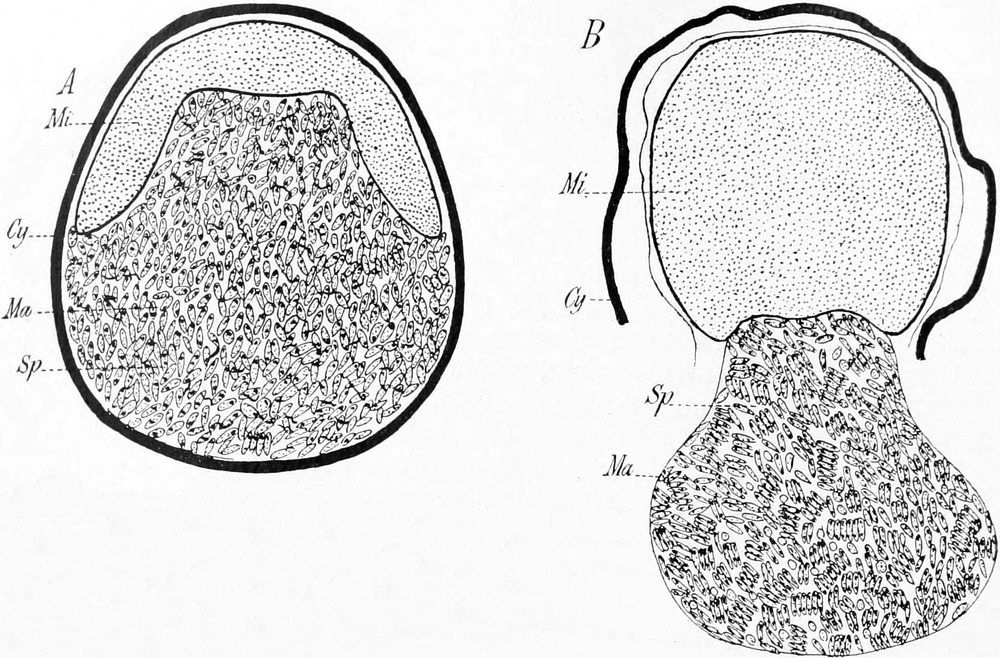
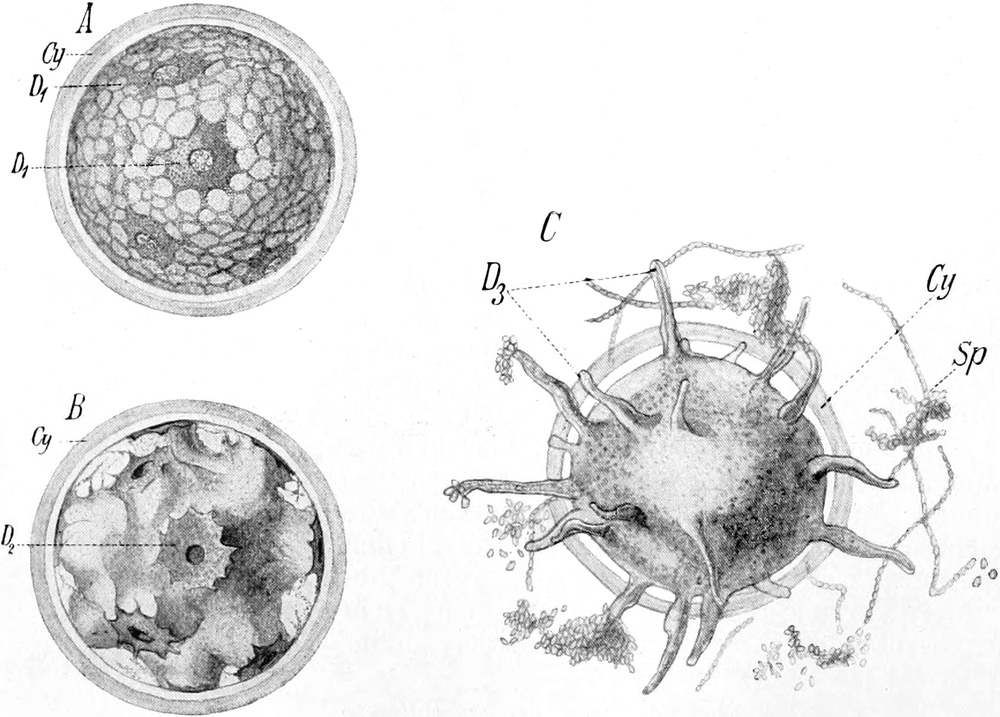
Aehnliche Verhältnisse kommen bei den encystierten Gregarinen in Betracht, deren Körper vielfach nicht vollkommen in die Bildung von Gameten und daraus resultierenden Zygoten aufgeht. Vielmehr wird aus Teilen desselben ein kompliziertes Sporangium aufgebaut, welches z. B. bei Echinomera hispida einen quellbaren Teil enthält, welcher die Sporenmasse ausschleudert (Fig. 289 A und B). Bei Arten der Gattung Gregarina, z. B. Gregarina cuneata bei Clepsidrina [S. 315]etc. entwickeln sich im Sporangium eigenartige ausstülpbare Schläuche (Sporoducte), durch welche ebenfalls die Sporen ins Freie befördert werden (Fig. 290 A–C).
E. Einfluß des Mediums.
Das Süßwasser und das Meerwasser, in welchem freie Protozoen leben, sowie die Körpersäfte, welche Parasiten beherbergen, enthalten einen gewissen Prozentsatz gelöster Salze, an welchen ihre Bewohner angepaßt sind. Nicht nur als Nährstoffe sind die vorhandenen Salze wichtig, sondern auch dadurch, daß sie eine bestimmte osmotische Wechselwirkung zwischen dem Organismus und seiner Umgebung hervorrufen. Und so sehen wir, daß die meisten Protozoen gegen plötzliche Schwankungen des osmotischen Drucks sehr empfindlich sind, wie wir schon wiederholt zu erwähnen Gelegenheit hatten (S. 102 und S. 121).
Nackte Protozoen sind natürlich viel empfindlicher als solche mit festen Körperwandungen, und solche Individuen, welche in feste Cysten oder Sporen eingeschlossen sind, können sogar gegen osmotische Wirkungen sehr widerstandsfähig sein.
Destilliertes Wasser ist für alle Protozoen eine tödliche Flüssigkeit, wovon man sich jederzeit überzeugen kann (vgl. hierzu auch die Untersuchungen von Peters). Um so auffälliger ist es, daß in manchen physiologischen Arbeiten Züchtbarkeit von Protozoen in destilliertem Wasser angegeben wird. Diese Angabe wird wohl darauf zurückzuführen sein, daß manche Protozoen mit sehr geringen Quantitäten von Salzen sich begnügen, welche ihnen zur Verfügung stehen werden, wenn eine größere Anzahl Individuen in der Flüssigkeit zugrunde gegangen sind; dann mögen die überlebenden Individuen sich erhalten und vermehren. Doch sind manche Protozoen sogar gegen den Wechsel verschieden zusammengesetzter Süßwässer empfindlich; so leiden Formen aus Moorwasser beim Uebersetzen in kalkreiches Brunnenwasser erheblich.
Im allgemeinen ist auch Meerwasser für die Süßwasserprotozoen bei plötzlichem Wechsel tödlich; ebenso Süßwasser für die Meerwasserbewohner. Jedoch lassen sich bei vorsichtiger, allmählicher Vermischung manche Süßwasserformen in Meerwasser überführen und umgekehrt. Actinophrys sol kommt im Süßwasser und im Meer vor und kann durch allmähliche Gewöhnung von dem einen in das andere übergeführt werden. Im Meerwasser ist das Plasma dichter, körnig und arm an Vakuolen, im Süßwasser schaumig und stark vakuolisiert. Ich habe wiederholt Colpoda cucullus durch allmähliche Mischung in fast reines Meerwasser übergeführt. Marg. Zülzer hat Amoeba verrucosa in Meerwasser versetzt und umgekehrt, wobei im Meerwasser das Plasma viel dickflüssiger war (vgl. dazu auch S. 102).
Auch die Anpassungsfähigkeit von Protozoen an künstliche Lösungen von verschiedenen Salzen und anderen Substanzen und an verschiedene Konzentrationen ist wiederholt untersucht worden: es hat sich herausgestellt, daß die Anpassungsfähigkeit freilebender Protozoen an langsam gesteigerte Differenzen des osmotischen Drucks eine recht beträchtliche ist. Versuche solcher Art sind angestellt worden von V. Czerny (an Amöben), Roser (an Polytoma), Massart (an Glaucoma, Vorticella [S. 316]etc.), Henneguy (an Fabrea), Balbiani (an Paramaecium) und Yasuda (an verschiedenen Flagellaten und Ciliaten). Besonders aus den Versuchen des letzteren geht hervor, daß die (freilebenden) Protozoen viel geringere Konzentrationen vertragen als z. B. Algen und Schimmelpilze. Während von Schimmelpilzen Aspergillus niger 53 Proz., Penicillium glaucum 55 Proz. Traubenzucker vertragen, ist das Maximum für Euglena viridis 11 Proz., für Chilomonas paramaecium 6 Proz. und für Paramaecium caudatum 5 Proz. Es ist wohl anzunehmen, daß parasitische Formen höhere Konzentrationen vertragen. Engelmann hat Seewasserprotisten durch allmähliche Steigerung an Lösungen von bis zu 10 Proz. Salzgehalt gewöhnt. Bemerkenswert ist, daß sich Protozoen auch an verschiedene sonst schädliche Stoffe gewöhnen lassen. So nach Davenport an Sublimat (vgl. S. 308, Anm.), nach Woodruff und Daniel an Alkohol. Nach letzterem paßt sich Stentor coeruleus an Lösungen von Alkohol bis zu 1 Proz. an und gewinnt dabei an Widerstandsfähigkeit gegen sonst rascher tödliche Alkoholdosen. Dagegen verringert nach Woodruff Alkohol die Widerstandsfähigkeit der Infusorien gegen Gift (Kupfersulfat).
Im allgemeinen sind bei Steigerung der Konzentration Formveränderungen wohl zu konstatieren, doch scheinen diese nicht sehr weit zu gehen; sie sind auch nicht hinreichend genau untersucht. Nach Peters beeinflußt der Zusatz von Salzen je nach dem Grad der Konzentration die Teilungsgeschwindigkeit bei Stentor. Nach Woodruff beschleunigt Kaliumphosphat (K2HPO4) die Teilungsrate bei Gastrostyla steinii im Anfang der Kultur, verlangsamt sie jedoch in deren späterem Verlauf. Calkins und Lieb fanden, daß in Depression befindliche Kulturen von Paramaecium durch minimalen Alkoholzusatz (1 : 2500) zur normalen Teilungsfähigkeit stimuliert werden und am Leben bleiben. Woodruff bestätigt dies, findet aber, daß bei Paramaecium und Stylonychia die kleinen Alkoholdosen je nach dem Abschnitt des Lebenszyklus der Kultur, in dem sie zur Verwendung kommen, die Teilungsrate erhöhen oder vermindern. Die steigernde Wirkung flaut aber bald ab und die Vermehrungsrate sinkt dann unter die Norm. Durch Verdopplung der Dosis kann der steigernde Effekt wieder hervorgebracht werden, aber auch ohne nachhaltig zu sein. Nach Nowikoff teilt sich Paramaecium in schwacher Lösung von Schilddrüsenextrakt in 24 Stunden statt 1mal 3mal. In Eiweißlösung wächst das Protozoon nur zu abnormer Größe heran ohne sich schneller zu teilen. Chinin setzt nach Sand und Prowazek bei Infusorien die Vermehrungsrate herab. Bei Verringerung der Salzkonzentration zeigen sich im Meerwasser charakteristische Folgen; so ist z. B. bekannt, daß im Brackwasser die Schalen von Foraminiferen dünn werden und fast nur aus organischer Substanz bestehen, so bei Miliolinen nach Brady rein chitinös werden.
Schaudinn hat für Oxyrrhis marina, einem Flagellat mit deutlichem Binnenkörper im Kern, angegeben, daß bei Kultur in verdünntem Seewasser dieser Binnenkörper aus dem Kern austritt und bei der Teilung sich neben letzterem selbständig teilt.
Bei allen Formen ist natürlich zu beachten, daß Anpassung an verschiedenen osmotischen Druck nur durch sehr langsamen allmählichen Uebergang aus dem Aufenthaltsmedium in die Flüssigkeit von abweichender Konzentration erzielt werden kann. Praktisch findet [S. 317]das seinen Ausdruck darin, daß parasitische Protozoen, aus dem Blut, aus Darmflüssigkeit usw. in Wasser gebracht, rasch absterben. Ja sogar Formen, welche wie Costia necatrix auf der äußeren Haut von Fischen vorkommen, sind in der Weise an die Konzentration des Hautschleims angepaßt, daß sie, vom Wirtstier in das umgebende Wasser schwimmend, alsbald absterben.
Jedenfalls spielen auch beim Wirtswechsel der Parasiten die Konzentrationsänderungen im Medium eine wichtige biologische Rolle. Bei ihnen handelt es sich vielfach um nackte Formen, welche, ohne durch Hüllen geschützt zu sein, den schroffen Uebergang überstehen.
So ändern z. B. die aus dem Wirbeltierblut in den Insektenmagen gelangenden Hämosporidien, sofern sie geschlechtsreife Individuen sind, ihre Form, bereiten sich zur Befruchtung und werden befruchtet. Ungeschlechtliche Individuen dagegen gehen zugrunde und werden im Mückendarm verdaut.
Nun gaben schon Manson und dann Marshall an, daß ein Zusatz von destilliertem Wasser zum Blutpräparat die Reifung der Geschlechtsformen der Plasmodien begünstige und daß dies durch osmotischen Ausgleich bedingt sei. Lühe ebenso wie Ross und Doflein teilen diese Ansicht; Lühe speziell hat vermutet, daß im Mückenmagen bei der Lösung des Hämoglobins Diffusionsströme entstehen und den Reiz bewirken, welcher zur Reifung führt. Nach den Versuchen von Ross, Claus u. a. scheinen tatsächlich sowohl schwache Erhöhungen als Erniedrigungen der Konzentration des Blutes sehr wesentliche Faktoren beim Zustandekommen der Befruchtungserscheinungen der Plasmodien zu sein.
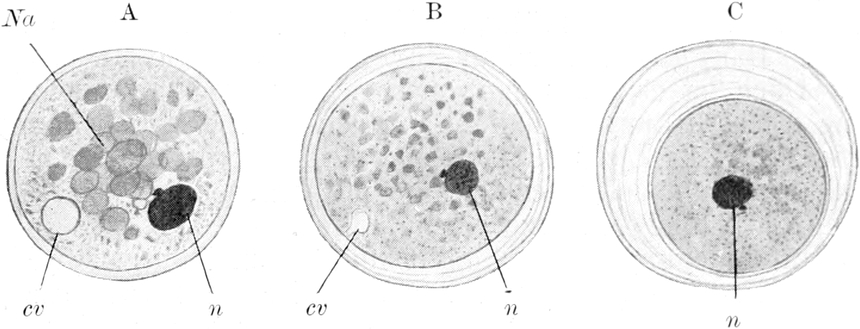
Die wichtigste Methode für die Protozoen, um den Schädigungen durch Konzentrationsänderung des Mediums zu entgehen, besteht in der Encystierung, welche bei freilebenden und parasitischen Formen weit verbreitet ist. Die Cystenbildung erfolgt bei den Protozoen in allen möglichen Situationen des Lebens, bei Teilung, Befruchtung etc., vor allem aber unter dem Einfluß drohender Schädigungen verschiedenster Art wie Nahrungsmangel, Abkühlung, drohende Austrocknung. Da die Cyste vor allem Schutz gegen übermäßige Konzentration des Mediums und gegen Austrocknen gewährt, so sei gerade an dieser Stelle kurz der Vorgang der Cystenbildung geschildert.
[S. 318]
Amöben und andere Rhizopoden, Flagellaten und Ciliaten pflegen vor der Cystenbildung ihren Weichkörper zu einer Kugel zusammenzuziehen. Doch kommen auch ovale und anders gestaltete Cysten vor. Meist wird das Plasma von halbverdauten Nahrungsresten, Exkretkörnern etc. befreit. Durch lebhafte Tätigkeit der kontraktilen Vakuole wird das Plasma wasserärmer, auch die Kerne nehmen eine dichtere Struktur an, die meisten Strukturelemente des Körpers schwinden dann durch Verflüssigung, und unter beständiger Rotation wird die Cyste schichtenweise abgeschieden (Fig. 291). Durch starke Volumverminderung des Tiers können auch die einzelnen Schichten der Cyste beim Austrocknen sich weit voneinander trennen. Eine Protozoencyste kann monatelang den Wirkungen der Austrocknung widerstehen. Wenn sie wieder in das geeignete flüssige Medium kommen, schlüpfen die Tiere wieder aus. Colpoda schlüpft noch aus, nachdem die Cysten 14–16 Monate trocken lagen, Gastrostyla nach 22 Monaten bis 2 Jahren (Maupas und Nussbaum).
F. Licht und Strahlen anderer Art.
Die meisten chromophyllfreien Protozoen gedeihen im Dunkeln ebensogut wie im Licht. Ja, manche Arten gedeihen sogar bei Ausschluß des Lichtes besser.
Intensives Sonnenlicht tötet, ähnlich wie Bakterien, so auch manche Protozoen. Das gilt vor allem für parasitische und sapropelische Formen. Doch ist es nicht ganz sicher, ob es sich in solchen Fällen um reine Lichtwirkungen handelt. Nach den Untersuchungen von Tappeiner wirkt Licht auf Protozoen, denen es sonst unschädlich ist, z. B. auf Paramaecium caudatum, bei Anwesenheit gelöster fluoreszierender Farbstoffe in kurzer Zeit tödlich.
Die Untersuchungen über den Einfluß von Röntgenstrahlen und Radium auf Protozoen haben keine sehr klaren Ergebnisse gehabt. Schaudinn hat festgestellt, daß durch Röntgenstrahlen manche Protozoen ganz unbeeinflußt bleiben, während andere mehr oder weniger stark geschädigt werden; letzteres ist hauptsächlich bei Formen mit dünnflüssigem Plasma der Fall. Joseph und Prowazek konnten bei Paramaecium erhebliche Schädigungen durch Röntgenstrahlen zeigen, welche sie auf Beeinträchtigung oder Erschöpfung der Plasmafunktionen zurückführen, von denen die Tiere sich aber wieder erholen. Dagegen konnten Loewenthal und Rutkowski nachweisen, daß Trypanosoma Lewisi durch Röntgenstrahlen unter Bildung einer Vakuole vor dem Blepharoplasten gelähmt, in manchen Fällen sogar getötet werden.
Radium tötet nach Laveran und Mesnil Trypanosomen im Rattenblut, während nach Loewenthal und Rutkowski keine Schädigung sich erkennen läßt.
Marg. Zülzer hat bei einer Anzahl Protozoenarten Schädigung zuerst der Kernsubstanzen, dann des Protoplasmas und schließlich Abtötung beobachtet. Sie und Willcock geben an, daß chlorophyllhaltige Protozoen gegen Radiumstrahlen weniger empfindlich seien, als chlorophylllose. Die neueren Untersucher, so Zülzer und Hertel, nehmen an, daß die schädigende Wirkung der verschiedenen dunkeln Strahlen auf ihrer reduzierenden Wirkung auf die Körpersubstanzen [S. 319]der Protozoen beruhe. Hertel hat schädigende Wirkungen ultravioletter Strahlen bestimmter Wellenlängen auf Paramäcien nachgewiesen.
G. Temperatur und Klima.
Die verschiedenen Protozoen sind an verschiedene Durchschnittstemperaturen angepaßt. Im allgemeinen sterben Protozoen bei Erhöhung der Wassertemperatur auf 38–42° C. Sie ertragen Temperaturen unter 0°, wenn das Wasser flüssig bleibt; beim Einfrieren gehen sie zugrunde. Encystierte Protozoen vertragen das Einfrieren sehr gut. Euglena wird in freiem Zustand durch wiederholtes Einfrieren nicht geschädigt (Klebs). Auch Trypanosomen ertragen scheinbar unter Umständen Gefrieren und sehr tiefe Temperaturen (s. unten). Zahlreiche Beobachter haben im Winter unter dem Eise im Süßwasser (also wohl bei +1–4° C) noch eine relativ artenreiche Protozoenfauna nachgewiesen, und in heißen Quellen finden sich noch einzelne Protozoenarten. So finden sich: beschalte Rhizopoden (Difflugia, Trinema, Quadrula sp.) bei 40–45° C, Frontonia acuminata noch bei 49–50° C, eine Amoeba und Nassula elegans bei 50–52° C (Issel), Cyclidium glaucoma bei 51° C und Hyalodiscus sp. sogar bei 54° C in oberitalienischen Thermen, auf Ischia Infusorien gar bei 53–64,7° C. Bei vorsichtiger Erhöhung der Temperatur gelingt es, Arten, welche gewöhnlich bei Temperaturen von 10–20° C leben, bei viel höheren Temperaturen zu halten. So habe ich Amoeba vespertilio wochenlang bei Temperaturen von 35–37° C gezüchtet. Dagegen gibt Grosse-Allermann an, daß Amoeba terricola Greeff am besten bei 10–18° C gedeiht und bei Erhöhung der Temperatur auf 20° C Schädigungen zeigt, bei 25° C schon nach einigen Stunden zugrunde geht. Dallinger behauptet, daß Flagellaten innerhalb eines Jahres an Temperaturen von 70° C angepaßt werden können (?).
Wie auf alle chemischen Prozesse, so hat auch auf den Stoffwechsel steigende Temperatur einen fördernden Einfluß; so ist denn auch in der Regel bei gewissen optimalen Temperaturen die Vermehrung der Protozoen sehr beschleunigt. (Vgl. hierzu S. 170.) Der Einfluß der Temperatur auf die Bewegung, auf die Tätigkeit der kontraktilen Vakuole, auf Depression und Befruchtungsbedürfnis ist oben schon wiederholt erörtert worden. Der Einfluß der Temperatur auf die Entwicklung von Parasiten, z. B. der Malariaplasmodien, wird wegen seiner epidemiologischen Bedeutung unten im speziellen Teil zu erörtern sein.
Für Parasiten liegt das Optimum der Temperatur offenbar in der Nähe der Durchschnittskörpertemperatur ihres Wirts. Während Parasiten aus kaltblütigen Tieren bei Zimmertemperatur oft lange leben, gehen Formen aus Warmblütern vielfach ziemlich rasch zugrunde. So leben Parasiten aus wechselwarmen Tieren, Myxosporidien, Coccidien, Gregarinen, Opalinen aus Fischen, Amphibien, Insekten oft tagelang bei Zimmertemperatur, während solche aus Vögeln oder Säugetieren oft schnell absterben (Hämosporidien, Entamoeba coli und histolytica etc.). Während bei manchen Formen vielleicht eher die chemischen Zersetzungen des Mediums als die tiefe Temperatur den Tod verursachen, ist bei den Infusorien des Pansens der Wiederkäuer und des Coecums der Pferde durch Schuberg, Enderlein u. a. [S. 320]festgestellt worden, daß sie außerhalb des Wirtskörpers bald zugrunde gehen, wenn man nicht Vorsorge trifft, daß sie bei einer Temperatur von ca. 37° C gehalten werden. Bei einer solchen halten sie sich im Brutofen tagelang.
Trypanosomen (T. Brucei, auch T. Lewisi, wenn auch letzteres erst nach ca. 12-stündiger Einwirkung) werden durch Temperaturen von 40° C abgetötet. Gegen Kälte sind sie dagegen viel widerstandsfähiger. Tr. Lewisi kann man 2 Monate bei 5–7° C aufbewahren. Die pathogenen Formen dagegen halten sich bei 5° C nur 5–6 Tage. Aber sogar im gefrorenen Zustand erhalten sich unter den massenhaft absterbenden Trypanosomen einige Individuen am Leben, welche beweglich und virulent bleiben. Nach ¼ Stunde Kontakt mit flüssiger Luft (-191° C) ist dies noch der Fall bei Tr. Lewisi und pathogenen Formen. Nach 1¼ Stunde noch bei Tr. Lewisi, nicht mehr bei Tr. dimorphon. Nach 24 Stunden waren alle untersuchten Formen abgestorben.
Die Bedeutung des Klimas der Umgebung für die Biologie der Protozoen ist am deutlichsten an ihrer geographischen Verbreitung zu ermessen, welche besonders auffallend bei Meeresformen und bei Parasiten ist. Bei letzteren besonders bei den Blutparasiten der Warmblüter, welche nur im warmen Klima auch außerhalb des menschlichen Körpers dauernd die Bedingungen des Gedeihens finden.
In Zusammenhang mit der Temperatur werden die noch wenig untersuchten zyklischen Variationen, Saisonformen und geographischen Formen von Protozoen, z. B. Dinoflagellaten, gebracht.
Literatur über Biologie der Protozoen.
|
a) Vorkommen und geographische
Verbreitung.
|
|
|
386.
|
Bütschli, O., Protozoa. In: Bronn, Klassen und
Ordnungen des Tierreichs. Leipzig und Heidelberg. Vol. 1.
|
|
387.
|
a) Carter, J. H., Notes on freshwater Infusoria of
the Island of Bombay. In: Ann. Mag. Nat. Hist. Ser. II. Vol. 18. 1856. p.
115 und 221.
|
|
b) Leidy, Freshwater Rhizopods of North America.
U. S. Geolog. Survey of the Territories. Vol. 12. 1879.
|
|
|
388.
|
a) Ehrenberg, Chr. G., Die geographische
Verbreitung der Infusionstierchen in Nordafrika und Westasien. In: Abh. d.
Berl. Aka. Wiss. a. d. J. 1828 (1829). p. 1. (Ehrenberg selbst nahm
lokalisierte Faunen an!)
|
|
b) — Die Infusionstierchen als vollkommene Organismen.
Leipzig 1838.
|
|
|
389.
|
Greeff, R., Ueber Erdamöben. In: Sitz.-Ber. Ges.
Naturw. Marburg 1891; ferner Biol. Centralbl. Vol. 11.
|
|
390.
|
Schewiakoff, W., Ueber die, geographische
Verbreitung der Süßwasserprotozoen. In: Mém. Ac. Sci. Pétersbourg. (7)
Vol. 41. 1893.
|
|
Vgl. außerdem die Ergebnisse der großen marinen Expeditionen: Challenger-, Plankton-, Valdivia-Expedition etc. und die systematischen Arbeiten über Fauna von Afrika, Australien, das tropische Asien, Amerika. |
|
|
b) Habitus und Lebensweise.
|
|
|
391.
|
Häcker, V., Ueber die biologische Bedeutung der
feineren Strukturen des Radiolarienskeletts. In: Jen. Zeitschr. Naturw. Vol.
39. 1905. p. 8.
|
|
392.
|
— Finales und Kausales über das Tripyleenskelett. In:
Zeitschr. wiss. Zool. Vol. 83. 1905. p. 336.
|
|
393.
|
Rhumbler, L., Entwurf eines natürlichen Systems der
Thalamophoren. In: Nachr. d. K. Ges. Wiss. Göttingen. Math.-phys. Kl.
1895. p. 581.
|
|
394.
|
Schultze, Max, Ueber den Organismus der
Polythalamien, nebst Bemerkungen über die Rhizopoden im allgemeinen.
Leipzig 1854.
|
|
Ferner zahllose Bemerkungen in Spezialabhandlungen. |
|
|
[S. 321]
c) Ernährungsanpassungen.
|
|
|
395.
|
Bütschli vgl. No. 386.
|
|
396.
|
Blochmann vgl. No. 2. S. 67.
|
|
397.
|
Stein vgl. No. 56. S. 69.
|
|
d) Parasitismus und pathogene
Bedeutung.
|
|
|
398.
|
Braun, M., Die Parasiten des Menschen. 4. Aufl.
Würzburg 1908.
|
|
399.
|
Brumpt, E., Précis de parasitologie. Paris 1910.
915 p. 4 Taf. 683 Fig.
|
|
400.
|
Daniel, Frank, Adaption and immunity of lower
organisms to Ethyl Alcohol. Journ. exper. Zool. Vol. 6. 1909. p. 571–611.
|
|
401.
|
Davenport and Neal, On the acclimatisation
of organisms to poisonous chemical substances. In: Arch. f. Entwicklungsmech.
Vol. 2. 1895. p. 581.
|
|
402.
|
Dieudonné, A., Immunität, Schutzimpfung und
Serumtherapie. 5. Aufl. Leipzig 1908.
|
|
403.
|
Doflein, F., Die Protozoen als Parasiten und
Krankheitserreger. 1. Aufl. Jena 1901.
|
|
404.
|
— und Prowazek, S. v., Die pathogenen Protozoen.
In: Kolle und Wassermann, Handb. d. pathog. Mikroorganismen. Vol. 1. 1903.
|
|
405.
|
Ehrlich, Zahlreiche Arbeiten über Immunität.
|
|
406.
|
Ehrlich, P., Roehl, W., und Gulbransen,
R., Ueber serumfeste Trypanosomenstämme. Bemerkungen zu der Arbeit von
Levaditi und Mutermilch. Zeitschr. Immunitätsforsch. u. exper. Therapie.
Orig. Vol. 3. 1909. p. 296–299.
|
|
407.
|
Gruber, Zur Theorie der Antikörper. In: Münchn.
med. Wochenschr. 1901 u. 1903.
|
|
408.
|
Kanthack, Durham und Blanford, Ueber
die Nagana- oder die Tsetsefliegenkrankheit. In: Hygien. Rundschau. Vol.
3. 1898.
|
|
409.
|
Kerr, W. M., A review of the important pathogenic
Protozoa found in man. N. Y. med. Journ. Vol. 90. 1909. p. 684–688.
|
|
410.
|
Koch, R., Berichte I–V, Schlußbericht und
zusammenfassende Darstellung über die Tätigkeit und Ergebnisse der
Deutschen Malaria-Expedition. In: Deutsch. med. Wochenschr. 1899–1900.
|
|
411.
|
a) Laveran et Mesnil, La sarcocystine,
Toxine des Sarcosporidies. In: C. R. Soc. Biol. Paris. Sér. XI. Vol. 1.
1899. p. 311.
|
|
b) — — Trypanosomes et Trypanosomiases. Paris 1904. Vgl.
auch: Recherches sur le traitement et la prévention du Nagana. In: Ann.
Inst. Pasteur. Vol. 16. 1902. p. 785.
|
|
|
412.
|
Leuckart, R., Die Parasiten des Menschen. 2. Aufl.
Leipzig 1879–1890.
|
|
413.
|
Levaditi, C., et Mutermilch, St., Le
mécanisme de la création des variétés de trypanosomes résistant aux
anticorps. Comptes rendus de la Soc. Biol. T. 67. 1909. p. 49.
|
|
414.
|
Lühe, M., Die im Blut schmarotzenden Protozoen und
ihre nächsten Verwandten. In: Mense, Handb. der Protozoenkrankheiten. Vol.
3. 1906. p. 69.
|
|
415.
|
Metschnikoff, E., Immunité. Paris 1902.
|
|
416.
|
Mesnil, F., Aperçu sur l’hérédité dans les maladies
à Protozoaires. In: Bull. Inst. Pasteur. Vol. 3. 1905. p. 401.
|
|
417.
|
de Petschenko, Boris, Contribution à l’étude de
l’immunité chez les protozoaires. Centralbl. f. Bakt. u. Par. Abt. I.
Orig. Vol. 56. 1910. p. 90–92.
|
|
418.
|
Rievel und Behrens, Beiträge zur Kenntnis
der Sarcosporidien und deren Enzyme. In: Centralbl. f. Bakt. Abt. I.
Orig. Vol. 35. 1904. p. 341.
|
|
419.
|
Rabinowitsch und Kempner, Die Trypanosomen
in der Menschen- und Tierpathologie etc. In: Centralbl. f. Bakt., Vol. 34.
1903. p. 804.
|
|
420.
|
Rössle, R., Spezifische Sera gegen Infusorien. In:
Arch. f. Hyg. Vol. 54. 1905. p. 1.
|
|
421.
|
— Zur Immunität einzelliger Organismen. Verh. Deutsch.
Path. Ges. Vol. 13. 1909. p. 158–162.
|
|
422.
|
Schilling, Claus, Piroplasmosen. In: Kolle und
Wassermann, Handb. d. pathog. Mikroorganismen. I. Ergänzungsbd. 1906.
p. 75.
|
|
423.
|
Stiles, Ch., Wardall and Hassal, S.,
Compendium of animal parasites reported for rats and mice (gen. mus).
The rat and its relation to the public health. Washington 1910. p.
111–122.
|
|
424.
|
Teichmann, E., Ueber das Gift der Sarcosporidien.
Arch. Protk. Vol. 20. 1910. p. 97–125.
|
|
425.
|
Ward, H. B., The influence of parasitism on the
host. In: Proceed. Am. Ass. Advanc. Sci. Vol. 56. 1907.
|
|
426.
|
Weinland, E., Ueber ausgepreßte Extrakte von
Ascaris lumbricoides und ihre Wirkung. In: Zeitschr. f. Biologie. Vol. 43.
1902. p. 86.
|
|
b) vgl. No. 107. S. 132.
|
|
|
427.
|
— Ueber Antifermente I und II. In: Zeitschr. f. Biologie.
Vol. 44. 1908. p. 1 und 45.
|
|
428.
|
Wordwilko, A., Ueber den Ursprung der Erscheinung
von Zwischenwirten bei den tierischen Parasiten. Biol. Centralbl. Vol. 29.
1909. p. 369–381, 395–413, 441–457, 459–467.
|
|
[S. 322]
e) Die Parasiten der
Protozoen.
|
|
|
429.
|
Bütschli, O., vgl. No. 386.
|
|
430.
|
Blochmann, R., Ueber eine neue Haematococcus-Art.
Habilitationsschrift Heidelberg 1886.
|
|
431.
|
Dangeard, P. A., Parasites du noyau et du
protoplasma. In: Le Botaniste. Poitiers 1894/95. Fasc. 6.
|
|
432.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. V. Amöbenstudien, 1. In: Arch. f. Protistenk. I. Supplementband.
1907. p. 250.
|
|
433.
|
Prandtl, H., Der Entwicklungskreis von Allogromia
sp. Arch. f. Protistenk. Vol. 9. 1907. p. 1.
|
|
f) Anpassungen der
Fortpflanzung.
|
|
|
434.
|
de Bary, Die Mycetozoen. Leipzig 1864.
|
|
435.
|
Bütschli, O. In: Zeitschr. f. wiss. Zoologie. Vol.
35. 1881. p. 384.
|
|
436.
|
|
|
437.
|
Kuschakewitsch, S., Beobachtungen über vegetative,
degenerative und germinative Vorgänge bei den Gregarinen des Mehlwurmdarms.
In: Arch. f. Protistenk. Suppl.-Vol. I. 1907. p. 202.
|
|
438.
|
Schellack, C., Ueber die Entwicklung und
Fortpflanzung von Echinomera hispida. In: Arch. f. Protistenk. Vol. 9.
1907. p. 297.
|
|
g) Einfluß des Mediums.
|
|
|
439.
|
Lühe, M., Ergebnisse der neueren Sporozoenforschung.
Jena 1899.
|
|
440.
|
Nagai, H., Der Einfluß verschiedener Narcotica,
Gase und Salze auf die Schwimmgeschwindigkeit von Paramaecium. Zeitschr. f.
allgem. Physiol. Jena 1907. Vol. 6. p. 195.
|
|
441.
|
Peters, A. W., Metabolism and division in Protoza.
In: Proceed. Americ. Acad. Arts and Science. Vol. 39. 1904. p. 441.
|
|
442.
|
Prowazek, S. v., Giftwirkung und Protozoenplasma.
Arch. f. Protistenk. Vol. 18. 1910. Heft 3. p. 221–244.
|
|
443.
|
Ross, R., Untersuchungen über Malaria. Jena 1905.
|
|
444.
|
Schaudinn, F., Studien über krankheitserregende
Protozoen. II. Plasmodium vivax, der Erreger des Tertianfiebers beim
Menschen. Arb. Kais. Gesundheitsamt. Vol. 19. 1902. p. 169.
|
|
445.
|
Woodruff, L. L., Affects of alcohol on the life
cycle of infusoria. Biological Bulletin of the Marine Biological Laboratory
Woodshall, Mass. Vol. 15. 1908. p. 86.
|
|
446.
|
Yasuda, A., Studien über die Anpassungsfähigkeit
einiger Infusorien an konzentrierte Lösungen. In: Journ. Coll. Sci. Tokyo.
Vol. 13. 1900. p. 101.
|
|
447.
|
Zuelzer, M., Ueber den Einfluß des Meerwassers auf
die pulsierende Vakuole. In: Sitzungsber. Ges. naturf. Freunde Berlin.
1907. p. 90.
|
|
h) Einfluß von Licht und
Strahlen.
|
|
|
448.
|
Busch und v. Tappeiner, Ueber
Lichtbehandlung blutparasitärer Krankheiten. In: Deutsch. Arch. klin. Med.
Vol. 87. 1906.
|
|
449.
|
Hertel, E., Die Beeinflussung des Organismus durch
Licht, speziell durch die chemisch wirksamen Strahlen. In: Zeitschr. f.
allg. Physiol. Vol. 4. 1904. p. 1.
|
|
450.
|
— Ueber physiologische Wirkung von Strahlen verschiedener
Wellenlänge. II. Mitteil. Ibid. Vol. 5. 1905. p. 95.
|
|
451.
|
Josef und Prowazek, Versuche über die
Einwirkung von Röntgenstrahlen auf einige Organismen, besonders deren
Plasmatätigkeit. In: Zeitschr. f. allg. Physiol. Vol. 1. 1902.
|
|
452.
|
Laveran und Mesnil, Les Trypanosomes et les
Trypanosomiases. Paris 1904. p. 74.
|
|
453.
|
Löwenthal, W., und Rutkowski, Die Wirkung
der Röntgenstrahlen auf Trypanosoma Lewisi. In: Therapie der Gegenwart.
September 1907.
|
|
454.
|
Schaudinn, F., Ueber den Einfluß der
Röntgenstrahlen auf Protozoen. Pflügers Arch. f. d. ges. Physiol. Vol. 77.
1899. p. 29.
|
|
455.
|
Veneziani, Ueber die Einwirkung des Radiums auf die
Opalina ranarum. In: Centralbl. f. Physiol. Vol. 18. 1904. p. 130.
|
|
456.
|
Zuelzer, M., Ueber die Einwirkung der
Radiumstrahlen auf Protozoen. In: Arch. Protistenk. Vol. 5. 1905. p. 358.
|
[21] Beispiele von Blutparasiten: Menschen sind unempfänglich für Trypanosoma Brucei; Trypanosoma Lewisi ist dauernd nur im Blut der Rattenarten existenzfähig und nicht auf andere Wirbeltiere übertragbar.
[22] Bei dieser Gelegenheit sei auch erwähnt, daß Davenport und Neal Stentor 2 Tage lang in einer 0,00005 Proz. Sublimat enthaltenden Nährlösung gezüchtet haben, worauf die Tiere eine gewisse Giftfestigkeit erlangten, indem sie einer 0,001-proz. Sublimatlösung viermal so lange widerstanden als gewöhnliche Wasser gezüchtete Stentoren.
[S. 323]
V. System der Protozoen.
Das in der ersten Auflage dieses Buchs eingeführte System ist von allen Kennern der Protozoen angenommen worden, da es zugleich ein natürliches System und eine übersichtliche Anordnung der Protozoen darbietet. Es stellte eine Modifikation des von Bütschli angewandten Systems dar: bei der Anordnung der Gruppen wurden die Fortpflanzungserscheinungen mehr als bisher berücksichtigt und den Bewegungsorganellen eine geringere Bedeutung zugesprochen.
Man hatte früher die Protozoen in 4 gleichgeordnete Klassen eingeteilt:
- Rhizopoda,
- Mastigophora,
- Sporozoa,
- Ciliata.
Nach meinem System ergeben sich folgende Modifikationen:
I. Unterstamm:
Plasmodroma, Protozoen mit Pseudopodien oder Flagellen als Fortbewegungsorganellen, einem oder mehreren meist bläschenförmigen Kernen, iso- oder anisogamer Befruchtung und einem meist dizyklischen Entwicklungskreis, in dem geschlechtliche Generationen mit ungeschlechtlichen (Gameten mit Agameten) alternieren.
Sie zerfallen in folgende Klassen:
- Bewegung durch Pseudopodien. I. Klasse: Rhizopoda.
- Bewegung durch Geißeln. II. Klasse: Mastigophora.
- Bewegung verschiedenartig, meist durch Parasitismus reduziert. Metagame Vermehrung durch zahlreiche beschalte Fortpflanzungskörper (Sporen). III. Klasse: Sporozoa.
II. Unterstamm:
Ciliophora, Protozoen mit zahlreichen Cilien als Bewegungsorganellen, mit einem oder mehreren dicht gebauten Hauptkernen und einem bis vielen bläschenförmigen Nebenkernen (oder selten zahlreichen der letzteren Art allein) versehen; Befruchtung durch anisogame Verschmelzung oder durch Austausch von Kernsubstanzen ohne Verschmelzung der Zellleiber. Vermehrung nur durch einfache Teilung oder durch Knospung; die Befruchtung bedingt keine besondere Fortpflanzungsform.
[S. 324]
Sie zerfallen in folgende Klassen:
- Cilien während des ganzen Lebens vorhanden; Nahrungsaufnahme durch Osmose oder durch Cytostome. IV. Klasse: Ciliata.
- Cilien nur an den Jugendstadien vorhanden; Nahrungsaufnahme durch röhrchenartige Organellen. V. Klasse: Suctoria.
Dies System ist nun, wie durch die Forschungen des letzten Jahrzehnts immer klarer hervortritt, immer noch kein vollkommen natürliches System. Darauf hat besonders Hartmann hingewiesen, welcher auf Grund der neuesten Forschungen das System weiter modifiziert hat. Die von ihm vorgeschlagenen Neuerungen betreffen die systematische Gruppierung innerhalb der Klasse der Sporozoen. Er gliedert die Hämosporidien mit den Trypanosomen als Ordnung der Binucleata den Flagellaten an; ferner teilt er die Sporozoa auf Grund phylogenetischer Spekulationen in die zwei Klassen der Telosporidia und Neosporidia, welche in meinem System als Unterklassen figurieren. Die erste dieser beiden Aenderungen scheint wohl begründet durch die neueren Untersuchungen über Trypanosomen und Hämosporidien. Nach meiner Ansicht ist jedoch die Kernnatur der Blepharoplasten nicht hinreichend erwiesen; ferner ist das Vorkommen von Blepharoplasten bei den Flagellaten nicht auf die von Hartmann zusammengefaßten Formen beschränkt; vor allem ist aber in den Befruchtungsverhältnissen keine Uebereinstimmung nachgewiesen; daher halte ich es für richtiger, in einem Lehrbuch eine abwartende Stellung einzunehmen. Obwohl richtige Anschauungen den Gedankengängen von Hartmann zugrunde liegen, ist die Erfahrungsgrundlage für eine so eingreifende Aenderung noch nicht genügend. Indem ich die von ihm vorgeschlagene Abänderung des Systems auch in der jetzigen 3. Auflage dieses Buches nicht zur Grundlage der Anordnung mache, wende ich mich nicht prinzipiell gegen sie. Habe ich doch selbst vor Jahren darauf hingewiesen, daß eine derartige Reform einmal notwendig sein wird.
Die Aufteilung der Klasse der Sporozoen wird vielleicht in nicht allzu ferner Zeit erfolgen müssen. Doch wird dann eher eine gänzliche Auflösung der Klasse und Verteilung ihrer Angehörigen auf die Klassen der Mastigophoren und Rhizopoden und eventuell auf andere Gruppen des Organismenreiches sich als praktisch und als natürlich erweisen. Vorläufig können wir aber ebensogut die Sporozoen als einheitliche Klasse behandeln, wie wir dies ebenfalls aus praktischen Gründen mit den Würmern durchführen, obwohl wir von der polyphyletischen Zusammensetzung dieses Tierstammes überzeugt sind. Nähere Begründung meiner Stellungnahme findet sich im speziellen Teil bei den betreffenden Abteilungen.
Ich behalte daher das von mir seinerzeit angewandte System im großen und ganzen bei, indem ich mir einige geringere Abänderungen anbringe. Es geschieht dies nicht aus prinzipiellem Konservativismus in systematischen Fragen, sondern weil ich unsere Kenntnisse für nicht genügend geklärt halte, um solche einschneidende Umgruppierungen zu erlauben. Die rapid fortschreitende Forschung veranlaßt immerfort zu neuen Klassifikationsversuchen. Dieselben sind für den Fortschritt der Forschung sehr nützlich und regen vielfach zu neuen Gedankengängen [S. 325]an. So wichtig sie aber in wissenschaftlichen Arbeiten und besonderen Uebersichten sind, so wenig angebracht wäre es, in einem umfassenden Handbuch jede derartige Neuerung, ehe sie sehr fest begründet ist, zur Anwendung zu bringen. Es würde dadurch die Uebersichtlichkeit zu sehr leiden, und der Benutzer des Buches würde mit unnötigen Schwierigkeiten kämpfen, fände er bestimmte Gruppen in jeder Auflage an anderer Stelle.
Da die Spirochäten wissenschaftlich wichtige Beziehungen zu den Protozoen besitzen, so habe ich sie in diesem Buch mitbehandelt, und zwar ihrer einfacheren Organisation entsprechend vorangestellt. Damit ergab sich die Notwendigkeit, die Flagellaten vor den Rhizopoden zu behandeln, da die Brücke, welche von bakterienähnlichen Organismen zu den Protozoen durch die Spirochäten geschlagen wird, zu Mastigophoren führt.
System der Protozoen.
Stamm: Protozoa.
- Unterstamm: Plasmodroma Doflein.
- Klasse: Mastigophora Diesing.
- Unterklasse: Flagellata Cohn em. Bütschli.
- Ordnung: Protomonadina Blochmann.
- „ Polymastigina Bütschli und Blochmann.
- „ Euglenoidina Klebs.
- „ Chromomonadina Blochmann.
- „ Phytomonadina Blochmann.
- Unterklasse: Dinoflagellata Bütschli.
- Ordnung: Adinida Bergh.
- „ Dinifera Bergh.
- Unterklasse: Cystoflagellata Haeckel.
Anhang zu den Mastigophora:
Trichonymphidae Leidy.
Mastigamoebidae Bütschli.
- Unterklasse: Flagellata Cohn em. Bütschli.
- Klasse: Rhizopoda v. Siebold.
- Ordnung: Amoebina Ehrenberg.
- „ Mycetozoa De Bary.
- „ Foraminifera d’Orbigny.
- „ Heliozoa Haeckel.
- „ Radiolaria Joh. Müller.
- Klasse: Sporozoa Leuckart.
- Unterklasse: Telosporidia Schaudinn.
- Ordnung: Coccidiomorpha Doflein.
- Unterordnung: Coccidia Leuckart.
- „ Haemosporidia Danilewski em. Schaudinn.
- Ordnung: Gregarinida Aimé Schneider em. Doflein.
- Unterordnung: Eugregarinaria Doflein.
- „ Schizogregarinaria Léger.
- Ordnung: Coccidiomorpha Doflein.
- [S. 326]
Unterklasse: Neosporidia Schaudinn.
- Ordnung: Cnidosporidia Doflein.
- Unterordnung: Myxosporidia Bütschli.
- „ Microsporidia Balbiani
- „ Actinomyxidia Caullery und Mesnil.
- Ordnung: Sarcosporidia Balbiani.
- „ Haplosporidia Caullery und Mesnil.
- Ordnung: Cnidosporidia Doflein.
- Unterklasse: Telosporidia Schaudinn.
- Klasse: Mastigophora Diesing.
- Unterstamm: Ciliophora Doflein.
- Klasse: Ciliata Bütschli.
- Ordnung: Holotricha Stein.
- „ Heterotricha Stein.
- „ Oligotricha Bütschli.
- „ Hypotricha Stein.
- „ Peritricha Stein.
- Klasse: Suctoria Bütschli.
- Klasse: Ciliata Bütschli.
System der Protozoen nach Hartmann.
- Klasse: Sarcodina.
- „ Cnidosporidia.
- „ Mastigophora.
- „ Trichonymphidae.
- „ Telosporidia.
- „ Infusoria.
Literatur über die Systematik der Protozoen.
|
457.
|
Awerinzew, S., Ueber die Stellung im System und die
Klassifizierung der Protozoen. In: Biol. Centralbl. Vol. 30. 1910. p. 465.
|
|
458.
|
Blochmann, F., Die mikroskopische Tierwelt des
Süßwassers. Abt. I. Protozoa. 2. Aufl. Hamburg 1895.
|
|
459.
|
Bütschli, O., Protozoa. In: Bronns Klassen und
Ordnungen des Tierreichs. Vol. 1. 1880–1889.
|
|
460.
|
Doflein, F., Das System der Protozoen. In: Arch. f.
Protistenk. Vol. 1. 1902. p. 169.
|
|
461.
|
Hartmann, M., Das System der Protozoen. In: Arch.
f. Protistenk. Vol. 10. 1907. p. 139.
|
|
462.
|
— Untersuchungen über Bau und Entwicklung der
Trichonymphiden. In: Festschr. zum 60. Geb. Rich. Hertwigs. Vol. 1. 1910.
p. 349.
|
|
463.
|
— und Jollos, V., Die Flagellatenordnung
„Binucleata“. In: Arch. f. Protistenk. Vol. 19. 1910. p. 81.
|
|
Die gesamte ältere Literatur ist bei Bütschli ausführlich dargestellt. |
|
[S. 327]
VI. Technik der Protozoenuntersuchung.
Die Technik der Protozoenuntersuchung erfordert eine vielseitige Schulung des Forschers. Jedes Protozoon kann uns bei genauerem Studium vor Probleme führen, welche mit den Fundamenten der Wissenschaft vom Leben zusammenhängen und für deren Untersuchung der forschende Protozoologe vorbereitet sein sollte. Voraussetzung ist für ihn also gründliche Kenntnis der chemischen und physikalischen Untersuchungsmethoden und Beherrschung der zoologischen Technik, speziell der Methoden der Zellforschung. Oft wird er in die Lage kommen, Versuchsanordnungen zu erproben, welche sonst vorwiegend von Physiologen, Botanikern und Bakteriologen angewandt werden. Schmerzlich wird er es oft empfinden, wenn ihm Kenntnisse auf medizinischem und pathologisch-anatomischem Gebiete fehlen. In vielen Fällen ist heutzutage eine Lösung der sich bietenden Aufgaben nur durch das Zusammenwirken von Vertretern verschiedener Disziplinen, vor allem von Zoologen und Medizinern, möglich.
Mannigfache Erfahrungen veranlassen mich, nachdrücklich zu betonen, daß für den Protozoologen die erste Regel sein muß, nicht zu vergessen, daß die Protozoen lebende Wesen sind. Grundlage jeder Untersuchung von Protozoen muß also das Studium der lebenden Tiere sein, und zwar
- 1) unter den natürlichen Existenzbedingungen,
- 2) in künstlichen Kulturen,
- 3) unter dem Deckglas auf dem Objektträger.
Der geübte Protozoenkenner schärft seinen Blick für das Vorkommen von Protozoen in der freien Natur so, daß er nicht nur mit bloßem Auge das Vorkommen von grünen Euglenen und Chromomonadinen erkennt, sondern auch aus dem Charakter eines Gewässers beurteilen lernt, ob es reich an Diatomeen und Thalamophoren, oder ob es mit Fäulnisbewohnern erfüllt ist, oder ob die Fauna ganz spärlich sein wird.
Planktonische Formen des Süßwassers und des Meeres fängt man mit den anderen Planktonorganismen zusammen in feinen Netzen (Planktonnetzen); man bringt das gefangene Material in große Glasgefäße mit viel Wasser und sucht aus diesem dann die zu studierenden Protozoen heraus. Um sie eine Zeitlang am Leben zu halten, muß man sie in reichliches reines Wasser bringen.
Viel Zeit und Arbeit kann man sich ersparen, wenn man sich beizeiten daran gewöhnt, in dem in ein Glas geschöpften Wasser die [S. 328]nicht allzu kleinen Protozoen mit bloßem Auge oder mit Hilfe einer Lupe zu erkennen. Actinosphärien, Amöben, Spirostomum, Stentor und viele andere Formen kann man leicht ohne Anwendung des Mikroskops erkennen und einzeln herausfangen. Zu diesem Zweck verwendet man entweder Pipetten mit Gummihütchen oder in eine Spitze ausgezogene Glasröhren, welche man ins Wasser eintaucht, indem man ihr anderes Ende mit der Fingerspitze zuhält. Hat man die Spitze dem zu fangenden Protozoon genähert, so läßt man durch Abheben der Fingerspitze das Wasser je nach der Zartheit des Protozoons, welches dabei mitgerissen wird, mehr oder weniger plötzlich eintreten. Dieselbe Methode muß man auch oft unter dem Mikroskop bei stärkeren Vergrößerungen anwenden, wobei man dann zum Einsaugen der Objekte zu Kapillaren ausgezogene Glasröhrchen benützt.
Zum Aufsuchen und Beobachten einzelner Protozoen an den Wänden von Glasaquarien oder größeren Kulturgläsern hat sich das Horizontalmikroskop sehr bewährt.
Um ein Protozoon genau studieren zu können, muß man es in allen Stadien seines Zeugungskreises beobachten. Dies können wir nur erzielen, wenn wir seine natürlichen Existenzbedingungen sorgfältig erforschen. Bei freilebenden Formen z. B. müssen wir zunächst die Natur des Gewässers, in welchem wir es auffanden, feststellen: ob es sauerstoffreich oder sauerstoffarm, reich an organischen Substanzen, an Salzen etc. ist. In der Praxis verfährt man in der Regel so, daß man eine größere Quantität des Wassers, in welchem man die betreffende Art gefunden hat, ins Laboratorium mitnimmt, um es bei der Anlegung der Kulturen zu verwenden. Dies Verfahren wird manche Mißerfolge ersparen, da viele Protozoen gegen Schwankungen in der Zusammensetzung des umgebenden Mediums sehr empfindlich sind, z. B. gehen Tiere aus kalkarmem Wasser beim Uebersetzen in kalkreiches Wasser leicht zugrunde.
Sehr wichtig ist die Feststellung der Nahrung der zu züchtenden Form. Bei größeren Arten kann sie durch Beobachtung im Kulturgefäß nachgewiesen werden. Vielfach wird eine Untersuchung der Nahrungsvakuolen zum Ziel führen.
Hat man festgestellt, ob es sich um einen Bakterien-, einen Infusorien-, Algen-, Diatomeenfresser usw. handelt, so gilt es, die betreffende Nahrung für das Tier zu beschaffen. Für Bakterienfresser, also z. B. Paramaecium, Colpoda etc. erzielt man leicht die nötige Bakterienmasse, indem man kleine Stücke Muschelfleisch (gut ausgewaschene Teile vom Fuß einer Anodonta oder Unio), auch Salatblätter, Gras, Heu, Stroh mit Wasser übergießt und so faulen läßt. Die bei diesem Futter gezüchteten Infusorien sind ihrerseits wiederum geeignet zur Fütterung zahlreicher Infusorienfresser. Es ist sehr wesentlich zu verhüten, daß in solchen Kulturen die Fäulnis nicht überhand nimmt, sonst sterben die Protozoen ab. Algen- und Diatomeenrasen sind in gut dem Tageslicht ausgesetzten Gefäßen in reinem Wasser oder in Kulturlösungen leicht zu züchten. In Wasser aus Moor- und Sumpfgräben kann man überall leicht die geeigneten Formen erhalten. Da ein guter Rasen zu seiner Entwicklung längere Zeit braucht, ist es vorteilhaft, solche bereit zu halten, um sie bei gegebener Gelegenheit mit den zu züchtenden Protozoen zu besiedeln.
[S. 329]
Ueber die Herstellung von Infusionen und die in solchen häufigeren Formen finden sich Angaben oben auf S. 288. Mißlingen von Kulturen wird nicht selten dadurch bedingt, daß manche Protozoenformen sich gegenseitig ungünstig beeinflussen. Manche größeren Infusorien, vor allem aber Rhizopoden (Amöben etc.), vertragen das Auftreten von zahlreichen kleinen Ciliaten und Flagellaten in den Kulturen absolut nicht. Die sehr lebhaften kleinen Tiere stoßen und drängen an den größeren Tieren so viel herum, daß die mechanischen Insulte den letzteren verderblich werden. Chemische Schädigungen durch Stoffwechselprodukte sind ebenfalls häufig zu konstatieren.
Bei geeigneter Ernährung kann man oft in wenigen Tagen aus 2–3 Individuen einer Protozoenart viele Hundert heranzüchten. Da die meisten Protozoen die Zucht unter dem Deckglas nicht sehr gut vertragen, empfiehlt es sich, sie entweder in etwas größeren Wasserportionen in Uhrgläsern oder „im hängenden Tropfen“ zu kultivieren. Beide Methoden haben den Vorteil, daß das Wasser mit einer größeren Oberfläche in Berührung mit der Luft ist. Infolgedessen müssen aber auch besondere Maßregeln getroffen sein, um die Verdunstung zu verhüten.
Für die Zucht im hängenden Tropfen werden kleine feuchte Kammern nach F. E. Schulze in den Handel gebracht (s. Fig. 292). Es sind dies dicke Objektträger mit eingeschliffener Rinne, auf welche ein Glasring aufgesetzt wird, welcher das Deckglas trägt. An der Unterseite des Deckglases wird der Kulturtropfen angehängt, darauf das Deckglas auf den Glasring aufgesetzt und seine Ränder mit Wachs oder Vaseline abgedichtet. Dann wird der Ring auf den Objektträger aufgesetzt, dessen Rinne man vorher mit Wasser gefüllt hat, und auch hier die Spalte mit Vaseline luftdicht verschlossen. So wird eine feuchte Kammer gebildet, in welcher der hängende Tropfen sich tagelang erhalten kann, ohne zu verdunsten. Beginnt nach einiger Zeit sich dennoch Verdunstung zu zeigen, so muß man den Tropfen ergänzen und den Verschluß revidieren.
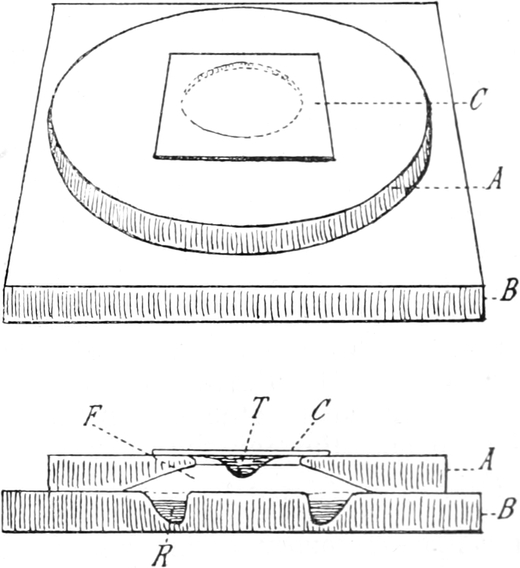
Die größeren Kulturen legt man in einem Uhrglas mit geschliffenem Rand an; ein genau passendes zweites Uhrglas wird als Deckel verwendet, um die Verdunstung und das Hineinfallen von Fremdkörpern, besonders von Staub, zu verhüten. Sehr viele Protozoenkulturen leiden sehr schnell unter Staubverunreinigung. Gegen Verdunstung werden solche Uhrglaskulturen noch weiterhin gesichert, indem man die aufeinander passenden Ränder der Uhrgläser mit Vaseline oder [S. 330]Lanolin bestreicht (Vorsicht, daß keine Fettschicht auf der Kulturflüssigkeit entsteht!).
In solchen Uhrglaskulturen kann man Protozoenstämme jahrelang fortzüchten; sie sind besonders wichtig zum Studium der Physiologie und der Fortpflanzungserscheinungen der Protozoen. Man muß die Tiere in solchen Kulturen sehr sorgfältig pflegen. Je nach ihrem Sauerstoffbedürfnis muß das Wasser erneuert werden, müssen die Schmutzpartikel und Nahrungsreste entfernt werden. Regelmäßige Fütterung ist erforderlich; besonders bei Rhizopoden ist es nützlich, bei jeder solchen Prozedur die Kultur leicht zu schütteln.
Ganz andere Methoden müssen natürlich beim Studium der parasitischen Protozoen angewandt werden. Hier muß dem Studium des Parasiten in der Regel das Studium der Biologie seines Wirtes vorausgehen; in vielen Fällen ist auch eine genaue Untersuchung der Anatomie des Wirtstieres notwendig. Man vergleiche hierzu die Entdeckungsgeschichte des Generationswechsels der Coccidien, der Malariaparasiten u. a. Vor allem die Forschungen von Schaudinn sind durch die weitblickende Gründlichkeit der Vorstudien mustergültig. Da dies Studium von Fall zu Fall besondere Vorkehrungen und Versuchsanordnungen erfordert, so können dafür keine Regeln aufgestellt werden.
Sehr wichtig ist beim Kultivieren von Protozoen die peinlichste Sauberkeit. Kulturgefäße, Uhrgläser, Objektträger, Pipetten, Glasröhren sollten auf das sorgfältigste gereinigt werden und dann stets nur mit Wasser in Berührung gebracht werden. Man hüte sich vor allem Gefäße etc. beim Kultivieren zu verwenden, welche in Berührung mit Sublimat oder anderen Konservierungsflüssigkeiten gekommen sind. Minimale Spuren von solchen genügen oft, um die Kulturen anormal zu machen oder sie schnell zum Aussterben zu bringen. Will man ganz sicher gehen, so verwende man beim Züchten nur neue Gefäße etc.
Ganz besondere Vorsicht erfordern natürlich die Versuche, Protozoen in ähnlicher Weise wie Bakterien in Reinkulturen zu züchten. Theoretisch ist natürlich nichts gegen die Möglichkeit solcher Reinkulturen in geeigneten Nährmedien einzuwenden. Praktisch scheitert aber bisher die Mehrzahl der Versuche an verschiedenen Schwierigkeiten:
1) Es ist fast unmöglich, die Mehrzahl der freilebenden oder parasitischen Protozoen in ein Nährmedium zu übertragen ohne dasselbe mit zahlreichen am und im Körper des Protozoons haftenden Bakterien zu infizieren.
2) Die Organisation sehr vieler Protozoen veranlaßt sie zu einer ganz bestimmten Art der Nahrungsaufnahme, z. B. durch Schlucken oder Umfließen, wobei sie auf geformte Nahrung in kleineren Stücken angewiesen sind. Ist die Hautschicht einer solchen Form für die geeigneten Nährstoffe nicht durchlässig, so kann eine Ernährung auf osmotischem Wege nicht erfolgen und die Tiere gehen zugrunde, obwohl alle für ihren Stoffwechsel notwendigen Substanzen vorhanden sind. Es ist ja oft sogar sehr schwer, Protozoen mit einer ihnen nicht ganz entsprechenden natürlichen Nahrung zu füttern. Manche Amöbenspecies gehen z. B. zugrunde, wenn man ihnen etwas zu große Diatomeen zum Fressen gibt. Sie verhungern, weil sie nicht genug davon in einer gegebenen Zeit bewältigen können.
[S. 331]
3) Die Entwicklungsgeschichte vieler Protozoen macht sie in so hohem Grade von speziellen biologischen Bedingungen abhängig, daß es nicht gelingt, die verschiedenen Stadien im künstlichen Medium zu züchten.
Immerhin ist es denkbar, daß für manche Formen durch intensives Studium die geeigneten Kulturbedingungen gefunden werden, durch deren Modifikation man eventuell sogar die einzelnen Stadien sollte hervorrufen können. Von Kulturversuchen mit guten oder doch annähernden Erfolgen seien folgende angeführt.
I. Amöbenkulturen.
Echte Reinkulturen von Amöben zu züchten ist bisher noch nicht gelungen, und es erscheint auch ein Versuch hierzu nicht sehr aussichtsreich. Da jedoch viele Amöben sich vorwiegend von Bakterien und kleinen Mikroorganismen ernähren, so hat man durch Züchtung auf Nährböden, welche für solche günstig sind, sehr individuenreiche, kräftige Amöbenkulturen erzielt. Es handelt sich also um eine Methode, den Amöben ohne immer erneute Fütterung möglichst geeignete Ernährungsbedingungen darzubieten.
Man impft zu diesem Zweck Amöben in sterile Stroh- oder Heuinfuse, oder noch besser auf Nährböden, welche aus Agar oder Gelatine unter Beimischung von Heu- oder Strohinfus etc. je nach der betreffenden Amöbenart hergestellt sind. So kann man entweder im Kondenswasser oder sogar auf den festen Nährboden Kulturen anlegen, indem mit den Amöben die Mikroorganismen, von denen sie leben, übergeimpft werden und mitgedeihen. So kann man auch eventuell mit der Zeit dazu gelangen, die Amöben in Reinkulturen einer ihnen zusagenden Bakterienart zu züchten.
Hartmann empfiehlt Anlegung von Kulturen aus Stroh-, Erd- oder Lohinfusionen, oder aus dem ausgepreßten Kloakeninhalt von Eidechsen, um größere Mengen von Amöben zu erhalten. Man entnimmt aus der amöbenhaltigen Kahmhaut an der Oberfläche der Infusionen kleine Portionen, die man mit Wasser verrührt und dann auf den Agar bringt, während man den Inhalt der Eidechsenkloake direkt aufstreichen kann.
Den Agar gießt man in flache Schalen (Petrischalen) aus, auf ihm wachsen die Amöben mit dem Bakterienrasen meist oberflächlich, so daß sie direkt mit dem Mikroskop betrachtet werden können.
Agarmischung nach Hartmann:
|
Agar
|
0,5
|
|
Leitungswasser
|
90,0
|
|
gewöhnl. alkalische Nährbouillon
|
10,0
|
Tjujitani hat Protozoen aus verschiedenen Gruppen, auch Amöben, in sterilen Kulturen reingezüchtet, indem er sie mit abgetöteten Bakterien ernährte.
In ähnlicher Weise könnte man vielleicht zu einer absoluten Reinkultur gelangen, indem man Protozoen mit einer geeigneten Mischung von Nährstoffen fütterte, welche in sehr feiner Form gefällt wären, so daß auch Arten, welche gewöhnt sind, geformte Nahrung aufzunehmen, dazu gebracht werden könnten, bei künstlicher steriler Fütterung zu leben.
[S. 332]
II. Flagellatenkulturen.
A. Kulturen von holophytischen Formen.
Holophytische Flagellaten können leicht in Nährlösungen gezüchtet werden, welche den für Algen gebräuchlichen entsprechen. Doch handelt es sich dabei in der Regel nicht um Reinkulturen.
Immerhin ist es schon gelungen, einige Formen in fast vollkommen reinen Kulturen zu züchten. Dies gilt insbesondere für Arten der Gattung Euglena; neuerdings hat Küster auch eine Peridinee in ähnlicher Weise gezüchtet. Die Euglenen beanspruchen außer anorganischen Nährsalzen das Vorhandensein von organischen Substanzen in der Nährlösung, um gut zu gedeihen. Wenn man Flagellaten auf Nährböden züchtet, denen man durch Zusatz von Gelatine, Agar etc. eine feste Konsistenz verliehen hat, so gehen die Individuen in Ruhezustände über und vermehren sich auch, ohne wieder zur freien Beweglichkeit überzugehen.
Es sind bisher noch nicht sehr viele Erfahrungen auf diesem Gebiet gesammelt worden, daher möge die Zusammenstellung weniger Rezepte von Nährlösungen genügen.
1. Für Algen gebräuchliche anorganische Nährlösungen.
a) Die gewöhnliche Knopsche Nährlösung:
|
auf
|
1000 g
|
Wasser
|
|
0,25 g
|
Magnesiumsulfat
|
|
|
1,00 g
|
Calciumnitrat
|
|
|
0,25 g
|
saures phosphorsaures Kalium
|
|
|
0,12 g
|
Chlorkalium
|
|
|
und eine Spur Eisenchlorid.
|
||
b) Nährlösung nach Molisch:
|
auf
|
1000 g
|
Wasser
|
|
0,2 g
|
Kaliumnitrat
|
|
|
0,2 g
|
Dikaliumphosphat (K2HPO4)
|
|
|
0,2 g
|
Magnesiumsulfat
|
|
|
0,2 g
|
Calciumsulfat.
|
c) Besonders für Bewohner von Torf- und Moorwässern ist kalkfreie Nährlösung empfehlenswert, z. B. Oehlmanns Rezept:
|
auf
|
990 g
|
Wasser
|
|
2 g
|
Magnesiumsulfat
|
|
|
4 g
|
Mononatriumphosphat
|
|
|
4 g
|
Kalisalpeter
|
|
|
wodurch
|
1000 g
|
einer 1-proz. Lösung entstehen,
|
welche zum Gebrauch auf 0,1 oder 0,2 Proz. verdünnt werden muß.
2. Euglenen, welche auch in anorganischen Nährlösungen gedeihen, vermehren sich besser in folgenden, auch für manche anderen Formen empfehlenswerten Nährmedien (nach Zumstein):
|
0,5
|
Pepton
|
|
0,5
|
Traubenzucker
|
|
0,2
|
Zitronensäure
|
|
0,02
|
MgSO4 + 7 H2O
|
|
0,05
|
KH2PO4
|
|
100
|
Wasser
|
[S. 333]
oder:
|
1,00
|
Pepton
|
|
0,4
|
Traubenzucker
|
|
0,4
|
Zitronensäure
|
|
0,02
|
MgSO4 + 7 H2O
|
|
0,05
|
KH2PO4
|
|
0,05
|
NH4NO3
|
|
98
|
Wasser
|
Die Zitronensäure dient als Desinfektionsmittel zur Unterdrückung des Bakterienwachstums und kann sogar in Konzentrationen bis zu 1–2 Proz. zugesetzt werden. Näheres über Nährlösungen, welche für Algen, Pilze etc. erprobt sind, mit gewissen Modifikationen aber auch für Protozoen angewandt werden können, findet sich bei E. Küster, Kultur der Mikroorganismen, Leipzig 1907.
B. Kulturen von Blutparasiten.
Nachdem es zunächst gelungen war, Trypanosomen im Blut ihres Wirts, welchem man Zitronensäure resp. zitronensaures Natron zur Desinfektion zugesetzt hatte, längere Zeit am Leben zu erhalten, haben Novy und McNeal auch Methoden angegeben, um Trypanosomen auf künstlichen Nährböden zu züchten. Darüber findet sich Näheres im speziellen Teil.
Trypanosoma Lewisi ist leichter zu züchten als pathogene Trypanosomen, doch gelang es, auch eine Anzahl der letzteren in künstlichen Nährlösungen zu züchten.
Da das Vorhandensein von Hämoglobin sich als entscheidend für das Gelingen der Kulturen herausstellte, so verwendet man stets Tierblut zur Anfertigung des Nährbodens, und zwar hat sich Kaninchenblut am besten bewährt, welches im Verhältnis 1 : 1, oder 2 : 1 mit Agar vermischt wird (für Tr. Lewisi). Für Trypanosoma Brucei haben Mc Neal und Novy am meisten folgende Zusammensetzung des Nährmediums empfohlen:
|
Extrakt von 125 g Rindfleisch in
|
1000 g
|
Wasser
|
|
Agar
|
20 g
|
(nach Nocht und
Mayer besser 25 g) |
|
Pepton
|
20 g
|
|
|
Kochsalz
|
5 g
|
|
|
Normal Na2CO3
|
10 ccm
|
Je ein Teil dieser Mischung wird bei einer Temperatur von 50–60° C mit der doppelten Menge defibrinierten Kaninchenbluts gemischt[23].
Diese Nährböden werden steril in Reagenzgläser gebracht, welche am geeignetsten 24 Stunden bei 37° C gehalten werden, wobei sich reichlich Kondenswasser bildet; außerdem werden während dieser Zeit diejenigen Röhrchen kenntlich, welche nicht ganz steril waren. Das Blut zur Anlegung der Kultur wird dem infizierten Tier (nach vorheriger Chloroformierung) aus dem Herzen oder einem Gefäße mit steriler Lührscher, resp. Pravazscher Spritze entnommen, und dann mit etwas physiologischer Kochsalzlösung vermischt. Man impft dann von dem Blut einige (meist 3) Oesen (sterile Platindrahtöse) oder Tropfen aus steriler Pipette in je ein Agarröhrchen.
[S. 334]
Die Kulturen gedeihen am besten bei Zimmertemperatur (resp. 18–25° C), bei 37° C ist die Entwicklung energischer, doch halten sie sich dann viel kürzer, wohl infolge der Zersetzung des Hämoglobins. Während z. B. Trypanosoma Lewisi bei Zimmertemperatur sich über ein Jahr züchten läßt, gehen die Kulturen bei 37° nach 3 Wochen ein.
In den Kulturen wachsen die Trypanosomen am besten im Kondenswasser, aber auch im Agar, und zwar in Form von Rosetten- resp. kugelförmigen Kulturen von oft Tausenden von Individuen, über welche sich Näheres im speziellen Teil findet.
Ueber Spirochätenkulturen findet sich das Nötige ebenfalls im speziellen Teil angegeben.
III. Technik der Untersuchung von Protozoen auf dem Objektträger.
In den nachfolgenden Zeilen sind die geeignetsten Methoden zur Untersuchung von Protozoen verzeichnet. Sie sollen nur ermöglichen: 1) die Tiere im Leben zu studieren, 2) im gegebenen Falle ein Schnellpräparat zur Diagnose herzustellen, und 3) ein gutes Dauerpräparat zum Studium oder zur Demonstration zu verfertigen. Für die Untersuchung spezieller Fragen sind ganz besondere Methoden notwendig, deren Darstellung nicht dem Zwecke dieses Buches entsprechen würde. Vorzügliche Darstellungen der Methodik der Protozoenuntersuchung finden sich in den speziell technischen Fragen gewidmeten, S. 341 zitierten Leitfäden von Prowazek und von Hartmann und Kisskalt.
1. Untersuchung der lebenden Protozoen.
Die meisten Protozoen sind ohne Schwierigkeit lebend unter das Mikroskop zu bringen. Am ratsamsten ist es, die Tiere in der Flüssigkeit, in welcher man sie findet, auf den Objektträger zu bringen, also z. B. Süßwasserprotozoen in Süßwasser, Meeresbewohner in Meereswasser, Darmamöben im Darmschleim, Blutparasiten im Blut etc. Ist jedoch in den letzteren Fällen (z. B. bei Parasiten aus inneren Organen von Tieren) nicht genügend solche Flüssigkeit vorhanden, so kann man die Protozoen in einen Tropfen physiologischer Kochsalzlösung (destilliertes Wasser 100, Kochsalz 0,75) bringen, welche die meisten Parasiten ohne Schaden ertragen. Bei einer Zimmertemperatur von 18–20° C bleiben freilebende Protozoen und Parasiten aus Kaltblütern meist ziemlich lange am Leben, wenn man das Eintrocknen auf dem Objektträger verhütet; dies kann man erzielen, indem man das Deckglas ringsum mit Wachs oder Vaseline abschließt. Parasiten aus Tieren mit höherer Körpertemperatur untersucht man auf dem heizbaren Objekttisch oder mit Hilfe der sog. Nuttalschen Kammer, einer Umhüllung, welche gestattet, das ganze Mikroskop in konstante Temperatur zu bringen. Es empfiehlt sich, das Deckgläschen vor dem Auflegen auf den vier Ecken mit kleinen Wachsfüßchen[24] zu unterstützen, [S. 335]man vermeidet dadurch ein Zerdrücken der Protozoen und hat zudem die Möglichkeit, die Tiere durch Abschmelzen der Wachsfüßchen (indem man die letzteren mit einem heißen Draht berührt), festzulegen und zu pressen. Die Methode kann von Vorteil sein, wenn man Kern und kontraktile Vakuole am lebenden Tier aufsuchen will, da diese Bildungen nicht selten am gepreßten Tier klar hervortreten. Will man aber diese Methode nicht anwenden, so muß man jedenfalls eine dünne Borste zwischen Objektträger und Deckglas legen. Viel falsche Diagnosen beim Vorkommen parasitischer Protozoen sind dadurch verursacht, daß die Parasiten durch den Druck des Deckglases zerdrückt werden und, da zerdrückte Protozoen sehr schnell zerfließen, der Beobachtung entgehen. Um die Bewegungen der Protozoen zu studieren, ist es oft von Vorteil, diese zu verlangsamen, ohne das Tier zu pressen. Zu diesem Zwecke setzt man der Flüssigkeit, in welcher man das Tier untersuchen will, etwas Kirschgummi, Traganthgummi, Quittensamenschleim, oder auch Semen Psyllii oder Alga Caragaheen zu. Um besondere Phänomene zu beobachten, setzt man auch der Kulturflüssigkeit Tusche, Anilinschwarz etc. zu, so daß die Protozoenkörper sich hell auf dunklem Grund abheben.
Man untersucht lebende Protozoen am besten bei nicht zu grellem Tageslicht, indem man den Kondensor des Mikroskops ausschaltet und relativ enge Blenden anwendet; so erhält man ein gutes Strukturbild, bei welchem man besonders die in der Lichtbrechung sich schwach unterscheidenden feinen Strukturen gut studieren kann, z. B. Geißeln, Cilien, undulierende Membranen etc. Es empfiehlt sich, solche Untersuchungen mit achromatischen Systemen zu machen. Für Untersuchungen lebender Protozoen hat sich neuerdings auch die Dunkelfeldbeleuchtung sehr bewährt, bei welcher man allerhand Strukturen, besonders Geißeln und lebende Spirochäten, ausgezeichnet beobachten kann, da sie sich selbstleuchtend auf dunklem Grund abheben. Dazu sind künstliche Beleuchtung und besondere Einrichtungen am Mikroskop notwendig, welche durch die großen optischen Firmen hergestellt werden.
Viele Strukturen, welche man beim lebenden Tier gar nicht oder schwer erkennen kann, macht man durch Fixierung und Färbung des Tieres sichtbar. Doch kann man auch Färbung des lebenden Tieres, sog. „Vitalfärbung“, erzielen. Für Färbung von Granulationen des Plasmas haben sich Methylenblau, Bismarckbraun, Brillantkresylblau, für Vakuoleninhalt Bismarckbraun, Neutralrot, Neutralviolett, verdünnte Hämatoxylinlösung, für vitale Kernfärbung vor allem Neutralrot, ferner auch Neutralviolett, Auramin etc. bewährt. Man wendet diese Farbstoffe in äußerst schwachen Lösungen an (1 : 3000, 1 : 10000). Es lassen sich durch diese Farbstoffe die Teile des Protozoenkörpers sehr schön färben, ohne daß das Tier in seinen Lebensfunktionen erkennbar geschädigt würde. Bewegung, Ernährung, Fortpflanzung gehen bei den gefärbten Tieren ungestört vor sich und können zum Teil sehr gut studiert werden.
Durch Abtötung mit verschiedenen Substanzen und Färbung kann man manche Strukturen sehr klar machen. Man wendet für verschiedene Arten von Protozoen, für verschiedene Strukturen und Bestandteile des Körpers verschiedene Methoden an. Von diesen Methoden werden hier nur die gebräuchlichsten behandelt; manche speziellen Methoden werden später im speziellen Teil zur Darstellung gelangen, im übrigen sei auf Prowazeks Taschenbuch der Technik verwiesen.
[S. 336]
Allen den Färbungsmethoden ist gemeinsam, daß das Farbenbild gegenüber dem Strukturbild vorgezogen wird. Man wendet daher mit Vorteil den Kondensor, helle Lichtquellen, relativ weitere Blenden und hier mit dem größten Nutzen die apochromatischen Linsen an.
Vielfach werden besondere künstliche Beleuchtungsarten angewandt. Eine Petroleum- oder Gaslampe, deren Licht man zweckmäßig durch eine mit blauer ammoniakalischer Kupfersulfatlösung gefüllte Glaskugel (Schusterkugel) konzentriert, bietet schon eine gute Beleuchtung. In manchen Fällen wendet man Auerlicht, Zirkonlicht oder starke elektrische Lichtquellen an.
2. Untersuchung der abgetöteten Protozoen.
Da die Körpersubstanzen der Protozoen zum Teil sehr leicht quellen resp. schrumpfen, so muß man bei ihrer Konservierung sehr sorgfältig verfahren. Man muß rasch tötende und womöglich gleichzeitig gerinnungsfördernde, härtende Mittel einwirken lassen. Und später muß man je eine der genau wie bei der histologischen Technik in bestimmter Reihenfolge anzuwendenden Flüssigkeiten sehr sorgfältig durch die andere verdrängen, um Schrumpfungen zu vermeiden. Vor allem gilt dies von der Ueberführung aus wässerigen Lösungen in Alkohol, von diesem in Nelkenöl, Xylol, Chloroform, Kanadabalsam etc. Man vermeidet das Schrumpfen, indem man je nach der Zartheit des Objekts eine mehr oder minder große Zahl von Mischungsstufen einschaltet, also z. B. das Objekt nicht direkt von Wasser in absoluten Alkohol, sondern zuerst in 20-proz., dann in 50-proz., dann in 70-proz., dann in 90-proz. und schließlich erst in absoluten Alkohol bringt. Bei vielen Objekten genügen als Stufen 50-proz., 90-proz., absoluter Alkohol.
a) Einzelmethode.
Hat man nur wenige Individuen von Protozoen zur Verfügung, so muß man die Fixierung und Färbung auf dem Objektträger vornehmen. Da kommen hauptsächlich zwei Methoden in Betracht:
- 1) Behandlung unter dem Deckglas,
- 2) Aufklebemethode.
1. Behandlung unter dem Deckglas.
In der üblichen Weise unter das Deckglas zur Beobachtung gebrachte Protozoen, welche womöglich durch Abschmelzen der Wachsfüßchen etwas festgeklemmt sind, tötet man ab, indem man die Konservierungsflüssigkeit von der einen Seite mit einer Pipette unter das Deckglas treten läßt, während man zu gleicher Zeit von der anderen Seite mit Hilfe von schmal zugeschnittenen (deckglasbreiten) Streifen von Filtrierpapier die Kulturflüssigkeit absaugt. Ist das Protozoon abgetötet und fixiert, so läßt man in derselben Weise mit der Pipette zum Auswaschen, zum Härten, Färben, Differenzieren, Aufhellen etc. von der einen Seite Flüssigkeit zutreten, während man von der anderen Seite die vorausgegangene Flüssigkeit absaugt. Jedesmal muß durch wiederholtes Verfahren die eine Flüssigkeit vollkommen verdrängt werden, ehe die nächste zugesetzt wird. Sehr sorgfältig müssen mit dem absoluten Alkohol alle Spuren von Wasser [S. 337]verdrängt werden, da die Diffusionsströme beim Zusatz von Nelkenöl oder Xylol oft das ganze Objekt zerstören, wenn noch Spuren von Wasser in ihm enthalten sind. Auch darf beim Zusatz von Kanadabalsam, welcher am besten in Xylol gelöst verwendet wird, kein absoluter Alkohol mehr im Objekt sein.
Anwesenheit von Wasser beim Zusatz von reinem Nelkenöl oder Xylol verrät sich durch milchweißen Schimmer des Objekts. Ein solches ist oft noch zu retten, wenn man es schnell in absoluten Alkohol zurückbringt.
2. Aufklebemethode.
Viele Rhizopoden und andere freilebende Protozoen sind so klebrig an der Oberfläche oder werden durch Zusatz der Konservierungsflüssigkeiten vorübergehend so klebrig, daß sie leicht am Objektträger festgeklebt werden, wenn man einen Tropfen der Konservierungsflüssigkeit von oben auf sie fallen läßt; am Deckglas kann man dasselbe erreichen, wenn man es mit der Seite nach unten, auf welche die Protozoen mit möglichst wenig Kulturflüssigkeit gebracht worden sind, auf die Oberfläche einer Konservierungsflüssigkeit fallen läßt.
Während es unter den freilebenden Protozoen nur gewisse Formen sind, bei denen die Methode gelingt, hat man bei Parasiten mit ihr die besten Erfolge.
Da die parasitischen Protozoen meist in Flüssigkeiten vorkommen, welche gerinnungsfähiges Eiweiß enthalten, so streiche man einen Tropfen der protozoenhaltigen Flüssigkeit in möglichst dünner Schicht auf ein Deckglas oder einen Objektträger und übergieße sie sodann, am besten von einer Seite anfangend, mit einer Konservierungsflüssigkeit; es ist jedoch darauf zu achten, daß die Prozedur so schnell vor sich geht, daß durch die Verdunstung keine Veränderung an den Protozoen vorgekommen sein kann. Das Deckglas lasse man auf die Konservierungsflüssigkeit in der oben angegebenen Weise fallen. Als Konservierungsflüssigkeit sind zu empfehlen:
|
Konservierungs-
flüssigkeit |
Einwirkungs-
dauer |
Auszuwaschen
mit |
Dauer des
Auswaschens |
Darauf zu
färben in |
|
|---|---|---|---|---|---|
|
1.
|
Pikrin-Essigsäure
|
10 Minuten
bis ½ Std. |
Alkohol 70 Proz.
|
bis zur
Farblosigkeit |
Boraxkarmin
|
|
2.
|
Sublimat, konzent.
wäßrige Lösung (100 ccm) + Alkoh. abs. (50 ccm) + 5 Tropfen Eisessig |
10 Minuten
|
Jodkali in
Alkohol, dann Alkohol 70 Proz. |
je 10 Min.
Uebertrag. in Wasser, (allmählich) |
Eisenhämatoxylin
oder Grenachers resp. Delafields Hämatoxylin |
|
3.
|
Chrom-Osmium-
Essigsäure |
10 Minuten
|
destilliertes
Wasser, dann Alkohol 25 Proz., dann Alkohol 70 Proz. |
10 Minuten
|
Gentianaviolett,
Safranin |
Dabei werden die Präparate genau wie aufgeklebte Schnittserien behandelt. Nach der Färbung werden sie in der üblichen Weise weiter behandelt. d. h. die Farbe differenziert, oder ausgewaschen, dann das Objekt nacheinander in Alkohol 70 Proz., 90 Proz., absolut, von da in ½ Alkoh. abs. + ½ Xylol (eventuell auch Nelkenöl), [S. 338]dann in reines Xylol (eventuell auch Nelkenöl) gebracht, um schließlich in Kanadabalsam eingebettet zu werden. Auch bei diesem Verfahren unterlasse man nicht, das Deckgläschen zu unterstützen, indem man entweder seine Ecken in der Flamme abschmilzt oder eine Borste von entsprechender Dicke unterlegt.
Die heute so viel benutzte Färbung mit Eisenhämatoxylin ist mit großer Vorsicht und Kritik anzuwenden. Sie macht zwar manche Strukturen in unvergleichlicher Weise deutlich. Aber sie färbt alle möglichen Zellbestandteile in ähnlichen Farben wie die Kernbestandteile und verleitet daher zu ungerechtfertigten Homologisierungen. Aehnliches gilt für Vergoldungs- und Versilberungsmethoden, welche zum Teil ausgezeichnete Resultate liefern.
Um gewisse Strukturen und Inhaltskörper von Protozoen zu studieren, mag es sich bisweilen empfehlen, dieselben in Glyzerin zu untersuchen. Zu diesem Zwecke bringe man die Objekte ebenfalls niemals vom Wasser oder Alkohol (nach der Konservierung und Auswaschung) direkt in konzentriertes Glyzerin, sondern erst in eine Verdünnung von solchem mit Wasser resp. Alkohol und lasse die Mischung sich durch Verdunstung allmählich konzentrieren. Die unter dem Deckglase entstehenden Lücken fülle man dann (nach einigen Tagen) mit konzentriertem Glyzerin aus.
Für Blutparasiten haben sich Methoden eingebürgert, welche gute Erfolge gezeitigt haben, obwohl sie ziemlich roh sind. Man fertigt sogenannte Ausstrichpräparate von Spirochäten, Trypanosomen, Plasmodien, Babesien etc. und behandelt sie trocken nach den in der Bakteriologie üblichen Methoden. Es werden die Objekte, resp. das sie enthaltende Blut oder die Kulturflüssigkeit in möglichst dünner Schicht auf Blutdeckgläschen oder Objektträger ausgestrichen, lufttrocken gemacht, in 95-proz. oder absolutem Alkohol (15–30 Minuten) fixiert, dann wieder getrocknet und mit Giemsas, Romanowskys, May-Grünwalds oder ähnlichen Farbstoffen gefärbt. Nähere Angaben finden sich im speziellen Teil in dem Abschnitt über Blutparasiten.
So gute Bilder diese Methode auch gibt, wir sind dennoch nicht berechtigt, die mit ihr erhaltenen Resultate ohne weiteres mit den nach den oben erwähnten erprobten Methoden erzielten zu vergleichen.
b) Massenmethode.
Um in Mengen Material zu konservieren, wendet man die nämlichen Flüssigkeiten an, jedoch indem man protozoenhaltige Flüssigkeit in einem Röhrchen auffängt, auf 1 Teil derselben 2 Teile der Konservierungsflüssigkeit fügt, schüttelt, dann zentrifugiert, oben abgießt und so mit allen aufeinanderfolgenden Flüssigkeiten verfährt. Die Einwirkungsdauer ist dieselbe. Statt Xylol ist es jedoch dann empfehlenswert, Nelkenöl zu verwenden.
Hat man keine Zentrifuge zur Verfügung, so wendet man das Senkverfahren an. Man läßt in dem Reagenzröhrchen die Objekte sich durch ihr eigenes Gewicht zu Boden senken, was mitunter mehrere Stunden dauert; dann schüttet man sorgfältig die jeweilige Flüssigkeit ab, indem man an einem Glasstab dekantiert und gießt das nächste Reagens auf. Man wende gewöhnliche, nicht zu niedrige Reagenzröhren an und fülle jedesmal bis etwa ⅔ der Höhe. — Beim Uebergang aus dem absoluten Alkohol in das reine Nelkenöl modifiziert [S. 339]man das Verfahren folgendermaßen: Man gießt von dem in absolutem Alkohol entwässerten Material den Alkohol ab, bis nur ¼ desselben übrig ist, schüttelt das Glas und gießt dann Alkohol samt Inhalt in ein zweites Glas, welches man folgendermaßen vorbereitet hat; man hat es zu ¼ mit reinem Nelkenöl gefüllt, ein weiteres ¼ mit einer Mischung von ½ Nelkenöl und ½ absolutem Alkohol; verfährt man vorsichtig, so bleiben die Flüssigkeiten, ohne sich zu mischen, tagelang übereinander stehen, und die Protozoen senken sich aus einer in die andere so langsam, daß sie keinerlei Schrumpfung erfahren.
Handelt es sich um sehr zarte Organismen, so kann man durch Vermehrung der Mischungsstufen (also z. B. a) Nelkenöl, b) ¾ Nelk. + ¼ Alk. abs., c) ½ N. + ½ A. a., d) ¼ N. + ¾ A. a., e) Alk. abs.) den Uebergang beim Senkverfahren noch allmählicher und schonender gestalten.
Ist eine Flüssigkeit, welche parasitische Protozoen enthält, sehr reich an gerinnungsfähigen Substanzen, so bilden sich beim Konservieren oft größere Brocken von Gerinnsel. Dieselben enthalten meist zahlreiche Protozoen und man kann sie genau wie Gewebestücke behandeln: in Paraffin einbetten und dann in Schnittserien zerlegen. Auf diese Weise erhält man meist vorzügliche Präparate.
Ueberhaupt ist es oft empfehlenswert, große Mengen von Protozoen, welche man zusammenzentrifugiert hat, oder Gewebestücke eines Wirtsorganismus mit zahlreichen Parasiten einzubetten und nach den üblichen histologischen Methoden zu behandeln.
Um denjenigen, welche ohne die Hilfe eines vollkommen eingerichteten Laboratoriums oder auf Forschungsreisen Protozoen zu studieren wünschen, ein Hilfsmittel an die Hand zu geben, habe ich einen Protozoen-Forschungskasten konstruieren lassen und [S. 340]auf einer Tropenreise für Untersuchung von Protozoen und anderen zoologischen Objekten schon erprobt. Derselbe wird von Dr. Schwalm in München konstruiert und in den Handel gebracht.
Es ist dies ein rechteckiger Kasten von unten angegebenem Maß und Gewicht, welcher in einem unteren Fach zahlreiche Utensilien, daneben einen Pipettensatz enthält; ein fest einzufügender Einsatz enthält in 32 Flaschen die wichtigsten zur Protozoenuntersuchung angewandten Reagentien. Der Einsatz kann herausgenommen und auf den festen Deckel des Kastens gestellt werden. Mit dem Mikroskop auf einen Tisch gestellt, bietet er sogleich ein zwar einfaches, aber für die wichtigsten Untersuchungen genügendes protozoologisches Laboratorium dar.
Ich füge hier noch die näheren Angaben über die Zusammensetzung der Ausrüstung bei:
I. Präparierinstrumente in einem Instrumentenkästchen:
- 1 Büchschen Nadeln
- 2 Nadelhalter
- 2 Präpariernadeln, spitz und lanzettförmig
- 2 Pinzetten, grob u. fein
- 3 Skalpelle, groß, mittel, fein
- 1 Doppelspatel
- 1 Zange n. Cornet f. Deckgläser
- 1 „ n. Debrand f. Objektträger
- 100 große Nadeln m. Glasköpfchen
- 50 feine Insektennadeln
- 1 Pinsel.
II. Glasutensilien.
- 1 Bürette
- 2 Bechergläser
- 10 kleine Präparatengläser
- 1 Trichter
- 3 Glasstäbe
- 1 Satz Uhrgläser, gewöhnliche
- 4 Paar „ aufeinandergeschliffen
- 100 Glasröhren
- 1 Thermometer
- 1 Spirituslampe
- 100 Deckgläser 18 ☐
- je 50 „ 20, 22, 21 × 26 mm
- 100 Objektträger 76 × 26
- Gläsersatz für Objektträgerbehandlung (Schnittfärbung etc.).
III. Metallutensilien.
- 1 Wage
- 1 Gewichtssatz.
IV. Papiere.
- 550 Stück Etiketten mit Wachspapierzwischenlage
- 15 Bogen Filtrierpapier
- je 2 Büchelchen Lackmuspapier, rot und blau in Glasröhre.
V. Material zum Reinigen und Montieren der Apparate.
- 1 Drahtzange
- 1 Schraubenzieher
- 1 Glasfeile
- 1 Korkfeile
- 1 Korkbohrer
- Korke (ein Sortiment)
- Gummischlauch (ein Sortiment)
- 2 Schlauchklemmen
- 2 Leinenlappen
- 1 Lederlappen
- 1 Schachtel Vaseline.
VI. Reagentien.
Flaschen à 50,0 Inhalt mit eingeschliffenem Glasstopfen und eingeschliffener Pipette.
- Ammoniak
- Azur-Eosin
- Borax-Karmin
- Karbolfuchsin
- Eisenalaun
- Kanadabalsam
- Eisessig
- Eosins. Methylenblau
- Hämatoxylin (Delafield)
- Glyzerin/Alkohol 70 Proz.; Mischung 1 : 1
- Glyzerin/Wasser; Mischung 1 : 1
- Hämatoxylin Heidenhain
- Jodlösung alkoh.
- Methylenblau-Löffler
- Natronlauge 33⅓-proz.
- Safranin nach Babes
- Salpetersäure
- Salzsäure
- Schwefelsäure.
[S. 341]
Flaschen à 100,0 Inhalt mit eingeschliffenem Glasstopfen und eingeschliffener Pipette.
- Alkohol 50 Proz.
- „ 70 „
- „ 90 „
- „ 96 „
- „ absolut
- Destill. Wasser
- Flemmingsche Lösung, stark
- Glyzerin
- Nelkenöl
- Alkohol/Nelkenöl; Mischung 1 : 1
- Pikrinessigsäure
- Salzsäure (3-proz.)-Alkohol
- Sublimatlösung (nach Schaudinn).
|
Gewicht
|
des
|
Kastens
|
mit Inhalt
|
18,250 kg
|
|
Länge
|
„
|
„
|
68 cm
|
|
|
Breite
|
„
|
„
|
30 „
|
|
|
Höhe
|
„
|
„
|
25 „
|
Allgemeine Literatur über Technik der Protozoenforschung.
|
464.
|
Blochmann, F., vgl. No. 458, S. 326.
|
|
465.
|
Hartmann, M., und Kisskalt, K., Praktikum
der Bakteriologie und Protozoologie. 2. Aufl. Jena 1910.
|
|
466.
|
Küster, E., Anleitung zur Kultur der
Mikroorganismen. Leipzig und Berlin 1907.
|
|
467.
|
Prowazek, S., Taschenbuch der mikroskopischen
Technik der Protistenuntersuchung. 2. Aufl. Leipzig 1909.
|
[23] Nach Mathis gedeihen die Kulturen sehr gut auch bei Verwendung anderer Blutarten, wenn man die Mischung vorher durch Erhitzung sterilisiert, was auch andere Vorteile bietet.
[24] Die Wachsfüßchen stellt man entweder mit kleinen Wachskerzchen (Zündfäden) her, welche man durch die Flamme zieht, ehe man mit ihrem Docht einen Tropfen auf die Ecke des Deckgläschens bringt, oder mit Knetwachs, welches man durch Kneten weich macht, worauf man kleine Klümpchen mit den Ecken des Deckgläschens selbst aufnimmt.
[S. 343]
II. Teil.
Spezielle Naturgeschichte der Protozoen.
[S. 345]
Vorbemerkung.
Die Abgrenzung des Stammes der Protozoen ist eine willkürliche, geboten durch praktische Gesichtspunkte und durch Erwägungen der Oekonomie bei der wissenschaftlichen Arbeit. Weder gegenüber den vielzelligen Tieren können wir eine feste Grenze bestimmen, noch können wir die einzelligen pflanzlichen Organismen in ihrer Gesamtheit abtrennen. Manche Gruppen schließen sich morphologisch, andere in ihrem physiologischen Verhalten den Protozoen so enge an, daß eine gemeinsame Behandlung für die Vertiefung der Einsicht vom größten Vorteil ist.
So hat man sich mit der Zeit daran gewöhnt, die Diatomeen und die Dinoflagellaten wegen ihrer vorwiegend pflanzlichen Ernährung in den botanischen Lehrbüchern zu behandeln, während man die Eugleninen und andere selbständig assimilierende Flagellaten wegen ihrer morphologischen Eigentümlichkeiten mit den tierisch sich ernährenden Flagellaten gemeinsam behandelte. In diesem Buch bin ich zum Teil aus dem herkömmlichen Rahmen herausgetreten, da manche Fragen ihre vollkommene Beleuchtung nur bei Berücksichtigung aller einander nahestehenden Organismen erfahren. Dabei habe ich mich aber auf die Behandlung der Fragen beschränkt, welche für die Protozoologie von Bedeutung sind, während ich diejenigen Punkte in den Hintergrund treten ließ, welche mit größerem Nutzen von dem Botaniker behandelt werden. —
Daß ich nicht, wie üblich, die Stufenfolge im Protozoenstamm mit den Rhizopoden beginne, sondern mit den Flagellaten, hat seine Begründung in der Tatsache, daß die Flagellaten uns die Brücke zu den nächst niederen Organismen, den Bakterien, schlagen.
Schon seit langer Zeit haben die besten Kenner der Protozoen immer wieder darauf hingewiesen, daß wir nicht in den Rhizopoden die primitivsten gegenwärtig existierenden Tiere erblicken dürfen, sondern daß deutliche Uebergänge die Flagellaten mit der niedersten bekannten Gruppe von Organismen, mit den Bakterien verknüpfen.
Die Bakterien werden definiert als „kleinste einzellige Lebewesen — von kugliger, zylindrischer oder schraubenförmiger Gestalt — teils mit Eigenbewegung begabt, teils ohne solche —, die sich durch Zweiteilung (und zwar mit einer ganz ungeheuren, bei anderen Lebewesen gar nicht vorkommenden Geschwindigkeit) vermehren —, die sich ohne Vermittlung von Chlorophyll ernähren und in ihrer Ernährung, [S. 346]sowie in allen ihren sonstigen Lebensbedingungen ebenfalls eine, mit anderen Lebewesen nicht entfernt vergleichbare, ganz außerordentliche Mannigfaltigkeit und Anpassungsfähigkeit bekunden“. (Gotschlich in Kolle und Wassermann, Handbuch der pathogenen Mikroorganismen.)
Fügen wir noch hinzu, daß die Kernverhältnisse sehr primitive sind, daß für alle Formen bis in die letzte Zeit Vermehrung durch Querteilung angegeben wurde, und daß die Eigenbewegung, wo sie bisher nachgewiesen wurde, ausschließlich durch Geißeln vermittelt wird.
Die in dieser Weise durch solche oder ähnliche Definitionen vereinigten Organismen zeigen bei genauerer Untersuchung große Verschiedenheiten des Baues, des Wachstums, der Beweglichkeit, der Ernährungsphysiologie etc. Auch zeigen manche Formen in ihrer Organisation bedeutsame Annäherungen an Flagellaten, an Cyanophyceen, an niedere Pilze. Ferner geht aus den in den früheren Kapiteln dargestellten Tatsachen hervor, daß graduelle Uebergänge zwischen den bei Bakterien und Protozoen vorkommenden Eigenschaften vorhanden sind.
So stellen die Bakterien sich uns gegenwärtig in ähnlicher Weise dar, wie den Forschern der Zeit vor Ehrenberg die „Infusionstiere“. Wie man später in diesen von Haeckel unter dem Namen der Protisten zusammengefaßten Organismen die Wurzeln des Tier- und Pflanzenreichs erkannte, so wird vielleicht eine nicht allzuferne Zukunft in den Bakterien die tieferen Verzweigungen dieses Wurzelsystems erkennen. In den Grundzügen ihrer Organisation sind die Bakterien den Protozoen gegenüber vereinfachte Zellen; sie entsprechen den von Haeckel postulierten Moneren. Wie man es aus manchen Gründen als geeignet und richtig betrachten kann, diese Formen vereinigt darzustellen, so erscheint es mir bei dem gegenwärtigen Stand unseres Wissens für den Fortschritt der Erkenntnis nützlich, die Formen gruppenweise da einzuordnen, wo sie ihren Anschluß an die Gruppen der Protophyten und Protozoen finden, mit denen sie die größte Uebereinstimmung besitzen.
[S. 347]
Indem ich die Spirochäten hier einfüge, betrachte ich sie also als mit den Protozoen, und zwar mit der Klasse der Mastigophoren nächstverwandte Moneren.
Es muß aber unser Augenmerk darauf gerichtet bleiben, daß eine solche Abtrennung, indem sie eine Brücke schlägt, nicht eine andere abzureißen beabsichtigt. Indem die Aehnlichkeit mit Protozoen hervorgehoben wird, sollen nicht die unverkennbaren nahen Beziehungen zu den Bakterien geleugnet werden.
Die Spirochäten.
(Proflagellata.)
Eine Spirochäte ist ein „einzelliger“ Organismus ohne differenzierten Zellkern, welcher eine korkzieherartig in Schraubenumgängen gewundene Körpergestalt besitzt, sich lebhaft durch Rotation um die ideelle Körperachse zu bewegen vermag; der Körper ist nicht von einer festen Membran, sondern von einer zarten Hüllschicht begrenzt. Diese ist offenbar als Pellicula anzusprechen; in der Literatur ist sie nicht selten mit dem Namen „Periplast“ bezeichnet. Die Größe der Spirochäten schwankt zwischen weniger als 1 µ (Grenze der Sichtbarkeit) bei den kleinsten Formen und 500 µ bei der weitaus größten bisher bekannten Art. Der Körper kann wenig oder zahlreiche Windungen aufweisen, welche aber untereinander meist den gleichen Radius besitzen, er kann flach oder steil gewunden sein, und sein Querschnitt kann sowohl abgeplattet als auch kreisförmig sein.
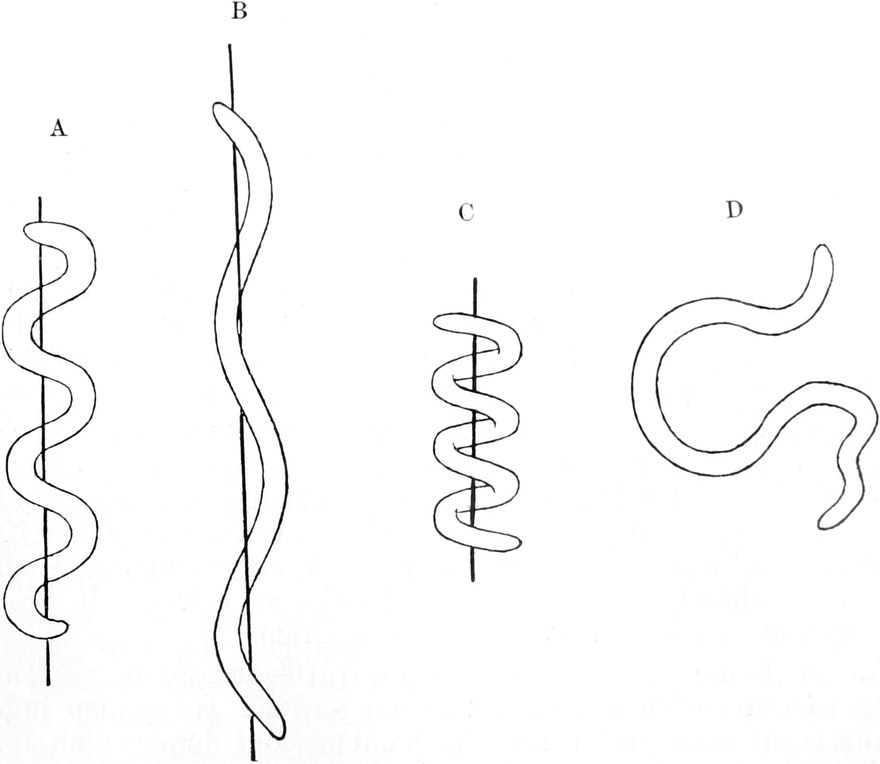
[S. 348]
Wir unterscheiden in einigen Fällen ein dichteres körniges Entoplasma von einem homogenen Ektoplasma, welches meist nur aus der Pellicula besteht. Das Entoplasma enthält verschiedenartige Granulationen und Strukturen, welche stark lichtbrechend sind und sich durch Färbung differenzieren lassen. Meist besteht der zentrale Teil des Körpers aus einer Reihe von Alveolen, deren Wände dick und starr sind; in ihnen sind Chromatin, Volutin und andere Substanzen in Form von Körnern eingelagert. Diese Einlagerungen verleihen der zentralen Masse des Körpers eine relativ große Festigkeit. Schlängelnde Formänderungen des Körpers vermitteln die Ortsbewegung der Spirochäten. Bei ihnen treten gewisse Strukturen in Wirkung, welche wohl in der Hauptsache ektoplasmatischer Natur sind. Im Innern mancher Spirochäten findet sich ein stark färbbarer fadenförmiger Strang, welcher den Körper der Länge nach durchzieht (Fig. 296). Bei anderen Formen ist ein ähnlich gestaltetes Gebilde vorhanden, welches außen am Körper wie eine Leiste entlangzieht (Fig. 297 A–C). Wieder bei anderen Formen kann sich diese „Crista“ vom Körper abheben, ist aber von der Pellicula umschlossen. Ob Fasern, welche in der Pellicula auftreten, elastische Fibrillen darstellen, ist noch unsicher.
Die „Crista“ spielt jedenfalls bei der Bewegung eine Rolle, wenn sie auch wohl nicht vollkommen einer „undulierenden Membran“ entspricht. Als solche wird sie in der Regel in der Literatur bezeichnet. Bei Formen mit zentralem Achsenfaden ragt dieser nicht selten vorn oder hinten oder an beiden Stellen aus dem Körper hervor und bildet auf diese Weise ein geißelähnliches Gebilde. Der schraubenförmige Körper ist nicht absolut starr, sondern verfügt über eine ziemlich erhebliche Metabolie.
Daraus kann man entnehmen, daß der Körper keine feste Membran besitzt; eine solche würde Verdickungen und Verkürzungen, schwingende und schlängelnde Bewegungen, Abknickungen des Körpers nicht erlauben, wie sie tatsächlich vielfach vorkommen. Auch wäre bei ihrem Vorhandensein die Verwandlung des Körpers in die kugeligen sogenannten Ruhezustände nicht möglich.
Für ihr Fehlen ist auch die leichte Auflösbarkeit der Spirochäten in Galle und taurocholsaurem Natron ein Beweis. Es ist also jedenfalls nur eine recht zarte Hüllschicht vorhanden. Bei den großen Muschelspirochäten soll sie allerdings relativ derb sein.
Die Ortsbewegung der Spirochäten erfolgt unter Rotation des Körpers um die ideale Achse der Spirale nach vorwärts oder nach rückwärts (die Rotation kann auch in loco erfolgen). Die Rotation geht sehr rasch vor sich, und zwar sowohl in der Richtung des Uhrzeigers als auch umgekehrt. Nach intensiver Lokomotion tritt von Zeit zu Zeit eine kurze Ermüdungspause ein. Bei der Bewegung stellen sich oft die erwähnten Deformationen ein, besonders wenn die Spirochäten an Hindernissen hängen bleiben oder sich auf einer Unterlage hinschlängeln. In der Ruhe kehrt die Spirochäte in der Regel in die Spiralform zurück. Bei manchen Spirochäten hat man [S. 349]den Eindruck, als vermöchten sie mit Hilfe einer Schleimabsonderung an der Unterlage zu haften.
Die Ernährung ist bei allen genauer untersuchten Formen eine rein saprozoische oder parasitische. Es findet keine Aufnahme von festen Substanzen in den Spirochätenkörper statt. Infolgedessen sind keinerlei Differenzierungen zu diesem Zwecke vorhanden. Einige Formen (Sp. pallida, dentium etc., bis zu einem gewissen Grade auch Sp. plicatilis) sind durch ausgesprochene Anaërobiose charakterisiert.
Auffälligere größere Vakuolen, insbesondere kontraktile Vakuolen, fehlen im Körperplasma.
Während die meisten Spirochäten, insbesondere die pathogenen Formen, den Züchtungsversuchen in vitro Widerstand geleistet haben, ist es neuerdings gelungen, Spirochaeta dentium zu züchten (Mühlens und Hartmann 1906). Ferner hat Levaditi Sp. gallinarum, Sp. Duttoni und Sp. refringens in Kollodiumsäckchen kultiviert, welche, mit Serum oder Blut und den Spirochäten beschickt, in die Bauchhöhle von lebenden Kaninchen eingeführt wurden. Das gleiche gelang Novy und Knapp bei Sp. Obermeieri. Levaditi hat neuerdings auch Sp. pallida in solchen Kollodiumsäckchen in der Bauchhöhle von Affen gezüchtet. Dies beweist, daß eine Wechselwirkung zwischen der Kulturflüssigkeit und den Säften des Versuchstiers notwendig ist, wie man zunächst annahm, zur Beseitigung von den Spirochäten selbst erzeugter, ihnen schädlicher Stoffwechselprodukte. Von besonderem Interesse sind die neuesten Resultate solcher Züchtungsversuche. Schereschewsky gelang es auf Pferdeserum, welches durch Erhitzung auf 58–60° koaguliert und dann drei Tage bei 37° der Autolyse ausgesetzt worden war, Spirochaeta pallida in unreiner Kultur zu züchten. Mühlens gelang mit denselben Methoden anaërobe Reinkultur. Levaditi und Stanesco züchteten Sp. gracilis in einer eigenartig kombinierten Kultur: Reinkultur der Spirochäte gelang in verschlossenen Kollodiumröhrchen, wenn diese in eine Kultur eines [S. 350]aëroben Bacillus versenkt wurden. Sie schließen daraus, daß die betreffenden Spirochäten die Nährstoffe des Serums nur dann ausnützen können, wenn proteolytisch wirkende andere Organismen am Abbau des Nährmaterials mitbeteiligt sind.
Ueber die Entwicklung der Spirochäten ist noch sehr wenig bekannt. Für die meisten genauer untersuchten Formen wird agame Vermehrung durch Längsteilung angegeben (s. Fig. 298). Dabei spaltet sich der Körper von vorn nach hinten oder umgekehrt; wenn die Tochterindividuen nur noch an einem Ende zusammenhängen, bleiben sie oft noch längere Zeit miteinander verbunden und bewegen sich gemeinsam, indem sie sich im Winkel von 180° zueinander stellen. Manchmal entstehen auf diese Weise durch mehrere Teilungen Ketten von Individuen. Ob die Längsteilungsbilder normale Teilungsbilder oder ob sie durch Verschmelzungen oder sonstwie vorgetäuscht sind, ist durch die Untersuchungen der letzten Zeit zweifelhaft geworden.
Für immer mehr Formen wird neuerdings auch Querteilung angegeben, welche doch die normale Teilungsform der Spirochäten zu sein scheint. Bei manchen Formen tritt nach Gross vor der Teilung eine merkwürdige Umbiegung und Aneinanderlagerung der Teilhälften [S. 351]auf (Fig. 297 D, E). Meist verläuft die Querteilung der Spirochäten verschieden von der Querteilung der echten Bakterien, welche durch eine geradlinige Querwand getrennt werden, während bei den Spirochäten ein allmähliches Ausziehen eines dünnen Verbindungsfadens beobachtet wird (Fig. 299).
Für einige Spirochäten finden sich in der Literatur Angaben über geschlechtliche Vorgänge (s. unten Sp. Balbianii, Vincenti, pallida). Es beruhen diese Annahmen auf Deutungen abweichend gestalteter Individuen als Gameten. (Besonders ist auf das häufige gemeinsame Vorkommen von Spirochäten mit eigenartigen Bakterienformen [Sp. Vincenti und B. hastilis, Sp. dentium und B. fusiforme etc.], ferner auf andere unerklärte Vorkommnisse bei reichlichem Vorkommen von Spirochäten hingewiesen worden [Protoplasmakörner bei Sp. recurrentis Heydenreich].) Alle diese Deutungen sind durchaus willkürlich und durch vorgefaßte Meinungen beeinflußt.
Zusammenkugelungen und Aufrollungen des Körpers, welche bei Spirochäten wiederholt beobachtet worden sind, werden verschieden gedeutet. Während Prowazek geneigt ist, solche Formen für Stadien der Cystenbildung, also Vorbereitung zu Dauerzuständen zu halten, werden sie von anderen, z. B. von Levaditi, für Degenerations- und Absterbeerscheinungen gehalten. Jedenfalls sprechen sie für den Mangel einer derben Membran bei den echten Spirochäten, was diese sehr wesentlich von den Spirillen unterscheidet.
Spirochäten sind seit langer Zeit in größerer Anzahl bekannt; die neueste Zeit hat die Benennung zahlreicher neuer Arten gebracht. Man findet Spirochäten in fauligem Süß- und Seewasser, in Sumpf- und Moorgräben, Jauchegruben, im Darm und in den Schleimhautsekreten gesunder Tiere, sowie in ulzerierenden Wunden und Geschwüren, im Blut und in fast allen Geweben bei gewissen Krankheiten des Menschen und der Tiere.
Sehr bemerkenswert ist die Uebertragung der pathogenen Formen durch blutsaugende Arthropoden, unter welchen die Zecken und eventuell Wanzen und Läuse besonders hervorzuheben sind.
Die geographische Verbreitung der Spirochäten ist noch kaum untersucht. Doch wird wohl anzunehmen sein, daß die saprophytischen Arten annähernd kosmopolitisch sind, während die Verbreitung der pathogenen Formen durch mancherlei Umstände bedingt und modifiziert wird, z. B. durch Einfluß des Menschen, Wanderungen etc. Die besten Entwicklungsmöglichkeiten scheinen der Mehrzahl der pathogenen Formen in den Tropen geboten zu sein.
Systematik.
Für die Aufstellung eines Systems der Spirochäten ist die Zeit noch nicht gekommen. Wir wissen nicht einmal Genaueres über die Abgrenzung der Spirochäten gegenüber den Spirillen und Vibrionen. Es ist sehr wohl möglich, daß vorläufig unter dem Namen Spirochäten Organismen zusammengefaßt werden, welche nichts miteinander zu tun haben. Neuere Autoren haben begonnen, die bekannten Formen auf mehrere Gattungen zu verteilen. Ich habe angesichts unserer sehr mangelhaften Kenntnis der in Betracht kommenden Formen vorläufig noch keinen Gebrauch von den neuen Gattungsnamen gemacht, da wahrscheinlich noch manche Aenderung der Nomenklatur vorgenommen [S. 352]werden wird, doch entspricht die Anordnung der Arten im folgenden Abschnitt der Einteilung in die Gattungen Spirochaeta s. str. (Süßwasserspirochäte und ihre nächsten Verwandten), Cristispira (Gruppe der Muschelspirochäten) und Treponema (Gruppe der pathogenen Formen). Wenn auch morphologische Gesichtspunkte diese Anordnung unterstützen, so sind doch die Formen hauptsächlich nach biologischen Gesichtspunkten aneinander gereiht, indem uns ihr Vorkommen als Einteilungsprinzip diente. Dies bietet uns Vorteile für die anschließende Darstellung des Parasitismus und der pathogenen Bedeutung von Spirochäten.
Der Parasitismus und die pathogene Bedeutung der Spirochäten.
Während die in dem nächsten Abschnitt zuerst dargestellten Formen freilebend als Saprozoen in Flüssigkeiten vorkommen, welche reich an organischen Substanzen sind, also z. B. in fauligem Wasser, sind die übrigen Formen bisher nur in Organismen gefunden worden. Nach ihrem Verhalten zu ihren Wirten kann man sie in 5 Gruppen teilen:
- 1) Bewohner von Körperhöhlen (meist harmlose Kommensalen),
- 2) Bewohner von normalen Schleimhautoberflächen,
- 3) Bewohner ulzerierender Geschwüre und entzündeter Schleimhäute,
- 4) Gewebeparasiten,
- 5) Blutparasiten.
Diese Reihenfolge stellt gleichzeitig eine Stufenleiter der Anpassung an den Parasitismus dar. Sie deutet uns an, daß die ursprünglich saprozoisch lebenden Spirochäten als Kommensalen in die tierischen Körper eindrangen, indem sie die an organischen Flüssigkeiten reichen Körperhöhlen gelegentlich bewohnten.
Allmählich bildeten sich an den Wirt angepaßte Rassen aus. Solche Kommensalen können gelegentlich zu Erkrankungen Anlaß geben, indem sie bei einem durch andere Ursachen bewirkten Krankheitsprozeß den günstigen Nährboden für massenhafte Entwicklung finden. So erklären sich vielleicht die zahlreichen einzelnen Befunde von Spirochäten bei Darmkatarrhen, in Ulzerationen etc. Bei Ulzerationen oder entzündlichen Prozessen begannen manche Formen allmählich in die Gewebe einzudringen und paßten sich an die chemische Beschaffenheit ihres Wirts an. So mag die eine gefährliche Form des Parasitismus der Spirochäten entstanden sein, welche durch den Gewebsparasitismus der Sp. pallida, des Erregers der Syphilis, charakterisiert wird. Die Uebertragung eines einmal virulent gewordenen Stammes auf ein anderes Individuum konnte bei diesen zarten Organismen nur durch Ausbildung von Dauerstadien oder durch direkten Kontakt erfolgen. Wie bei Hämosporidien und Trypanosomen, kennen wir auch hier bisher keine Formen mit Dauerstadien. Dagegen ähnlich wie bei Tr. equiperdum, ist für die Syphilisspirochäte der übliche Weg der Uebertragung der direkte Kontakt, und zwar vorwiegend der Geschlechtsteile und ihrer Umgebung beim Coïtus. Die in Ulzerationen oder entzündeten Schleimhautpartien vorhandenen Spirochäten gehen dann direkt in Läsionen der Haut oder Schleimhaut vom infizierten Individuum auf das Gesunde über, und die Erkrankung entwickelt [S. 353]sich in der unten (S. 365) dargestellten Weise. Dabei ist charakteristisch, daß der einzelne Parasit weder durch aktive Gewebezerstörung (etwa durch Fressen) noch durch die Giftausscheidung einen erheblichen Schaden anrichtet. Sein ungeheuer massenhaftes Auftreten ist es, welches seine Schädigungen erklärt. So kommt es, daß das Gewebe des Wirts durch ihn verdrängt und geschädigt wird; dazu kommt eine immerhin wesentliche Ausscheidung von Stoffwechselprodukten, welche den Wirtsorganismus schädigen, und ferner die den letzteren betreffende Entziehung von wichtigen Substanzen.
Die letzte Gruppe von pathogenen Spirochäten, die Blutspirochäten. schädigen den Wirtsorganismus offenbar vorwiegend durch giftige Stoffwechselprodukte, daneben durch Entziehung für das Leben wichtiger Stoffe. Das ergibt sich schon aus der Produktion von Antikörpern, welche den Organismus des Wirts nach Ueberstehung der Infektion entweder zeitweise oder dauernd gegen Neuinfektion immun machen. Der Aufenthaltsort der Spirochäten dieser Gruppe im Wirt ist auf das Lumen der Blutgefäße und die blutbereitenden Organe beschränkt. Indem sie das Blut des Wirts überschwemmen, erzeugen sie eine sogen. Septikämie, welche aber von den bakteriellen Septikämien dadurch unterschieden ist, daß sie in periodischen Anfällen erfolgt: auf einen Anfall folgt eine Periode der Erholung, darauf einer oder mehrere Rückfälle.
Für diese auf das Blut beschränkten Formen ist die Möglichkeit der Neuinfektion, der Uebergang von einem Wirt auf einen anderen, eine sehr erschwerte. Offenbar sind die Blutspirochäten jedoch nicht sehr empfindlich gegen Temperaturwechsel. Sie vermögen eine Zeitlang in der Leiche weiterzuleben, so daß wiederholt Infektionen bei der Sektion beobachtet worden sind. Sie vermögen auch im Körper eines kaltblütigen wirbellosen Tiers zu leben, und so werden sie denn sehr regelmäßig durch blutsaugende Arthropoden übertragen.
Vor allem sind es Zecken, welche als Ueberträger eine Rolle spielen, wobei bisher keine besonders geformte und geartete Generation der Spirochäten im Zeckenkörper nachgewiesen werden konnte. Dagegen ist festgestellt, daß die Spirochäten den Zeckenkörper samt seinen Ovarien infizieren, so daß eine Uebertragung auf die jungen Tiere stattfindet, welche selbst wieder imstande sind, ein Wirbeltier beim Blutsaugen neu zu infizieren. Dabei wird offenbar der Zeckenkörper nicht übermäßig geschädigt; in ihm leben die Spirochäten als relativ harmlose Parasiten. Nach neuen Untersuchungen von Schuberg und Manteufel erwirbt die Zecke Ornithodorus moubata aktive Immunität gegen Recurrensspirochäten.
So können wir vielleicht annehmen, daß die Zecken die ursprünglichen Wirte der Blutspirochäten sind, welche im Blut der Wirbeltiere einen geeigneten Nährboden zu massenhafter Entwicklung finden.
Die ganze Art des Parasitismus der pathogenen Spirochäten macht es wahrscheinlich, daß es in nicht zu ferner Zeit gelingen wird, sie auf Nährböden zu züchten.
Vielleicht sind die „biologischen“ Verschiedenheiten zwischen manchen, morphologisch nicht unterscheidbaren Spirochätenformen auf die Anpassung an verschiedene Wirte und Zwischenwirte zurückzuführen, so daß wir es nur mit bestimmten Rassen oder Stämmen zu tun hätten, welche bei geeigneter Züchtung ineinander übergeführt werden können. Diese Möglichkeit hat z. B. Levaditi erörtert, [S. 354]welcher unter anderem festgestellt hat, daß die Spirochäten des Rückfalls sich biologisch von denjenigen des ersten Anfalls unterscheiden (vgl. S. 309).
Schließlich ist hervorzuheben, daß prophylaktische Impfung gegen Spirochäteninfektion mit Erfolg durchgeführt worden ist. Injektionen von abgetöteten Spirochäten oder von Serum eines geheilten kranken Tiers immunisieren. Von ganz besonderem Interesse für den Zoologen ist die Tatsache, daß die Auffassung der Spirochäten als den Protozoen nahestehende Organismen schon eine wichtige Folge in der Therapie gezeitigt hat. Nach Analogie der Trypanosomenkrankheiten hat man Hühnerspirochätose (Uhlenhuth, Levaditi) und neuerdings auch Syphilis (Metschnikoff u. a.) mit gutem Erfolg mit Atoxyl behandelt. Gegen Spirochaeta Duttoni und andere Spirochäten hat man Benzidinfarbstoffe ebenfalls mit Erfolg angewandt (Mesnil und Vassal).
Die wichtigste Errungenschaft der modernen Therapie ist aber das von P. Ehrlich eingeführte Salvarsan (Dioxydiamidoarsenobenzol), welches mit dem größten Erfolg sowohl gegen Sp. pallida als auch gegen die Blutspirochäten angewandt wird. Dieses Medikament leistet einen therapeutischen Effekt, welcher eine großartige methodische Vervollkommnung der Atoxyltherapie darstellt.
Gattung: Spirochaeta Ehrenberg.
a) Spirochaeta s. str.
1. Spirochaeta plicatilis Ehrenberg.
|
1838.
|
Ehrenberg, G., Die
Infusionstierchen. Leipzig. p. 83 und Abhandlungen der Berliner Akademie.
1833. p. 313.
|
|
1875.
|
Cohn, J., Untersuchungen über
Bakterien. In: Beiträge zur Biologie der Pflanzen. Vol. 1. p. 196.
|
|
1880.
|
Laptschinsky, Zur Kenntnis der
Spirochäten. Centralbl. f. d. mediz. Wissenschaften. Vol. 18. p. 341.
|
|
1892.
|
Bütschli, O., Ueber den Bau der
Bakterien und verwandte Organismen. Leipzig.
|
|
1905.
|
Schaudinn, Zur Kenntnis der
Spirochaeta pallida. In: Deutsche medizin. Wochenschr. 1905. No. 42.
|
|
1907.
|
— Zur Kenntnis der Spirochaeta pallida und anderer
Spirochäten. In: Arb. a. d. Kaiserl. Gesundheitsamte. Vol. 26. 1907 Heft 1.
p. 11.
|
|
1910.
|
Zuelzer, M., Ueber Spirochaeta
plicatilis und Spiralina. In: Zool. Anzeiger Vol. 35. 1910. p. 795.
|
Spirochaeta plicatilis, der Typus der Gattung, ist eine relativ große Spirochätenart, indem sie eine Länge von 200, ja selbst 500 µ erreicht, die Durchschnittslänge der Individuen ist ca. 80 µ. Die Breite des Körpers erreicht ¾ µ, der Querschnitt ist kreisförmig. Der lange, dünne Körper zeigt eine doppelte Spiralkrümmung, indem den gröberen Körperwindungen kleine, sehr regelmäßige Körperwindungen superponiert sind (Fig. 302 A). Die Enden des Organismus sind stumpf abgerundet oder zugespitzt.
Bei Färbung der konservierten Spirochäte tritt ein fadenförmiges, schnurgerades in der Längsachse verlaufendes Gebilde, ein Zentralfaden oder Achsenfaden, deutlich hervor. In regelmäßiger Anordnung liegen zu beiden Seiten dieses Achsenfadens Körner, welche hohl [S. 355]sind und aus Volutin bestehen. Außerdem sind feine Chromatingranula nachgewiesen.
Bei dieser Art ist außer der üblichen Schraubenbewegung tastende und kriechende Bewegung beschrieben, sowie Kontraktilität des Fadens, [S. 356]welche sich auch in Formänderungen (Anschwellungen und Verdünnungen) desselben kundgibt und von Plasmaströmungen begleitet sind.
Außer Querteilung kennt man Zerfall der langen Individuen in mehrere kurze Stücke, was wohl eine Form der multiplen Vermehrung darstellt.
Die Art kommt im schwefelwasserstoffhaltigen Süßwasser nicht selten vor, besonders in Gräben mit fauligem Wasser, zwischen faulenden Algen; sie wurde auch im Meer nachgewiesen.
Sie wurde bisher in Deutschland, Rußland und in zahlreichen anderen Gegenden Europas gefunden, so bei Neapel und Helgoland. Die marine Form wird von Zuelzer als Sp. plicatilis marina unterschieden.
Sehr ähnlich dieser Art scheint die von Warming 1875 beschriebene Spirochaeta gigantea W. zu sein, welche in Brackwasser freilebend an der dänischen Küste gefunden wurde und wahrscheinlich eine weite Verbreitung besitzt. Im Süßwasser fand Zuelzer neben Sp. plicatilis eine viel kleinere Form, welche sie für eine selbständige Art hält und als Sp. stenostrepta bezeichnet (vgl. Fig. 303 B), ferner eine Form mit weiten Windungen, welche den Namen S. eurystrepta erhielt.
b) Cristispira Gross.
2. Spirochaeta Balbianii (Certes).
|
1882.
|
Trypanosoma Balbianii Certes in:
Bulletin Soc. Zool. France. Vol. 7. p. 347.
|
|
1891.
|
— ebenda. Vol. 16. p. 95.
|
|
1883.
|
Moebius, Zoolog. Anzeiger.
p. 148.
|
|
1896.
|
Lustrac, Actes d. l. Soc. Linn.
Bordeaux. Vol. 50. p. 265.
|
|
1906.
|
Perrin, W. S., Researches upon
the life history of Trypanosoma Balbianii (Certes). Archiv für Protistenkde.
Vol. 7. p. 131.
|
|
1907.
|
Fantham, H. B., Spirochaeta
anodontae. In: Ann. Mag. Nat. Hist. Vol. 9. Ser. 7. p. 493.
|
|
1909.
|
Schellack, C., Studien zur
Morphologie und Systematik der Spirochäten aus Muscheln. In: Arb. a. d.
Kaiserl. Gesundheitsamt. Vol. 30. p. 379.
|
Diese größte aller bisher bekannten Spirochäten ist früher immer für ein Trypanosoma gehalten worden, wozu die bedeutende Größe und Breite und die scheinbare undulierende Membran zu berechtigen schien. An dem lang-bandförmigen, vorn und hinten stumpf zulaufenden Körper des 26–180 µ langen, 0,5–3 µ breiten Organismus unterscheiden wir einen sehr stark lichtbrechenden zentralen Teil und eine breite, deutliche membranartige Leiste mit kräftigem Randfaden, welche in manchen Fällen allerdings sehr schmal sein oder ganz fehlen kann. Sie springt stark über die Oberfläche des Körpers vor; sie besteht aus plasmatischer Substanz, wie ihr Verhalten gegen Reagentien zeigt.
Bei nicht in der Teilung befindlichen Individuen kann man in dem zentralen stärker lichtbrechenden Teil des Körpers [S. 357]Granulationen und Vakuolen erkennen. Sehr deutlich ist im konservierten Präparat der Aufbau des Hauptteils des Körpers aus einer Alveolenreihe erkennbar (Fig. 306 A u. B), er wird vielfach in den Beschreibungen als „gekammert“ bezeichnet. Die zahlreichen Veränderungen, welche Perrin an den Chromatingebilden gesehen hat, beruhen nach neueren Versuchen auf Kunstprodukten infolge mangelhafter Konservierung.
Es ist Querteilung als normale Teilungsart mit Sicherheit nachgewiesen. Die ebenfalls beobachteten „Längsteilungsstadien“ sind vielleicht als Verschmelzungen zu deuten.
Geschlechtliche Differenzierung wurde früher behauptet, wird aber von allen neueren Untersuchern energisch bestritten.
Der stark metabolische Körper vermag sich in eigenartiger Weise aufzuknäueln; wenn das Wirtstier, die Auster, hungert oder aus dem Wasser genommen wird, erfolgt auf diese Weise eine Art von Cystenbildung. deren Bedeutung (Ruhe- oder Fortpflanzungscyste?) noch nicht erkannt ist.
Die Art ist in den nord- und südeuropäischen Meeren gefunden worden: Nordsee, Ostsee, Adria.
Certes beschrieb die Art, welche er in dem Darm der Austern, Ostrea edulis und O. angulata gefunden hatte, Moebius beobachtete sie im Kristallstiel der schleswig-holsteinischen Austern, was Certes für die Austern der französischen Nordseeküste bestätigte. Dabei sind die Parasiten gewöhnlich sehr häufig und sind schon von außen im Kristallstiel in steter Bewegung zu sehen.
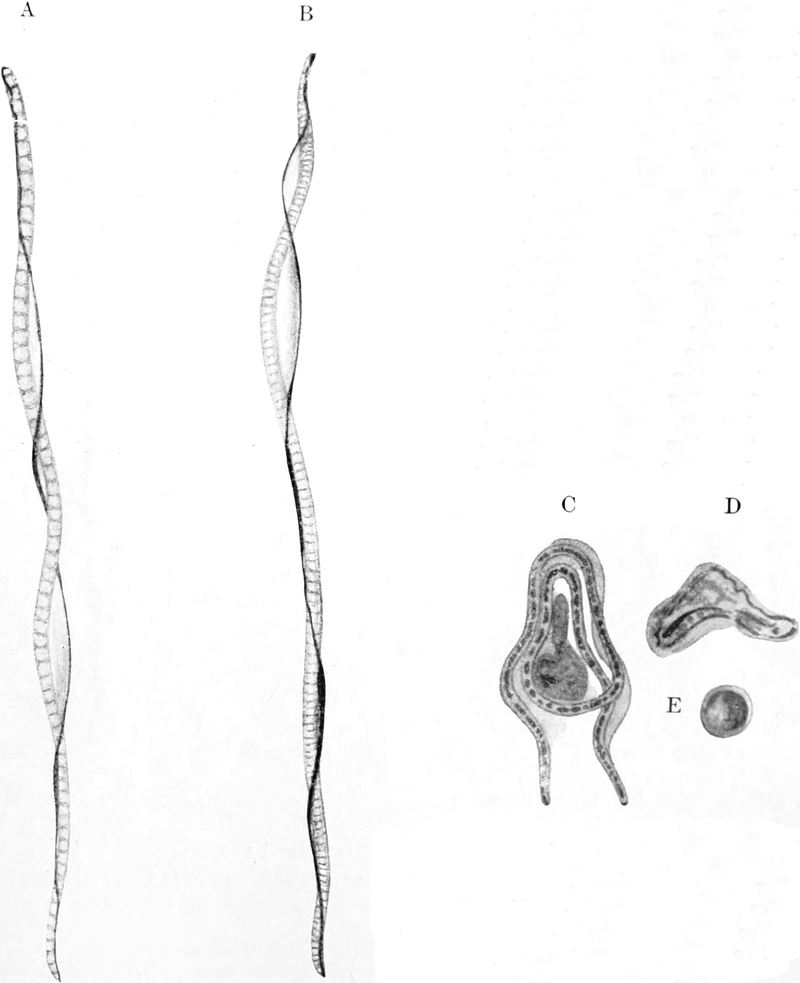
Certes fiel es auf, daß sie im strengen Winter vollkommen verschwanden, um erst Ende April wieder aufzutauchen. Bei Austern, welche längere Zeit auf Eis gehalten waren, fand ich sie in der Regel in wenig Exemplaren, doch sonst ganz normal.
[S. 358]
Fantham fand Exemplare frei im Seewasser eines Bassins, in welchem Austern gehalten wurden.
Jedenfalls gibt es zahlreiche der Sp. Balbianii nahe stehende Formen. Ich habe wiederholt einen hierher gehörigen Organismus in Süßwasserbryozoen beobachtet. Keysselitz hat eine sehr ähnliche Form im Magen und Darm der Süßwassermuscheln aus der Gattung Anodonta entdeckt, Spirochaeta anodontae Keysselitz, welche sich durch eine außerordentlich distinkte undulierende Membran auszeichnen soll (Fig. 307 A). Neuerdings sind von Gonder, Schellack, Gross u. a. eine ganze Menge hierher gehöriger Arten beschrieben worden. Von besonderem Interesse sind die von Gross beschriebenen Formen aus Pecten jacobaeus, welche dieser Autor zu Vertretern einer besonderen Gattung, Cristispira, erhoben hat (vgl. Fig. 308). Außer Cr. Balbianii Certes werden hierher gerechnet C. anodontae Keyss., C. veneris Gross, C. tapetos, C. pectinis und die zahlreichen anderen Formen aus marinen Lamellibranchiern. Und wahrscheinlich kommen in marinen Organismen noch zahlreiche andere Arten vor.
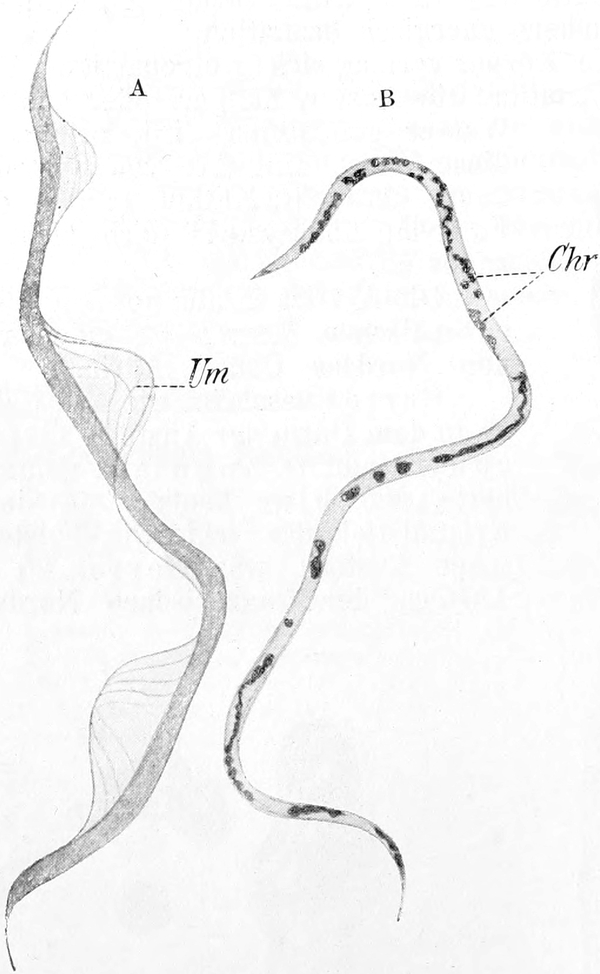
3. Spirochaeta culicis Jaffé.
|
1907.
|
Jaffé, J., Arch. f. Protistenkde.
Vol. 9. p. 100.
|
Diese relativ große Spirochäte (10–20 µ Länge, ½ µ Breite) wird vielleicht in der Protistenforschung noch eine größere Rolle spielen. Sie ist an beiden Enden zugespitzt, sehr beweglich und gestaltändernd. Geißeln sind nicht vorhanden, eine undulierende Membran nicht nachgewiesen. Im Innern des Körpers sind Granulationen nachweisbar, welche sich durch Färbung hervorheben lassen.
Ueber Fortpflanzung ist nichts bekannt.
[S. 359]
Die Art findet sich im Magendarmkanal der Larven einer unbestimmten Culex-Species, und zwar in Wasseransammlungen in Berlin in 90 Proz. der Individuen. Ganz selten wurde sie auch in den Malpighischen Gefäßen der Imagines von Culex gefunden.
Edm. und Et. Sergent haben in der Larve von Anopheles maculipennis in Algier eine sehr ähnliche Form gefunden. Patton hat festgestellt, daß in der Gegend von Madras Spirochäten massenhaft in Moskitos vorkommen. Novy und Knapp haben aus Glossina palpalis eine Spirochaeta glossinae beschrieben. Ich habe neuerdings bei Termiten aus Italien eine ebenfalls sehr große Spirochäte, S. grassii Doflein gefunden.
Diese Insektenspirochäten bilden vielleicht eine besondere Gruppe resp. Gattung für sich.
c) Treponema Schaudinn.
4. Spirochaeta dentium Koch.
|
1877.
|
Koch, R., Untersuchungen über
Bakterien. VI. In: Cohn, Beiträge zur Biologie der
Pflanzen. Vol. 2. p. 431.
|
|
1906.
|
Hartmann und
Mühlens, Ueber Bacillus fusiformis und Spirochaeta
dentium. In: Zeitschr. f. Hyg. u. Infektkr. Vol. 55. p. 81.
|
Diese sehr kleine und feine Spirochäte ist die kleinste der Formen aus dem Mundschleim. Sie ist sehr dünn im Verhältnis zur Länge, indem sie bei 4–12 µ Länge eine Dicke von weniger als ½ µ besitzt (in maximo ⅔ µ bei der infolge der Auflagerung des Farbstoffes dicker machenden Löffler-Färbung). Der Körper ist an beiden Enden zugespitzt, die Zahl der Windungen gewöhnlich eine große; sie sind regelmäßig von geringer Tiefe (Länge der Windung ca. 1,2 µ, Tiefe ⅓–⅔ µ, das Verhältnis der Länge zur Tiefe also durchschnittlich [S. 360]= 2 : 1). Die Windungen haben einen Winkel der beiden Schenkel von etwa 90°. — Der Körper läuft am Ende allmählich in einen sehr feinen, geißelartigen Fortsatz aus.
Differenzierungen im Innern und eine undulierende Membran sind nicht nachgewiesen.
Stadien der Längsteilung sind bei dieser Form ziemlich sicher beobachtet (s. Fig. 298, S. 350).
Auftreibungen am Körperende, welche vielleicht Andeutungen von Uebergang in den Dauerzustand darstellen, sind beschrieben worden (Fig. 313).
Spirochaeta dentium findet sich fast regelmäßig in der Mundhöhle des Menschen und verschiedener Wirbeltiere als normaler Befund, und zwar im Zahnbelag der Zahnwurzelregionen, besonders bei Zahnstein, ferner auf den Tonsillen etc.
Es ist gelungen, Sp. dentium in Reinkultur nach bakteriologischer Methode zu züchten, und zwar auf Serumagar (am besten 2 Teile Agar, 1 Teil Pferdeserum) in streng anaërober Kultur. Die Kulturen erscheinen nach 3–10 Tagen (nach erfolgter Anpassung schneller als im Anfang) längs des Stichkanals als feine, schwer sichtbare, hauchartige, gleichmäßige, puderquastenförmige Trübungen im Serumagar in der Größe von ½-5 mm Die Kulturen verbreiten einen penetranten Fäulnisgeruch. Die Spirochäten erhalten sich in den Kulturen lange lebensfähig (z. B. 16 Kulturgenerationen, 5–6 Monate). Am besten gedeihen die Kulturen bei 37°, bei Zimmertemperatur, 20–24° C, wachsen sie nicht, ohne jedoch abzusterben, ebenso im Eisschrank (nach Mühlens).
Da ebenso wie Sp. dentium der mit ihr vergesellschaftet vorkommende Bacillus fusiformis sich in Reinkultur ohne Veränderung züchten läßt, so ist es unwahrscheinlich, daß irgendwelche genealogische Beziehungen zwischen beiden Organismen vorliegen (was früher von manchen Autoren angenommen wurde).
Außer der typischen Spirochaeta dentium kommen im Mund, besonders im Zahnschleim, noch andere Spirochätenformen vor. Während die meisten dieser morphologisch unterscheidbaren Formen wohl nur Wuchsformen von Sp. dentium sein mögen, wird die größte der nachgewiesenen Formen unter der Bezeichnung als Spirochaeta buccalis Cohn 1875 von den meisten für eine besondere Art gehalten. Sie besitzt flache, große, ziemlich unregelmäßige Windungen, ist 12 bis 20 µ lang, ½-1 µ breit (bei Löffler-Färbung). Sie ist an beiden Enden zugespitzt oder abgerundet zulaufend. Eine Geißelbildung ist wiederholt angegeben worden, ebenso das Vorhandensein [S. 361]einer undulierenden Membran. Der Körper ist zu bedeutenden Formänderungen befähigt (vgl. Fig. 310).
Aehnlich wie die Mundspirochäten lebt die Balanitisspirochäte, Sp. balanitidis Prowazek und Hofmann 1906, welche in dem schleimigen Sekret der Glans des menschlichen Penis, besonders bei Balanitis gefunden wurde. Die Kultur dieser Form gelang Levaditi.
5. Spirochaeta refringens Schaudinn.
|
1905.
|
Schaudinn, F., und
Hoffmann, E., Vorläufiger Bericht über das
Vorkommen von Spirochäten in syphilitischen Krankheitsprodukten und bei
Papillomen. In: Arb. a. d. Kais. Gesundheitsamt. Vol. 22. p. 527.
|
|
1907.
|
Schaudinn, F., Zur Kenntnis der
Spirochaeta pallida und anderer Spirochäten. Ibid. Vol. 26. p. 11.
|
Diese relativ große, plumpe Spirochäte hat einen bandartigen Körper, welcher in wenigen flachen, etwas unregelmäßigen Windungen verläuft. Die Länge der Individuen beträgt: 20–35 µ, die Breite ½–¾ µ. Geißelartige Fortsätze an beiden Enden sind nachgewiesen, eine undulierende Membran soll bei dieser Form leicht nachweisbar sein. Im Innern des Körpers ist stärker lichtbrechende, stärker färbbare Substanz erkennbar (Schaudinns Kernstab).
Sp. refringens wurde vielfach an der Oberfläche von Genitalaffektionen gefunden (Balanitis, spitzen Kondylomen, Ulcus molle etc.), vor allem auch häufig in syphilitischen Affektionen, dann jedoch gemeinsam mit Sp. pallida Sch., welcher sie aber niemals in die Tiefe der Gewebe folgt. Von letzterer unterscheidet sie sich auch morphologisch sehr gut durch ihre Größe, plumpere Gestalt, die Unregelmäßigkeit, Flachheit und geringere Anzahl der Windungen.
Levaditi gelang es 1906, Sp. refringens in Kollodiumsäckchen, welche in die Leibeshöhle von Kaninchen eingenäht wurden, längere Zeit reinzuzüchten und dadurch ihre Artselbständigkeit zu erweisen.
Dieser Art sind Formen von Spirochäten anzuschließen, welche beim Menschen und bei Tieren auf entzündeten Schleimhäuten, in Geschwüren und ulzerierenden Geschwülsten gefunden worden sind.
[S. 362]
Spirochaeta Vincenti R. Bl. 1906.
|
1906.
|
Blanchard, R., Spirilles
Spirochètes et autres microorganismes à corps spiralé. In: Semaine méd. Ann.
26. p. 1 und Arch. f. Protistenk. Vol. 10. p. 129.
|
Bei der ulzerierenden Angina des Menschen (Angina Vincenti) gewöhnlich mit dem Bacillus hastilis Seitz, aus der Gruppe der „spindelförmigen Bacillen“ gefunden, den manche Autoren für ein Stadium von Sp. Vincenti halten. Vgl. S. 351 das über B. fusiformis Gesagte.
Spirochaeta pseudopallida Mulzer.
|
1905.
|
Mulzer, P., Ueber das Vorkommen
von Spirochäten bei Syphilitischen und anderen Krankheitsprodukten. In:
Berl. klin. Wochenschr. Jahrg. 42. p. 1144.
|
|
1905.
|
Kiolemenoglou und
v. Cube, Spirochaeta pallida und Syphilis. In:
München. med. Wochenschr. Jahrg. 52. p. 1275.
|
Die zuerst von letzteren Autoren bei ulzerierenden Carcinomen gefundenen Spirochäten wurden anfangs für identisch mit S. pallida gehalten und erregten daher bedeutendes Aufsehen. Schaudinn wies an der Hand der Originalpräparate auf die Unterschiede zwischen beiden Formen hin, die Spirochäten in ulzerierenden Carcinomen sind dicker, plumper, haben weniger Windungen, und diese sind unregelmäßiger.
Auch in den Krebsgeschwülsten der Mäuse und beim Hundesarkom sind Spirochäten gefunden worden.
Spirochaeta gracilis Levaditi und Stanesco.
|
1909.
|
Levaditi, C., et
Stanesco, V., Culture de deux Spirochètes de
l’homme (Sp. gracilis et Sp. balanitidis). Compt. rend. Soc. de Biol.
Vol. 67. p. 188.
|
Eine der Sp. pallida sehr ähnliche Form von menschlichen syphilitischen Schleimhäuten, deren Kultur Levaditi gelang. Er kultivierte die Art in Kollodiumsäckchen, welche in Pferdeserum versenkt wurden, in denen die Begleitbakterien wuchsen. Er hielt sie für artverschieden von der Sp. pallida, ebenso die in ähnlicher Weise gewonnene Sp. balanitidis.
Spirochaeta eugyrata Werner und Spirochaeta stenogyrata Werner.
|
1909.
|
Werner, H., Ueber Befunde von
Darmspirochäten beim Menschen. Centralbl. f. Bakt., Parasitenk. u. Inf. Abt.
I. Orig. Bd. 52. p. 241.
|
Formen, welche relativ häufig im menschlichen Darm gefunden wurden.
Hier wären auch zu erwähnen:
Spirochaeta balanitidis und Spirochaeta pyogenes Marcinescu.
6. Spirochaeta pallida Schaudinn. Die Syphilisspirochäte.
|
1905.
|
Sp. pallida Schaudinn, F.,
und Hoffmann, E., Vorläufiger Bericht über das
Vorkommen von Spirochäten in syphilitischen Krankheitsprodukten und bei
Papillomen. In: Arb. a. d. Kais. Gesundheitsamt. Vol. 22. p. 527.
|
|
1907.
|
Schaudinn, F., Zur Kenntnis der
Spirochaeta pallida und anderer Spirochäten. Ibid. Vol. 26. p. 11.
|
|
1908.
|
Hoffmann, E., Atlas der
ätiologischen und experimentellen Syphilisforschung. Berlin.
|
|
1908.
|
Krzystalowicz und
Siedlecki, M., Etude expérimentale de la syphilis;
morphologie de Spirochaeta pallida. In: Bull. Acad. Sci. Cracovie. März.
p. 173. (Vgl. auch Lit. S. 375.)
|
Spirochaeta pallida gehört zu den sehr kleinen und sehr dünnen Spirochäten; da sie auch eine sehr wenig lichtbrechende Körpersubstanz besitzt, auch schwer färbbar ist, so ist es einigermaßen verständlich, daß sie so lange Zeit übersehen wurde.
[S. 363]
Die Länge der Individuen beträgt im Mittel 6–15 µ, doch kommen selten auch längere Exemplare vor (von 16–26 µ), die Dicke höchstens ¼ µ. Der Körper, welcher nicht abgeplattet, sondern im Querschnitt drehrund ist, besteht aus einem zentralen spiral geschlängelten Teil und je einem feinen Geißelfaden an jedem Pol. Jede der Geißeln ist etwa ¼ so lang wie der mittlere eigentliche Körperabschnitt. Der letztere ist in 6–26 Windungen gelegt, welche sehr regelmäßig dicht gedrängt, klein und steil sind. Die Länge der einzelnen Windungen beträgt etwa 1,2 µ, die Tiefe der Windungen von ⅔ µ bis 1 und 1,5 µ. Das Verhältnis der Länge zur Tiefe der Windung ist 1 : 1 bis 1,5. Der Winkel der beiden Schenkel einer Windung beträgt weniger als 90°. (Vgl. hierzu die Angaben bei der oft ähnlich aussehenden Sp. dentium S. 359, die genauen Daten nach Hartmann 1906.)
Der Uebergang vom Körper in die relativ dicken Geißeln ist ein allmählicher, letztere sind nicht so scharf abgesetzt wie bei Sp. dentium.
Die Körperform ist bei Sp. pallida relativ starr, die Windungen konstant (die Spirale ist „präformiert“ [Schaudinn]). Eine undulierende Bewegung, welche an diesen Windungen manchmal entlang läuft, veranlaßte Schaudinn, das Vorhandensein einer undulierenden Membran zu vermuten, welche aber bei der außerordentlichen Feinheit des Organismus schwer nachweisbar sei. Sp. pallida zeigt die Spiralform nicht nur während der Bewegung, sondern auch während der Ruhe; sie verharrt oft mit eigentümlich zitternden Bewegungen an einem Orte. Bei der Verkürzung und Biegung des Körpers wird Verdickung und stärkere Lichtbrechung konstatiert.
Bei Spirochaeta pallida hat Schaudinn die Teilung als Längsteilung am lebenden Objekt in allen Stadien verfolgt. Man findet nicht selten etwas dickere unregelmäßige Individuen, welche zwei Geißeln an einem Ende aufweisen. Schaudinn (1907) konnte bei [S. 364]solchen beobachten, „wie im Verlauf weniger Sekunden von diesem Pol aus die Längsteilung fortschritt. Hierbei gibt der Organismus seine stark spiralige Form auf und wird ganz unregelmäßig gewunden. Erst wenn die Teilprodukte zusammenhängen, nehmen sie wieder die regelmäßige Korkzieherform an.“ Vielleicht handelte es sich in diesen Fällen um Trennung vorübergehend plasmogamisch verbundener Individuen.
In Präparaten finden sich nicht selten Individuen, welche in manchen Punkten von den beschriebenen typischen Individuen abweichen. Sie haben verschiedene Autoren, vor allen Krzystalowicz und Siedlecki (1905), zur Annahme von geschlechtlichen Vorgängen veranlaßt. Diese Autoren glauben relativ dicke, trypanosomenartige Individuen für Makrogameten, sehr kleine dünne Individuen für Mikrogameten halten zu dürfen, zumal da sie paarweise Aneinanderlagerung von solchen bemerkt haben. Auch glauben sie gewisse Bildungen als Ruhestadien (resp. Cysten) betrachten zu dürfen. Ihre Deutungen beruhen nur auf Kombination nach konservierten Präparaten und haben bisher noch keine Bestätigung erfahren.
Neuerdings ist es Levaditi gelungen, Sp. pallida in Kollodiumsäckchen, welche in das Peritoneum von Affen eingenäht waren, auf künstlichem Nährboden zu züchten. Schereschewsky hat endlich eine Methode gefunden, die Syphilisspirochäte in vitro zu kultivieren. Seine Versuche, sowie diejenigen von Mühlens und Levaditi und Stanesco lassen jedoch manche Frage offen. Mit den Kulturspirachäten gelingt keine Syphilisinfektion von Versuchstieren, auch ergaben die sonst bei kultivierten pathogenen Mikroorganismen prompt eintretenden Reaktionen, wie Agglutination, Präzipitation etc., keine klaren Resultate.
Sp. pallida ist bisher nur beim Menschen gefunden worden, bei welchem sie die schwere Erkrankung verursacht, welche unter dem Namen Lues oder Syphilis nur zu gut bekannt ist. Die Uebertragung von einem Menschen auf den anderen erfolgt nur durch innige direkte Berührungen, wie sie insbesondere beim geschlechtlichen Verkehr gegeben [S. 365]sind: daher wird die Syphilis zu den „Geschlechtskrankheiten“ gerechnet. Doch betrifft meist nur die Infektion die Geschlechtsteile, an denen sich in der Regel der „Primäraffekt“ findet, welcher jedoch auch an den Lippen und an anderen Stellen des Körpers auftreten kann.
Soweit wir bis jetzt wissen, kann die Sp. pallida nur durch vorhandene kleine Verletzungen in die Schleimhaut (resp. Haut) eindringen. Die Parasiten, welche nach der Infektion sich zunächst in der Umgebung der Infektionsstelle sehr reichlich vermehren, überschwemmen das ganze Epithel und das benachbarte Bindegewebe. Und zwar ist Sp. pallida ein typischer Zell- und Gewebeparasit. Man findet sie sowohl in als auch zwischen den Zellen; vor allem auch in den Lymphräumen und in den Wänden der Blutgefäße.
Vom Primäraffekt aus tritt allmählich die Ueberschwemmung des ganzen Organismus ein, wobei die Lymphbahnen und die Blutgefäße eine wesentliche Rolle spielen. Bei dem Kampf des Organismus gegen die eindringenden Parasiten tritt auch Phagocytose durch die Leukocyten in ausgiebigem Maße ein; da bei der ungeheueren Vermehrung der Spirochäten aber vielfach eine Ueberbelastung der Leukocyten erfolgt, so vermögen sie der Parasiten nicht Herr zu werden, sondern beteiligen sich vielmehr an der Verschleppung der Infektion in das perivaskuläre Bindegewebe.
Bei der Verbreitung über den ganzen Körper geraten die Spirochäten auch in die Kapillaren der Haut und erzeugen dort in folgender Weise die Roseola syphilitica. Sie fixieren sich „in den Endkapillaren der Papillen, rufen hier durch den Reiz eine Kongestion hervor. Die vermehrte Blutzufuhr erweitert die Gefäße. Die Spirochäten dringen durch die lädierte Gefäßwand in das Bindegewebe der Umgebung und erregen so die perivaskuläre Rundzelleninfiltration. Von diesem Stadium ist dann die Entstehung der sekundären Papel durch lokale Vermehrung und Herdbildung unschwer zu erklären“ (Schaudinn).
Es scheint, daß bei Sp. pallida ganz ähnlich wie bei anderen Protisten Perioden intensivster Vermehrung mit Perioden von herabgesetzter Teilungsfähigkeit abwechseln. Bei dem Kampf mit dem Organismus wird schließlich der Zustand der tertiären Syphilis erreicht, bei welcher in den betroffenen Organen ein vollkommener Zerfall des Gewebes und der Zellen eingetreten ist, während sich im Organ selbst nur geringe Mengen des Parasiten nachweisen lassen.
Besonders interessant sind die sogenannten Gummigeschwülste, welche parasitologisch oft vollkommen an die Abszesse bei Amöbendysenterie [S. 366]erinnern, indem das Innere von solchen Geschwülsten nur zerfallende Zellen und polynukleäre Leukocyten enthält, während der entzündete Wall Spirochäten in enormen Mengen beherbergt, wobei sich oft in jeder der vermehrten und vergrößerten Bindegewebszellen eine bis viele Spirochäten nachweisen lassen. Die ungeheueren Massen von Spirochäten, welche man oft in infizierten Organen findet, entsprechen vollkommen der Schwere des Krankheitsbildes.
Rezidive können offenbar von kleinen Herden mit wenig zurückgebliebenen Spirochäten ausgehen, wobei dann plötzlich eine umschriebene Region des Organismus mit zahllosen Spirochäten überschwemmt wird.
Spirochaeta pallida kann sowohl die Ovarialeier infizieren (in solchen ist sie von Hoffmann u. a. gefunden worden) als auch während der Schwangerschaft auf das Kind übergehen, gehört also zu den ausgesprochen vererbbaren Krankheitserregern. Offenbar findet der Parasit in den embryonalen Geweben besonders günstige Existenzbedingungen; denn die Embryonen werden meist in so hohem Maße infiziert, daß einzelne ihrer Gewebe geradezu Reinkulturen von Sp. pallida bilden (vgl. z. B. die sog. Pneumonia alba). Die so geschädigten [S. 367]Embryonen kommen entweder tot zur Welt oder besitzen in der Mehrzahl der Fälle eine sehr beschränkte Lebensfähigkeit.
Es ist gelungen, Sp. pallida auf höhere und niedere Affen (Orang, Makaken etc.) zu übertragen. Nach Impfung von solchen mit Syphilisvirus traten mit den syphilitischen Affektionen in den Affen gleichzeitig auch die Spirochäten auf, so daß diese Experimente als weiterer Beweis für die ätiologische Bedeutung der Spirochaeta pallida bei der Syphilis dienen. Bertarelli hat gezeigt, daß Sp. pallida in der Kaninchencornea sich enorm vermehrt und syphilitische Läsionen hervorruft. Die in Kaninchen in dieser Weise gezüchteten Kulturen passen sich an die Wirtsspecies an und werden für diese im Lauf der Zeit virulenter. Es lassen sich ferner nicht nur zahlreiche Passagen von Kaninchen zu Kaninchen, sondern auch Uebertragungen auf Affen mit Erzeugung deutlicher syphilitischer Affektionen, außerdem Hornhautinfektionen bei Hunden, Schafen usw. mit solchem Virus erzielen.
Die Medizin besitzt in den Quecksilberpräparaten ein spezifisches Gegenmittel gegen die Sp. pallida. Daß die Bekämpfung der Syphilis trotzdem auf große Schwierigkeiten stößt, ist bei dem eigenartigen Gewebeparasitismus der Spirochäte wohl zu verstehen. In der neuesten Zeit ist in dem Atoxyl eine sehr wichtige weitere Waffe gefunden worden, welche sehr gute Ergebnisse gezeitigt hat. Die wichtigste Form des Kampfes gegen die Syphilis wird jedoch immer die Prophylaxe und die Behandlung der Primäraffekte sein, für welchen Zweck [S. 368]neuerdings Metschnikoff in der Kalomelsalbe und dem Atoxyl scheinbar mit großer Sicherheit wirkende Mittel angegeben hat. Die glänzendste Waffe im Kampf gegen die Lues hat die Medizin aber in dem von Ehrlich auf Grund epochemachender Forschungen entdeckten Salvarsan erhalten, welches geradezu ein Spezifikum gegen die Spirochaeta pallida darstellt.
Spirochaeta pallida ist heutzutage mit dem Kulturmenschen über die ganze Erde verbreitet, überall da in größerer Häufigkeit, wo mit höherer Kultur größere Menschenansammlungen verbunden sind. Doch haben wir gute Gründe, anzunehmen, daß Sp. pallida aus Amerika stammt und sich erst in den Jahrhunderten nach der Entdeckung Amerikas, mit den seefahrenden Nationen über den Erdball verbreitet hat.
Es ist vorläufig noch unentschieden, ob die bei Frambösie entdeckten Spirochäten identisch mit Sp. pallida sind, oder ob sie eine besondere Form darstellen. Wegen des klinisch in mancher Beziehung abweichenden Bildes dieser in den Tropen verbreiteten Krankheit neigen zahlreiche Beurteiler zur Abtrennung der Form, welche zuerst von Castellani in Ceylon und von Wellman in Angola gefunden wurde:
Spirochaeta pertenuis Castellani.
|
1905.
|
Sp. pertenuis Castellani. In:
Journ. of tropic. Medicine. Vol. 8. No. 16. p. 253. Juni 1905.
|
|
1905.
|
Sp. pallidula Castellani, On the
presence of Spirochaetes in two cases of ulcerated Pasangi (Yaws). In:
British medic. Journ. November 1905.
|
|
Ferner:
|
|
|
1906.
|
Castellani, Is Yaws Syphilis?
In: Journ. tropic. Medicine. p. 1.
|
|
1906.
|
— Spirochätenfunde bei tropischer Frambösie. In: Deutsch.
med. Wochenschr. p. 16.
|
|
1906.
|
Schüffner, W., Die Spirochaeta
pertenuis und das klinische Bild der Framboesia tropica. In: Münchn. med.
Wochenschr. No. 28. (Daselbst weitere Literatur.)
|
Die Spirochäte der Frambösie ist morphologisch nicht von Sp. pallida zu unterscheiden. Die Länge der Individuen beträgt 18–20 µ.
Auch hier wurden neben den typischen Individuen merkwürdige ovale oder rundliche Körperchen gefunden, für welche ein entwicklungsgeschichtlicher Zusammenhang mit Sp. pertenuis vermutet wird. In den oberflächlichen Affektionen findet sich auch hier eine von Sp. refringens Schaudinn nicht unterscheidbare Form.
Hervorzuheben sind als besondere Formen ferner:
Spirochaeta Schaudinni Prowazek.
|
1909.
|
Keysselitz, G., und
Mayer, M., Ueber das Ulcus tropicum. In: Arch. f.
Schiffs- und Tropenhyg. Vol. 13. p. 137.
|
[S. 369]
Das Ulcus tropicum (Beingeschwür der Neger, Phagedaenismus), eine in den verschiedenen Gegenden der Tropen weit verbreitete Krankheit, wird durch Spirochäten erzeugt, welche stets mit fusiformen Bakterien vergesellschaftet gefunden wurden. Die von Prowazek zuerst benannte Sp. Schaudinni dringt in das Gewebe ein. Es ist eine kräftige Form, die im allgemeinen 15–25 µ in der Länge mißt. Infektion wird wahrscheinlich durch Dauerformen vermittelt.
Spirochaeta aboriginalis Cleland.
|
1909.
|
Cleland, J. Burton, On the
etiology of ulcerative granuloma of the Pudenda, with clinical description
and notes on treatment by J. R. Hickinbocham. Journ. trop. Med. Hyg. London.
Vol. 12. p. 143–150.
|
|
Vgl. Report of the Gov. Bur. of Microbiology. New
South Wales 1910. p. 32.
|
|
Bei Granuloma pudendi, einer Geschlechtskrankheit, welche in Australien und Südostasien unter den Eingeborenen verbreitet ist, kommt eine Spirochäte vor, welche als besondere Form angesehen wird. Die Krankheit unterscheidet sich von Frambösie und Lues. Die Spirochäte ist weniger regelmäßig gewunden und mißt 10–17,5 µ.
7. Spirochaeta recurrentis Lebert. Die Spirochäte des europäischen Rückfallfiebers.
|
1874.
|
1874 Sp. recurrentis Lebert, in:
Ziemssens Handbuch der spez. Pathologie u. Therapie. Leipzig. Vol. 2. p. 267.
|
|
1875.
|
Sp. Obermeieri Cohn,
Untersuchungen über Bakterien. In: Beiträge zur Biologie der Pflanzen.
Vol. 1. Heft 3. p. 196.
|
|
1906.
|
Spirillum Obermeieri C., F. G. Novy
and R. E. Knapp, Studies on Spirillum Obermeieri
and related organisms. In: Journ. of infect. Diseases. Vol. 3. p. 291.
|
Die Spirochäte des Rückfallfiebers ist 19–20 µ lang und ca. ¼ µ (0,39 µ) breit. Ihr Körper zeigt in der Regel nur 3–6 Windungen. Er ist etwas abgeplattet, doch ist eine undulierende Membran nicht nachgewiesen. An beiden Enden ist eine Zuspitzung des Körpers, am einen Ende Fortsetzung in eine Geißel von ca. ⅙ der Körperlänge erkennbar. Auch für diese Art wird hervorgehoben, daß die Individuen (z. B. bei Zusatz von immunem Blut) ihre Gestalt verändern, indem sie dicker und stärker lichtbrechend werden.
Im Innern des Körpers sind recht deutlich verschieden stark färbbare Substanzen erkennbar, doch ist für dieselben keine regelmäßige Anordnung nachgewiesen.
Längsteilung ist bei dieser Art noch nicht beobachtet worden, ihr Vorkommen wird sogar bestritten, z. B. von Novy und Knapp, welche nur Querteilung beobachtet haben. Doch geben auch sie das allmähliche Ausziehen zu einem dünnen Verbindungsfaden an. Auch bei dieser Form finden sich Ketten von Individuen, welche eine Länge von 40 µ und darüber erreichen.
Das Rückfallfieber, welches von diesem Organismus erzeugt wird, ist durch folgende Erscheinungen gekennzeichnet: Nach ca. 7 Tagen Inkubation tritt heftiges Fieber ein, während dessen das Blut des Kranken in der Regel von Spirochäten wimmelt. Darauf folgt ein starker Abfall der Temperatur; in der fieberfreien Zeit sind im Blut keine Spirochäten nachweisbar, nach einigen Tagen folgt ein zweiter Fieberanfall, dann wieder Fieberfreiheit, und dieser Wechsel kann sich [S. 370]mehrmals (bis 5mal im ganzen wiederholen). In der Regel kommen zwei Anfälle vor, selten nur einer oder mehr als zwei. Meist folgt nach dem zweiten Anfall Genesung, die Mortalität ist ca. 6 Proz. Eine besonders schwere Form der Febris recurrens mit sehr hoher Mortalitätsziffer (60–70 Proz.) wird als biliöses Typhoid bezeichnet.
Für die typische Febris recurrens ist sehr charakteristisch die nie fehlende Milzschwellung und die eigentümlichen Knochenschmerzen, häufig ist auch Leberschwellung. Die Milz kann während des Anfalls auf das 2- bis 3-fache der normalen Größe schwellen, um in der fieberfreien Periode wieder kleiner zu werden. In den Malpighischen Körpern ist starke Ansammlung von Leukocyten, welche Spirochäten aufnehmen, und regressive Metamorphose der ganzen Körperchen beobachtet, ferner kommen in der Milz Infarkte vor. Im Knochenmark verursachen die Spirochäten Erweichungsherde, welche offenbar mit den Knochenschmerzen im Zusammenhang stehen.
Im Anfang eines Anfalls bewegen sich die Spirochäten im Blut relativ langsam, später immer schneller, am letzten Tag des Anfalls werden sie wieder langsam, und es zeigen sich vielfach deformierte Individuen. Auch treten manchmal im Blut Agglomerationen von zahlreichen Individuen auf, wodurch oft sehr regelmäßige Sterne gebildet werden. Das weist darauf hin, daß im Blut der Infizierten allmählich Schutzstoffe auftreten.
Tatsächlich ist nachgewiesen, daß durch Ueberstehen eines Anfalls Immunität erworben wird, welche allerdings nicht vollständig und nicht dauernd ist (vgl. Allgemeinen Teil S. 305 u. 309).
Die ganze Biologie der Recurrens-Spirochäte weist darauf hin, daß die Schädigung des infizierten Organismus durch Stoffwechselprodukte des Parasiten erfolgt, welcher ja weder in die Gewebe eindringt, noch [S. 371]geformte Bestandteile bei seiner Ernährung aufnimmt. Dazu wird ja wohl auch die Entziehung bestimmter Stoffe kommen.
Die hier behandelte typische Febris recurrens kommt nur beim Menschen vor. Uebertragung gelang bisher nur auf Affen. Früher scheint die Krankheit in Europa weit verbreitet gewesen zu sein, (z. B. England, Schottland), heute ist sie so ziemlich auf Ost- und Südosteuropa beschränkt (Rußland, Herzegowina).
Von Mensch zu Mensch wird sie durch blutsaugende Arthropoden übertragen, welche besonders in unsauberen Herbergen, Nachtasylen etc. infiziert vorgefunden werden. Nach den Versuchen von Tictin u. a. schien die Wanze (Acanthia lectuaria) wesentlich in Betracht zu kommen, doch wird dies nach erfolglosen Experimenten neuerdings bestritten, indem angenommen wird, daß für das europäische Rückfallfieber eventuell auch Zecken (Argas persicus Fischer v. Waldh. nach Doenitz, vgl. Fig. 323) als Ueberträger in Betracht kommen (s. oben S. 353). Nach neuesten Untersuchungen scheinen jedoch Läuse, vor allem Kleiderläuse (Pediculus vestimenti), bei der Uebertragung die Hauptrolle zu spielen. Wahrscheinlich kommen verschiedene Ueberträger in Betracht.
Entwicklung irgendwelcher Art im Arthropoden-Organismus ist bisher nicht beobachtet worden; die Angaben von Klodnitzky (Centralbl. f. Bakteriologie etc. Vol. 45. 1908. Orig. p. 126), welcher Auswachsen der Spirochäten in Wanzen zu langen Fäden angibt, erscheinen sehr zweifelhaft.
Weitere Spirochäten aus der Gruppe der Rückfallfieber-Erreger.
Spirochaeta Duttoni Novy und Knapp. Der Erreger des afrikanischen Rückfallfiebers, Zeckenfiebers (Tick fever).
|
1906.
|
Sp. Duttoni Breinl, On the
specific nature of the Spirochaete of the African Tick fever. In: The
Lancet, June 16th, 1906.
|
In Afrika kommt ein Rückfallfieber vor, welches durch eine Spirochäte erzeugt wird, die in manchen Punkten von S. recurrentis abweicht.
Die Sp. Duttoni mißt 24–30 µ, Breite ca. ½ µ (0,45 µ).
Auch in der Morphologie werden einige Abweichungen von Sp. recurrentis angegeben.
Vor allen Dingen ist als Verschiedenheit hervorzuheben:
1) die Uebertragung durch eine besondere Zeckenart (Ornithodorus moubata Murray),
2) die Uebertragbarkeit außer auf Affen (nur Schmalnasen, Macacus, Cercopithecus) auch auf Mäuse, Meerschweinchen, Hamster, sowie auf Ratten (bei letzteren besonders nach intraperitonealer Impfung: Koch); dagegen ist sie nicht übertragbar auf Hund und Rind. Bei Kaninchen und Meerschweinchen tritt nach intraperitonealer Injektion keine Vermehrung ein.
Das afrikanische Rückfallfieber ist in den meisten Punkten dem europäischen sehr ähnlich.
[S. 372]
Die Infektion erfolgt, wie erwähnt, durch Ornithodora moubata M., welche in Afrika in den Eingebornenhäusern, Rasthäusern, an den Karawanenstraßen in Rissen des Bodens, Spalten und Winkeln häufig vorkommen. Die Zecken stechen Menschen und Haustiere; ihr Stich ist schmerzhaft. Künstliche Infektion durch Zecken ist gelungen; die Zecken sind mindestens 6 Monate lang imstande, ihre Infektiosität zu bewahren. In den Zecken ist keine besondere Entwicklungsform des Parasiten nachgewiesen worden. Die Spirochäten, welche Dutton und Todd noch 5 Wochen nach dem Blutsaugen im Magen fanden, verschwanden nach den Angaben von Koch offenbar zum größten Teil nach 4 Tagen aus diesem Organ. Sie sammeln sich an der Oberfläche der Ovarien, vermehren sich und infizieren die Eier. Die jungen Tiere, welche sich aus solchen Eiern entwickeln, sind also infiziert und sind imstande, die Krankheit wieder auf den Menschen zu übertragen, und zwar schon beim ersten Saugen; es liegt also ein unzweifelhafter Fall der Vererbung einer Krankheit vor.
Das Zeckenfieber ist im tropischen Ost- und Westafrika in weiter Verbreitung nachgewiesen; auch die Rückfallfieber in Nordafrika [S. 373](Aegypten, Abessinien), sowie in Indien und Südchina scheinen von dem gleichen Erreger verursacht zu sein.
Neuerdings glaubt man biologische Anhaltspunkte für die Unterscheidung der ost- und der westafrikanischen Form der Recurrens-Spirochäten gefunden zu haben.
Ebenso haben sich Abweichungen bei dem amerikanischen Rückfallfieber ergeben, welches aber möglicherweise durch Afrikaner über Westindien eingeschleppt ist. Der Erreger gleicht sehr der Sp. Obermeieri und ist auf Ratten, Mäuse und Affen übertragbar.
In Columbien wird die Krankheit nach Robledo durch Argas americanus übertragen. Man hat die Form als Sp. Novyi Schellack unterschieden. Sie mißt 17–20 µ in der Länge und ca. 0,31 µ in der Breite (nach Schellack).
In anderen Gegenden der Erde sind noch weitere Zeckenarten konstatiert worden, nach deren Stich Erkrankungen auftreten, welche man jetzt naturgemäß mit Spirochäten in Zusammenhang bringt.
Von solchen Vorkommnissen seien erwähnt:
- In Nordpersien: Argas persicus.
- In Zentralamerika: Argas talaje.
- In Mexiko: Argas turicata.
Dem europäischen und amerikanischen Rückfallfieber steht das indische nahe, welches durch eine sehr ähnliche Spirochäte erzeugt wird (Sp. Carteri Mackie). Sie mißt 10–32 µ. Die Krankheit ist schwer, die Mortalität 38 Proz. Die Uebertragung erfolgte im Experiment durch Flöhe und Wanzen (Cimex rotundatus). Neuerdings unterscheidet Sergent als weitere Form Sp. berbera Serg., welche in Tunesien und sonstwo in Nordafrika ein mildes Rückfallfieber erzeugt und wohl durch Pediculus vestimenti übertragen wird. Die Form mißt 12, 18–24 µ in der Länge, 0,25–0,30 µ in der Breite.
Tierpathogene Blutspirochäten.
a) Spirochaeta anserina Sacharoff.
|
1891.
|
Sacharoff, Sp. anserina. Annales
Inst. Pasteur. Vol. 5. p. 564.
|
Sp. anserina mißt 10–20 µ, ist in der Form ziemlich starr. Sie ist dünn, zarter als S. Obermeieri, mit dichten und regelmäßigen Windungen.
Sie kommt bei Gänsen vor (entdeckt in Transkaukasien), bei denen sie eine sehr häufig tödliche Krankheit erzeugt. Experimentell ist sie auf junge Hühner übertragbar, bei denen sie eine schwere, und auf alte Hühner und Enten, bei denen sie eine leichte Erkrankung hervorruft. Es kommt nur ein Anfall vor.
Sp. anserina lebt im Blut ihrer Wirte, während der Inkubation ist die Vermehrung in Milz und Knochenmark besonders intensiv. Ueberträger noch unbekannt.
b) Spirochaeta gallinarum R. Bl.
|
1905.
|
Raphael Blanchard.
|
|
1903.
|
Marchoux et
Salimbeni, La spirillose des poules. Annales Inst.
Pasteur. Vol. 17. p. 569.
|
[S. 374]
Sp. gallinarum mißt 15–20 µ.
Diese in Brasilien entdeckte pathogene Blutspirochäte kommt dort beim Huhn vor, ist aber künstlich leicht auf Gans, Turteltaube, Ente und zahlreiche Sperlingsvögel übertragbar, dagegen nicht auf Affen und Menschen. Bei Kaninchen verschwindet sie sehr schnell aus dem Blut.
Auch bei dieser Septikämie kommen keine Rückfälle vor; bei den Hühnern tritt nach einem Anfall eine dauernde, ausgiebige Immunität ein. Bemerkenswert ist die Entdeckung Prowazeks, daß Sp. gallinarum in die roten Blutkörperchen eindringt. Auch wurde sie in den Leber-Epithelzellen von Hühnerembryonen und in den Ovarialeiern intrazellulär nachgewiesen (Levaditi).
In Brasilien (Rio de Janeiro) häufig in den Hühnerzüchtereien.
Die Uebertragung erfolgt durch eine Zecke, Argas miniatus Koch. Züchtung auf Nährboden ist bisher mißlungen, doch konnte Levaditi in Kollodiumsäckchen, welche in die Leibeshöhle von Kaninchen genäht wurden, Sp. gallinarum längere Zeit züchten.
c) Spirochaeta Theileri Laveran.
|
1903.
|
Spirillum Theileri Laveran, Sur
la spirillose des bovidées. Comptes rend. Acad. Sci. Paris. Vol. 136.
p. 939.
|
Diese von Theiler in Südafrika entdeckte Spirochäte mißt 20 bis 30 µ in der Länge, 1¼–⅓ µ in der Breite, ist an beiden Enden zugespitzt, angeblich ohne Geißel. Ist wenig starr.
Kommt beim Rind im Blut vor, kann künstlich übertragen werden, wird in Südafrika durch die Zecke Boophilus (Margaropus) decoloratus Koch (Abbildung siehe unten bei Babesia) übertragen, und zwar durch die Nachkommen eines infizierten Individuums.
d) Ferner hat man im Blut von Pferden Spirochaeta equina (Theiler, G. Martin 1906) in Transvaal und an der Guineaküste, von Schafen Spirochaeta ovina Bl. (Mortoglio und Carpano, Theiler 1904) in Erythraea, Abessinien und Transvaal, von Fledermäusen Sp. vespertilionis Brumpt bei Vespertilio Kuhli in Tunis (Nicolle und Comte 1906), bei Mäusen Sp. muris Wenyon 1906 und bei Ratten Sp. minor Carter 1887 gefunden. Sp. muris W., in Paris entdeckt, hat 3–4 Windungen und mißt nur 3–7 µ. S. minor C. ist ebenfalls sehr klein, 5–9 µ lang. Bei Säugetieren wurden noch beobachtet Sp. gondi Nic., Sp. lutrae v. Prow., Sp. equi Brumpt.
Alle diese Formen, mit Ausnahme des Fledermausparasiten, scheinen nicht ausgesprochen pathogen zu sein.
Sehr bemerkenswert ist die Entdeckung Töpfers, daß im Blut von Eulen (Athene noctua) sich echte Spirochäten finden. Das würde weiterhin die Auffassung des von Schaudinn beschriebenen Entwicklungszyklus von Leukocytozoon Ziemanni als durch eine Mischinfektion bedingt unterstützen (vgl. unten). Bei Vögeln wurde beobachtet: Sp. Neveuxi Brumpt bei Hühnern in Afrika, Sp. Nicollei Brumpt bei Gänsen und Hühnern in Tunis, bei Fischen Sp. Jonesi Dutton, Todd und Tobey in Clarias angolensis im Congo, sowie von Neumann einige Formen in marinen Fischen.
[S. 375]
Wichtigste Literatur
zum Kapitel
„Spirochäten“.
|
(Die spezielle Literatur ist bei den einzelnen Arten
angeführt.)
|
|
|
468.
|
a) Breinl, A., und Kinghorn, A.,
Observations on the animal reactions of the spirochaete of the African tick
fever. In: Lancet 1906. p. 668 und Mem. XX. Liverpool School. Trop. Med.
1906. p. 61.
|
|
b) — — An experimental Study of the parasite of the
African tick fever. In: Mem. XXI. Liverpool School of Trop. Med. 1906.
|
|
|
469.
|
Bütschli, O., Ueber den Bau der Bakterien
und verwandter Organismen. Leipzig 1892.
|
|
470.
|
— Ueber den Bau der Cyanophyceen und Bakterien.
Leipzig 1896.
|
|
471.
|
— Weitere Untersuchungen über Bakterien und
Cyanophyceen. In: Arch. f. Protistenk. Vol. 1. 1902.
|
|
472.
|
Cantacuzène, J., Sur un spirochète
thermophile des eaux de Dax. Compt. rend. Soc. Biol. Vol. 68. 1910. p. 75.
|
|
473.
|
Darling, S. T., The relapsing fever of
Panama. In: Arch. intern. Medicine Chicago. Vol. 4. 1909. p. 150.
|
|
474.
|
Dobell, C. C., On Cristispira veneris n.
sp. and the affinities and classification of Spirochaets. In: Quart. Journ.
Micr. Sci. Vol. 56. 1911. p. 507.
|
|
475.
|
Doflein, F., Krankheitserregende
Spirochäten (Naturgeschichte der Spirochäten). Referat erstattet in:
Bericht XIV. internat. Kongr. Hygiene Berlin. Vol. 2. 1908. p. 152.
|
|
476.
|
— Probleme der Protistenkunde. Heft 2: Die Natur
der Spirochäten. Jena 1911.
|
|
477.
|
a) Dutton, J. E., and Todd, J. L.,
The nature of Tick fever in the Eastern part of the Congo free State, with
notes on the distribution and bionomics of the tick. In: Mem. XVII.
Liverpool School of Trop. Med. 1905.
|
|
b) Fränkel, C., Beobachtungen an den
Spirillen des Zeckenfiebers und des amerikanischen Recurrens. Hygien.
Rundschau 1907.
|
|
|
478.
|
Gabritschewsky, G., Les bases de la
sérothérapie de la fièvre récurrente. In: Ann. Inst. Pasteur. Vol. 10.
1896. p. 629.
|
|
479.
|
Gonder, R., Die Stellung der Spirochäten
unter den Protisten, zugleich Beitrag zur Kenntnis der Spirochaete primae.
In: Centralbl. f. Bakt. I. Abt. Orig. Vol. 49. 1909. p. 191.
|
|
480.
|
Gross, J., Cristispira nov. gen. Ein
Beitrag zur Spirochätenfrage. In: Mitteil. d. Zool. Stat. Neapel. Vol. 20.
1910. p. 41.
|
|
481.
|
Hartmann u. Mühlens,
Untersuchungen über Bau und Entwicklung der Zahnspirochäten. In: Zeitschr.
f. Hyg. u. Inf. Vol. 55. 1906. p. 92.
|
|
482.
|
Hoefer, P. A., Einige Bemerkungen an
Spirochaete recurrentis (Obermeieri). Bemerkungen zu der Arbeit von Dr. R.
Gonder. Centralbl. f. Bakt. Abt. I. Vol. 49. Heft 2; Orig. Bd. 50.
1909. p. 345.
|
|
483.
|
Keysselitz, G., Ueber die undulierende
Membran bei Trypanosomen und Spirochäten. In: Arch. f. Protistenk. Vol. 10.
1907. p. 127.
|
|
484.
|
Koch, Robert, Vorläufige Mitteilung über
die Ergebnisse einer Forschungsreise nach Ostafrika. In: Deutsche med.
Wochenschr. Jahrg. 31. 1905. No. 47. p. 1865.
|
|
485.
|
Levaditi, C., Les Spirochètes pathogènes.
Referat erstattet in: Bericht XIV. intern. Kongr. Hygiene Berlin. Vol. 2.
1908. p. 160. Abgedruckt auch in: Biophysikal. Centralbl. Vol. 3.
1907. p. 49.
|
|
486.
|
Manteufel, Experimentelle Beiträge zur
Kenntnis der Recurrensspirochäten und ihrer Immunseren. In: Arb. Kais.
Gesundheitsamt. Vol. 27. 1907.
|
|
487.
|
Mathis et Leger, Recherches sur le
spirochète de la fièvre récurrente du Tonkin. In: Soc. méd.-chir. de
l’Indochine. Jan. 1910.
|
|
488.
|
Mayer, Martin, Beiträge zur Morphologie
der Spirochäten (Sp. Duttoni), nebst Anhang über Plasmakugeln. In: Beihefte
zum Arch. f. Schiffs- u. Tropenhyg. Vol. 12. 1908. Beiheft 1. p. 1.
|
|
489.
|
Metschnikoff, E., Ueber den
Phagocytenkampf beim Rückfalltyphus. In: Virch. Arch. Vol. 109. 1887.
p. 176.
|
|
490.
|
Mühlens, P., Reinzüchtung einer
Spirochäte (Sp. pallida?) aus einer syphilitischen Drüse. Deutsche med.
Wochenschr. 1909. p. 1261.
|
|
491.
|
Nägler, K., Eine neue Spirochäte aus dem
Süßwasser. Centralbl. f. Bakt., Paras. u. Inf. Abt. I. Orig. Vol. 50. 1909.
p. 445.
|
|
492.
|
Novy, F. G. and Knapp, R. E.,
Studies on Spirillum obermeieri and related organisms. In: Journ. infect.
Diseases. Vol. 3. 1906. p. 291.
|
|
[S. 376]
493.
|
493. Perrin, Researches upon the life
history of Trypanosoma balbianii (Certes). In: Arch. f. Protistenk. Vol. 7.
1906. p. 131.
|
|
494.
|
Porter, A., Some observations on living
Spirochaetes of Lamellibranchs. In: Arch. zool. exper. Ser. 5. Vol. 3.
1909. p. 1.
|
|
495.
|
Prowazek, S., Vergleichende
Spirochätenuntersuchungen. In: Arb. Kais. Gesundheitsamt. Vol. 26. 1907.
p. 23.
|
|
496.
|
— Morphologische und Entwicklungsgeschichtliche
Untersuchungen über Hühnerspirochäten. Ibid. Vol. 23. 1906. p. 554.
|
|
497.
|
Neufeld und Prowazek, Ueber die
Immunitätserscheinungen bei der Spirochätenseptikämie der Hühner etc.
Ibid. Vol. 25. 1907. p. 494.
|
|
498.
|
Robledo, E., Fièvre récurrente de
Colombie. Bull. de la Soc. de Pathol. exot. 1909. No. 3.
|
|
499.
|
Schaudinn, F., Zur Kenntnis der
Spirochaeta pallida. In: Deutsche med. Wochenschr. Vol. 31. 1905. No. 42.
p. 1665.
|
|
500.
|
— Zur Kenntnis der Spirochaeta pallida und
anderer Spirochäten (Nachlaß!). In: Arb. Kais. Gesundheitsamt. Vol. 26.
1907. p. 11.
|
|
501.
|
Schellack, Morphologische Beiträge zur
Kenntnis der Recurrensspirochäten. In: Arb. d. Kaiserl. Gesundheitsamt. Vol.
27. 1907. Heft 2.
|
|
502.
|
— Studien zur Morphologie und Systematik der
Spirochäten der Muscheln. In: Arb. d. Kaiserl. Gesundheitsamt. Vol. 30.
1909. p. 379.
|
|
503.
|
Schereschewsky, J., Züchtung der
Spirochaete pallida (Schaudinn). Deutsche med. Wochenschr. 1909. p. 835.
Weitere Mitteilungen über .... p. 1260–1261.
|
|
504.
|
— Bisherige Erfahrungen mit der gezüchteten Sp.
pallida. Deutsche med. Wochenschr. 1909. No. 38. p. 1652–1654.
|
|
505.
|
— Erkennung des Syphiliserregers auf dem Wege
der Züchtung der Sp. pallida. Berl. klin. Wochenschr. 1910. No. 42. p.
1927–1928.
|
|
506.
|
Schuberg und Manteufel, Ueber
erworbene Immunität gegen Recurrens bei Ornithodorus moubata. In: Zeitschr.
f. Immunitätsforsch. Vol. 4. 1909. p. 512.
|
|
507.
|
Sergent, E. et Foley, H.,
Recherches sur fièvre récurrente et son mode de transmission dans une
épidémie algérienne. Annal. de l’instit. Past. Vol. 24. 1910. No. 5.
p. 337–375.
|
|
508.
|
Siebert, W., Studien über Spirochäten und
Trypanosomen. In: Arch. f. Protistenk. Vol. 11. 1908. p. 363.
|
|
509.
|
Siedlecki und Krzysztalowicz,
Contribution à l’étude de la structure et du cycle évolutif de Spirochaete
pallida Schaud. In: Bull. Ac. Sci. Cracovie. Cl. Math.-Nat. 1905. p. 713.
|
|
510.
|
— Étude expérimentale de la Syphilis;
morphologie de Spirochaeta pallida. Ibid. 1908. p. 173.
|
|
511.
|
Sobernheim, G., Spirillosen. In: Kolle
und Wassermann, Handb. d. pathog. Mikroorganism. I. Ergänzungsbd. 2. Heft.
1907. p. 522.
|
|
512.
|
Swellengrebel, N. H., Neuere
Untersuchungen über die vergleichende Cytologie der Spirillen und
Spirochäten. Centralbl. f. Bakt. Abt. I. Orig. Bd. 49. 1909. p. 529.
|
|
513.
|
— Sur la cytologie comparée des Spirochètes et
des Spirilles. In: Ann. Inst. Pasteur. Vol. 21. 1907. p. 1.
|
|
514.
|
Uhlenhuth und Haendel,
Vergleichende Untersuchungen über die Spirochäten der in Afrika, Amerika und
Europa vorkommenden Recurrenserkrankungen. In: Arb. Kais. Gesundheitsamt.
Vol. 26. 1907. p. 1.
|
|
515.
|
Wladimiroff, A., Rückfallfieber. In:
Kolle und Wassermann, Handb. d. pathog. Mikroorganismen. Vol. 3. 1903.
p. 75.
|
|
516.
|
Zettnow, Färbung und Teilung bei
Spirochäten. In: Zeitschr. f. Hyg. u. Inf. Vol. 52. 1906.
|
|
517.
|
Zuelzer, M., Ueber Spirochaeta plicatilis
Ehrb. und deren Verwandtschaftsbeziehungen. Arch. f. Protistenk. 1911.
|
|
518.
|
— Biologie und Morphologie der freilebenden
Spirochäten. Verhandl. des internat. Zoologenkongr. in Graz 1910.
|
[S. 377]
Stamm: Protozoa.
I. Unterstamm:
Plasmodroma. Doflein.
I. Klasse.
Mastigophora. Diesing.
Diese Klasse der Protozoen vereinigt eine Menge mehr oder weniger nahe verwandter Organismen, welche durch den Besitz von einer oder mehreren Geißeln ausgezeichnet sind. Der Besitz dieser Bewegungsorganellen ist aber auch fast das einzige, was den Angehörigen dieser Klasse gemeinsam ist. In fast allen anderen Eigenschaften weichen die einzelnen Gruppen in fundamentaler Weise voneinander ab. So haben wir Mastigophoren, welche sich gänzlich wie Pflanzen ernähren, indem sie mit Hilfe von Chromophyll aus Wasser und Kohlensäure organische Substanz aufbauen, andere ernähren sich rein tierisch durch Aufnahme geformter Nahrung, während wieder andere eine saprozoische Lebensweise zeigen. Viele aber sind Uebergangsformen zwischen den genannten drei Gruppen, indem sie sich teils pflanzlich, teils tierisch ernähren usw. Neuerdings haben sich unsere Kenntnisse von den Fortpflanzungsvorgängen bei den Mastigophoren sehr vermehrt. Dadurch sind uns aber die Verwandtschaftsbeziehungen zwischen den einzelnen Gruppen nicht klarer geworden; bei vielen der neuerdings untersuchten Formen ist die Entwicklungsgeschichte so sehr durch spezielle Lebensverhältnisse beeinflußt, bei anderen sind die beschriebenen Fortpflanzungsvorgänge noch so strittig, daß eine Zusammenfassung nach einheitlichen Gesichtspunkten kaum möglich ist.
Fast durchweg ist bei den Mastigophoren die agame Teilung eine Längsteilung. Geschlechtliche Vorgänge von großer Mannigfaltigkeit der äußeren Erscheinung sind in den verschiedenen Gruppen nachgewiesen worden. Vielfach sind metagame Teilungen von progamen Teilungen unterscheidbar, eventuell ein Generationswechsel in dem Sinn, wie er oben auf S. 225 definiert wurde.
Das charakteristischste Merkmal der Klasse der Mastigophoren ist, daß ihre Angehörigen während der Hauptepoche ihres Lebens mit einer oder mehreren Geißeln (Flagellen) versehen sind, welche die [S. 378]Fortbewegung vermitteln. Während Rhizopoden der verschiedenen Abteilungen und Algen, sowie andere Organismen Jugendzustände mit Geißeln besitzen, die sie Mastigophoren sehr ähnlich sehen lassen, welche sie aber auf der Höhe ihres Lebenszyklus wieder einbüßen, werden wir solche bei Mastigophoren nur in gewissen Perioden des Lebens, bei der Encystierung usw. vermissen.
Einige Flagellaten der niedersten Gruppen besitzen in der Jugend, andere während des ganzen Lebens, die Fähigkeit, neben den Geißeln Pseudopodien zu bilden. Dies weist auf eine nahe Verwandtschaft des Mastigophoren- und Rhizopodenstammes an ihrer Wurzel hin.
Bei den meisten Formen ist jedoch der Körper starr, seltener etwas metabolisch; in manchen Gruppen kommen sogar Panzerbildungen oder Scheiden aus Gallerte usw. vor.
Die Mastigophoren besitzen einen Zellkern und eine kontraktile Vakuole. Die Größe der Tiere ist eine sehr verschiedene, wir kennen solche von nur wenigen µ Größe bis zu einem Millimeter und darüber. Doch ist die Mehrzahl der Mastigophoren klein; in einzelnen Abteilungen kommen Arten vor, welche zu ansehnlichen Kolonien auswachsen. Dauerformen sind von sehr vielen Formen bekannt, sie sind wohl allgemein verbreitet.
Wir erkennen in den Mastigophoren eine Klasse, welche, ähnlich wie die Würmer unter den Metazoen, wenig in sich geschlossen erscheint, und zwar, weil sie offenbare verwandtschaftliche Beziehungen nach allen Seiten besitzen. Die Mastigophoren zeigen sich mit den Bakterien, den Algen, den Rhizopoden, den Ciliaten, und vor allem auch den Sporozoen verwandt.
Nach der Zahl, Anordnung und Beschaffenheit der Geißeln, der Beschaffenheit des Zellleibes und den allgemeinen Lebenserscheinungen teilen wir die Klasse der Mastigophoren in 3 Unterklassen:
- Flagellata (= Euflagellata).
- Dinoflagellata.
- Cystoflagellata.
Der größte Formenreichtum und die heterogensten Elemente sind in der Unterklasse der Flagellaten vereinigt, während die Unterklassen der Dinoflagellaten und der Cystoflagellaten scharf abgegrenzte systematische Einheiten darstellen. Sie verhalten sich in dieser Beziehung ähnlich wie die Radiolarien und Foraminiferen unter den Rhizopoden.
Unterklasse:
Flagellata. Cohn
em. Bütschli.
(Euflagellata.)
Die Angehörigen dieser Unterklasse besitzen häufig einen mehr oder weniger streng einachsig gebauten Körper; die Gestaltung steht im engsten Zusammenhang mit der Anordnung der Geißeln; somit kommen auch zweiachsige und bilateral-symmetrisch gebaute Flagellaten vor. Doch sind auch asymmetrische Typen nicht selten, und besonders bemerkenswert erscheinen einzelne Gattungen mit einem spiralig gebauten Körper.
Das Protoplasma ist meist ziemlich feinkörnig, die Scheidung in ein scharf getrenntes Ekto- und Entoplasma bei weitem nicht so allgemein und leicht nachweisbar wie bei den Rhizopoden. Viele niedere [S. 379]Flagellaten besitzen ein sogenanntes nacktes Protoplasma, welches ihrem Körper weitgehende Formänderungen, z. B. Pseudopodienbewegung gestattet. Es ist dies insbesondere für solche Gruppen charakteristisch, welche entweder vorübergehend oder dauernd amöboïd beweglich sind. Bei den Flagellaten finden wir aber alle Stufen der Verfestigung der Körperhülle, von Formen mit dünner Pellicula, welche weitgehende Metabolie (vgl. S. 47) zeigen, zu Formen mit vollkommen starrer Pellicula, bis zu den Formen mit Panzern, Schalen und Gehäusen. Ziemlich regelmäßig sind kontraktile Vakuolen vorhanden, welche meist im Körper eine konstante Lage einnehmen. Auch komplizierte Vakuolensysteme kommen vor.
Der Kern ist meist in der Einzahl vorhanden (vergl. hierzu unten bei den Trypanosomiden die Erörterung über „Binucleata“). Fast ausschließlich kommen bläschenförmige Kerne vor, mit relativ dichtem Bau; sehr weit verbreitet sind chromatinreiche Binnenkörper. Die Teilung der Kerne verläuft vielfach unter dem Bild einer Karyokinese, wobei der Binnenkörper sich mit teilt.
Die Bewegungsorgane, die Geißeln, sind in verschiedener Zahl, Länge und Anordnung vorhanden und bieten die wichtigsten Anhaltspunkte für die Systematik der Gattungen und Arten, zum Teil auch der höheren Kategorien des Systems.
Meist sind nur eine oder wenige Geißeln vorhanden, welche am Vorderende befestigt sind und bei der Bewegung vorausgehen. Sind mehrere Geißeln einem Flagellaten eigentümlich, so können große Verschiedenheiten in deren Dimensionen, Funktionen und Insertionsstellen vorkommen.
Unter Hauptgeißel versteht man dann die in der Bewegungsrichtung nach vorn gerichtete größere Geißel, sehr kleine danebenstehende sind Nebengeißeln, größere aber nach hinten gerichtete sind Schleppgeißeln (weil sie in der Regel ohne selbständige Bewegung nachgeschleift werden).
Nähere Angaben über Struktur, Bewegung, Insertion der Geißeln finden sich im allgemeinen Teil (vgl. S. 35).
Bei den Formen mit rein tierischer Ernährung dienen die Geißeln vielfach zum Einfangen und Einstrudeln der Nahrung. Mit der steigenden Komplikation der Körperhüllen werden immer deutlicher besondere Mundstellen zur Aufnahme der Nahrung ausgebildet, an denen das Plasma seine weiche Beschaffenheit behält, so daß die Nahrungskörper leicht in das Körperinnere gelangen können. Vielfach liegt diese Oeffnung am Grund einer Mundgrube oder eines Schlunds.
[S. 380]
Die Mundöffnungen fehlen oder sind funktionslos bei Saprozoen, Parasiten und Holophyten. Alle drei biologischen Spezialitäten sind bei den Flagellaten reichlich vertreten.
Die Holophyten sind die charakteristischsten unter den freilebenden Flagellaten und gekennzeichnet durch die Chromatophoren, welche grüne, gelbe oder braune Farbe besitzen. Rein grüne Chromatophoren mit echtem Chlorophyll kommen bei zahlreichen Gruppen der Flagellaten vor, gelbe und braune bei den Chrysomonadinen; der braune Farbstoff verdeckt das stets neben ihm vorhandene Chlorophyll, welches bei Behandlung mit Alkohol sichtbar wird.
Manche von diesen Holophyten ernähren sich neben der pflanzlichen Form der Assimilation auch noch durch Aufnahme geformter Nahrung in tierischer Weise.
Bei den echten Parasiten ist Ernährung auf osmotischem Wege durch Aufnahme von Flüssigkeiten, welche an organischen Bestandteilen reich sind, die Regel.
Für die große Mannigfaltigkeit der Typen, in denen der Zeugungskreis der Flagellaten abläuft, finden sich Beispiele unten im speziellen Teil. Hier nur einige allgemeine Bemerkungen:
Sehr verbreitet ist die Teilung im freischwärmenden Zustand, welche stets durch Längsspaltung vor sich geht. Doch kommt auch der Zweiteilung im Ruhezustand, eventuell innerhalb einer Cystenhülle, eine gewisse Verbreitung zu. Bei der Körperteilung werden außer dem Kern die übrigen Organellen verdoppelt, wobei vielfach Geißeln, deren Basalgebilde, Chromatophoren und Stigmata sich teilen. Die Geißeln werden aber auch manchmal vor der Teilung abgeworfen oder resorbiert und in beiden Teilsprößlingen neu gebildet. Von den anderen Organellen wird öfters das eine für den einen Teilsprößling neu gebildet. Mit dieser gewöhnlichen Zweiteilung wechselt vielfach nach einer gewissen Zeit regelmäßig eine Vermehrung durch Zerfall des Tieres in eine größere Anzahl von Produkten rasch aufeinanderfolgender Teilungen ab. Gewöhnlich geht dieser Vermehrung ein [S. 381]Kopulationsvorgang voraus, und sehr häufig findet sie unter dem Schutze einer mehr oder weniger festen Cyste statt.
Ein Schema des Entwicklungskreises einiger Flagellaten gibt Fig. 328. Dabei ist auch durch die punktierte Linie die geschlechtliche Periode einer hochentwickelten Form neben dem niedriger stehenden Haupttypus dargestellt. Bei den Flagellaten nämlich sehen wir eine vollständige Entwicklungsreihe der Geschlechtsprodukte noch heutzutage von den lebenden Arten dargestellt. Während bei den primitiven Formen eine Kopulation von äußerlich ganz gleichartigen Geschlechtszellen oder Gameten vorherrscht, sehen wir, je höher wir in der Reihe der Flagellaten aufsteigen, die Geschlechtszellen sich immer weiter differenzieren, bis wir schließlich bei den Volvocineen und anderen weibliche Gameten finden, welche vollkommen mit Eiern, männliche Gameten, welche vollkommen mit Spermatozoen der vielzelligen Tiere übereinstimmen (vgl. allgemeinen Teil S. 186).
Der dargestellte typische Entwicklungskreis ist übrigens so häufig durch eingeschobene Dauerformen, Kolonienbildung usw. kompliziert, daß es unmöglich wäre, alle Variationen in dem Schema zur Anschauung zu bringen. Daher ist absichtlich das ganz vereinfachte Schema zur Veranschaulichung der häufigsten Typen der Entwicklungsgeschichte benützt worden.
Wir teilen die Unterklasse der Flagellaten mit Klebs in folgende 5 Ordnungen.
- Protomonadina,
- Polymastigina,
- Euglenoidina,
- Chromomonadina,
- Phytomonadina.
Diese Einteilung ist zum Teil auf die Beschaffenheit und Insertion der Geißeln, zum Teil auf das Vorkommen und Fehlen, sowie auf die Beschaffenheit der Chromatophoren gegründet. Es ist sicherlich eine sehr der Verbesserung bedürftige Klassifikation.
In mancher Beziehung stellt das System von Senn (1900) einen Fortschritt dar, indem es auf Grund der Beschaffenheit des Vorderendes (im Anschluß an Klebs) der Körperhüllschicht, der kontraktilen Vakuolen, der Geißeln, schließlich auf Grund der Chromatophoren und Assimilationsprodukte die Unterklasse in 7 Ordnungen einteilt:
- Pantostomatineae,
- Protomastigineae,
- Distomatineae,
- Chrysomonadineae,
- Cryptomonadineae,
- Chloromonadineae,
- Euglenineae.
Ehe wir bessere Kenntnisse von den Kernverhältnissen und von den Fortpflanzungserscheinungen bei den Flagellaten haben, können wir nicht an den definitiven Ausbau des Systems herantreten.
Wie schon früher erwähnt, hat Hartmann gemeinschaftlich mit einigen Schülern Vorschläge zu einem Ausbau des Flagellatensystems gemacht. Sie knüpfen dabei an eine Arbeit von Prowazek an, indem sie die Geißelinsertion und den Kernbau als Grundlage der Systematik benützen. Diese Vorschläge enthalten sicherlich manches Richtige, aber auch manches, dem ich nicht zustimmen kann. Ich führe unten den Entwurf Hartmanns an; ich wende aber seine Anordnung nicht an, weil sie noch nicht genügend ausgearbeitet ist. [S. 382]Für die einzelnen gut untersuchten Formen scheint das System ja ganz schön zu stimmen. Sobald man aber die Gesamtheit der bekannten Formen einzufügen sucht, gerät man in Schwierigkeiten, besonders da für das neue System keine Definitionen bisher gegeben wurden. Es ist noch zu wenig vorgearbeitet und daher ist zu erwarten, daß jede genauere Untersuchung noch größere Umwälzungen in der Anordnung zur Folge haben wird. Daher ist es richtiger, im Lehrbuch die alte übersichtliche Anordnung beizubehalten, der neuen Versuche aber immerhin Erwähnung zu tun, da sie Momente des Fortschritts in sich enthalten.
Hartmanns Einteilung der Flagellaten ist folgende:
- Ordnung: Rhizomastigina,
- „ Protomonadina,
- „ Binucleata,
- „ Chromomonadina,
- „ Euglenoidina,
- „ Phytomonadina.
Die wichtigsten Neuerungen dieser Systematik sind die Beseitigung der Polymastigina und die Zufügung der Binucleata. Die Rhizomastigina hat schon Bütschli an den Grund des Flagellatensystems gestellt gehabt. Diese Stelle gebührt ihnen nur dann, wenn sich die unten angeführten Angaben Goldschmidts über ihre Fortpflanzungsweise als irrtümlich herausstellen, was Hartmann anzunehmen scheint, was aber nicht nachgewiesen ist. Die Vereinigung der Polymastigina mit den Protomonadinen ist durch mancherlei Gründe gestützt. Doch herrschen noch Kontroversen über die Auffassung der einzelnen Zellbestandteile bei manchen Polymastiginen, so daß die Verwandtschaftsbeziehungen noch nicht endgültig geklärt erscheinen. Was schließlich die Binucleaten anlangt, so habe ich schon auseinandergesetzt, warum ich ihre Aufstellung als besondere Ordnung, wie sie Hartmann verficht, nicht anerkennen kann.
I. Ordnung.
Protomonadina Blochmann.
Diese Ordnung enthält meist kleinere, oft selbst sehr kleine Formen, welche nicht selten Kolonien bilden. Der Körper ist nackt und kann amöboïde Beweglichkeit zeigen. Sie haben entweder nur eine Geißel, welche meist am Vorderende sitzt, oder zwei gleiche Geißeln, oder zwei ungleiche Geißeln (Haupt- und sehr kleine Nebengeißel oder Haupt- und Schleppgeißel), oder drei ungleiche Geißeln (eine Hauptgeißel und zwei sehr kleine Nebengeißeln).
Bei manchen, besonders parasitischen Formen, tritt zu einer Hauptgeißel eine meist stark entwickelte undulierende Membran hinzu.
Eine besondere Mundstelle ist meist deutlich erkennbar und liegt an der Geißelbasis; ein wohlentwickelter Schlund ist bei keiner Art nachgewiesen.
Ueber die Fortpflanzungsverhältnisse finden sich Angaben bei den einzelnen Gruppen, da unsere gegenwärtigen Kenntnisse uns keine zusammenfassende Darstellung gestatten.
Die Ordnung ist im nachfolgenden Abschnitt in 8 Familien eingeteilt, von denen aber viele einen durchaus provisorischen Charakter besitzen, da wir über die feineren Organisationsverhältnisse der zahlreichen Arten ebensowenig Kenntnisse besitzen, wie über die Fortpflanzung. Die Familie der Rhizomastigina ist im Anhang zu den Mastigophoren behandelt, um ihre vermittelnde Stellung zwischen diesen und den Rhizopoden anzudeuten.
Wir unterscheiden folgende Familien:
- 1) Cercomonadidae Kent em. Bütschli.
- [S. 383] 2) Trypanosomidae Doflein (vorläufig beibehalten).
- 3) Monadidae Stein em. Senn.
- 4) Bicoecidae Stein.
- 5) Choanoflagellidae Stein.
- 6) Spongomonadidae Stein.
- 7) Amphimonadidae Kent em. Bütschli.
- 8) Bodonidae Bütschli.
Hartmann teilt die Protomonadinen, denen er die Polymastiginen einfügt, von denen er aber die Trypanosomiden und einen Teil der Bodoniden unter der Bezeichnung als Binucleata abtrennt, folgendermaßen ein:
a) Monozoa.
- Familie: Cercomonadaceae.
- „ Oicomonadaceae.
- „ Craspedomonadaceae.
- „ Bodonaceae.
- „ Monadaceae.
- „ Amphimonadaceae.
- „ Trimastigaceae.
- „ Tetramitidae.
b) Diplozoa.
9. Familie: Distomatidae.
1. Familie: Cercomonadidae Kent em. Bütschli.
Kleine Formen von ovaler bis länglicher Gestalt, eingeißelig, mit stumpfem oder zugespitztem Vorderende, ohne Peristombildung. Hüllschicht des Körpers meist eine zarte Pellicula, daher starke Metabolie verbreitet; besonders das Hinterende oft direkt amöboïd beweglich. Kern bläschenförmig. Rhizoplasten, Basalkörner etc. an der Basis der Geißel vorhanden.
Nahrungsaufnahme in der Regel durch Vakuolenbildung an der Geißelbasis.
Kontraktile Vakuole am vorderen Ende.
Geschlechtliche Stadien nicht bekannt.
Gattung: Cercomonas Dujardin em. Bütschli.
|
1841.
|
Dujardin, Histoire naturelle des
Zoophytes infusoires. Paris.
|
|
1873.
|
Dallinger and
Drysdale, Researches in the life-history of a
Cercomonad in: Monthly Micr. Journ. Vol. 10. 1873.
|
|
1910.
|
Hartmann und
Chagas, Flagellatenstudien in: Mem. Inst. Oswaldo
Cruz Rio de Janeiro. Vol. 2. p. 67.
|
|
1910.
|
Wenyon, Some observations on a
flagellate of the genus Cercomonas in: Quart. Journ. Micr. Sc. Vol. 55.
p. 241.
|
Die Arten sind klein und farblos; die Form kugelig oder oval. Die Geißel ist meist sehr groß, sie geht bei der Bewegung voran, das Hinterende ist lang ausgezogen und zeigt eine gewisse Formveränderlichkeit. Der Schwanzfortsatz ist durch eine elastische Fibrille gestützt, welche von der Geißelbasis den ganzen Körper der Länge nach durchzieht; dieselbe setzt sich zusammen aus dem Rhizoplasten, welcher vom Karyosom des Kernes bis zum Basalkorn der Geißelbasis zieht, und dem vom Karyosom aus nach hinten sich erstreckenden Achsenfaden. Zuweilen bilden sich spitzige Pseudopodien. Ein Kern liegt in der vorderen Körperhälfte; daselbst oder an der Seite eine oder mehrere kontraktile Vakuolen. Mundöffnung ist keine differenziert, aber an der Geißelbasis erfolgt an einer bestimmten Stelle die Nahrungsaufnahme durch eine Vakuole.
[S. 384]
Kopulation, Zweiteilung im freien Zustand und Zerfall in Schwärmsprößlinge innerhalb einer Cyste (bei Parasiten ohne solche?) sind bekannt.
Im allgemeinen kommen die Arten im Süßwasser und in Infusionen vor. Mehrfach sind solche in Aufgüssen aus Faeces des Menschen beschrieben worden. Doch sind öfters parasitische Flagellaten beschrieben worden, welche zu Cercomonas gehören müssen, wenn sie überhaupt selbständige Organismen darstellen.
Angehörige dieser Gattung sind schon seit dem ersten Drittel des 19. Jahrhunderts in vielen Fällen als Parasiten genannt worden. Doch ist niemals eine parasitische Art speziell namhaft gemacht worden, welche sich bei näherer Untersuchung als wirklich zur Gattung gehörig herausgestellt hätte. In vielen Fällen mag auch eine Verwechslung mit den in vielen Beziehungen ähnlichen flagellatenartigen Fortpflanzungsformen von anderen Organismen tierischer oder pflanzlicher Art vorgekommen sein, Myxomyceten, gewissen Pilzen usw.
So sind besonders bei Erkrankungen der Lunge im Auswurf, oder bei Pleuritis im Exsudat oft cercomonasähnliche Organismen gefunden worden.
Bei Lungengangrän sind solche von Kannenberg und Streng beschrieben worden; der letztere hat sie sogar in Bouillon zu züchten vermocht. Sie fanden sich im Sputum und vor allen Dingen an den aus der Lunge stammenden sog. putriden Knöpfen; auch wurden sie nach dem Tode der Patienten in der Lunge selbst gefunden.
Bei seröser oder putrider Pleuritis wurden ebenfalls Flagellaten beobachtet, und zwar durch Litten und durch Roos[25].
Beim Keuchhusten sind ebenfalls Flagellaten gesehen worden; so hat Deichler derartige Gebilde beschrieben. Doch sind in vielen Fällen von seiten nicht zoologisch geschulter Beobachter unzweifelhaft losgelöste Zellen, z. B. Epithelzellen der Trachea, für selbständige Organismen gehalten worden; so wahrscheinlich gerade in dem Fall von Deichler.
Noch bis in die neueste Zeit werden immer wieder Cercomonasarten auch als Darmparasiten des Menschen beschrieben (Cercomonas intestinalis vgl. Guastalla 1909). In einigen Fällen wurde angegeben, daß nach dem Verschwinden der Parasiten die Krankheitserscheinungen schwanden.
Alle diese Beobachtungen sind jedenfalls in zoologischer Beziehung zu ungenau, um eine Identifizierung der Parasiten zu gestatten. [S. 385]Aber es geht aus den Befunden hervor, daß es sich meist weder um einen spezifischen Krankheitserreger, noch um eine regelmäßige Begleiterscheinung handelt. Es können die Flagellaten in diesen Fällen nur zufällige Eindringlinge sein, welche in den krankhaften Flüssigkeiten saprophytisch, wie in einer Infusion gedeihen. Es ist überhaupt höchst auffallend, wie häufig sehr kleine Flagellaten im Darm, auf Schleimhäuten usw. von Tieren sich nachweisen lassen.
Zweifelhafte Cercomonaden sind ferner einige Tierparasiten, welche ich, um zu einer Neuuntersuchung anzuregen, nur aufzählen will:
Cercomonas (Monas) anatis Davaine im Darm von Enten.
Cercomonas canis Gruby und Delafond im Magen des Hundes.
Cercomonas gallinarum Davaine. 51 µ lang, 5 µ breit, im Darm von Hühnern.
Cercomonasähnliche Organismen sind auch aus dem Magen von Wiederkäuern beschrieben worden.
Alle diese Arten sind ungenügend charakterisiert.
Ich zitiere sie nach Davaine: Artikel Monadiens, in: Dictionnaire encyclopédique des Sciences médicales. Ser. II. Vol. 9. 1875.
Um die sehr wünschenswerte Festlegung der Naturgeschichte der hierher gehörigen sehr häufigen Formen zu erleichtern, füge ich Diagnose und Abbildung einer freilebenden Art an:
Cercomonas crassicauda Duj.
|
1878.
|
Stein, F., Der Organismus der
Infusionstiere. III. Abt. 1. Hälfte. Taf. 1. III.
|
Spindelförmige Art mit dickem, sich allmählich verschmälerndem Schwanzanhang, mit bläschenförmigem Kern, mit großem Binnenkörper im vorderen Drittel des Körpers. Am Vorderende 2–3 kontraktile Vakuolen. Länge ca. 40 µ.
Im fauligen, stehenden Wasser und in Infusionen häufig.
Neuerdings haben Hartmann u. Chagas eine Form aus einem Aufguß von menschlichen Faeces beschrieben, Cercomonas parva. Wenyon hat ferner eine Form (Cercomonas crassicauda Duj.) (Fig. 330) als dem Typus der Gattung nahestehend angesehen, welche zwei Geißeln besitzt und der als Dimastigamoeba beschriebenen Gattung angehören muß. Seine Beschreibung und Abbildungen lassen es nicht ganz ausgeschlossen erscheinen, daß die sehr kleine, von Hartmann u. Chagas beschriebene Art, auch zwei Geißeln besitzt. In diesem Falle wäre von neuem die Gattung Cercomonas zweifelhaft; denn diese einzigen genauer untersuchten Formen würden dann eher zu den Bodoniden zu rechnen sein.
[S. 386]
Gattung: Oicomonas Kent.
Die kleinen und sehr kleinen Arten dieser Gattung sind kuglig bis ovoid, amöboïder Gestaltveränderung fähig. Vorderende mit schwacher Einsenkung, deren Wall oft auf einer Seite lippenförmig vorgezogen. Hinterende meist bei freischwimmenden Individuen abgerundet, bei festgesetzten in einen Faden ausgezogen. Eine Geißel am Vorderende, ein bläschenförmiger Kern im vorderen Körperdrittel, zu dessen Seite eine kontraktile Vakuole. Die Geißel ist durch einen Rhizoplast mit dem Kern verbunden, zwischen Kern und Oberfläche liegt am Rhizoplasten ein Basalkorn.
In Süßwasser, besonders fauligem Gewässer, Sümpfen etc.
- Arten: Oicomonas termo (Ehrb.),
- Oicomonas mutabilis Kent.
2. Familie: Trypanosomidae Doflein.
Den Cercomonadiden sehr nahe stehende, wahrscheinlich von ihnen abzuleitende parasitische Protomonadinen von länglicher Gestalt, meist an beiden Enden zugespitzt oder doch zulaufend, ohne Peristom und ohne Mundöffnung. Der Körper zeigt vielfach eine spirale Drehung.
Die Hüllschicht des Körpers ist relativ fest, doch sind metabolische Bewegungen vielfach noch möglich. Die Trypanosomiden sind eingeißelig, die Geißel befindet sich am Vorderende. Der Zentralfaden der Geißel setzt sich im Innern oder am Rand des Körpers bis zu dem meist großen Blepharoplasten fort, welcher bald vor, bald neben oder hinter dem Kern gelegen ist. Manchmal sieht man eine Fortsetzung des Zentralfadens über den Blepharoplasten hinaus (Fig. 331). Bei Formen, bei welchen eine solche Fortsetzung fehlt, besitzt das Hinterende des Tieres große Metabolie (vgl. Fig. 335 A–C). Der Zentralfaden und die Hüllschicht (Pellicula) des Körpers bilden die formgebenden Elemente, welche das flüssige Körperplasma in der typischen Gestalt erhalten. Unter der Pellicula liegen nach Angabe vieler Autoren kontraktile Fibrillen (Myoneme oder Myocytfibrillen genannt), gegen deren Kontraktionen sollen Pellicula und Zentralfaden als Antagonisten wirken, wodurch die charakteristische schlängelnde Bewegung zustande kommt. Die Bewegung kann sowohl vorwärts (d. h. in der Richtung des geißeltragenden Endes), als auch rückwärts erfolgen. Dabei müssen wir unterscheiden zwischen dem Anteil, den die peitschenschnurartig schlagende Geißel und der wimpelartig wogende Körper an der Lokomotion haben. Der letztere versetzt sich in eine spiralig rotierende Bewegung, mit deren Hilfe er sich durch die Flüssigkeit hindurchbohrt; oft erfolgt die Rotation ohne jeglichen Ortswechsel. Der Geißel fällt wohl der Hauptanteil an der eigentlichen Lokomotion zu.
Unter Umständen kann die Plasmaschicht, welche den Zentralfaden der Geißel überzieht, sehr dünn sein und sich zurückziehen. In anderen Fällen ist sie sehr dick und oft selbst am Ende zu einer kleinen Kugel angeschwollen. Wird aus irgendwelchen Gründen die Pellicula weich, so kugelt sich das Plasma ab, gleitet von dem Zentralfaden der Geißel resp. dem Randfaden der undulierenden Membran ab und es entstehen die merkwürdigen Bilder mit „nackter Geißel“ (vgl. Fig. 332), welche schon zu mancherlei falschen Deutungen Anlaß [S. 387]gegeben haben. Solche Kugelformen treten bei allen möglichen Schädigungen auf, z. B. bei Parasiten bei Medikamentbehandlung oder wenn im Kampf der Wirtskörper die Oberhand gewinnt, auch bei Aenderung des Milieus in künstlichen Kulturen. Da sie relativ widerstandsfähig sind, so sind sie vielfach als Dauerstadien bezeichnet worden. Sie nähern sich im Charakter oft echten Cysten, sind vollkommen geißel- und bewegungslos, sehr klein (2–4 µ), zeigen aber deutlich Kern und Blepharoplast.
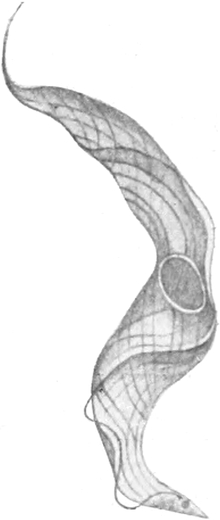
Bei den zahlreichen Parasiten, besonders den Blutparasiten aus dieser Familie, kommt es zur Ausbildung einer oft sehr stattlichen undulierenden Membran. Diese entsteht, indem der Blepharoplast im Körper weit nach hinten, oft hinter den Kern wandert; da von ihm aus der Zentralfaden sich am Rand des Körpers entlang zur Geißel fortsetzt und einen Teil des ihm anliegenden Körperbezirks zu einer Lamelle auszieht, welche die schlängelnden Bewegungen der Geißel auf den Hauptteil des Körpers überträgt, so entstehen Protozoen von sehr eigenartiger Gestalt und Bewegungsweise (vgl. Fig. 331).
[S. 388]
Das Plasma (Entoplasma) zeigt eine oft deutlich erkennbare alveoläre Anordnung, oft auch allerlei Granulationen. Letztere färben sich mit verschiedenen Färbungsmitteln verschieden stark. Manche Autoren legen auf den verschiedenen Reichtum an Granulationen großes Gewicht. Meine Erfahrungen zeigen, daß dieselben Individuen, welche z. B. mit Giemsa-Farbstoff gefärbt, ganz homogen erscheinen, voller Granulationen sind, wenn wir sie mit dem Farbstoff von May-Grünwald färben. Es sind daher diese Unterschiede nicht allzu sehr zu betonen, ehe nicht systematische Untersuchungen vorliegen. Jedenfalls kommen nach Swellengrebel im Innern mancher Trypanosomen (T. Brucei, gambiense, equinum) stabartige Verdichtungen vor, welche vom Blepharoplasten durch den Kern nach vorn sich erstrecken und besonders bei erwachsenen Exemplaren gut ausgebildet sind. An diesen „Axialfäden“ entlang sind Reihen von Volutinkörnern gelagert (vgl. S. 100). Nach neueren Untersuchungen von Minchin sind auch regelmäßig Granula vorhanden, welche große Aehnlichkeit mit dem Chromatin des Kerns zeigen und daher von ihm als Chromidien aufgefaßt werden. Ferner kommen Fettkugeln vor.
Der Kern ist bei den meisten Formen groß, oval oder rund, mit dichtem peripheren Chromatin und einem verschieden stark färbbaren Binnenkörper, in dessen Zentrum ein Centriol mehrfach beschrieben worden ist.
Der Blepharoplast ist rund, oval, oder stäbchenförmig, stark mit Kernfarbstoffen färbbar. Er ist manchmal auf den Präparaten nicht im direkten Zusammenhang mit dem basalen Ende des Randfadens (wie das auch in Fig. 335 zu sehen ist), an welchem ein Basalkorn sitzt, welches beim lebenden Tier mit dem Blepharoplast in engster Berührung steht[26]. Neben dem Blepharoplasten ist oft auf den Präparaten eine Vakuole sichtbar; sie wird von vielen Autoren für ein Kunstprodukt gehalten; ihr regelmäßiges Vorkommen an derselben Stelle weist aber auf einen Zusammenhang mit dem Bau der Trypanosomen hin.
Für die Kernnatur der Blepharoplasten spricht ihr Verhalten bei der Teilung. Bei manchen Formen bilden sie bisweilen eine deutliche mitotische Teilungsspindel.
Die Ernährung aller Trypanosomiden ist parasitisch; sie nehmen nur ungeformte Nahrung in flüssigem Zustande auf. Die Herpetomonas- und Leptomonasarten leben vorwiegend im Darm von Arthropoden, doch auch von Würmern, ferner in Pflanzensäften; die Trypanosomen nur im Blut von Wirbeltieren und im Darm der als Ueberträger wirkenden Arthropoden und Würmer. Im Blut sind die Trypanosomen vorwiegend Parasiten des Blutplasmas, in welchem sie frei herumschwimmen.
Die Angaben über das Eindringen von Trypanosomen in rote Blutkörperchen müssen sehr verschieden beurteilt werden. Höhnel hat angegeben, daß Tr. congolense in rote Blutkörperchen eindringt, ähnliches hat Carini für verschiedene Arten beschrieben. Nissle hat beobachtet, daß Trypanosomen durch rote Blutkörperchen direkt [S. 389]durchschlüpfen. Dies alles sind wohl nur gelegentliche Vorkommnisse. Dagegen ist das von Mesnil und Brimont beschriebene Endotrypanum Schaudinni offenbar ein regelmäßig intrakorpuskuläres Trypanosoma, ebenso scheinen nach den Angaben von Chagas bei Schizotrypanum Cruzi regelmäßig gewisse Stadien in den roten Blutkörperchen vorzukommen.
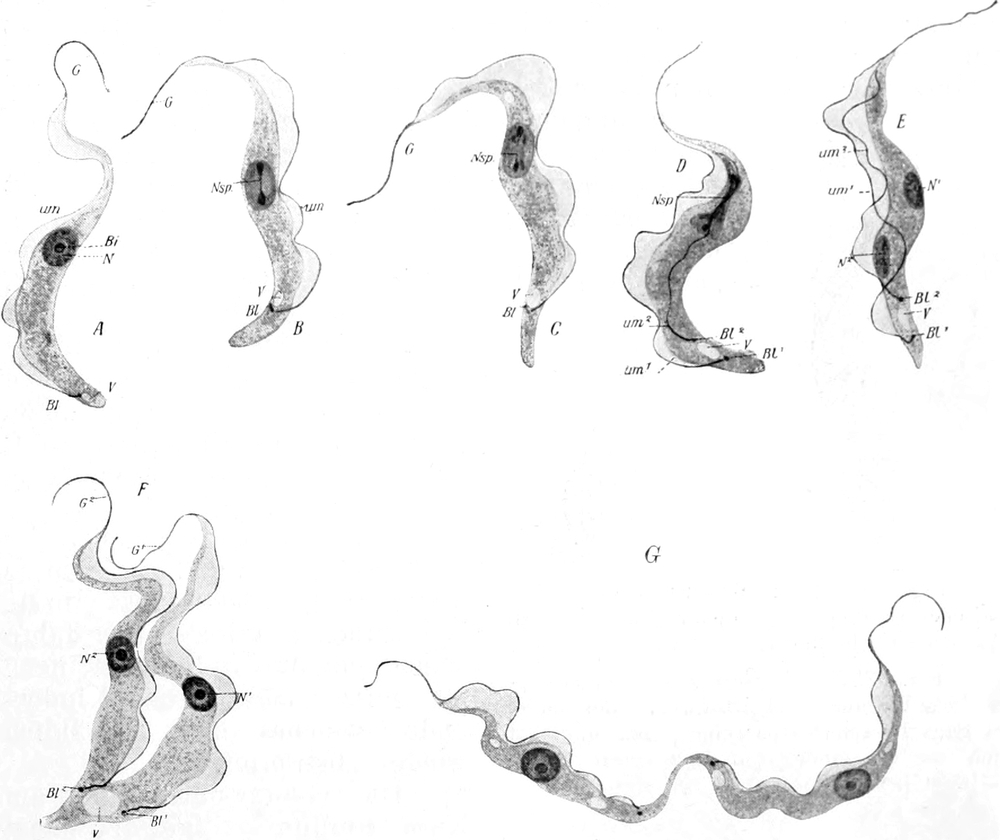
Die regelmäßige Vermehrungsform der Trypanosomen ist eine typische Längsteilung, welche infolge des Baues der Tiere gewisse Komplikationen erkennen läßt. Ehe die Körpermasse sich spaltet, ist meist eine Verdopplung von Kern, Blepharoplast und undulierender Membran nachzuweisen (Figg. 335 D u. 335 E). Dabei erfolgt in der Regel zuerst die Verdopplung des Blepharoplasten, indem derselbe im Muttertier sich in die Länge streckt, sich hantelförmig durchschnürt und in zwei Tochterblepharoplasten von ungefähr gleicher Größe zerfällt (Fig. 335 B u. C). Gleichzeitig pflegt der Kern in [S. 390]Spindelbildung einzutreten. Dann zeigt sich im Anschluß an die Verdopplung des Blepharoplasten eine Verdopplung der undulierenden Membran; die Herkunft der neuen, zweiten undulierenden Membran wird von den verschiedenen Autoren verschieden beurteilt. Wie auch für andere Mastigophoren wird von den einen Abspaltung von der alten undulierenden Membran in Form einer vom Blepharoplasten ausgehenden, nach vorn schreitenden Längsteilung angegeben, während andere annehmen, daß vom Blepharoplasten aus eine Neubildung der zweiten Membran und ihres Randfadens erfolge. Mir scheint die erstere Annahme richtiger, doch ist die theoretische Möglichkeit der zweiten Annahme nicht zu bestreiten. Vielleicht kommt beides vor, denn bei den abgekugelten Formen findet sicher Neubildung der Geißel vom Blepharoplast aus statt.
Jedenfalls schreitet die Ausbildung der neuen undulierenden Membran von hinten nach vorn fort und schließlich, nach vollständiger Ausbildung, tritt ihre Fortsetzung in Gestalt der zweiten Geißel nach außen vor. Erst nach Abschluß dieser Vorgänge spaltet sich der Körper, vom Geißelende beginnend, wobei wohl die Bewegungen der Geißeln mitwirken, nach hinten zu durch, und schließlich bleiben die beiden Tochtertrypanosomen noch mit den Hinterenden (oft noch längere Zeit) vereinigt (Fig. 335 F und G).
Mit der Zeit ziehen sich die Hinterenden aus und die schmale Verbindungsbrücke reißt durch. Bei manchen Arten haben daher frisch geteilte Individuen noch ein spitz ausgezogenes Hinterende, welches sich allmählich wieder abstumpft.
Die Teilungsphänomene am Kern werden infolge der meist angewandten mangelhaften Konservierungsmethoden sehr verschieden beschrieben. Doch scheint stets eine hantelförmige Durchschnürung des Binnenkörpers (Fig. 335 B, C und D) zu erfolgen, an welche eine Anordnung der peripheren chromatischen Masse des Kerns in zwei an den Polen gelagerte Kappen sich anschließt, dann schnürt sich der Kern selbst hantelförmig durch. Im ruhenden und sich teilenden Kern soll Anordnung des Chromatins in mehrere (8) Klumpen, welche auch als Chromosomen bezeichnet werden, zu erkennen sein. Das wird von Moore und Breinl bestritten, welche gut konserviertes Material untersuchten (vgl. Fig. 335 B, jedoch auch Fig. 335 C).
Sowohl bei normalen als pathologischen Prozessen kann die Aufeinanderfolge der Vorgänge bei der Teilung Abweichungen zeigen. Es kann der Kern mehrere Teilungen durchmachen, ehe der Blepharoplast nachfolgt, und umgekehrt; auch kann die Bildung von undulierenden Membranen und Geißeln erst viel später erfolgen.
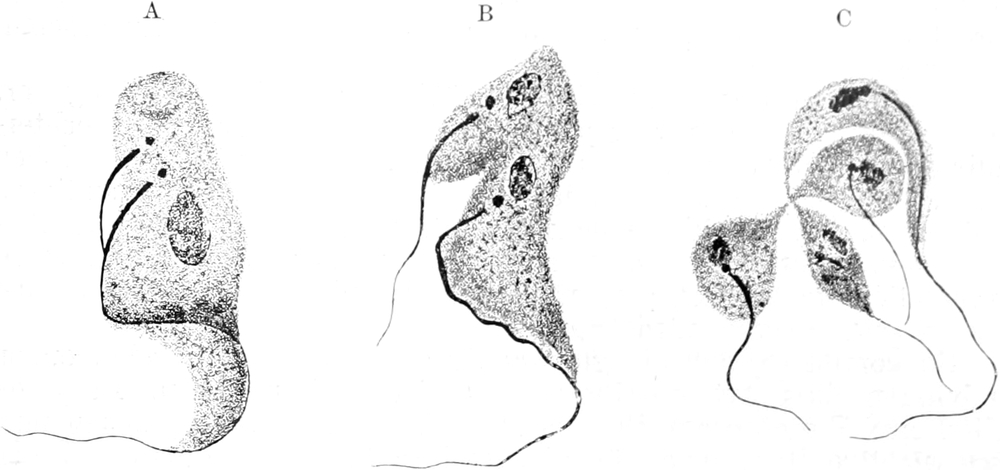
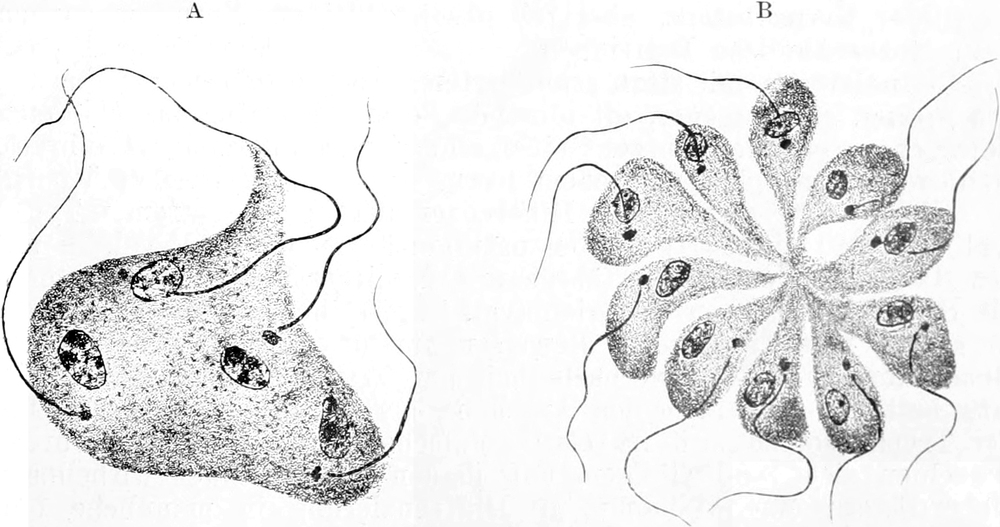
Solche Unregelmäßigkeiten treten z. B. bei den multiplen Teilungen auf, welche bei manchen Formen, z. B. Trypanosoma lewisi, regelmäßig [S. 391]vorkommen. Es teilen sich dann Blepharoplasten und Kerne (oft in verschiedenem Rhythmus) in zahlreiche Deszendenten, während der Körper zunächst einheitlich bleibt. Letzterer wächst dabei oft ziemlich stark heran: da die Blepharoplasten an der Peripherie gelagert sind und die Geißeln ganz oder fast ganz aus dem Körper hervorragen, fehlen letzterem formbestimmende Elemente; er nimmt daher mehr oder minder amöboïde Formen an (Fig. 339 A). Erst nach einer Anzahl Teilungen ordnen sich die resultierenden Individuen (8, 16, 32 oder unregelmäßige Zahlen) zu Rosetten an, entwickeln ihre typische Form und trennen sich voneinander. Auch bei vollkommen abgekugelten Formen kann Vielfachteilung der Kerne und Blepharoplasten der Trennung der neu entstehenden Individuen lange vorangehen. McNeal hat sukzessive Teilungen in Rosetten vereinigter Individuen aus Kulturen [S. 392]in künstlichen Nährmedien im Leben verfolgt und festgestellt, daß die Individuen vor der Teilung sich verkürzen und verdicken, um nach der Teilung wieder gestreckte Form anzunehmen.
In Kulturen erfolgen oft zahlreiche Teilungen, ohne daß die Tochtertiere vor der nächsten Vermehrung zur Größe des Muttertiers wieder heranwachsen. So kommt es, daß außerordentlich kleine Sprößlinge resultieren, welche in der Form von den erwachsenen Trypanosomen abweichen können.
Auch insofern kommen Unregelmäßigkeiten bei der Teilung vor, als sie sich oft einer Knospung nähert, indem das eine Tochterindividuum kleiner ist als das andere (Fig. 338 A und B). In solchen Fällen und in allen Fällen mit rascher multipler Teilung resultieren Individuen, welche sich in ihrem Habitus, Lage von Kern und Blepharoplast, Ausbildung der undulierenden Membran, Färbbarkeit, Granulation etc. von den ausgewachsenen Individuen unterscheiden und sich zu solchen erst entwickeln.
So kommt es, daß die gleichzeitig zur Beobachtung gelangenden Individuen einer Art mancherlei Verschiedenheiten zeigen. Dazu gesellen sich Verschiedenheiten im Habitus der Individuen, denen man eine wichtige Bedeutung für die geschlechtlichen Vorgänge bei den Trypanosomen zuschreibt.
Bei den blutbewohnenden Trypanosomen lassen sich schon im Blut des Wirbeltierwirts, vor allem aber in den bei der Uebertragung wirksamen Blutsaugern, die verschiedenen Individuen in der Hauptsache zu drei Typen zusammengruppieren.
1) Individuen mit mittleren Eigenschaften.
(Indifferenter Typus.)
2) Individuen mit reinem, reservestoffarmem Plasma, von langer
schlanker Form, mit extrem ausgebildeten Bewegungsorganellen,
großem Blepharoplasten, vielfach auch im Verhältnis zum Plasma
reichlicher Kernsubstanz, aber mit absolut kleinem Kern, im ganzen
spermatozoenähnliche Individuen.
(Männlicher Typus.)
3) Individuen mit stark granuliertem, reservestoffreichem Plasma,
von breiter, gedrungener, oft plumper Form mit gering ausgebildeten
Bewegungsorganellen (kurzer Geißel, schmaler undulierender Membran),
kleinem Blepharoplasten, großem Kern.
(Weiblicher Typus.)
Die oft sehr auffallenden Differenzen der beiden extremen Typen (vgl. Fig. 340 B und D) mußten naturgemäß zu einem Vergleich mit den Hämosporidiengameten führen und da dieser Vergleich auch durch die Schaudinnschen Theorien (vgl. S. 257) herausgefordert wurde, so suchte man eifrig nach Beweisen für das Vorhandensein eines Generations- und Wirtswechsels bei den Trypanosomen. Eine Zeitlang hatte es denn auch den Anschein, als ob die Lebensgeschichte der Trypanosomen sich in relativ einfacher Weise aufklären würde: es schien sich zu bestätigen, daß in den blutsaugenden wirbellosen Ueberträgern eine vollkommene Differenzierung in männliche und weibliche Gameten, deren Reifung und Kopulation und im Anschluß daran eine metagame Vermehrung erfolge. Das würde eine vollkommene Analogie zu den Hämosporidien ergeben haben, in deren nächste Nähe denn auch Schaudinn, Prowazek, Hartmann und andere die Trypanosomen stellten.
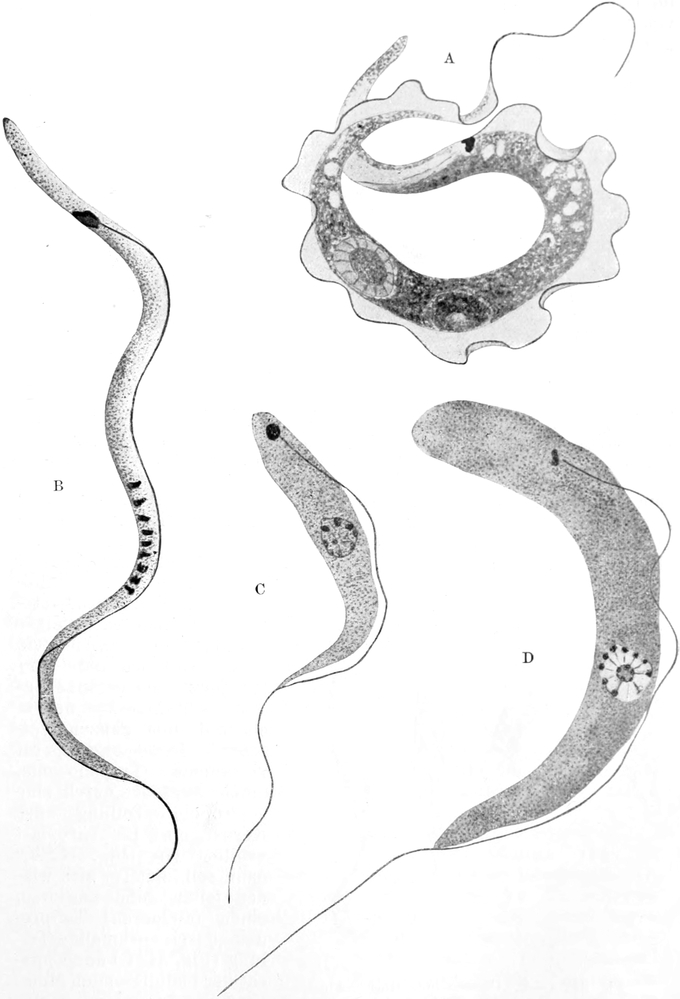
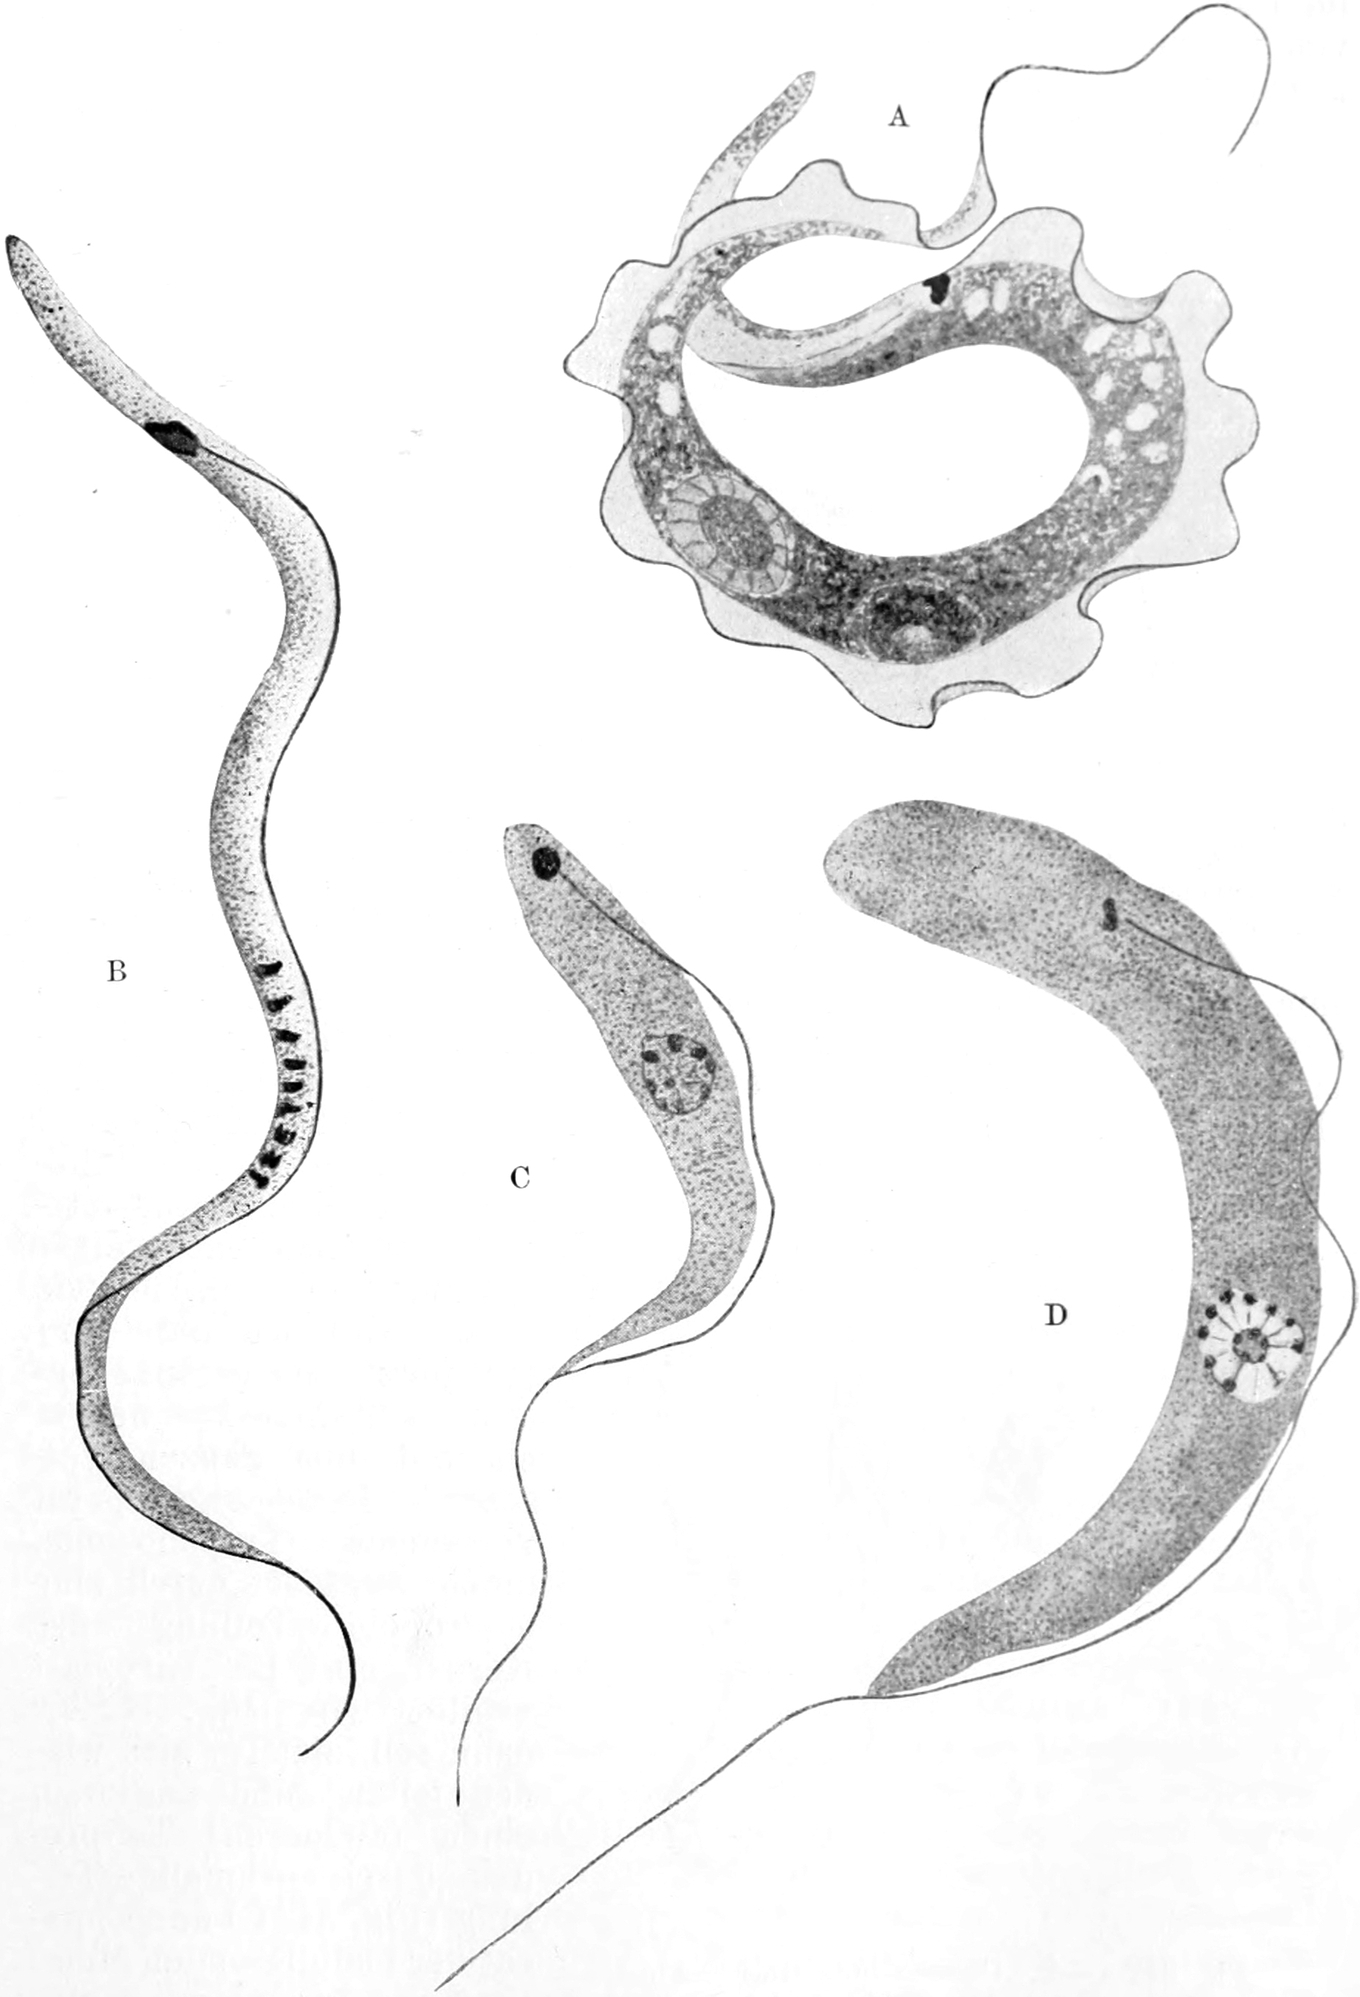
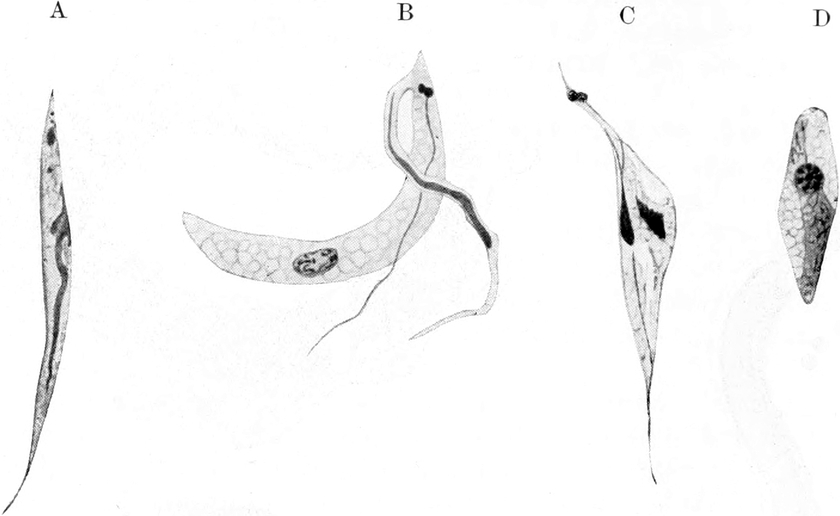
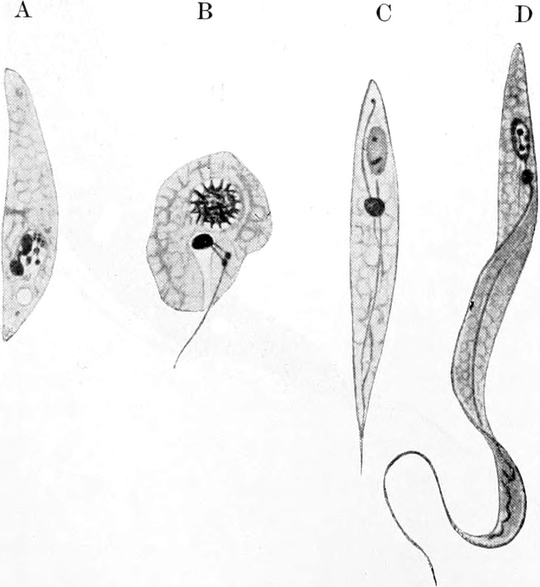
Nachdem Schaudinn den unten geschilderten Zeugungskreis von Haemoproteus noctuae beschrieben hatte, fand Prowazek die hier zu schildernden Stadien von Trypanosoma Lewisi Kent. Er fand [S. 394]im Darm der Rattenlaus Differenzierung der verschiedenen Typen von Individuen, dabei die als Männchen gedeuteten Gameten ausgezeichnet durch chromidiale Auflösung des Kerns und Anordnung ihrer Chromatinsubstanz in einem langen Band. Ganz selten gelang es ihm nun, Stadien aufzufinden, wie sie in Fig. 341 abgebildet sind; er deutet sie als beweisend für das Vorkommen einer anisogamen Kopulation, deren Resultat eine bewegliche Zygote (ein Ookinet) wäre (Fig. 341 D). Dieselbe ist einkernig und hat weder Blepharoplast noch Geißel und undulierende Membran. Aus letzterem entsteht nach seiner Annahme — ähnlich wie dies Schaudinn für Haemoproteus noctuae beschrieben hat — von neuem ein mit dem ganzen typischen Bewegungsapparat versehenes Trypanosoma, indem zunächst durch eine heteropole Teilung des Kerns ein Blepharoplast gebildet wird (Fig. 342 A); dann soll letzterer sich wieder teilen, und aus dem einen (kleineren) Teilprodukt durch nochmalige Teilung (Fig. 342 C) der Apparat der undulierenden Membran und der Myoneme sich bilden (Fig. 342 B; vgl. hierzu auch die schematischen Figuren 169 A–E, S. 161 u. 177 A–G, S. 167).
[S. 395]
Hierauf soll lebhafte Teilung erfolgen; manche Exemplare wandeln sich zu kleinen festsitzenden Individuen um, welche an oder zwischen den Epithelzellen im Endteil des Magendarms oder in der Region der Malpighischen Gefäße in Gruppen gefunden werden. Auch kommen Formen vor, welche eine Schutzhülle ausgebildet haben. Alle diese letzteren Stadien erinnern sehr an die Herpetomonas resp. Leptomonas.
Prowazek, welcher Trypanosoma auch im Blut der Läuse nachgewiesen hat, nimmt an, daß Stadien derselben die Darmwand durchsetzen, mit dem Blutstrom in die Nähe des Mundes, speziell des Blut-Pumporgans, gelangen und beim Blutsaugen auf einen neuen Wirt übertragen werden.
Wenn wir auch zugeben, daß der hier dargelegte Entwicklungszyklus auf Grund der Analogie mit den Hämosporidien nicht unwahrscheinlich ist, so müssen wir dennoch nachdrücklich hervorheben, daß er durchaus hypothetisch ist. Es ist auffallend, daß die entscheidenden Stadien so selten gefunden wurden, während sie bei Hämosporidien so leicht zu erhalten sind. Auch sehen die abgebildeten Stadien durchaus nicht sehr normal aus. Dasselbe gilt für die seither vorgenommenen Nachuntersuchungen.
Bei keinem anderen Trypanosoma ist bisher Kopulation und metagame Entwicklung beschrieben worden. Weiter unten ist bei Trypanosoma Brucei und gambiense angegeben, was bisher bei diesen Formen als geschlechtliche Stadien und Vorgänge gedeutet wurde. In der Hauptsache besteht das Resultat der bisherigen Forschungen über diesen Punkt darin, daß die Differenz verschiedener Individuentypen im Wirbeltierblut und deren erhöhte Differenzierung im Darmlumen des Blutsaugers festgestellt wurde (vgl. auch oben die Fig. 340, S. 393). Ferner wurde gezeigt, daß die Ueberträger von Trypanosomen, wenn sie nicht sehr bald nach erfolgtem Saugen an infizierten Tieren Gelegenheit haben, ein Tier durch mechanische Uebertragung der Trypanosomen zu infizieren, zunächst eine Zeitlang nicht mehr die betreffende Krankheit übertragen können. Nach einiger Zeit werden sie aber wieder infektiös. Das ist bei der Rattenlaus, dem Ueberträger von Tr. Lewisi nach 6–9 Tagen, bei der Glossina palpalis, dem Ueberträger des Tr. gambiense, nach ca. 10 Tagen der Fall; andere Angaben schwanken zwischen 7 und 34 Tagen (Kleine, Bruce und Bouffard). Man schließt daraus, daß die Trypanosomen doch eine bestimmte Entwicklung im Zwischenwirt durchmachen müssen.
Dagegen wurde nachgewiesen, daß die Trypanosomen durch sehr verschiedene Blutsauger übertragen werden können. Trypanosoma lewisi wird durch Rattenflöhe und Rattenläuse übertragen, Tr. Brucei und Tr. gambiense können außer durch die Tsetsefliegen (Glossina-Arten) auch durch eine ganze Reihe anderer Stechfliegen (Stegomyia, Stomoxys, Tabanus, Mansonia etc.) experimentell übertragen werden (s. unten). Ja sogar bei der Dourine (Tr. equiperdum), welche normalerweise durch den Coïtus übertragen wird, gelingt Infektion durch Vermittlung der Flöhe, wenn nicht-infizierte Ratten in Nachbarkäfigen neben infizierten gehalten werden, oder Pferde in Ställen, in denen Stomoxys vorkommt. Dies könnte dafür sprechen, daß die Trypanosomen nicht an Wirts- und Generationswechsel gebunden sind, wie die Hämosporidien. Es könnte aber auch nur besagen, [S. 396]daß sie von verschiedenen Blutsaugern rein mechanisch übertragen werden, indem sie beim Saugen mit einem Teil des Magen- oder Rüsselinhalts direkt in die Wunde gespieen werden, während sie nur im richtigen Zwischenwirt die geschlechtliche Entwicklung durchmachen. Die Tatsachen sprechen dafür, daß im richtigen Zwischenwirt in der freien Natur gewisse Vorgänge ablaufen müssen, ob es sich aber dabei um eine Entwicklung besonderer Art, etwa eine geschlechtliche Generation handelt, wissen wir nicht. Es sind jedenfalls bisher keinerlei Stadien beschrieben worden, welche dies beweisen.
Bisher festgestellte Uebertragungsmethoden durch Zwischenwirte, in denen die Trypanosomen eine gewisse Entwicklung durchmachen.
|
Trypanosomen-
species |
Uebertragungs-
modus resp. Ueberträger |
Dauer der-
nicht-in- fektiösen Periode im Ueberträger |
Ort der-
Entwick- lung |
Dauer der-
Infek- tiosität des Ueber- trägers |
Beobachter
|
|
|---|---|---|---|---|---|---|
|
T. Brucei (?)
|
Glossina palpalis
|
20 Tage
|
—
|
mindest.
83 Tage |
Kleine
|
|
|
T. gambiense
|
„ „
|
ca. 34 Tage
im Durch- schnitt. 16, 19 u. 22 Tage |
Darm
|
mindest.
75 Tage |
Bruce, Hamer-
ton, Bateman u. Mackie |
|
|
T. dimorphon (?)
|
„ „
|
dgl.
|
„
|
dgl.
|
dgl.
|
|
|
T. gambiense
|
„ „
|
18 Tage
|
„
|
—
|
Kleine
|
|
|
T. Cazalboui
= vivax |
„ „
|
{
|
7 Tage
|
Rüssel
|
mindest.
2½ Mon. |
Bouffard
|
|
11–35 Tage
|
„
|
Bruce und Mit-
arbeiter |
||||
|
T. Lewisi
|
Ceratophyllus
fasciatus |
6 Tage
|
beginnt im
Rectum |
mindest.
6 Woch. |
Minchin und
Thomson |
|
|
T. Lewisi
|
Haematopinus
spinulosus |
6 Tage
|
Darm
|
—
|
Prowazek,
Baldrey |
|
|
T. Cazalboui
|
Glossina palpa-
lis, tachinoides u. longipalpis |
6 Tage
|
Rüssel
|
—
|
Bouet und
Roubaud |
|
Auch direkte Infektion durch den Coïtus (Tr. equiperdum), durch Uebertragung von trypanosomenhaltigem Augenschleim in den Conjunctivsack oder in die unverletzte Vagina eines gesunden Tieres (Römer), vor allem auch per os gelingt: bei Tr. Brucei, Evansi und den meisten pathogenen Arten hat sich Infektion durch Verfüttern von Fleisch kranker Tiere ausführen lassen (alle Arten außer Tr. equinum nach Yakimoff und Schiller, equinum nach Elmassian). Schließlich ist auch Eindringen durch die unverletzte Haut nachgewiesen worden (Manteufel).
Diese Vielseitigkeit der Infektionsmöglichkeiten ist durch die auffallende Lebenszähigkeit der Trypanosomen bedingt. Im mikroskopischen Präparat sind sie tagelang lebendig und beweglich zu erhalten, wenn man durch Wachs und Cedernholzöl den Luftzutritt sorgfältig abschließt. (Im Blutplasma leben die Trypanosomen in einem an Sauerstoff sehr armen Medium; dort und im Darm der Blutsauger führen sie offenbar ein anoxybiotisches Dasein.)
[S. 397]
In der Leiche bleiben sie ebenfalls relativ lange am Leben, so nach Prowazek Tr. Lewisi im Rattenkadaver 4 Tage lang. Am längsten erhalten sie sich nach Experimenten von Yakimoff und Kohl, welche an pathogenen Arten ausgeführt wurden, wenn die Kadaver in der Kälte gehalten werden (T. Evansi bis zu 58 Stunden). Die große Widerstandsfähigkeit gegen Temperaturschwankungen wurde S. 320 erwähnt.
Nicht nur in sehr verschiedenen Organismen, sondern auch in sehr verschiedenen Organen derselben vermögen die Trypanosomen zu gedeihen. Und auch außerhalb des tierischen Körpers können sie in künstlichen Nährmedien gezüchtet werden, deren Zusammensetzung S. 333 angegeben ist.
Der großen Anpassungsfähigkeit an verschiedene Nährmedien entspricht bei den Trypanosomen auch eine große Fähigkeit zur Aenderung der Form. Die Durchschnittsgröße der Individuen, ferner die Lage von Kern und Blepharoplast, die Ausdehnung der undulierenden Membran, die Dichtigkeit des Plasmas etc. schwanken erheblich beim Uebertragen von einem Wirt auf den andern. So ändert T. Brucei, aus Ratten auf Pferde übertragen, seine Form. Noch erheblichere Aenderungen wurden durch Wendelstadt und Fellmer nach Kaltblüterpassagen beobachtet. Im Darm des Blutsaugers erfolgt bei T. Brucei, gambiense, Lewisi eine erhöhte Differenzierung der Formen, Wanderung des Blepharoplasten, Aenderung der undulierenden Membran, Auftreten von Herpetomonas-ähnlichen Formen. Am stärksten sind die morphologischen Aenderungen, welche in künstlichen Kulturen auftreten. Trypanosoma Lewisi verliert die undulierende Membran fast oder ganz; T. rotatorium ändert seine Form so sehr, daß man es nicht wiedererkennen würde (Fig. 361 und 362. S. 422). Wie Novy zuerst hervorgehoben hat, entsprechen die Formveränderungen, welche blutbewohnende Trypanosomen im Darm von Blutsaugern erfahren, durchaus denjenigen, welche bei Uebertragung in ein künstliches Nährmedium erfolgen.
Neuerdings ist es Werbitzki sogar gelungen, durch Injektion gewisser Stoffe in das Blut der Wirtstiere Trypanosomen zu züchten, denen der Blepharoplast fehlte, und welche diese Eigenschaft durch hunderte von Passagen auf ihre Nachkommen vererbten. So ist also nicht einmal der kleine Blepharoplast, der z. B. T. equinum auszeichnet, ein konstantes, zuverlässiges Artmerkmal.
Diese Verhältnisse bringen es mit sich, daß man die Arten von Trypanosomen oft sehr schwer unterscheiden kann. Formen, wie T. rotatorium aus dem Froschblut (Fig. 358) oder T. Theileri aus dem Rind (Fig. 331), auch T. Lewisi (Fig. 343 A) sind ja relativ leicht durch Maße, Form des Hinterendes, normales Vorkommen zu unterscheiden. Die pathogenen Arten aus den Säugetieren sind aber meist morphologisch nicht scharf zu sondern.
Fig. 343 zeigt die wichtigsten Formen nebeneinander: man sieht aus der Zusammenstellung, wie ähnlich die „Arten“ einander sind und die Fig. B und C, welche Vertreter zweier Stämme von T. Evansi (aus Indien und Mauritius) zeigen, lassen erkennen, wie inkonstant selbst die geringen Unterschiede sind. Selbst die von T. dimorphon abgebildete geißellose Form kann bei anderen Arten bisweilen auftreten. Von den abgebildeten Formen ist nur T. Lewisi einigermaßen [S. 398]konstant durch die Lage des Kerns und das spitze Hinterende unterschieden.
Ich bin daher durchaus der Ansicht von Rob. Koch, daß wir die pathogenen Formen nicht morphologisch voneinander trennen können; ganz mit Recht hat Koch von den Säugetiertrypanosomen T. Lewisi und Theileri als unterscheidbare Arten der Gruppe von T. Brucei, Evansi, equinum, equiperdum, gambiense, dimorphon etc. gegenübergestellt.
Es hat sich herausgestellt, daß letztere Formen auch durch ihre spezifische Virulenz für einzelne Wirte sich nicht konstant trennen lassen. Trypanosoma Brucei z. B. kann durch fortgesetztes Züchten in einer Tierart, welche für Nagana wenig empfänglich ist, zu einer sehr gesteigerten Virulenz herangezüchtet werden. Auch bei T. Lewisi hat sich eine ungeahnte Erhöhbarkeit der Wirkung nachweisen lassen.
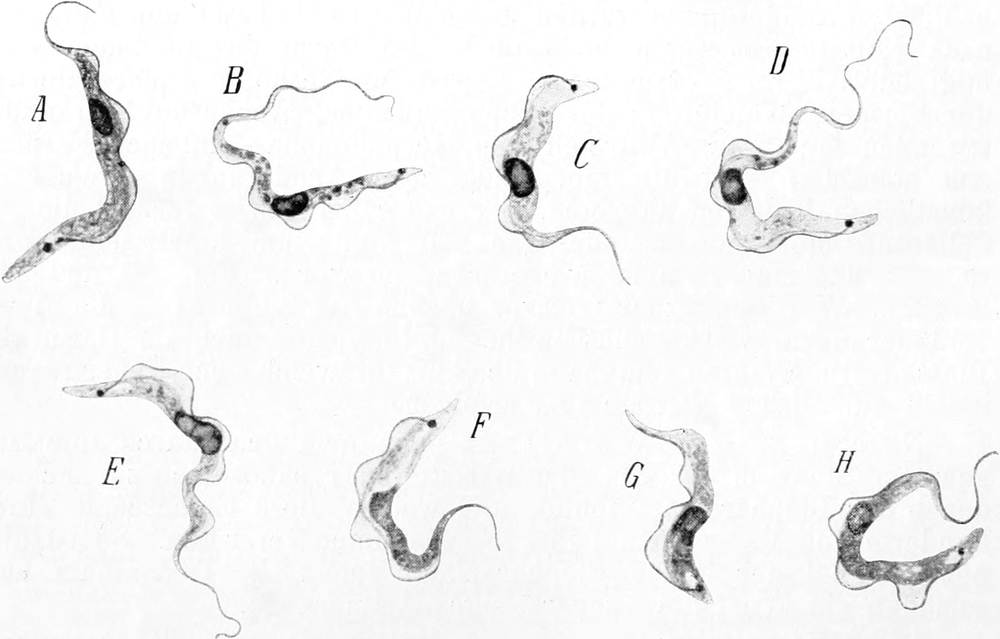
Ebensowenig lassen sich die Immunitätsreaktionen zur Unterscheidung dieser Formen heranziehen; Laveran und Mesnil und andere glaubten anfänglich dieselben verwenden zu können. Wenn ein Pferd oder Hund z. B. gegen eine Trypanosomen„art“ immunisiert ist, so kann es durch dieselbe Art in der Regel nicht mehr infiziert werden, wohl aber noch durch alle anderen pathogenen Arten. Das schien so lange eine gute Unterscheidungsmöglichkeit darzubieten, bis man nachwies, daß die immunen Tiere — wenn man denselben Trypanosomenstamm, gegen den sie immunisiert wurden, zu einer erhöhten Virulenz heranzüchtet — durch ihn dennoch infiziert und getötet werden.
[S. 399]
Koch glaubt nun allerdings, daß sich bei den afrikanischen pathogenen Trypanosomen, speziell bei T. Brucei und gambiense, spezifische Unterschiede der Gameten in den Tsetsefliegen nachweisen lassen, was mir nicht ganz sicher scheint; es ist dies seither auch von Kleine und Taute widerlegt worden.
Trotz der großen hier dargelegten Schwierigkeiten halte ich an meinem 1901 aufgestellten Grundsatz fest, daß man vorläufig, um Verwirrungen zu vermeiden, die einzelnen Trypanosomenformen nach ihrem Wirt, ihrem Vorkommen und ihrer typischen Form im Blut des Wirts unterscheiden und mit besonderen Namen benennen muß.
Es ist aber wohl unzweifelhaft richtig, daß die säugetierpathogenen Formen, wie Koch annimmt, nicht fest fixierte Arten sind. Ob es, wie er meint, „werdende Arten“ sind, darüber können wir uns jetzt noch nicht mit Sicherheit aussprechen. Jedenfalls sehen wir die Trypanosomen unter unseren Händen Eigenschaften annehmen und auf ihre Nachkommen vererben, in einer Weise, welche im höchsten Maß unser Interesse in Anspruch nehmen muß.
In der neueren Zeit sind viele Arten beschrieben worden, deren Konstanz und Validität nicht nachgewiesen ist. Viele solche Formen sind im nachfolgenden nur kurz erwähnt; überhaupt konnte keine vollständige Zusammenstellung für dies enorm angewachsene Gebiet geboten werden.
Die Trypanosomen sind kosmopolitisch verbreitet, doch nimmt ihre Zahl und Bedeutung nach den Polen zu ab. Ihre stärkste Verbreitung besitzen sie in den Tropen, dort spielen sie auch die größte Rolle als Krankheitserreger bei wilden Tieren, Haustieren und dem Menschen. Ihre geographische Verbreitung ist daher vielfach bedingt durch Wanderungen, Handelsstraßen, Kriegszüge, Tiertransporte.
Da unter den parasitischen Flagellaten die Trypanosomiden bei weitem die größte Bedeutung haben, so sei an dieser Stelle der allgemeine Abschnitt über dieselben eingeschaltet, der fast ausschließlich von Trypanosomiden handelt, jedoch vorgreifend auch einiges über Parasitismus von Formen aus anderen Gruppen enthält.
Wir rechnen zu den Trypanosomiden folgende Gattungen:
- Herpetomonas Kent s. str.,
- Leptomonas Kent em. Chatton und Alilaire,
- Trypanosoma Gruby,
- Schizotrypanum Chagas,
- Endotrypanum Mesnil und Brimont,
- Leishmania R. Ross.
Der Parasitismus und die pathogene Bedeutung der Flagellaten.
Die große Mehrzahl der Flagellaten ist freilebend, viele von ihnen sind sogar in der Ernährung von anderen Organismen vollkommen unabhängig. Ganze Ordnungen, wie die Phytomonadinen und die Chrysomonadinen, sind holophytisch; nur wenige ihrer Angehörigen ernähren sich tierisch durch Aufnahme geformter Nahrung oder saprozoisch durch Aufnahme gelöster organischer Substanzen. Ebenso wiegt die pflanzliche Ernährungsweise unter den Euglenoidinen vor. Diese drei Gruppen von Flagellaten enthalten denn auch fast gar keine Parasiten. Allerdings finden wir in diesen Gruppen Symbiose als besondere Form des Parasitismus entwickelt. Viele der [S. 400]holophytischen Formen gedeihen am besten, wenn außer den Bedingungen zu pflanzlicher Ernährung ihnen auch noch gelöste organische Substanzen angeboten werden. Solche finden sie in geeigneter Form bei symbiotischer Lebensweise (vgl. Zoochlorellen und Zooxanthellen). Es ist sehr wohl möglich, daß intracelluläre Symbiose von chromophyllhaltigen Organismen den Ausgangspunkt für die Entstehung mancher Zellparasiten geboten hat. Diese Symbiose kommt übrigens nur in Organismen mit intracellulärer Verdauung (Protozoen und niedere Metazoen) vor.
Die wichtigen unter den bisher bekannten parasitischen Flagellaten finden sich aber alle in den Ordnungen der Protomonadinen und der Polymastiginen. In diesen Ordnungen kennen wir nur holozoische oder saprozoische Formen. Diese beiden Ernährungsformen haben den Ausgangspunkt für die Entstehung parasitischer Lebensweise geboten.
Unter den parasitischen Flagellaten finden wir
1) harmlose Bewohner von Körperhöhlen,
2) Bewohner von normalen Schleimhautoberflächen,
3) Bewohner entzündeter und zerfallender Schleimhäute,
4) Blutparasiten,
5) Zellparasiten.
Weit verbreitet sind die Flagellaten als harmlose Bewohner von Körperhöhlen, vor allem des Darms. Und zwar kommen sie da sowohl als Holozoen wie auch als Saprozoen vor. Von den Trichomonasarten z. B. wissen wir, daß sie sich holozoisch durch Fressen von Mikrokokken ernähren; die Herpetomonaden und Leptomonaden dagegen nehmen nur flüssige Nahrung saprozoisch auf.
Solche Formen können im Darm ihrer Wirte oft in erheblichen Mengen vorkommen, ohne eine erkennbare Schädigung derselben zu veranlassen. So kommen bei Reptilien in der Kloake, bei Säugetieren im Dünndarm mit großer Regelmäßigkeit bei fast allen Individuen, oft in großen Massen solche kleinen Flagellaten vor (vgl. unten Trichomonas, Hexamitus etc.). Sie leben meist in dem Kotbrei, welcher die betreffenden Organe erfüllt, indem sie sich in demselben frei bewegen. Manche Formen zeigen immerhin eine Tendenz, sich an den Schleimhautoberflächen aufzuhalten und Buchten, Falten, Krypten etc. der Schleimhaut zu bevorzugen. Hier sind sie von der peristaltischen Strömung unbelästigt, und an der Schleimhaut finden sie eventuell auch in anderen Organen als dem Darm, in den normalen Exsudaten oder in Mikroorganismen, welche in diesen wuchern, die nötige Nahrung. So können solche Flagellaten wie Trichomonas auch in der Mundhöhle und in der Vagina existieren. Andere Formen, wie z. B. Lamblia, saugen sich direkt an die Darmwand fest.
Wenn nun an ihrem normalen Aufenthaltsort oder in dessen Nachbarschaft pathologische Prozesse sich entwickeln, so können dadurch die Existenzbedingungen der Parasiten sich so sehr verbessern, daß eine sehr bedeutende Vermehrung derselben stattfindet. Sie überschwemmen das von ihnen bewohnte Organ, und es scheint, daß in manchen Fällen dann besondere Krankheitserscheinungen von ihnen verursacht werden. Das muß besonders der Fall sein bei solchen Formen, welche, wie Lamblia, sich an die Darmepithelzellen ansaugen; sie müssen bei reichlicher Vermehrung einen starken Reiz ausüben. So kommt es denn, daß man in manchen Fällen bei Lamblieninfektion [S. 401]von Flagellatendiarrhöe oder Flagellatendysenterie sprechen kann. Mir scheint es nicht unwahrscheinlich, daß auch andere Formen gelegentlich ähnliche Darmerkrankungen verursachen können.
Pathologische Prozesse in der Nähe des von den Parasiten bewohnten Organs führen oft zu deren Verbreitung über ihren normalen Wohnort hinaus. So ist es eine bekannte Tatsache, daß Lamblia und Trichomonas beim Menschen bei Carcinomen in den Magen hinein vordringen, auch eventuell bei pathologischen Vorgängen in der Lunge auftreten. Vorbedingung für ihre Vermehrung an solchen Orten, wie auch für das Wuchern von Trichomonas vaginalis in der Vagina und Harnröhre ist alkalische Reaktion der vorhandenen Flüssigkeit.
Bei all den bisher besprochenen Formen erfolgt die normale Uebertragung von einem Wirt auf den anderen durch Vermittlung von Cysten. Bei den Darmflagellaten ist in vielen Fällen das Vorkommen von Cysten nachgewiesen, in einigen auch durch das Experiment gezeigt, daß diese Cysten tatsächlich der Uebertragung dienen (vgl. Trichomonas). Es ist wahrscheinlich, daß die Cysten Austrocknung vertragen und durch die Luft vom Wind mit dem Staub verbreitet werden. Dann können sie mit der Nahrung, dem Wasser oder direkt durch den Mund in den Darm geraten, wo die Cysten sich unter Einfluß der Verdauungssäfte öffnen.
In einigen Fällen. z. B. bei Mäusen, Ratten, Insekten etc., kommt noch ein weiterer Modus der Uebertragung in Betracht. Unter dem Einfluß der allmählichen Eintrocknung bilden die Darmflagellaten wie auch viele andere Protozoen temporäre Cysten, welche einer vollkommenen Austrocknung nicht widerstehen können. Wie Wenyon nachgewiesen hat, können sie aber bei Tieren, welche feuchten Kot fressen, zur Infektion führen. Dieser Vorgang führt auch vielfach zur Infektion, ohne daß die Parasiten sich encystieren; denn der Kot mancher Tiere enthält freie Parasiten, welche in ihm eine Zeitlang leben; so ist Trypanosoma Grayi im Kot von Tsetsefliegen nachgewiesen worden.
Trichomonas vaginalis kann auch gelegentlich bei der Begattung aus der Vagina des Weibes auf die Harnröhre des Mannes übergehen; der Fall müßte viel öfter vorkommen, wenn nicht krankhafte Prozesse von irgendwelcher anderen Ursache die Harnröhre des Mannes für eine solche Infektion vorbereiten müßten.
Bisher hatten wir vorwiegend die Parasiten der Wirbeltiere und des Menschen ins Auge gefaßt. Darmparasiten kommen aber auch bei Wirbellosen zahlreich vor. Im speziellen Teil werden von solchen Parasiten die Herpetomonaden und Leptomonaden (S. 388) ausführlicher behandelt. Auch die Trichonymphiden sind in diesem Zusammenhang zu erwähnen (s. unten Anhang I). Im allgemeinen scheinen diese Parasiten ihren Wirten nicht erheblichen Schaden zuzufügen. Doch kann ihre Vermehrung mitunter so stark sein, daß die Tiere daran zugrunde gehen. Welche Schädigungen dies bedingen, ist nicht genauer untersucht worden.
Die wichtigsten pathogenen Organismen unter den Flagellaten sind aber die Blutparasiten, die Trypanosomen. Sie kommen als typische Trypanosomen fast nur bei Wirbeltieren vor, und zwar bewohnen sie bei diesen außer der die Hohlräume des Blutgefäßsystems erfüllenden Blutflüssigkeit auch die in anderen Körperhöhlen vorkommenden normalen oder pathologischen Flüssigkeitsansammlungen. [S. 402]Nicht in allen Fällen verursachen die Trypanosomen schwere Krankheiten, so das Tr. Lewisi der Ratten. Bei den niederen Wirbeltieren scheinen sie keine schweren Erkrankungen herbeizuführen; immerhin führt man die Anämie der Fische auf die ähnlich wie die Trypanosomen parasitierenden Trypanoplasmen zurück. Und auch bei den anderen Wirten, besonders den Vögeln, ist eine pathogene Wirkung zweifellos vorhanden. Doch ist die krankheiterregende Wirkung naturgemäß vor allem beim Menschen und den größeren Säugetieren studiert worden. Nach Art der Septikämien ist auf der Höhe der Infektion das Blut der erkrankten Tiere von zahllosen Trypanosomen überschwemmt, welche auch in Milz, Knochenmark, Leber, Lymphdrüsen, in der Cerebrospinalflüssigkeit, auf der Schleimhautoberfläche von Augen, Geschlechtsorganen etc. gefunden werden.
 Mal de Caderas (T. equinum)
 Dourine (T. equiperdum)
 Nagana (T. Brucei)
 Schlafkrankheit (T. gambiense)
 Surra (T. Evansi)
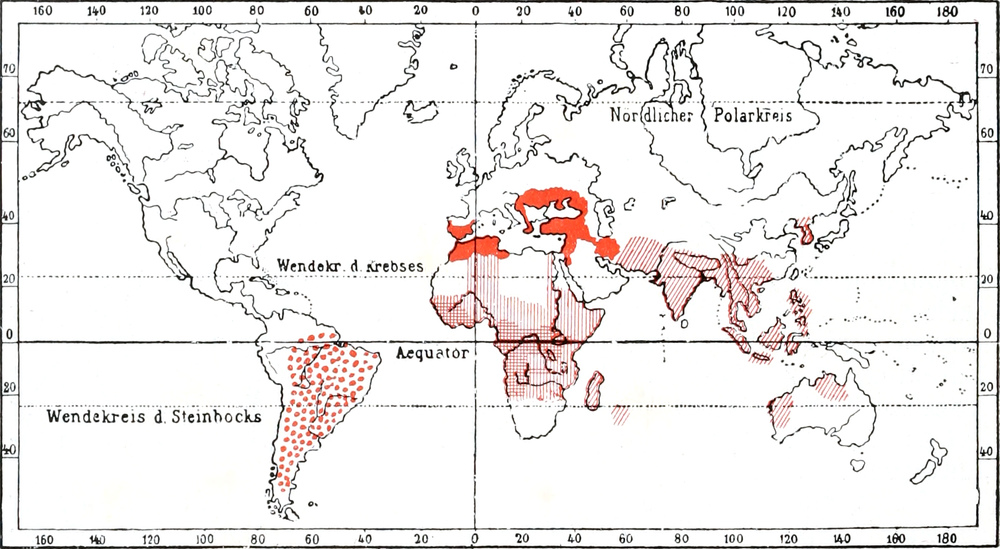
Im Blut äußern sich die Wirkungen der Trypanosomeninfektion als Giftwirkung und durch Verstopfung feiner Blutgefäße. Die Giftwirkung ist nicht sehr stark, doch hat sie zuzeiten Auflösung von roten Blutkörperchen zur Folge, wodurch als charakteristisches Symptom Anämie herbeigeführt wird. Fieber ist meist vorhanden, und zwar ziemlich hohes: 41° C; dieses ist intermittierend, entsprechend dem Auftreten und Verschwinden der Parasiten im peripheren Kreislauf. Auf die Giftwirkung im Zentralnervensystem ist wohl auch die Schlafsucht zurückzuführen, welche bei manchen Trypanosomenkrankheiten auftritt (s. übrigens S. 404). Ferner kommen Gewebeschädigungen durch die Giftwirkung in verschiedenen Organen, am Auge, im Nervensystem etc. vor.
[S. 403]
Teils auf die Embolien, teils auf die Giftwirkung sind Hautausschläge, Oedeme, Plaquesbildung zurückzuführen, welche bei allen Trypanosomeninfektionen auftreten. Vorkommen von reichlichen Exsudaten ist charakteristisch; ferner Vergrößerung der Milz und der Lymphdrüsen.
Bei vielen Infektionen mit Trypanosomen ist der Verlauf intermittierend, indem Perioden mit massenhafter Vermehrung der Parasiten im peripheren Blut mit Perioden abwechseln. in denen sie fast vollkommen verschwunden zu sein scheinen. R. Ross und seine Schüler haben durch genaue Zählungen neuerdings nachgewiesen, daß die Häufigkeitskurve der Trypanosomen eine ziemlich regelmäßige ist und zum Fieber in gewissen Beziehungen steht. Wohl mit Recht führen sie die Abnahme der Trypanosomen auf das Anwachsen der Antikörper im Organismus zurück und die Rezidive auf die Anpassung der Trypanosomen an dieselben. In der Milz scheint vor allem eine ausgiebige Zerstörung der Trypanosomen stattzufinden; im Knochenmark scheinen sie sich am längsten zu halten. Da sind sie noch zu finden, wenn man im peripheren Blut gar keine Individuen mehr nachweisen kann. Von dort aus erfolgt die Ueberschwemmung des Bluts bei den Rezidiven. Sehr bemerkenswert ist die Tatsache, daß im Blut eines infizierten Tieres die Trypanosomen so selten werden können, daß man sie durch mikroskopische Blutuntersuchung nicht nachweisen kann. In solchen Fällen kann man ihr Vorhandensein durch Anlegen einer Kultur feststellen. In derselben vermehren sie sich und sind dann leicht nachweisbar. So haben zuerst Novy und Mc Neal in Vögeln, welche keine Trypanosomen zu enthalten schienen, solche nachgewiesen und dadurch auf eine bedeutsame Fehlerquelle beim Studium der Blutparasiten hingewiesen. Durch Anlegung von Kulturen hat man schon manche interessanten Entdeckungen gemacht, so die weite Verbreitung der Rindertrypanosomen vom Typus des Tr. Franki und Theileri nachgewiesen. Es ist sehr wohl möglich, daß vor allem in den tropischen Ländern beim Menschen und bei allen möglichen Tieren sich durch die Kulturmethode noch manche in der Regel harmlose, gelegentlich aber auch pathogen wirkende Trypanosomen auffinden lassen. — Es wurde anfangs angenommen, daß ein ultramikroskopisches Stadium der Trypanosomen im Blut existiere, welches sie der Beobachtung im Präparat entziehen könne. Filtrierversuche haben dies sehr unwahrscheinlich gemacht. Doch zeigen z. B. Dofleins Befunde an Kulturen von T. rotatorium, daß außerordentlich kleine „Dauerstadien“ auftreten können, welche wohl sehr leicht der Beobachtung entgehen müssen.
Die verschiedenen vorhin erwähnten Symptome können bei sämtlichen Trypanosomosen oder Trypanosomiasen, wie die durch Trypanosomen erzeugten Krankheiten genannt werden, vorkommen. Aber sie treten in verschiedener Kombination auf, indem bei der einen Seuche diese, bei der anderen andere Symptome in den Vordergrund treten.
Nach den Symptomenkomplexen und der geographischen Verbreitung, sowie der Uebertragungsweise und gewissen Charakteren der Trypanosomen selbst, hat man die verschiedenen Seuchen unterschieden, von denen die wichtigsten die folgenden sind:
1) Die Schlafkrankheit und das Trypanosomenfieber des Menschen, erzeugt durch Trypanosoma gambiense (S. 440). [S. 404]Das Trypanosoma kann bei infizierten Menschen jahrelang im Blut vorhanden sein, ohne daß bemerkenswerte Krankheitssymptome vorliegen. Vielleicht können manche Menschen auch wieder von Parasiten frei werden, ohne daß es zum Ausbruch einer Krankheit gekommen wäre (?). Der häufigere Fall scheint aber zu sein, daß nach irgendeiner die natürliche Resistenz herabsetzenden Schädigung eine starke Vermehrung der Trypanosomen stattfindet. Dann kommt es zu einer von zwei verschiedenen Formen der Krankheit. Bei dem Trypanosomenfieber leiden die Patienten an regelmäßig oder meist unregelmäßig auftretenden mehrtägigen Fieberanfällen, welche mit verschiedenen der oben genannten Symptome kombiniert sein können: Oedeme, Hautflecken, vor allem stets Lymphdrüsenschwellung etc. Die Krankheit verläuft chronisch und führt oft erst nach Jahren unter den Erscheinungen zunehmender Kachexie zum Tode, ohne daß Schlafsucht aufgetreten wäre.
Die zweite Krankheitsform, die Schlafkrankheit, glaubte man zuerst vom Trypanosomenfieber scharf unterscheiden zu müssen, bis sich im Laufe der Zeit die Identität der Erreger herausstellte. Auch kann Trypanosomenfieber in Schlafkrankheit übergehen. Letztere ist durch Schlafsucht und Abmagerung charakterisiert. Die Erkrankten werden apathisch und versinken in einen oft wochenlangen Schlafzustand, aus welchem sie nur vorübergehend zur Aufnahme von Nahrung etc. aufwachen, bis auch diese Unterbrechungen aufhören und schließlich der Tod eintritt. Die bei Schlafkrankheit stets in der Cerebrospinalflüssigkeit vorhandenen Trypanosomen werden von den einen für die Hauptursache der Schlafsucht gehalten, während andere der Ansicht sind, daß die Trypanosomeninfektion für eine Kokkeninfektion prädisponiere, welche eine akute oder chronische Cerebrospinalmeningitis und Encephalitis hervorrufe. Bakterielle Meningitis oder Encephalitis wird auch tatsächlich bei den Sektionen stets gefunden, und als ihre Ursache ist von der portugiesischen Kommission unter Bettencourt eine besondere Kokkenart (Hypnococcus) bezeichnet worden. Es ist aber noch unklar, ob diese Infektion nicht ganz kurz vor dem Tod eintritt und ob nicht die Schlafkrankheitssymptome doch durch die Trypanosomen verursacht werden.
Die Trypanosomose des Menschen, welche in der Hauptsache Neger befällt, neuerdings aber auch zu sehr zahlreichen Erkrankungen von Weißen geführt hat, ist im tropischen Afrika weit verbreitet (vgl. S. 441 ff. u. Fig. 344). Vor einigen Jahren fand man in Gambien 6 ⁰⁄₀₀ der Eingeborenen infiziert (Dutton und Todd), am Kongo 46 ⁰⁄₀₀ (Dutton, Todd und Christy), in Uganda 29 Proz., in gewissen Distrikten sogar 50–75 Proz. (Greig und Gray). Neuerdings hat am Kongo, in Uganda, an der Grenze von Deutsch-Ostafrika die Seuche noch an Ausdehnung gewonnen. Und es sind im letzten Jahrzehnt sicherlich mehrere 100000 Menschen an ihr zugrunde gegangen (in der Provinz Busoga am Victoria-Nyanza, Brit. Ostafrika, starben 1902–1905 an Schlafkrankheit 30000 Menschen). In der allerneuesten Zeit ist es gelungen, sie in einigen Gebieten durch rationelle Prophylaxe einigermaßen einzudämmen; doch scheint im großen und ganzen das Verbreitungsgebiet der Schlafkrankheit immer noch im Wachsen begriffen.
2) Die Nagana oder Tsetseseuche, verursacht durch das Trypanosoma Brucei (S. 430), ist eine Krankheit, welche in ganz Afrika südlich der Sahara vor allem die Huftiere befällt.
[S. 405]
Die Krankheit äußert sich in folgenden Symptomen: Es tritt eine starke Temperaturerhöhung ein, im Verlauf des Fiebers stellt sich auch Milzschwellung auf das Vier- bis Fünffache der normalen Größe ein; bei den kranken Tieren ist das Blut erfüllt mit den Trypanosomen. Bruce konnte nachweisen, daß 14 Tage nach einer Infektion sich in 1 ccm Blut 140000 Trypanosomen fanden. Dementsprechend war die Abnahme der Zahl roter Blutkörperchen eine ungeheure: beim Pferd sank sie in einem Fall von 5½ Mill. auf 2½ Mill., in einem zweiten Fall von über 7 Mill. auf 1600000 im Kubikzentimeter. Die Folge ist schwere Anämie. Es tritt starke Abmagerung ein, die Tiere fressen nicht mehr, ihr Fell wird struppig. Oedeme treten auf, welche vor allem auch die Genitalien befallen.
Die Nagana befällt außer Huftieren auch alle möglichen anderen Tiere, Nager, Raubtiere etc.
Für Hunde steht es fest, daß sie sich auch durch Fressen von Fleisch kranker Tiere infizieren können.
Von den wilden Tieren wird die Krankheit auf die Haustiere übertragen, bei denen sie verheerend wirkt.
Bei Hunden nimmt die Krankheit meist einen raschen Verlauf; bei Pferden dauert sie oft Wochen bis Monate, beim Rind kann sie sich sogar jahrelang hinziehen. Heilungen werden nur selten beobachtet.
Auch beim Wild tritt die Seuche nicht so heftig auf, daß sie ein rasches Sterben herbeiführte; infolgedessen kann eine wandernde infizierte Antilopenherde z. B. weite Gebiete anstecken.
Meist tritt die Seuche als Epidemie auf, und es wird dann nicht selten in kurzer Zeit der ganze Viehbestand einer Gegend ausgerottet.
Die wirtschaftliche Bedeutung der Nagana ist daher eine sehr beträchtliche. Große Massen von Tieren gehen in Afrika alljährlich an ihr zugrunde. Große Gebiete sind durch ihr endemisches Vorkommen für die Kolonisation verschlossen.
3) Die Surra, welche durch das Trypanosoma Evansi (S. 434) verursacht wird, vertritt die Nagana in Asien. Sie ist in Vorder- und Hinterindien, auch in Niederländisch-Indien, den Philippinen und im nördlichen Australien beobachtet worden. Dort befiel sie hauptsächlich Pferde, Kamele, Elefanten und Büffel. Besonders unangenehm machte sie sich der indischen Regierung dadurch bekannt, daß sie bei Transporten und Feldzügen Hunderte von Pferden und Maultieren tötete, so im Jahre 1880 300 Pferde bei einem einzigen Regiment. Sie ist nach Mauritius und wahrscheinlich auch nach Ostafrika mit Tiertransporten verschleppt worden.
In den Temperaturverhältnissen gleicht die Surra sehr dem Febris recurrens, nach Steel, welcher ja auch zuerst in dem Trypanosoma eine riesige Spirochäte zu sehen glaubte. Der Parasit ist nur während der Temperatursteigerung im Blut vorhanden, sonst nicht nachweisbar. Die Pausen sind oft recht lange. Schwäche, Blutarmut, Abmagerung, blutunterlaufene Flecken am Bauch sind für die kranken Tiere charakteristisch und führen zu schnellem Tod oder langem Siechtum. Spontane Heilungen scheinen gar nicht oder doch nur ganz ausnahmsweise vorzukommen (Koch).
Das Surratrypanosom wurde im Jahre 1880 von dem englisch-indischen Militärarzt Evans als erstes krankheitserregendes Trypanosom [S. 406]entdeckt. Es wurde aber nicht als solches erkannt, sondern als „Spirochäte“ beschrieben.
Auch im nördlichen und westlichen Afrika kommen einige endemische Seuchen vor, deren Erreger sich von T. Brucei etwas unterscheiden, und welche durch andere Stechfliegen, als durch Tsetsen, übertragen werden. Manche Autoren reihen diese der Surra an; so hat Mesnil mit ziemlicher Sicherheit am Senegal T. Evansi nachgewiesen.
4) Die Dourine oder Beschälseuche (Mal du coït) befällt die Pferde in Europa, Nordafrika und Westasien. (Erreger Trypanosoma equiperdum, S. 438.) Wahrscheinlich ist eine in Soemedang, Java, beobachtete Epidemie hierher zu rechnen. Taher, eine Pferdekrankheit in Algier, soll nach Mesnil nicht identisch mit Dourine sein, obwohl die Trypanosomen morphologisch nicht unterscheidbar sind. Die Krankheit ist schon lange bekannt gewesen. Sie äußert sich durch blutunterlaufene Flecken in der Haut, Oedeme (bei den künstlich infizierten Kaninchen besonders der Ohren), auch zeigen sich alle Schleimhäute angegriffen, besonders diejenigen der Augen, der Leibeshöhle und der Geschlechtsorgane. Zahlreiche Trypanosomen finden sich außer im Blut in allen Exsudaten (z. B. auch denen des Auges).
Die Dourine befällt vorwiegend die zur Zucht verwandten Hengste und Stuten, Esel und Eselinnen. Sie wird — was sie von den anderen Trypanosomosen unterscheidet — ausschließlich durch den Coïtus übertragen.
Infolgedessen war es möglich, sie in Mitteleuropa durch sorgfältige Auswahl des Zuchtmaterials zum vollkommenen Erlöschen zu bringen, noch ehe man den Erreger kannte, welcher von Rouget 1896 entdeckt wurde. Doch ist die Seuche neuerdings wieder in verschiedenen Gegenden Mitteleuropas eingeschleppt worden.
5) Das Mal de Caderas, die Kreuzlähme oder Kruppenkrankheit der Pferde, ist in Südamerika von Argentinien bis zum Amazonas verbreitet. Als Erreger wird das Trypanosoma equinum (S. 439) angesehen, welches 1901 von Elmassian entdeckt wurde. Auch bei dieser Krankheit sind die Symptome im allgemeinen dieselben, wie bei den übrigen Trypanosomosen. Besonders hervorzuheben ist die Lähmung der hinteren Extremitäten, welche auffälliger ist als bei den anderen Trypanosomosen, bei denen sie jedoch auch vorkommt.
6) Das Gambiafieber der Pferde, von Dutton und Todd 1902 entdeckt, wird durch das T. dimorphon (S. 436) verursacht. Die Symptome sind im allgemeinen denen der Nagana ähnlich. Die Krankheit ist in Senegambien, dem Nigergebiet und auch sonst in Afrika verbreitet.
Außer diesen Trypanosomosen sind bei Haustieren noch eine ganze Anzahl von meist in abgegrenzten Gebieten lokalisierten Seuchen beschrieben worden, welche zum Teil auf bekannte Trypanosomen, zum Teil auf neu beschriebene Formen zurückgeführt wurden.
Ich führe an: Mal de la Zousfana bei den Pferden, El Debab bei den Dromedaren in Algier, wahrscheinlich dieselbe Krankheit, der Surra ähnlich. Der letzteren steht auch nahe: Mbori, eine Krankheit der Kamele im Sudan. Naganaähnliche Seuchen der Schweine in Ostafrika, der Schafe am Kongo (T. congolense Broden), der Huftiere [S. 407]im Somaliland (Aino). Dann sind zu erwähnen die Seuchen des oberen Nigergebietes: Souma bei Pferden und Rindern, erzeugt durch das T. Pecaudi Laveran; schließlich eine weitere Krankheit der Dromedare, erzeugt durch T. soudanense Laveran.
Die niederen Wirbeltiere scheinen nicht so schwer unter den Trypanosomeninfektionen zu leiden, wie die Säugetiere: relativ stark die Vögel, sehr wenig die Kaltblüter. In allen Fällen scheinen aber die Kulturrassen die geringste Widerstandsfähigkeit zu zeigen, und bei der Uebertragung des Virus vom wilden Tier auf das Haustier wird das letztere meist von schwerer Krankheit befallen, während das erstere nur eine geringe oder gar keine Schädigung zeigte.
Auch bei den Zuchtfischen wird durch Blutflagellaten wahrscheinlich eine Seuche mit großer Sterblichkeit hervorgerufen. Doch sind es bei diesen die Trypanoplasmen (S. 480), welche als Krankheitserreger, soweit wir bis jetzt wissen, die größere Rolle spielen. Mit ihnen bringt man die Schlaffsucht der Karpfen in Zusammenhang (vgl. Hofer 1904, Plehn 1903).
Es ist durchaus nicht sicher, ob alle hier und oben angeführten Seuchen und ihre Erreger wirklich voneinander zu trennen sind. Bei dem gegenwärtigen Stand der Forschung ist es aber jedenfalls empfehlenswerter, durch scharfe Unterscheidung den Ueberblick über die Tatsachen zu erleichtern, als durch Zusammenwerfen der Beobachtungen Verwirrung zu riskieren. Somit kann man, unbeschadet der theoretischen Anschauungen, die Aufstellung der vielen Arten billigen (vgl. S. 398 und 399).
Wir haben oben (S. 398) gesehen, daß man außer der Morphologie der Arten die Empfänglichkeit und Immunitätsreaktionen der Wirte zur Unterscheidung der Formen herangezogen hat. Ein weiteres Merkmal wird von manchen Autoren in der Art der Uebertragung erblickt.
Während bei der Dourine die Begattung die einzige Form der Uebertragung ist, kommt dieser Infektionsmodus bei den anderen Trypanosomosen nur gelegentlich in Betracht. Seit den Untersuchungen von Bruce wissen wir, daß Blutsauger bei der Verbreitung dieser Seuchen die Hauptrolle spielen. Im tropischen Afrika sind die Tsetsen die wichtigsten Ueberträger der Trypanosomen.
Die Tsetsen sind Fliegen oder Dipteren aus der Familie der Musciden, zu welcher unsere Stubenfliege Musca domestica L. gehört. In dieser Familie, deren meiste Mitglieder nicht blutsaugend sind, bildet die Gattung Glossina mit Stomoxys und einigen anderen eine gut charakterisierte Gruppe blutsaugender Gattungen. Die Tsetsen sind also nahe verwandt mit dem bei uns verbreiteten Wadenstecher (Stomoxys calcitrans M.). Es sind kleine unscheinbare Fliegen, welche oft in großen Mengen vorkommen. Sehr charakteristisch ist bei den Glossinen die Haltung der Flügel in der Ruhe; sie sind dann übereinander geklappt, so daß ein Flügel den anderen deckt (Fig. 345 A).
Das Stechen und Blutsaugen wird durch den harten Stechrüssel bewirkt, welcher beweglich ist und sowohl nach vorn, wie nach unten gekehrt werden kann. Beim Saugen wendet die Fliege den Stechapparat senkrecht nach unten. Die hungernde Fliege hat einen platten Hinterleib (Fig. 347 A), vollgesogen hängt er kugelförmig nach unten (Fig. 347 B).
[S. 408]
Die Tsetsen sind lebendiggebärend, d. h. sie legen ihre Nachkommen in Gestalt einer gelblichen Made, welche bald zu einer unbeweglichen, schwarzbraunen Tönnchenpuppe sich umwandelt.
Man findet in der Regel viel mehr Männchen als Weibchen bei den verschiedenen Tsetsearten im Freien. Beide Geschlechter saugen Blut.
Die Tsetsen sind in Afrika, und zwar nur in diesem Erdteil, weit verbreitet; und zwar kommen sie nur in dem Gebiete vor, in welchem die Nachttemperaturen selbst in den kältesten Nächten einige Grad über dem Nullpunkt bleiben, d. h. vom Sudan bis Angola und Natal.
Vielfach sind sie nur strichweise verbreitet; das hängt von der speziellen Biologie der Arten ab, von denen z. B. Glossina palpalis hauptsächlich an waldigen Ufern und Waldrändern vorkommt. Alle Tsetsen scheinen schattenspendende Gewächse zu ihrer Existenz zu bedürfen. Näheres über die Biologie von Tsetsen findet sich, soweit überhaupt Forschungen vorliegen, in den unten im Literaturverzeichnis angeführten Spezialschriften.
Es werden 8–14 Arten von Tsetsen in der Literatur beschrieben, von denen G. palpalis (Fig. 345) als wichtigste Ueberträgerin der Schlafkrankheit, G. morsitans (Fig. 346) als wichtigste Ueberträgerin der Nagana bezeichnet werden. Nach neueren Versuchen vermag Glossina palpalis folgende Trypanosomen zu übertragen: T. gambiense, Brucei, dimorphon und vivax. Glossina morsitans soll angeblich nur T. Brucei, jedenfalls nicht T. gambiense übertragen, da in Gegenden, in denen Gl. morsitans massenhaft vorkommt, eingeschleppte Fälle von Schlafkrankheit nicht zur Entstehung einer [S. 409]Epidemie führen. Auch gelingt Uebertragung des T. gambiense durch Glossina morsitans an den gleichen Orten und unter den gleichen Bedingungen, unter denen sie durch Glossina palpalis ganz leicht gelingt, im Experiment nicht. Doch hat man an diesen Annahmen neuerdings wieder zu zweifeln begonnen, da im Nyassaland und in Rhodesia an Orten, an denen nur Glossina morsitans vorkommt, Trypanosoma gambiense (?) bei Leuten gefunden wurde, welche nie in das Gebiet der Glossina palpalis gekommen waren (vgl. S. 445).
Bemerkenswert ist die Tatsache, daß die Infektion und Uebertragung bei Experimenten mit in der Wildnis gefangenen Tsetsefliegen in der Regel nicht gelingt, während bei in Gefangenschaft erzogenen Tsetsefliegen mindestens 5 Proz. Dauerinfektion erwerben. Stuhlmann glaubt dies damit in Zusammenhang bringen zu können, daß die Fliegen sich nur infizieren sollen, wenn sie bei der ersten Mahlzeit in ihrem Leben an einem infizierten Tier saugen.
Außer den genannten Glossinaarten gibt es in Afrika, dem einzigen Gebiet, in welchem diese gefährliche Gattung vorkommt, [S. 410]noch etwa ein Dutzend ihr zugerechnete, mehr oder minder gut charakterisierte Arten. Von ihnen sind einige von größerer Wichtigkeit, weil sie bei einigen Seuchen des Viehs, eventuell auch bei der Schlafkrankheit, als Ueberträger mit in Betracht kommen. So Glossina fusca, pallidipes, welche eventuell in Ostafrika an der Uebertragung der Schlafkrankheit teilnehmen (?), Gl. tachinoides (eventuell nur eine Zwergform von palpalis), welche im Tschadgebiet wohl sicher T. gambiense, und von der festgestellt ist, daß sie T. Cazalboui ohne weiteres überträgt.
Trypanosomosen werden aber auch durch andere Blutsauger übertragen; wie schon oben bei den einzelnen Arten angegeben, kommen bei Säugetieren in Betracht:
Stomoxys-Arten z. B. bei Mal de Caderas und Souma, eventuell bei Surra,
Tabaniden (Bremsen) bei Surra, El Debab, Mbori etc.,
Hippobosciden (Lausfliegen) z. B. bei Trypanosoma Theileri
ferner Läuse und Flöhe (vgl. S. 426 die Angaben für das Rattentrypanosoma), eventuell Zecken, vgl. Trypanosoma Christophersi S. 448.
Wanzen, so Conorhinus megistus, welche die brasilianische Trypanosomose des Menschen überträgt.
Bei Vögeln:
Culiciden (z. B. Culex pipiens bei Trypanosoma noctuae).
Bei Kaltblütern:
Zecken (vgl. S. 460 Ixodes testudinis) und vor allem Blutegel, welche wahrscheinlich die Trypanosomen der Amphibien, sicher [S. 411]diejenigen der Fische übertragen. Auch die Trypanoplasmen der Fische werden durch Blutegel übertragen. Es sind nach den Forschungen von Brumpt, Léger und Keysselitz vor allem Piscicola (P. geometra, Fig. 349) und Hemiclepsis (H. marginata), welche für Süßwasserfische in Betracht kommen (vgl. S. 463); bei Meeresfischen ist Pontobdella (P. muricata) ein wichtiger Ueberträger.
Die große Verschiedenheit der an der Uebertragung beteiligten Tiere in anatomischer und biologischer Beziehung macht es unwahrscheinlich, daß an sie alle die Blutflagellaten ebenso eng angepaßt sind, wie die Hämosporidien an die Culiciden. Zudem hat man experimentell nachgewiesen, daß eine ganze Anzahl weiterer Blutsauger sich an dem Uebertragungsgeschäft gelegentlich beteiligen können (nach den Untersuchungen von Sergent, Minchin, Schuberg, Gouder und Rodenwaldt u. a.).
Es ist im gegenwärtigen Moment durchaus unsicher, ob die Trypanosomen einen geschlechtlichen Teil ihres Zeugungskreises nach dem Muster der Hämosporidien in einem Blutsauger durchmachen. Während manche Forscher an der von Schaudinn entwickelten Theorie (vgl. S. 450 ff.) festhalten, haben manche auf Grund der neueren Forschungen angenommen, daß der Zusammenhang mit den Blutsaugern kein so enger ist, wie jene Theorie voraussetzt. Ich habe mich in einem zusammenfassenden Vortrag der letzteren Gruppe von Autoren angeschlossen, indem ich auf Grund der Forschungen von Novy u. a. die Hypothese entwickelte, daß ähnlich, wie dies oben für die Spirochäten erwähnt wurde, das Blut in den Blutsaugern den Trypanosomen die Möglichkeit bietet, sich an verschiedene Wirte anzupassen. So sind sie jedenfalls in der Gegenwart nicht von einem festgefügten Wirtswechsel abhängig, sondern sie wachsen in der Blutflüssigkeit — wenn sie Gelegenheit haben, sich allmählich an dieselbe anzupassen — wie in einer künstlichen Kultur, und zwar einerlei ob ihnen dieselbe in vitro, im Darm des Blutsaugers oder im Gefäßsystem eines Wirbeltiers dargeboten wird. Nur nehmen sie im letzteren Fall die Trypanosomenform an, während sie in den beiden erstgenannten Fällen in Herpetomonasgestalt leben.
Letztere Tatsache weist uns auf die Abstammung der Trypanosomen von Leptomonaden hin. Ja, nach den Untersuchungen von Novy können sogar Leptomonasarten aus Insekten sich in künstlichen Kulturen in trypanosomenähnliche Organismen umwandeln (Fig. 351).
Wie wahrscheinlich es ist, daß Leptomonaden aus blutsaugenden Tieren sich im Blut der von ihnen befallenen Wirbeltiere zu pathogenen Organismen entwickeln, dafür gibt uns eine neue Entdeckung einen interessanten Anhaltspunkt. Vor wenigen Jahren entdeckte man durch die Kulturmethode in allen möglichen Gebieten, auch in solchen mit gemäßigtem Klima, im Blut von Rindern Trypanosomen vom Typus des T. Theileri. Auch in Deutschland wurden diese Organismen bei einem hohen Prozentsatz der Rinder gefunden. Doch fehlten sie bei Stallvieh, wurden nur bei Weidevieh angetroffen, und zwar nur im Hochsommer, während die Häufigkeitskurve im Winter absinkt. In der kalten Hälfte des Jahres verschwinden sie bei uns vollkommen, während sie in der Zeit, in welcher das Vieh den Stichen blutsaugender Insekten (Tabaniden, Hippobosciden) ausgesetzt ist, auftreten. [S. 412]In der Regel gelingt es den so in die Blutbahn gelangenden Parasiten nicht, sich gegen die Schutzkräfte ihres Wirtes zu halten. Nur solange immer neuer Nachschub durch neue Stiche erfolgt und eventuell unterstützt wird durch die höhere Temperatur der Umgebung, kann sich der Parasit in seinem neuen Wirt halten. Sobald die Bedingungen für ihn etwas ungünstiger werden, gewinnt der Wirt die Oberhand und schlägt den Feind aus dem Feld.
In den Tropen liegen vor allem, wenn es sich um nicht akklimatisierte Menschen und Haustiere handelt, die Verhältnisse viel weniger günstig für die Wirte, und so konnten sich dort wohl viel leichter zahlreiche Formen von derartigen Blutparasiten bilden, welche eine große Gefährlichkeit erlangten.
Das Vorkommen von Leptomonaden in Insektenformen, welche nicht Blut saugen (vgl. S. 420) widerlegt die Theorie, nach welcher angenommen werden könnte, daß alle derartigen Flagellaten primär aus dem Blut von Wirbeltieren kommen und erst sekundär in die Insekten gelangt seien. An dieser Stelle muß allerdings darauf hingewiesen werden, daß vielfach Wirbeltiere, welche nur schwach durch die Trypanosomeninfektion erkranken, als Reservoire dienen können, aus denen die Blutsauger sich immer wieder infizieren. So ist neuerdings festgestellt worden, daß Trypanosoma Grayi aus dem Blut der Krokodile in die Tsetsefliegen gelangt. Bei den pathogenen Formen wird in dieser Weise oft ein Herd der Infektion lauge Zeit erhalten.
So weiß man schon lange, daß die infizierten, aber nur wenig unter der Infektion leidenden Wildarten Afrikas das Trypanosoma Brucei beherbergen, welches durch die Tsetsen auf das eingeführte Vieh übertragen wird. Bei den Wanderungen des Wildes verschleppt dieses den Keim in andere Gegenden, in denen dann bei den Viehherden scheinbar spontan Seuchen ausbrechen. Neuerdings ist nachgewiesen worden, daß die Kamele und Elefanten in dieser Weise als Reservoire für die Surra, Rinder und Antilopen für die Schlafkrankheit, Hunde für die Splenomegalie der Kinder (vgl. S. 469 f.) dienen usw.
[S. 413]
Daß die eine Flagellatenform experimentell so leicht und rasch in die andere übergeführt werden kann, legt sogar die Vermutung nahe, daß der Uebergang aus dem Leptomonaszustand in den eines Trypanosoma sich auch heutzutage noch unter besonders günstigen Bedingungen in der freien Natur vollziehen kann. Unter allen Umständen zeigt sie uns den Weg an, auf dem die Trypanosomen aus Insektenparasiten entstanden sein müssen. Die Anpassung an besondere Wirtsorganismen vereinfachte die Entstehung von Trypanosomenrassen, welche um so ausgesprochener ihre Charaktere festhalten und zu „Arten“ werden, je längere Zeit hindurch sie die erworbenen Anpassungscharaktere schon vererben. Immerhin scheinen die Grenzen zwischen den pathogenen Arten labil zu sein und sind eventuell bedingt durch die Herkunft und Uebertragungsform, also durch Wirt und Zwischenwirt. Die Erforschung aller dieser Fragen ist von größter Bedeutung für die Parasitologie.
Während wir gegen die Darmparasiten unter den Flagellaten keine spezifischen Heilmittel kennen, sind solche gegen die Blutparasiten wenigstens bis zu einem gewissen Grade erprobt. Arsenik- und Antimonverbindungen, sowie Benzidinfarbstoffe haben sich, den kranken Individuen eingespritzt, als stark wirkende Mittel erwiesen. Im Tierversuch hat sich nach Ehrlich und Shiga Trypanrot als ein Reagens bewährt, welches sehr stark abtötend auf die im Kreislauf befindlichen Trypanosomen wirkt. Durch die Auflösung der Trypanosomenkörper tritt Vermehrung der Immunkörper und eine gewisse Immunität ein. Aehnliche Heilerfolge wie Ehrlich hatten mit Benzidinfarbstoffen vor allen Laveran und Mesnil. Doch waren die bei kleineren Tieren erzielten Resultate nicht ohne weiteres auf große Tiere und den Menschen anzuwenden.
Die größten Erfolge wurden durch Anwendung des von Thomas und Breinl eingeführten Atoxyl erzielt. Mit diesem Mittel gelang es vor allem Koch, bei zahlreichen Schlafkranken eine ausgesprochene Besserung herbeizuführen, und auch bei anderen Trypanosomosen wurden durch Uhlenhuth, Laveran und Mesnil, Breinl u. a. Erfolge mit diesem Mittel erzielt. Ob es gelingt, vollkommene Heilungen durch Atoxylbehandlung zu erreichen, ist noch unsicher. Jedenfalls gelingt es, erhebliche Besserung der Symptome und Verlängerung des Lebens mit dieser und einigen anderen organischen Arsenverbindungen, wie z. B. auch dem von Ehrlich in die Syphilistherapie eingeführten Salvarsan (vgl. S. 354), zu erzielen. Vor allem hat sich als erfolgreich das Abwechseln zwischen verschiedenen Medikamenten, z. B. Arsenophenylglycin oder Atoxyl, Antimontartrat und Benzidinfarbstoffen erwiesen.
An dieser Stelle müssen wir schließlich auch auf den Zellparasitismus bei den Trypanosomiden eingehen. Die Leishmania-Arten sind Protozoen, welche vollkommen den Leptomonasarten und den Trypanosomen in ihrer Organisation entsprechen. Sie kommen bei Tieren und beim Menschen vor und finden sich vor allem in Milz und Leber, doch auch in der Haut. Charakteristisch ist ihr Vorkommen in Zellen, und zwar fast ausschließlich in Phagocyten und phagocytären Organen, in denen sie sich aber gut weiter vermehren, wodurch sie die befallenen Organismen mehr oder weniger intensiv zu schädigen vermögen. Die Angaben über Befunde in roten Blutzellen sind so spärlich, daß man des Eindruckes eines atypischen Vorkommens [S. 414]oder gar eines Kunstproduktes sich bei ihnen nicht erwehren kann.
Der Parasitismus dieser Flagellaten erinnert sehr an das Verhalten der früher besprochenen Zoochlorellen und -xanthellen (vgl. S. 77). Man muß wohl annehmen, daß sie ähnlich den Trypanosomen aus blutsaugenden Insekten (z. B. Wanzen) stammen, durch deren Biß sie von Mensch auf Mensch und eventuell von Haustieren auf den Menschen übertragen werden. Es ist ja sehr bemerkenswert, daß gerade in Wanzen (Raubwanzen und verwandten Formen) eine ganze Reihe von Leptomonasarten nachgewiesen wurden, aus denen recht gut Formen wie die Leishmanien entstanden sein können. So wurden entsprechende Formen in nicht blutsaugenden Wanzen gefunden, vgl. die Angaben über Leptomonas Davidi S. 420, sowie die Angaben von Chatton über Leptomonas in einer Reduviide aus Banyuls (vgl. S. 419). Auch die Uebertragungstätigkeit der Harpactide Conorhinus (vgl. unten S. 465) ist zu erwähnen, vor allem deswegen, weil Donovan indische Arten von Conorhinus als Ueberträger des Kala-Azar verdächtigt.
Die Leishmanien unterscheiden sich aber ganz wesentlich von den Trypanosomen dadurch, daß sie sich nicht im kreisenden Blut vermehren, sondern von den Phagocyten aus demselben weggefangen werden. In den Phagocyten gehen sie aber nicht zugrunde und werden nicht verdaut, wie das wiederholt bei Trypanosomen beobachtet worden ist, sondern sie vermehren sich, verbreiten sich über benachbarte Zellen und parasitieren in umgrenzten Körperregionen, vorwiegend in bestimmten Organen.
In den Zellen treten sie in einer Form auf, welche sie kaum als Flagellaten erkennen läßt. Aehnlich wie bei Leptomonaden und Trypanosomen im Stadium der sog. Ruhe- oder Dauerstadien zeigen sie keine freie Geißel, wohl aber in ihrem ovalen Körper deutlich Kern und Blepharoplast. In künstlich angelegten Kulturen und im Darm von Blutsaugern entwickeln sie sofort aus dem Blepharoplast wieder eine freie Geißel und werden zu frei beweglichen Flagellaten. Da auch Leptomonaden und Trypanosomen im abgekugelten, geißellosen Dauerzustand sich vermehren, so kann man wohl ohne weiteres die Leishmanien als an den Zellparasitismus angepaßte Leptomonaden bezeichnen, wie die Trypanosomen solche darstellen, welche an den Blutparasitismus angepaßt sind.
Die Leishmaniosen kommen beim Menschen und einigen Tieren vor. Man unterscheidet beim Menschen:
1) Kala-Azar oder tropische Splenomegalie, eine schwere, meist tödliche, meist von enormer Milzvergrößerung begleitete Krankheit, welche im tropischen Asien und im angrenzenden Teil von Afrika verbreitet ist.
2) Die Orientbeule, eine lokale Affektion der Haut, welche meist nach kurzer Zeit heilt und in Asien und Afrika weit verbreitet ist.
3) Die Splenomegalie der Kinder, welche wahrscheinlich von den Haushunden, bei denen der Erreger eine leichtere Erkrankung hervorruft, auf den Menschen übertragen wird. Die Krankheit ähnelt sehr dem Kala-Azar, befällt aber in ihrem typischen Verbreitungsgebiet, den Mittelmeerländern: Algier, Tunis, Malta, Sizilien, Süditalien, Griechenland, Portugal, nur die Kinder, bei denen sie meist [S. 415]tödlich verläuft. Detailliertere Angaben über die Leishmanien und die ihnen ähnelnden Parasiten des Menschen und der Tiere finden sich unten S. 467 ff.
Die Leishmanien mit ihrem eigenartigen Zellparasitismus haben manche Theoretiker veranlaßt, sie als Uebergangsformen von Blutflagellaten zu Blutkörperchenparasiten, wie den Hämosporidien und Babesien, zu betrachten.
Andere Zwischenstufen sollen Schizotrypanum und Endotrypanum darstellen. Es sind dies beides Formen (vgl. S. 464 u. 466), welche viele Merkmale der Trypanosomenorganisation bewahrt haben, obwohl sie in roten Blutkörperchen parasitieren. Von Endotrypanum ist nur ein Stadium bekannt, von Schizotrypanum existieren ausführliche Angaben über die Lebensgeschichte. Danach handelt es sich um ein typisches Trypanosoma, welches aber keine freien Teilungen durchmacht, wie die Arten der Gattung Trypanosoma, sondern sich intracellulär durch eine Art für Schizogonie fortpflanzt (vgl. S. 465). Selbst wenn man sämtliche Angaben über die sehr merkwürdige Lebensgeschichte dieser Art vollkommen bestätigt, ist damit aber noch nicht die Abstammung der Hämosporidien von solchen Formen bewiesen. Denn noch niemand hat geschlechtliche Fortpflanzungsstadien, wie sie bei den Hämosporidien so leicht zur Beobachtung gelangen, bei einem trypanosomenähnlichen Flagellaten beobachtet. Doch ist zuzugeben, daß theoretisch die Ableitung eines Teils der intracellulären Blutparasiten auf dem Weg über ähnliche Formen, wie Schizotrypanum und Endotrypanum sie darstellen, etwas sehr Bestechendes an sich hat.
Gattung: Herpetomonas Kent em. Prowazek.
Nach neueren Forschungen sind zur Gattung Herpetomonas nur Flagellaten zu rechnen, deren Geißel, von zwei parallel verlaufenden Achsenfäden gestützt, eigentlich aus zwei verschmolzenen Geißeln besteht. Zwischen dem Blepharoplasten und den Basalkörnern der Geißelbasis ziehen sich zwei stabförmige Rhizoplaste. Vom Blepharoplast durch den Körper nach hinten eine lange gewundene Stützfibrille.
Die im Darm von Musciden parasitierenden Arten der Gattung sind langgestreckt, stabförmig, ihr Vorderende oft etwas angeschwollen: dicht hinter der Geißelbasis liegt eine kontraktile Vakuole. Kern bläschenförmig. Im erwachsenen Zustand ist der Körper starr, dagegen in der Jugend, wo er auch kürzer ist, vermag er sich zu biegen und schlängelnde Bewegungen auszuführen. Außer den freibeweglichen Individuen sind auch an der Darmwand der Wirte festhaftende, geißellose Stadien vorhanden, welche von manchen Autoren als Gregarinenstadien (gregarinenähnliche Stadien) bezeichnet werden. Vermehrung durch Längsteilung im beweglichen und festgehefteten Zustand, sowie Zerfall in viele Sprößlinge, wobei der Plasmateilung eine Anzahl von Kernteilungen vorausgeht, ist bekannt. Die Kopulation ist bei H. muscae domesticae anisogam. Doch ist der Unterschied der Gameten sehr gering. Reifungsteilungen an Kern und Blepharoplast sind beschrieben (Prowazek). Dieser Autor gibt auch multiple Teilung der Mikro- und Makrogameten (Etheogenese und Parthenogenese) an. Unter ungünstigen Lebensverhältnissen findet Bildung von Dauercysten mit schleimiger Hülle statt (Schleimcysten); ferner [S. 416]Auswandern von Individuen durch die Darmepithelien in die Leibeshöhle und Infizieren der Eier des Wirts, so daß eine Vererbung des Parasiten stattfindet.
Bei den verschiedenen Arten ist nicht selten Agglomeration zahlreicher Individuen, meist mit dem Geißelende zu Rosetten, beobachtet worden.
1. Herpetomonas muscae domesticae (Burnett).
|
Bodo m. d. Burnett.
|
|
|
1878.
|
Cercomonas m. d. Stein,
Infusionstiere. III. 1878. Taf. 1. II.
|
|
1880.
|
Herpetomonas m. d. Kent, Manual
of the Infusoria. Vol 1. 1880. p. 245.
|
|
1903.
|
Léger, L., Sur quelques
cercomonadines nouvelles etc. Arch. f. Protistenk. Vol. 2. p. 180.
|
|
1904.
|
Prowazek, S., Die Entwicklung
von Herpetomonas, einem mit den Trypanosomen verwandten Flagellaten. In:
Arb. Kais. Gesundheitsamt. Vol. 20. p. 440.
|
Wurmförmiges Tier, sehr metabol, an beiden Enden zugespitzt, 10–20mal so lang wie breit. Das eine Ende in ein Flagellum ausgezogen, welches ungefähr so lang oder etwas länger als der Körper ist (Fig. 352 a). Die Geißel wird der Länge nach von zwei sich stark färbenden Fäden durchzogen.
Das Körperplasma ist granuliert; in der Nähe des vorderen flagellumtragenden Endes eine kontraktile Vakuole, vor derselben der Blepharoplast. Daneben liegt das Cytostom, von welchem ein langer, spiraliger Cytopharynx ausgeht (ob nicht eher Kanal der kontraktilen Vakuole?).
Die Länge des Tieres beträgt 30–50 µ.
Vermehrung durch Längsteilung ist bekannt (Fig. 352 b). Während die jungen Formen sehr beweglich und metabol sind, werden die alten und ausgewachsenen Tiere ganz starr.
Das Flagellat schmarotzt im Darm der Stubenfliege (Musca domestica L.); man findet bei derselben oft den ganzen Chylusmagen vollgepfropft. Ferner findet es sich bei den Fliegen Homolomyia scalaris F., Pollenia rudis F. und Teichomyza fusca Macg.
Europa und Nordamerika.
Aus Sarcophaga haemorrhoidalis Fall. hat Prowazek eine sehr nahestehende Art, Herpetomonas sarcophagae Prow., beschrieben. Sie fand sich in Rovigno (Istrien) in 8 Proz. der untersuchten Fliegen.
Knuth hat neuerdings im Blut eines Rehs im Westerwald, in der Gegend, in welcher das Trypanosoma Franki (vgl. S. 429) zuerst entdeckt worden war, eine echte Herpetomonas gefunden. Länge 38–74 µ, Breite 1–1½ µ, Geißellänge 24 bis 54 µ. Näheres über etwaige pathogene Bedeutung etc. ist nicht bekannt geworden. (Knuth in: Zeitschr. f. Infektionskrankh., paras. Krankh. u. Hyg. d. Haustiere. Vol. 6. 1909. p. 357.)
Gattung: Leptomonas Kent em. Chatton und Alilaire.
|
1880.
|
Leptomonas Kent, Manual of infusoria. p. 243.
|
|
1902.
|
Crithidia Léger.
|
|
1908.
|
Leptomonas Chatton et
Alilaire.
|
Eingeißelige Flagellaten mit einem Achsenfaden in der Geißel, welche von einem Blepharoplasten entspringt. Die letztere kann vorn oder weiter hinten im Körper liegen, bei der gleichen Art den Ort wechseln und dadurch die Bildung der Geißel und das Auftreten einer [S. 417]undulierenden Membran erheblich beeinflussen. Die Geißel kann ganz eingezogen werden, ja der Achsenfaden kann ganz verschwinden: die Geißel kann aber auch sehr lang sein und in eine mehr oder weniger lange undulierende Membran übergehen. Letztere kann auch das einzige Fortbewegungsorgan darstellen, indem die freie Geißel fehlt.
Die Gattung ist vor allem im Darm von Insekten, aber auch bei anderen Wirbellosen gefunden worden. Frei im Darm beweglich sind die geißeltragenden Formen; es kommen aber auch geißellose, abgerundete Ruhestadien („gregarinenähnliche Stadien“) vor, welche sich an die Darmwand der Wirte anheften. In denselben sind Kern und Blepharoplast deutlich erkennbar; sie teilen sich in diesem Zustand. Diese Ruhestadien kommen in allen möglichen Uebergängen zur Encystierung vor. Oft können sie beim Eintritt geeigneter Ernährungsbedingungen wieder Geißeln bekommen und beweglich werden (sogenanntes Präflagellatenstadium). Im hinteren Teil des Darms gehen sie in einen mit dickerer Hülle umgebenen Cystenzustand über; so werden sie mit dem Kot entleert und dienen der Infektion neuer Wirte (sogenanntes Postflagellatenstadium).
Außerdem ist Infektion der Ovarien und im Zusammenhang damit Vererbung der Leptomonaden beschrieben worden.
Sichere geschlechtliche Stadien und Vorgänge sind nicht bekannt.
Manche Arten ließen sich leicht auf künstlichen Nährböden züchten.
Es ist eine große Anzahl von Leptomonasarten beschrieben worden, welche z. B. auch in verschiedene Gattungen eingereiht wurden (z. B. Crithidia). Sie unterscheiden sich nur in geringfügigen Merkmalen, und es sind die Arten meist nur auf der Verschiedenheit der sie beherbergenden Wirte und auf Maßverhältnissen begründet. Viele Formen stehen wohl sicher in engen genetischen Beziehungen zu Trypanosomen.
Ich führe folgende Arten an:
[S. 418]
Leptomonas subulata (Léger).
|
1904.
|
Léger, L., Sur un nouveau
flagellée parasite des Tabanides. In: Compt. rend. Soc. Biol. Vol. 57.
1904. p. 613.
|
Länge 30 µ. Breite 1½-2 µ. Geißellänge 25–50 µ. Südfrankreich in Tabanus glaucopis Meig. und Haematopota italica Meig.
Leptomonas gracilis (Léger).
|
1908.
|
Léger, L., Sur quelques
Cercomonadines nouvelles ou peu connues parasites de l’intestin des
insectes. In: Arch. f. Protistenkde. Vol. 2. 1903. p. 180.
|
Sehr langgestreckte Leptomonade, mit Anschwellung des vorderen Körperendes (Fig. 354).
Länge bis 40 µ, Geißellänge 15 µ.
Außerdem kommen kleine bewegliche Individuen von 8 µ Länge, spindelförmigem Körper und kurzer Geißel vor.
Südfrankreich. Malpighische Gefäße der Larven der Fliege Tanypus sp.
Leptomonas algeriense E. et E. Sergent.
|
1906.
|
Sergent, Edm. et
Et., Sur un flagellé nouveau de l’intestin des
Culex et des Stegomyia etc. In: C. R. Soc. Biol. Paris. Vol. 60. p. 291.
|
In ♀ Exemplaren von Culex pipiens und von Stegomyia fasciata aus Algier fanden die Brüder Sergent eine plumpe Leptomonasform, deren Blepharoplast stets hinter dem Kern gelegen ist und deren ruhende Stadien kuglig sind.
Auch von Ross, Chatterjee, Léger, Stephens und Christophers wurden ähnliche Parasiten in Moskitos gefunden.
Leptomonas culicis Novy, MacNeal und Torrey.
|
1907.
|
Trypanosoma (Herpetomonas culicis)
Novy, MacNeal und
Torrey, The Trypanosomes of Mosquitoes and other
Insects. In: Journ. Inf. Diseases. Vol. 4. p. 223.
|
In den verschiedenen bei Ann Arbor, Michigan, vorkommenden Culexarten fanden Novy und seine Mitarbeiter außer Leptomonas fasciculata auch diese Art; beide Formen konnten sie auf künstlichen Nährböden züchten und erzielten dabei sehr bemerkenswerte Resultate.
L. culicis mißt im Durchschnitt 12–20 µ Länge, 0,5–1 µ Breite. Es kommen auch sehr schlanke, lange Individuen vor (einschließlich der 5–10 µ langen Geißel 30–45 µ), außerdem mittlere, kurze und auffallend breite Formen mit kurzer Geißel. Der Kern ist kompakt und länglich. Der Blepharoplast ist rund oder oval, mißt 0,5–0,7 µ im Durchmesser und liegt vor dem Kern, dicht vor ihm oder in der Mitte zwischen ihm und der Geißelbasis. Im hinteren Teil des Körpers liegt ein stark färbbares Gebilde, welches sich bei der Teilung zuerst teilt und welches Novy und seine Mitarbeiter als Acrosom bezeichnen. Seine Bedeutung ist unklar.
Ganz genau wie in den Moskitos, so erscheinen die verschiedenen Formen auch in den Blutagarkulturen.
Diese Form ist von Wichtigkeit, weil Novy der Ansicht ist, daß die Stadien dieses Flagellaten von Schaudinn und den Sergents für Stadien teils von Haemoproteus noctuae, teils von Leukocytozoon Ziemanni gehalten wurden.
Leptomonas fasciculata (Léger).
|
1902.
|
Léger, Sur un flagellé parasite
de l’Anopheles maculipennis. In: C. R. Soc. Biol. Vol. 55. p. 1.
|
Sehr kleine Form, 3 bis höchstens 8 µ lang. Südfrankreich, Nordamerika.
Leptomonas minuta (Léger).
|
1903.
|
Léger, Sur quelques
Cercomonadines nouvelles etc. In: Arch. f. Protistenkde. Vol. 2. p. 180.
|
Spindelförmige Art, deren kleine Individuen 3–4 µ, deren große 15 µ messen. Kern der freien Formen dicht hinter der Mitte des Körpers (Fig. 355 b).
[S. 419]
Kommt in Südfrankreich in ungeheuren Mengen im Darm von Tabanus tergestinus Egg. vor, in der Ursprungsregion der Malpighischen Gefäße und im Anfang des Enddarms.
Leptomonas campanulata Léger 1903.
Sehr ähnliche Form aus dem Darm der Larven von Chironomus plumosus L. (Südfrankreich), deren angeheftete Stadien sehr deutlich den Blepharoplasten und den Rest der Geißel erkennen lassen. Teilung auch im festgehefteten Zustand beobachtet (Fig. 356 c).
Ferner:
Leptomonas jaculum Léger aus Nepa cinerea.
Leptomonas gerridis Patton aus Gerris paludum.
Leptomonas muscae domesticae Werner
(Arch. f. Protistenkde. Vol. 13. 1908. p. 19.)
eine eingeißelige, nur 10–13 µ lange (davon Geißel 5–6 µ) Leptomonade aus der Stubenfliege (vgl. Fig. 337), welche von der größeren, „zweigeißeligen“ Herpetomonas verschieden ist.
Leptomonas simuliae Georgewitsch
(C. R. Soc. Biol. Vol. 67. 1909. p. 480 u. 517.)
wurde in großen Mengen in der Columbacher Fliege (Simulia columbacensis) gefunden und in Beziehung zu deren tierpathogenen Wirkungen gebracht. Doch wurde bisher keine Uebertragung des Protozoons auf Wirbeltiere gefunden. L. simuliae wurde nur im Magen der Fliege gefunden, sie mißt 20–50 µ.
Leptomonas agilis Chatton
(C. R. Soc. Biol. Vol. 66. 1909. p. 981.)
wurde bei Banyuls in der Reduviide Harpactor iracundus Scop. gefunden. Der Fund gibt zu besonderen Ueberlegungen Anlaß, wenn man an die Entdeckung von Chagas denkt, dessen Schizotrypanum Cruzi durch die verwandte Wanze Conorrhinus übertragen wird, ferner daran, daß nach Donovan indische Conorrhinusarten möglicherweise bei der Uebertragung des Kala-Azar eine Rolle spielen. Vgl. unten S. 414 und 465.
[S. 420]
Leptomonas drosophilae Chatton und Alilaire und Leptomonas Mesnili Rouband
wurden in nicht blutsaugenden Fliegen entdeckt. Erstere in Drosophila in Frankreich, letztere in Luciliaarten am Congo. Beide zeichnen sich durch auffallende Trypanosomenähnlichkeit im Habitus aus.
Leptomonas melophagia (Flu)
(vgl. Porter, Quart. Journ. Micr. Sc. Vol. 55. 1910. p. 189.)
kommt in der sogenannten Schaflaus, einer blutsaugenden Fliege aus der Familie der Hippobosciden vor. Die Art ist durch Pfeiffer, Flu, Swingle und besonders Porter genau untersucht worden. Sie ist in vielen Punkten sehr trypanosomenähnlich. Vor allem interessant ist die Tatsache, daß sie — wie sorgfältig festgestellt — die Eier des Insekts infiziert und in dieser Weise durch Vererbung übertragen wird.
Leptomonas Aenophthalmi Mackinnon und L. hystrichopsyllae Mackinnon
sind in Flöhen gefunden worden.
Leptomonas Davidi Lafont.
(Ann. Inst. Pasteur. Vol. 24. 1910. p. 204.)
Diese Art ist besonders interessant, weil sie eine der wenigen Protozoenformen darstellt, die bei höheren Pflanzen parasitieren. Sie ist stark metabol, mißt 18,5 µ in der Länge, 1,6 µ in der Breite, die Geißel ist 10–12 µ lang. Die Euphorbiaceen (E. pilulifera, thymifolia und hypericifolia) enthalten den Parasiten im Milchsaft, manchmal in enormen Massen, in Reinkultur. Die Leptomonade ist angeblich für die Pflanzen pathogen! Sie soll durch eine an den Euphorbien saugende Baumwanze, eine Lygaeide (Nysius euphorbiae Horvath) übertragen werden! Sie wurde gefunden in Mauritius, Réunion, Madagascar (Lafont), in Westafrika (Bouet und Rouband) und in Indien bei Madras auf E. pilulifera (durch Donovan), neuerdings auch am Congo bei E. indica, bei welcher trotz starker Infektion keine Krankheitserscheinungen konstatiert wurden.
Gattung: Trypanosoma Gruby.
A. Das Froschtrypanosoma als Typus der Gattung.
1. Trypanosoma rotatorium (Mayer).
|
1843.
|
Tr. sanguinis Gruby. In: Compt.
Rend. Acad. Scienc. Vol. 17. Paris. (Nov.)
|
|
1843.
|
Amoeba rotatoria Mayer, Aug. Fr.
Jos. K. Spicilegium observationum anat. de organo electrico et de
haematozois. Bonn. (Juli.)
|
|
1844.
|
Trypanosoma sanguinis Gruby. In:
Ann. Sci. Nat. Sér. III. Vol. 1. p. 105. T. I. Fig. 1–7.
|
|
1870.
|
Monas rotatorium Lieberkühn,
Ueber Bewegungserscheinungen der Zellen. Marburg und Leipzig.
|
|
1871.
|
Undulina ranarum Ray Lankester.
In: Qu. Journ. Micr. Sci. N. S. Vol. 44.
|
|
1872.
|
Paramecioides costatus Grassi.
In: Arch. Ital. Biol. Vol. 3.
|
|
1889.
|
Danilewsky, B., Parasitologie
comparée du Sang. Charkow.
|
|
1906.
|
França et
Athias, Recherches sur les Trypanosomes des
Amphibiens. In: Arch. Inst. Camara Pestana. Vol. I.
|
|
Vergl. ferner: Bouet No. 283 der
Liste p. 273.
|
|
|
1906.
|
1910 Doflein, Studien zur
Naturgeschichte der Protozoen VI. Experimentelle Studien über die
Trypanosomen des Frosches. In: Arch. f. Protistenk. Vol. 19. p. 207.
|
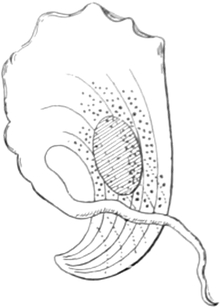
Schon vor den genannten Autoren hatte man dieses Trypanosoma gesehen; so schildert es Gluge 1842 in einer Weise, welche es ziemlich gut erkennen läßt. Später wurde es von vielen Autoren gesehen und ziemlich eingehend beschrieben, so von Wedl (1849), Lieberkühn (1854), Siebold u. a. und neuerdings ist es von einer ganzen [S. 421]Anzahl von Autoren untersucht worden (Laveran und Mesnil, Bouet, França und Athias, Dutton und Todd u. a.).
Trotzdem sind unsere Kenntnisse von diesem Organismus geringere geblieben, als es bei den Trypanosomen der Säugetiere der Fall ist.
T. rotatorium hat einen breiteren Körper und eine breitere undulierende Membran, als die meisten sonstigen Trypanosomaarten. Es besitzt ein granuliertes Protoplasma und einen ziemlich großen deutlichen Kern (Fig. 357, 358). Sehr deutlich ist eine Längsstreifung erkennbar, welche auf das Vorhandensein von Myonemen zurückgeführt wird, was aber nicht zuzutreffen scheint. Der Blepharoplast liegt hinter oder neben dem Kern.
Während das eine Ende eine ziemlich breite Form hat, läuft das andere gewöhnlich in eine sehr kurze Geißel aus. Es kommen scheinbar verschiedene Formen vor, deren Bedeutung nicht feststeht, jedenfalls finden sich im selben Frosch sehr verschieden gestaltete Individuen. Das Tier verändert ferner unter den künstlichen Bedingungen, denen es beim Mikroskopieren ausgesetzt ist, seine Form sehr erheblich, so daß es schwer zu sagen ist, welche von den beobachteten Gestalten der normalen Form entspricht.
Danilewsky glaubte den verschiedenen Formen und den verschiedenen Altersstadien den Wert von Varietäten, Arten und Gattungen zuerkennen zu dürfen. Seine Darstellungen lassen schwer erkennen, ob er tatsächlich, wie er schreibt, Längsteilung, Querteilung und Segmentation wahrgenommen hat. Wahrscheinlich hat er Aehnliches [S. 422]gesehen, wie es unten für T. Lewisi beschrieben wird und wie es unten nach Dutton, Todd und Tobey angegeben wird.
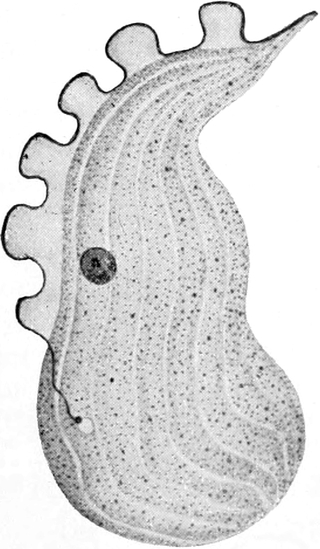
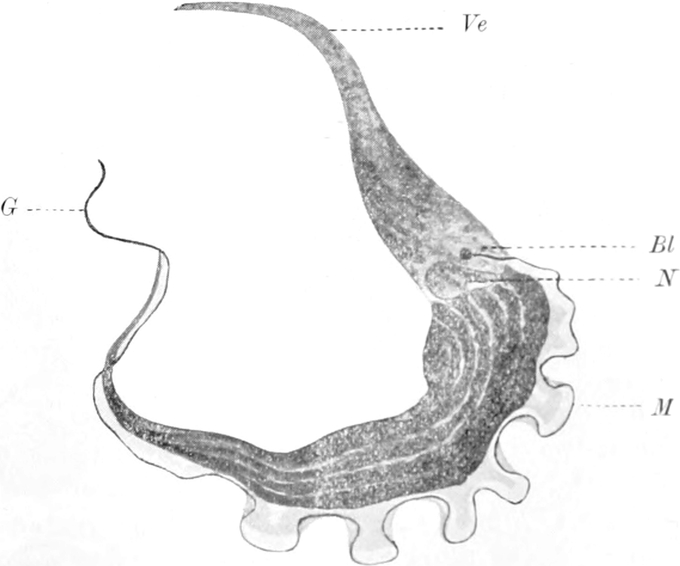
Die Länge des Tiers beträgt 40–80 µ, seine Breite 5–40 µ, der Geißelfortsatz ist 10–12 µ lang. Bei seinen rotierenden Bewegungen vermag es etwa 4 Umdrehungen in der Sekunde zu vollbringen, so daß vor allem unter dem Mikroskop der Eindruck eines sehr raschen Wirbelns zustande kommt.
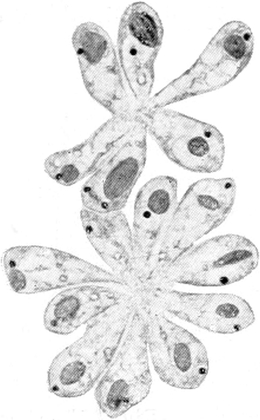
Die Art kommt in Rana esculenta, R. temporaria und Hyla arborea vor. Auch in Froschlarven ist sie gesehen worden. Sie erscheint in Europa weit verbreitet zu sein. In den Fröschen ist sie im Frühjahr und Sommer häufig, verschwindet (?) aber in der Regel bei uns im Winter.
Die Art der Uebertragung ist noch vollkommen unbekannt. Es wird vermutet, daß Blutegel als Ueberträger wirken.
[S. 423]
Es ist gelungen, Trypanosoma rotatorium in künstlichen Kulturen zu züchten (Lewis und Williams, Bouet, Doflein), und zwar gab das Kulturmedium von Novy und MacNeal die besten Resultate. Wenige Tage nach der Aussaat von infiziertem Froschblut in die Kulturgefäße finden sich massenhaft Trypanosomen im Kondenswasser; diese weichen, während sie in den ersten Tagen den massigen Bluttrypanosomen des Frosches noch sehr ähneln können, allmählich immer mehr von diesen ab, werden kleiner, schlank, langgestreckt, langgeißelig (Fig. 361 u. 362); auch wandert der Blepharoplast in die Region vor dem Kern, welcher selbst im Körper verschiedene Lagen, bald weiter vorn, bald weiter hinten, haben kann. Solche Formen messen mit der Geißel 25 µ, Länge, 0,2 µ in der Breite. Während bei manchen Individuen eine undulierende Membran sich nachweisen läßt, ist sie bei anderen, welche ganz Herpetomonasarten gleichen, nicht mehr aufzufinden. Es finden sich in älteren Kulturen auch plumpere Formen, zum Teil sogar kugelförmige Individuen, welche zu Kolonien vereinigt sein können, welche sogar in der Gelatine wachsen und sich durch einen eigenartigen opaken Glanz bemerkbar machen. Solche Stadien haben eine sehr kurze Geißel und im Plasma stark lichtbrechende Granulationen. Bouet hielt sie für Uebergänge zu Ruhestadien. Ihr Durchmesser beträgt 5 µ. Sowohl die schlanken als die kugligen Stadien vermehren sich durch Längsteilung.
Es kommt Agglutination mit dem Vorder- und Hinterende bei diesen Kulturtrypanosomen vor; sie kann durch Zusatz von Serum eines infizierten Frosches herbeigeführt werden.
Wenn die hier beschriebene Umzüchtung der Form sich bestätigen läßt, so liegt eine sehr wichtig Beobachtung vor. Die Kulturtrypanosomen haben allerdings keine Neuinfektion ermöglicht.
Dutton, Todd und Tobey haben in afrikanischen Fröschen ähnliche Stadien beobachtet, welche durch multiple Teilung (32 und mehr) aus großen Exemplaren des T. rotatorium entstanden. Sie glauben, daß diese „Schwarmbildung“ (nach Danilewsky) nicht nur die verschiedenen, bei Fröschen beschriebenen Formen als Entwicklungsstadien zu vereinigen gestattet, sondern auch auf Vorkommnisse bei anderen Trypanosomen Licht wirft.
In Fröschen wurde nämlich ferner eine ganze Anzahl anderer Trypanosomen gefunden, deren Beziehungen zu Trypanosoma rotatorium Mayer nicht aufgeklärt sind. Zunächst Formen, welche in Größe und Form ihm sehr ähnlich sind. França und Athias sind der Ansicht, daß die verschiedenen Formen im Blut unserer Frösche zu zwei Arten gehören, außer zu T. rotatorium zu T. costatum Mayer. Die in exotischen Fröschen gefundenen großen Trypanosomen, wie T. mega Dutton und Todd, ziehen manche zu T. rotatorium, während andere besondere Arten in ihnen sehen.
Bei Rana esculenta haben in Portugal França und Athias zwei mittelgroße Trypanosomenformen beobachtet, welche sie T. undulans F. et A. und T. elegans F. et A. nennen.
Ferner wurden in Algier, Tunis, Portugal, Frankreich ziemlich kleine Trypanosomen bei Rana esculenta nachgewiesen. Sergent hat eine T. Lewisi ähnliche schlanke Form von 25–30 µ Länge und 3 µ Breite unter dem Namen T. inopinatum Serg. beschrieben. Aus einem Anuren aus Transvaal hat Laveran eine Form von ähnlichen [S. 424]Dimensionen, aber mit Anhäufung färbbarer Granulationen im vorderen Körperdrittel unter dem Namen T. nelspruitense beschrieben.
B. Säugetiertrypanosomen.
2. Trypanosoma Lewisi (Kent).
|
1882.
|
Herpetomonas Lewisi Kent, Manual
of Infusoria. p. 245.
|
|
1889.
|
Trypanosoma Lewisi Danilewsky,
Parasitologie comparée du sang. Charkow.
|
|
1891.
|
Trypanosoma Lewisi Labbé, Bull.
Soc. Zool. France. Vol. 16. p. 229.
|
|
1886.
|
Trichomonas Lewisi Crookshank,
Journ. Roy. Microsc. Soc. Ser. II. Vol. 6 (2). p. 913.
|
|
1887.
|
Haematomonas Lewisi Mitrophanow,
Biol. Centralbl. Vol. 3.
|
|
1899.
|
Rabinowitsch u.
Kempner, Beitrag zur Kenntnis der Blutparasiten,
speziell der Rattentrypanosomen. In: Zeitschr. f. Hyg. u. Infektkr. Vol.
30. p. 251.
|
|
1900.
|
v. Wasielewski u.
Senn, Beiträge zur Kenntnis der Flagellaten des
Rattenbluts. Ibid. Vol. 33. p. 444.
|
|
1901.
|
Trypanosoma Lewisi Doflein,
Protozoen als Parasiten und Krankheitserreger. 1. Aufl. p. 60.
|
|
1901.
|
Laveran u.
Mesnil, Recherches morphol. et expériment. sur le
Trypanosome des rats (Tr. Lewisi Kent). In: Ann. Inst. Pasteur. Vol. 15.
|
|
1905.
|
v. Prowazek, S., Studien über
Säugetiertrypanosomen I. In: Arb. Kais. Ges. Amt. Vol. 22. p. 1.
|
|
1908.
|
Salvin-Moore and
Breinl, The life-history of Trypanosoma Lewisi.
In: Ann. trop. Med. Parasitol. Vol. 1. p. 441.
|
|
1909.
|
Minchin, The structure of Tryp.
Lew. in relation to microscopical technique. In: Quart. Journ. micr. Sci.
Vol. 53. p 755.
|
|
1909.
|
Baldrey, Versuche und
Beobachtungen über die Entwicklung von Tryp. Lew. in der Rattenlaus
Haematopinus spinulosus. In: Arch. f. Protistenk. Vol. 15. p. 326.
|
|
1910.
|
Minchin und
Thomson, The transmission of Tr. Lewisi by the
rat-flea. In: Proc. Roy. Society. No. B 555. März 1910. p. 273.
|
Schon von Gros 1845, Chaussat 1850 und anderen waren im Blut der Ratten und Hamster merkwürdige Parasiten gefunden worden, welche lange Zeit den Gegenstand von Kontroversen bildeten. Während die einen sie für Amöben, Flagellaten usw. erklärten, gab es andere, welche in ihnen keine selbständigen Organismen erkennen wollten, sondern sie für Spermatozoen, oder gar, wie Siebold, für Flimmerläppchen hielten, welche sich irgendwo von den Wandungen der Blut- oder Lymphgefäßsysteme losgerissen haben sollten.
Nach längerer Pause erwachte das Interesse für diesen Organismus wieder, und eine Reihe von Notizen beschäftigte sich mit ihm, ohne die älteren Arbeiten zu erwähnen oder zu kennen. Lewis (1879), Wittich (1881), Robert Koch (1881), Crookshank (1887) veröffentlichten mehrere Mitteilungen über das Trypanosoma Lewisi, welchem Kent 1882 seinen Namen gab; doch stellte er es zur Gattung Herpetomonas, welche nach der Diagnose keine undulierende Membran besitzen soll. Mehr gelegentlich beschäftigten sich Labbé, Danilewski, Mitrophanow mit der Art, während sämtliche Untersuchungen der Surrakrankheit ebenfalls auf sie Bezug nahmen. Das Interesse wurde durch die Untersuchungen der Surra- und der Tsetsefliegenseuchen wachgehalten, und in neuester Zeit haben die Beobachtungen von Koch, Rouget u. a., besonders aber die wichtigen Arbeiten von Kempner und Rabinowitsch, von Senn und Wasielewski, welche die Vermehrungsweise bekannt machten, schließlich von Prowazek sowie von Laveran und Mesnil und zuletzt durch Minchin, unsere Kenntnisse bedeutend erweitert. [S. 425]Novy und McNeal haben die künstliche Kultur auf Nährboden als erste durchgeführt und damit einen wichtigen Fortschritt im Studium der Blutparasiten angebahnt.
Das Rattentrypanosoma ist lanzettförmig gestaltet, das Hinterende läuft in einen spitzen, schnabelförmigen Fortsatz aus (Fig. 363 A); es zeigt ein sehr feinkörniges Entoplasma, um welches sich eine dünne, hyaline, aber deutlich erkennbare Ektoplasmaschicht (Periplast) legt. Aus der letzteren entspringen Geißel und undulierende Membran. Erstere ist ungefähr so lang wie der Zellleib selbst; sie entspringt am Hinterende des Tieres am Blepharoplasten, setzt sich als Verdickung des Randes der undulierenden Membran nach vorn fort, um erst am Vorderende des Tieres freizuwerden und als Geißel in das umgebende Medium hinauszuragen. Die undulierende Membran ist schmal. Der Blepharoplast ist entweder rund oder länglich stabförmig, was vielleicht darauf zurückzuführen ist, daß er scheibenförmig und bald von der Seite bald von der Fläche sichtbar ist.
Im vorderen Teile des Tieres liegt der ziemlich große Kern, welcher stark färbbar, und mit einem chromatischen dichten Netzwerk erfüllt ist. Eine kontraktile Vakuole ist nicht bekannt. Die Länge des Trypanosoma Lewisi schwankt zwischen 7 und 30 µ (meist ca. 15 µ ohne Geißel), die Breite zwischen 2 und 3 µ.
Die Vermehrung haben Kempner und Rabinowitsch, sowie Senn und Wasielewski ziemlich eingehend untersucht. Ihre Ergebnisse sind in der Hauptsache von den zahlreichen Nachuntersuchern bestätigt worden. Außer der typischen Längszweiteilung findet multiple Teilung unter Rosettenbildung statt (s. Fig. 363 B und C und Fig. 339 B). Bei letzterer entstehen bis zu 16 junge Individuen, welche [S. 426]nach der Loslösung sich von den alten dadurch unterscheiden, daß bei ihnen der Blepharoplast vor dem Kern, zwischen ihm und dem Geißelende liegt und später nach hinten wandert. Die Zweiteilung erfolgt auch oft in allen möglichen Uebergangsformen zur Knospung, indem das eine Teilstück in verschiedenem Maß kleiner ausfällt als das andere (Fig. 338, S. 391).
Besonders nach einer Neuinfektion wachsen die Individuen rasch heran und teilen sich geradezu stürmisch, wobei vielfach die Bilder multipler Teilung sich zeigen, und zwar hauptsächlich in den inneren Organen Leber, Milz und Knochenmark.
Rabinowitsch und Kempner, welche beobachtet hatten, daß mit infizierten Ratten zusammengesperrte, gesunde Ratten nach ca. 14 Tagen in ihrem Blut Trypanosomen zeigen, vermuteten Uebertragung durch die Flöhe (Ceratophyllus fasciatus Bosc.) oder Läuse der Ratten. Jene Forscher, ferner Laveran und Mesnil, Prowazek u. a. zeigten, daß in solchen tatsächlich die Trypanosomen vorkommen, und daß sie durch Injektion in Kochsalzlösung zerzupfter Flöhe oder Läuse auf neue Ratten übertragen werden können. Auch dadurch, daß man gesunde Ratten durch Flöhe stechen ließ, welche an infizierten Ratten gesogen hatten, gelang Uebertragung. Der entsprechende Versuch mit Läusen gelang nicht.
Dagegen fand Prowazek in einer häufigen Rattenlaus (Haematopinus spinulosus Burm., Fig. 365 A) Stadien, welche er für Gameten hält. Schon im Rattenblut lassen sich nach verschiedenen Autoren gewisse „geschlechtliche“ Unterschiede an den Trypanosomen entdecken, wenn sie auch nicht so ausgesprochen sind, wie in den oben angeführten typischen Fällen (S. 392). Für die Gameten aus dem Darmkanal der Rattenlaus gibt Prowazek Reifungserscheinungen, Kopulation und Bildung eines Ookineten an (vgl. S. 394). Letztere wandeln sich wieder zu Trypanosomen um (Fig. 342, S. 394), welche sich vermehren. Die Deszendenten unterscheiden sich durch ihre schlanke Gestalt, die Lage des Kerns im hinteren Teil des Körpers und des Blepharoplasten vor dem Kern. (Sie gleichen darin den Formen, welche Tr. Lewisi in der künstlichen Kultur auf Nährboden annimmt.)
Die verschiedenen Stadien im Darm von Haematopinus werden bei neuerlichem Saugen des Insekts allmählich nach hinten geschoben und gelangen in der Region der Malpighischen Gefäße zur Ruhe. Dort wandeln sich zahlreiche Individuen zu unbeweglichen Stadien [S. 427]um, welche sehr denjenigen von Herpetomonas gleichen: Prowazek fand sie in dieser Region an den Zellen haften oder zwischen solchen eingedrungen. Andere Individuen durchbohren die Darmwand, geraten in Leibeshöhle und Blutbahn und in die Umgebung des Larynx, von wo sie bei einem neuen Saugakt in die Blutbahn der Ratte gelangen können. Einmal fand Prowazek auch ein Lausei infiziert, was auf gelegentliche Vererbung des Parasiten hinweist. Vieles an diesem Zeugungskreis scheint noch recht problematisch zu sein. Vor allem muß auffallen, daß sich die Befruchtungsstadien so sehr selten finden lassen. Seither ist die Uebertragung sowohl durch Ceratophyllus als auch durch Haematopinus bestätigt worden; auch der Floh Ctenophthalmus agyrtes kann T. Lewisi übertragen. Ceratophyllus ist, nachdem er an der infizierten Ratte gesaugt hat, ca. 6 Tage nicht infektiös; dann beginnt er die Infektion zu übertragen und bleibt mindestens 6 Wochen fähig, die Parasiten immer wieder auf neue Wirte zu übertragen. Die Vermehrung der Parasiten beginnt im Rectum und schreitet nach vorn vor. Geschlechtliche Vorgänge wurden auch durch die neuen Untersuchungen nicht festgestellt.
Vielleicht ist Leptomonas ctenophthalmi von T. Lewisi abzuleiten, so daß beide Formen identisch wären.
Dauerformen sind bisher nicht beobachtet worden. Es ist festgestellt worden (in Indien), daß der Grad der Infektion und die Zahl der infizierten Tiere nach den Jahreszeiten schwankt, so daß für die Entwicklung wahrscheinlich eine optimale Temperatur anzunehmen ist.
Die Art lebt im Blut von Ratten (Mus rattus, M. decumanus, M. rufescens); sie ist bisher in Europa (Deutschland, England, Frankreich, Italien, Rußland), in Asien (Indien, Java, Philippinen, Japan), Afrika (Deutsch-Ostafrika, Gambia, Kamerun, Kapland und Algier) und Amerika (Vereinigte Staaten, Brasilien, Argentinien) nachgewiesen worden. Man kann also annehmen, daß der Parasit, wie seine Wirte, kosmopolitische Verbreitung hat.
In den befallenen Tieren bewohnt er das Blut (der Venen und Arterien): bei den Ratten führt er bisweilen Erkrankungen und Sterben herbei, in den meisten Fällen hat man ihn jedoch bei anscheinend gesunden Ratten gefunden. Er ist bei den wilden Ratten häufig, bei den zahmen, besonders den weißen Ratten, selten, obwohl dieselben wie auch die weißen Mäuse, für die Infektion empfänglich sind. Dagegen [S. 428]konnte das Trypanosoma Lewisi bei den ersten Versuchen weder auf gewöhnliche Mäuse noch auf irgendeine andere Tierart mit dauerndem Erfolg übertragen werden. Bei Meerschweinchen entsteht eine schwache Infektion, welche sehr schnell vorübergeht. Lingard gibt an, daß ihm die Uebertragung auf Nesokia bengalensis Gray var. kok Gray gelungen sei (?). Selbst der Hamster (Cricetus cricetus L.), welcher einen außerordentlich ähnlichen Parasiten (Tr. criceti [Lühe]) beherbergt, kann nicht mit Tr. Lewisi (K.) infiziert werden. Die neueren Versuche zeigen, daß die Virulenz von Tr. Lewisi durch abwechselnde Kultur auf künstlichen Nährböden und nachfolgende Injektion in Versuchstiere so gesteigert werden kann, daß gewöhnliche Mäuse und auch andere Nager infiziert werden können (Roudsky). So liegt denn der Verdacht nahe, daß die erwähnten und die sogleich anzuführenden Formen aus verschiedenen Nagetieren keine distinkten Species sind.
Die Ratten erkranken in der Regel an der Infektion durch Tr. Lewisi nicht sehr schwer, sie werden aber nach Ueberstehen der Infektion immun gegen neue Infektionen. Diese aktive Immunität hält ca. 3 Monate an. Das Serum solcher Tiere verleiht passive Immunität, indem es gleichzeitig mit den Trypanosomen oder kurz danach injiziert, deren Entwicklung verhütet. Heilerfolge sind jedoch nicht erzielt worden.
In manchen Fällen wurden 25–29 Proz. der eingefangenen wilden Tiere infiziert gefunden, in anderen ein weit geringerer Prozentsatz. Es scheinen also unter gewissen Bedingungen Epidemien auszubrechen.
Trypanosoma Duttoni Thiroux, welches am Senegal und Gambia in Mäusen gefunden wurde, ist dem Tr. Lewisi sehr ähnlich. Doch liegt bei ihm der Blepharoplast vor dem Kern. Es agglutiniert auf den künstlichen Nährböden in Rosetten, wobei die Geißelenden verklebt sind. Pricolo hat eine sehr ähnliche Form in Rom bei Mäusen gefunden, auch in den Flöhen der Mäuse nachgewiesen. Diese Form geht im Gegensatz zu Tr. Lewisi vom trächtigen Muttertier auf die Föten über. In den Föten hat Pricolo eigenartige Stadien gefunden, welche er als Zygoten („Oocysten“) deutet (??). Trypanosoma Grosi Laveran und Pettit aus Mus silvaticus ist nicht übertragbar auf weiße Ratten und Mäuse.
Sehr ähnlich dem T. Lewisi sind ferner T. Blanchardi Brumpt aus dem Siebenschläfer (Myoxus glis, T. microti Laveran u. Pettit aus Microtus arvalis Pallos und Myoxus nitela) (wird nach Laveran und Pettit durch den Floh Ceratophyllus Laverani Rothsch. übertragen), T. cuniculi Blanch., dann Formen aus Haselmaus, Maulwurf, Meerschweinchen, Palmhörnchen und einigen Fledermäusen, welche bisher ebenfalls streng auf ihre Wirtsspecies beschränkt gefunden wurden.
3. Trypanosoma Theileri Bruce.
|
1902.
|
März. Trypanosoma Theileri Bruce,
Note on discovery of a new Trypanosome. In: Lancet. Vol. 1. p. 664.
|
|
1902.
|
Nov. Tr. transvaaliense Laveran,
Sur un nouveau trypanosome des bovidés. In: C. R. Acad. Sci. Paris. Vol.
134. p. 512.
|
|
1902.
|
Nov. Tr. transvaaliense Laveran,
Au Sujet de deux trypanosomes des bovidés du Transvaal. Ibid. Vol. 135.
1902. p. 717. Tr. Lingardi Raph. Blanchard.
|
|
[S. 429]
1906.
|
Tr. Theileri Lühe. In Mense,
Handbuch der Tropenkrankheiten. Vol. 3. p. 133.
|
|
1906.
|
1906 Luhs, Trypanosoma Theileri
in Transkaukasien. In: Arch. Parasitol. Vol. 10. p. 171.
|
Diese Trypanosomenform ist vor allen bisher beschriebenen Trypanosomen der Säugetiere durch ihre Größe ausgezeichnet, welche die Dimensionen von Tr. Brucei um das 2–3-fache übertreffen kann. Die größten Formen messen 60–70 µ in der Länge, 4–5 µ in der Breite, während die entsprechenden Maße für die kleinsten 25–30 µ und 2–3 µ betragen. Ferner ist sehr charakteristisch das zugespitzte, oft lang, fast fadenförmig ausgezogene Hinterende (vgl. Fig. 331, S. 387). Der Blepharoplast, oval- oder biskuitförmig, liegt in größerer Entfernung vom Hinterende und ist quer zur Länge des Tieres gestellt. In der Regel liegt der Kern ungefähr in der Mitte des Körpers, doch scheint er relativ leicht beweglich zu sein, da er manchmal in der Nähe des Blepharoplasten oder gar hinter ihm gefunden wird. (Solche Formen waren von Laveran für eine besondere Art gehalten und als Tr. transvaaliense bezeichnet worden.)
Die undulierende Membran ist schmal, aber sehr deutlich ausgebildet; die Geißel meist lang, deutlich am Ende abgestumpft, die Myoneme sind sehr gut wahrnehmbar.
Trypanosoma Theileri ist bisher nur im Blut von Rindern vorgefunden worden. Theiler ist der Ansicht, daß die natürliche Uebertragung durch die Lausfliege Hippobosca rufipes v. Olf. vollzogen wird. Experimentell konnte jedenfalls durch diese Stechfliege die Infektion erzielt werden.
Während Rinder experimentell leicht zu infizieren sind, gelang Theiler die Uebertragung auf andere Tiere bisher nicht. Kudicke hat in Daressalaam bei einem Affen, Dutton, Kinghorn und Todd am Kongo bei einer Antilope (Tragelaphus scriptus) eine ähnliche Form gefunden. Vielleicht ist dieselbe der von Bruce beschriebenen T. ingens nahestehend, welche auch aus einer Antilope stammt (gefunden in „reedbuck, bushbuck“ und im Rind). Es ist 122 µ lang und 7–10 µ breit.
Trypanosoma Theileri ist in Südafrika weit verbreitet: Kapkolonie, Orange, Transvaal, Natal und Rhodesia. Aehnliche Formen sind in Algier, Togo und Ostafrika gefunden worden. Wahrscheinlich ist Tr. Theileri nicht pathogen.
T. Theileri ist der Repräsentant einer ganzen Gruppe von Säugetiertrypanosomen, von denen wir bisher noch nicht wissen, ob sie eine einheitliche weltweit verbreitete Art darstellen, was wahrscheinlich ist, oder ob sie in verschiedene Arten zerfallen. Alle hierher gehörigen Formen sind durch ihre Größe, das spitze, verlängerte Hinterende und den kleinen, kugligen, peripher gelagerten Blepharoplast ausgezeichnet. Ferner ist hervorzuheben, daß der Kern etwa in der Mitte des Körpers liegt. Von den hierher gehörigen Formen erwähne ich folgende:
a) Trypanosoma Franki Frosch.
|
1909.
|
Frank, P., Ueber den Befund von
Trypanosomen bei einem in Stein-Wingert (Westerwald, Reg.-Bez. Wiesbaden)
verendeten Rinde. In: Zeitschr. f. Infektionskrankh., parasit. Krankh. u.
Hyg. d. Haustiere. Vol. 5. p. 313.
|
|
1909.
|
Frosch, P., und
Frank, P., Ueber die Bedeutung des Befundes
rinderpathogener Trypanosomen in Deutschland. Ibid. p. 330.
|
|
[S. 430]
1909.
|
Frosch, P., Aetiologische
Ermittelungen über das Trypanosoma Franki. Ibid. p. 316.
|
|
1909.
|
Knuth, P., Ueber die Morphologie
des Trypanosoma Franki. Ibid. Vol. 6. p. 39.
|
|
1909.
|
Mayer, M., Ueber Trypanosoma
Theileri und diesem verwandte Rindertrypanosomen. Ibid. p. 46.
|
Das Trypanosoma Franki, welches zuerst im Westerwald gefunden wurde, ist 20–40 µ lang und etwa 2 µ breit. Obwohl bei dem zuerst beobachteten Fall die Massenhaftigkeit der Trypanosomen den Schluß auf pathogene Bedeutung nahelegte, scheint es nach neueren Untersuchungen sich doch eher um einen harmlosen Parasiten zu handeln. Der Parasit ist meist nur durch Anlegung von Kulturen nachzuweisen, da er nur im Anfang der Infektion in größerer Anzahl auftritt, um bald ganz zu verschwinden. Bei Stalltieren findet er sich nicht, wohl aber bei Weidetieren im Juli und August, um im September wieder zu fehlen. Ueberträger Hippobosciden und Tabaniden.
Die Form ist bisher in Deutschland, England, Frankreich, Dänemark, Schweden beobachtet worden.
b) T. himalayanum Lingard. Länge 44–70 µ.
c) T. indicum Lingard. Länge 36–51 µ.
|
1904.
|
Durand and
Holmes, A Trypanosoma found in the blood of cattle
in India. In: Journ. comp. Path. and Ther. Vol. 17.
|
|
1907.
|
Lingard, Different species of
Trypanosomata observed in bovines in India. In: Journ. trop. vet. Sc.
Vol. 2. p. 4.
|
In Indien im Gebirge und in der Ebene gefunden bei Rindern.
d) T. Falshawi Mayer. 72–84 µ lang, in Singapore bei Rindern gefunden. Länge ca. 79 µ.
e) T. Muktesari Lingard. Länge ca. 38 µ. Indien bei Rindern.
f) T. Scheini ..... Länge 45–66 µ. Indo-China bei Rindern.
Nach den Angaben von Peace kann man wohl annehmen, daß die indischen Arten identisch mit T. Theileri sind.
g) T. americanum Cr.
|
1909.
|
T. americanum Howard Crawley. A
Trypanosoma which appears in cultures made from the blood of american
cattle. Bureau anim. Indust. Bull. 119. Oct. 1909. p. 21.
|
Länge bis ca. 60 µ. Im Blut gesund erscheinender nordamerikanischer Rinder. Gefunden bei der Nachuntersuchung des angeblichen Trypanosomastadiums von Piroplasma, welches Mijayima beschrieben hatte.
4. Trypanosoma Brucei Plimmer und Bradford. Der Erreger der Nagana.
|
1897.
|
Bruce, D., Further Report on the
Tsetsefly-Disease or Nagana in Zululand. London.
|
|
1898.
|
Kanthack,
Durham and Blandford,
Ueber die Nagana- oder die Tse-Tse-Fliegenkrankheit. Hygienische Rundschau.
Vol. 8.
|
|
1898.
|
Koch, Rob., Reiseberichte über
Rinderpest usw. Tsetse- oder Surrakrankheit usw. Berlin.
|
|
[S. 431]
1899.
|
Plimmer und
Bradford. In: Centralblatt für Bakteriologie und
Parasitenkunde. Abt. 1. Vol. 26. p. 440. (Vorläufige Mitteilung.)
|
Die erste Mitteilung über den Parasiten stammt von Bruce, Dav. Tsetsefly-Disease or Nagana in Zululand. Durban 1894.
T. Brucei ist von Bruce entdeckt und als Erreger der schon Livingstone bekannten Krankheit (Nagana oder Tsetse-Krankheit) der Huftiere nachgewiesen worden.
T. Brucei hat eine wurmähnliche Form, hat am vorderen Ende ein langes Flagellum, den Körper entlang läuft eine undulierende Membran. Das Hinterende ist jedoch nach der übereinstimmenden Darlegung von Plimmer und Bradford und von R. Koch und vielen neueren Beobachtern relativ stumpf (s. Fig. 367 und 368), die Gestalt ist plumper, die undulierende Membran breiter, als bei T. Lewisi.
Ferner ist charakteristisch der in der Mitte des Körpers gelegene Kern und der weit hinten gelegene Blepharoplast[27]. Dicht vor der Geißelwurzel liegt eine Vakuole.
Trypanosoma Brucei hat eine Länge von 25–35 µ, eine Breite von 1,5–2,5 µ. Das Plasma ist deutlich alveolär gebaut, das Entoplasma enthält zahlreiche Granulationen, welche sich mit den üblichen Blutfarbstoffen stark färben.
Sehr charakteristisch ist die Bewegung dieser Art, welche unter dem Mikroskop als heftige Rotation und hauptsächlich Schlängelung ohne wesentliche Lokomotion erfolgt, so daß man ein Individuum oft lange Zeit beobachten kann (vgl. dagegen T. Evansi S. 434, und vor allem T. vivax S. 437).
Die Teilung erfolgt meist als ganz regelmäßige Zweiteilung; die Dauer des Teilungsvorgangs ist nach Prowazek 4 Stunden, manchmal beginnt in dem einen Tochtertier eine neue Teilung, ehe die Trennung vom Schwestertier erfolgt ist. Rosettenbildung ist jedoch nicht beobachtet worden.
Auch für T. Brucei werden die oben (S. 392) bezeichneten drei Formen, die indifferenten und die geschlechtlichen, im Blut des Wirbeltierwirts angegeben (zuerst von Ziemann, dann von Prowazek u. a.). Außerdem gibt Koch an, daß in verschiedenen Wirten die Parasiten verschiedene Formen annehmen, indem sie in Hunden, Ratten und Rindern klein mit stumpfem Hinterende, in Pferden groß mit relativ spitzem Hinterende, in Hunden und Kaninchen im Besitz von auffallend langen, in Schweinen von auffallend kurzen Geißeln sein [S. 432]sollen. Laveran und Mesnil geben Größenverschiedenheiten in verschiedenen Wirten an.
Das Trypanosoma Brucei wird durch die Tsetsefliegen übertragen, und zwar kommen außer Glossina morsitans Westw. die ihr sehr nahestehenden Arten Glossina longipalpis Wied., G. pallidipes Westw. und G. tachinoides Westw. in Betracht. Auch wurden G. fusca Walk. und G. longipennis Corti verdächtigt. Außer für Glossina morsitans scheint es aber nur für G. fusca und G. pallidipes sicher zu sein und eventuell auch für G. palpalis (s. unten). In Deutsch-Ostafrika ist nach R. Koch G. fusca die verbreitetste Form, welche überall in den Naganadistrikten in großer Zahl vorkommt und daher wohl die Hauptbedeutung für die Infektion besitzt.
T. Brucei findet sich im Blut von Rindern, Pferden, Zebras, Maultieren, Antilopen, Ziegen, Schafen, im Sudan auch von Kamelen, Büffeln, Hyänen; es kann auf Esel, Schweine und Hunde ebenfalls übertragen werden. Auch Ratten haben sich experimentell mit dem Parasiten infizieren lassen; ebenso andere Nagetiere (Kaninchen, Meerschweinchen, Hausmäuse, Feldmäuse [„Arvicola arvalis“], Murmeltiere, Gartenschläfer (Eliomys quercinus Ch.), ferner Igel, Katzen und Affen; nach Schilling ist es auch möglich, Gänse (nach neueren auch Hühner) zu infizieren; jedoch scheinen nach Kochs Versuchen gewisse Eselrassen immun zu sein. Sehr nahe steht das von Bruce beim wilden Elefanten am Albertsee entdeckte T. elephantis Bruce u. Gen.
Die Krankheit ist in den verschiedensten Gebieten Afrikas gefunden worden; berüchtigt ist sie hauptsächlich durch ihre Bedeutung für Süd- und Südostafrika geworden, wo sie in ganzen Bezirken den Viehbestand ausgerottet hat. Doch ist sie auch im Westen, in Togo (Koch), in Deutsch- und Britisch-Ostafrika, in Uganda, Nubien und Somaliland verbreitet. Auch im Kongogebiet soll sie vorkommen und dort den Namen „la mouche“ führen (Scloss). Im Zululand führt sie den Namen Nagana. Die Identität mit Krankheiten, welche in Algier etc. vorkommen, ist noch nicht sichergestellt. Die Form in Togo zeichnet sich durch abweichende Immunitätsreaktionen aus, weshalb für sie eine besondere Art aufgestellt wurde, T. togolense Mesnil et Brimont. Eine andere, T. Brucei ähnliche Form fanden Kleine und Taute am Tanganjika bei Hausziegen und benannten sie als T. caprae.
[S. 433]
Ob das Trypanosoma im Körper der Glossina eine besondere Entwicklung durchmacht, oder ob eine einfache Uebertragung, gleich z. B. derjenigen des Milzbrandes durch Bremsen, vorliegt, ist noch ganz unbekannt. Doch gelingt eine Uebertragung unmittelbar nachdem die Tsetsefliege am kranken Tier saugte. Bemerkenswert ist, daß angeblich keine andere Fliege in Südafrika die Krankheit überträgt (Bruce).
Man hat von jeher die Krankheit mit der Tsetsefliege in Beziehung gebracht; denn wenn dieselbe irgendwo massenhaft auftrat, so war das Land für die Viehzucht ungeeignet. Es hat sich gezeigt, daß überall, wo in Afrika Nagana auftritt, Tsetsefliegen vorkommen. Man hat sich in Afrika schon ganz daran gewöhnt, „fly countries“ und „fly belts“ zu bezeichnen, welche infolge des Vorhandenseins von infizierten Glossinen für Vieh unbewohnbar und ohne Gefahr der Infektion nicht passierbar sind. Wie Bruce gezeigt hat, beherbergen in solchen Gegenden „die Büffel, Wildebeeste (Catoblepas gnu), Kudu (Strepsiceros capensis), Buschböcke (Tragelaphus scriptus silvaticus) und Hyänen Trypanosomen“. Offenbar überträgt die Fliege das Trypanosoma vom Wild auf die Haustiere. Nach den Beobachtungen der Viehzüchter verschwindet die Krankheit in einer Gegend, wenn das Wild aus derselben fortwandert.
Bruce konnte jedenfalls nachweisen, daß die Tsetsefliege an sich nicht giftig ist, daß man frische Fliegen selbst in sehr großer Zahl (30–35) zwei Monate lang jeden zweiten Tag an einem Hund saugen lassen konnte, ohne irgendeinen Effekt. Ließ man sie dazwischen aber nur einmal zuvor an einem kranken Tier saugen, so erfolgte sofort eine Ansteckung. Ebenso wirkte auch subkutane Injektion von trypanosomenhaltigem Blut. Diese Versuche gelingen ebenso an Eseln, Pferden und Rindern etc.
Bruce fand auch die Trypanosomen in der Fliege. Bis zu 46 Stunden nach der Fütterung fand er sie noch lebend im Rüssel der Fliege. Im Magen derselben ist das Blut fest koaguliert; nach 118 Stunden aber findet man noch lebende und bewegliche Parasiten daselbst, nach 140 Stunden aber ist der Magen leer. In dem Kot der Fliege finden sich tote Trypanosomen.
Für Hunde steht es fest, daß sie sich auch durch Fressen von Fleisch von kranken Tieren infizieren können.
Einige weitere afrikanische Tierkrankheiten sind wahrscheinlich mit der Nagana identisch oder stehen ihr jedenfalls sehr nahe. Es wird daher vermutet, daß sie ebenfalls durch T. Brucei erregt werden.
Koch, Bruce, Stuhlmann u. a. haben sich bemüht, in den Tsetsefliegen Entwicklungsstadien des T. Brucei zu finden. Was besonders von Koch und Stuhlmann im Darmtraktus von Glossina fusca gefunden wurde, erinnert zum Teil sehr an die Befunde von Minchin, Greig und Tulloch für T. gambiense bei G. palpalis. Auch für T. Brucei wurde in der Tsetse die Differenzierung in zwei extreme Formen und die bedeutende Größenzunahme nachgewiesen; ferner eine Infektion der Fliegen mit Trypanosomen, welche von den hinteren Teilen des Darms nach vorn fortschreitet und schließlich mit einer Besiedelung des Proventriculus und Rüssels der Fliege durch kleine, schlanke Trypanosomen endet. Nach Koch enthält der Rüssel oft, wenn der Darm trypanosomenfrei ist, in einem Tröpfchen wasserheller Flüssigkeit Massen von Trypanosomen; in solchen Fällen enthält auch [S. 434]der Magen zahlreiche Trypanosomen, selbst wenn gar keine roten Blutkörperchen mehr vorhanden sind. Die als Kopulation gedeuteten Stadien im Fliegendarm sehen eher wie degenerierende Teilungsstadien aus. Auch sonst machen viele der abgebildeten und beschriebenen Stadien einen nicht ganz normalen Eindruck. Das gilt auch von den von Koch beobachteten vielkernig gewordenen Individuen und den ganz kleinen abgekugelten Formen, welche er als junge Stadien deutet. Ferner hat auch Koch Herpetomonas-ähnliche Stadien beobachtet. Infektion mit den Trypanosomen aus den Tsetsen gelang nicht durch Injizieren des lebenden Materials.
Die Frage nach der Entwicklung des T. Brucei in der Tsetse ist also durchaus nicht geklärt. Doch hat Kleine nachgewiesen, daß auch bei T. Brucei eine nicht infektiöse Periode von 22 Tagen der infektiösen vorangeht (vgl. S. 396).
5. Trypanosoma Evansi (Steel). Der Erreger der Surra.
|
1885.
|
Spirochaete Evansi Steel, J. A.
In: An Investigation into an obscure and fatal disease among transport mules
in British Burma.
|
|
1880.
|
Evans. In: Report published by
the Punjab Government Military department.
|
|
1884.
|
Herpetomonas Lewisi Lewis. In:
Quart. Journ. Micr. Science (2). Vol. 24.
|
|
1887.
|
Trichomonas (subgen.) sanguinis Evansi
Crookshank. In: Journ. Roy. Microsc. Society
London.
|
|
1893.
|
Lingard, Report on Horse Surra.
Bombay.
|
|
1894/95 — Further Report on Surra. Bombay.
|
|
|
1895/96 — Report on an outbreak of Surra. Bombay.
|
|
|
1896.
|
Trypanosomum Evansi Chauvrat.
|
|
1898.
|
Koch, R., Reiseberichte über
Rinderpest usw. usw. Berlin.
|
|
1900.
|
Penning, C. A.,
Veeartseniikundige Bladen vor Neederlandsch Indië. Batavia. Deel VIII.
|
|
1903.
|
Musgrave and
Clegg, Trypanosoma and Trypanosomiasis, with
special reference to Surra in the Philippine Islands. Manila. Dpmt. of the
Interior. Bureau of Govmt. Laboratories. No. 5.
|
Diese Art wurde früher bald mit den Rattentrypanosomen, bald mit den Tsetsetrypanosomen zusammengeworfen. Von den ersteren unterscheidet sie sich durch die bedeutendere Durchschnittsgröße, von dem letzteren durch die Gestalt, wenigstens bei des typischen Epidemien. Es hat sich außerdem herausgestellt, daß weder die in Indien und Afrika, noch die in Europa vorkommenden Rattentrypanosomen sich auf andere Tiere als auf Ratten übertragen lassen. Es ist also durchaus gerechtfertigt, T. Evansi vorläufig als besondere Art festzuhalten.
T. Evansi ist nach der Darstellung von Crookshank am hinteren Ende zugespitzt, was aber durchaus nicht konstant ist. Die undulierende Membran beginnt an der Basis der Spitze, in welche das Hinterende sich verschmälert, und geht nach vorn unmerklich in das Flagellum über.
Der Kern scheint vielfach weiter vorn im Körper zu liegen als bei T. Brucei. Sonst ist im allgemeinen die Aehnlichkeit mit dem letzteren sehr groß, so daß beide Formen im Präparat nicht sicher zu unterscheiden sind. Manche Autoren halten daher Surra und Nagana (resp. T. Evansi und T. Brucei) für identisch. Wieder andere haben hervorgehoben, daß die als Surra bezeichnete Trypanosomiasis kein einheitliches Bild darbiete, so daß unter dem Sammelbegriff von T. Evansi mehrere Arten oder doch Rassen zusammengefaßt würden. So sind bei Individuen aus den Philippinen, Java, Mauritius Unterschiede gegenüber den indischen Formen gefunden worden.
[S. 435]
Trypanosoma Evansi ist 20–30 µ (im Mittel 25 µ, bei Pferden sogar bis 35 µ) lang und 1–2,5 µ breit.
Die Geißel mißt ca. 6 µ.
Die Vermehrung erfolgt in der üblichen Weise durch Zweiteilung. Rosettenbildung durch multiple Teilung scheint selten vorzukommen.
Agglomeration erfolgt mit den Hinterenden.
Die Individuen von T. Evansi sollen sich durch lebhafte Beweglichkeit auszeichnen und von T. Brucei unterscheiden.
Die Kultivierung der Surraparasiten ist auf den Novy-McNealschen Nährböden gelungen; die Kulturen haben bemerkenswerterweise ihre Virulenz verloren. Stämme von verschiedener Herkunft sollen sich in den Kulturen verschieden verhalten — nach Novy und Mc Neal findet man in den Kulturen ihres Philippinenstammes nur einzelne Tiere, nach Laveran und Mesnil bei ihrem Mauritiusmaterial auch Rosettenbildung. Ob das konstant ist und für Artverschiedenheit spricht, scheint zweifelhaft.
Trypanosoma Evansi ist im Blut von Pferden, Maultieren, Rindern, Büffeln, Kamelen, Hunden, Hyänen, selbst Elefanten nachgewiesen worden. Neuerdings ist man geneigt, die Vorkommnisse in Elefanten und besonders in Kamelen, welche bestätigt worden sind, für die Quelle der neu ausbrechenden Epidemien zu halten. Bei Kamelen dauert die Krankheit 2–4 Jahre, und in dieser ganzen Zeit stellen die Tiere Reservoirs dar, aus denen immer neue lokale Epidemien gespeist werden können.
Die künstliche Infektion gelingt bei Mäusen, Ratten, Kaninchen, Meerschweinchen, Hunden, Schafen, Ziegen, Affen (aber nicht bei Pavianen); sogar einen fliegenden Hund (Pteropus medius Temm.) zu infizieren gelang Laveran. Doch sind diese verschiedenen Tierarten in verschieden hohem Grad für die Infektion empfänglich. Während in Mauritius bei der großen Seuche (1902) von erkrankten Pferden 100 Proz. zugrunde gingen, betrug die Sterblichkeit bei den Rindern nur 25 Proz. Mäuse und Ratten sind sehr empfänglich, bei Meerschweinchen und Kaninchen ist die Erkrankung leichter, Ziegen und Schafe hielt man sogar längere Zeit für unempfänglich.
Auch bei T. Evansi werden Fliegen als Ueberträger angenommen; doch ist noch strittig, welche Formen die natürlichen Vermittler der Infektion sind. Im allgemeinen werden Tabaniden (Tabanusarten, T. tropicus, T. lineola, ferner Haematobia exigua de Meig, eventuell auch Chrysopsarten) beschuldigt, doch scheinen daneben auch Stomoxysarten, [S. 436]vor allem St. calcitrans und St. nigra in Betracht zu kommen. Mit verschiedenen dieser Formen gelang künstlich eingeleitete Uebertragung, doch gelang sie auch mit Flöhen (Musgrave und Clegg).
Die Surra und mit ihr T. Evansi ist in Indien, Hinterindien, Insulinde (besonders Java) und auf den Philippinen verbreitet. Daneben ist sie auch vielfach in englische Kolonien verschleppt: Australien, Mauritius, vielleicht auch schon in viele Gegenden Afrikas; besonders in Ostafrika glaubt man neben Nagana Surra unterscheiden zu müssen.
Die unter dem Namen El Debab in Algerien (Sergent) und Mbori im Sudan (Cazalbou) herrschenden Seuchen der Kamele scheinen ebenfalls mit Surra identisch und dort eingeschleppt (?) zu sein. Auch bei diesen Seuchen gelten Tabaniden als Ueberträger.
6. Trypanosoma dimorphon Lav. u. Mesn. Der Erreger des Gambiafiebers der Pferde.
|
1903.
|
Dutton und
Todd, First Report of the Expedition to
Senegambia. Trypanosomiasis. London.
|
|
1904.
|
Laveran et
Mesnil. In: C. R. Acad. Sci. Paris. Vol. 138.
p. 732.
|
|
1909.
|
Hindle. In: Univ. Calif.
Publications. Zoology. Vol. 6. No. 6. p. 127.
|
Dieses Trypanosoma ist in drei Formen beobachtet worden, welche bei ihm besonders auffallend sind, welche aber den bei den übrigen Trypanosomen beschriebenen „indifferenten“, „männlichen“ und „weiblichen“ Formen zu entsprechen scheinen. 1. Die „Kaulquappenform“ mit stark verdicktem Hinterende, kleiner Geißel, oder einer solchen ganz entbehrend und schmaler undulierender Membran, Blepharoplast 0,3–0,5 µ vor dem Hinterende, tritt im Anfang der Infektion allein auf, verschwindet später, ist 11–13 µ lang, 0,8–1 µ breit. Vermehrt sich durch Zweiteilung. 2. Die „lange Form“ von schlankerer Gestalt mit langer Geißel, gut entwickelter, undulierender Membran. Sehr lebhaft beweglich. 26–30 µ lang, 1,6–2 µ breit; Blepharoplast 1,6–3,2 µ vor dem Hinterende. Tritt erst wenige Tage vor dem Tode des Wirts in größerer Menge auf. Vermehrt sich ebenfalls durch Zweiteilung (ob männliche Form?). 3. Die „stumpfe Form“ hat die Eigenschaften der Kaulquappenform in gesteigertem Maß. Die Form ist breiter abgestutzt, kurz und dick, die Geißel ist sehr kurz. Körperlänge 16–19 µ, Breite 3,4–3,5 µ. Der Blepharoplast liegt dicht am Hinterende. Tritt hauptsächlich bei „mittlerer Krankheitsdauer“ auf. Teilung der stumpfen Formen ist noch nicht beobachtet worden. Diese Individuen sind viel widerstandsfähiger als die beiden anderen Formen. Vielleicht sind es die weiblichen Formen. Nach neueren Untersuchungen wird vielfach angenommen, daß T. dimorphon Dutton und Todd auf Grund einer Mischinfektion beschrieben sei, und daß jener Stamm zusammengesetzt gewesen sei aus T. dimorphon s. str. nach der Beschreibung von Laveran und Mesnil, T. Cazalboni Lav. und T. Pecaudi Lav. Das eigentliche T. dimorphon sei eine Form ohne freie Geißel, welche nur gelegentlich auftrete. Infolge der entstandenen Verwirrung hat Bruce Benennung des bei Haustieren weit verbreiteten kleinen Trypanosomas des tropischen Afrikas mit dem Namen T. pecorum Bruce und Mitarbeiter vorgeschlagen, dies wurde bisher von wenig Autoren angenommen. In die Nähe gehört auch T. nanum Lav. aus Rindern, Maultieren und Eseln, im Sudan und Uganda, welches nur 11–16 µ Länge erreicht, ferner das T. congolense Broden, welches bei [S. 437]Rindern und anderem Vieh am Kongo von Broden und Rodhain untersucht wurde und nach Laveran 10–13 µ mißt; zu dieser Art rechnet Theiler eine Form, welche er bei Rindern aus dem Limpopogebiet und Zululand fand. Schließlich ist hier T. Pecaudi Lav. aus Vieh der verschiedensten Teile Afrikas zu erwähnen, eine sehr verbreitete und wichtige Form (vgl. S. 407). Sie wird durch Glossina palpalis, tachinoides und longipalpis übertragen. Doch ist von all den genannten Viehparasiten noch unsicher, wie sie abzugrenzen sind und ob sie selbständige Arten darstellen.
T. dimorphon wurde im Blut von Pferden in Gambia entdeckt, bei denen es eine besondere Krankheit verursacht (Dutton und Todd). Es befällt auch andere Tiere, so Rinder, Schafe, Hunde. Nach Roubaud wird die Art durch Glossina palpalis übertragen, aber auch durch longipalpis und tachinoides. Auch in Französisch-Guinea, am Kongo, in Rhodesia und an vielen anderen Orten des tropischen Afrika ist es nachgewiesen. Künstliche Uebertragung auf Mäuse, Ratten, Meerschweinchen, Kaninchen, Hunde, Rinder, Ziegen, Schafe und Affen ist gelungen.
7. Trypanosoma vivax Ziem.
|
1905.
|
Ziemann, H., Beitrag zur
Trypanosomenfrage. In: Centralbl. f. Bakt. Abt. I. Orig. Vol. 38. p.
307–314 und 429–447.
|
In Kamerun wurde von Ziemann ein Trypanosoma entdeckt, welches dem Surraparasiten durch seine Lebhaftigkeit im mikroskopischen Gesichtsfeld gleicht. Auch ist es morphologisch nicht zu unterscheiden. Länge 18–30 µ (meist ca. 23,7 µ). Breite 2–2,5 µ. Der Blepharoplast liegt in der Nähe des meist (?) etwas zugespitzten Hinterendes. Es soll sehr gleichartig auftreten und keinen Dimorphismus zeigen (Bruce und Mitarbeiter). (Fig. 370.)
Zuerst im Küstengebiet Kameruns bei Rindern, Schafen und Ziegen entdeckt. Als Ueberträger wirken vermutlich Glossinen, z. B. G. morsitans, G. palpalis und tachinoides, doch auch als direkte Ueberträger Tabaniden, Stomoxys und Lyperosia (Pecaud, Bouffard, Montgomery).
Von verschiedenen Autoren, so von Bruce, wird angenommen, daß T. Cazalbouiy Lav. mit T. vivax Ziem. identisch sei, was von französischen Autoren bestritten wird. T. Cazalboui kommt im Sudan beim Vieh vor, ist jedenfalls sehr weit im zentralen Afrika verbreitet (Rhodesia, Uganda, Ostafrika, Kongostaat). Bruce hat T. vivax auch in Antilopen gefunden. Für identisch mit T. Cazalboui wird ferner T. angolense Broden erklärt.
Nahe stehen soll nach Bruce ferner T. uniforme (Bruce und Mitarbeiter) aus Rindern in Uganda; es ist aber kleiner als dieses, indem es nur 12–19 µ lang ist.
Wie über die Formen der T.-dimorphon-Gruppe, so herrscht auch über die Viehparasiten der T.-vivax-Gruppe große Unklarheit, und es finden sich über sie in der Literatur manche Kontroversen, welche sicherlich zum großen Teil darauf zurückzuführen sind, daß es zurzeit unmöglich ist, die Arten zu identifizieren.
[S. 438]
8. Trypanosoma equiperdum Doflein. Der Erreger der Beschälseuche.
|
1900.
|
Nocard, in: Bullet. Acad.
médecine. Paris. (Juli.)
|
|
1901.
|
Trypanosoma equiperdum Doflein,
F. In:, Die Protozoen als Parasiten und Krankheitserreger. I. Aufl.
Jena. p. 66.
|
|
1901.
|
T. rougeti Laveran und
Mesnil. In: C. R. Acad. des Sci. Paris. Vol.
133. p. 131.
|
Welche Beziehungen das hier zu schildernde Trypanosoma zu Tr. Brucei hat, ist immer noch nicht genau festzustellen. Es ist nach der Beschreibung Rougets, Schneider und Bouffards, Laveran und Mesnils demselben in vielen Punkten sehr ähnlich. Das haben bisher alle Forscher bestätigt. Laveran und Mesnil heben als Unterschiede hervor: große Beweglichkeit des Hinterendes, welches manchmal spitz, manchmal stumpf, manchmal zweigespalten erscheint; das Plasma färbt sich bei Exemplaren aus dem Pferd sehr gleichmäßig, Granulationen, welche Farbe annehmen, fehlen fast ganz, während sie bei Exemplaren, welche in Mäusen gezüchtet waren, massenhaft auftreten. Eine Vakuole neben dem Blepharoplasten ist ziemlich regelmäßig nachweisbar, wird allerdings von manchen als Kunstprodukt angesehen. (Vgl. auch die Figg. 335 A–G.)
Die Länge des Parasiten beträgt 18–28 µ (meist 25–28 µ), seine Breite 2–2,5 µ.
Die Bewegung ist ähnlich, wie wir das für T. Brucei angaben, im mikroskopischen Präparat eine lebhafte Schlängelung in loco.
Bei der rapiden Entwicklung der Krankheit nach Neuinfektion kann man im Blut neben normalen Zweiteilungen multiple Teilungsformen feststellen, welche aber stets nach dem Typus der Längsteilung vor sich gehen.
Trypanosoma equiperdum erzeugt die Dourine oder Beschälseuche, eine Krankheit der Pferde (und Esel).
[S. 439]
Die natürliche Infektion geschieht hauptsächlich durch den Coïtus; doch kann sie wahrscheinlich auch durch die Schleimhautexsudate verschiedener Organe, welche zahlreiche Trypanosomen enthalten, und vielleicht auch durch Stechfliegen erfolgen.
Die künstliche Infektion gelingt außer mit den üblichen Methoden auch durch die gesunden Schleimhäute hindurch nach Auftropfen trypanosomenhaltiger Flüssigkeit. Die Uebertragung durch den Coïtus ist ebenfalls im Experiment kontrolliert worden. Künstliche, mechanische Uebertragung ist auch durch verschiedene Insekten erzielt worden.
Hunde und Kaninchen sind sehr empfänglich. In deren Blut kann das Trypanosoma in ungeheuren Mengen vorhanden sein; denn es vermehrt sich sehr rasch, wie Fig. 371 veranschaulicht. Trypanosomenfreie Ratten wurden von Rouget infiziert und zeigten nach 4 Tagen eine mäßige Zahl von Parasiten, nach 8 Tagen aber in einem Gesichtsfeld mehr Parasiten als Blutkörper. Die Virulenz des Parasiten besonders für Ratten und Mäuse scheint großen Schwankungen unterworfen. Affen und Wiederkäuer zeigten sich bei früheren Versuchen vollkommen unempfänglich, bei starkem Virus gelingt aber auch ihre Infektion.
Die Dourine ist heutzutage noch in den Ländern um das Mittelmeer herum sehr verbreitet: in Algerien, Tunis, Marokko, Syrien, Kleinasien, Persien und der Türkei, Südrußland, den Donauländern und in Spanien. Früher war sie in ganz Mitteleuropa häufig, auch in Deutschland, Schweiz, Oesterreich etc. bis zur Mitte des 19. Jahrhunderts. Neuerdings soll die Dourine nach Nordamerika, Chile und Java verschleppt worden sein. In neuester Zeit (1908) ist sie auch in Deutschland wieder eingeschleppt worden.
9. Trypanosoma equinum Voges. Der Erreger des Mal de Caderas.
|
1901.
|
Trypanosoma equina Voges. In:
Berlin. tierärztl. Wochenschr. 3. Okt.
|
|
1902.
|
Trypanosoma Elmassiani Lignières,
Contribution à l’étude du mal de Caderas. In: Revista de la Sociedad medica
argentina. Vol. 10. p. 481.
|
|
Ferner: Elmassian und
Migone, Sur le Mal de Caderas ou Flagellose
parésiante des Equidés Sud-americains. In: Ann. Inst. Pasteur. Vol. 17.
1903. p. 241.
|
|
Auch dieses Trypanosoma ist in Größe und Bau dem Tr. Brucei sehr ähnlich. Seine Länge beträgt 20–30 µ (meist ca. 25 µ), seine Breite 1,5–4 µ. Die Geißel hat eine Länge von 4–5 µ. Als besonders charakteristisch wird die auffallende Kleinheit des Blepharoplasten bezeichnet. Das Hinterende ist nicht sehr formbeständig, es erscheint bald abgerundet, bald zugespitzt.
Tr. equinum findet sich im Blut von Pferden, welche an dem in Südamerika verbreiteten Mal de Caderas, der Kreuzlähme, leiden. Auch in Eseln, Mauleseln, Rindern und Wasserschweinen (Hydrochoerus capybara Erxl.) ist es nachgewiesen [S. 440]worden. Letztere sollen ein auffallendes Sterben zeigen, jedesmal, wenn eine Mal-de-Caderas-Epizootie unter den Pferden ausbricht. Migone hat bei den kranken Capybaren Trypanosomen nachgewiesen.
Die natürliche Uebertragung ist noch unbekannt, doch werden auch in diesem Fall Stechfliegen beschuldigt.
Künstliche Uebertragung ist gelungen auf die besonders empfänglichen Mäuse, Ratten, Hunde, ferner auf Kaninchen, Meerschweinchen, Katzen, Affen, Hydrochoerus capybara, schließlich Rinder, Schweine, Schafe und Ziegen, welch letztere aber viel leichter erkranken und oft genesen, während die anderen Tiere, besonders die Pferde, der Infektion regelmäßig erliegen.
Die Krankheit ist in Südamerika weit verbreitet, in Argentinien und Paraguay, wo der Erreger von Elmassian zuerst entdeckt wurde, in Chile, Uruguay (?), Brasilien, Bolivia.
Neuerdings sind in Amerika noch weitere Trypanosomen bei Pferden gefunden worden, welche für verschieden von T. equinum erklärt werden, so in Panama, bei aus Nordamerika eingeführten Maultieren, Trypanosoma hippicum Darling, welches von den einen als T. dimorphon, von Laveran als T. Evansi ähnlich beschrieben wird. Es ist 18–28 µ lang, 1,5–3 µ breit, die Geißel mißt 4–6 µ. In Venezuela wurde in Pferden Trypanosoma venezuelense Mesnil gefunden.
10. Trypanosoma gambiense Dutton. Der Erreger der Schlafkrankheit.
|
1902.
|
T. gambiense Dutton, Note on a
trypanosoma occurring in the blood of man. In: Brit. med. Journ. 1902. II.
20. Sept. p. 881 und in: Journ. of tropical Medic. Vol. 5. 1. Dec. 1902.
p. 362.
|
|
1903.
|
T. hominis Manson, P.,
Trypanosomiasis on the Congo. Report of several cases of infection. In:
Journ. of tropical Med. Vol. 6. p. 85.
|
|
1903.
|
T. fordii Maxwell-Adams,
Trypanosomiasis and its cause. Brit. med. Journ.
|
|
1903.
|
T. gambiae Maxwell-Adams,
Trypanosomiasis and its cause. Brit. med. Journ.
|
|
1903.
|
T. ugandense Castellani, A.,
Researches on the etiology of sleeping sickness. In: Journ. of tropical Med.
Vol. 6. 1. Juni 1903. p. 167. — Ferner: Trypanosoma and sleeping sickness.
Reports Sleep. Sickn. Comm. Roy. Soc. No. 1 and 2. 1903.
|
|
1903.
|
T. Castellanii Kruse, Ueber das
Trypanosoma Castellani, den Erreger der Schlafkrankheit. In: Sitzungsber. d.
niederrhein. Gesellsch. f. Natur- und Heilk. Bonn. Mai 1903.
|
|
1908.
|
T. gambiense Minchin, E. A.,
Investigations on the Development of Trypanosomes in the Tsetseflies and
other Diptera. In: Quart. Journ. Micr. Sci. Vol. 52. p. 159. (Daselbst die
wichtigste Literatur.)
|
Als Parasit des Menschen hat dies Trypanosoma die größte Wichtigkeit erlangt, besonders seitdem man erkannte, daß der zunehmende Verkehr in Afrika eine bedrohliche Verbreitung der Krankheit zur Folge hatte. Die Entdeckung des Trypanosomas als Krankheitserreger beim Trypanosomenfieber ist Dutton, bei der Schlafkrankheit Castellani zu verdanken. Während man früher annahm, daß es sich um zwei verschiedene Arten handle, ist man jetzt der Ansicht, daß es sich um eine einzige Trypanosomenart handelt.
Auch T. gambiense ist dem T. Brucei sehr ähnlich. Doch ist das Hinterende meist weniger abgerundet, mehr kegelförmig zugespitzt, [S. 441]jedenfalls in der Form wechselnd. Der Kern ist groß und in der Mitte des Körpers gelegen. Der Blepharoplast ist oval, während er bei Brucei stets rund sein soll. Auch bei dieser Form ist die Vakuole neben dem Blepharoplasten meist deutlich. Die freie Geißel ist meist deutlich in ca. ⅓ der Körperlänge entwickelt.
Die Länge beträgt 15–30 µ, die Breite 1,4–2 µ. Die Trypanosomen zeigen im mikroskopischen Präparat eine geringe Beweglichkeit.
Schon früheren Beobachtern waren unter den Trypanosomen im menschlichen Organismus oder nach Verimpfung auf Versuchstiere Formverschiedenheiten aufgefallen, welche man auch schon auf die üblichen Unterschiede zwischen den drei Formen zurückzuführen suchte. Das hat neuerdings auf Grund seiner Versuche Minchin mit größerer Sicherheit unternommen. Schon im Blut des Menschen lassen sich neben Formen von mittlerem Typus stumpfe Individuen mit kurzer Geißel (Fig. 373 A) und schlanke Individuen mit langer Geißel (Fig. 373 C) erkennen. Während die indifferenten Individuen im Blut vorherrschen, treten sie in der Cerebrospinalflüssigkeit gegenüber den extremen Formen sehr zurück.
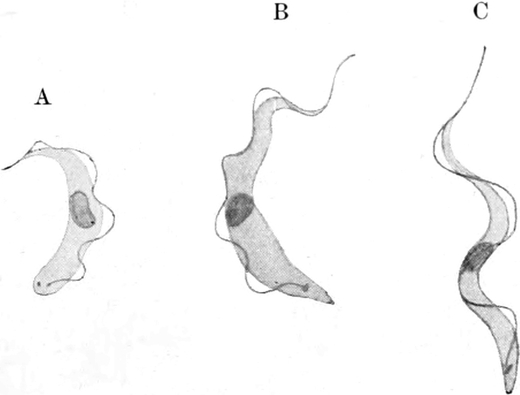
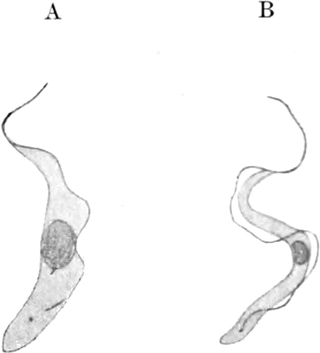
Diese Unterschiede gewinnen ferner noch an Interesse, wenn wir die Veränderungen in den übertragenden Insekten ins Auge fassen.
T. gambiense und die von ihm verursachte Krankheit (Trypanosomenfieber und Schlafkrankheit des Menschen) sind im tropischen Afrika gegenwärtig weit verbreitet. Schon lange war die Schlafkrankheit an der Westküste von Afrika bekannt, sie ist auch schon von dort nach Westindien (Martinique) verschleppt gewesen. Ihre gegenwärtige erschreckende Ausbreitung folgt aber in Afrika den Karawanen- und Handelsstraßen, und ging von Westen nach Osten, vor allem vom Kongogebiet zu dem Gebiet der großen Seen. Dabei faßte die Krankheit an vielen Orten festen Fuß und wurde endemisch, während sie früher z. B. in Martinique erloschen war. Nun hat sich [S. 442]gezeigt, daß ihre Ausbreitung (ähnlich wie bei Trypanosoma Brucei) gebunden ist an das Vorkommen von Tsetsefliegen. Und zwar ist die Ueberträgerin der Schlafkrankheit, wie sich immer sicherer herausstellt, die Glossina palpalis (vgl. unten). Vielleicht kommen außerdem Glossina fusca und G. tachinoides in Betracht. Doch ist dies nicht sicher, während mit G. palpalis schon zahlreiche künstliche Uebertragungen (auf Affen) gelungen sind; mit G. morsitans gelingt die Uebertragung nicht.
Künstliche Uebertragung durch Injektion gelingt besonders leicht bei Affen: Cercopithecusarten, auch Cebus, ferner Halbaffen, Hunden, Katzen, Ratten, Mäusen, Meerschweinchen, Kaninchen, Murmeltieren, Igeln, Pferden und Eseln, Rindern, Schafen, Ziegen.
Sehr bemerkenswert ist, daß besonders bei Huftieren, aber auch bei Raub- und Nagetieren die Erkrankungen sehr leicht sind, oft erst nach langer Zeit oder gar nicht zum Tod führen. Paviane (Cynocephalen) erwiesen sich als ganz unempfänglich, ebenso Cercopithecus fuliginosus und das Schwein. Große Schwankungen in der Virulenz sind beobachtet worden.
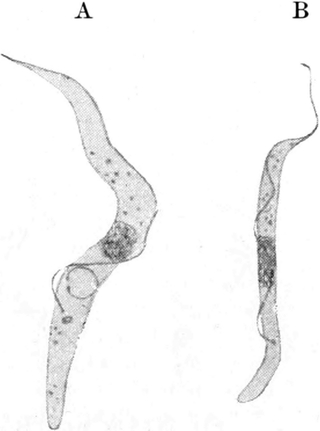
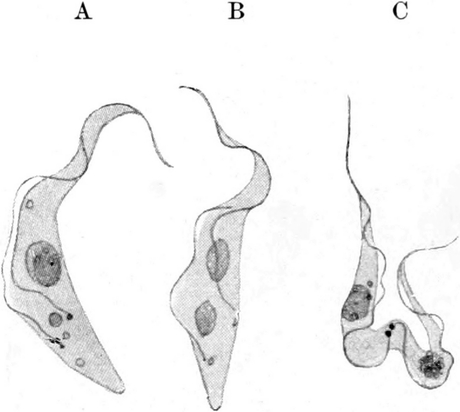
In infizierten Tieren (Affen, Ratten) treten oft die stumpfen und schlanken Formen in auffallendem Prozentsatz auf. Bei Infektionen der Glossina palpalis an einem Affen, welcher wenig indifferente, dagegen zahlreiche der beiden extremen Formen enthielt, zeigten sich besonders klar die Entwicklungsvorgänge, welche Minchin in Bestätigung und Erweiterung der Ergebnisse von Koch und Gray und Tulloch beschrieben hat.
Das Trypanosoma gambiense vermehrt sich im Darm von Glossina palpalis stark. Nach 24 Stunden sind massenhaft sehr lebhaft bewegliche Trypanosomen vorhanden, alle zu den extremen Formen gehörig, keine intermediären Formen sind mehr nachweisbar (vergl. Fig. 374 A u. B). Die schlanken Formen sind ganz durchsichtig, färben sich sehr schwach und besitzen keine Granulationen [S. 443]mehr im Plasma. Die stumpfen Formen dagegen färben sich sehr stark und sind reich an Granulationen. Beide Typen vermehren sich durch Längsteilung, wobei interessante Verschiedenheiten im Teilungsmodus auftreten. Während bei der stumpfen Form die Blepharoplasten der entstehenden Tochterindividuen schon sehr frühzeitig auseinanderrücken (Fig. 376 A u. B), bleiben sie bei den schlanken Formen bis in die letzten Stadien der Teilung eng miteinander vereinigt (Fig. 376 C). Nach 48 Stunden sind die Trypanosomenformen aber wieder viel gleichartiger geworden, wenigstens in ihrem Bau, wenn auch in der Größe Differenzen vorliegen.
Sie sind alle relativ lang und schlank, was sich am dritten Tag noch mehr bemerkbar macht; auch ist die Größe der Individuen auffallend. Am dritten Tag erscheinen manchmal die Tiere an Zahl verringert und degenerierend, in andern Fällen sind sie zahlreich und lebhaft. Am vierten Tag sind die Trypanosomen stets sehr selten geworden, nach mehr als 96 Stunden sind nie mehr solche zu finden.
Minchin ist nicht sicher, ob er das Verschwinden der schlanken Formen am ersten Tag auf eine Kopulation zurückführen darf, deren Resultat die relativ großen Zygoten, d. h. die großen Individuen des zweiten Tags wären. Er suchte vergeblich nach Stadien, welche etwa von den verschwindenden Trypanosomen abgeleitet werden könnten, in sämtlichen Organen.
Daher, und da er außerdem fand, daß die Differenzierung in die zwei extremen Formen und die starke Vermehrung auch in anderen blutsaugenden Fliegen vor sich geht (Stomoxys, Mansonia, Taeniorhynchus), kommt er zu der Ansicht, daß in Uganda jedenfalls Glossina palpalis nicht der normale Wirt des T. gambiense ist. Nach seiner Meinung würde die Konjugation und daran anschließend die Bildung der die Neuinfektion vermittelnden Stadien in dem normalen Wirt aus dem Insektenstamm vor sich gehen. Als solcher käme nach den Versuchen von Koch, Stuhlmann u. a. Glossina fusca am meisten in Betracht, in welcher Form auch die Stadien des Zeugungskreises von T. Brucei durch die gleichen Forscher beobachtet wurden.
Neuerdings haben sich aber doch die Tatsachen gemehrt, welche für die größere Wichtigkeit von Glossina palpalis sprechen.
Die neueren Versuche von Bruce und Kleine haben aber wohl einwandfrei nachgewiesen, daß G. palpalis der wichtigste, wenn nicht einzige Ueberträger des Tr. gambiense ist. Im Norden, vor allem im Tschadseegebiet, scheint der ihr sehr nahe stehenden G. tachinoides eine ähnliche Bedeutung zuzukommen.
Es hat sich bestätigt, daß bei den meisten künstlich infizierten Fliegen die Infektion nicht dauernd Fuß faßt. Dies wurde von verschiedenen Forschern auf verschiedene Gründe zurückgeführt (vergl. S. 409). Jedenfalls werden nur 5–10 Proz. der Fliegen dauernd infiziert und auch bei ihnen ist eine Periode vorhanden, in welcher offenbar die Trypanosomen an Zahl sehr zurückgegangen sind. In dieser Zeit (18–53 Tage) vermögen die Glossinen überhaupt nicht anzustecken, nachdem sie in den ersten Stunden nach dem Saugen am infizierten Tier immerhin mechanisch die Trypanosomen zu übertragen vermochten.
Nach Ablauf der 18–53 Tage (im Durchschnitt 34 Tage) werden nun die erwähnten 5–10 Proz. der Fliegen infektiös. Darminhalt aus [S. 444]solchen Fliegen, in die Blutbahn eines Affen injiziert, bringt diesem die Schlafkrankheit; die Fliegen übertragen durch ihren Stich die Krankheit, und eine Fliege, welche sich nach nichtinfektiöser Zwischenzeit zur Trägerin des gefährlichen Virus entwickelt hat, kann eine große Zahl von Tieren und Menschen anstecken; denn sie bleibt sehr lange Zeit infektiös, nach den neuesten Untersuchungen von Bruce in der Gefangenschaft bis zu 96 Tagen, in der freien Natur wahrscheinlich viel länger.
Die Trypanosomen haben entsprechend den vorher erwähnten Untersuchungen Minchins, wie dies neuerdings durch Kleine und Bruce bestätigt wurde, im Anfang der Infektion abgenommen, um dann sich sehr stark zu vermehren, den Darm zu überschwemmen und schließlich in die Speicheldrüsen zu gelangen (Koch, Kleine und vor allem Bruce). Wie die Trypanosomen in die Speicheldrüsen gelangen, ist noch unbekannt. Jedenfalls tritt die Infektiosität der Fliege dann ein, wenn die Speicheldrüsen infiziert sind.
Ob die von Roubaud bei Glossina palpalis aufgefundenen „Dauerstadien“ von Trypanosomen bei der Infektion eine Rolle spielen, ist vorläufig noch nicht recht klar. Der französische Forscher hat gefunden, daß sich schon beim Blutsaugen Individuen von T. gambiense und anderen pathogenen Trypanosomen im Rüssel der Glossina anheften; sie hängen sich am inneren Rüsselgewölbe mit der Geißel fest und können da in abgekugeltem Leptomonas-ähnlichem Zustand oft lange persistieren.
Also drei Möglichkeiten der Infektion der Wirbeltiere bestehen: 1) mechanische Uebertragung, 2) Uebertragung nach Ablauf einer ungeschlechtlichen Entwicklung, wie sie in künstlichen Kulturen vor sich geht, 3) Uebertragung mit Generationswechsel, d. h. mit Einschaltung eines Befruchtungsvorganges im Insekt. 1) ist nachgewiesen, scheint in der Natur aber selten vorzukommen, 2) oder 3) müssen in der Natur die normale Uebertragungsform sein; welche es ist, ist noch unerwiesen. Vor allem ist hervorzuheben, daß noch niemand geschlechtliche Entwicklungsstadien der Trypanosomen mit Sicherheit nachgewiesen hat.
Allem Anschein nach wird also die Schlafkrankheit normalerweise regelmäßig durch Glossina palpalis übertragen, wobei gewisse uns noch unbekannte Vorgänge, welche eine bestimmte Zeit beanspruchen, im Körper der Fliege ablaufen müssen.
Doch ist zu betonen, daß gelegentlich auch andere Uebertragungsformen in Betracht kommen können. Wie die Glossinen kurz nach dem Blutsaugen die Trypanosomen rein mechanisch zu übertragen vermögen, so können dies auch eine Anzahl anderer Blutsauger: Stomoxys, Mansonia und andere Anophelinen, vielleicht auch Flöhe etc. Es ist dies experimentell nachgewiesen worden und wir müssen diese Annahme machen, um gewisse Hausepidemien zu erklären, welche in Gegenden gefunden wurden, welche von Glossina palpalis frei waren.
Auch ist in einer Reihe von Fällen gezeigt worden, daß die Schlafkrankheit beim Coïtus vom Mann auf die Frau, eventuell auch umgekehrt übertragen werden kann.
Von Wichtigkeit ist ferner folgendes: Da in menschenleeren Gebieten, z. B. in wegen der Schlafkrankheit künstlich entvölkerten [S. 445]Gegenden, die Fliegen aus der Wildnis zu infizieren vermögen, glaubte man zuerst, daß sie lange (ca. 2 Jahre) leben und so lange die Infektion dauernd vermitteln könnten. Neuerdings haben aber Bruce und seine Mitarbeiter nachgewiesen, daß Rinder und Antilopen, ohne selbst schwer krank zu sein, T. gambiense in sich beherbergen können, so daß solche Tiere eventuell in menschenverlassenen Gegenden ein Reservoir der Seuche darstellen.
Auch experimentell ist ja nachgewiesen worden, daß sich Huftiere leicht mit T. gambiense infizieren lassen, daß diese Art aber für sie viel weniger virulent ist als T. Brucei.
Dies hat neuerdings dazu geführt, die Frage aufzuwerfen, ob nicht T. gambiense und T. Brucei einander näher stehen, als man bisher meist annahm. Nun steht fest, daß in vielen Gegenden, obwohl das Vieh massenhaft an T. Brucei erkrankt ist und obwohl die Menschen dort viel von den infizierten Glossina morsitans gestochen werden, keine Schlafkrankheit vorkommt.
Neuerdings sind nun aber in Nord-Rhodesia und im Nyassaland Fälle von Trypanosomenerkrankung beim Menschen beobachtet worden, welche in Gegenden auftreten, in denen Glossina palpalis vollkommen fehlt. Die betreffenden Menschen waren nie in Palpalis-Gebiete gekommen.
Nun sind manche Autoren geneigt, diese Fälle dadurch zu erklären, daß sie annehmen, daß in Afrika beim Menschen doch, wie früher schon eine Zeitlang vermutet wurde, zwei pathogene Trypanosomenarten vorkommen. Die eine davon könne auch durch Glossina morsitans übertragen werden. Und nun haben neuerdings Stephens und Fantham einen aus Rhodesia herrührenden Stamm von menschlichen Trypanosomen untersucht, der sich in vielen Punkten von dem typischen T. gambiense unterschied. Es soll diese Form den Kern bei gewissen Individuen hinter dem Blepharoplast im hinteren Teil des Tiers zeigen; die Form soll für Laboratoriumstiere eine höhere Virulenz zeigen als T. gambiense und soll widerstandsfähig gegen Atoxyl sein. Die Entdecker sehen in der Form eine besondere Rasse, eventuell sogar Art, welche sie als Trypanosoma rhodesiense St. et F. benennen.
Die Annahme einer besonderen Trypanosomenform wird ferner nahegelegt durch die Erfahrung von Kleine und seinen Mitarbeitern, daß sich T. gambiense in Glossina morsitans nicht richtig weiterentwickelt. Dagegen kann T. Brucei durch Glossina palpalis wohl übertragen werden.
Sollte die Komplikation im Problem der menschlichen Trypanosomose in Afrika nicht durch das Vorhandensein einer zweiten Species bedingt sein, so erheben sich einige andere sehr wichtige Fragen: Wir müssen uns fragen, ob T. Brucei unter gewissen Umständen für den Menschen virulent werden kann und ob dann Glossina morsitans nicht auch eine gefährliche Infektionsquelle für den Menschen darstellt. Und ferner ob nicht unter besonders günstigen Verhältnissen sich T. gambiense dennoch in Gl. morsitans (und eventuell in anderen Formen?) weiter zu entwickeln vermag, so daß eingeschleppte Fälle von Schlafkrankheit selbst in palpalis-freien Gegenden zu einer Epidemie Anlaß geben können.
[S. 446]
Anhang: Die Trypanosomen aus Tsetsefliegen.
Trypanosoma Grayi Novy.
|
1906.
|
Novy, The trypanosomes of
Tsetseflies. In: Journ. Inf. Diseases. Vol. 3. May 1906. p. 394.
|
|
1906.
|
Minchin,
Gray and Tulloch,
Glossina palpalis in its relation to Trypanosoma gambiense and other
Trypanosomes. In: Proc. Roy. Soc. London Vol. 78. p. 242.
|
Fast gleichzeitig beschrieben Novy und Minchin in Blut aus dem Darm von Glossina palpalis eine Trypanosomenform, welche zuerst von Gray und Tulloch aufgefunden worden war, und welche höchst auffallend erscheint. In ihrem ganzen Bau scheint sie an die verschiedenen Formen anzuknüpfen, unter denen T. gambiense im Darm einer G. palpalis in den ersten Tagen nach dem Saugen an infizierten Tieren auftritt.
Vor allem ist T. Grayi, wie diese Form benannt wurde, außerordentlich vielgestaltig. Nicht nur, daß es verschiedene Typen langer und kurzer aber dicker, und schlanker und dünner Formen gibt, auch deren gesamte Umrisse, Färbbarkeit und die Länge von Kern und Blepharoplast zeigen sehr große Verschiedenheiten. Wie groß die Verschiedenheiten sind, zeigt ein Blick auf die Fig. 377 und 379 und vor allem auf die in Fig. 381 abgebildete Riesenform des schlanken Typus. Die Maße schwanken zwischen 20 µ bei den kleinsten und 100 µ bei den großen Individuen.
Sehr großen Schwankungen ist vor allem die Ausbildung der undulierenden Membran unterworfen, welche bald in prachtvoller Entwickelung vorhanden ist, bald fast vollkommen fehlt, so daß Formen vorliegen, welche sehr an Herpetomonas und Crithidia erinnern.
Die herpetomonasähnlichen Formen sah Minchin (allerdings nur im gefärbten Präparat) in allen Uebergängen zur Cystenbildung, welche ganz ähnlich vor sich geht, wie die von Prowazek für Herpetomonas geschilderte „Schleimcysten“-Bildung. Diese Cysten fand Minchin im Enddarm der Fliege; er glaubt daher, daß sie zur Neuinfektion dienen und glaubt, daß T. Grayi aus einem Wirbeltier, wahrscheinlich einem Vogel, in die Fliege gerät. Nach den neueren Untersuchungen von Kleine und Taute stammt T. Grayi jedoch aus kaltblütigen Tieren, vorwiegend aus Krokodilen, und ist von dem großen Krokodiltrypanosoma abzuleiten. Nach diesen Autoren sind zur Infektion der Fliegen untereinander durch Fressen des Kotes die Cysten nicht notwendig, da der frische Kot lebhaft bewegliche Trypanosomen in Menge enthält.
Ursprünglich nahm Minchin an, daß die von ihm beschriebenen Formen, welche er jetzt zu T. Grayi rechnet, Stadien des Schlafkrankheittrypanosoma seien.
Bemerkenswert ist die von Kleine bestätigte Beobachtung Minchins, Grays und Tullochs, daß Serum resp. gesaugtes Blut von Ziegen tödlich für T. Grayi ist, während es von T. gambiense ohne Schaden vertragen wird.

Eine andere in den Tsetsefliegen beobachtete Trypanosomenform wurde von Minchin für eine weitere selbständige Art gehalten und Trypanosoma Tullochii genannt, von dieser nehmen jetzt manche [S. 448]Forscher, z. B. Kleine und Taute, an, daß sie in den normalen Formenkreis des T. gambiense gehöre.
Auch aus anderen Arthropoden sind schon einige Trypanosomen beschrieben worden. Wenn wir von den manchmal sehr trypanosomenähnlichen Crithidia-Arten absehen, so handelt es sich ausschließlich um blutsaugende Wirte. Ich hebe besonders hervor: Trypanosoma Christophersi Novy und MacNeal, aus Hundezecken, in Indien gefunden.
11. Trypanosomen aus Affen.
Es ist wegen praktischer Gesichtspunkte wichtig, hervorzuheben, daß auch in Affen schon wiederholt Trypanosomen gefunden wurden, und zwar sowohl in der alten als in der neuen Welt, bei Menschenaffen und niederen Affen. Ziemann fand in Kamerun ein dem Tr. Lewisi ähnlich sehendes Trypanosoma im Schimpansen (Arch. f. Schiffs- und Tropenhyg. Vol. 6. 1902. p. 362), Dutton, Todd und Tobey im Kongogebiet ein solches in Cercopithecus Schmidti, Kudicke in Ostafrika in Cercopithecus sp. Koch hatte angegeben, daß er in Ostafrika in Affen natürlich T. gambiense gefunden habe. Bei Macacus cynomolgus aus Asien wurde Trypanosoma Vickersae Brumpt als pathogene Form beschrieben (1909). v. Berenberg-Gossler fand ein dem Tr. gambiense ähnliches im Blut eines aus Südamerika (Amazonasgebiet) stammenden Affen Ouacaria calva = Brachyurus calvus (ibid. Vol. 12. 1908. p. 541) (T. Prowazek). Chagas hat in Südamerika in dem Krallenäffchen Hapale penicillata ein Trypanosoma (minasense Ch.) entdeckt.
Von Säugetiertrypanosomen führe ich noch folgende an:
Tr. vespertilionis (Battaglia) aus Fledermäusen, hauptsächlich in Südeuropa, Tunis etc. nachgewiesen. Nach Gonder wahrscheinlich durch die Milbe Leiognathus arcuatus übertragen.
T. Legeri Mesnil und Brimont aus dem Ameisenbären Tamandua tridactyla L. in Französisch Guyana und T. Brimonti Mesnil und Brimont aus einem Faultier.
T. Pestanai Bettencourt und França beim Dachs, T. Nicolleorum Ed. et Et. Sergent bei den Fledermäusen Myotis myotis und Vespertilio Kuhli.
T. Dionisii Bettencourt und França bei den Fledermäusen Vesperugo pipistrellus, V. serotinus und V. nattereri. Vgl. ferner die oben angeführten Formen aus Nagetieren (S. 428).
C. Trypanosomen aus dem Blut von Vögeln.
Die in zahlreichen Vögeln vorkommenden Bluttrypanosomen haben durch die Arbeiten Schaudinns das größte Interesse der Zoologen und Mediziner gefunden. Trotz zahlreicher Arbeiten ist aber über die besonders für theoretische Erörterungen sehr wichtigen Zeugungskreise der Vogeltrypanosomen keine Uebereinstimmung erzielt. Es scheint allerdings gegenwärtig, als sei Schaudinn, durch Mischinfektionen der Vögel und der Stechfliegen getäuscht und durch theoretische Ueberlegungen voreingenommen, zu irrtümlichen Anschauungen gekommen. Da aber seine knappen Veröffentlichungen eine vollkommene Kontrolle erst nach vollständiger Neubearbeitung der Lebensgeschichte [S. 449]von Haemoproteus noctuae und Leucocytozoon Ziemanni gestatten werden, und da man bei einem so hervorragenden Beobachter und erfahrenen Techniker immer mit der Möglichkeit rechnen muß, daß er dennoch vieles gesehen hat, was allen andern Beobachtern entgangen ist, so habe ich unten seine Beobachtungen in dem von ihm angegebenen Zusammenhang dargestellt und die durch die neueren Arbeiten notwendige Kritik anhangsweise hinzugefügt.
12. Trypanosoma avium Danilewsky em. Laveran.
|
1889.
|
Danilewsky, B., La parasitologie
comparée du sang. I. Nouvelles recherches sur les parasites du sang des
oiseaux. Kharkoff.
|
|
1904.
|
Laveran et
Mesnil, Trypanosomes et Trypanosomiases. Paris.
|
|
1905.
|
Novy and
MacNeal, On the trypanosomes of birds. In: Journ.
Inf. Diseases. Vol. 2. p. 256.
|
In zahlreichen Vögeln sind Trypanosomen vom regulären Typus beobachtet worden; sie sind von relativ schlanker Spindelform, an beiden Enden zugespitzt mit nach vorn gerichteter, wohlausgebildeter Geißel, deutlicher undulierender Membran, ovalem, in der Mitte des Körpers gelegenem Kern und kugligem Blepharoplast, dessen Lage wechselt, versehen.
Auch dies Trypanosoma kommt in einer kleinen und einer großen Form gleichzeitig im Blut vor. Die kleine Form mißt mit Geißel 25–30 µ, wovon 8–12 µ auf die Geißel entfallen; die Breite beträgt 3,5–5 µ. Die große Form mißt mit der Geißel 50–85 µ, die Geißel allein 15–20 µ. Beide Formen sind nicht sehr beweglich, d. h. sie machen zwar intensive Körperbewegungen, aber sie sind nicht sehr geneigt, sich von der Stelle zu bewegen. Bei der großen Form sind die Myoneme (6–8) sehr deutlich, bei der kleinen weniger. Bei der großen Form liegt der Blepharoplast nahe beim Kern, bei der kleinen in der Nähe des Hinterendes, oft ganz nahe bei diesem.
T. avium wächst sehr gut in künstlichen Kulturen; selbst wenn die mikroskopische Untersuchung keine Trypanosomen im Blut zeigt, wachsen aus den wenigen vorhandenen Exemplaren oft starke Kulturen heran. Am 4. bis 6. Tag pflegen normalerweise die Kulturen sehr reich zu sein. In den Kulturen findet man „Vermehrungsrosetten“ und frei schwimmende Individuen. Erstere sind plump und dick und haben den Blepharoplast vor dem Kern, sie sind sehr wenig beweglich, meist ruhen sie vollkommen; letztere sind so schlank und dünn (30–60 µ lang und nur ca. ½ µ breit), daß Novy und MacNeal sie „die Spirochätenstadien“ nennen. Doch sind es typische Trypanosomen mit langer Geißel, undulierender Membran, in der Mitte des Körpers gelegenem Kern und hinter dem Kern, in der Mitte zwischen ihm und dem Hinterende, gelegenem Blepharoplast. Sie sind sehr lebhaft beweglich.
Mit Kulturen gelingt es, Vögel zu infizieren. Trypanosoma avium ist in vielen Passeres in verschiedenen Gegenden der Erde gefunden worden.
Weitere Vogeltrypanosomen, deren Selbständigkeit als Arten aber nicht ganz geklärt ist, sind Trypanosoma Johnstoni Dutton und Todd, eine sehr schlanke Form ohne freie Geißel aus Estrelda astrild (L.), gefunden in Bathurst, Gambien. Ferner T. paddae Laveran und Mesnil, aus importierten Reisfinken (Padda oryzivora L.), eine Form, welche auch künstlich kultiviert wurde, ferner T. Mesnili Novy und MacNeal aus [S. 450]Buteo lineatus Vieill. und T. Laverani aus einem Goldfinken (Spinus = Astragalinus tristis L.); die beiden letzteren Formen, in Nordamerika (Ann Arbor, Michigan) gefunden, sind durch ihre Wuchsformen in künstlichen Kulturen gekennzeichnet. Erwähnt sei ferner T. Calmetti Mathis und Léger, beim gesunden Haushuhn in Tonkin gefunden. Und dazu kommt noch eine ganze Menge von Befunden von teils benannten, teils unbenannten Trypanosomen aus Vögeln aller möglichen Erdgegenden.
13. Die Blutparasiten des Steinkauzes (Athene noctua Retz)[28].
Im Blut des Steinkauzes sind Blutparasiten sehr häufig: nach Schaudinn Proteosoma, Halteridien, Leucocytozoen und Trypanosomen, nach Töpfer ferner Spirochäten. Nach Schaudinn handelt es sich dabei nicht um lauter selbständige Formen, sondern zum Teil um Angehörige des Zeugungskreises von Trypanosomen. Während Proteosoma als Hämosporid eine selbständige Form darstellt, gehören die übrigen beobachteten Formen, und zwar sowohl die Bewohner des Blutplasmas als auch die Zellparasiten der Blutkörperchen in den Zeugungskreis zweier Formen:
- 1) des Haemoproteus noctuae Celli und Sanfelice,
- 2) des Leucocytozoon Ziemanni (Laveran).
Da er beide Formen für Trypanosomen erklärte, so änderte er entsprechend die Namen.
1. Trypanosoma noctuae = Haemoproteus noctuae Celli und Sanfelice.
Nach Schaudinn parasitieren die Individuen seines Trypanosoma noctuae nicht nur im Blutplasma der Eule, sondern sie dringen auch in bestimmten Stadien in die roten Blutkörperchen ein. Und zwar sind es junge, agame Stadien, kleine Trypanosomen, welche zunächst sich an Erythrocyten mit ihrem geißeltragenden Vorderende anheften. Sie ziehen ihren Geißelapparat ein und wandeln sich in Ruheformen um, welche den Ruhestadien (Gregarinenformen) von Leptomonas und Herpetomonas (vgl. S. 417) sehr ähnlich sind; es sind dies die jungen Halteridien, welche in diesem Ruhezustand heranwachsen und sich dabei in die Substanz des roten Blutkörperchens etwas einsenken, nicht aber im Innern desselben sitzen. Die resorbierte Erythrocytensubstanz wird nicht vollkommen verdaut, sondern es bleiben im Innern des Parasiten als Reste dunkelbraune, doppelt lichtbrechende unregelmäßige Kristalle zurück, also ein ähnliches hämatogenes Pigment, wie bei den Malariaparasiten. Auf einem Erythrocyten wächst der Parasit aber nur bis zu einer gewissen Größe heran; dann verläßt er denselben (Fig. 382 C), nimmt von neuem Trypanosomenform an (Fig. 382), indem er einen Geißelapparat ausbildet (vgl. Fig. 384, S. 453); so schwärmt er eine Zeitlang als Trypanosoma frei im Blutplasma umher und sucht dann wieder einen Erythrocyten auf (Fig. 382 D, E). Das wiederholt sich, bis er schließlich auf einem Erythrocyten zur vollen Größe heranwächst. Wiederum als Trypanosoma ausgeschwärmt, beginnt der nun erwachsene Parasit im Blutplasma sich durch eine Reihe aufeinanderfolgender Teilungen zu vermehren, wobei die Teilprodukte immer kleiner werden, da keine Wachstumsperioden eingeschaltet sind, [S. 451]die so entstandenen ganz kleinen Trypanosomen wandern wiederum an Erythrocyten und beginnen wieder die 6-tägige Wachstumsperiode. So können wiederholt Ruheperioden und Schwärmperioden, Wachstumsperioden und Teilungsperioden miteinander abwechseln, ehe die Geschlechtsformen sich bilden.
Die Schwärmperioden erfolgen nach Schaudinn nachts, und zwar fand er die freien Trypanosomen nur sehr selten im peripheren Blut, meist nur in Knochenmark, Milz, Niere, Leber. Daß die Umwandlung in Trypanosomen gerade nachts erfolgt, ist nach Schaudinns Annahme durch die Temperaturerniedrigung bedingt, welche nachts im Körper der Vögel eintritt.
Nach einiger Zeit treten immer häufiger im Blut die Gametocyten auf, welche im roten Blutkörperchen sitzen, nicht außen, wie die Agameten. Sie sind nicht mehr teilungsfähig. Sie wachsen im Erythrocyten viel stärker heran als die Agameten, wechseln auch den Sitz nicht so oft und schädigen daher die Wirtszelle viel intensiver als die Agameten dies tun.
Früh schon lassen sich Unterschiede zwischen den männlichen und weiblichen Gameten erkennen, welche in ähnlicher Weise sich differenzieren, wie das für die Coccidien und Malariaparasiten bekannt ist: die Mikrogametocyten sind blaß, schwach färbbar, haben großen Kern und großen Blepharoplasten. Die Makrogametocyten haben reichlich Reservestoffe, sind dunkel färbbar und haben kleinen Kern und kleinen Blepharoplast. Zum Unterschied von den Malariaparasiten erfolgt die Teilung des Kerns in 8 Tochterkerne (und entsprechend des Blepharoplasts in 8 Teilstücke) noch im Blut des Vogels.
In letzteren erfolgt aber die Befruchtung nicht; die Mikrogametocyten gehen bald zugrunde, wenn sie nicht aufgesaugt werden, die Makrogametocyten können, ähnlich wie diejenigen von Plasmodien, sich [S. 452]parthenogenetisch fortpflanzen und zu Rezidiven Anlaß geben (vgl. S. 195).
Das Blut der Eule muß von Culexarten aufgesaugt werden, damit die Befruchtung des „Trypanosoma“ noctuae eintritt. Dieselbe erfolgt ganz in der den Malariaparasiten entsprechenden Weise (vgl. die Abbildungen Fig. 383 D, D1 und E). Nur ergeben sich erhebliche Komplikationen nach Schaudinns Schilderung dadurch, daß der Blepharoplast an den Reifungsteilungen und am Befruchtungsakt sich ebenfalls beteiligt. Die normale Chromosomenzahl (8) wird in beiden Gameten bei der Reifung auf die Hälfte (4) reduziert.
Die nach der Befruchtung zunächst kugelige Zygote streckt sich in die Länge, wird beweglich und schnürt den hinteren Teil ihres Körpers mit dem Pigment ab (Fig. 383 G, H, I), sie wird also zu einem Ookineten.
Aus den Ookineten entstehen im Mückenmagen Trypanosomen; aber schon die Ookineten sind in verschiedenem Maß reich an Reservesubstanzen und haben verschieden große Kerne. Nach Schaudinn entstehen aus den großen, reservestoffreichen Ookineten mit kleinem Kern Weibchen, aus den kleinen, reservestoffarmen, mit großem Kern versehenen Männchen, aus den in diesen Eigenschaften in der Mitte stehenden indifferente Formen.
Letztere entstehen aus dem Ookineten, indem der ganze Lokomotionsapparat durch Spindelbildungs- resp. Teilungsvorgänge vom Kern sich ableitet. Der Kern gibt zuerst durch eine heteropole Mitose den Blepharoplast ab, dieser wieder einen kleineren Kern, aus welchem eine Spindel entsteht, welche sich stark in die Länge streckt und in der auf S. 43 erläuterten Weise Myoneme, undulierende Membran und Geißel bildet.
Diese indifferenten Trypanosomen vermehren sich im Mückenmagen intensiv durch Zweiteilung, wobei sie viel kleiner werden.
[S. 453]
Die „weiblichen“ Ookineten machen vor der Umwandlung in Trypanosomen sehr eigenartige Veränderungen am Kernapparat durch: Heteropole Teilung führt zur Bildung zweier verschieden großer Kerne; der kleinere von ihnen teilt sich durch rasch einander folgende Zweiteilungen in 8 kleine Kernchen, welche Hantelform annehmen und im hinteren Teil des Ookineten der Resorption anheimfallen, während aus dem im mittleren Teil des Körpers gebliebenen größeren Kern durch dieselben Vorgänge, wie sie oben geschildert wurden, der Bewegungsapparat gebildet wird.
Das so entstandene weibliche Trypanosom, welches sehr groß und sehr reich an Reservestoffen ist, ist scheinbar nicht imstande, sich durch Teilung zu vermehren. Auch seine Bewegungsfähigkeit und damit die Trypanosomenform gibt es bald auf, indem es sich an der Darmwand ansetzt, ja sogar zwischen oder unter das Darmepithel sich [S. 454]einbohrt. Diese Ruhestadien sind ganz besonders widerstandsfähig und bleiben, wenn die Mücke längere Zeit hungert, oft allein am Leben.
Sie sollen auch die Ovarien infizieren und die Vererbung der Infektion der Mücken vermitteln. — Wenn sie im Darm der Mücken allein übrig geblieben sind, so kann nach einem erneuten Blutsaugen von ihnen aus — nachdem sie einen eigenartigen Vorgang der Autogamie durchgemacht haben — der ganze Darmkanal wieder mit männlichen, weiblichen und indifferenten Trypanosomen überschwemmt werden, indem sie sich dann wieder vollkommen wie frisch entstandene Ookineten verhalten.
Aus den kleinen Ookineten mit hellem Plasma und großem Kern entstehen schließlich die männlichen Trypanosomen, und zwar geschieht das unter gleichzeitiger multipler Vermehrung, welche sehr an die Mikrogametenbildung erinnert (Fig. 385). Aehnlich wie bei der Bildung der weiblichen Trypanosomen werden nach einer heteropolen Mitose und 3 Zweiteilungen des kleinen Kerns 8 kleine Kerne gebildet, welche den großen Kern umgeben. Letzterer geht zugrunde, während von den 8 kleinen Kernen jeder durch Teilung seinen Blepharoplasten aus sich hervorgehen läßt (Fig. 385 D und E); dann erfolgt die Abschnürung von 8 Plasmaportionen und aus jeder derselben die Bildung eines kleinen Trypanosomas mit freier Geißel (Fig. 385 F). Nach Schaudinns Auffassung haben wir also gerade den umgekehrten Vorgang vor uns wie bei der Bildung der weiblichen Trypanosomen.
Diese männlichen Trypanosomen sollen nach Schaudinn auch nicht vermehrungsfähig sein und bald zugrunde gehen; eine sicher sehr merkwürdige Annahme, wie auch Lühe schon hervorgehoben hat.
Die im Mückendarm vorhandenen indifferenten und männlichen Formen werden auch häufig zu Rosetten agglomeriert angetroffen.
Die Befruchtung, Bildung und Umwandlung der Ookineten findet hauptsächlich im Mitteldarm der Mücke statt.
Während der Verdauung vermehren sich die indifferenten Trypanosomen sehr intensiv; wenn aber die gesaugte Blutmasse fast verdaut ist, setzen sich die vorhandenen Individuen hauptsächlich im hinteren Teil des Mitteldarms als Ruhestadien an die Darmwand an. Auch in diesem Ruhezustand kommt noch Vermehrung durch Zweiteilung vor.
Wenn nun die Mücke wieder Nahrung aufnimmt, findet eine neue „Schwärmperiode“ der in freie Trypanosomen sich umwandelnden, sich stark vermehrenden Parasiten statt. Gegen das Ende dieser Verdauungsperiode drängen sie sich an den in den Mitteldarm invaginierten Vormagen und bilden dort am Epithel kolossale Klumpen.
Beim dritten Blutsaugen der Mücke wird die Cuticula des von den Parasiten besetzten Vormagenepithels abgestoßen und der ganze Klumpen wandert den Darm abwärts bis in den Enddarm; an der Basilischen Kurvatur, der engsten Stelle des Darms, tritt eine Stockung ein. Hier durchbrechen die Parasiten die Darmwand, geraten in den Blutstrom, infizieren den ganzen Körper, vor allem auch die Ovarien, und werden in der Halsregion der Mücke, in der Umgebung [S. 455]des Pharynx wiederum angehäuft. Durch entstehende Verletzungen geraten sie in den Pharynx und werden beim neuerlichen Stechen der Mücke wieder in das Blut des Steinkauzes übertragen.
Die Mehrzahl der ins Vogelblut neu gelangenden Trypanosomen sind nach Schaudinns Annahme indifferente Formen, doch mögen auch männliche und weibliche Individuen mit übertragen werden. Die weiblichen sollen sich dann direkt zu Makrogametocyten entwickeln, die männlichen jedoch ebenso rasch wie in der Mücke zugrunde gehen.
2. Trypanosoma (Spirochaete) Ziemanni Lav. = Leucocytozoon Ziemanni Lav.
Diese Form soll sich in vielen Beziehungen ähnlich verhalten wie „Trypanosoma“ noctuae. Die frisch in die Eule geratenen sehr dünnen, schmalen Trypanosomen (Spirochätenstadien [vgl. Fig. 391]) überschwemmen deren Blut. Erst die Gameten nehmen ausgesprochenere Trypanosomenform an. Sie finden sich ganz vorwiegend in den blutbereitenden Organen des Vogels (in Knochenmark, Milz etc.), wo sie sich von den jungen, noch hämoglobinfreien Erythroblasten ernähren. Da die Gameten viel größer werden als ihre Nährzellen, so sind sie nicht imstande, in dieselben einzudringen, vielmehr nehmen sie dieselben in ihren eigenen Körper auf, „indem sie ihn an ihrem Hinterende befestigen und in ihr Plasma hineinziehen. Hierbei wird er an der Grenze von Ektoplasma und Entoplasma in Gestalt eines langgestreckten, hantelförmigen Körpers abgelagert, sein Plasma wird verdaut, während der Kern beim Uebergang zu der nächsten Schwärmperiode wieder ausgestoßen wird“ (vgl. Fig. 387 B u. D u. 388).
Die Gameten resp. Gametocyten erscheinen in zwei Formen gesondert, welche sich nicht mehr teilen. Die eine dunkel färbbare, mit kleinem Kern und Blepharoplast und ohne freie Geißel (Fig. 387 und 388 A und B), ist die weibliche Form. Die andere mit hellem Plasma, großem Kern und Blepharoplast und freier Geißel ist die männliche Form. Beide haben sehr deutliche Myoneme und gut ausgebildete undulierende Membran. Beide wechseln während des Wachstums zwischen Schwärmstadien und Ruhestadien ab.
In den Ruhestadien wachsen sie stark, verlieren die Bewegungsorgane und ändern ihre Form sehr, so daß sie — da außerdem in ihrem Innern noch der stark deformierte Erythroblastenkern enthalten ist — einen fremdartigen, schwer zu deutenden Anblick darbieten.
[S. 456]
Schaudinn deutet das ganze Gebilde als entstanden durch Abhebung, Dehnung und Erstarrung des Ektoplasmas, während frühere Beobachter meist annahmen, daß Parasitismus in Leukocyten vorläge, daß also die spindelförmige Hülle nicht vom Parasiten selbst gebildet sei. Auch hier erfolgt die Befruchtung außerhalb des Bluts der Eule, und zwar ebenfalls im Magen von Culex pipiens. Der entstehende Ookinet ist [S. 457]lang, würmchenförmig und eben der vorher geschilderten Art ähnlich (Fig. 391 A). Auch hier unterscheidet Schaudinn die drei Typen von Ookineten, welche sich aber alle drei zunächst gleich verhalten. Sie wachsen nämlich zu einem langen wurstförmigen Gebilde aus, welches durch wiederholte Teilungen eine Menge gleichartiger kleiner Kerne erhält. Um je einen Kern sondert sich eine Plasmaportion ab, welche lang-fadenförmig (spirochätenähnlich) wird, indem aus dem Kern nach einer heteropolen Mitose sich der Blepharoplast und aus diesem der Bewegungsapparat in derselben Weise herausdifferenziert hat, wie dies oben für „Trypanosoma“ noctuae angegeben wurde. Und wie es für diese Form S. 452 geschildert wurde, so entwickeln sich auch hier die drei Typen von Trypanosomen.
Diese letzteren nannte Schaudinn zunächst Spirochäten, da er sie vollkommen mit den echten Spirochäten identifizierte, bei denen er das Vorhandensein der Trypanosomenorganisation, Kern, Blepharoplast etc. voraussetzte. Er überzeugte sich später aber selbst, daß dieser Schluß übereilt gewesen war. In allen Stadien läßt sich daher nach seinen Untersuchungen bei Leucocytozoon die Trypanosomenorganisation erkennen, wenn seine Deutung der Gameten richtig ist, nur die Zygote nimmt vorübergehend die Ookinetenform an.
Die kleinen Trypanosomen schwärmen nämlich im Mückendarm unter Zurücklassung eines beträchtlichen Restkörpers aus. Die indifferenten Formen vermehren sich sehr lebhaft, werden dabei zum Teil außerordentlich klein, so daß sie schließlich mit den stärksten Vergrößerungen nicht mehr wahrnehmbar sind.
Alle bisher geschilderten Vorgänge von der Befruchtung ab finden innerhalb der ersten Verdauungsperiode der Mücke statt. Die spirochätenförmigen Stadien wandern am Ende derselben (im Gegensatz zu dem „Trypanosoma“ noctuae) in die Malpighischen Schläuche und [S. 458]gelangen nun in den Zellen dieses Organs zur Ruhe. Bei der Epithelabstoßung der Malpighischen Schläuche gelangen mit den Zellballen große Massen von spirochätenförmigen Trypanosomen in den Enddarm der Mücke und werden wiederum an der Basilischen Kurvatur aufgehalten. Von da an ist das Schicksal der Parasiten ganz entsprechend demjenigen, welches wir vorher bei den entsprechenden Stadien von „Trypanosoma noctuae“ kennen gelernt haben. Indem die spirochätenförmigen Trypanosomen in das Blut der Eule gelangen, eröffnen sie von neuem den ganzen Zeugungskreis.
Obwohl die Ansichten und Beobachtungen Schaudinns an den Blutparasiten der Eule bisher keine ausschlaggebende Bestätigung erfahren haben, war es notwendig, in diesem Lehrbuch seine Ergebnisse ausführlich darzustellen wegen der großen Bedeutung, welche sie für die Protozoenkunde haben, wenn sie sich bestätigen. Aber wenn sie sich auch in manchen Punkten als irrtümlich herausstellen sollten, vieles ist sicher an ihnen richtig beobachtet; und jetzt schon haben sie in der Protozoologie eine historische Stellung durch die befruchtende Wirkung, welche sie auf das ganze große Gebiet der Parasitologie des Bluts sowie der Morphologie und Entwicklungsgeschichte der Flagellaten und Sporozoen ausgeübt haben.
Während nicht nur Schaudinns Schüler, sondern auch eine Anzahl weiterer englischer, französischer und deutscher Forscher seine Anschauungen angenommen haben, ist es besonders die Schule Novys, welche auf Grund von gewichtigen Tatsachen an seinen Ergebnissen Kritik übt.
Novy, MacNeal u. a. gehen dabei von der Annahme aus, daß die große Komplikation im Zeugungskreis der von Schaudinn angenommenen beiden Eulenblutparasiten sich dadurch erkläre, daß Schaudinn Entwicklungsstadien mehrerer Organismen miteinander verquickt habe. Eine sehr wesentliche Bedeutung der Schaudinnschen Entdeckungen lag ja darin, daß ein Zusammenhang zwischen den Parasiten des Blutplasmas und denjenigen der Blutzellen erwiesen schien. Novy ist aber der Ansicht, daß die Blutzellparasiten (besonders Haemoproteus noctuae; über Leucocytozoon Ziemanni hat er sich noch nicht genauer ausgesprochen) ihren Zeugungskreis in einer den übrigen Hämosporidien durchaus entsprechenden Weise durchmachen. Die im Eulenblut vorhandenen Trypanosomen hält er für eine vollkommen von Haemoproteus und Leucocytozoon unabhängige Form, welche sich niemals in intracelluläre Stadien umwandle. Das gleichzeitige Vorkommen im Blut sei auf eine Mischinfektion zurückzuführen, welche bei den Eulen sehr häufig vorkomme: es seien nicht selten im Blut nebeneinander: Trypanosoma, Haemoproteus, Leucocytozoon, Proteosoma und noch dazu eine Filaria vorhanden. Dazu kommt schließlich noch nach Töpfer eine echte Spirochäte.
Die im Darm der Mücken vorgefundenen Stadien erklärt Novy folgendermaßen: nach den Befunden von ihm selbst und zahlreichen anderen Forschern sind die Mücken überall sehr reichlich mit Herpetomonas- und Crithidiaarten infiziert. Auf deren bewegliche und festgeheftete Formen seien eine ganze Anzahl der von Schaudinn beschriebenen Stadien zurückzuführen. Sie seien den Mücken eigentümliche Parasiten und hätten nichts mit Blutzellparasiten der Wirbeltiere zu tun. Ferner seien die aus dem Vogelblut gesaugten Trypanosomen [S. 459]zunächst als solche im Mückendarm enthalten; denn die Vögel seien auffallend oft mit Trypanosomen infiziert, die oft in so geringer Menge vorhanden seien, daß sie in Präparaten nicht zu finden sind, während sie sich in Kulturen aus solchem Blut massenhaft entwickeln. Schließlich seien, wie das ja oben (S. 358) schon belegt ist, an vielen Orten die Culiciden auch mit Spirochäten infiziert gefunden worden.
Seine Befunde an Kulturen von Trypanosomen aus Wirbeltieren und Darmparasiten der Mücken auf künstlichen Nährböden bestärken ihn in seiner Ansicht. Er hat festgestellt, daß die Herpetomonas- und Crithidiaarten in den Kulturen ebenso wie im vollgesaugten Mückenmagen oft sehr trypanosomenähnliche Formen annehmen, während umgekehrt Trypanosomen in den Kulturen herpetomonasähnlich werden.
Nachdem er in dieser Weise alle Fehlerquellen aufgedeckt hat, welche für Schaudinn vorhanden waren, der ja, wie er selbst angibt, mit Mischinfektion arbeitete, und welcher die zahlreichen Parasiten der Mücken noch nicht kannte, betont er ferner die Ergebnislosigkeit reiner Infektionen.
Wenn Infektionen mit Trypanosomenkulturen gelangen, so traten im Blut niemals intracelluläre Stadien, welche mit Haemoproteus oder Leucocytozoon zu identifizieren gewesen wären, auf. Das gelang weder ihm, noch Thiroux, noch Wasielewski. Ebensowenig gelang die Zucht von Trypanosomen bei Infektion von nur mit Haemoproteus infiziertem Blut.
Und schließlich dient der Meinung Novys noch als Stütze, daß man bei allen anderen genauer untersuchten Trypanosomenformen keine intracellulären Stadien hat finden können. Auch ist von keinem Untersucher bisher in einwandfreier Weise der von Schaudinn angegebene Zeugungskreis bestätigt worden, vielmehr ist, wie unten gezeigt werden wird, bei einer andern Haemoproteusart (H. columbae) ein ganz anders gearteter Zeugungskreis beschrieben worden.
Zwar schienen zuerst die interessanten Arbeiten von Ed. und Et. Sergent eine solche Bestätigung zu bringen. Aber die angeführten Bedenken Novys und seiner Mitarbeiter gegen Schaudinns Zuchten gelten auch gegenüber denjenigen der Sergents, da es nicht ausgeschlossen ist, daß die von ihnen verwandten jungen Eulen schon infiziert waren; die Infektion der Nestlinge bei den Vögeln scheint sehr häufig zu sein; ihr Aufenthalt im Nest und ihre Federlosigkeit macht die jungen Vögel in den ersten Tagen schon vielfach zu einer leicht von den Stechfliegen ausnutzbaren Blutquelle. Auch muß man damit rechen, daß die von den Sergents gezüchteten und später an die Eulen gesetzten Schnaken schon als Larven infiziert waren; vor allem da sie selbst nachgewiesen haben, daß die Infektion der Larven in Algier, wo sie experimentierten, sehr häufig ist.
Neuerdings glaubt Martin Mayer bei einem „Halteridium“ aus dem Waldkauz Entwicklung von Flagellaten aus den Blutkörperchenparasiten nachgewiesen und die Untersuchungen Schaudinns an Haemoproteus und Leucocytozoon in wesentlichen Punkten bestätigt zu haben. Er hat aus Blut, in welchem durch genaue mikroskopische Prüfung keine Trypanosomen nachweisbar waren, solche gezüchtet etc. Doch machen seine Darlegungen und seine Abbildungen einen wenig überzeugenden Eindruck.
Die Hauptstütze, welche den Schaudinnschen Ansichten seit seiner eigenen Arbeit erwachsen ist, wird durch die Untersuchung der [S. 460]Hämosporidien geliefert. Das so häufige gleichzeitige Vorkommen von Trypanosomen und gewissen Haemoproteus nahestehenden Hämosporidien (Halteridiumformen) könnte man ja eventuell mit Novy auf Mischinfektionen zurückführen. Aber die zahlreichen Befunde, welche bei Hämosporidien Organisationseigentümlichkeiten oder Stadien kennen gelehrt haben, welche an die Trypanosomen erinnern, und vor allem die Möglichkeit, theoretisch eine Reihe aufzustellen, in welcher sich eine successive Abnahme der Trypanosomeneigenschaften feststellen läßt, müssen uns veranlassen, nicht vorschnell ein Urteil auszusprechen. So wird von Hartmann, Prowazek u. a. angenommen, daß nicht alle Haemoproteusarten mehr die Fähigkeit haben, in den Trypanosomenzustand zurückzukehren; sie nehmen mit der Anpassung an den Zellparasitismus eine zunehmende Rückbildung des Lokomotionsapparates an. Doch finden sie in den intracellulären Zuständen in den Blepharoplasten das Rudiment des Lokomotionsapparates der Trypanosomen mit Zähigkeit festgehalten. Ferner betont besonders Hartmann das schon von Schaudinn entdeckte Vorkommen von trypanosomenähnlichen Stadien bei den Malariaparasiten, das von ihm selbst gefundene Vorkommen solcher Stadien bei Proteosoma, ferner die Flagellatenstadien bei Babesia und Leishmania, wobei immer das Vorkommen des Blepharoplasts hervorgehoben wird.
Da ich zweifle, ob man dem Lokomotionsapparat bei derartigen Spekulationen eine solche Bedeutung beimessen darf, ferner das Vorkommen ganz ähnlicher Strukturen und Stadien bei anderen Flagellaten, bei Schwärmsporen von Pflanzen, Spermatozoen von Pflanzen und Tieren bedenke, welches uns veranlassen muß, an Konvergenz zu denken, schließlich die Lückenhaftigkeit unserer Kenntnisse auf diesem ganzen Gebiet hervorhebe, so halte ich die Meinung von Novy für gerechtfertigt, daß die Beweisführung Schaudinns über die Natur der von ihm studierten Parasiten des Eulenbluts nicht zwingend ist. Es ist daher ein abschließendes Urteil nicht möglich, ehe womöglich in Rovigno selbst, wo Schaudinn seine so bedeutsamen Untersuchungen machte, die Experimente mit reinen Zuchten unter Berücksichtigung aller seither notwendig gewordenen Kritik und Kautelen eine genaue Nachuntersuchung gefunden haben.
Aus diesem Grunde habe ich auch die von Hartmann vorgeschlagene Vereinigung der Hämosporidien mit den Trypanosomen unter dem Namen der „Binucleata“ nicht angenommen. Zweifelhaft erscheint mir vorläufig nicht nur die Kernnatur des Blepharoplasts, sondern auch dessen Bedeutung für Aussagen über die Verwandtschaft von Protozoen.
D. Trypanosomen aus dem Blut von Reptilien.
Auch bei Reptilien sind in einer ganzen Anzahl von Fällen, besonders bei Schildkröten, aber auch bei Schlangen, Eidechsen und Krokodilen, Trypanosomen im Blut gefunden worden, welche vermutlich durch Blutegel oder Zecken verbreitet werden. Schon Leydig hat in Ixodes testudinis Trypanosomen in Magen und Darm gefunden. Sehr bemerkenswert ist die Tatsache, daß auch bei Reptilien vielfach gleichzeitig mit den Trypanosomen Hämogregarinen vorkommen. Dies kann für Schaudinns Ansicht der Zusammengehörigkeit beider Gruppen sprechen, es kann aber auch dadurch bedingt sein, daß beide [S. 461]Formen durch den gleichen Blutsauger unabhängig voneinander übertragen werden.
Besonders hervorzuheben sind:
a) Trypanosoma damoniae Lav. und Mesnil
|
1902.
|
Laveran et
Mesnil, Sur quelques Protozoaires parasites d’une
Tortue d’Asie. In: C. R. Acad. Sciences. Paris. T. 135. 20. Oct. 1902.
|
aus der Schildkröte Damonia Reevesi (Gray), welche in Japan und China vorkommt, 32 µ lang, 4 µ breit.
b) Trypanosoma Boueti Martin
|
1907.
|
Martin, G., Sur un Trypanosome
de Saurien. In: C. R. Soc. Biologie. Paris. T. 62. p. 594.
|
aus der Eidechse Mabuia Raddonii; gefunden bei Kollangui in Französisch-Guinea. Auffallend durch die an T. rotatorium erinnernde Form und den spindelförmigen Kern, an dessen einem Ende der kleine Blepharoplast sitzt. Länge des Tiers ca. 40 µ.
Auch die Trypanosomen aus den Krokodilen des Victoria Nyansa besitzen nach Koch eine ähnliche Gestalt.
#Die Trypanosomen der Amphibien sind schon oben S. 423 mit T. rotatorium erörtert worden.
E. Trypanosomen aus Fischen.
In zahlreichen Fischen, und zwar sowohl Süßwasser- als auch Meeresbewohnern, sind echte Trypanosomen nachgewiesen worden. Viele von ihnen sind als besondere Arten beschrieben worden, und zunächst dürfen wir wohl annehmen, daß es eine Anzahl von Arten tatsächlich gibt. Von den gegenwärtig für fast jeden Wirt besonders benannten Arten werden aber sicherlich viele wieder aus der Literatur verschwinden.
Schon in der ersten Auflage dieses Buchs waren die beiden folgenden Formen beschrieben:
[S. 462]
a) Trypanosoma cobitis Mitrophanow.
|
1884.
|
Haematomonas cobitis Mitrophanow,
Biolog. Centralblatt. Vol. 3. p. 35.
|
Sehr lange, dünne, würmchenartige Tiere von stark lichtbrechendem Protoplasmakörper; derselbe ist sehr schmal und der Länge nach mit einer spiralig gewundenen undulierenden Membran besetzt. Beide Körperenden sind zugespitzt, das eine rascher, das andere langsamer zulaufend. Das langsamer zulaufende Ende ist in eine Geißel verlängert, welche bei der Bewegung stets vorausgeht. Die undulierende Membran ist beim normalbeweglichen Tier schwer zu sehen (Fig. 393 A); wenn das Tier sich jedoch beim Absterben oder unter dem Einfluß von Reagentien zusammenzieht, so wird die Anordnung der Membran sehr deutlich (Fig. 393 B). Allerdings werden die Formverhältnisse dann sehr verändert. — Das Tier ist sehr lebhaft und rasch beweglich.
Körnelung des Protoplasmas ist nur bei Formen beobachtet worden, die entweder als Degenerations- oder als Fortpflanzungsstadien aufgefaßt werden müssen. Zwei stark lichtbrechende Körper, welche öfters beobachtet wurden, sind wohl als Kern und Blepharoplast zu deuten.
Das Trypanosoma cobitis mißt 30–40 µ in der Länge, 1–1½ µ in der Breite. Die Geißel erreicht 10 bis 15 µ Länge.
Fortpflanzungszustände sind nicht bekannt, ebensowenig Dauerformen.
Das Tier findet sich im Blut von Cobitis fossilis, dem Schlammpeitzger. Ueber eine pathologische Bedeutung ist nichts bekannt geworden.
b) Trypanosoma carassii Mitrophanow.
|
1884.
|
Haematomonas carassii Mitrophanow,
Biolog. Centralblatt. Vol. 3. p. 35.
|
Sehr ähnlich dem vorigen; jedoch mehr abgeflacht. Die undulierende Membran ist ziemlich hoch. Körper an beiden Seiten mehr gleichmäßig zugespitzt. (Fig. 394 A und B.)
Das Tier ist größer als die vorige Art, nicht so metabolisch wie T. cobitis, auch in konserviertem Zustand erhält sich die Form der undulierenden Membran und ihr Verhältnis zum Körper besser.
Träger in den Bewegungen als T. cobitis; die Bewegung wird hauptsächlich durch die Schwingungen des freien Randes der undulierenden Membran bewerkstelligt. Die Geißel biegt sich beim Schwingen nur an ihrer Basis.
Das Körperplasma ist homogen, von Kernen ist bisher nichts beobachtet worden, ebensowenig von Fortpflanzungs- und Dauerzuständen.
Die Art parasitiert in Carassius vulgaris, der Karausche, ist aber nicht häufig. Ueber einen schädigenden Einfluß auf den Wirt ist nichts bekannt geworden; ich selbst hatte allerdings einmal Gelegenheit, eine sehr ähnliche, vielleicht sogar identische Art im Blut [S. 463]der Schleie, Tinca vulgaris, zu beobachten; die befallenen Schleien waren offenbar krank, sie waren sehr apathisch und waren an die Station zur Untersuchung von Fischkrankheiten infolge eines großen Sterbens in den betreffenden Weihern eingesandt worden.
Diesen Formen stehen jedenfalls die Arten sehr nahe, welche unter den Namen T. Remaki Lav. u. Mesn. (Fig. 392) aus Esox lucius L., dem Hecht, T. Danilewskyi Lav. u. Mesn. aus Cyprinus carpio (L.), dem Karpfen, T. tincae Lav. u. Mesn. aus Tinca tinca (L.), der Schleie, T. abramis Lav. u. Mesn. aus Abramis brama (L.), dem Brachsen, T. granulosum Lav. u. Mesn. aus Anguilla anguilla (L.), dem Aal, T. barbatulae Lég. aus Cobitis barbatula L., der Grundel, beschrieben worden sind.
Außerdem sind Trypanosomen bei folgenden Süßwasserfischen gefunden worden: Perca fluviatilis L., dem Barsch, Acerina cernua (L.), dem Kaulbarsch, Lota lota (L.), der Trüsche, Idus idus (L.), dem Nerfling, Scardinius erythrophthalmus (L.), der Rotfeder, Leuciscus rutilus (L.), der Plötze, Squalius cephalus (L.), dem Aitel (in Deutschland durch Keysselitz); bei der Welsgattung Macrones (Lingard in Indien), bei der Welsgattung Clarias (Montel in Cochinchina; Dutton, Todd und Tobey im Kongostaat). Dazu kommen noch zahlreiche weitere Beobachtungen von Léger, Brumpt u. a.
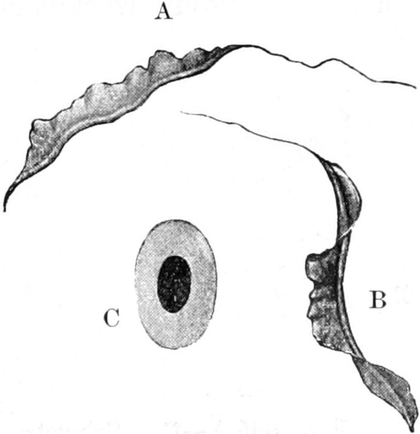
Laveran und Mesnil, Robertson, Brumpt u. a. haben ferner in zahlreichen marinen Teleostiern und Selachiern Trypanosomen nachgewiesen. Als Beispiele führe ich an: T. soleae Lav. u. Mesn. aus Solea solea (L.) im Kanal (vgl. Fig. 28 A, S. 28), T. platessae Lebailly aus Platessa platessa (L.), T. limandae Brumpt u. Leb. aus Limanda limanda (L.), T. gobii Brumpt u. Leb. aus Gobius niger L., T. scyllii Lav. u. Mesn. aus Scyllium canicula Cuv. und Scyllium stellare L., T. rajae L. u. Mesn. aus Raja punctata Risso und anderen Rajaarten (vgl. Fig. 340, S. 393) etc. etc.
Die meisten dieser, wie es scheint seltenen, Bewohner von Meeresfischen sind relativ sehr groß. Es ist sehr wahrscheinlich, daß sie, ebenso wie die Trypanosomen der Süßwasserfische, durch Hirudineen (Blutegel) übertragen werden. Bei Süßwasserfischen ist dies bisher für die Blutegel der Gattungen Hemiclepsis (H. marginata) und Piscicola (P. geometra) bewiesen, bei Meeresfischen für Pontobdella muricata mit einem hohen Grad von Wahrscheinlichkeit angenommen worden. In den Blutegeln wandeln sich die Trypanosomen in Formen um, welche die oben erwähnten Differenzen zeigen. Im Lauf der Zeit scheinen sie aber zu herpetomonasähnlichen Formen zu werden. Geschlechtliche Vorgänge sind nicht beobachtet worden; das häufige Vorkommen von Hämosporidien in den gleichen Fischen hat manche Autoren veranlaßt, an ähnliche Kombinationen zu denken, wie sie Schaudinn für die Eulenparasiten annahm (vgl. S. 450 ff.).
[S. 464]
Gattung: Schizotrypanum Chagas.
Schizotrypanum Cruzi Chagas.
|
1909.
|
Chagas, C., Neue Trypanosomen.
In: Arch. f. Schiffs- u. Tropenhyg. 1909. Heft 4.
|
|
1909.
|
Chagas, C., Ueber eine neue
Trypanosomiasis des Menschen. Studien über Morphologie und
Entwicklungscyklus des Schizotrypanum Cruzi n. gen. n. sp., Erreger einer
neuen Krankheit des Menschen. In: Mem. Inst. Oswaldo Cruz. Rio de Janeiro,
Ano 1909. T. 1. Fac. II. p. 159.
|
|
1910.
|
Hartmann, M., Notiz über eine
weitere Art der Schizogonie bei Schizotrypanum Cruzi (Chagas). In: Arch. f.
Protistenk. Vol. 20. p. 361.
|
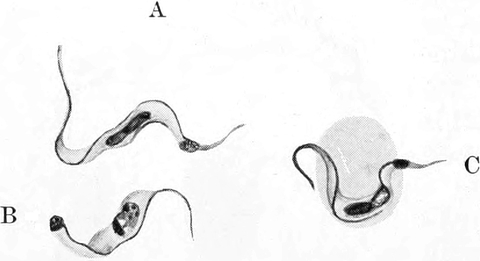
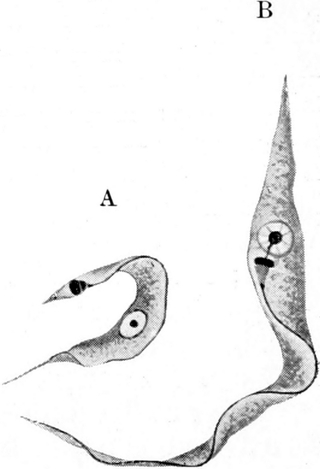
Im Jahre 1907 entdeckte Chagas in Brasilien einen Flagellaten, welcher sich in der Folge als ein Parasit des Menschen herausstellte und infolge seiner Besonderheiten große theoretische Bedeutung besitzt. Leider ist er noch sehr wenig untersucht und es bestehen über seine Fortpflanzung noch wesentliche Unklarheiten, so daß das eigentliche Wesen dieser Form noch nicht klar beurteilt werden kann. Da jedenfalls spätere Untersuchungen wesentliche Abweichungen von den bisherigen Befunden erbringen werden, so sei die nachfolgende Darstellung relativ kurz. Es handelt sich um ein Trypanosoma, welches von den anderen säugetierpathogenen Trypanosomen in wesentlichen Punkten abweicht. Es sind schlanke Formen, welche einen vielfach endständigen Blepharoplast zeigen, der meist relativ groß ist. Es ist ein ausgesprochener Dimorphismus vorhanden. Obwohl nun im peripheren Blut sich nicht selten Kernteilungsstadien finden, war nie eine Längsteilung im freien Zustand nachzuweisen. Vielmehr soll die agame Fortpflanzung nur in den Kapillaren der Jungen der infizierten Säugetiere vor sich gehen. Hierzu kugelt sich das Trypanosoma in verschiedener Weise ab und sein Körper, den eine blasse Hülle einschließt, zerfällt durch eine Art von „Schizogonie“ in 8 Sprößlinge (Fig. 397 A–D). Dabei sollen stets zwei verschiedene Methoden eingeschlagen werden: bei den einen geht schon bei der Einkugelung der Blepharoplast des Muttertiers verloren und aus der Teilung gehen blepharoplastlose Nachkommen hervor. Bei der anderen behält das Muttertier seinen Blepharoplast und überträgt ihn durch Teilung auf seine Nachkommen. Dieser verschiedene Teilungsmodus wird von Chagas und Hartmann als Anzeichen eines sexuellen Dimorphismus gedeutet.
[S. 465]
Aus der „Schizogonie“ gehen kleine Sprößlinge hervor, welche plasmodiumartig in die roten Blutkörperchen des Wirts eindringen und in ihnen allmählich heranwachsen. Während des Wachstums sollen sie sich allmählich in typische Trypanosomen umwandeln, welche mehr und mehr von den roten Blutkörperchen frei werden, zum Teil nur mit dem Blepharoplast an ihnen kleben, schließlich frei im Blutplasma umherschwimmen.
Hartmann hat neuerdings eine „weitere Art der Schizogonie“ beschrieben, welche im Innern von stark hypertrophierten Endothelien der Lunge vor sich geht. Die sich teilenden Schizotrypanen sind größer und liefern größere Produkte als die von Chagas beschriebenen Schizogoniestadien. Chagas hat den Befund von Hartmann bestätigt und auch solche Formen in der Herzmuskulatur und im Gehirn von an „Schizotrypanosomiasis“ gestorbenen Menschen gefunden. Beide Autoren nehmen an, daß die neu gefundenen Teilungsformen die eigentliche ungeschlechtliche Vermehrung von Schizotrypanum darstellen, „während die kleineren, sexuell differenzierten Teilungsformen mit 8 Teilprodukten als Gametogonie aufzufassen sind“. Diese Annahme scheint mir nicht recht mit den Angaben von Chagas zu harmonieren, z. B. mit der Angabe, daß diese kleinen Vermehrungsstadien hauptsächlich im Anfang einer Infektion massenhaft auftreten.
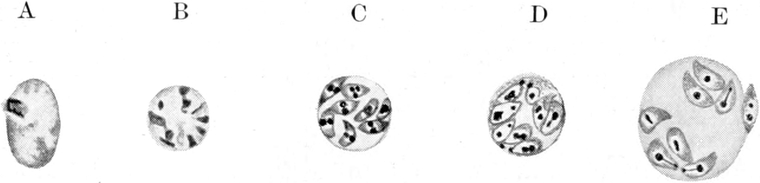
Die Uebertragung von einem Säugetier auf das andere wird durch die blutsaugende Wanze aus der Gruppe der Harpactiden, Conorhinus megistus Burm. bewirkt. Es ist dies ein Tier, welches z. B. in der brasilianischen Provinz Minas Geraes sehr viel im Freien und in menschlichen Wohnungen vorkommt.
Schizotrypanum Cruzi wurde beim Menschen und bei Haustieren (Katze) gefunden. Es ist im Experiment sehr leicht auf Meerschweinchen, Kaninchen, Hunde und Affen (Callithrix penicillatus) zu übertragen, und zwar sowohl durch den Stich der Wanze, als auch durch Blutinjektion. Für alle diese ist es pathogen, wie auch für den Menschen, bei welchem es eine schwere, tödliche, vor allem die Kinder befallende Krankheit erzeugt. Dieselbe ist charakterisiert durch hochgradige Anämie, Lymphdrüsenschwellungen, Oedeme und funktionelle Störungen des Nervensystems, verbunden mit einem ziemlich unregelmäßigen intermittierenden Fieber.
[S. 466]
In den Wanzen zeigen die Schizotrypanen Veränderungen, welche von Chagas wohl mit Unrecht als Anzeichen geschlechtlicher Fortpflanzung gedeutet werden. Die gleichen Formen treten in Kulturen auf künstlichen Nährböden nach Novy auf, die sehr leicht gelingen. In den Wanzen vermehren sich die Parasiten im hinteren Teil des Mitteldarms, später findet man das Lacunom und die Speicheldrüsen infiziert. Nur ein geringer Prozentsatz der Wanzen wird infektiös; die Verhältnisse liegen ähnlich wie bei den Tsetsen. Künstlich infizierte Larven der Wanzen wurden erst nach 8–10 Tagen infektiös. Infektionen durch Injektion von trypanosomenhaltigem Darminhalt der Wanzen sowie von künstlichen Kulturen gelingen nicht immer.
Aus den bisherigen Untersuchungen geht jedenfalls hervor, daß es sich um einen in praktischer und theoretischer Hinsicht sehr wichtigen Organismus zu handeln scheint, über den wir weitere Aufschlüsse mit Spannung erwarten dürfen.
Da bei dem Affen Macacus cynomolgus in Südostasien eine dem Schizotrypanum im ausgewachsenen Trypanosomenstadium sehr ähnliche Form, das T. Vickersae Brumpt gefunden wurde, so hat man den Verdacht ausgesprochen, daß sich in Asien auch eines Tages beim Menschen ein Trypanosoma wird nachweisen lassen. In der Literatur finden sich tatsächlich einige Angaben über ein asiatisches Menschentrypanosoma, doch sind sie alle ungenügend begründet.
Gattung: Endotrypanum Mesnil u. Brimont.
|
1908.
|
Mesnil et
Brimont, Sur un hématozoaire nouveau (Endotrypanum
n. gen.) d’un édenté de Guyane. In: C. R. Soc. Biol. Paris. Vol. 65. p. 581.
|
In dem Blut des Faultiers Choloepus didactylus (L.), in Französisch-Guiana (Südamerika) fand sich in den Erythrocyten ein sehr merkwürdiger Parasit. Es ist ein keulenförmiger, oft gekrümmter Organismus, dessen eines Ende plump abgerundet ist, während das andere in ein oft gekrümmtes Filament ausläuft. Der Körper hat einen größten Durchmesser in der Länge von 8–11 µ, in der Breite von 2,5–4 µ. Im Innern des gleichmäßig sich färbenden Plasmas unterscheidet man einen kugeligen Kern und einen stäbchenförmigen, stark färbbaren Körper, den Blepharoplast. Weitere Entwicklungsformen sind bisher noch nicht bekannt. Im Blut des gleichen Faultiers wurde auch ein Trypanosoma gefunden, welches aber von den Entdeckern nicht in Beziehung zu dem Endotrypanum gebracht wurde.
Der neue Blutkörperchenparasit, welcher infolge seiner Trypanosomenähnlichkeit eine große Bedeutung für die Schaudinnsche [S. 467]Hypothese der Ableitung der Hämosporidien von Trypanosomen besitzt, erhielt den Namen Endotrypanum Schaudinni Mesn. u. Brim.
Ueber diese wichtige Form ist leider in der Zwischenzeit nichts mehr bekannt geworden.
Gattung: Leishmania R. Ross.
|
1903.
|
Ross, R., in: Brit. Med. Journ. Vol. 2. p. 1261
u. 1401.
|
Unter dem Gattungsnamen Leishmania werden eine Anzahl von parasitischen Protozoen zusammengefaßt, welche bisher nur beim Menschen und Haushund gefunden worden sind. Sie sind echte Flagellaten und wohl am besten hier einzufügen; von manchen Autoren werden sie sogar der Gattung Herpetomonas resp. Leptomonas zugerechnet. Die Diagnose der Gattung ergibt sich aus der Schilderung der nachfolgenden Art.
1. Leishmania Donovani (Lav. u. Mesn.).
|
1903.
|
Piroplasma Donovani Laveran et
Mesnil, Sur un protozoaire nouveau, parasite d’une
fièvre de l’Inde. In: C. R. Ac. Sci. Paris. Vol. 137. p. 957.
|
|
1903.
|
Leishmania Donovani R. Ross.
|
|
1909.
|
Herpetomonas Donovani Patton,
The parasite of Kala-Azar and allied organisms. In: The Lancet. January
1909.
|
Die Parasiten sind kleine rundliche oder ovale Gebilde von 2–4 µ Durchmesser. Das Plasma ist fein granuliert und enthält öfter Vakuolen. Ferner umschließt es einen relativ großen dichten Kern und einen runden, ovalen oder häufig stabförmigen, ebenfalls stark färbbaren Körper, den Blepharoplast. Auch Teilungsstadien mit Verdoppelung dieser Strukturen finden sich; daneben kommen multiple Teilungsstadien vor.
Die Parasiten scheinen im menschlichen Organismus in allen möglichen Teilen vorzukommen, und zwar stets intracellulär. Regelmäßig werden sie in der Milz und in der Leber gefunden, ferner im Knochenmark, den Lymphdrüsen und Mesenterialganglien, in den Endothelien der Gefäße, auch in den Darmwandungen, in Lunge, [S. 468]Niere, Hoden. In der Darmwandung und in der Haut entstehen häufig Geschwüre. Vor allem findet man sie in Makrophagen, welche von Gefäßendothelien abgeleitet werden, manchmal auch in mono- und polynukleären Leukocyten eingeschlossen. In den Zellen finden sie sich oft in enormen Mengen, bis 100–200 Individuen in einer einzigen Zelle.
Das Vorkommen in roten Blutkörperchen, welches von Donovan angegeben war, wird von mehreren Autoren bestritten. Doch findet sich die Leishmania im peripheren Blut in Leukocyten, wenn auch recht spärlich.
In steril aufbewahrtem Blut von Menschen, welche mit L. Donovani infiziert sind, oder in Mischung von Blut (dem Natriumcitrat zur Verhütung der Gerinnung zugesetzt ist) mit Milzpunktionssaft findet eine eigenartige Umwandlung der Parasiten statt, wie zuerst von Rogers bewiesen wurde. Sie strecken sich in die Länge, entwickeln im Zusammenhang mit dem Blepharoplast eine Geißel und werden lebhaft beweglich. In diesem Zustand, in welchem sie sich durch Längsteilung vermehren, gleichen sie durchaus einer Leptomonas (vgl. S. 416).
Leishmania Donovani ist der Erreger einer sehr gefährlichen Krankheit, welche im tropischen Asien, in Indien, Ceylon, China, Arabien, ferner in Aegypten und Algier und im Sudan verbreitet ist. In Niederbengalen und in der Nähe von Madras ist sie endemisch. In Assam ist sie seit 1882 epidemisch aufgetreten und ist dort seither [S. 469]endemisch geworden. Sie ist vor allem bei ärmlicher Bevölkerung verbreitet, welche in dürftigen, unreinlichen Behausungen wohnt.
Die von dem Parasiten erzeugte Krankheit wird als „Malariakachexie“, tropische Splenomegalie, und neuerdings vorwiegend mit dem indischen Namen Kala-Azar bezeichnet. Es ist eine durch unregelmäßiges Fieber, bedeutenden Kräfteverfall und meist durch eine enorme Milzvergrößerung (häufig auch Lebervergrößerung) charakterisierte Erkrankung, welche sehr häufig zum Tode führt. Sie ist in den Tropen der alten Welt in einer chronischen endemischen Form weit verbreitet, welche gelegentlich in einer schweren epidemischen Form auftritt. Bei beiden Formen ist die Sterblichkeit groß.
Die Uebertragung erfolgt nach Patton in Indien durch die Wanze Cimex rotundatus, in deren Darm die Flagellatenformen genau so wie in den künstlichen Kulturen gebildet werden. Doch nimmt Donovan, dem es nicht gelang, Pattons Experimente zu bestätigen, an, daß nach Analogie der brasilianischen Trypanosomen des Menschen, Kala-Azar durch eine Raubwanze übertragen werde (Conorrhinus rubrofasciatus), welche in 90 Proz. der untersuchten Individuen in Madras mit Leptomonaden infiziert war.
Versuche der Uebertragung von L. Donovani direkt vom Menschen oder aus Kulturen auf Affen, Hunde und andere Tiere sind bisher mißglückt.
2. Leishmania tropica (Wright).
|
1891.
|
Sporozoa furunculosa Firth.
|
|
1903.
|
Helcosoma tropicum Wright, J. H.,
Protozoa in a case of tropical ulcer („Delhi sore“). In: Journ. med.
Research. Vol. 10. p. 472.
|
|
1904.
|
Ovoplasma orientale Marzinowski
u. Bogrow, Zur Aetiologie der Orientbeule (bouton
d’Orient). In: Arch. pathol. Anat. Vol. 178. p. 112.
|
Diese Form wird von vielen Autoren für identisch mit der vorigen gehalten, von der sie allerdings morphologisch kaum zu unterscheiden ist. Es scheinen im Gewebe des menschlichen Körpers hauptsächlich spindelförmige, an beiden Enden zugespitzte Parasiten vorzukommen, welche ca. 3 µ lang und 1–1,5 µ breit sind; es sind aber auch rundliche Formen und mehr stäbchenförmige Individuen von 4–5 µ Länge und 1 µ Breite beschrieben worden. Es wird angegeben, daß die Leishmanien schwach amöboid beweglich sind.
Auch diese Art findet sich im Körper hauptsächlich intracellulär, und zwar meist in Makrophagen, selten in Leukocyten und Epithelzellen. In einer Zelle finden sich 1–80 Parasiten. Doch ist die Infektion im Gegensatz zu der mit L. Donovani meist eine lokal beschränkte. Es treten unter der Haut, vor allem im Gesicht, an den Händen etc. beulenartige Infektionsherde auf, welche oft einen Durchmesser von mehreren Zentimetern erreichen. Diese Erscheinung ist die Veranlassung zur Bezeichnung der Krankheit als „endemische Beulenkrankheit“, Orientbeule, Aleppobeule, Bagdad-Nilbeule, Delhi sore etc. So führt sie noch viele Namen, welche jeweils einem endemischen Herd der im ganzen Orient und in Nordafrika, aber auch in Brasilien verbreiteten Krankheit entsprechen. Im zirkulierenden Blut ist L. tropica neuerdings durch Neumann bei gewissen Fieber und Mattigkeit des Patienten bedingenden Zuständen gefunden worden.
Die Beulen bestehen in der Hauptsache aus Granulationsgewebe, welches sich in der Cutis ausbreitet. In diesem Gewebe sind in [S. 470]Haufen zusammengedrängt die mit der Leishmania erfüllten Makrophagen, neben diesen reichlich Lymphocyten und Plasmazellen, und besonders in der Tiefe finden sich riesenzellenhaltige Knötchen.
Man vermutet, daß die Uebertragung ebenfalls durch ein stechendes Insekt erfolgt, und zwar werden hauptsächlich Stechfliegen verdächtigt, doch auch Wanzen, Phlebotomus und Zecken. Marzinowski hat bei sich selbst durch Einimpfung des Sekrets einer Beule in die Haut, Nicolle bei einem Affen eine neue Beule erzeugt, welche die Parasiten in großer Menge enthielt. Ebenso ist die Uebertragung auf den Hund möglich. Nach Nicolle gelingt die Kultur der L. tropica ebenso wie die der L. Donovani und der L. infantum. Die Parasiten in der Kultur messen 40–45 µ Länge (inkl. Geißel von 20 µ), 2–4 µ in der Breite, der Kern mißt 1,5–2 µ auf 1,1 bis 1,5 µ. Sie pflanzen sich sehr gut lange in Kultur fort, bei 22° C. Uebertragung auf Menschen, Affen und Hunde gelingt auch sehr leicht aus der Kultur. Am leichtesten gelingt die Infektion der Nase. Orientbeuleparasiten in innere Organe gebracht, erzeugen keine Kala-Azar, ebensowenig wie Kala-Azar-Parasiten in der Haut Orientbeule. Natürlicher Träger der Infektion scheint der Haushund zu sein; angeblich soll sie auch beim Kamel vorkommen.
Nach Manson ist es bei den Juden in Bagdad seit langer Zeit üblich, den Kindern künstlich eine Beule an den Beinen zu erzeugen und sie so gegen das spätere Auftreten einer Beule im Gesicht zu impfen; es wird dadurch die entstellende Narbe im Gesicht vermieden. Es würde dies eventuell für eine prompte Immunisierung sprechen. Dasselbe geht aus dem Tierexperiment hervor.
Anzuschließen wäre hier schließlich noch:
[S. 471]
3. Leishmania infantum Nicolle,
|
1908.
|
Nicolle, in: Arch. Inst. Pasteur.
Tunis. Vol. I–III. Versch. Abhandlungen.
|
der Erreger der Splenomegalie der Kinder im Mittelmeergebiet, welcher den geschilderten Formen durchaus ähnlich ist. Eigentlich ist die Krankheit von Kala-Azar nur durch das Alter der Patienten unterscheidbar, indem sie fast nur Kinder unter 6 Jahren befällt, vor allem Säuglinge. Es ist eine langdauernde Krankheit, bei der Heilung noch nie beobachtet wurde. Auch ist bisher keine wirksame Behandlung bekannt. Die Infektion hat ihren Sitz in Milz, Leber und Knochenmark. Die Symptome sind Milzhypertrophie, Blässe, Abmagerung, Schwellung der Leber, Oedeme, unregelmäßige Temperatur (an einem Tag mehrere Maxima), Pulsbeschleunigung, Verdauungsstörungen, Mononukleose.
Der Parasit ist leicht zu kultivieren, und zwar auf dem Nährboden von Novy und McNeal (vgl. S. 333); er ließ sich 2 Jahre lang in künstlicher Kultur fortzüchten, und leicht auf Affe (Macacus simicus) und Hund übertragen, welche eine typische Erkrankung davon bekommen. Meerschweinchen und Ratten werden nur vorübergehend infiziert oder sind ganz refraktär. In Tunis wurde bei 4 unter 222 Hunden die Krankheit spontan vorkommend nachgewiesen, so daß die Haushunde als Quelle der Infektion des Menschen betrachtet werden können. Auch in Italien, Malta, Lissabon wurde Infektion der Hunde gefunden.
Die Krankheit ist bisher nachgewiesen in Nordafrika (vor allem Tunis), in Malta, Sizilien, Süditalien, Griechenland und Portugal, hat aber vermutlich eine viel weitere Verbreitung.
Am Panamakanal wurde in einigen wenigen Fällen bei einer Erkrankung, welche in den Symptomen dem Kala-Azar gleicht, von S. T. Darling in Milz, Leber, Lunge etc. ein Protozoon gefunden. Dasselbe soll von Leishmania durch den Besitz einer „Kapsel“ (Oystenhülle), die unregelmäßige Lage der chromatischen Bestandteile und das Fehlen eines Blepharoplasts abweichen, doch in der Art des Parasitismus jener Gattung ähneln. Die Abbildungen gestatten noch kein Urteil über den Parasiten, welcher vielleicht doch mit L. Donovani identisch ist. Er ist mit dem Namen Histoplasma capsulatum Darling belegt worden.
An dieser Stelle wäre schließlich auch darauf hinzuweisen, daß eine Pferdekrankheit, die epizootische Lymphangitis, durch einen Parasiten bedingt wird, welcher von manchen Autoren den Leishmanien zugerechnet wird. Die Krankheit kommt vor in: Frankreich, Schweden, Rußland, Italien, Aegypten, Tunis, Senegambien, Japan (dort auch bei Rindern). Der Erzeuger erhielt folgende Namen: Cryptococcus farciminosus Ricolta, Leucocytozoon piroplasmoides Ducloux, Leishmania farciminosa (Riv.), Lymphosporidium equi Gasperini.
Nach neueren Untersuchern soll dieser Krankheitserreger jedoch keine Leishmania, sondern ein Blastomycet (?) sein.
3. Familie: Monadidae Stein em. Senn.
Meist sehr kleine farblose Formen mit einer Hauptgeißel und einer oder zwei neben derselben am meist ausgerundeten Vorderende entspringenden [S. 472]Nebengeißeln (vgl. Fig. 405). Manche Formen koloniebildend und dann am Hinterende sich in einen Stiel fortsetzend. Mundstelle zur Aufnahme geformter Nahrung an der Geißelbasis. Mundöffnung oft von einem lippenartigen Fortsatz überragt. Körper etwas metabolisch. Kontraktile Vakuole im vorderen Teil des Körpers. Bisher nur freilebende Formen bekannt.
Gattungen: Monas Stein (M. vivipara Ehrbg., Fig. 405) einzellebende, freischwimmende Süßwasserformen, Dendromonas Stein, Anthophysa Bory (A. vegetans Stein, Fig. 406). Koloniebildende Süßwasserbewohner mit gallertigen Stielen.
4. Familie: Bicoecidae Stein.
Gehäusebildende kleine Formen, oval bis urnenförmig. Wahrscheinlich mit 2 Geißeln, einer langen am Vorderende inserierenden, nach vorn ragenden Hauptgeißel und einer nach hinten gerichteten, zum Haftorgan ausgebildeten Schleppgeißel (Stielgeißel). Infolge dieser Ausbildung des Geißelapparates wurden die Bicöciden von manchen Autoren den Bodoniden angeschlossen. Um die Geißelbasis [S. 473]ein kragenartiger Plasmafortsatz, innerhalb dessen oder auf dem die Mundöffnung liegt. Formen etwas metabolisch. Amöboide Beweglichkeit am Vorderende führt bisweilen zur Bildung eines kragenartigen Saums, was zur Morphologie der nächsten Familie überleitet. Kontraktile Vakuole am Hinterende. Bisher nur freilebende Formen bekannt (Süßwasser). Geformte Nahrung wird unter Vakuolenbildung aufgenommen.
Gattungen:
- Bicoeca Clark im Süßwasser (B. socialis Lauterborn)
- Poteriodendron Stein im Süßwasser.
5. Familie: Choanoflagellidae
Stein.
(Craspedomonadina.)
Früher oft als besondere Ordnung der Mastigophoren behandelt.
Eingeißelige Formen von meist geringer Körpergröße (10–20 µ) mit oft sehr langer Geißel am Vorderende; Geißelbasis von einem oder zwei trichterförmigen Krägen umgeben (Fig. 75 und Fig. 76, S. 61 und 62); diese Krägen werden auch Collare genannt. Innerhalb des Kragens findet die Defäkation statt, die Nahrungsaufnahme erfolgt dadurch, daß kleine Partikel durch die Bewegung der Geißel an die Außenseite des Trichters geschleudert werden, dort hängen bleiben und durch Plasmabewegung in den Zellleib gezogen werden, [S. 474]wobei außen an der Basis des Kragens eine Vakuole entsteht[29]. (Vgl. auch S. 61 und Fig. 75). Nach Burck ist diese Vakuole zunächst noch nicht im Innern des Körpers gelegen, sondern zwischen diesem und seiner, periodisch sich abhebenden Schleimhülle (bei Codonosiga); zwischen Körperwand und Schleimhülle rutscht der Nahrungskörper eine Strecke weit nach unten, um dann in das Plasma aufgenommen zu werden.
Der Körper und mit ihm der Kragen sind sehr metabolisch. Kontraktile Vakuolen sind vorhanden.
Bisher sind nur freilebende Formen aus Süßwasser bekannt, welche meist Bakterienfresser sein dürften.
Der Körper ist meist oval oder kugelig; mit dem hinteren Ende sitzt er entweder direkt oder unter Vermittlung eines Stiels einer Unterlage auf. Kolonienbildung ist sehr häufig. Sehr verbreitet sind gallertige u. a. Gehäusebildungen.
Gattungen:
- Codo(no)siga J. Cl. (vgl. Fig. 75, S. 61).
- Monosiga Sav. Kent. (vgl. Fig. 68 B, S. 54).
- Codonocladium St. (vgl. Fig. 409).
- [S. 475] Sphaeroeca Lauterb
- Protospongia S. K.
- Salpingoeca J. Cl.
- Diplosigopsis Francé (vgl. Fig. 76, S. 62).
6. Familie: Spongomonadidae Stein.
Kleine Formen (ca. 10–15 µ Körpergröße), von ovaler Gestalt, mit zwei gemeinsam entspringenden Geißeln, von etwa gleicher Größe. Der in Einzahl vorhandene Kern in der Mitte des Körpers gelegen, dicht dabei die kontraktile Vakuole. Große Mengen von Individuen zu Kolonien von manchmal bis zu 1 cm Größe durch Gallerthüllen vereinigt, welche manchmal verzweigte Formen annehmen. Geformte Nahrung wird unter Vakuolenbildung aufgenommen. Nur freilebende Formen bekannt, aus Süßwasser. Die Familie ist vielleicht mit der nächstfolgenden zu vereinigen, wie dies Senn und Hartmann vorgeschlagen haben.
- Spongomonas St.
- Cladomonas St. (vgl. Fig. 410).
7. Familie: Amphimonadidae Kent em. Bütschli.
Meist sehr kleine Formen (vielfach unter 10 µ), von wenig bekanntem Bau, wechselnder Körpergestalt infolge von amöboider Beweglichkeit oder Metabolie. Zwei gleich lange Geißeln vorhanden. Hierher wird auch die viergeißelige Form Polytomella agilis Aragao gerechnet. Stielbildungen und Gehäuse kommen vor.
Geformte Nahrung wird unter Vakuolenbildung aufgenommen. Nur freilebende Formen bekannt (Süßwasser).
Amphimonas Duj.
8. Familie: Bodonidae Bütschli.
Dieser Familie gehören kleine, nackte, farblose Formen an, welche durch den Besitz von 2 Geißeln am Vorderende ausgezeichnet sind. Gewöhnlich sind dieselben sehr verschieden groß; die kleinere geht bei der Bewegung voran und vermittelt die Bewegung (Hauptgeißel), während die größere nachschleppt (Schleppgeißel). Bei denjenigen Formen, welche uns hier speziell interessieren, ist jedoch der Größenunterschied zwischen beiden Geißeln manchmal wenig auffallend. Eine Mundstelle ist bei vielen Formen vorhanden, doch ein Schlund nur selten angedeutet. Die Ernährung der freilebenden Arten ist vorwiegend eine animalische. Nach Prowazek erfolgt bei Bodo lacertae (Gr.) die Befruchtung durch anisogame Kopulation, die Zygote bildet eine Cyste, in welcher durch metagame Teilungen zahlreiche junge [S. 476]Individuen entstehen, welche nach dem Ausschlüpfen heranwachsen und sich dann in freiem Zustand wieder durch gewöhnliche Längsteilung fortpflanzen (vgl. Schilderung S. 180 u. Fig. 188).
Die von Prowazek ebenfalls für diese Art angegebene Autogamie ist durch die Untersuchungen Dobells (s. unten S. 478) sehr zweifelhaft geworden.
Gattung: Bodo Bodo.
Die Arten dieser Gattung sind klein (bis zu 30 µ lang), ohne Membran- oder Gehäusebildungen, oval oder länglich. Meist ist im vorderen Teile des Körpers ein Kern, an verschiedenen Stellen ein bis mehrere kontraktile Vakuolen (bei den freilebenden Formen) gefunden worden. Für manche Formen ist angegeben worden, daß sie in den amöboiden Zustand übergehen können, z. B. auch ohne die Geißeln zu verlieren. Die Arten vermehren sich durch Längsteilung, und durch Schwärmerbildung nach erfolgter Konjugation.
Zu dieser Gattung sind häufig Arten gerechnet worden, besonders in den früheren Zeiten der Infusorienforschung, welche später anderen Gattungen zugewiesen wurden. Aber auch später noch wurden alle möglichen unsicheren Arten in dieser Gattung untergebracht; und so finden sich denn in der Literatur eine Menge ungenügend oder gar nicht charakterisierter Bodo-Arten, von denen ich nur einige aufführe. Auch werden noch in neueren Schriften oft Flagellaten, oder wohl in vielen Fällen auch geißeltragende Schwärmer anderer Organismen, als Angehörige der Gattungen Bodo und Cercomonas beschrieben, fast in allen Fällen sind aber die Diagnosen so dürftig, daß man keine bestimmte Aussage über dieselben machen kann. Es scheinen ja Organismen, welche ihren morphologischen Eigentümlichkeiten nach hierher zu rechnen wären, besonders im Darminhalt der verschiedensten Tiere eine weite Verbreitung zu haben. Aber ohne daß genaue Untersuchungen vorliegen, ist es unmöglich, zu entscheiden, wie viele davon echte Parasiten und wie viele nur gelegentliche Kommensalen sind.
Unter den zahlreichen beschriebenen Formen aus Süßwasser und Infusionen hebe ich hervor: Bodo globosus St., B. saltans Ehrbg., B. caudatus (Duj.), B. edax Klebs, B. ovatus Duj. Bodo saltans und B. ovatus ernähren sich nach Buntemüller hauptsächlich von Bakterien und vermögen z. B. in Kulturen von Typhusbazillen in 1–2 Tagen die Keimzahlen von 200000 auf 7000–8000 herabzusetzen. Von parasitischen Arten seien folgende erwähnt:
1. Bodo helicis Leidy in den Geschlechtskanälen von Helixarten.
2. Bodo iuli (dis!) Leidy, im Darm von Iulus marginatus.
3. Bodo lacertae (Grassi).
|
1878.
|
Heteromita lacertae Grassi.
|
|
1879.
|
Schedaeocercomonas lacertae viridis
Grassi.
|
|
1881.
|
Grassi. In: Atti Soc. ital. Sci.
nat. Vol. 24. p. 164.
|
|
1904.
|
Prowazek, Unters. über einige
parasitische Flagellaten. In: Arb. K. Ges.-Amt. Vol. 21. p. 1.
|
Ein Flagellat von 6–12,5 µ Länge und 2–4 µ Breite bewohnt die Kloake von Lacerta agilis, viridis und muraria und ist da sehr regelmäßig und häufig zu finden. Sehr charakteristisch ist die [S. 477]lanzettliche Gestalt mit der leicht spiraligen Drehung des Hinterendes (Fig. 411). Die beiden gemeinsam entspringenden Geißeln setzen sich in eine basale Fibrille fort, welche zum Kern zieht. Das dem Kern anliegende blepharoplastähnliche Basalkorn scheint sich bei der Teilung mit einer der Kernspindel parallelen Spindel zu teilen (Fig. 412 B–D). Außer den gewöhnlichen Individuen beschreibt Prowazek solche, in denen angeblich neben dem Kern ein „Chromidium“ vorhanden ist; wahrscheinlich handelt es sich um einen Reservestoffkörper, welcher mit den üblichen Farbstoffen sich sehr stark färbt.
Prowazek hat jedoch solche Individuen in Verbindung mit gewissen cystenartigen Gebilden im Eidechsendarm gebracht, indem er glaubt, daß sie sich encystieren und dann einen Autogamievorgang durchmachen.
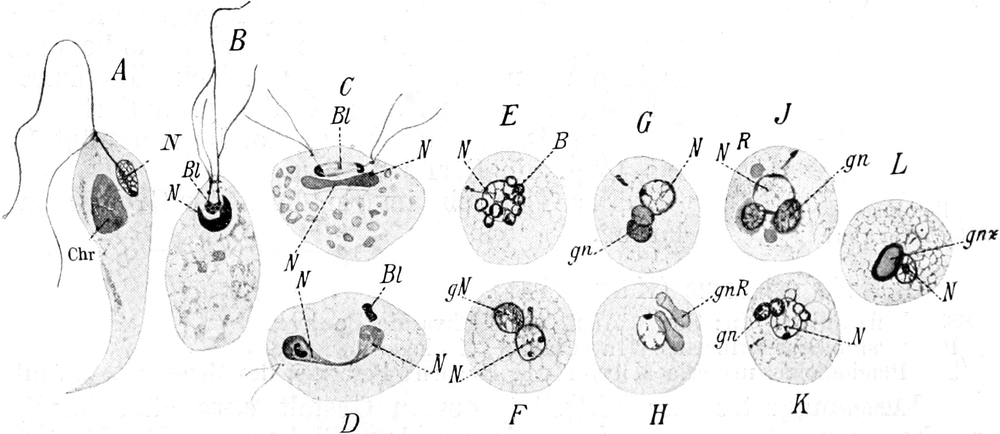
Die bei der sehr tückischen Eisenhämatoxylinmethode untersuchten Präparate zeigten neben dem Kern kleine Bläschen, welche Prowazek von dem Chromidium ableitet (Fig. 412 E). Diese Bläschen sollen zu einem zweiten Kern verschmelzen, welchen Prowazek als Geschlechtskern auffaßt (Fig. 412 F, gN), während der ursprüngliche („somatische“) Kern (N) degenerieren soll. Der Geschlechtskern soll sich teilen, seine Teilprodukte zwei Reduktionskerne abschnüren (Fig. 412 G u. H), [S. 478]die reduzierten Geschlechtskerne (gn) sollen dann in „Autogamie“ verschmelzen (Fig. 412 I, K, L). Aus der Cyste kann — so wird angenommen — die Zygote entweder als freies Flagellat sogleich hervorgehen oder in einen Dauerzustand übergehen.
Nach Dobell (Biol. Centralbl. Bd. 28. 1908. p. 548) beruhen diese Angaben auf Verwechslung mit kugligen Stadien einer im Darm der Eidechsen häufigen Hefe; er beobachtete ähnliche Stadien wie Prowazek, sah jedoch das Auswachsen zu langen Pilzfäden, beobachtete das Verbrauchtwerden der tatsächlich aus Reservematerial bestehenden sogenannten Chromidien etc.
Die tatsächliche Form der Befruchtung wird also wohl die oben (S. 180) beschriebene anisogame Kopulation sein. Es wäre auch sehr auffallend, wenn bei der gleichen Species zwei so vollkommen verschiedene Formen der Befruchtung nebeneinander vorkämen, wie das Prowazek annahm.
4. Bodo gryllotalpae (Grassi).
|
1879.
|
Retortomonas gryllotalpae Grassi.
|
|
1881.
|
Plagiomonas gryllotalpae Grassi
a. a. O. p. 161.
|
Unter dem Namen Plagiomonas hat man Bodoniden abgetrennt, welche durch die Verlängerung des Hinterendes in einen schwanzartigen Fortsatz ausgezeichnet sind. Solange keine weiteren Unterschiede bekannt sind, berechtigt aber diese Eigentümlichkeit höchstens zur Aufstellung eines Subgenus.
Der Körper hat nach Grassi eine retortenartige Form, die eine Seite des abgeflachten Körpers hat eine konvexe, die andere eine zum Teil konkave Kontur (Fig. 413), am Hinterende befindet sich eine Verlängerung. Die Geißeln sind am Vorderende, doch mehr gegen die konvexe Seite hin inseriert. An ihrer Basis befindet sich ein auffallender heller Fleck (Blepharoplast?). Das Plasma ist dunkel granuliert.
Die Länge des B. gryllotalpae beträgt 15 bis 16 µ, die Breite 2–3 µ.
Das Tier lebt im Enddarm der Gryllotalpalarven.
5. Bodo urinarius (Künstler).
|
1883.
|
Künstler. In: Soc. d’Anat. et de
Phys. de Bordeaux.
|
|
1886.
|
Cystomonas urinarius Blanchard,
Zoologie médicale.
|
|
1895.
|
Plagiomonas urinaria Künstler,
Braun, Parasiten des Menschen. 2. Aufl.
|
Ein langgestrecktes Flagellat, dessen Gestalt etwa rübenförmig erscheint; das Vorderende ist breit mit einer Einkerbung, das Hinterende läuft in einen langen, dünnen Fortsatz aus (Fig. 414).
Nahe dem Vorderende liegt der Kern. In der Einkerbung am Vorderende entspringen die zwei Geißeln, welche ziemlich gleich lang sind. Der Körper ist 10 µ lang und 4–5 µ breit.
Der Parasit wurde nur einmal beim Menschen beobachtet, und zwar im frisch gelassenen Urin eines Kranken, welcher an einer chronischen Eiterung litt.
Ob der von Hassal 1856 beobachtete Bodo urinarius mit dieser Art identisch ist, scheint sehr fraglich — wie schon Braun hervorhebt, [S. 479]da er im Harn von Cholerakranken, welcher schon mehrere Tage an der Luft gestanden hatte, vorkam, also nicht notwendigerweise aus dem Menschen stammen mußte.
Doch wird auch für die von Künstler beschriebene Form angegeben, daß sie erst nachträglich in den Urin der betreffenden Patienten geraten sein könne. Daher ist es gegenwärtig strittig, ob beim Menschen in den Harnwegen überhaupt Bodoniden vorkommen.
(Vgl. hierzu auch die historische Auseinandersetzung in Braun, Parasiten des Menschen. 4. Aufl. 1908. S. 59.)
An dieser Stelle füge ich die Gattungen Trypanophis und Trypanoplasma an, da ich (wenigstens bei diesen und einigen anderen Flagellaten) die undulierende Membran als ein Verschmelzungsprodukt der Geißel mit der Pellicula betrachte, wie ich das schon in der 1. Auflage durchführte; es ist dies eine Auffassung, welche, soweit ich unterrichtet bin, von den Autoren, die sich mit dem Gegenstand beschäftigten, nur Senn und Léger teilen. Léger hat konsequenterweise von vornherein Trypanoplasma den Bodoniden angeschlossen.
Gattung: Prowazekia Hartmann und Chagas.
|
1910.
|
Hartmann und
Chagas, Flagellatenstudien. In: Memorias do
Instituto Oswaldo Cruz. Rio de Janeiro. Vol. 2. p. 64.
|
|
1910.
|
Mathis et
Léger, Sur un flagellé Prowazekia Weinbergi n. sp.
fréquemment observé dans les selles de l’homme. In: Bull. Soc. méd. chir. de
l’Indochine. Octobre 1910.
|
Im Süßwasser und im Darm verschiedener Organismen wurden nicht selten Flagellaten beobachtet, welche für Bodo-Arten erklärt wurden, ohne daß ihre innere Organisation untersucht worden wäre. Bei einigen solchen Formen hat man nun einen Blepharoplast (Kinetonucleus) außer einem Basalkorn neben dem Hauptkern entdeckt. Solche Formen werden daher vielfach zu den „Binucleaten“ gestellt und den Trypanosomen genähert. Ich ziehe es vor, sie hier einzufügen als vermittelnde Formen zwischen Bodo und Trypanoplasma.
Prowazekia-Arten kommen nun scheinbar sehr häufig in menschlichen Faeces vor und lassen sich auf Agarkulturen leicht nachweisen. Aehnliche Formen finden sich frei im Süßwasser (vgl. Fig. 330, S. 385).
Arten:
Prowazekia Cruzi H. u. Ch.
Oval bis birnförmig. Geißeln am schmalen Ende. Länge 8 bis 12 µ, Breite 5–6 µ. Brasilien.
Prowazekia Weinbergi Mathis et Léger.
Birnförmig, hinten zugespitzt, 8–15 µ lang, 4 bis 6,5 µ breit. Geißeln am breiten Ende. Tonkin.
Prowazekia parva Nägler.
Länglich, relativ metabol. Länge 5–8 µ.
[S. 480]
Prowazekia asiatica (Castellani und Chalmers).
(Arch. f. Protistenk., Vol. 22. 1911. p. 370.)
Ganz neuerdings hat Whitmore erkannt, daß der aus menschlichen Fäces in Ceylon gezüchtete „Bodo asiaticus“ eine Prowazekia ist. Die Dimensionen dieses Organismus sind: Länge 10–16 µ, Breite 5–8 µ. Die Form ist veränderlich. Möglicherweise ist eine von Martini in Tsingtau beobachtete Prowazekia mit dieser oder mit Weinbergi identisch, oder was noch wahrscheinlicher ist, es handelt sich bei all den beschriebenen Formen nur um eine Art.
Gattung: Trypanophis Keysselitz.
|
1903.
|
Poche, F., Ueber zwei neue in
Siphonophoren vorkommende Flagellaten etc. In: Arb. a. d. Zool. Inst. Vol.
14. p. 307.
|
|
1904.
|
Keysselitz, G., Ueber
Trypanophis Grobbeni. In: Arch. f. Protistenk. Vol. 3. p. 367.
|
Trypanophis Grobbeni Poche (Fig. 416) ist ein langes schlankes Flagellat, welches am Vorderende eine kurze Geißel besitzt, die von einem kräftigen Blepharoplast entspringt; von dem letzteren entspringt auch der Randfaden der undulierenden Membran, welcher sich über das spitze Hinterende in einer kurzen freien Geißel fortsetzt. Im Körper lassen sich eigenartige rundliche oder eckige Gebilde in einer Längsreihe nachweisen. Der große Kern liegt in der Mitte. Fortpflanzung unbekannt.
Die Form kommt im Gastralraum verschiedener Siphonophoren vor. Mittelmeer.
Gattung: Trypanoplasma Lav. u. Mesn.
1. Trypanoplasma Borreli Lav. u. Mesn.
|
1901.
|
Laveran et
Mesnil, Sur les flagellés à membrane ondulante des
poissons (genre Trypanosoma Gruby et Trypanoplasma n. gen.). In: C. R. Acad.
Sci. Paris. Vol. 133. p. 670.
|
Die Trypanoplasmen, welche bei Süßwasserfischen eine weite Verbreitung haben, besitzen einen länglichen, meist vorn breiteren, hinten zugespitzten Körper. Ihre Form ist meist etwas sichelförmig [S. 481]gekrümmt. Der Körper ist stark metabolisch und zu undulierenden Bewegungen fähig. Die Pellicula ist viel dünner als bei den Trypanosomen, wie schon die viel bedeutenderen Deformationen bei Anfertigung von Trockenpräparaten beweisen. Nahe dem Vorderende entspringt eine nach vorn ragende freie Geißel von einem sehr großen, stark färbbaren Blepharoplasten, welcher seitlich und rückwärts vom Vorderende gelegen ist. Von demselben entspringt außerdem ein sehr starker Stützfaden, welcher sich als Randfaden einer undulierenden Membran am Vorderrande entlang und an dem dem Blepharoplasten gegenüber gelegenen Körperrand nach hinten zieht (Fig. 418). Meist löst sich vor dem Hinterende eine oft sehr lange Geißel los, welche also inklusive dem Randfaden der undulierenden Membran der Schleppgeißel eines Bodo entspricht. Zwischen Blepharoplast und Körperrand sind vielfach zwei Basalkörner sichtbar.
Gegenüber dem Blepharoplasten liegt nahe dem Rand, an welchem die undulierende Membran entlang zieht, der Kern, welcher sich meist viel schwächer färbt als der Blepharoplast.
Die Teilung erfolgt durch Zweiteilung, auch multiple Teilung scheint vorzukommen. Keysselitz glaubte nach Analogie der Trypanosomen auch bei den Trypanoplasmen im Fischblut schon Differenzierung in drei Typen unterscheiden zu können. Männliche, weibliche und indifferente Formen seien allerdings nicht sehr scharf unterschieden.
Die Differenzierung sei vor allem im Darm der Fischegel zu erkennen, wo auch Kopulation vorkomme. Die Schilderung der Kopulation wirkt nicht überzeugend, ich habe eher den Eindruck, als liege Verwechslung mit Teilungsstadien oder degenerierenden Teilungsstadien vor. Es soll zunächst Verschmelzung der Blepharoplasten der [S. 482]männlichen und weiblichen Individuen erfolgen, dann Verschmelzung der Kerne und Abwerfen der Geißeln.
Die Zygoten sollen sich stark vermehren und die aus ihnen hervorgegangenen kleinen Trypanoplasmen beim Blutsaugen durch Rheotropismus in die Blutbahn des Fisches gelangen. Die von Keysselitz beobachteten Formen sind zum Teil sehr interessant.
Jedenfalls ändern ähnlich den Trypanosomen auch die Trypanoplasmen im Darm der Blutsauger ihre Form und nehmen Gestalten an, welche den „Kulturformen“ der Trypanosomen entsprechen, d. h. sie werden schmäler, die undulierende Membran wird viel schwächer, und damit ändert sich auch die Bewegungsweise (vgl. Fig. 419 B).
Als Ueberträger der in Karpfen, Schleien, Brachsen und anderen Süßwasserfischen vorkommenden Trypanoplasmen wird der Fischegel, Piscicola geometra (Abbildung s. Fig. 349, S. 410), bezeichnet. Doch hat Keysselitz die gleichen Phänomene, wie in diesem, auch im Blutegel, Hirudo medicinalis (L.), beobachtet. Léger hat aus Cobitis barbatula ein Trypanoplasma varium beschrieben und dessen Entwicklung in dem Egel Hemiclepsis marginata beobachtet. Ob diese Form, sowie das T. cyprini M. Plehn, T. Guernei Brumpt u. a. besondere Arten sind, ist noch unentschieden. Brumpt glaubt, daß die verschiedenen Trypanoplasmaarten sich in verschiedenen Egeln weiterentwickeln, was Keysselitz mit Recht bezweifelte. Brumpt gab an, daß die Formen aus Scardinius, Cottus gobio etc. sich in Piscicola, während die aus Karpfen, Schleien, Brachsen etc. sich in Hemiclepsis weiterentwickeln. Wahrscheinlich liegen die Verhältnisse ähnlich wie bei den Trypanosomen in ihren Beziehungen zu den blutsaugenden Insekten.
2. Trypanoplasma intestinalis Léger.
|
1905.
|
Léger, L., Sur la présence d’un
Trypanoplasma intestinal chez les poissons. In: C. R. Soc. Biol. Vol. 58.
p. 511.
|
Eine sehr kleine Form, von birnförmigem Körper mit langem Schwanzanhang (Fig. 420). Länge des Körpers (ohne Schwanzanhang) 14 µ; Länge der vorderen Geißel 16 µ; der hinteren Geißel samt Schwanzanhang 16 µ. Längs der undulierenden Membran häufig eine regelmäßige Längsreihe von Granulationen.
Die Art wurde im Oesophagus und vorderen Teil des Magens bei dem Fisch Box salpa im Mittelmeer gefunden.
Woodcock zieht die Art zur Gattung Trypanophis.
Sehr interessant als nicht blutbewohnende Form. Andere darmbewohnende Trypanoplasmen hat Keysselitz bei Gadiden und Cyclopterus lumpus beobachtet (Trypanoplasma ventriculi K.), Martin und Elmhirst eine solche (T. congeri) im Magen eines Meeraals (Conger niger).
[S. 483]
Andere Formen sind beschrieben worden:
Trypanoplasma helicis (Leidy)
(= Cryptobia helicis Leidy = Bodo helicis Diesing) in den Geschlechtsorganen von Schnecken aus der Gattung Helix. Bei dieser Form ist Wirtswechsel sehr unwahrscheinlich, die Uebertragung geschieht wohl mit den Spermatophoren bei der Begattung.
Tr. dendrocoeli Fantham und Porter im Darmkanal des Turbellars Dendrocoelum lacteum.
Bei letzterer Art ist Infektion der Eier beobachtet worden und daher Vererbung des Parasiten wahrscheinlich. Auch glauben die Entdecker Encystierung im Darm beobachtet zu haben.
Tr. ranae Walker wurde auf Plattenkulturen von Darminhalt von Rana palustris in Nordamerika beobachtet.
Tr. vaginalis Hesse aus der Vagina des Blutegels.
II. Ordnung.
Polymastigina Blochmann.
Die Flagellaten dieser Ordnung sind ebenfalls meist kleinere Formen, stets einzellebend, mit 3 annähernd gleich großen, oder mit 4–8 zum Teil ungleich großen und verschieden inserierten Geißeln.
Auch hier kommt es bei parasitischen Formen vor, daß eine Geißel durch eine undulierende Membran vertreten wird.
Familien der Ordnung Polymastigina.
Körper mit 3–4 Geißeln, welche sämtlich am Vorderende entspringen:
Familie Tetramitidae Bütschli.
4–8 Geißeln am Vorderende; das Hinterende entweder in zwei Geißeln oder 1–3 Lappen ausgezogen:
Familie Polymastigidae Bütschli.
1. Familie: Tetramitidae Bütschli.
Diese Familie besteht aus kleinen Formen von länglicher Gestalt und meist spitz zulaufendem Schwanzende. Sie haben keine cuticularen Bildungen und sind daher zum Teil amöboïd beweglich. Sie besitzen 4 Geißeln, welche am Vorderrande inseriert sind; eine derselben kann auch durch eine undulierende Membran vertreten sein. Der Kern liegt am Vorderende, dicht hinter der Geißelbasis.
Gattungen der Familie Tetramitidae.
1. Körper mit einer Sauggrube am Vorderende: Gattung Costia.
Körper mit einem deutlichen Cytostom am Vorderende: Gattung Macrostoma.
Körper höchstens mit einer schwachen Einkerbung am Vorderende 2
2. 4 gleich lange Geißeln am Vorderende: Gattung Monocercomonas.
Nur 3 Geißeln sind gleich lang 3
[S. 484]
3. Neben den 3 Geißeln eine undulierende Membran: Gattung Trichomonas typ.
An deren Stelle eine lange Schleppgeißel: Gattung Trichomonas (Trichomastix-Form).
Gattung: Costia Leclerq.
Costia necatrix (Henneguy).
|
1884.
|
Bodo necator Henneguy. In: Arch.
Zool. exp. gén. (2) Vol. 2. p. 404. Pl. 21.
|
|
1890.
|
Costia necatrix Leclerq. In:
Bull. Soc. belg. d. Microscop. Vol. 16.
|
|
1894.
|
Tetramitus Nitschei Weltner. In:
Nitsche und Weltner,
Biol. Centr. Vol. 16. p. 25.
|
|
1903.
|
Moroff, Beitrag zur Kenntnis
einiger Flagellaten. In: Arch. f. Protistenk. Vol. 3. p. 84.
|
|
1904.
|
Hofer, Handbuch der
Fischkrankheiten. München. p. 115.
|
|
1909.
|
Léger, L., La Costiase et son
traitement chez les jeunes alevins de truite. C. R. Acad. Sc. Paris. T. 148.
p. 1284–1286. — Ann. Univ. Grenoble. Vol. 21. p. 437–440.
|
Das Flagellat ist vorn abgerundet oder abgestutzt, hinten breit abgerundet; die Gesamtform ist etwa oval, dabei ist das Tier dorsoventral abgeflacht. Am vorderen Ende befindet sich auf der Bauchseite eine tiefe Grube, welche sich fast über die ganze Breite des Tieres und seine halbe Länge ausdehnt (Fig. 421 A). In der Ruhe faltet sich nun diese Grube zu einer Rinne zusammen, welche die Anheftung vermittelt. In dieser Rinne liegen dann die Geißeln — nach Henneguy 3, nach Weltner und nach Moroff 4 —. Beim Schwimmen sind die Geißeln nach hinten gerichtet (Fig. 421 B). Nach Moroff sind zwei Geißeln lang, dienen zur Verankerung und werden bei der Bewegung nachgeschleppt, zwei kurz und dienen dem Einstrudeln der Nahrung und der Lokomotion.
Das Plasma ist hyalin, mit feinen Granulationen. Dicht hinter der Sauggrube liegt der runde Kern, noch etwas weiter gegen das Hinterende [S. 485]eine kontraktile Vakuole. Henneguy hat eine Vermehrung durch Querteilung beobachtet, welche aber nach Moroff als Längsteilung aufzufassen ist.
Man findet Costia als Parasiten auf der Haut von Fischen (Goldfische, Regenbogenforellen, Forellenembryonen, Schleien, Karpfen usw.), wo sie in großen Mengen vorkommen kann. Sie sitzt dann im Schleim, mit den langen Geißeln verankert, und ist mit dem Hinterende an Epithelzellen so festgesaugt, daß man sie nur mit Mühe losreißen kann, oft bleiben sie sogar bei Anwendung von allen möglichen Reagentien haften. Durch die Zusammenfaltung am Vorderende erscheint der Körper in diesem Zustand vollkommen birnförmig (Fig. 421 B u. C und Fig. 422 A u. B). In dieser Stellung an der Haut festgeheftet, nehmen sie ihre Nahrung auf, indem sie die zerfallenden Epithelzellen mit ihren beiden kleinen Geißeln in die Mundbucht hineinstrudeln.
Die Länge des Tieres ist 10–20 µ, die Breite 5–10 µ.
Werden die Parasiten von ihrem Wirt losgelöst, so schwimmen sie eine Zeitlang im Wasser umher, indem sie dabei um ihre Längsachse rotieren; sie sterben jedoch rasch ab, offenbar, weil das Wasser nach ihrem Aufenthalt im Hautschleim stark auf sie einwirkt (Henneguy).
[S. 486]
Nach Moroff haben die Cysten 7–10 µ Durchmesser und sind von zahlreichen stark lichtbrechenden Körpern erfüllt (Fig. 422 D).
Meist wurden sie in sehr großen Mengen auf den Fischen gefunden, wo sie die Haut und die Kiemen bedeckten. Man erkennt dann schon mit bloßem Auge einen feinen weißlichen Belag. Auf einem hirsekorngroßen Hautstück fanden sich Tausende von Individuen. Fast jede Epidermiszelle war mit einem oder mehreren von ihnen bedeckt. Es ist unter diesen Umständen nicht verwunderlich, daß sie Entzündungen der Haut und Hämatosen in den Kiemen herbeiführen. Frisch infizierte Forellenembryonen starben nach 2 Tagen ab; Goldfische lebten länger; sie zeigten blutige Stellen an Schuppen und Flossen, fraßen sehr wenig, standen an der Oberfläche oder lagen am Grunde (die ausgeschlüpften Forellenembryonen mit Dottersäcken lagen meist auf der Seite) und gingen langsam ein.
Verschiedene Mittel wurden ohne Erfolg angewandt: Alkohol, Jod, Salz; Henneguy hatte Erfolg zu verzeichnen, als man die Fische in Aquarien mit vielen Wasserpflanzen setzte, wo sie angeblich die Parasiten abstreifen konnten(?). Moroff heilte Tiere durch wiederholtes kurzes Bad in 5-proz. Salzlösung, Hofer empfiehlt ½-stündiges Bad in 2–2,5-proz. Salzlösung.
Gattung: Monocercomonas Grassi.
Kleine Arten von höchstens 15 µ Länge. Die Gestalt ist meist oval bis birnförmig, das Vorderende ist quer abgestutzt und abgerundet, doch ist kein Peristom vorhanden. Bei einigen Arten sieht man am Vorderende eine Einkerbung, welche wahrscheinlich den Ort der Mundöffnung bezeichnet. Nach hinten läuft der Körper in einen spitzen Schwanzfortsatz aus.
Dicht neben der Einkerbung, wo eine solche vorhanden ist, sonst in der Mitte des Vorderrandes entspringen die 4 gleich langen Geißeln. Dicht hinter deren Basis befindet sich der Kern, eine kontraktile Vakuole ist nicht beobachtet worden.
Die Angehörigen der Gattung vermögen unter gewissen Umständen in amöboiden Zustand überzugehen.
Ueber Vermehrung, Kopulation, Encystierung und Ernährungsweise ist nichts bekannt.
1. Monocercomonas melolonthae (Grassi).
|
1879.
|
Schedaocercomonas melolonthae
Grassi.
|
|
1879.
|
Schedaocercomonas gryllotalpae
Grassi.
|
|
1881.
|
Monocercomonas insectorum Grassi.
In: Atti Soc. Ital. Sci. nat. Vol. 24. p. 153.
|
Die Form dieses Flagellats ist ungefähr lanzettförmig, doch schwankt sie sehr; nach hinten ist der Körper verschmälert, doch fehlt ein Schwanzanhang (Fig. 422). Es wird bis zu 15 µ lang und 11 µ breit.
Ein runder Kern liegt ganz vorn, dicht hinter der Basis der vier etwa gleich langen Geißeln. Ein Achsenfaden durchzieht als formgebendes Element das Innere des Körpers. Das Plasma ist fein granuliert; in demselben sollen sich Stärkekörner finden, welche aus der Nahrung des Wirtes stammen. Vakuolen sind vorhanden, aber keine kontraktile.
Fortpflanzung usw. noch unbekannt.
[S. 487]
M. melolonthae findet man im Enddarm der Maikäferlarven (Engerlinge) und der Gryllotalpalarven (Larven der Maulwurfsgrille). In den erwachsenen Tieren wurde sie nicht gefunden. Grassi fand den Parasiten in Italien in fast allen untersuchten Larven.
In dem Darmteil, in welchem der Parasit vorkommt, sind die Faeces ziemlich flüssig und von neutraler oder alkalischer Reaktion.
Ob der von Leidy im Darm von Melolontha quercina und M. brunnea in Amerika gefundene Bodo melolonthae mit dieser Art identisch ist, ist nicht gewiß. Dasselbe gilt von den von Stein erwähnten, aber nicht näher beschriebenen Flagellaten im Darm von Cetonialarven.
Von Künstler ist ebenfalls eine verwandte Form aus Hydrophilus beschrieben worden.
Es fehlt uns überhaupt an Anhaltspunkten zur Abgrenzung der einzelnen Arten von Monocercomonas. Wahrscheinlich gibt es eine ganze Reihe von Formen in den verschiedensten Wirten.
2. Monocercomonas colubrorum Hammerschmidt.
|
1844.
|
Cercomonas colubrorum Hammerschmidt.
In: Hellers Archiv für physiol. Chemie und Mikroskopie. p. 83.
|
|
1884.
|
M. coronellae Grassi. In: Atti
Soc. Ital. Sci. nat. Vol. 24. p. 153.
|
Diese Art zeichnet sich durch einen etwas schlankeren Schwanzfortsatz aus. Sie wurde in einigen Schlangen (Coronella austriaca T.) gefunden. Alle näheren Angaben fehlen.
Vielleicht ist die Art jedoch identisch mit Dobells Trichomastix serpentis (s. u.), wie dieser Autor selbst vermutet.
3. Monocercomonas bufonis Dobell.
|
1908.
|
Dobell, Cl., On the Intestinal
Protozoan Parasites of Frogs and Toads. In: Proc. Cambridge Philos. Soc.
Vol. 14. p. 428.
|
Ein ovales Flagellat mit einem großen, runden Kern und 4 nach vorn gerichteten Geißeln. Länge ca. 15 µ. Im Dickdarm der Kröten (Bufo sp.) selten. Von Alexeieff auch bei Triton, Froschlarven und Axolotl gefunden.
Gattung: Trichomonas Donné.
Die Angehörigen dieser Gattung sind ziemlich klein (zwischen 4 und 30 µ). Sie haben eine im allgemeinen birnförmige Gestalt. Ihr Vorderende ist abgerundet oder etwas spitz zulaufend. Am Vorderende sitzen 3 oder 4 gleich lange Geißeln. Wenn nur 3 Geißeln vorhanden sind, so geht vom gleichen Ansatzpunkt auch eine undulierende Membran aus, welche den Körper spiralig umziehen und manchmal sich in eine Geißel verlängern kann. Wie es scheint, kann der Rand dieser Membran bei Druck sich in Form einer selbständigen [S. 488]Geißel abheben, was nicht selten zur Angabe einer vierten Geißel geführt hat. Offenbar ist das Auftreten oder Fehlen der undulierenden Membran hauptsächlich durch den Zustand des umgebenden Mediums bedingt, so daß von jeder der Arten sowohl eine Trichomonas-Form mit 3 Geißeln und undulierender Membran, und eine Trichomastix-Form mit 4 freien Geißeln und ohne undulierende Membran vorkommen kann; im letzteren Fall sind drei der Geißeln nach vorn gerichtet, die vierte mehr oder minder deutlich als Schleppgeißel nach hinten. Auch die Geißeln selbst verkleben oft untereinander. Neuerdings ist auch eine Form mit 4 freien Geißeln und einer undulierenden [S. 489]Membran beschrieben worden, welche als Repräsentant einer neuen Untergattung Tetratrichomonas Parisi betrachtet wird.
Seitlich am Vorderende liegt das enge, spaltförmige Cytostom, welches der Aufnahme geformter Nahrung dient, die hauptsächlich aus Kokken und Bakterien besteht.
Das Hinterende ist in eine mäßige Spitze ausgezogen, welche durch einen den Körper von vorn nach hinten durchziehenden Achsenstab gefestigt ist. Hinter dem Vorderende liegt ein ovaler Kern, nach hinten mehrere Vakuolen, aber keine kontraktile.
Vor dem Kern liegt ein quergestreckter Blepharoplast, von dem die Geißeln und der Randfaden der undulierenden Membran ihren Ursprung nehmen. Die Teilung ist sowohl bei den Trichomonas- als auch bei den Trichomastixformen beobachtet worden, wo sie etwas verschieden verläuft. Sie ist in den Figg. 424 A–F und 178 A–C, S. 170 nach den vortrefflichen Abbildungen Dobells dargestellt. Sie lassen in Fig. 178 die Verdoppelung der undulierenden Membran, in Fig. 424 die Teilung von Kern und Blepharoplast, die Entstehung des Achsenstabs aus der Substanz des letzteren[30] und die Verteilung der Geißeln und die Neubildung je zweier Geißeln in jedem Tochtertier erkennen.
Befruchtungsstadien sind bisher nur von T. hominis und T. lacertae beschrieben worden. Und zwar ist bei Trichomonas hominis aus der Ratte von Prowazek (nachdem Aehnliches schon von Schaudinn bei Individuen aus dem Menschen gesehen worden war) Isogamie nachgewiesen worden. Zwei Individuen verschmelzen miteinander, nachdem sie vorher amöboid geworden waren. Bei der Verschmelzung wird eine zarte Gallertcyste abgeschieden. Im Innern wird ein Reservestoffballen aus glykogenartiger Substanz abgesondert, der sich in der Folge stark aufbläht. Die Kerne rücken an die äußerste Peripherie, sondern je zwei Reduktionskörper ab, rücken dann aufeinander los und verschmelzen. Das Synkaryon teilt sich dann mehrmals, und in der Cyste entstehen eine ganze Anzahl von metagamen Tochtertieren, wobei der Reservestoffballen zum Wachstum verbraucht wird (Fig. 428).
Bei T. lacertae hat Prowazek Autogamie beschrieben, wobei nur ein Tier sich encystiert, während sonst alle Vorgänge analog den oben beschriebenen verlaufen (vgl. S. 209 und Fig. 214, S. 209 und Fig. 428). Doch fehlen oft die metagamen Teilungen, oder es erfolgen nur wenige. So soll nach Prowazek auf die Autogamie Bildung vierkerniger Dauercysten folgen.
Ganz anders aussehende, ovale, einkernige, agame Dauercysten hat Dobell beschrieben. In ihnen bildet der Kern einen deutlichen Binnenkörper aus und nimmt eine eigentümliche Spindelgestalt an (Fig. 433).
Trichomonasarten sind in der Trichomonas- oder Trichomastixform, vielfach in beiden gleichzeitig, bei einer großen Anzahl von Tieren beschrieben worden; so bei anuren Amphibien, bei Eidechsen, Schlangen, Vögeln, Mäusen, Ratten, Meerschweinchen, Füchsen, Katzen, Hunden, Affen und Menschen. Bis zu welchem Grade diese Parasiten in gesonderte Arten gespalten sind, können wir jetzt noch nicht entscheiden. [S. 490]Die morphologischen Verschiedenheiten sind vielfach sehr gering. Bei einander nahestehenden Wirtsarten sind die Trichomonaden einander oft sehr ähnlich, aber doch in Größe und Struktur in geringfügiger Weise, aber konstant voneinander abweichend. Ob physiologische Verschiedenheiten vorhanden sind, und wenn das der Fall ist, ob sie durch rationelle Zucht abgeändert werden können, das ist noch unbekannt. Folgende Arten werden in der Literatur hauptsächlich genannt:
1. Trichomonas vaginalis Donné.
|
1837.
|
Donné, A., Recherches sur la
nature du mucus. Paris.
|
|
1847.
|
— Cours de Microscopie. Paris. p. 157.
|
|
1868.
|
Scanzoni, F. W., und
Kölliker, A. In: Compt. rend. Ac. Sci. Paris.
Vol. 40. p. 1076.
|
|
1870.
|
Haussmann, Die Parasiten der
weiblichen Geschlechtsorgane. Berlin.
|
|
1884.
|
Blochmann, F., Bemerkungen über
einige Flagellaten. In: Zeitschr. wiss. Zool. Vol. 40. p. 42. (Daselbst auch
weitere Literatur.)
|
|
1884.
|
Künstler, J., Trichomonas
vaginalis Don. In: Journ. de Micrographie. Paris. Vol. 8. p. 317.
|
Tr. vaginalis hat einen sehr metabolen Körper; er ist in der Regel kurz oder lang-spindelförmig. Das Hinterende läuft in eine scharfe Spitze aus, welche amöboid einziehbar ist, während das Vorderende mehr oder weniger gewölbt erscheint (Fig. 425). Die hintere Spitze ist etwa halb so lang wie der übrige Körper.
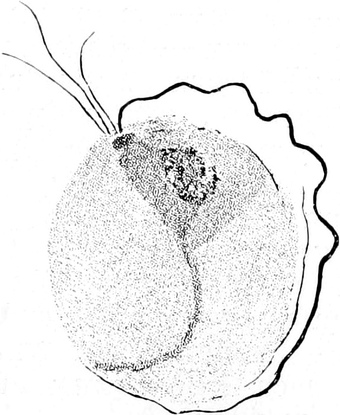
Das Körperprotoplasma ist sehr fein granuliert; im Entoplasma, welches vom Ektoplasma kaum abgegrenzt erscheint, finden sich auch einzelne gröbere Körnchen. Bei den meisten Exemplaren finden sich nach Blochmann zwei auffallende Längsreihen von Körnchen (Fig. 425). Die Cuticula ist sehr fein.
Am Vorderende des Tiers befinden sich 3 Geißeln; an der gleichen Stelle wie diese entspringt die undulierende Membran. Außer dem durch diese Organe vermittelten Schwimmen kommt auch eine kriechende Fortbewegung vor, welche unter lebhaften Gestaltsveränderungen vor sich geht. Nach manchen Angaben muß auch bei dieser Art eine Trichomastixform vorkommen, da nicht selten Individuen mit 4 Geißeln beschrieben wurden; solche entstehen offenbar durch Freiwerden des Randsaumes der undulierenden Membran. — Im Innern des Zellleibs läßt sich manchmal eine längs verlaufende stäbchenartige Struktur erkennen, wohl ein Stützorgan, welches die Körperform des Tiers teilweise bedingt (vgl. Fig. 426).
Dicht hinter dem Geißelursprung liegt der bläschenförmige Kern. Eine kontraktile Vakuole gibt es nicht. Die mittlere Länge des Flagellats ist 17 µ, sie schwankt zwischen 15 und 25–30 µ, die Breite zwischen 7 und 12 µ.
[S. 491]
Während Künstler eine Mundöffnung mit an sie anschließendem Schlund beobachtet hat, sind diese Strukturen von Marchand nicht gesehen worden; der letztere hat jedoch Nahrungsvakuolen und in ihnen schwebende Körnchen gesehen.
Vermehrungsvorgänge und Dauerformen sind gänzlich unbekannt.
Die Ernährung des Parasiten ist wahrscheinlich nur durch Flüssigkeiten vermittelt, denn man findet weder Detritus noch Bakterien in seinem Innern.
Tr. vaginalis ist ein Parasit des Menschen; in der Regel kommt sie nur beim weiblichen Geschlecht vor, und zwar nach Haussmann in 30–40 Proz. der untersuchten Fälle. Und zwar hat man sie bei Mädchen von 6–7 Jahren und bei Greisinnen ebensowohl, als in jedem mittleren Alter gefunden.
Sie lebt in dem Schleim der Vagina, welcher sauer reagiert.
Aendert sich die Reaktion bei der Menstruation, oder injiziert man eine alkalische Flüssigkeit, so sterben die Flagellaten ab; ebenso wirkt eine kalte Flüssigkeit (unter +15° C). Wenn die Parasiten durch die Urethra in die Blase vordringen, so erzeugen sie schwere Katarrhe und sind sehr schwer zu beseitigen.
Miura, Marchand und Dock fanden Trichomonas vaginalis auch im Harn bei Männern; es lag dann eine Infektion durch Frauen vor, in Fällen, wo die Urethra des Mannes schon erkrankt war.
Die Parasiten sind mikroskopisch im Scheidensekret leicht nachzuweisen, wo sie sich zwischen den Epithelfetzen und Schleimkörperchen langsam bewegen. Der Schleim, in welchem sie vorkommen, zeichnet sich oft durch schaumiges Aussehen aus.
Der Infektionsmodus ist noch unbekannt; eine Uebertragung auf Kaninchen ist Blochmann nicht gelungen; ebensowenig gelang Infektion von Meerschweinchen und Hunden. Es ist auch sehr fraglich, ob die Flagellaten einen spezifischen Scheidenkatarrh hervorrufen, oder ob sie nur Nebenparasiten darstellen. Doch werden sie wohl bei starker Vermehrung stets Schädigungen bedingen und durch andere Ursachen hervorgerufene verstärken.
2. Trichomonas hominis (Davaine).
|
1854.
|
Cercomonas hominis Davaine. In:
Compt. Rend. Soc. Biologie. Paris.
|
|
1875.
|
Cercomonas intestinalis Lambl.
In: Rapport médical russe.
|
|
1879.
|
Trichomonas intestinalis
Leuckart. In: Parasiten des Menschen.
|
|
1882.
|
Monocercomonas hominis Grassi.
In: Atti Soc. Ital. Sci. nat. Vol. 24.
|
|
1883.
|
Cimaenomonas hominis Grassi.
Ibidem.
|
|
1895.
|
Trichomonas hominis (Davaine)
Braun. In: Die tierischen Parasiten des Menschen.
3. Aufl.
|
Diese Art, welche im allgemeinen der Trichomonas vaginalis sehr ähnelt, ist durch ihre geringere Größe ausgezeichnet.
Die Gestalt ist ausgesprochener birnförmig; der Körper ist ziemlich metabolisch; auch scheint er leicht zu amöboider Beweglichkeit überzugehen. Am Vorderende stehen 3 Geißeln, eine vierte ist oft angegeben worden; es beruht dies wohl auf dem Auftreten einer Trichomastixform, welche durch Loslösung des Randfadens der undulierenden Membran entstanden ist (Fig. 427 B). In solchen Fällen wird auch stets die undulierende Membran als schwer sichtbar bezeichnet. Sonst stimmt alles mit Trichomonas vaginalis überein. Nahrungsvakuolen, Bakterien in verschiedenen Stadien der Verdauung [S. 492]enthaltend, sind beobachtet worden. Besonders von der im Mund vorkommenden Form gibt Prowazek an, daß ihre Nahrung ausschließlich aus Mikrokokken besteht. Die Aufnahme geschieht durch eine muldenartige Mundstelle an dem amöboid beweglichen Vorderende.
Mir scheint es nicht ganz sicher, ob es sich in Tr. hominis wirklich um eine von Tr. vaginalis spezifisch verschiedene Art handelt.
Trichomonas hominis mißt in der Länge 4–10 (selten bis 15) µ, in der Breite 3–4 µ. Der Schwanzanhang mißt 2–3 µ.
Cystenbildung, welche schon von Schürmayer u. a. angegeben war, ist durch Schaudinn beobachtet worden. Nach ihm verliert Tr. hominis vor der Kopulation ihre Geißeln; sie wird amöboid beweglich, und je zwei Individuen encystieren sich gemeinsam, wobei sie einen großen Reservestoffballen bilden. Dann erfolgen zwei Reduktionsteilungen der Kerne und Bildung eines Synkaryons, dasselbe teilt sich dann in der Cyste mehrmals. Solche Cysten haben offenbar auch Ucke vorgelegen; auch Ellermann hat im Speichel vielleicht Aehnliches beobachtet (?).
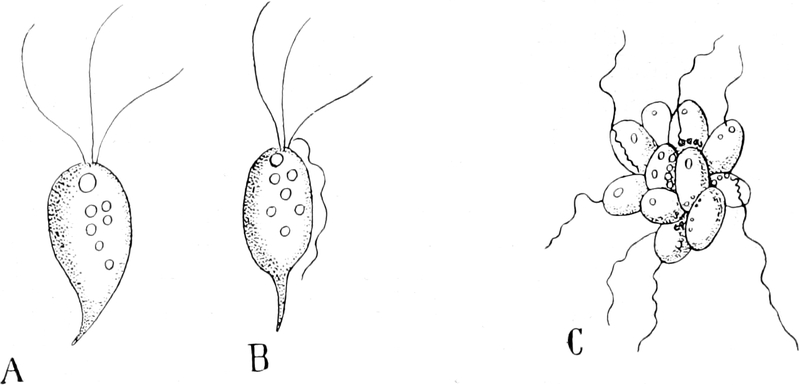
Bohne und Prowazek (Arch. f. Protistenk. Vol. 12. 1908. p. 1) beschreiben solche Cysten, bei denen sie das Vorkommen einer Autogamie (?) annehmen (vgl. Fig. 428).
Kruse und Pasquale beobachteten Haufen von Trichomonaden, welche sie als Schwärmerbildung deuten (Fig. 427 C), vielleicht handelt es sich aber auch um Agglomeration.
Trichomonas hominis parasitiert im Darm des Menschen, und zwar, wie es scheint, gewöhnlich in den oberen und mittleren Abschnitten. Sie findet sich bisweilen selbst in der Mundhöhle und in kariösen Zähnen[31] sowie im Oesophagus; im Magen ist sie, besonders bei Magencarcinomen, häufig gefunden worden. Man hat sie sogar als diagnostisches Hilfsmittel zur Erkennung von frühen Stadien der letzteren bezeichnet. Das ist aber wohl ein fehlerhafter Schluß, da sie auch sonst vielfach sich entwickelt, wenn die saure Reaktion der umgebenden Flüssigkeit verschwindet und mehr oder weniger alkalische Reaktion eintritt.
[S. 493]
Man fand sie bei Typhus, Cholera, schweren Darmkatarrhen und Diarrhöen; bei Carcinomen des Magens fand man sie im Colon und im Magen selbst. Nach Strübe soll Gangrän in letzterem Fall die Ansiedelung des Flagellaten erleichtern; derselbe fand ihn sogar einmal in der Lunge bei Lungengangrän (Berliner Klinische Wochenschrift. 1898. p. 708), was neuerdings durch Dolley (1910) bestätigt wurde. Schmidt und St. Artault, welche ebenfalls Trichomonaden in der Lunge fanden, hielten diese für Angehörige einer besonderen Art und nannten sie T. pulmonalis. Auch Prowazek hebt hervor, daß die von ihm in der Mundhöhle beobachteten Trichomonaden (im Zahnbelag, in der Höhlung kariöser Zähne) durch ihren auffallend langen Schwanz und abweichenden Verlauf der undulierenden Membran als besondere Varietät erkennbar seien (Fig. 429). Auch andere Autoren nehmen das Vorkommen von verschiedenen Arten an; doch werden die geringen Verschiedenheiten wohl auf Einflüsse des Milieus zurückzuführen sein.
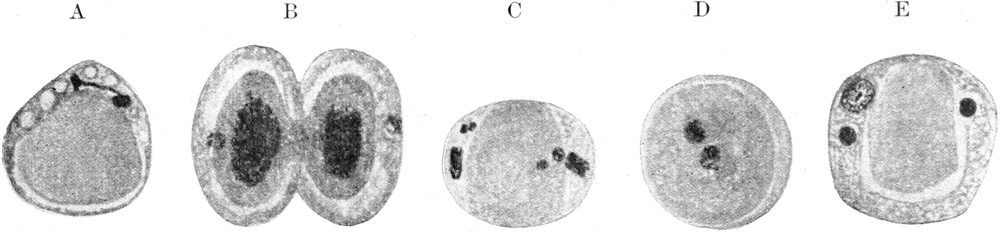
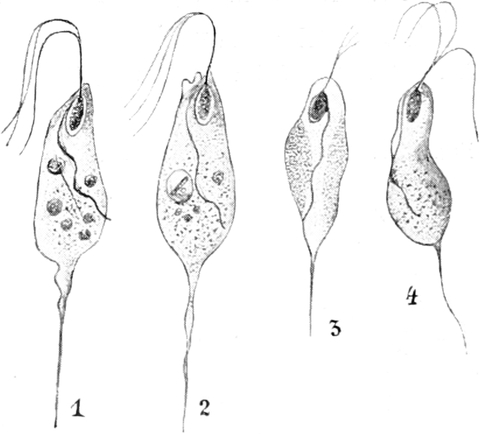
Bei Säuglingen fand man den Parasiten noch nicht, auch wenn starke Diarrhöen vorlagen; bei Diarrhöen etwas älterer Kinder wurde er jedoch häufig nachgewiesen; auch wurden bei gesunden Erwachsenen nach Abführmitteln Flagellaten (ob Tr. hominis?) im Stuhl beobachtet (Schuberg); es scheint daher, daß Trichomonas hominis weit verbreitet als harmloser Kommensale im menschlichen Darm vorkommt, wie seine Verwandten bei zahlreichen Tieren, daß aber bei gewissen Erkrankungen eine sehr starke Vermehrung stattfindet. Je flüssiger der Stuhl des Kranken ist, desto zahlreicher sind im allgemeinen die Trichomonaden.
Ob die Flagellaten dann eine Wirkung ausüben, welche den Krankheitszustand noch steigert, ist ebenfalls unbekannt.
Eine Uebertragung des Parasiten auf Tiere ist bis jetzt nicht gelungen. Doch scheint bei Menschen eine Ansteckung mit demselben vorzukommen. Wenigstens berichtet Epstein (Prager Med. Wochenschrift. 1893), daß einmal [S. 494]sämtliche in einem Zimmer der Klinik liegenden sechs Kinder an Diarrhöe mit gleichzeitigem Auftreten von Trichomonas hominis erkrankten.
Die Art wurde in Europa (Deutschland, Rußland, Frankreich, Italien) und Asien (Indien) gefunden. Doch wird ihre Verbreitung sicher eine viel weitere sein.
Langsame Erwärmung verträgt T. hominis nur bis zu 46° C; bei rascher Erwärmung sah Grassi einige Exemplare noch bei 54° C leben, bei 55° C waren alle tot. Abkühlung auf 8° C wird ganz gut ertragen.
Das Flagellat lebt nur im alkalischen Darminhalt; bei saurer Reaktion stirbt es sehr bald ab. Grassi konnte dagegen in sehr dünnflüssigem, alkalischem Stuhl die Tiere über 50 Tage lebend erhalten.
Ob die bei Affen, Schweinen (s. unten), Ratten, Mäusen, Meerschweinchen etc. gefundenen darmbewohnenden Trichomonaden von T. hominis verschiedene Arten oder nur schwach unterschiedene Standortsvarietäten darstellen, ist noch unentschieden. Brumpt konnte die Form aus dem Affen auf Schweine übertragen.
Nahe steht jedenfalls Trichomonas muris Hartmann, welche einen deutlichen Achsenstab besitzt. Sie ist im Blinddarm der Maus fast stets in großer Anzahl anzutreffen.
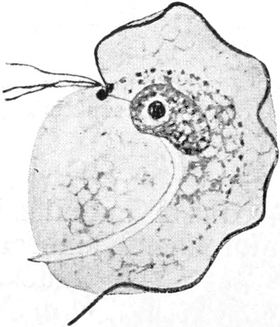
3. Trichomonas batrachorum Perty.
|
1852.
|
Tr. batrachorum Perty, Zur
Kenntnis kleinster Lebensformen. Bern.
|
|
1878.
|
Tr. batrachorum Stein, Der
Organismus der Flagellaten.
|
|
1882.
|
Cimaenomonas batrachorum Grassi.
In: Att. Soc. Ital. Sci. nat. Vol. 24.
|
|
1884.
|
Tr. batrachorum Blochmann. In:
Zeitschr. wiss. Zool. Vol. 40. p. 44.
|
|
1908.
|
Tr. batrachorum Perty u.
Trichomastix batrachorum n. sp. Dobell. In: Proc.
Cambridge Philos. Soc. Vol. 14. p. 428.
|
Tr. batrachorum ist von gestreckt-birnförmiger Gestalt, aber viel starrer und steifer als die vorher beschriebenen Arten. Auch ist der Körper unter normalen Verhältnissen gar nicht metabol. Trichomonas- und Trichomastixform nachgewiesen, deren Bau im allgemeinen übereinstimmt.
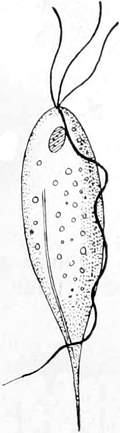
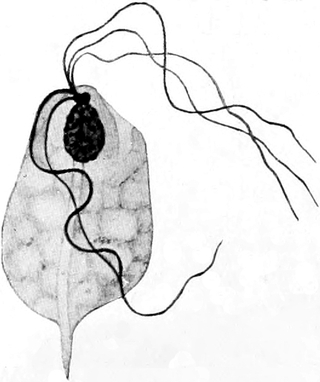
Der Schwanzfortsatz ist ziemlich lang (⅓ des Körpers) und sehr scharf zugespitzt. Achsenstab deutlich. Undulierende Membran resp. Schleppgeißel entspringen an der gleichen Stelle wie die 3 vorderen Geißeln, [S. 495]welche ungefähr die halbe Körperlänge erreichen, in einem Blepharoplasten; die Membran erstreckt sich der Kante des Körpers entlang bis etwa zur Basis des Schwanzfortsatzes; dort endigt sie mit einer kurzen freien Geißel.
Das hyaline Plasma enthält im Innern Körperchen, welche Blochmann zum Teil für aufgenommene Mikrokokken hält. Der Kern liegt dicht am Vorderende, hinter der Geißelbasis (Fig. 431); er ist oval im Umriß.
Grassi beobachtete nicht selten neben der Geißelbasis eine tiefe Einsenkung, das von Dobell bestätigte Cytostom.
Ueber die Teilung sind oben die nötigen Angaben (S. 489) gemacht. (Vgl. die Abbildungen Fig. 424 und 178 auf S. 170.) Bildung von agamen Dauercysten sowohl bei der Trichomastix- als auch der Trichomonasform beobachtet. Während der Entstehung sind beide etwas verschieden (Fig. 433 A u. B u. C), wenn sie fertig sind, aber nicht mehr zu unterscheiden (Fig. 433 D u. E). Geschlechtliche Vorgänge sind bei dieser Form nicht bekannt geworden.
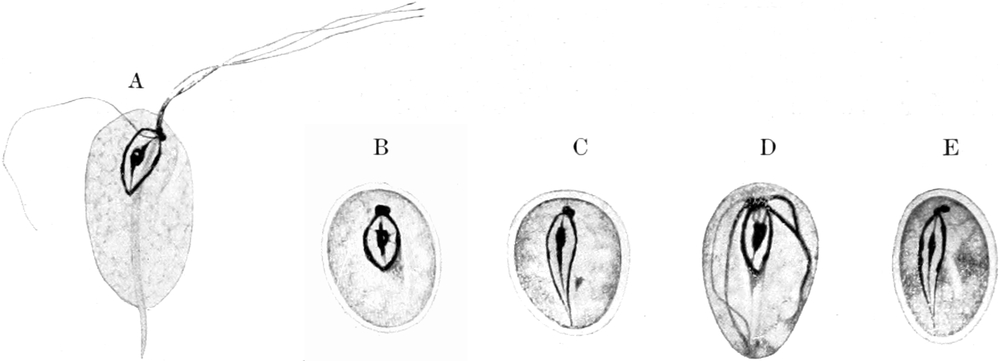
Der Parasit lebt in der Kloake von Rana temporaria, R. esculenta, Bufo vulgaris und Hyla arborea (Deutschland, Italien), und im Axolotl (Amblystoma mexicanum), in welchem manchmal stark abweichende Individuen gefunden werden (Parisi).
Der Kloakeninhalt hat alkalische Reaktion; ist er flüssig und enthält reichlich organische Substanz, so sind die Parasiten zahlreich; ist er fester und voll von Sandkörnern, so gibt es deren nur wenige.
Die normal ausgestoßenen Faeces enthalten keine Flagellaten, auch wenn die Kloake des betreffenden Tieres von ihnen wimmelt.
Hier sind vielleicht zwei unsichere Arten anzuschließen:
Trichomonas suis Gruby und Delafond.
Flagellat von 20 µ Länge und 10 µ Breite aus dem Magen des Schweines. Es ist oval, flach und besitzt einen konischen Schwanzanhang. Sehr lebhaft beweglich.
[S. 496]
Trichomonas limacis Dujardin.
Das Flagellat ist oval, glatt, 15 µ lang und findet sich im Darm von Limax agrestis.
Beide zitiert nach: Davaine, Artikel Monadiens. in: Dictionnaire encycl. Sciences médicales. Sér. 2. Vol. 9. 1875.
Auch bei Blutegeln wurden Trichomonaden gefunden (Brumpt).
4. Trichomonas (Trichomastix) lacertae Bütschli.
|
1884.
|
Blochmann. In: Zeitschr. wiss.
Zool. Vol. 40. p. 46.
|
|
1904.
|
Prowazek, Unters. über einige
parasit. Flagellaten. In: Arb. a. d. Kais. Ges.-Amt. Vol. 21. p. 1.
|
Die Gestalt von Tr. lacertae ist langgestreckt-birnförmig; der Schwanzfortsatz ist sehr ansehnlich. Wie bei der vorhergehenden Art setzt sich derselbe in einen Rückenkiel fort (Fig. 434). Diese Strukturen sind gestützt durch den sog. Achsenstab. An dessen Vorderende liegt der ovale Kern.
Das Protoplasma ist sehr feinwabig und enthält zahlreiche Mikrokokken. Letztere bilden die Hauptnahrung und werden durch das am Vorderende gelegene spaltförmige Cytostom aufgenommen.
Die 4 Geißeln entspringen zusammen am Vorderende; während die 3 gleich großen nach vorn gerichtet sind, ist die vierte viel größer und als Schleppgeißel nach hinten gerichtet. Die 3 vorderen entspringen von einem Basalkorn vor, die Schleppgeißel von einem solchen neben dem Kern.
Das Tier hat eine Länge von 15 µ; die vorderen Geißeln sind 8–10 µ, die Schleppgeißel etwa 24 µ lang. Die Fortpflanzung durch Längsteilung ist hauptsächlich von Prowazek studiert worden, welcher auch die Autogamie beschrieben hat (s. oben S. 489). Die Cysten enthalten einen großen kugligen oder ovalen Körper aus glykogenartiger Substanz. Von dieser Art ist auch die Trichomonasform bekannt, [S. 497]welche von Prowazek als besondere Art unter dem Namen Trichomonas lacertae beschrieben worden ist. Als Unterschiede werden außer der undulierenden Membran deren Stützfibrillen, die schmale sichelartige Form des Cytostoms, das Vorkommen multipler Vermehrung und die geringe Ausbildung des Achsenstabs angegeben. Die Trichomonasform ist viel seltener als die Trichomastixform.
Tr. lacertae kommt in der Kloake von Lacerta agilis, L. muralis, L. serpa und wahrscheinlich auch zahlreicher anderer Lacertaarten vor und ist scheinbar überall sehr häufig.
Sehr nahe steht die von Dobell beschriebene Trichomastix serpentis, welche 14 µ im Durchschnitt lang ist und hauptsächlich in den Teilungsvorgängen Abweichungen von Tr. lacertae zu zeigen schien (Dobell, Quart. Journ. Micr. Sci. Vol. 51. 1907. p. 449).
Hier sei auch auf die viergeißelige und trotzdem mit einer undulierenden Membran versehene Trichomonas (Tetratrichomonas) Prowazeki Alexeieff hingewiesen, welche in Salamandra maculosa Laur., Triton cristatus Laur., Alytes obstetricans Wagl. und Crocodiens palustris Less. gefunden wurde.
5. Trichomonas (Trichomastix) caviae (Davaine).
|
1875.
|
? Monas caviae Davaine a. a. O.
Vgl. p. 496.
|
|
1882.
|
Heteromita caviae Grassi. Atti
Soc. ital. Sc. nat. Vol. 24. p. 165.
|
Im oberen Teil des Dickdarms vom Meerschweinchen finden sich nicht selten ovale Flagellaten mit abgestumpftem Vorder- und Hinterende. Im allgemeinen ist das Vorderende etwas mehr verschmälert.
Das Tier mißt 3,3–6,6 µ in der Länge und 2,2–3,3 µ in der Breite (Grassi).
Nach den nicht ganz sicheren Angaben von Grassi besitzt das Tier 3 unter sich gleiche Geißeln am Vorderende und eine nach hinten gerichtete, deren Ursprungsstelle nicht sicher ist.
Es ist also sehr wahrscheinlich, daß dieser Parasit des Meerschweinchens hierher gehört. Galli-Valerio hat sichere Trichomonaden beim Meerschweinchen beobachtet. Er fand auch im Kote desselben Cysten; aus letzteren schlüpften in der Wärme kleine Flagellaten aus. Mit cystenhaltigem Material infizierte er Meerschweinchen, welche so schwer unter Auftreten zahlloser Trichomonaden erkrankten, daß sie starben.
Auch im Darm von Blatta findet sich nach Grassi ein sehr ähnlicher Parasit, welcher neuerdings, von Parisi wieder aufgefunden, und als T. orthopterorum Par. beschrieben wurde.
Gattung: Macrostoma Alexeieff.
|
1909.
|
Alexeieff, A., Les flagellés
parasites de l’intestin des batraciens indigènes. In: C. R. Soc. Biol.
Paris. Vol. 67. p. 199.
|
In Batrachiern hat neuerdings Alexeieff eine neue Gattung von Flagellaten entdeckt, welche hier anzuschließen ist. Sie ähnelt in der Körperform den Trichomonaden. Doch hat sie ein deutliches Cytostom und nur 3 Geißeln. Nach Wenyon ist bei der Untersuchung vielleicht eine undulierende Membran übersehen worden, welche in der Tiefe des Cytostoms liegt; eine solche ist jedenfalls bei der von ihm untersuchten Art vorhanden:
[S. 498]
Macrostoma Mesnili Wenyon.
|
1910.
|
Wenyon, C. M., A new flagellate
from the human intestine. In: Parasitology. Vol. 3. p. 210.
|
Das birnförmige Flagellat mißt im Durchschnitt 14 µ in der Länge, 7 µ in der Breite; die größten Individuen sind 15 µ lang, doch kommen kleine Exemplare bis zu 3 µ Durchmesser vor (Fig. 437 C). Letztere sind meist kuglig. Charakteristisch ist der Besitz des großen Cytostoms, welches ½–⅓ der Länge des Körpers erreicht. Die 3 Geißeln sind etwa gleich lang, im Cytostom ist deutlich eine weitere Geißel oder wahrscheinlicher eine undulierende Membran erkennbar. Der Kern liegt am vorderen Ende, ist kuglig, besitzt eine distinkte Membran und im Innern große Chromatinbrocken. Die Geißeln inserieren an einem oder zwei Basalkörnern. Die ovalen Cysten wurden nicht selten gefunden; sie messen 7 : 5,5 µ.
Das Flagellat wurde in London im Seemanns-Krankenhaus bei einem Mann von den Bahamasinseln gefunden. Es schien keinen pathologischen Effekt auszuüben.
Die von Alexeieff in Froschlarven und im Axolotl gefundene Form (Macrostoma Caulleryi Al.) ist 20–25 µ lang, 8 µ breit.
2. Familie: Polymastigidae Bütschli.
Die kleinen, zweistrahlig oder bilateral gebauten Angehörigen dieser Familie sind meist am Hinterende mit 2 Geißeln versehen, zu denen noch am Vorderende oder an den Seiten des Körpers jederseits 2–3 große Geißeln kommen.
Gattungen der Familie Polymastigidae:
1. Hinterende mit 2 Geißeln 2
Hinterende zugespitzt oder zwei- bis dreilappig:
Gattung: Polymastix Bütschli.
[S. 499]
2. Am Vorderende jederseits 3 Geißeln. Kern rundlich:
Gattung: Hexamitus Dujardin.
Hinterende zugespitzt oder zwei- bis dreilappig: Am Vorderende jederseits eine Geißel und in der Mitte jederseits deren 2; vorn an der Bauchseite ein Saugnapf; Kern hantelförmig (oder 2 Kerne)
Gattung: Lamblia Blanchard.
Gattung: Hexamitus Dujardin.
Die kleinen Arten dieser Gattung sind farblos, nackt und daher oft sehr metabolisch, manchmal selbst direkt amöboid. Die Gestalt ist meist ungefähr oval, aber nach hinten abgestutzt oder zugespitzt. Am Seitenrand jederseits eine Spalte, aus welcher eine lange Schleppgeißel hervorragt, welche mitunter auch zu vorübergehender Anheftung benutzt wird. Am Vorderende entspringen jederseits 3 gleich lange, ansehnliche Geißeln, jeweils zu einer Gruppe vereinigt. Der Kern liegt im Vorderende zwischen den beiderseitigen Geißelursprüngen. Meist am Hinterende öffnet sich die eine kontraktile Vakuole. Die Furchen, aus denen die Schleppgeißeln hervorragen, liegen an den entgegengesetzten Flächen des abgeplatteten Körpers; d. h. wenn die rechte Furche nach oben liegt, ist die linke auf der Unterseite. Die Nahrungsaufnahme vermitteln Mundstellen, welche in diesen Furchen oder neben ihnen liegen. Die Teilung ist eine regelrechte Längsteilung, wobei die Kerne eine primitive Mitose durchmachen.
Die Gattung enthält frei — in Infusionen — lebende Arten und Parasiten.
Möglicherweise müssen wir die parasitischen Formen als besondere Gattung von den freilebenden Hexamitusarten abtrennen. Die Parasiten würden dann die Gattung Octomitus Prowazek bilden.
Das häufige gemeinsame Vorkommen der parasitischen Arten von Hexamitus und Lamblia und die Aehnlichkeiten im Bau bei beiden Gattungen lassen eventuelle nähere Beziehungen zwischen ihnen vermuten, wie ich schon in der 1. Auflage andeutete (Hexamitus ev. Jugendstadien von Lamblia).
Die freilebenden Formen sind hauptsächlich von Klebs studiert worden, von ihnen erwähnen wir nur eine Art.
1. Hexamitus inflatus Dujardin.
|
1892.
|
Klebs. In: Zeitschr. f. wiss.
Zool. Vol. 55. p. 338.
|
Länge 13–25 µ. Schwach abgeplattet, eiförmig bis zylindrisch, hinten abgestutzt. Schleppgeißel 1–2mal so lang wie der Körper. Körper oft von Glykogenkugeln erfüllt. Geißelspalten schmal, bis zum Hinterrand reichend.
Häufig in Sumpfwasser, auch in Infusionen. Nach Certes auch im Darm von Austern (Ostrea edulis und angularis) gefunden (?).
Aehnlich sind Hexamitus fissus, pusillus etc.
2. Hexamitus intestinalis Duj.
|
1841.
|
Hexamita intestinalis Dujardin.
|
|
1865.
|
Amphimonas intestinalis Diesing.
|
|
1879.
|
Dicercomonas (Monomorphus) ranarum
Grassi.
|
|
1882.
|
Dicercomonas intestinalis (Duj.)
Grassi. In: Atti Soc. ital. Sci. nat. Vol. 24.
p. 165.
|
|
1892.
|
Hexamitus intestinalis Klebs.
In: Zeitschr. f. wiss. Zool. Vol. 55. p. 340.
|
|
[S. 500]
1903.
|
Urophagus intestinalis Moroff.
In: Arch. f. Protistenk. Vol. 3. p. 92.
|
|
1908.
|
Octomitus sp. Dobell. In:
Proceed. Cambridge Philos. Soc. Vol. 14. p. 128.
|
|
1908.
|
Alexeieff, A., Sur la division
de Hexamitus intestinalis Dujardin. Compt. rend. de la Soc. de Biol. Vol.
65. p. 403.
|
Länge 12–16 µ, Breite 6–7 µ. Nach Dobell kommen sehr kleine Individuen von 2–3 µ Länge vor.
Schlanke Art, welche im Darm und in der Leibeshöhle (?) von Batrachiern und Tritonen vorkommt. Vorkommen von Geißelspalten nicht sicher, vielleicht Längsfurchen. Komplizierter Blepharoplastenapparat in Verbindung mit dem hantelförmigen Kern.
Grassi fand die Art im Darm von Rana esculenta und Bufo vulgaris. Angeblich kommt sie auch in Schildkröten und Eidechsen vor. Sehr bemerkenswert erscheint mir die Angabe von Danilewsky, daß sie bei Verschlechterung der Ernährungsbedingungen des Wirts in Lymphe, Blut, Galle und Urin eindrängen und sich daselbst vermehrten. Moroff fand sie im Mitteldarm erkrankter Regenbogenforellen, Seligo bei Leucaspius delineatus.
Ovale Dauercysten (Fig. 439) von Dobell beschrieben.
Bei Regenbogenforellen und Wassersalamandern wird das Flagellat oft in großen Massen bei Entzündungen der Schleimhaut gefunden. Ob da ein kausaler Zusammenhang vorliegt, ist unsicher.
3. Hexamitus muris (Grassi).
|
1882.
|
Dicercomonas muris Grassi. In:
Atti Soc. ital. Sci. nat. Vol. 24. p. 106.
|
|
1904.
|
Foà, A., Ricerche intorno a due
specie di flagellati parassiti. In: Atti R. A. Lincei. Vol. 13. p. 121.
|
|
1907.
|
Wenyon, C. M., Observations on
the Protozoa in the intestine of Mice. In: Arch. f. Protistenk. Suppl. Vol.
1. p. 193.
|
Körper länglich-oval, Hinterende verschmälert, biegsam. Dieses nur 4–6 µ lange, 2 µ breite Flagellat wurde von Grassi im Darm von verschiedenen Mus-Arten und von Arvicola arvalis gefunden.
Wahrscheinlich identisch ist der von Prowazek aus dem Darm der Ratte beschriebene Octomitus intestinalis (Arb. a. d. Kais. Ges.-Amt. [S. 501]Vol. 21. 1904. p. 38), dessen erwachsene Exemplare 8–12 µ Länge, 5–7 µ Breite erreichen, während daneben viel kleinere Individuen vorkommen.
Wenyon hat beide Formen bei Mäusen beobachtet und läßt es unentschieden, ob es verschiedene Arten sind. In beiden Formen hat er kompliziert angeordnete Fasern und zwei am Vorderende gelegene Kernmassen beobachtet. Doch findet er gewisse Verschiedenheiten. Auch fand er die kleine Form ausschließlich im Dünndarm, die große ausschließlich im Blinddarm. Vielleicht handelt es sich um „Standortsvarietäten“.
Gattung: Lamblia Blanchard.
Lamblia intestinalis (Lambl).
|
1859.
|
Cercomonas intestinalis Lambl.
In: Prager Vierteljahrsschrift für die prakt. Heilkunde. Vol. 61.
|
|
1875.
|
Hexamitus duodenalis Davaine.
In: Artikel Monadiens, Dictionnaire encyclop. Sci. médic. Sér. II. Vol. 9.
|
|
1879.
|
Dimorphus muris Grassi. In:
Gazzetta medica ital. Lombard. No. 45.
|
|
1881.
|
Megastoma entericum Grassi. In:
Gazz. degli Ospitali. Anno 2. No. 13–15.
|
|
1886.
|
Megastoma intestinale Blanchard.
In: Zoologie médicale. Paris.
|
|
1888.
|
Lamblia intestinalis Blanchard.
In: Bull. Soc. Zool. Franç. Vol. 13.
|
|
1888.
|
Megastoma entericum Grassi u.
Schewiakoff. In: Zeitschr. wiss. Zool. Vol. 46.
p. 143.
|
|
1901.
|
Megastoma entericum Metzner,
Unters. an Megastoma ent. aus dem Kaninchendarm. In: Zeitschr. f. wiss.
Zool. Vol. 70. p. 299.
|
|
1908.
|
Bensen, Bau und Arten der
Gattung Lamblia. In: Zeitschr. f. Hyg. u. Inf. Vol. 61.
|
|
1908.
|
Bohne und
Prowazek, Zur Frage der Flagellatendysenterie. In:
Arch. f. Protistenk. Vol. 12. p. 1.
|
|
1909.
|
Noc, F., Observations sur le
cycle évolutif de Lamblia intestinalis. In: Bull. Soc. Path. exotique.
Paris. Vol. 2. p. 93.
|
Die Körpergestalt ist ausgesprochen rübenförmig; vorn ist der Körper durch einen schiefen Ausschnitt an der Bauchseite tief ausgehöhlt; dadurch ist eine Sauggrube gebildet, deren Ränder sich über die Körperoberfläche erheben und kontraktil sind. (Fig. 440 A u. B.)
Der Bau des Tieres ist also ein bilateral-symmetrischer.
Das schlank und spitz zulaufende schwanzartige Hinterende, auf welchem an der Bauchseite bis zum Hinterrand des Peristoms eine Längsrippe verläuft, verlängert sich in zwei lange Geißeln. Die [S. 502]übrigen Geißeln verteilen sich derart, daß am Vorderende des Tieres, am Vorderrande der Sauggrube ein Paar und in der Mitte des Hinterrandes desselben zwei Paar inseriert sind. Das vordere Paar, dessen Fortsätze sich im Innern des Plasmas kreuzen, entspringt in einer Rinne, welche von dem vorderen Rande der Sauggrube gebildet wird. Der hintere Rand derselben bildet in seiner Mitte eine nach vorn gerichtete Spitze; an dieser Stelle entspringen die beiden mittleren Geißelpaare, die einen mehr nach innen, die anderen nach außen zu. Im ganzen sind also 8 Geißeln vorhanden (Fig. 440 A), sie sind sämtlich nach hinten gerichtet. Basalkörner am Grund der Geißeln und Stützfasern im Innern des Körpers dienen offenbar der Verfestigung der Insertionspunkte der Geißeln etc. (Fig. 441). Metzner nimmt an, daß die Fasern reizleitende Strukturen seien. Bei der Bewegung spielen die Mittelgeißeln die Hauptrolle, sie wirbeln stets lebhaft umher, während die Schwanzgeißeln nachschleppen; die vorderen und die Seitengeißeln führen nur sanfte rudernde Bewegungen aus. Letztere beiden Paare scheinen vielfach in dem Teil, der nicht frei über die Kontur des Tieres vorragt, mit der Pellicula verschmolzen zu sein.
Das Protoplasma ist hyalin und sehr fein granuliert. Der Körper ist von einer sehr feinen, stärker lichtbrechenden Schicht überzogen (Pellicula oder Ektoplasma?).
In dem durch die Anwesenheit der tiefen Sauggrube dünnen vorderen Körperteil befindet sich der Kern (Fig. 440 A), welcher sowohl hantelförmig und einheitlich, als auch in zwei Kerngebilde zerfallen sein kann, welche dann oft durch Verbindungsstränge verbunden sind. Eine kontraktile Vakuole fehlt.
Ebenso fehlt ein Mund; als solcher scheint die ganze Sauggrube zu dienen.
Die Länge der Tiere ist 10–21 µ, die Breite 5–12 µ. Dabei sind die untereinander etwa gleich langen Geißeln 9–14 µ lang.
Teilung wurde noch nicht beobachtet, außer in den Cysten. Wenyon vermutet, daß die Teilungscysten eventuell der multiplikativen Vermehrung im Wirt dienen und daß neben ihnen Dauercysten vorkommen. Noc beschreibt multiple Teilung und sehr kleine Jugendstadien; doch machen seine Schilderungen keinen ganz klaren Eindruck.
[S. 503]
Die Dauercysten sind oval und besitzen eine ziemlich dicke Hülle; sie sind 10 µ lang und 7 µ breit. Sie entstehen, wie Schaudinn angibt, nach der Kopulation zweier Individuen. In den Cysten beobachteten Moritz und Hölzl 4 Kerne. (Vgl. auch Fig. 442.) Mit den Cysten gelang Infektion bei Menschen, Meerschweinchen, Mäusen und Kaninchen. Solche Cysten finden sich in manchen Gegenden im Trinkwasser und gelangen mit den Fäkalien der infizierten Tiere auf Pflanzenteile, was zur Infektion des Menschen führen kann.
Lamblia intestinalis ist in Italien in Mus musculus, M. rattus, M. decumanus, M. silvestris, Arvicola arvensis, im Haushund, der Hauskatze, dem Schaf und Kaninchen, in Deutschland in M. decumanus, Arvicola arvensis und A. amphibius nachgewiesen worden. In Deutschland, Italien, Rußland, Schweden, Aegypten und Nordamerika ist Lamblia auch beim Menschen gefunden worden; sie scheint bei Mensch und Tieren ein sehr häufiger Parasit zu sein. In Tonkin kommt sie nach Noc bei 50 Proz. der Bevölkerung vor. Aus den Angaben der verschiedenen Autoren geht hervor, daß in den verschiedenen Wirten kleine Formverschiedenheiten der Lamblien beobachtet wurden, von denen es nicht sicher ist, ob sie auf Einwirkung des Milieus oder auf das Vorkommen verschiedener Arten zurückzuführen sind. Ich füge hier Abbildungen von Lamblien aus Mensch, Maus und Kaninchen bei, welche einer Untersuchung von Bensen entnommen sind. Dieser Autor gibt an, daß die Unterschiede in Habitus, Dimensionen und in der Beschaffenheit einer im hinteren Körperdrittel gelegenen chromatischen Masse (Fig. 443) bei jedem dieser drei Wirte konstant seien. Er unterscheidet daher von der Lamblia intestinalis des Menschen L. muris Bens. aus der Maus und L. cuniculi Bens. aus dem Kaninchen. Die Konstanz dieser Formen wird neuerdings wieder bestritten.
In allen diesen Wirten bewohnt der Parasit das Duodenum und Jejunum, seltener andere Teile des Dünndarms; normalerweise findet man im Dickdarm (nach Perroncito) nur die Cysten, welche mit den [S. 504]Faeces entleert werden. Bei Diarrhöen findet man jedoch auch die freien Tiere in den Entleerungen.
Dieselben bewegen sich mit Hilfe ihrer Geißeln ziemlich behende, ohne dabei zu rotieren. Im Darm jedoch pflegen sie sich nicht zu bewegen, sondern sie sitzen mit ihrer Saugscheibe an dem gewölbten freien Ende der Epithelzellen der Darmzotten angesaugt (Fig. 440 C u. D). Sie umfassen mit dem kontraktilen Rande der Sauggrube das gewölbte Ende der Epithelzelle, indem sie gleichzeitig den übrigen Körper steil aufrichten.
Obgleich auf große Strecken fast jede Zelle des Darmepithels einen solchen Gast besitzen kann, üben die Lamblien dennoch meist keinen auffallenden schädlichen Einfluß auf ihren Wirt aus. Der von ihnen bewohnte Darm sieht vollkommen normal aus. Daß sie gerade bei Diarrhöen oft gefunden werden, erklärt sich nach dem oben Gesagten aus dem Umstand, daß sie bei erhöhter Peristaltik losgerissen werden. In normalen Faeces sind sehr häufig Cysten nachzuweisen, ohne daß der Wirt irgendwelche Krankheitserscheinungen zeigte. Grassi infizierte sich selbst mit Lamblia, ohne daß irgendwelche Erscheinungen zur Beobachtung gelangt wären.
Immerhin scheint bei entzündlichen Prozessen, ähnlich wie Trichomonas, so auch Lamblia sich gelegentlich stark zu vermehren. So findet sie sich bei Diarrhöen, bei Magencarcinom etc. Sie scheint nach neueren Erfahrungen bei sehr massenhafter Vermehrung Diarrhöen und dysenterieartige Erscheinungen zu verursachen (siehe Bohne und Prowazek, Arch. f. Protistenk. Vol. 12. 1908. p. 1). In Ostasien wird sie bei dysenterischen Erkrankungen auffallend oft gefunden.
Lamblia sanguinis Gonder.
|
1910.
|
Gonder, R., Lamblia sanguinis n.
sp. In: Arch. f. Protistenk. Vol. 21. 1910. p. 209.
|
Diese sehr an L. muris erinnernde Form, deren Körper 12 µ lang, 8 µ breit ist, wurde in Transvaal auffälligerweise im Herzblut eines blauen Falken (Elanus coeruleus) gefunden.
Gattung: Polymastix Bütschli.
Polymastix melolonthae (Grassi).
|
1882.
|
Trichomonas melolonthae Grassi.
In: Atti Soc. ital. Sci. nat. Vol. 24. p. 172.
Künstler, Compt. rend. Vol. 95. p. 347.
|
|
1884.
|
Polymastix Bütschli. In:
Bronn, Klass. u. Ordn. 67. Protozoa. p. 843.
|
Der Körper ist oval, nach hinten zugespitzt oder besitzt 2 oder 3 zugespitzte Lappen. Das Vorderende ist abgerundet und mit 4 oder 6 ansehnlichen und gleich langen Geißeln versehen.
Die Oberfläche ist mit einer Anzahl Rippen versehen (?). Es ist ungewiß, ob eine Anzahl von strichförmigen Gebilden von verschiedener Anordnung am Körper weitere Geißeln darstellen.
Die Mundöffnung soll dicht hinter der Geißelbasis liegen.
Das Plasma ist hyalin und enthält eine Anzahl von Granulationen. Am vorderen Körperende liegt ein Kern; eine kontraktile Vakuole fehlt.
Die Größe des Flagellaten schwankt von 7–14 µ, seine Breite von 3–5 µ.
[S. 505]
Wahrscheinlich erfolgt die Vermehrung durch Querteilung.
Die Art ist noch sehr wenig genau untersucht und bedarf dringend der Nachuntersuchung.
Sie ist in Italien und Frankreich im Darm der Larve von Melolontha vulgaris gefunden worden, wo sie sehr häufig ist. Fast sämtliche untersuchte Exemplare waren damit behaftet.
III. Ordnung.
Euglenoidina Blochmann.
Meist etwas größere Formen mit starker Pellicula, welche oft gestreift oder sonstwie skulptiert ist, nicht amöboid, aber vielfach sehr metabolisch, nicht selten auch starr. Am Vorderende findet sich eine tief eingesenkte Grube, in deren Grund die Geißel entspringt; meist ist nur eine solche vorhanden, doch gibt es auch zweigeißelige Formen. Bei den tierisch sich ernährenden Formen findet sich am Vorderende, mit der Geißelgrube in Verbindung stehend, eine Mundöffnung. Charakteristisch ist das komplizierte Vakuolensystem, bestehend aus einem Reservoir, in welches einige bis viele kleine kontraktile Vakuolen einmünden (vgl. Fig. 80 S. 65). Am Vorderende ferner vielfach ein Stigma.
Grüne Chromatophoren vorhanden oder fehlend. In die Augen fallende Stoffwechselprodukte sind Paramylum und Fett (Oel).
Kern meist groß, fast stets mit großem zentralen Binnenkörper.
Agame Vermehrung durch Teilung, auch multiple Teilung kommt vor. Kopulation bei den typischen Formen bisher nicht beobachtet, vgl. jedoch unten Copromonas, bei welcher Isogamie bekannt ist.
Zahlreiche freilebende Süßwasserformen, auch Meeresbewohner, einige Parasiten.
Die Ordnung wird in drei Familien eingeteilt:
- 1. Euglenidae Stein emend. Klebs.
- 2. Astasiidae Bütschli.
- 3. Peranemidae Stein.
1. Familie: Euglenidae Stein em. Klebs.
Mittelgroße Formen von spindelförmiger Gestalt, oft abgeplattet oder bandförmig, Neigung zu spiraliger Drehung der Körperachse; vielfach rotierende Bewegung. Mundlos. 1–2 Geißeln entspringen am Vorderende in einer grubenartigen Vertiefung. Die Mehrzahl der Arten mit rotem Stigma. In der Regel sind grüne Chromatophoren vorhanden (vgl. jedoch p. 77). Ernährung holophytisch oder saprophytisch.
Die Teilung erfolgt im beweglichen oder ruhenden Zustand.
Von den zahlreichen Gattungen der Familie seien nur Euglena, Phacus und Eutreptia erwähnt.
Gattung: Euglena Ehrbg.
Spindelförmige bis lang-bandförmig gestreckte Formen, mit einer kräftigen Geißel. Der Körper von starker, oft spiral gestreifter Pellicula umhüllt, dennoch metabolisch, Chromatophoren von verschiedener [S. 506]Gestalt vorhanden. Teilung meist im abgekugelten Zustand, oft nach Ausscheidung einer Gallerthülle.
Zahlreiche Arten, unter denen besonders erwähnt seien: Euglena viridis Ehrbg. (vgl. Fig. 80, p. 65), E. sanguinea Ehrbg., E. acus Ehrbg., E. spirogyra Ehrbg., E. oxyuris Ehrbg. (Fig. 87, p. 74), Euglena deses Ehrbg. (Fig. 88, p. 75), Euglena gracilis Ehrbg. (Fig. 90, p. 76). Haswell hat neuerdings parasitische „Euglenidae“ aus einer australischen Mesostomide beschrieben. Dieselben haben „Mund“ und schlundartige Einsenkung am Vorderende, kontraktile Vakuolen mit Reservoir und rotes Stigma. Sie kommen in den Darmepithelzellen und in den Zelllücken vor (Zool. Anz. Vol. 31. 1907. p. 296).
Gattung: Phacus Nitzsch.
Aehnelt Euglena, doch sind die Arten abgeplattet, mit starker, spiralgestreifter Pellicula, nicht metabolisch. Grüne Chromatophoren vorhanden.
Phacus longicaudus Duj. (Fig. 86, p. 74). Süßwasser.
Gattung: Eutreptia Perty.
Stark metabolische Art, Gestalt spindelförmig, hinten zugespitzt. Mit 2 gleich langen Geißeln, Chromatophoren.
Eutreptia viridis Perty in Süß- und Salzwasser (Fig. 142, p. 143).
2. Familie: Astasiidae Bütschli.
In den meisten Eigenschaften den Eugleniden sehr nahestehend, doch farblos. Ernährung saprophytisch. Mit 1 oder 2 Geißeln.
Gattung: Astasia Duj.
Sehr metabolisch, meist spindelförmig, eingeißelig, Kern meist in der hinteren Hälfte des Körpers gelegen. Oberfläche meist längsgestreift.
3. Familie: Peranemidae Stein.
Formenreiche Familie, welche daher oft in Unterfamilien geteilt wird. Die Gestalt der Arten ist meist bilateral, viele Formen kriechen auf der Unterlage; sie besitzen eine spaltförmige Mundöffnung, von der sich oft ein von festen Strukturen gestützter Kanal tief in den Körper hineinzieht. Die Ernährung ist saprophytisch und oft tierisch durch Aufnahme geformter Nahrung.
Viele Formen kriechen mit der Mundseite (Bauchseite) nach unten auf der Unterlage.
Von den zahlreichen Gattungen seien folgende angeführt:
Gattung: Peranema Ehrbg.
Langgestreckte, spindelförmige Arten, vorn zugespitzt, mit sehr metabolischem Körper. Mit einer Geißel, welche in einer an der Bauchseite befindlichen Spalte entspringt. Dahinter Mundöffnung mit eigenartigem Staborgan. Pellicula spiralig gestreift. Kontraktile Vakuolen in der Mehrzahl vorhanden. Kern in der Mitte des Körpers, mit großem Binnenkörper. Bewegung kriechend.
Peranema trichophorum (Ehrbg.).
[S. 507]
Gattung: Entosiphon Stein.
Oval, abgeplattet, von starrer Körpergestalt. 2 Geißeln vorhanden. Mundöffnung am Ende eines eigenartigen vorstülpbaren „Staborgans“, welches die ganze Körperlänge durchzieht.
Entosiphon sulcatum (Duj.) (Fig. 444).
Gattung: Copromonas Dobell.
Mit einigem Zweifel stellt Dobell die von ihm entdeckte Form zu den Peranemiden. Der Körper der einzigen Art Copromonas subtilis Dobell ist oval bis birnförmig, im Mittel 16 µ lang, Pellicula fest, Körper nicht metabolisch. Eine Geißel ragt am Vorderende aus einer Grube, welche sich in den Pharynx fortsetzt; eine kontraktile Vakuole mündet in das Reservoir. Am Grund der Geißel findet sich ein Basalkorn. Ernährung holozoisch (Bakterien, Kokken etc.). Die Vermehrung findet im beweglichen Zustand durch Längsteilung statt. Sehr regelmäßig ist Kopulation durch Isogamie zu beobachten. Zwei Individuen vereinigen sich, verschmelzen, ihre Kerne stoßen je zwei chromatische Klumpen aus und verschmelzen sodann zu einem Synkaryon. Die Zygote bildet eine Dauercyste.
Die Art findet sich ganz regelmäßig in Infusionen aus Frosch- und Krötenkot.
Eine ähnliche, etwas größere Form ist Copromonas major Berliner.
[S. 508]
IV. Ordnung.
Chromomonadina Klebs.
Die Chromomonadinen sind ziemlich kleine bis mittelgroße Flagellaten mit relativ zarter Pellicula; viele metabolisch oder etwas amöboid. Häufig sind Hüllbildungen und Gehäuse. Die Geißeln, welche am Vorderrande sitzen, in der Ein- oder Zweizahl. Bei der Mehrzahl der typischen Formen sind Chromatophoren vorhanden (1–2), welche grün, gelb oder gelbbraun gefärbt sind. Dementsprechend ist die Ernährung meist holophytisch, doch kommen auch Formen mit saprozoischer und holozoischer Ernährung vor. Koloniebildung nicht selten.
Wir teilen die Ordnung in zwei Unterordnungen:
- 1. Chrysomonadina Stein (em. Klebs).
- 2. Cryptomonadina Stein.
Wahrscheinlich in diese Ordnung einzureihen sind auch die Silicoflagellaten, sehr kleine, eingeißelige Formen mit durchbrochenem, gitterartigem Kieselpanzer und Chromatophoren, welche im Plankton des Meeres vorkommen. Sie sind noch wenig erforscht und wurden von manchen Autoren für Entwicklungsstadien von Radiolarien gehalten (vgl. z. B. die Gattung Distephanus, Fig. 446). Sie wurden hauptsächlich von Borgert untersucht.
1. Unterordnung.
Chrysomonadina Stein.
Flagellaten von verschiedener Form, mit dünner Pellicula, daher oft amöboid; häufig mit gallertiger oder chitiniger Hülle oder Gehäuse. Stets mit 1–6 gelbbraunen Chromatophoren, nicht selten mit rotem Stigma. 1–2 Geißeln am Vorderende. Kern bläschenförmig. Eine oder mehrere kontraktile Vakuolen vorhanden.
Trotz des Vorhandenseins der Chromatophoren kommt tierische Ernährung durch Aufnahme geformter Nahrung vor. Als Stoffwechselprodukt tritt neben fettem Oel Leukosin auf (vgl. S. 99).
Die Teilung ist Längsteilung. Geschlechtliche Prozesse sind unbekannt. Koloniebildung häufig, wodurch manchmal große makroskopische Stöcke, manchmal von algenähnlichem Habitus, zustande kommen. Dauercysten (bei einigen Formen mit skulptierten, auch mit verkieselten Hüllen) kommen vor.
Von den zahlreichen Gattungen der von Senn in die 3 Familien:
- 1. Chromulinidae,
- 2. Hymenomonadidae,
- 3. Ochromonadidae,
zerlegten Unterordnung seien nur erwähnt:
[S. 510]
Chrysamoeba Klebs (radians Klebs [Fig. 447, 1 u. 2]), eine durch ihre Gestaltveränderlichkeit interessante Form. Im freibeweglichen Zustand bald eiförmig, bald sternförmig durch Ausstreckung zahlreicher feiner Pseudopodien. Mit 2 gelbbraunen, schüsselförmigen Chromatophoren. Trotzdem Aufnahme fester Nahrung durch die Pseudopodien. Süßwasser.
Chromulina Cienkowski (Fig. 447, 6–13), mit zahlreichen Arten, mit nur metabolischem Körper. Chromulina Woroniniana, Rosanoffii und andere Formen schwimmen in eigenartiger Weise auf der Wasseroberfläche, und da die betreffenden Stadien unbenetzbar sind, erscheinen sie wie ein gelber Staub auf dem Wasser (Fig. 447, 11–13). Süßwasser.
Hydrurus Agardh, welcher vollkommen algenartig verzweigte Pflänzchen mit seinen Kolonien bildet. Am Grund rasch fließender Gewässer auf Steinen etc.
Chrysococcus Klebs (Fig. 447, 3–5), einzellebende Formen mit sehr starker kugeliger Schale, welche mit Eisenoxydhydrat gefärbt ist, mit weitem Geißelporus. Süßwasserteiche.
Hier schließen sich auch die Coccolithophorinen an, die Erzeuger der eigenartigen Coccolithen, welche im Plankton der Meere ungeheuer massenhaft vorkommen müssen, wie Lohmann gezeigt hat. Die aus kohlensaurem Kalk bestehenden Coccolithen bilden die eigenartigen Schalen dieser Organismen (Fig. 449), welche absterbend in Mengen auf den Boden des Meeres niedersinken, wo sie im Schlamm [S. 511]sich abgelagert finden; ihr Vorkommen in sedimentären Gesteinen zeigt, daß sie auch in früheren Zeiten sehr reichlich vorhanden gewesen sein müssen.
Chrysosphaerella Lauterb. (Chr. longispina Lauterb.) ist eine planktonische Chrysomonadine, eine kuglige Kolonie von Flagellaten mit je 2 Chromatophoren und je 2 Stigmen. Die Kolonie ist mit zahlreichen Schwebstacheln versehen (je 2 hohlen Kieselnadeln mit becherartiger Basis auf jedem Individuum) und ist im gemeinsamen Gallertmantel von zahlreichen hakenförmigen Kieselnädelchen erfüllt (Fig. 448). Süßwasser.
Dinobryon Ehrbg. (Fig. 450) umfaßt Formen mit Gehäusebildung. Der Körper ist länglich, hinten spitz auslaufend, das Hinterende im Grund eines becherförmigen Gehäuses mit weiter Oeffnung befestigt; aus dieser ragen die 2 ungleich langen Geißeln hervor. 2 Chromatophoren, ein Stigma vorhanden. Die Teilung findet im Gehäuse statt, in dessen Mündung auch die kieselhäutigen Dauercysten liegen. Freischwimmend in Süßwasserseen und Tümpeln.
2. Unterordnung.
Cryptomonadina Stein.
Keine Formen mit zarter Pellicula, nicht amöboid und schwach metabolisch; abgeplattet-eiförmig. vorn schief ausgebuchtet, mit 2 gleich langen Geißeln, welche am Eingang einer schlundartigen Vertiefung entspringen. 1–2 kontraktile Vakuolen im vorderen Teil. Farblos oder mit Chromatophoren von gelbbrauner bis oliven- oder blaugrüner Farbe. Kern im hinteren Teil des Körpers.
Längsteilung und Dauercystenbildung bekannt, dagegen keine geschlechtlichen Vorgänge.
Ernährung holophytisch oder saprozoisch. Geformte Nahrung wird durch den Schlund wohl nicht aufgenommen. Stoffwechselprodukt bemerkenswerterweise Stärke.
Von den nicht zahlreichen Gattungen erwähne ich: Chilomonas Ehrbg. (Ch. paramaecium Ehrbg.; vgl. Fig. 40 A, S. 36). Eiförmig, vorn schief abgestutzt, Schlund deutlich. Farblos, im Plasma jedoch viele Stärkekörner, denen Leukoplasten anliegen (vgl. S. 77). Länge bis zu 40 µ. Kern bläschenförmig mit zentralem Binnenkörper. Längsteilung in beweglichem Zustand. Dauercysten kuglig.
Die Art ist weit verbreitet in Sumpfwasser, besonders massenhaft, wenn es fault, und in Infusionen.
Cryptomonas Ehrbg. Diese Gattung verdient unser besonderes Interesse, da sie nicht nur freilebende, sondern auch parasitische resp. symbiotische Formen enthält (vgl. S. 77 ff.). Im Bau sehr ähnlich [S. 512]Chilomonas, doch sind 2 schalenförmige grüne, gelbe oder braune Chromatophoren vorhanden. Im Innern zahlreiche Stärkekörner. Im Vorderende 2 kontraktile Vakuolen. Kern bläschenförmig, im hinteren Drittel des Körpers gelegen.
Längsteilung in freiem Zustand oder innerhalb von Gallerthüllen. Im letzteren Fall entstehen oft kolonieartige Gallertmassen. Die Dauercysten besitzen eine derbe Cellulosemembran.
Ernährung holophytisch oder saprophytisch; oder die Tiere leben symbiotisch in Rhizopoden (Radiolarien, Foraminiferen), Ciliaten, höheren Tieren.
So z. B. Cryptomonas erosa Ehrbg. freilebend im Süßwasser, Cryptomonas Brandti Schaud. in dem Rhizopoden Trichosphaerium Sieboldi, Cryptomonas Schaudinni Winter (Fig. 92, S. 78) bei dem Foraminifer Peneroplis pertusus.
Wahrscheinlich sind zahlreiche, wenn nicht alle sog. Zooxanthellen hierher zu rechnen. Vgl. S. 77 und 78. Süßwasser und marin.
V. Ordnung.
Phytomonadina Blochmann.
Diese Ordnung, aus vorwiegend mit grünen Chromatophoren versehenen Arten zusammengesetzt, wird vielfach statt den Protozoen den Algen zugerechnet, indem sie in der Ordnung der Chlorophyceen in die Nähe der Protococcoideen eingereiht wird. Da sie aber außer dieser unleugbaren nahen Verwandtschaft zu den Algen ebenso deutliche Beziehungen zu den Protozoen besitzt, so ist es notwendig, sie an dieser Stelle zu behandeln. Und das ist um so notwendiger, als das Studium der Phytomonadinen viele wichtige Tatsachen enthüllt hat, welche das Verständnis der Morphologie, Physiologie und der Fortpflanzungsverhältnisse bei den anderen Flagellaten ganz bedeutend erleichtern, und welche im allgemeinen Teil vielfach Erwähnung fanden.
Die Einzelindividuen der Phytomonadinen sind klein, ihre Form oval, rundlich, abgeplattet etc.; sie sind formbeständig, nicht metabolisch. Der Körper ist von einer dünneren oder dickeren Cellulosemembran umschlossen, welche manchmal vom Plasma absteht, und welche nur bei den Polyblephariden fehlt. Am Vorderende, meist durch einen Porus aus der Membran hervortretend, sind bei den typischen Formen 2 Geißeln vorhanden (selten 4–8). Rote Stigmen kommen vielfach vor. Die meisten Formen besitzen ein relativ großes, einen großen Teil des Körpers erfüllendes, vielfach becherförmiges, grasgrünes Chromatophor. Ernährung dementsprechend holophytisch. Aufnahme geformter Nahrung bei keiner Art nachgewiesen. Selten sind farblose saprozoische Formen. Als Stoffwechselprodukt tritt überall Stärke auf. Hämatochrom (Karotin), welches die Formen rot färbt, kommt bei manchen Arten vor (vgl. S. 74).
Die Teilung ist Längsteilung, innerhalb der Hülle, welche beim Ausschwärmen der Sprößlinge leer zurückbleibt.
Koloniebildung, welche zur Bildung freischwimmender Kolonialindividuen führt (vgl. S. 248), ist sehr verbreitet und gipfelt in der [S. 513]Entstehung so hoch individualisierter Zellstöcke, daß mit Recht die Volvociden als Bindeglieder zwischen einzelligen und vielzelligen Organismen betrachtet werden.
Geschlechtliche Vorgänge sind allgemein verbreitet, und zwar treten alle Formen der Iso- und Anisogamie bei der Kopulation auf, wie dies im III. Kapitel S. 173 etc. schon des näheren ausgeführt worden ist.
Wir teilen die Phytomonadinen in folgende Familien:
- 1. Polyblepharididae Dangeard,
- 2. Chlamydomonadidae Bütschli,
- 3. Volvocidae Ehrenberg.
1. Familie: Polyblepharididae Blochmann.
Diese Familie ist als niederste Gruppe der Phytomonadinen durch den Mangel einer Cellulosemembran und die Metabolie des Körpers charakterisiert. Sie vermittelt also den Uebergang zu den übrigen Flagellaten. Die hierher gehörigen Formen besitzen 4–8 Geißeln, ein mehr oder weniger becherförmiges Chromatophor mit Pyrenoid, ein rotes Stigma, 1–2 kontraktile Vakuolen, bläschenförmigen Kern mit zentralem Binnenkörper.
Vermehrung durch Längsteilung ist bekannt; ebenso Dauercystenbildung, doch keine geschlechtlichen Vorgänge.
Süßwasserformen.
Pyramimonas tetrarhynchus Schm. Vorn verbreiterte, pyramidenförmige Art mit 4 langen Geißeln am Vorderende (Fig. 452). Am Vorderende 4 stumpf-flügelartige Fortsätze. Das becherförmige Chromatophor gelappt, je 2 Lappen in jedem der 4 Körperfortsätze. Pyrenoid im hinteren Teil des Chromatophors. In der Nähe das Stigma. Bei der Längsteilung erhält jedes der Tochtertiere 2 Geißeln, die beiden anderen werden neugebildet.
[S. 514]
2. Familie: Chlamydomonadidae Bütschli.
Kleine, nicht koloniebildende Formen, mit Cellulosemembran[32], nicht metabolisch. Form oval, kuglig, langgestreckt etc. Fast alle Gattungen mit grünem Chromatophor. Pyrenoide kommen oft in der Mehrzahl vor. 2–4 Geißeln am Vorderende. 1–2 kontraktile Vakuolen nahe der Geißelbasis. Ein rotes Stigma meist vorhanden.
Vermehrung durch Längs- und scheinbare Querteilung innerhalb der Cellulosemembran, freischwimmend oder in Ruhezuständen; dabei Zerfall in 2–8 und mehr Individuen. Bei der Teilung im Ruhezustand erinnern die Chlamydomonadinen an Palmellen. Sie können dann auch in Gallertmassen in großer Anzahl vereinigt sein.
Bildung von Dauercysten kommt vor (nach Verlassen der Cellulosemembran).
Befruchtung wird durch Kopulation von Iso- und Anisogameten bewirkt.
Ernährung meist holophytisch; einige Formen auch saprozoisch.
Folgende Formen sind hervorzuheben:
1) mit vier Geißeln:
Carteria Diesing (C. cordiformis [Cart.]). Annähernd kuglige Form mit 4 Geißeln am Vorderende, mit grünem Chromatophor, welches den größten Teil des Körpers erfüllt; mit rotem Stigma; kugliges Pyrenoid vorhanden. Kern und kontraktile Vakuole im Vorderteil des Körpers. Länge des Körpers ca. 20 µ. Eine sehr ähnliche, vielleicht zur Gattung gehörige Form wurde von Keeble [S. 515]und Gamble als Symbiont und Erreger der grünen Farbe des acölen Turbellars Convoluta roscoffensis nachgewiesen (Quart. Journ. Micr. Sci. Vol. 51. 1907. S. 167).
2) mit zwei Geißeln:
Chlamydomonas Ehrenberg (Ch. pulvisculus Ehrbg., Ch. monadina St., Ch. Steinii Gor. [Fig. 180, S. 174], Ch. Ehrenbergii Gor. [Fig. 182, S. 175]. Ch. Braunii Gor. [Fig. 189, S. 180], Ch. angulosa Dill. [Fig. 453, 1–4], Ch. longistigma Dill [Fig. 453, 5–8]). Kuglige bis länglich-ovale, oft abgeflachte Formen mit zarter Membran, zweigeißlig. Membran vielfach am vorderen Ende kegelförmig erhoben. Größe der Arten 10–30 µ. Großes grünes Chromatophor stets vorhanden; in demselben Pyrenoide von verschiedener Gestalt. Rotes [S. 516]Stigma meist vorhanden. Die agame Vermehrung erfolgt im ruhenden Zustand durch Teilung innerhalb der Zellmembran (in 2–8 Sprößlinge; Fig. 453). Iso- und anisogame Kopulation mit nachfolgender Dauercystenbildung der Zygote (Fig. 180, S. 174, Fig. 182, S. 175, Fig. 189, S. 180). Chlamydomonaden verursachen durch ihr massenhaftes Auftreten nicht selten Grünfärbung von Wasserlachen und Tümpeln. Süßwasser. Chlamydomonas nivalis (früher in der Regel als Haematococcus nivalis bezeichnet) kommt auf dem Schnee der polaren und alpinen Gegenden vor und verursacht dort das Phänomen des roten Schnees oder Blutschnees. Diese Art ist infolge der Stickstoff- und Phosphorarmut ihres natürlichen Nährmediums stets durch Haematochrom (vgl. S. 74) stark rot gefärbt.
Polytoma Ehrenberg (P. uvella Ehrbg.). Im Grund genommen eine saprozoische, chromatophorenlose Chlamydomonas. Elliptisch, mit zarter Membran, Stigma, wenn vorhanden, blaßrot gefärbt. Körperlänge ca. 25 µ. Zahlreiche Stärkekörner im hinteren Teil des Körpers trotz saprozoischer Ernährung. Vermehrung ähnlich wie bei Chlamydomonas, jedoch Teilung im freischwimmenden Zustand (Fig. 453). Häufig in Infusionen und fauligem Sumpfwasser.
Chlorogonium Ehrenberg (Ch. euchlorum Ehrbg.). Spindelförmig langgestreckt (120 µ lang), mit grünem Chromatophor und rotem Stigma. Kern in der Mitte des Körpers. Zahlreiche kontraktile Vakuolen. Agame Vermehrung durch Zwei- und Mehrfachteilung. Anisogame Kopulation. (Vgl. Fig. 455.) Süßwasser.
Haematococcus Agardh (H. pluvialis A. Braun, Fig. 457, H. Bütschlii Blochm., Fig. 456). Die zarte Membran steht von dem Plasmaleib weit ab, beide sind manchmal durch pseudopodienartige Fortsätze verbunden (Fig. 456). Der vordere langgestreckte Fortsatz an seiner Befestigungsstelle manchmal mit röhrenartigen Bildungen verbunden, von denen auch die Geißeln ausgehen. Mit grünem Chromatophor, Stigma seitlich sitzend, Pyrenoide vorhanden. Mehrere kontraktile Vakuolen. Isogame Teilung in ruhendem oder beweglichem Zustand. Isogamie. H. pluvialis färbt oft Tümpel und Regenlachen [S. 517]stark grün oder rot. Die Dauercysten sind durch Hämatochrom lebhaft rot gefärbt.
Mesostigma Lauterborn (M. viride Laut, Fig. 459). Chlamydomonas-ähnliche Form mit fein punktierter Membran, bandförmigem Chromatophor, zentral gelegenem Stigma und von der Mitte der Bauchseite entspringenden 2 Geißeln.
3) Hülle schalenartig aus zwei Teilen zusammengesetzt:
Phacotus Perty (Ph. lenticularis Ehrbg., Fig. 460). Die festen, skulpturierten, leicht in zwei Klappen zerfallenden Zellmembranen [S. 518]dieser Gattung veranlassen manche Forscher, für sie eine besondere Familie aufzustellen. Form flachgedrückt, linsenförmig; der Plasmakörper füllt das Innere der Membran nicht vollkommen aus. Die beiden Geißeln entspringen am Vorderende durch einen Kanal. Chromatophoren grün, Stigma vorhanden. Agame Teilung wie bei Chlamydomonas. Nach der Teilung weichen die Membranklappen auseinander, aber die Tochtertiere bleiben noch in einer Gallertmasse vereinigt, bis ihre Membran vollkommen entwickelt ist. Anisogamie der sehr großen Makrogameten mit sehr kleinen Mikrogameten (vgl. S. 181).
3. Familie: Volvocidae Ehrenberg.
Innerhalb dieser Familie sehen wir den bedeutsamen Schritt von der Zellkolonie zum individualisierten Zellstock realisiert; die Volvociden zeigen uns, wie der Uebergang vom einzelligen zum vielzelligen Organismus vor sich gehen kann. Die einzelnen Zellen der Volvociden sind durchaus analog den Chlamydomonadinen gebaut. Sie besitzen 2 (nur bei Spondylomorum 4) gleich lange Geißeln, grüne Chromatophoren, Stigma, Cellulosemembran, nicht metabolische Körperform, kontraktile Vakuolen.
Die agame Vermehrung findet durch Teilung der einzelnen Zelle innerhalb der Membran statt, wobei meist eine junge Kolonie sogleich entsteht. Dauercysten kommen vor.
Die Befruchtung findet durch iso- und anisogame Kopulation von ausschwärmenden geißeltragenden Gameten bei den niederen Formen statt und spezialisiert sich bei den höheren Formen bis zur Oogamie, der Kopulation eines spermatozoonartigen Mikrogameten mit einem eiartigen Makrogameten. Das ist auf S. 184 ff. ausführlicher dargestellt.
Die Volvociden sind alle holophytische Süßwasserbewohner.
Spondylomorum Ehrenberg (Sp. quaternarium Ehrenbg., Fig. 254, S. 249). Diese Gattung bildet den Uebergang von den Chlamydomonadinen, indem sie lose zusammenhängende hüllenlose 50 µ lange Kolonien von je 16 Individuen bildet, deren jedes in seinem Bau Carteria sehr nahesteht und 4 Geißeln, Chromatophor, Stigma etc. besitzt. Die Individuen sind in vier Kränzen derart angeordnet, daß ihre spitzen Enden nach hinten ragen, wobei sie sich alternierend ineinander fügen. Bei der agamen Vermehrung zerfallen gleichzeitig alle 16 Zellen in je eine neue 16-zellige Kolonie. Geschlechtliche Vorgänge unbekannt.
Gonium O. F. Müller (G. pectorale Ehrbg., Fig. 253, S. 248; G. sociale Cohn, Fig. 222, S. 221). Tafelförmige Kolonien aus 4 oder 16 Individuen, deren Geißeln nach einer Seite gewandt sind, und welche in eine gemeinsame, sehr durchsichtige Gallerthülle eingeschlossen sind. Chromatophor, Pyrenoid, Stigma vorhanden. Bei dieser relativ häufigen Form sind auch Dauercysten bei den einzelnen Individuen der Kolonie beobachtet worden. Isogamie. Die Dauercyste der Zygote ist rot gefärbt.
Stephanosphaera Cohn (St. pluvialis Cohn, Fig. 461). Kuglige Kolonien von ca. 60 µ Durchmesser, aus 8 Individuen zusammengesetzt, welche, parallel gestellt, einen Ring bilden und ihre beiden Geißeln so hervorstrecken, daß sie in einem dem Aequator parallelen, dem einen Pol der Kugel genäherten Kreis stehen. Chromatophor, [S. 519]Stigma, 2–5 Pyrenoide vorhanden. Die Individuen erinnern durch ihre verzweigten Fortsätze an Zellen von Haematococcus. Kopulation isogam. Seltene Form.
Stephanoon Schewiakoff (St. Askenasii Schew.). Kolonien von 16 Individuen, welche im Aequator eines abgeplatteten Rotationsellipsoids in zwei Reihen alternierend angeordnet sind. Großer Durchmesser der Kolonie 78 µ. Australien, Melbourne (Zit. nach Blochmann).
Pandorina Ehrenberg (P. morum Ehrbg., Fig. 195, S. 185). Kuglige Kolonien von 16, selten 32 fast herzförmigen Individuen, welche im Zentrum der Kugel zusammenstoßen und von einer oft geschichteten Hülle umschlossen sind. Eine Kolonie hat einen Durchmesser von 60 bis 70 µ. Anisogamie unvollkommen ausgebildet, Dauercyste der Zygote rot. Häufige Form.
Platydorina Kofoid (Platydorina caudata Kof., Fig. 255, S. 249). Die Kolonien bilden Täfelchen von individualisierter Form (vgl. Fig. 255, 1 u. 2) mit gebogener Vorder- und in Spitzen ausgezogener Hinterkante. Eine schraubige Drehung bewirkt bei der Bewegung Rotation. Die 32 Individuen sind in einer Schicht so angeordnet, daß abwechselnd je eines seine Geißeln zu der einen Tafelseite wendet. Jede Seite hat also 16 × 2 = 32 Geißeln. Illinois River, Nordamerika.
Eudorina Ehrenberg (Eudorina elegans Ehrbg., Fig. 196, S. 186). Die bis 150 µ im Durchmesser erreichenden kugligen Kolonien dieser Gattung bestehen aus 32 (selten 16) kugligen Individuen von je 18–24 µ Durchmesser. Die Einzelindividuen reichen nicht bis zum Zentrum der Kolonie, sondern sind in regelmäßigen Abständen in einer Schicht an der Innenseite der gallertigen Kolonialhülle verteilt. Die Befruchtung ist anisogame Kopulation, welche sich schon [S. 520]sehr der Oogamie nähert. Kolonien rein männlich oder rein weiblich. Die grünen Makrogameten unterscheiden sich kaum von agamen Zellen; die Mikrogameten sind schmal, gelb gefärbt und entstehen in Bündeln von 64 aus einem Individuum der Kolonie. Dauercyste der Zygote rot. Ziemlich häufig.
Pleodorina Shaw (Pl. illinoisensis, Fig. 256, S. 250) steht Eudorina sehr nahe. Doch ist stets die S. 250 erwähnte Differenzierung in 28 generative und 4 somatische Zellen vorhanden.
Volvox Linné (V. globator Ehrbg., Fig. 223, S. 222; V. aureus Ehrbg.). Die Kolonien dieser Gattung bilden hohle Kugeln; deren dünne Wand besteht aus sehr zahlreichen kleinen Individuen (12000 bis 22000), welche in eine gallertige Hülle gemeinsam eingeschlossen sind. Die gequollenen Membranen der Einzelindividuen sind polygonal abgeplattet. Die kleinen Individuen, welche die somatischen Zellen dieses primitiven Metazoons darstellen, sind nicht fortpflanzungsfähig. Sie besitzen 2 Geißeln, ein grünes Chromatophor mit einem Pyrenoid und einem roten Stigma, zentral gelegenen Kern und zwei kontraktile Vakuolen, und sind untereinander durch feinere oder gröbere Plasmastränge verbunden.
Die geschlechtliche wie ungeschlechtliche Fortpflanzung wird durch besondere Zellen vermittelt, welche fast ausschließlich im unteren Teil der Kugeln (Polarität!) auftreten (vielleicht da sich diese infolge ihres Gewichtes drehen?). Die „Parthenogonidien“, welche meist nur in der Zahl von 6–8 vorhanden sind, lassen durch Zellteilung kleine Kolonien entstehen. Die eiähnlichen Makrogameten machen Reifungsteilungen durch und werden durch die kleineren, zweigeißligen, gelben in Bündeln von 8–256 entstehenden Mikrogameten (Fig. 223, S. 222) befruchtet. Es können alle 3 Sorten von Fortpflanzungszellen bei einem Individuum vorkommen, doch kommen bei V. aureus Individuen vor, welche jeweils nur eine Form von Fortpflanzungszellen beherbergen.
Beide Arten häufig im Süßwasser.
II. Unterklasse:
Dinoflagellata.
(Bütschli).
Die Dinoflagellaten oder Peridineen (früher in irrtümlicher Deutung ihrer Organisation Cilioflagellaten genannt) sind eine scharf umschriebene Gruppe unter den Mastigophoren, welche im Meer und im Süßwasser durch zahlreiche Formen vertreten ist. Besonders charakteristisch für die Dinoflagellaten ist der Geißelapparat, die Panzerung des Körpers und bei den Oberflächenformen der Besitz von Chromatophoren.
Der Körper besitzt oft sehr bizarre Gestalt; bei den einzelnen Arten ist große Mannigfaltigkeit von Formen zu verzeichnen. Doch sind gewisse morphologische Grundzüge durch die Art der Begeißelung festgelegt. Es sind nämlich stets 2 Geißeln vorhanden, welche gemeinsam oft in der Mitte des Körpers entspringen, von denen bei den typischen Formen (Dinifera) die eine, die Längsgeißel, als Schleppgeißel nach hinten ragt, während die andere, die Quergeißel, gürtelförmig um den Körper herumgelegt ist. Bei den meisten Formen liegen die Geißeln in Furchen. Bei Erythropsis kommt ein tentakelartiges Flagellum vor.
[S. 521]
Die Quergeißel führt in der Querfurche wellenförmig schlagende Bewegungen aus; die herausragenden Schlingen täuschten den früheren Untersuchern einen Kranz von Cilien vor, wodurch sich der alte Name der Gruppe erklärt. Die Längsgeißel, welche nach hinten oft ziemlich lang frei hervorragt, führt peitschenförmige Bewegungen aus. Durch die Kombination der Bewegungen wird die schaukelnde, rotierende Vorwärtsbewegung der Dinoflagellaten erzeugt.
[S. 523]
Die Dinoflagellaten besitzen eine starre Körperform, was bei den meisten Arten durch einen aus bestimmten Platten geformten Cellulosepanzer[33] bedingt ist. Die Platten sind oft skulpturiert und mit eigenartigen Fortsätzen versehen. Die meisten Arten besitzen durch Lage und Verlauf der Querfurche und durch die Fortsätze eine eigenartige Asymmetrie.
Die Kerne sind meist massig gebaut, doch nähern sie sich vielfach dem bläschenförmigen Typus. Eine sehr regelmäßige Verteilung des Chromatins auf den Wabenreihen des Achromatins ist sehr charakteristisch (vgl. Fig. 150 A, S. 149). Die Dinoflagellaten sind einkernig. Der komplizierte Bau des Vakuolenapparates ist im allgemeinen Teil beschrieben (vgl. S. 66 und Fig. 82).
Die meisten Oberflächenformen enthalten eine größere Anzahl kleiner, oberflächlich liegender gelbbrauner, dunkelbrauner, grünlicher oder spangrüner Chromatophoren, welche in einer oberflächlichen Schicht angeordnet sind. Nur wenige Oberflächenformen, dagegen alle die zahlreichen Tiefseeformen sind farblos.
Die chromatophorenhaltigen Formen sind meist holophytisch; doch hat man bei ihnen wiederholt daneben noch Aufnahme geformter Nahrung (kleiner Organismen verschiedener Art) beobachtet, wobei manche Formen unter den Gymnodinien geradezu amöboid werden. Bei den chromatophorenhaltigen Formen findet man als Stoffwechselprodukt Stärke. Fett ist bei den Dinoflagellaten sehr verbreitet. Parasitismus kommt vor, aber selten (s. unten).
Bei manchen Formen kommt ein rotes Stigma vor, bei Erythropsis und Pouchetia ist ein merkwürdiges augenartiges Organ mit Linse und dunklem Pigmentballen (Melanosom) vorhanden (Fig. 128, S. 122).
[S. 524]
Die agame Vermehrung findet durch einfache und multiple Teilung in beweglichem oder ruhendem Zustand statt. Die Teilung ist im Prinzip eine Längsteilung, welche aber bei den meisten Formen unter dem Bild einer schiefen Teilung verläuft (vgl. Ceratium hirundinella (Fig. 464). Dabei erhält jedes der Tochtertiere nur die eine asymmetrische Hälfte der Panzerung und muß die andere neu bilden. Die Kernteilung von Ceratium hirundinella ist auf S. 149 und Fig. 150 dargestellt. Bei anderen Dinoflagellaten sind abweichende Teilungsbilder, zum Teil primitivere, zum Teil auch viel kompliziertere beschrieben worden (durch Jollos und Borgert). — Bei pelagischen Arten trennen sich oft die Individuen nach der Teilung nicht, so daß Ketten von Individuen entstehen (Fig. 466).
Manche Formen gehen Ruhezustände ein, während deren sie in Schleimhüllen eingeschlossen sind (Gymnodinium).
In anderen Fällen zerfällt innerhalb der Membran des Muttertiers das Plasma in zwei bis viele Tochtertiere, welche, nach Zerreißung der Membran des Muttertiers, mit neuen Panzern versehen, ins Freie gelangen, so bei Pyrophacus horologium.
Bei Pyrocystis lunula finden sich im Plankton große Cysten, deren Kern sich teilt (Fig. 467), worauf ein Zerfall in 16 Teilstücke erfolgt, deren jedes sich zu einer „gehörnten“ Cyste umwandelt; diese geraten durch die Zerreißung der großen Cyste ins Freie (Fig. 468) und ihr Inhalt zerfällt in 8 Teile, kleine Gymnodinien (Fig. 468 D). Wenn die Teilungen ganz oder teilweise unterbleiben, entstehen entsprechend größere Sprößlinge (Fig. 468 B u. C). Die kleinen Gymnodinien, deren normalerweise also 16 × 8 = 128 entstehen, sind nach Dogiel die Gameten. Sie sollen ausschwärmen, heranwachsen und später durch Kopulation die großen geißellosen Cysten (Fig. 467 A) liefern. Doch ist dieser geschlechtliche Teil des Zeugungskreises nicht bekannt. Mir scheint es wahrscheinlicher, daß der Zeugungskreis noch etwas komplizierter ist.
Bei Ceratium hirundinella ist durch Zederbauer ein anderer Teil des Zeugungskreises beobachtet worden, welcher sehr an die Konjugation der Desmidiaceen erinnert. Es verschmelzen die Plasmaschläuche zweier Individuen, nachdem sie sich vom Panzer zurückgezogen haben. Die Zygoten sind rundlich, und der Verfasser vermutet, daß aus ihnen die sog. Cysten entstehen (Fig. 469).
[S. 525]
Es ist ersichtlich, daß alle diese Verhältnisse eine genauere Erforschung dringend erfordern.
Die Dinoflagellaten des Meers wie des Süßwassers sind fast sämtlich planktonische Organismen. Dementsprechend sind sie mit Schwebstacheln, Fortsätzen, Verbreiterungen etc. versehen, was ihnen oft ein sehr bizarres Aussehen verleiht (vgl. Fig. 462 H).
Die marinen Arten besitzen vielfach die Fähigkeit des Leuchtens und tragen daher zu dem Phänomen des Meerleuchtens bei:
Wir teilen die Unterklasse in folgende Ordnungen ein:
I. Ordnung: Adinida Bergh.
II. „ Dinifera Bergh.
I. Ordnung.
Adinida Bergh.
Diese Ordnung wird auch vielfach unter dem Namen der Prorocentraceae angeführt. Die typischen Charaktere der Dinoflagellaten sind noch nicht ausgebildet, die Furchen fehlen. Die Ordnung besteht aus kleinen marinen Organismen von ei- bis stabähnlicher Form, deren Körper von einer aus zwei Stücken zusammengesetzten, von Poren durchsetzten Celluloseschale umschlossen ist. Die Schalenklappen passen wie zwei Uhrgläser aufeinander und lassen zwischen sich an einer Stelle ein Loch, die Geißelspalte, offen, aus welcher die zwei etwa gleich langen Geißeln hervortreten, von denen die eine bei der Bewegung stets vorausgeht, die andere sich an der Basis um sie herumschlingt. Gelbe Chromatophoren sind vorhanden.
[S. 526]
Vermehrung durch Zweiteilung ist bekannt, bei welcher je eine Tochterhälfte die eine Schalenklappe erhält und die andere zu ergänzen hat.
Gattungen:
Exuviaella Cienkowsky (E. marina Cienk., Fig. 470). Oval, Schalen porös. Chromatophoren gelb; aus zwei uhrglasförmigen größeren Platten oder zahlreichen kleinen Scheibchen bestehend. Marin. Kosmopolitisch.
Prorocentrum Ehrenberg (P. micans Ehrenbg., Fig. 471). Herz- bis lanzettförmig. An der Geißelbasis kleine Fortsätze an der Schale. Chromatophoren ebenfalls 2 große gelappte oder ungelappte oder mehrere kleine Platten.
Ebenfalls marin und kosmopolitisch.
II. Ordnung.
Dinifera Bergh.
Diese Ordnung umfaßt die typischen Dinoflagellaten, deren Organisation der oben gegebenen Diagnose entspricht; vor allem ist das Vorhandensein von einer oder mehreren Querfurchen hervorzuheben, welche die Querfurchengeißeln aufnehmen. Die Längsgeißel ist gewöhnlich nach hinten gerichtet.
Wir unterscheiden 3 Familien:
- 1) Gymnodinidae Bergh.
- 2) Peridinidae Bergh.
- 3) Dinophysidae Bergh. und Stein.
1. Familie: Gymnodinidae Bergh.
Die Gymnodiniden entbehren ebenfalls der komplizierten Panzerbildungen; dennoch entspricht die Morphologie ihres Körpers vollkommen den höheren Diniferen. Sie sind nackt oder von einer dünnen einheitlichen Cellulosemembran umhüllt. Die Quer- und Längsfurche mit den zugehörigen Geißeln sind vorhanden. Die Querfurche macht oft mehr als einen Umgang in Schraubenlinie.
Die Chromatophoren sind grüne oder gelbe Scheibchen; in manchen Arten fehlen sie. Die Fortpflanzungserscheinungen sind unvollkommen bekannt (vgl. oben). Von vielen Formen ist die Selbständigkeit als Art resp. die Zugehörigkeit zum Entwicklungszyklus einer anderen Form noch unsicher.
[S. 527]
Ich führe als Beispiele folgende Gattungen an:
Pyrocystis Murray (Fig. 467–468). Gymnodinium Stein (G. rhomboides Schütt, Fig. 472 1, 2, G. fuscum (Fig. 462 A), G. spirale Bergh, Fig. 472 3). Kuglige bis länglich gestreckte Formen, die Querfurche meist in der Mitte des Körpers. Chromatophoren grün, gelb oder braun, oft fehlend. Stigma klein oder fehlend.
In diese Gattungen werden einige Formen gerechnet, welche durch eine eigenartige Form des Parasitismus unser Interesse in hohem Grad verdienen. Es ist ein Zell- resp. Gewebeparasitismus, welcher sonst bei Protozoen nicht bekannt ist, welcher aber an den von Chytridiaceen und anderen Organismen erinnert. Pouchet hat ein Gymnodinium pulvisculus beschrieben, welches auf Appendicularien, Salpen, Siphonophoren und anderen pelagischen Organismen schmarotzt. Auf diesen findet es sich in Form eines kurzgestielten birnförmigen Körperchens, welches von einer Länge von ca. 20 µ allmählich bis zu einer solchen von 180 µ heranwächst. Dann löst sich das Gebilde von seiner Unterlage los und treibt frei im Plankton. Der Inhalt der Cyste furcht sich ab, und in 24 Stunden ist eine Unmenge kleiner, 11 µ im Durchmesser besitzender Gymnodinien entstanden. Vielleicht sind dies Gameten, welche nach der Kopulation sich festsetzen. Dogiel hat Formen beschrieben, welche sich in vielen Beziehungen dem Gymnodinium pulvisculus anschließen, so daß man den früher viel bezweifelten Angaben von Pouchet wohl Glauben schenken darf. Sie leben auf Copepodeneiern im Meeresplankton und bilden ganz ähnliche Cysten, aus denen zahlreiche kleine Gymnodinien hervorgehen, welche vielleicht als Gameten zu deuten sind. Daß es sich um Parasiten handelt, geht [S. 528]aus der allmählichen Verzehrung der Eisubstanz hervor (vgl. G. parasiticum Dog., Fig. 473; G. roseum Dog., Fig. 474).
Von ganz besonderem Interesse sind die Formen, welche Chatton beschrieben hat, und welche er zur Gruppe der Blastodiniden zusammenfaßt. Es sind dies parasitische und epizoische Dinoflagellaten, welche ebenfalls pelagische Tiere befallen. Blastodinium Pruvoti Ch. kommt im Mitteldarm von pelagischen Copepoden aus der Familie der Calaniden vor, andere Formen bei anderen Copepoden und auf Appendicularien (Apodinium mycetoides). Diese Formen zeichnen sich [S. 529]dadurch aus, daß bei der Vermehrung zunächst Zweiteilung innerhalb der Membran erfolgt, worauf das eine Tochtertier sich in zahlreiche kleine gymnodinienartige Schwärmer aufteilt; das zweite Tochtertier teilt sich zunächst nicht, später aber ebenfalls in zwei Teile, von denen jeder in seinen Schicksalen der einen der ersten Teilzellen entspricht.
Ueber alle diese sehr interessanten Formen sind eingehende Untersuchungen sehr notwendig.
In dieser Gegend ist nach Senn auch die interessante Gattung Oxyrrhis Duj. mit der marinen Art O. marina Duj. einzureihen, welche früher meist zu den Cryptomonadinen gerechnet wurde.
Zu den Gymnodiniden werden auch die interessanten Gattungen Erythropsis Hertwig und Pouchetia Schütt gerechnet.
Eine besondere Unterfamilie Polydininae wurde für die eigenartige Gattung Polykrikos Bütschli aufgestellt, welche durch eine Art von Koloniebildung, Ketten unvollkommen getrennter 2, 4 oder 8 Individuen mit nur zwei gemeinsamen Kernen bildet (Fig. 476).
2. Familie: Peridinidae (Bergh).
In dieser Familie sind die typischen Panzerplatten ausgebildet, welche den Körper als starres Skelett einschließen. Eine besondere Panzerung umschließt ringförmig die Querfurche, durch welche der Panzer in eine obere und untere Hälfte geteilt wird, welche je aus 5 oder mehr Panzerplatten bestehen. Die wichtigsten Plattenbezeichnungen sind aus der Fig. 477, 1–5 zu entnehmen. Im allgemeinen sind die Ober- und Unterschale ziemlich gleich groß, so daß die Querfurche meist in der Mitte des Körpers liegt. Die Platten sind durch mannigfache Skulpturen geziert und oft mit langen, bizarren Fortsätzen versehen. Außerdem sind sie mit feinen Poren übersät. An der Durchtrittsstelle der Geißeln eine kreisförmige Oeffnung im Panzer.
Die Chromatophoren, zahlreiche kleine Plättchen, sind grün oder gelb; sie können auch fehlen, so besonders bei den Tiefseeformen.
Die Vermehrung erfolgt durch Zweiteilung, welche bei den marinen Formen manchmal unvollständig abläuft und zur Kolonienbildung führt. Multiple Teilung, innerhalb des Panzers, aus welchem dann mehrere Tochterindividuen ausschwärmen, wird für einige Arten angegeben. Nicht selten kommt sog. Häutung, d. h. Abwerfen des ganzen Panzers vor.
Das Wenige, was über geschlechtliche Vorgänge bekannt ist, findet sich oben (S. 525) angegeben.
Die Gattungen sind zum Teil im Süßwasser, meist im Meer an der Oberfläche und im Tiefseeplankton als pelagische Organismen verbreitet. Ich erwähne folgende:
Ceratium Schrank. (C. hirundinella, Fig. 464; C. tripos Nitzsch, Fig. 463 B; Ceratium reticulatum Pouchet subsp. spirale Kof., Fig. 462 H).
Formen mit hornartigen Körperfortsätzen von oft monströsen Dimensionen; mit fein strukturierten Panzerplatten. Chromatophoren bei Süßwasserformen grün, bei marinen Arten gelb oder braun. Kern groß.
Goniodoma Stein. (G. acuminatum Ehrenbg., Fig. 477). Formen von regelmäßigem Panzerbau, polyedrischer Gestalt, tiefer [S. 530]Querfurche. Oberschale ungefähr gleich groß wie die Unterschale. Chromatophoren kleine braune Plättchen. Marin.
Peridinium Ehrenbg. (P. divergens Ehrenbg., vgl. Fig. 82, 1, S. 66). Gestalt gedrungen, Oberschale oft pyramidenförmig ausgezogen, Unterschale in flügel- oder hornartige Fortsätze verlängert. Plasma bisweilen rosa. Chromatophoren, wenn vorhanden, grün. (Pusulen vgl. S. 66 und Fig. 82). Meer und Süßwasser.
Ceratocorys Stein (C. horrida Stein, Fig. 462 G) und Acanthodinium Kofoid (A. caryophyllum Kof., Fig. 462 F) sind hierhergehörige, bizarre Formen des marinen Planktons.
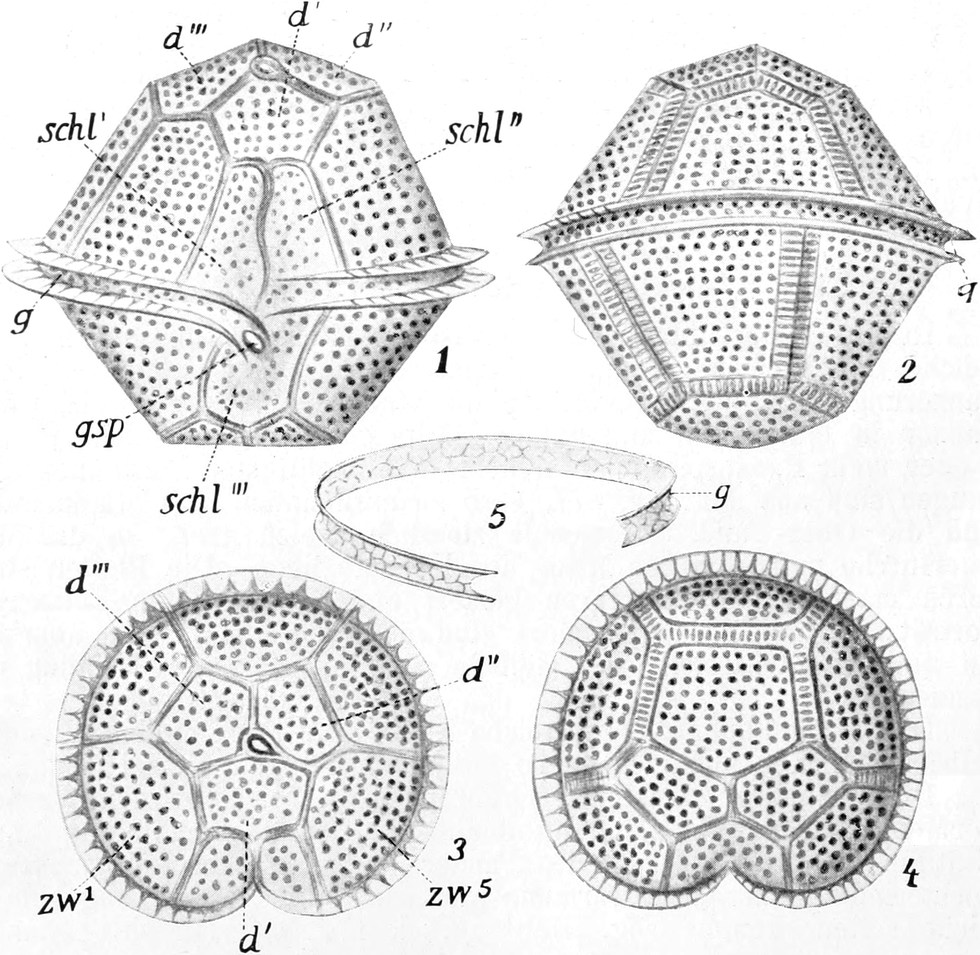
3. Familie: Dinophysidae Stein und Bergh.
Die Formen dieser Familie nähern sich in vielen Beziehungen sehr den Peridiniden; doch ist der Panzer durch eine Sagittalnaht in 2 fast gleiche Hälften zerlegt. Sonst fehlt die Zerlegung der Ober- und Unterhälfte der Schale in zahlreiche Platten, wie sie die Peridiniden auszeichnen. Querfurche weit oben am Körper, oft durch stark entwickelte Lamellen eingefaßt. Körperasymmetrie durch Ausbildung von mächtigen Flügeln oft sehr auffallend. Chromatophoren vielfach [S. 531]vorhanden, braun oder gelb. Phaeosomen, eigenartige braune Klumpen in der Region der Querfurche regelmäßig vorhanden.
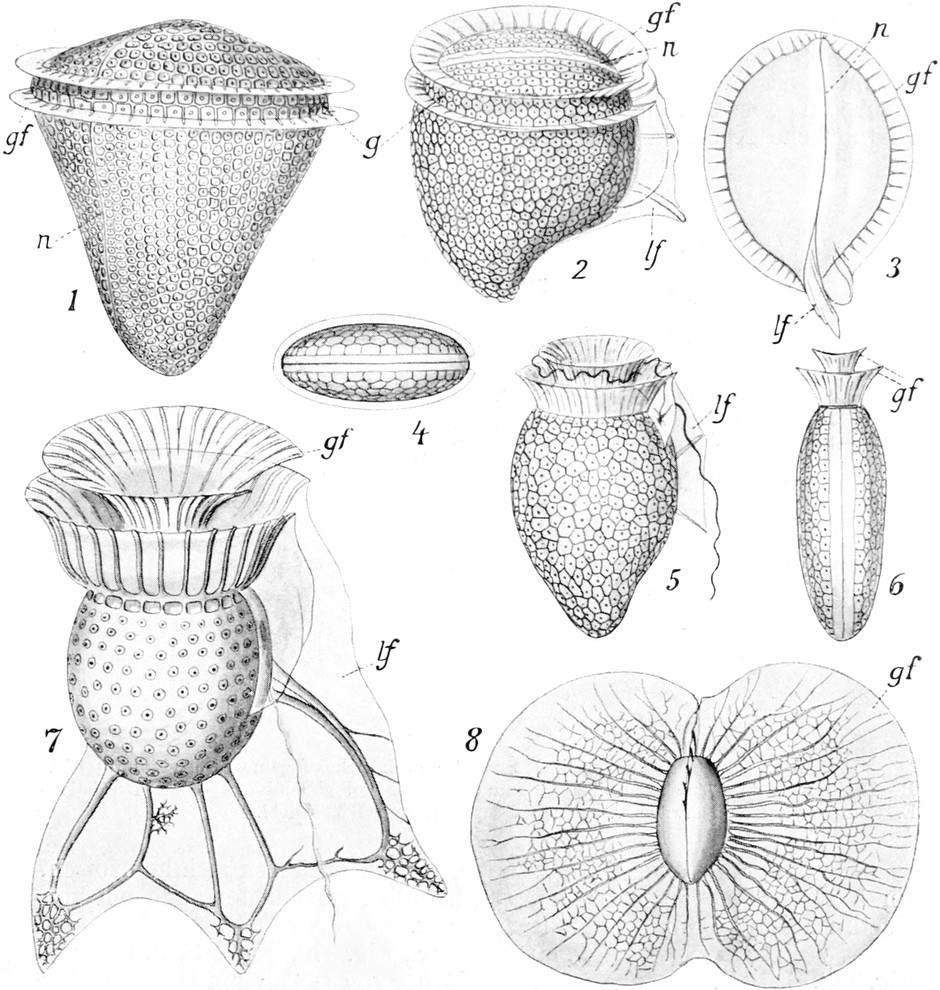
Die sehr bizarren Formen dieser Familie gehören fast ausschließlich dem Warmwassergebiet der Ozeane an. Ich erwähne von Gattungen die stabförmig dünne Amphisolenia Stein (A. clavipes Kof., Fig. 462 D; A. dolichocephalica Kof., Fig. 462 C; A. extensa Kof., Fig. 462 E), die kannenförmige Dinophysis Ehrenbg. (D. acuta Ehrenbg., Fig. 478, 4–6) und Phalacroma Stein (P. mitra Schütt, Fig. 478, 1–3), die antiken Helmen gleichenden Ornithocercus Stein (O. magnificus Stein, Fig. 478, 7–8).
[S. 532]
III. Unterklasse:
Cystoflagellata.
(Haeckel).
Die kleine Gruppe der Cystoflagellaten besteht aus wenigen Gattungen und Arten, welche vielleicht mit den Dinoflagellaten enger verwandt sind als die gegenwärtige Systematik erkennen läßt. Sie besteht aus Formen mit reichlicher Gallerteinlagerung in den von einer kräftigen Pellicula umschlossenen Körper. Ihr Fortbewegungsorganell ist eine in der Mitte des Körpers gelegene Geißel, bei mehreren der Formen dienen der Lokomotion aber hauptsächlich rhythmische Kontraktionen des Körpers.
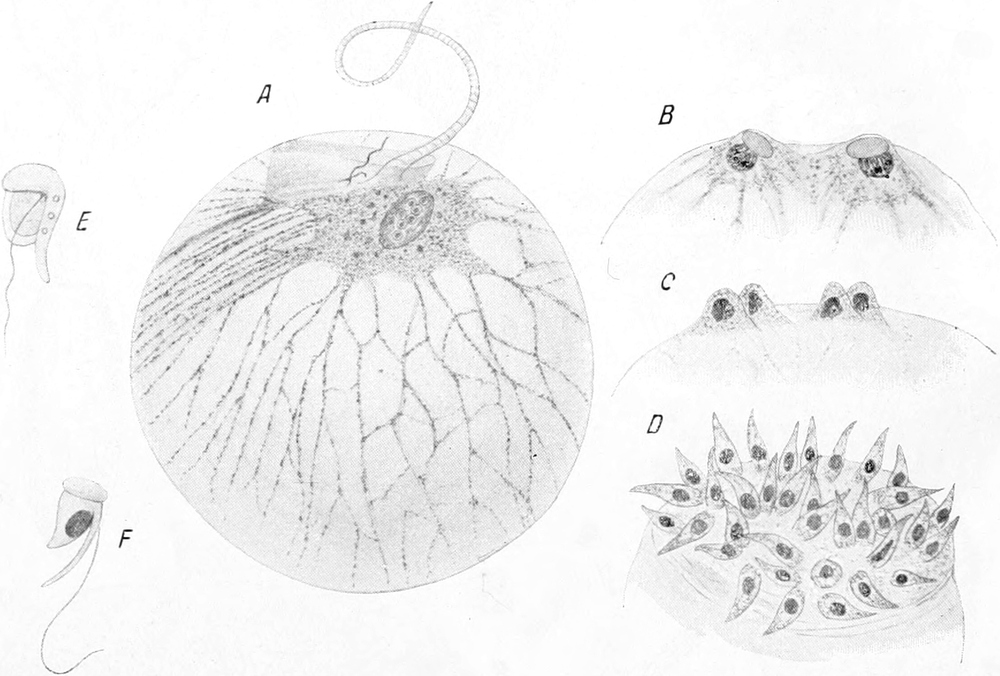
Sie sind alle ohne Chromatophoren und ernähren sich holozoisch. Im übrigen sind sie morphologisch ziemlich verschieden, und nur von Noctiluca ist die Fortpflanzung bekannt.
Noctiluca Suriray (N. miliaris Sur., Fig. 479, Fig. 123, S. 114 und Fig. 173, S. 165). Der kugelförmige Körper von 1–1,5 mm Durchmesser besteht zum großen Teil aus einer klaren gallertigen Substanz, welche von den Strängen des Protoplasmas umschlossen wird. Das letztere ist von der Pellicula nach außen abgegrenzt und ist an dem beim schwimmenden Tier nach oben gerichteten Pol zum Zentralplasma angesammelt, in welchem der bläschenförmige Kern eingelagert ist. Von dem Zentralplasma strahlen die Plasmastränge aus, welche zur Körperwand ziehen, sich in ihrem Verlauf aber verästeln und reichlich anastomosieren, so daß die Struktur des Zellleibs oft schaumig erscheint. In das Zentralplasma ist das Peristom eingesenkt, an dessen Grund die spaltförmige Mundöffnung sich befindet. Neben der Mundöffnung im Vorderende des Peristoms entspringt die sog. Bandgeißel, ein tentakelartiges [S. 533]Organ mit quergestreiftem Bau, welches langsam hin und her schwingt. Neben der Mundöffnung an der Peristomwand eigenartige Fortsätze: „Zahn“ und „Lippe“. Neben der letzteren die kleine Geißel, welche nur schwache Bewegungen ausführt. Sie dient wahrscheinlich nur der Nahrungsaufnahme. Noctiluca ist ein gefräßiges Tier, welches Protozoen, Diatomeen etc., selbst kleine Metazoen, Copepoden, Larven etc. frißt.
Die agame Vermehrung findet durch Längsteilung statt. Außerdem ist Schwärmerbildung bekannt. Von dieser ist es noch nicht untersucht, ob sie als agame multiple Vermehrung oder als Gametenbildung zu betrachten ist. Meist wird für Noctiluca Kopulation angegeben, bei welcher eine wechselseitige Kernbefruchtung stattfinden soll. Diese Annahme beruht auf irrtümlicher Deutung der Teilungsbilder. Doch scheint mir jetzt auch unsicher, ob die von mir beobachtete vollkommene Verschmelzung zweier Tiere und ihrer Kerne eine isogame Kopulation darstellt und nicht vielmehr Plasmogamie. Die bei der multiplen Schwärmerbildung entstehenden Individuen sind vielleicht eher die Gameten, wie Moroff vermutet. Sie entstehen durch sukzessive Teilungen in dem mit dem Zentralplasma zusammengezogenen Körperplasma, welches am oberen Pol des Tieres eine Scheibe bildet und in zahlreiche kleine Spitzen zerklüftet wird. Jede derselben ergibt einen der kleinen, einkernigen eingeißeligen Schwärmer, deren 256 bis 512 entstehen können. Diese lösen sich los und schwärmen in einer Gestalt, welche sehr an Dinoflagellaten erinnert, davon. Ihr weiteres Schicksal ist unbekannt.
N. miliaris ist in allen Meeren verbreitet. Sie kommt bisweilen in solchen Massen vor, daß bei Tag das Wasser eine rötliche Farbe durch sie bekommt, während es bei Nacht in der herrlichsten Phosphoreszenz erstrahlt (vgl. S. 113).
Leptodiscus R. Hertwig (Leptodiscus medusoides R. Hertwig, Fig. 480) erinnert in der Form und glashellen Durchsichtigkeit des Körpers vollkommen an eine kleine Meduse. Die Tiere sind 1–1,5 mm im Durchmesser. Der Körper gleicht einer kreisförmigen, schwach [S. 534]gewölbten Schale, an deren höchstem Punkt das Zentralplasma liegt, von dem ebenfalls Stränge ausgehen, welche ein viel dichteres Netz als bei Noctiluca erzeugen. Im Zentralplasma liegt der Kern. Der Mund liegt seitlich vom Zentralplasma, an der entgegengesetzten Seite erstreckt sich ein feiner Kanal, an dessen Ende die Geißel sitzt. Die Schwimmbewegungen der Tiere sind durch zarte, an der konkaven Seite des Körpers verlaufende Myoneme vermittelt und bestehen in rhythmischem Zusammenklappen des Körpers ähnlich wie bei den Medusen. Fortpflanzung unbekannt. Mittelmeer.
Noch ähnlicher einer Meduse ist Craspedotella pileolus Kofoid (Fig. 481) von der kalifornischen Küste, dessen Körper hochgewölbt ist und eine velumartige Lamelle besitzt.
Radiozoum lobatum wurde von Mingazzini im Mittelmeer gefunden und für ein Cystoflagellat gehalten, ist aber noch nicht genügend untersucht, um über die systematische Stellung ein definitives Urteil zu gestatten.
Anhang I. Trichonymphidae Leidy.
Nur um der Vollständigkeit willen führe ich diese in morphologischer Beziehung höchst interessante Abteilung hier an; denn sowohl ihre verwandtschaftlichen Beziehungen, als auch die Art ihres Parasitismus sind so wenig erforscht, daß wir keine allgemeingültigen Lehren daraus ziehen können. Manche Autoren sind geneigt, sie den Polymastiginen anzugliedern.
Während manche Trichonymphiden durch ihre langen, meist an einzelnen Stellen des Körpers lokalisierten Geißeln, wie auch durch den Mangel eines Nebenkerns, sehr an Flagellaten erinnern, erscheinen sie vielen Forschern durch die Menge der Geißeln zum mindesten als ein Uebergang zu den Ciliaten; das gilt besonders für die am ganzen Körper mit Geißeln bedeckten Formen. Durch die Neigung, dieselben im Alter zu verlieren, unterscheiden sie sich jedoch in auffallender Weise von beiden genannten Klassen der Protozoen. Wieder andere Autoren sind geneigt, sie den Gregarinen zu nähern, und es ist nicht zu leugnen, daß die Entdeckung von Gregarinen mit langen, fadenförmigen Körperfortsätzen (s. u.), sowie die sogleich zu erwähnenden Befunde Hartmanns dieser Meinung eine gewisse Berechtigung verleihen. Hartmann ist geneigt, für die Trichonymphiden eine besondere Klasse der Protozoen aufzustellen. Seine Befunde sind vorläufig zur Begründung dieser Ansicht nicht genügend, da ihr zudem die Angaben von Grassi, Foà und Janitzki nicht entsprechen. Doch ist es jedenfalls richtig, daß die Trichonymphiden eine in vieler Beziehung isolierte Stellung einnehmen.
Sie besitzen im allgemeinen einen ovalen oder spindelförmigen Körper, bei einer Größe, welche von 20–30 µ bis zu 160–200 µ zu fast 1 mm bei den verschiedenen Arten und Zuständen wechselt. Meist entspringt vom vorderen Ende ein dichtes Büschel von langen, schlaff beweglichen Geißeln, zu denen weitere Büschel an anderen Stellen des Körpers kommen können. Merkwürdig ist es, daß neben den vielgeißligen Formen solche mit wenig Geißeln vorkommen, was eventuell für die Ableitung der Trichonymphiden von Flagellaten sprechen könnte. Das Protoplasma scheidet sich mehr oder weniger [S. 535]deutlich in seine zwei Schichten, oft ist eine starke Membran vorhanden. Für die meisten Gattungen ist das Auftreten von stäbchenförmigen Bildungen in der Pellicula charakteristisch, welche in Größe und Anordnung sehr verschieden sein können.
Ein bläschenförmiger, runder Kern liegt bei vielen der untersuchten Arten in der vorderen Körperregion. Hartmann faßt diesen Kern als polyenergid auf und nimmt an, daß während des vegetativen Lebens die Karyosome in ihm sich vermehren. Er stellt den großen Kern der einkernigen Formen als gleichwertig den zahlreichen Kernen einiger vielkerniger Formen gegenüber.
Sehr merkwürdig sind verschiedene Zellorganisationsbestandteile, welche sich an den Kern anschließen. Es sind dies zunächst die basalen Teile der Geißeln, die Basalkörner. Außer solchen werden auch echte Blepharoplaste beschrieben. Diese und eventuell auch die Basalkörner stehen durch Fibrillen mit dem Kern in Verbindung. Ferner kann der Blepharoplast in fibrillärer Verbindung mit einer eigenartigen Struktur stehen, welche Janitzki als Parabasalkörper bezeichnet (früher von Grassi Collare genannt). Es ist dies eine in mancher Beziehung an Chromidien erinnernde Bildung, ein Strang färbbarer Substanz, welcher bei der Teilung auch verdoppelt und auf beide Tochtertiere verteilt wird. Janitzki ist geneigt, in diesem Parabasalkörper eine Art von Reservestoffvorrat zur Speisung des lokomotorischen Apparates der Zelle zu erblicken. Meist lehnt sich der Parabasalapparat in irgendeiner Weise an den Achsenstrang des Körpers an. Es ist dies eine formgebende Skelettstruktur, welche den Achsenfäden der Flagellaten verglichen werden muß. Doch ist er zusammengesetzt und bei den vielkernigen Formen läßt sich erkennen, daß zu jedem Kern ein Achsenfaden gehört, und diese alle konvergieren gegen die Längsachse der Zelle, wo sie sich zu einem Fibrillenbündel, dem Achsenstrang, vereinigen.
Bei den Trichonymphiden sind verschiedenartige Vermehrungsvorgänge beobachtet worden. Längsteilung im freien Zustand ist bekannt und z. B. bei Joenia durch Grassi und Foà genauer studiert worden. Dabei werden der Kern durch mitotische Teilung, der Blepharoplast und der Parabasalapparat geteilt, der letztere eventuell auch neugebildet; auch der Achsenstrang wird bei der Teilung neugebildet, indem er sich aus Centrodesmosen rekonstruiert. Es ist auch multiple Teilung beschrieben worden. Zweiteilung und multiple Vermehrung kommen wenigstens bei manchen Formen auch im enzystierten Zustand vor. Die Vermehrungsvorgänge sind sehr kompliziert und die Details noch unvollkommen verstanden.
Das gleiche gilt auch von den Vorgängen, welche man als Anzeichen von geschlechtlichen Phänomenen gedeutet hat. Die Trichonymphiden finden sich fast stets in ihren Wirten in großer Individuenzahl. Die vorhandenen Formen in einem Darmbrei gehören in der Regel zu verschiedenen Arten. Nun kommen aber auch Formen vor, welche sich untereinander so ähnlich sehen, daß man schwanken kann, ob man sie verschiedenen Arten zurechnen darf. Da sie manchmal hauptsächlich in der Größe differieren und kontinuierliche Reihen von Uebergängen darstellen, so liegt es am nächsten, sie als Entwicklungsstadien je einer Art aufzufassen; wir müssen ja auf alle [S. 536]Fälle annehmen, daß so kompliziert gebaute Organismen auch eine etappenreiche Entwicklungsgeschichte haben. Andere Formen aber scheinen nicht in solche Entwicklungsreihen zu gehören; über sie sind die Meinungen der Autoren geteilt, indem die einen sie für verschiedene Arten erklären, während andere (Hartmann) geneigt sind, in ihnen den Ausdruck einer Differenzierung von Geschlechtern zu erblicken. So ähneln sich im Darm der brasilianischen Termite Captotermes Hartmanni zwei Formen untereinander sehr, von denen die eine einen eigenartigen, vom Blepharoplast abzuleitenden Stützapparat der Cilien besitzt, während ein solcher der anderen Form fehlt. Es könnte sich also um den üblichen Gegensatz zwischen männlich und weiblich handeln. Solche Formenpaare werden auch bei anderen Termiten regelmäßig vergesellschaftet gefunden.
Nun hat Hartmann gefunden, daß die großen polyenergiden Kerne (vgl. hierzu S. 241) Chromatinelemente austreten lassen und daß aus diesen im Plasma des Trichonymphidenkörpers sich Sekundärkerne bilden. Diese werden nicht auf freie Kernbildung aus Chromidien (vgl. S. 239) zurückgeführt, sondern auf eine Art von Entladung der polyenergiden Primärkerne, in denen sie sich vorher [S. 537]angespeichert hatten. Eine große Anzahl von ihnen soll mit einem Teil des Körperplasmas als Restkörper (Soma) zugrunde gehen, während die anderen Plasmaportionen um sich sondern und zu Schwärmsprößlingen werden, die dann eventuell als Gameten kopulieren. Aus den Zygoten würden dann die Jugendstadien hervorgehen, die eventuell von Anfang an sexuell differenziert wären.
Dieser Entwicklungszyklus ist noch sehr hypothetisch, da weder die Ableitung der einzelnen Formen voneinander noch die Kopulation sichergestellt ist. Für ihn spricht das Auftreten der Sekundärkerne — doch könnten Parasiten solche vortäuschen; ferner das gemeinsame Vorkommen der eventuell sexuell differenten Formen — doch könnte es sich um differente Arten handeln; und endlich das ausschließliche Vorkommen der gametenähnlichen Stadien in schwärmenden Geschlechtstieren der Termiten — doch könnte auch dies durch Degeneration infolge von Nahrungsmangel (?) oder sonstige besondere Bedingungen erklärt werden.
Zur Klärung dieser ganzen Fragen müssen weitere Untersuchungen abgewartet werden.
Dauercystenbildung ist bei Lophomonaden, aber nicht bei Termitenparasiten beobachtet worden, deren spezielle Biologie vielleicht eine solche unnötig macht.
Die hierher gehörigen Formen ernähren sich von organischem, geformtem Material, welches sie im Darm ihrer Wirte vorfinden; die Termitenparasiten wohl zum Teil von Holzstückchen etc. Eine Mundöffnung ist nicht vorhanden, die Nahrung wird bei vielen Arten an beliebigen Stellen des Körpers meist an der Seite oder hinten aufgenommen, bei keiner Form ist eine Beziehung der oft komplizierten Apparate des Vorderendes zur Nahrungsaufnahme konstatiert worden. Kontraktile Vakuolen fehlen.
Sämtliche gut beschriebenen Formen stammen aus dem Enddarm von Orthopteren (Blattiden und Termitiden). Doch hat in neuerer Zeit Künstler einen verwandten Organismus im Enddarm von Limulus gefunden: möglicherweise sind sie bei Arthropoden noch weit verbreitet. Es ist zu erwarten, daß die zahlreichen Termitenarten der Tropen noch viele Formen enthalten; bisher sind meist solche aus Termiten der gemäßigten Regionen beschrieben worden (Italien, Nordamerika, Argentinien, Australien). Doch mehren sich neuerdings die Angaben über Trichonymphiden aus Brasilien, Ceylon etc.
Es ist noch nicht mit Sicherheit anzunehmen, daß die infolge ihrer biologischen und gewisser morphologischen Eigentümlichkeiten hier zusammengefaßten Formen wirklich eine natürliche Gruppe bilden. Jedenfalls sind einige Gruppen zu unterscheiden, als welche voneinander abzusondern wären etwa die Familien:
- Lophomonadidae.
- Trichonymphidae, eventuell
- Devescovinidae und
- Calonymphidae.
Doch müssen die definitiven Publikationen über die neu untersuchten Formen abgewartet werden, ehe an die Klassifikation herangetreten wird.
Ich führe nur einige Beispiele an:
[S. 538]
Gattung: Lophomonas Stein.
Lophomonas blattarum Stein.
|
1860.
|
Stein. In: Sitzungsber. K. böhm.
Gesellsch. d. Wiss. zu Prag. p. 44.
|
|
1878.
|
Bütschli, O. Beiträge zur
Kenntnis etc. In: Zeitschr. Wiss. Zool. Vol. 30. p. 259.
|
|
1908.
|
Janicki, C. Contribuzione alle
conosc. etc. In: Rendic. R. Accad. Lincei. Vol. 17. Ser. 5a. 2ᵒ sem. p. 141.
|
|
1910.
|
— Untersuchungen an parasitischen Flagellaten I. In:
Zeitschr. wiss. Zool. Vol. 95. p. 243.
|
Das Tier ist farblos, schwach metabolisch und von Gestalt kuglig bis beutelförmig, mit breit abgerundetem Hinterende. Am verschmälerten Vorderende entspringt aus einer etwas vertieften Fläche ein Busch von Geißeln, welche in der Mitte etwa so lang sind wie der Körper, nach außen hin kleiner werden (Fig. 483).
Hinter diesen liegt der rundliche, bläschenförmige Kern, umhüllt von einem Mantel dichteren Plasmas. Oft läßt sich im Körper eine stabartige Bildung erkennen. Eine kontraktile Vakuole wurde nicht beobachtet. — Die Größe des Tieres kann 30 µ betragen.
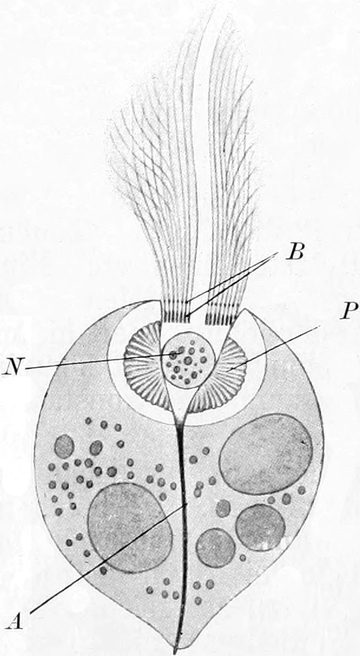
Das Plasma ist nur im hinteren Teil des Tieres sehr granuliert und mit zahlreichen Nahrungskörpern aus dem Darminhalt des Wirtes erfüllt: Stärkekörnern, Bakterien usw. Eine Mundöffnung ist allerdings noch nicht mit Sicherheit nachgewiesen: nach Janicki findet Nahrungsaufnahme an der ganzen Körperoberfläche mit Ausnahme des Vorderendes statt; vor allem an den Seitenflanken.
Sehr eigenartige Fortpflanzungsvorgänge sind beschrieben worden, Zweiteilung in freiem Zustand, sowie multiple Teilungen. Janicki hat zweikernige Dauercysten beobachtet, sowie Cysten, in denen Kernvermehrung bis zu 14 Kernen stattfindet. Ob es sich um agame oder Kopulationscysten handelt, ist noch unbekannt.
Die Art findet sich im Enddarm von Periplaneta orientalis, vielleicht auch von Gryllotalpa, ziemlich selten, aber dann in großer Individuenzahl. Europa.
Nahe steht die meist am gleichen Ort vorkommende L. striata Stein.
[S. 539]
Gattung: Joenia Grassi.
Joenia annectens Grassi.
|
1893.
|
Grassi und
Sandias. In: Costit. e Scil. Soc. Termitidi
Catania 1893.
|
|
1904.
|
Grassi und
Foà. Ricerche sulla riproduzione dei flagellati.
1. Processo di divisione delle Joenie e forme affini. In: Rendic. R. Accad.
Lincei. Vol. 13. Ser. 5a. 2º sem. p. 241.
|
Das Tier, farblos und nicht metabolisch, hat eine beutelförmige Gestalt. Das schwach verschmälerte Vorderende ist schief abgestutzt, während das Hinterende abgerundet ist. Am Vorderende können Pseudopodien ausgestreckt werden.
Der abgestutzte, schwach vertiefte Vorderrand trägt den Wimperbusch, welcher so lang ist, wie der Körper; der ganze Leib ist außerdem mit unbeweglichen kurzen Börstchen besetzt (Fig. 485).
Der rundliche Kern liegt dicht hinter dem Geißelfeld; er wird umfaßt von vorderen Fortsätzen eines merkwürdigen stabförmigen Gebildes, welches den ganzen Körper der Joenia durchzieht. In Verbindung mit diesem Achsenskelett stehen in der Region des Kerns sehr komplizierte Strukturen, am Hinterende Muskelfibrillen. Die Mundöffnung ist nicht sicher festgestellt.
Die agame Fortpflanzung erfolgt durch Zweiteilung, bei welcher neben dem Kern sich eine spindelartige Struktur bildet, welche sich in die Länge streckt und in den Tochtertieren die Achsenskelette liefert, während das alte Achsenskelett des Muttertiers resorbiert wird. Also ähnliche Vorgänge, wie wir sie oben (S. 488) bei Trichomastix kennen lernten.
Die Art kommt im Enddarm von Calotermes flavicollis in Südeuropa vor und zeigt das Plasma im hinteren Abschnitt des Körpers von Holzstückchen erfüllt, welche aus dem Darm des Wirtes stammen.
Neuerdings unterscheiden Grassi und Foà zwei Formen, eine größere und eine kleinere, welche eventuell spezifisch verschieden sind.
Hier wären ferner noch folgende Gattungen anzuführen, welche in vieler Beziehung sehr interessant sind, über welche aber erst sehr unvollständige Angaben vorliegen:
Parajoenia Janicki (P. Grassii Jan.).
Microjoenia Grassi.
Devescovina Foà (D. striata Foà var. hawaiensis Janicki aus Calotermes castaneus Burm. in Honolulu) ist eine einkernige Form mit Blepharoplast, Parabasalapparat, 3 nach vorn gerichteten und einer Schleppgeißel, welch letztere einen besonderen Basalapparat besitzt (Fig. 486).
Pyrsonympha Leidy und Dinenympha Leidy.
Leidyonella Frenzel.
[S. 540]
Ferner die vielkernigen Gattungen:
Calonympha Foà (C. Grassi) und Stephanonympha Janicki (S. Silvestrii Jan., Fig. 487), bei welchen die Kerne kranzartig am Scheitel der großen Tiere in Etagen verteilt sind. Jedem Kern entspricht ein Blepharoplast, von welchem nach außen zu 4 lange Geißeln entspringen, während nach innen ein Achsenfaden so verläuft, daß er sich mit den übrigen Achsenfäden zu einem zentral im Körper verlaufenden Achsenstrang vereinigt. Auch gehört zu jedem Blepharoplasten ein blattförmiger Parabasalapparat.
Gattung: Trichonympha Leidy.
Trichonympha agilis Leidy.
|
1877.
|
u. 1881 Leidy. In: Proceed.
Acad. Nat. Sci. Philadelphia.
|
|
1897.
|
Porter. In: Bull. Mus. Comp.
Zool. Cambridge. Mass. Vol. 31. p. 47.
|
[S. 541]
Die farblose Art ist ziemlich kontraktil, ihre Gestalt wechselt also von Spindel- zu Kreiselform. In der mittleren Region ist der Körper eingeschnürt.
Am Vorderende entspringen auf einer Papille zahlreiche lange Geißeln, welche in zahlreichen Kränzen angeordnet sind, welche sich auch auf den hinteren Teil des Körpers fortsetzen; sie sind teils nach außen, teils nach hinten gerichtet. Die hinteren umgeben den Körper wie ein wogender Mantel (Fig. 488).
In der Region zwischen beiden Körperhälften liegt der rundliche Kern. Das Plasma ist im hinteren Abschnitt des Körpers von zahlreichen Holzfragmenten erfüllt, welche aus dem Enddarm der Wirte stammen. Der Parasit bewohnt Termes flavipes und Leucotermes lucifugus meist in großer Menge.
Er wurde bisher in Nordamerika und in Italien beobachtet.
Trichonympha Hertwigi Hartmann.
|
1910.
|
Hartmann, Unters. über Bau und
Entwicklung der Trichonymphiden. In: Festschr. z. 60. Geburtstage
Rich. Hertwigs. Jena. Vol. 1. p. 351.
|
[S. 542]
Es ist dies die brasilianische Form aus Captotermes Hartmanni Holmgr., welche zu den Annahmen über geschlechtliche Differenzierung etc. geführt hat, die oben angeführt wurden. Auf den Figg. 489 sind die wichtigsten Teile der Organisation und die bemerkenswerten Stadien dargestellt.
Anhang II. Rhizomastigina Bütschli.
Die Rhizomastiginen sind eine Gruppe eigenartiger Organismen, welche Charaktere der Flagellaten und Rhizopoden in sich vereinigen. Wegen ihrer Aehnlichkeit mit Cercomonaden wurden sie seit Bütschli mit diesen und einigen heliozoenähnlich gestalteten, geißeltragenden Formen an die Basis des Mastigophorenstammes gestellt und als Uebergangsformen zwischen Amöbinen und niederen Flagellaten betrachtet. Nach Goldschmidt stehen sie jedoch den typischen Rhizopoden viel näher, und wenn sich seine Beobachtungen über die Fortpflanzung der Mastigamöben, sowie die Angaben mehrerer Autoren über die Fortpflanzung von Rhizopoden bestätigen, so sind sie wohl den letzteren direkt einzureihen. Da ich in dieser Frage eine abwartende Stellung einnehme, habe ich die Rhizomastiginen in der von Goldschmidt vorgeschlagenen Abgrenzung als Anhang an die Mastigophoren angeführt. Von verschiedenen Autoren ist die Ansicht geäußert worden, daß nahe Beziehungen zu den Mycetozoen existieren (vgl. unten).
[S. 543]
Die Rhizomastiginen sind einkernige Protozoen von amöbinenähnlichem Habitus mit einer (oder mehreren) meist ziemlich langen Geißel. Größe ca. 20–150 µ. Der Körper ist zu weitgehenden amöboiden Gestaltveränderungen fähig. Die Hautschicht ist entweder undifferenziert oder mit Borsten, Stäbchen, Klebkörnern etc. versehen. Die Geißeln sind entweder frei im Plasma verankert oder stehen mit dem Kern in Verbindung. Beschrieben sind ein- und zweigeißelige Formen. Ernährung holozoisch, durch Aufnahme geformter Nahrung. Kontraktile Vakuole vorhanden.
Die agame Fortpflanzung ist Zweiteilung in freibeweglichem Zustand, sehr ähnlich der Amöbenteilung. Auch kommt Teilung im ruhenden Zustand vor.
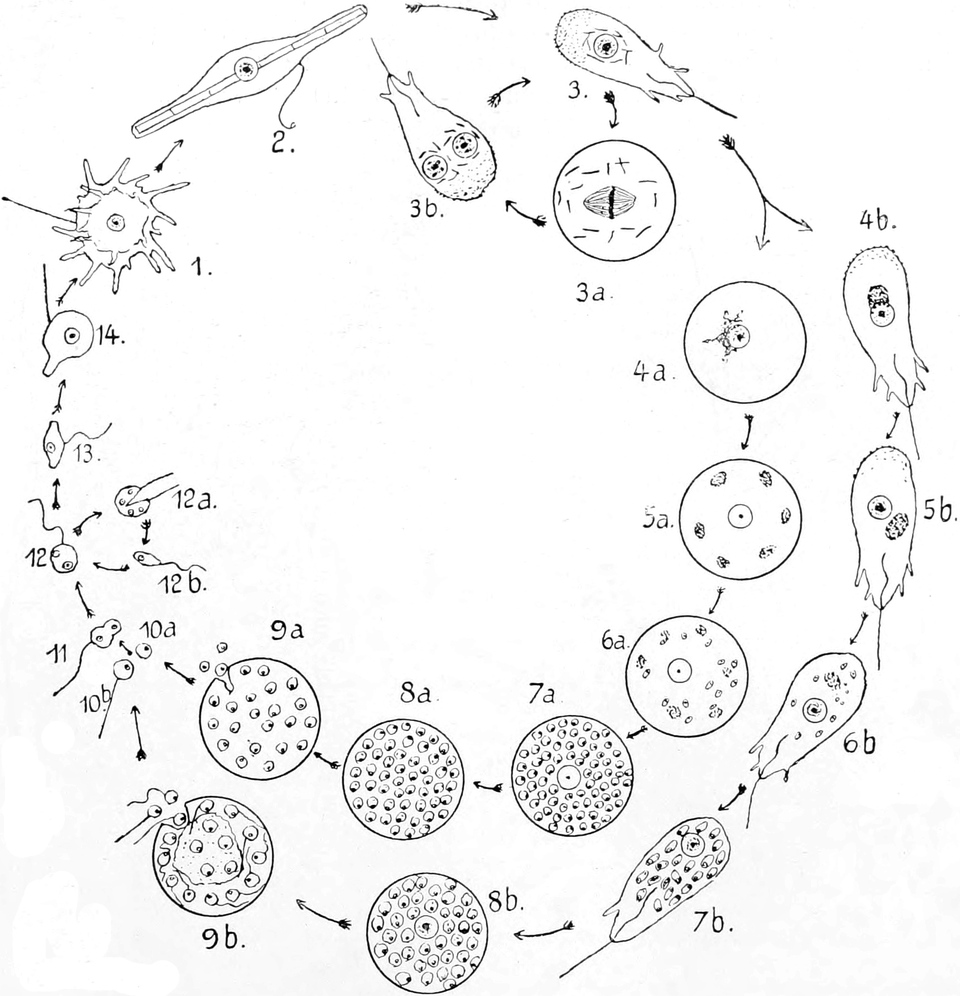
[S. 544]
Ferner ist von Goldschmidt Gametenbildung bei Mastigina und Mastigella angegeben worden. Bei beiden entstehen die Gametenkerne durch freie Kernbildung (vgl. S. 239) im Plasma des Muttertiers aus Chromidien. Die so entstandenen Kerne umgeben sich mit Plasma, so daß im Körper des Muttertiers (des Gametocyten) gelegene Gameten entstehen, während dessen alter Kern (Prinzipalkern) zuerst eine Zeitlang ungeteilt bestehen bleibt und dann zugrunde geht. Die Gametenkerne machen wahrscheinlich stets eine Reduktionsteilung durch. Man kann Makro- und Mikrogameten produzierende Individuen unterscheiden. Bei Mastigella vitrea wurde die Kopulation der ungleichen (aus verschiedenen Cysten stammenden) Individuen beobachtet. Die Zygote kann sich noch durch metagame Teilungen vermehren, ehe sie heranwächst und im Verlauf einer bemerkenswerten Entwicklungsgeschichte allmählich die Form und Struktur des alten Tiers annimmt (vgl. Fig. 490).
[S. 545]
Als sichere Gattungen der Rhizomastiginen werden betrachtet:
1) eingeißelige Formen:
Mastigamoeba F. E. Schulze (Mastigamoeba aspera F. E. Sch.). Amöbenartige Formen mit der Fähigkeit, fingerförmige Pseudopodien zu bilden. Geißel 3–10mal so lang wie der Körper, am Kern verankert. Körper oft mit stäbchenartigen Bildungen bedeckt. Süßwasser.
Mastigina Frenzel (Mastigina setosa Goldschmidt, Fig. 492). Formen von rundlichem, walzenförmigem, breit gelapptem Umriß, mit dicker Pellicula. Bewegung rollend. Hautschicht bei manchen Formen mit radiären Stäbchen oder langen Borsten (Fig. 492). Süßwasser.
Mastigella Frenzel (Mastigella vitrea Goldschmidt, Fig. 490). Formen von sehr wechselndem Umriß, vielfach lebhafter Pseudopodienbildung. Eine oder mehrere Geißeln vorhanden, welche von dem in Einzahl vorhandenen Kern völlig unabhängig sind. Süßwasser.
2) Zweigeißelige Formen:
Dimastigamoeba, nackt mit bläschenförmigem Kern, an welchem die beiden gleich großen Geißeln inserieren. Freilebende und parasitische (?) Formen. Darunter Dimastigamoeba equi und asini Sabrazès und Muratet aus den Fäkalien von Pferd und Esel in Bordeaux und Tonkin.
Allgemeine Literatur über Mastigophoren.
1. Schriften über sämtliche Mastigophoren oder große Gruppen derselben.
|
519.
|
Blochmann, F., Die mikroskopische Tierwelt des
Süßwassers. I. Abt. 2. Aufl. Hamburg 1895.
|
|
520.
|
Bütschli, O., Mastigophora. In: Bronn, Klassen und
Ordnungen des Tierreichs. Vol. 1. II. Abt. 1883–87.
|
|
521.
|
Kent, S., A manual of the Infusoria. 2 Vol. London
1880–82.
|
|
522.
|
Klebs, G., Ueber die Organisation einiger
Flagellatengruppen und ihre Beziehungen zu Algen und Infusorien. In:
Unters. bot. Inst. Tübingen. Vol. 1. 1883. p. 233.
|
|
523.
|
— Flagellatenstudien. In: Zeitschr. wiss. Zool. Vol. 55.
1893. p. 265.
|
|
524.
|
Oltmans, J., Morphologie und Biologie der Algen. 2
Vol. Jena 1904–05.
|
|
525.
|
Prowazek, S. v., Flagellatenstudien. In: Arch. f.
Protistenk. Vol. 2. 1903. p. 195.
|
|
526.
|
Senn, F., Flagellaten. In: Engler u. Prantl,
Natürliche Pflanzenfamilien. Vol. 1. Abt. 1 a. 1900. p. 93.
|
|
527.
|
Senn, G., Oxyrrhis, Nephroselmis und einige
Euflagellaten, nebst Bemerkungen über deren System. In: Zeitschr.
wiss. Zool. Vol. 97. 1911. p. 605.
|
|
528.
|
Stein, F., Der Organismus der Infusionstiere. III.
Abt. Der Organismus der Flagellaten oder Geißelinfusorien. 1. u. 2. Hälfte.
Leipzig 1878 u. 1883.
|
2. Schriften über Protomonadina (mit Ausnahme der Trypanosomiden).
|
529.
|
Alexeieff, A., Formes de passage entre le genre
Bodo Ehrenberg et le genre Trypanoplasma Laveran et Mesnil. Compt rend. de
la Soc. de Biol. Vol. 67. 1909. p. 649.
|
|
530.
|
Burck, C., Studien über einige Choanoflagellaten.
In: Arch. f. Protistenk. Vol. 16. 1909. p. 169.
|
|
531.
|
Castellani, Aldo and Chalmers, A. S., Note
on an intestinal flagellate in man. The Philippine Journal of Science. B.
medical Sci. Vol. 5. 1910. p. 197.
|
|
532.
|
Friedrichs, L., Ueber Bau und Naturgeschichte des
Trypanoplasma helicis Leidy. Arch. f. Protistenk. Vol. 14. 1909. H. 3.
|
|
533.
|
Guastalla, Flagellaten im menschlichen Darme. Wien.
klin. Wochenschr. 1909. No. 45.
|
|
[S. 546]
534.
|
Hesse, Ed., Trypanoplasma vaginalis n. sp.,
parasite du vagin de la Sangsue. C. R. Acad. Sc. Paris. T. 151. 1910.
p. 504–05.
|
|
535.
|
Hofer, B., Handbuch der Fischkrankheiten.
Stuttgart, Nägele, 1904.
|
|
536.
|
Keysselitz, G., Generations- und Wirtswechsel von
Trypanoplasma Borelli L. u. M. In: Arch. f. Protistenk. Vol. 7. 1906.
p. 1.
|
|
537.
|
Léger, L., Sur les Hémoflagellés du Cobitis
barbatula L. In: Ann. Université Grenoble. Vol. 17. 1905. p. 92.
|
|
538.
|
Liebetanz, E., Die parasitischen Protozoen des
Wiederkäuermagens. In: Arch. f. Protistenk. Vol. 19. 1910. p. 19.
|
|
539.
|
Nägler, K., Prowazekia, parva n. sp., eine weitere
freilebende Binucleatenform. In: Arch. f. Protistenk. Vol. 21. 1910.
p. 111.
|
|
540.
|
Plehn, M., Trypanoplasma cyprini n. sp. In: Arch.
f. Protistenk. Vol. 3. 1903. p. 175.
|
|
541.
|
Plenge, H., Ueber die Verbindungen zwischen Geißel
und Kern etc. In: Verh. des Naturh.-Med. Vereins Heidelberg. N. F. Vol.
6. 1896. p. 217.
|
|
542.
|
Walker, E. L., Trypanoplasma ranae n. sp. and its
Life cycle in Cultures. In: Journ. med. Research. Vol. 23. 1910. p. 391.
|
3. Schriften über Trypanosomen und nächste Verwandte.
|
543.
|
Baldrey, Versuche und Beobachtungen über die
Entwicklung von Trypanosoma Lewisi in der Rattenlaus Haematopinus spinulosus.
In: Arch. f. Protistenk. Vol. 15. 1909. H. 3.
|
|
544.
|
Bentmann und Günther, Beiträge zur Kenntnis
des Trypanosoma gambiense. In: Beihefte Arch. f. Schiffs- u. Tropenhyg.
Vol. 11. 1907. Beiheft 2.
|
|
545.
|
Bettencourt, La maladie du sommeil, Rapport
presenté au Ministère de la Marine et des Colonies. Lissabon 1903.
|
|
546.
|
Biot, Au sujet du Trypanosoma Lewisi. In: C. r.
Acad. Sc. Vol. 149. 1909. No. 19. p. 799–800.
|
|
547.
|
Bouet, G., Sur quelques trypanosomes des vertébrés
à sang froid de l’Afrique occidentale française. In: Compt. rend. Soc. Biol.
Vol. 66. p. 609.
|
|
548.
|
— s. No. 284 S. 273.
|
|
549.
|
Breinl and Thomas, Report on Trypanosomes,
Trypanosomiasis and Sleeping Sickness. Mem. XVI. Liverpool School
Trop. Med. 1905.
|
|
550.
|
Bruce, D. and Bateman, H. R., Have
trypanosomes an ultramicroscopical stage in their life-history? In: Journ.
of Royal Army med. Corps. Vol. 12. 1909. H. 1. p. 1 und Proc. of the Royal
Soc. Vol. 80. 1908. p. 394.
|
|
551.
|
— and Hamerton, A. E. and Bateman, H. R.,
Experiments to ascertain if Antelope may act as a reservoir of the virus of
Sleeping sickness (Tr. gambiense). In: Proc. of the Royal Soc. Ser. B.
Vol. 83. 1911. p. 311–327.
|
|
552.
|
— — — Experiments to ascertain if certain Tabanidae act as
the carriers of Trypanosoma pecorum. In: Proc. of the Royal Soc. Ser. B.
Vol. 83. 1911. p. 349–358.
|
|
553.
|
— — —, Trypanosoma ingens sp. In: Proc. of the Royal Soc.
Ser. B. Biol. Sc. No. 549, Vol. 81. 1909. P. 5.
|
|
554.
|
— — — A trypanosome from Zanzibar. In: Reports of the
Sleeping Sickness Comm. of the Roy. Soc. 1910. No. 10. p. 12–27.
|
|
555.
|
— — — and Mackie, F. P., Experiments to ascertain
if cattle may act as a reservoir of the virus of sleeping sickness (Tr.
gambiense). In: Journ. of the Roy. Army. Med. Corps. Vol. 15. 1910.
No. 6. p. 653–658.
|
|
556.
|
— — — —, The development of Trypanosoma gambiense in
glossina palpalis. In: Proceed. of the Royal Soc. Biol. Sc. Vol. 81.
1909. p. 405.
|
|
557.
|
— — — — Glossina palpalis as a carrier of Tryp. vivax in
Uganda. In: Reports of the Sleep. Sickn. Comm. of the Roy. Soc. 1910.
No. 10. p. 63–67.
|
|
558.
|
— — — — Sleeping Sickness in Uganda. Duration of the
Infectivity of the Glossina palpalis after the removal of the Lake-shore
Population. In: Reports of the Sleep. Sickn. Comm. of the Roy. Soc. 1908–09.
No. 10. p. 56–63.
|
|
559.
|
— — — — A note of the occurrence of a trypanosome in the
african elephant. In: Reports of the Sleeping Sickness Comm. of the Royal
Soc. 1910. No. 10. p. 54–56.
|
|
560.
|
— — — — Trypanosome diseases of domestic animals in Uganda.
I. Tryp. Pecorum. II. Trypanosoma Brucei (Plimmer and Bradford). III.
Trypanosoma vivax (Ziemann). IV. Trypanosoma uniforme n. sp. In: Proc. of
the Roy. Soc. Ser. B. I: Vol. 82. 1910. p. 479–486; II: Vol. 83. p. 1–14;
III: p. 15–28; IV: Vol. 83. 1911. p. 176–179.
|
|
[S. 547]
561.
|
— — — —, Experiments to ascertain if Trypanosoma gambiense
during its development within Glossine palpalis is infective. In: Proc. of
the Royal Society. Ser. B. Vol. 83. 1911. p. 345–348.
|
|
562.
|
—, Nabarro and Greig, Further Report on
Sleeping Sickness in Uganda. Rep. Sleep. Sickn. Comm. Rep. 4. 1903.
p. 1–87.
|
|
563.
|
Brumpt, E., Trypanosomes et Trypanosomoses. In:
Revue Scientifique. 5. Sér. Vol. 4. 1905. p. 321. (Daselbst Zusammenfassung
seiner an anderen Orten publizierten Ansichten.)
|
|
564.
|
Carini, S., Stades endoglobulaires des trypanosomes.
In: Annales de l’Institut Pasteur. Vol. 24. 1910. p. 143–151.
|
|
565.
|
Castellani, A., Researches on the Etiology of
Sleeping Sickness. In: Journ. Tropic. Med. Vol. 6. 1903. p. 167.
|
|
566.
|
— Die Aetiologie der Schlafkrankheit der Neger. In:
Centralbl. f. Bakt. I. Abt. Orig. Vol. 35. 1903. p. 62.
|
|
567.
|
Catouillard, G., Sur un trypanosome du Gecko commun
de Tunisie (Platydactylus muratis). In: Compt. rend. de la Soc. de Biol.
Vol. 67. 1909. p. 804.
|
|
568.
|
Chagas, C., Neue Trypanosomen. Vorl. Mitt. In: Arch.
Schiffs- u. Trop.-Hyg. 1909. H. 4.
|
|
569.
|
— Ueber eine neue Trypanosomiasis des Menschen. (Studien
über Morphologie und Entwicklungszyklus des Schizotrypanum Cruzi n. gen. n.
sp. Erreger einer neuen Krankheit des Menschen). In: Memorias do Instituto
Oswaldo Cruz. Vol. 1. 1909. H. 2. p. 1–62; Vol. 2. 1909. Fasc. 1.
p. 159–218.
|
|
570.
|
Danilewsky, Parasitologie comparée du sang. Charkow
1889.
|
|
571.
|
Darling, S. T., Equine Trypanosomiasis in the Canal
Zone. In: Bull. de la Soc. de. Pathol. exotique. Vol. 3. 1910. No. 6. p.
381–384.
|
|
572.
|
Doflein, F., Probleme der Protistenkunde. I. Die
Trypanosomen. Jena, Fischer, 1909.
|
|
573.
|
Dold, H., Kongreßbericht der 78. Jahresversammlung
der British medical association, London 26.-29. July 1910. Discussion on
human trypanosomiasis. In: Centralbl. f. Bakt. I. Abt. Ref. Vol. 48. 1911.
p. 317.
|
|
574.
|
Dutton and Todd, Trypanosomiasis. First
Report of the Expedition to Senegambia. Memoir XI. Liverpool School of
Tropical Med. 1903.
|
|
575.
|
— — Reports of the Expedition to the Congo 1903–05. Mem.
XVIII. Ibid. 1906.
|
|
576.
|
— — and Christy, Reports on the Trypanosomiasis
Expedition to the Congo 1903–04. Mem. XIII. Ibid.
|
|
577.
|
— — and Hannington, Trypanosome transmission
experiments. In: Ann. Tropic. Medic. and Parasitol. Vol. 1. 1907. p. 201.
|
|
578.
|
— — and Tobey, Concerning certain parasitic
Protozoa observed in Africa. Ibid. Vol. 1. 1907. p. 287.
|
|
579.
|
Elmassian, Mal de Caderas, Flagelosis paresiante de
los Equideos. In: Articl. publ. en la Rev. de la Soc. Med. Argentina.
Buenos-Ayres. Vol. 10. 1902. p. 122.
|
|
580.
|
Fantham, H. B., The life history of Trypanosoma
gambiense and Tr. rhodesiense as seen in Rats and Guinea-pigs. Proc. of the
Royal Soc., B., Vol. 83. 1911. p. 212–227.
|
|
581.
|
— and Thomson, J. G., Enumerative studies on
Trypanosoma gambiense and Trypanosoma rhodesiense in Rats, Guinea-pigs, and
Rabbits; periodic variations disclosed (N. Pr.). Ibid. p. 206–211.
|
|
582.
|
Fisch, C., Untersuchungen über einige Flagellaten
und verwandte Organismen. In: Zeitschr. wiss. Zool. Vol. 42. 1885. p. 47.
|
|
583.
|
Francé, R. H., Der Organismus der Craspedomonaden.
Budapest 1897.
|
|
584.
|
Gonder, R., Trypanosoma vespertilionis (Battaglia).
Centralbl. f. Bakteriol., I. Abt. Orig. Vol. 53. 1910. p. 293.
|
|
585.
|
— und Sieber, H., Experimentelle Untersuchungen
über Trypanosomen. Ibid. Vol. 49. 1909. H. 3. p. 321–325.
|
|
586.
|
Hartmann, M., Das System der Protozoen. In: Arch.
f. Protistenk. Vol. 10. 1907. p. 139.
|
|
587.
|
— und Prowazek, Blepharoplast, Karyosom und
Centrosom. Ibid. p. 306.
|
|
588.
|
Hindle, E., The life-history of Trypanosoma
dimorphon, Dutton and Todd. Univ. California Publications in Zoology. Vol. 6.
1909. No. 6. p. 127–144.
|
|
589.
|
Keysselitz, G., Ueber die undulierende Membran bei
Trypanosomen und Spirochäten. In: Arch. f. Protistenk., Vol. 10.
1907. p. 127.
|
|
590.
|
Kleine, Weitere Beobachtungen über Tsetsefliegen
und Trypanosomen. In: Dtsch. med. Wochenschr. 1909. p. 1956.
|
|
591.
|
— Weitere Untersuchungen über die Aetiologie der
Schlafkrankheit. Ibid. 1909. No. 29. p. 1257.
|
|
[S. 548]
592.
|
— Positive Infektionsversuche mit Trypanosoma Brucei
durch Glossina palpalis. Ibid. 1909. No. 11.
|
|
593.
|
— Weitere wissenschaftliche Beobachtungen über die
Entwicklung von Trypanosomen in Glossinen. Ibid. 1909. No. 21. p. 924.
|
|
594.
|
— und Taute, M., Trypanosomenstudien (cf.
Ergänzungen zu unseren Trypanosomenstudien). Arb. d. Kais. Ges.-Amts. Vol.
31. 1911. H. 2.
|
|
595.
|
Koch, R., Vorläufige Mitteilungen über die
Ergebnisse einer Forschungsreise nach Deutsch-Ostafrika. In: Deutsche med.
Wochenschr. 1905. No. 47. p. 1865.
|
|
596.
|
— Ueber die Unterscheidung der Trypanosomenarten. In:
Sitz.-Ber. K. Pr. Ak. d. Wiss. Berlin 1905. No. 46. p. 958.
|
|
597.
|
— Ueber den bisherigen Verlauf der deutschen Expedition
zur Erforschung der Schlafkrankheit in Deutsch-Ostafrika. In: Deutsche
med. Wochenschr. 1900. Sonderbeilage zu No. 51.
|
|
598.
|
— Bericht über den Verlauf der deutschen Expedition zur
Erforschung der Schlafkrankheit bis zum 25. November 1906. Ibid. 1907. No.
2. p. 49.
|
|
599.
|
— Beck, M., Kleine, F., Bericht über die
Tätigkeit der zur Erforschung der Schlafkrankheit im Jahre 1906/07 nach
Ostafrika entsandten Kommission. Arb. a. d. Kais. Ges.-Amt. Vol. 31. 1909.
H. 1. p. 1.
|
|
600.
|
Kühn, A., und v. Schuckmann, W., Ueber den
Bau und die Teilungserscheinungen von Trypanosoma Brucei. In: Sitzber.
Heidelberg Ak. Wiss. Math.-nat. Kl. 1911. 11. Abh.
|
|
601.
|
Laveran et Mesnil, Trypanosomes et
Trypanosomiases. Paris, Masson et Co., 1904.
|
|
602.
|
— — Recherches morphologiques et expérimentales sur le
Tryp. des Rats. In: Ann. Inst. Pasteur. Vol. 15. 1901. p. 673.
|
|
603.
|
— — Recherches morphologiques et expérimentales sur le
Tryp. du Nagana. Ibid. Vol. 16. p. 1.
|
|
604.
|
— — Les Trypanosomes des Poissons. In: Arch. f. Protistenk.
Vol. 1. 1902. p. 475.
|
|
605.
|
Laveran, A., et Pettit, A., Sur le
trypanosome du Mulot, Mus sylvaticus L. Compt. rend. Soc. Biol. Vol. 67.
p. 564.
|
|
606.
|
— — Sur un trypanosome d’un Campagnol Microtus arvalis
Pallas. Ibid. 1909. p. 798.
|
|
607.
|
Laveran, M. A., Sur les Trypanosomiases du
Haut-Niger. In: Ann. Inst. Past. Vol. 21. 1907. p. 321.
|
|
608.
|
Lebedeff, W., Ueber Trypanosoma rotatorium Gruby.
(Vorl. Mitt. in Biol. Centralbl. Vol. 30. 1910. No. 6.) In: Festschr. z. 60.
Geburtstage R. Hertwigs. Vol. 1. 1910. p. 399–436.)
|
|
609.
|
Levaditi, C., et Stanesco, V., Sur un
procédé facilitant la recherche des trypanosomes des spirilles et des
filaires dans le sang. In: Compt. rend. Soc. Biol. Vol. 67. 1909. p.
594.
|
|
610.
|
Lignières, Contribution à l’étude du Mal de Caderas.
In: Revista d. l. Socied. med. Argentina. Vol. 10. 1902. p. 481.
|
|
611.
|
Lühe, M., Die im Blut schmarotzenden Protozoen und
ihre nächsten Verwandten. In: Mense, Handbuch der Tropenkrankheiten. Vol.
3. 1906. p. 69.
|
|
612.
|
Martini, Untersuchungen über die Tsetsekrankheit
zwecks Immunisierung von Haustieren. In: Zeitschr. f. Hyg. u. Infekt. Vol.
50. 1905. p. 1.
|
|
613.
|
Martin, C. H., and Muriel Robertson,
Preliminary note on Trypanosoma Eberthi (Kent) = Spirochaete Eberthi, Lühe)
and some other parasitic forms from the intestine, of the Fowl. In: Proc.
R. Soc. London. Vol. 81. B. 1909. p. 385–391.
|
|
614.
|
Martin, G., Les Trypanosomiases animales de la
Guinée française. In: Ann. Inst. Pasteur. Vol. 21. 1907. p. 357.
|
|
615.
|
— Lebœuf et Roubaud, Rapport de la mission
d’études de la maladie du sommeil au Congo français 1906–1908. In: Soc. de
Géographie. Paris (Masson & Co.). 1909.
|
|
616.
|
— et Mesnil, Sur la réceptivité des oiseaux aux
trypanosomes pathogènes pour les mammifères. In: C. R. Soc. Biol. Vol. 60.
1906. p. 739.
|
|
617.
|
Mathis, C., et Leger, M., Sur un trypanosome
nouveau des serpents du Tonkin. Compt. rend. Soc. Biol. Vol. 67. 1909.
p. 572.
|
|
618.
|
— — Trypanosome de la poule. Ibid. Vol. 67. 1909. p. 452.
|
|
619.
|
Mayer, Mart., Experimentelle Beiträge zur
Trypanosomeninfektion. In: Zeitschr. f. exper. Pathol. u. Ther. Vol.
1. 1905.
|
|
620.
|
— Ueber ein Halteridium und Leucocytozoon des Waldkauzes
und deren Weiterentwicklung in Stechmücken. In: Arch. f. Prot.-Kunde.
Vol. 21. 1911. p. 232–254.
|
|
621.
|
McNeal, W. J., An improved medium for cultivating
Tryp. Brucei. In: Sixth Ann. Rep. Michigan Ac. Sci. 1906. p. 173.
|
|
622.
|
— The life history of Trypanosoma Lewisi and T. Brucei.
In: Journ. Infect. Diseases. Vol. 1. 1904. p. 517.
|
|
[S. 549]
623.
|
Mesnil, F., et Brimont, E., Sur un
hématozoaire nouveau (Endotrypanum n. gen.) d’un Édenté de Guyane. In:
Compt. rend. Soc. Biol. Vol. 65. 1908. p. 581.
|
|
624.
|
— — Trypanosome et Microfilaire d’un Édenté, le Tamandua
tridactyla (L.). Ibid. Vol. 69. 1910. p. 148.
|
|
625.
|
— et Rouget, Sensibilité des Ruminants et des
Singes an Tryp. de la Dourine. In: Ann. Inst. Pasteur. Vol. 20. 1906.
p. 689.
|
|
626.
|
Minchin, E. A., Observations on the Flagellates
parasitic in the blood of freshwater fishes. Proc. of the Zool. Soc. of
London. 1909. p. 1–31.
|
|
627.
|
— Note on the polymorphism of „Trypanosoma gambiense“. In:
Parasitology. Vol. 1. 1908. No. 3. p. 236–237.
|
|
628.
|
— Investigations on the development of Trypanosomes in the
Tsetseflies and other Diptera. In: Quart. Journ. Micr. Science. Vol. 52.
1908. p. 159.
|
|
629.
|
Möllers, B., Beitrag zur Epidemiologie der
Trypanosomenkrankheiten. Experimentelle Uebertragungsversuche von
Tsetsetrypanosomen durch den Zeugungsakt und durch Ungeziefer (Insekten und
Zecken). In: Zeitschr. f. Hyg. u. Infektionskrankh., Vol. 62. 1909. H. 3.
p. 425.
|
|
630.
|
Musgrave and Clegg, Trypanosoma and
Trypanosomiasis, with Special Reference to Surra in the Philippine Islands.
In: Dptmt of the Interior. Bureau of Gvmnt. Lab. Publ. No. 5.
(Literaturverzeichnis.)
|
|
631.
|
Nocht und Mayer, Trypanosomen als
Krankheitserreger. In: Kolle und Wassermann, Handb. der pathog. Mikroorg. I.
Ergänzungsbd. 2. Heft. 1906. p. 1.
|
|
632.
|
Nocht, B., Ueber Tropenkrankheiten. Leipzig 1905.
|
|
633.
|
Novy and McNeal, On the cultivation of Tryp.
Lewisi. In: Contrib. to Medic. Research. dedic. to V. C. Clarence. Chicago
1903.
|
|
634.
|
— — The cultivation of Trypanosoma Brucei. A preliminary
Note. In: Journ. Am. Med. Ass. 1903.
|
|
635.
|
— — On the Trypanosomes of Birds. In: Journ. Infect.
Diseases. Vol. 2. 1905. p. 256.
|
|
636.
|
— — On the cultivation of Tryp. Brucei. In: Journ. Infect.
Diseases. Vol. 1. 1904. p. 1.
|
|
637.
|
— — The Trypanosomes of Tsetseflies. In: Journ. Infect.
Diseases. Vol. 3. 1906. p. 394.
|
|
638.
|
— — and Torrey, The Trypanosomes of Mosquitoes and
other Insects. In: Journ. Infect. Diseases. Vol. 4. 1907. p. 223.
|
|
639.
|
Nuttal, G. H. F., The transmission of Trypanosoma
Lewisi by fleas and lice. In: Parasitology. Vol. 1. 1908. No. 4. p. 296.
|
|
640.
|
Pease, H. T., Trypanosoma Theileri (Laveran) and
Galziekte. In: Journ. of trop. veter. Science. Vol. 4. 1909. Fasc. 4.
|
|
641.
|
Peter, O., Morphologische und experimentelle
Studien über ein neues, bei Rindern in Uruguay (Südamerika) gefundenes
Trypanosoma. In: Arch. f. Schiffs- u. Tropenhyg. Vol. 14. 1910. Beiheft 6.
p. 7–40.
|
|
642.
|
Prowazek, S. v., Studien über Säugetiertrypanosomen.
In: Arb. a. d. Kais. Gesundheitsamte. Vol. 22. 1905. p. 351.
|
|
643.
|
— Kritische Bemerkungen zum Trypanosomenproblem. In: Arch.
f. Schiffs- u. Tropenhygiene. 1909. No. 10.
|
|
644.
|
Rabinowitsch und Kempner, Beitrag zur
Kenntnis der Blutparasiten, speziell der Rattentrypanosomen. In: Zeitschr.
f. Hygiene. Vol. 30. 1899. p. 251.
|
|
645.
|
— — Die Trypanosomen in der Menschen- und Tierpathologie,
sowie vergleichende Trypanosomenuntersuchungen. In: Centralbl. f. Bakt. I.
Abt. Orig. Vol. 34. 1903. p. 804.
|
|
646.
|
Robertson, M., Studies on a Trypanosome found in
the Alimentary Canal of Pontobdella muricata. In: Proc. Phys. Soc. Edinburgh.
Vol. 17. 1907. p. 83.
|
|
647.
|
Rodenwald, E., Trypanosoma Lewisii in Haematopinus
spinulosus. In: Centralbl. Bakt. Abt. I. Orig. Vol. 52. 1909. p. 30.
|
|
648.
|
Roudsky, D., Sur la réceptivité de la souris
blanche à Trypanosoma Lewisi Kent. In: C. r. Soc. Biol. Paris. Vol. 68.
1910. p. 458–460.
|
|
649.
|
— Sur le Trypanosoma Lewisii Kent renforcé. Ibid. Vol. 69.
1910. p. 384–386.
|
|
650.
|
Rosenbusch, F., Trypanosomenstudien. In: Arch. f.
Protistenk. Vol. 15. 1909. Heft 3.
|
|
651.
|
Ross, Ronald and Thomson, D., A case of
sleeping sickness showing regular periodical increase of the parasites
disclosed. In: British med. Journ. 1910. No. 2582. p. 1544–1545.
|
|
652.
|
Roubaud, E., La Glossina palpalis, sa
biologie, son rôle dans l’étiologie des Trypanosomiases. In: Extr. du
Rapport d. l. Miss. d’études d. l. maladie du sommeil au Congo Français par
Martin, Lebœuf et Roubaud. Paris 1909.
|
|
653.
|
Rouget, O., Contribution à l’étude du Trypanosome
des Mammifères. In: Ann. Inst. Pasteur. Vol. 10. 1896. p. 716.
|
|
[S. 550]
654.
|
Salvin-Moore und Breinl, Note on the life
cycle of the Parasite of the Sleeping Sickness.
|
|
655.
|
— — The cytology of the Trypanosomes. In: Ann. Trop. Med.
and Parasit. Vol. 1. 1907. p. 441.
|
|
656.
|
— — The life-history of Tryp. equiperdum. In: Proc. Roy.
Society. B. Vol. 80. 1908. p. 289.
|
|
657.
|
— — and Hindle, The life-history of Tryp. Lewisi.
In: Ann. Trop. Med. and Parasit. Vol. 2. 1908. p. 199.
|
|
658.
|
Schaudinn, F., Generations- und Wirtswechsel bei
Trypanosoma und Spirochäte. In: Arb. a. d. Kais. Gesundheitsamte. Vol. 20.
1904. p. 387.
|
|
659.
|
— Neuere Forschungen über die Befruchtung bei Protozoen.
In: Verh. Deutsch. Zool. Ges. 1905. p. 16.
|
|
660.
|
Schilling, C., Bericht über die Surrakrankheit der
Pferde. In: Centralbl. Bakt. Abt. I. Orig. Vol. 30. 1901. p. 545.
|
|
661.
|
— 2. und 3. Bericht über die Surrakrankheit der Pferde und
Rinder in Togo. Ibid. Vol. 31. 1902. p. 452 und Vol. 33. 1903. p. 184.
|
|
662.
|
Schneider et Buffard, La dourine et son
parasite. In: Rec. Méd. Vétér. Sér: 8. Vol. 7. 1900. p. 157 u. 220.
|
|
663.
|
Schönebeck, Beobachtung eines anscheinend
pathogenen, zur Gruppe des Tr. Theileri gehörigen Trypanosomas in
Deutsch-Ostafrika, zugleich ein Beitrag zur Behandlung und Prophylaxe der
Trypanose. In: Arch. f. Schiffs- u. Tropenhyg. Vol. 14. 1910. No. 16.
p. 506–514.
|
|
664.
|
Senn. G., Der gegenwärtige Stand unserer Kenntnisse
von den Flagellaten-Blutparasiten. In: Arch. f. Protistenk. Vol. 1. 1902.
p. 344.
|
|
665.
|
— und Wasielewski, Beiträge zur Kenntnis der
Flagellaten des Rattenbluts. In: Zeitschr. f. Hyg. Vol. 33. 1900. p. 444.
|
|
666.
|
Sergent, Ed. et Et., Evolution des
Hématozoaires de l’Athene noctua, d’après F. Schaudinn. In: C. R. 6ᵐᵉ Congr.
internat. Zoologie Berne 1904. p. 384.
|
|
667.
|
— Études sur les Hématozoaires d’Oiseaux. In: Ann. Inst.
Pasteur. Vol. 21. 1907. p. 251.
|
|
668.
|
— El Debab. Ibid. Vol. 19. 1905. p. 17.
|
|
669.
|
— Études sur les Trypanosomiases de Berbérie en 1905. Ibid.
Vol. 20. 1906. p. 665.
|
|
670.
|
Sivori et Lecler, Le Surra américain ou Mal
de Caderas. In: Annales del Ministerio de Agricultura, Seccion de Zootecnio
etc. Vol. 1. 1902. p. 1.
|
|
671.
|
Sleeping Sickness Bureau. Bulletin 1909–1911.
Editor: A. G. Bagshawe. London, Royal Society.
|
|
672.
|
Stephens, S. W. W., and Fantham, H. B., On
the peculiar morphology of a Trypanosome from a case of sleeping sickness
and the possibility of its being a new species (T. rhodesiense). In: Proc.
of the Royal Soc. B. Vol. 83. 1910. p. 28–33.
|
|
673.
|
Strickland, C., On the supposed development of Tryp.
Lewisi in lice and fleas; and the occurrence of Crithidia Ctenophthalmi in
fleas. In: Parasitology, Vol. 2. 1909. No. 1/2. p. 81.
|
|
674.
|
Swellengrebel, N. H., La Volutine chez les
Trypanosomes. In: C. R. Soc. Biol. Vol. 64. 1908. p. 38.
|
|
675.
|
Theiler, A., Maladies des Troupeaux dans l’Afrique
du Sud. In: Bull. Inst. Pasteur. Vol. 19. 1905. No. 15 u. 16.
|
|
676.
|
Thimm, C. A., Bibliography of Trypanosomiasis.
London. Sleeping Sickness Bureau. 1910.
|
|
677.
|
Wasielewski, Th. v., Studien und Mikrophotogramme
zur Kenntnis der pathogenen Protozoen. Heft II. Untersuchungen über
Blutschmarotzer. Leipzig 1908.
|
|
678.
|
Wendelstadt, H., und Fellmer, T., Einwirkung
von Kaltblüterpassagen auf Nagana- und Lewisi-Trypanosomen. In: Zeitschr.
f. Immunitätsf. u. exper. Ther. Vol. 3. 1909. Heft 4. p. 422–432. Dasselbe.
II. Mitt. Ebenda. Vol. 5. 1910. H. 4. p. 338–348.
|
|
679.
|
Werbitzky, F. W., Ueber blepharoplastlose
Trypanosomen. In: Centralbl. f. Bakt. I. Abt. Orig. Vol. 53. 1909.
p. 303–315.
|
|
680.
|
Woodcock, The Haemoflagellates. In: Quart. Journ.
Micr. Sci. N. S. Vol. 50. 1906. p. 151.
|
|
681.
|
Ziemann, Beitrag zur Trypanosomenfrage. In:
Centralbl. f. Bakt. Abt. I. Orig. Vol. 38. 1905. p. 307. 429. 662.
|
|
682.
|
Zwick und Fischer, Untersuchungen über die
Beschälseuche. I. Mitt. In: Arb. a. d. Kais. Gesundheitsamte. Vol. 36. 1910.
Heft 1. p. 1–103.
|
|
Dazu noch zahlreiche Aufsätze, vor allem über Trypanosomen, in den Publikationen des Institut Pasteur, der Liverpool School of Tropical Medicine, des Reichsgesundheitsamtes, des Laborat. Camerana Pestana, des Sleeping Sickness Committee der Royal Society etc. |
|
[S. 551]
4. Schriften über Leptomonas und Verwandte.
|
683.
|
Bouet, G., Roubaud, E., Sur la présence au
Dahomey et la mode de transmission du Leptomonas Davidi Lafont, flagellé
parasite des Euphorbiacées. In: Compt. rend. Soc. Biol. Paris. Vol. 70.
1911. p. 55.
|
|
684.
|
Chatton, E., A propos de „Rhynchomonas luciliae“
Patton flagellé parasite de la Lucilie sérénissime. In: Bull. de la Soc. de
Pathol. exot. Vol. 3. 1910. No. 6.
|
|
685.
|
— Sur un trypanosomide nouveau d’une Nyctéribie, et sur
les relations des formes Trypanosoma, Herpetomonas, Leptomonas et
Crithidia. In: Compt. rend. Soc. Biol. Vol. 67. 1909. p. 43.
|
|
686.
|
— Sur un trypanosomide nouveau, Leptomonas agilis, d’une
réduve indigène (Harpacter iracundus Scop). In: Compt. rend. Soc. Biol. Vol.
66. 1909. p. 981.
|
|
687.
|
— et Léger, A., Sur quelques Leptomonas de Muscides
et leurs Leptotrypanosomes. Compt. rend. Soc. Biol. Paris. Vol. 70. 1911.
p. 120.
|
|
688.
|
— — Eutrypanosomes, Leptomones et Leptotrypanosomes chez
Drosophila confusa Staiger (Muscide). In: Compt. rend. Soc. Biol. Paris Vol.
70. 1911. p. 34.
|
|
689.
|
Dunkerly, I. S., On some stages in the life history
of Leptomonas muscae domesticae etc. In: Quart. Journ. Micr. Sci. N. S.
Vol. 56. 1911. p. 645.
|
|
690.
|
Georgewitch, Jivoïn, Sur le développement de
Crithidia simuliae n. sp. In: Compt. rend. Soc. Biol. Vol. 67. 1909. p. 517.
|
|
691.
|
— Sur un trypanosomide nouveau, Crithidia simuliae n. sp.,
d’une Simulie (S. columbacensis) de la Serbie septentrionale. In: Compt.
rend. Soc. Biol. Vol. 67, 1909. p. 480.
|
|
692.
|
Guastalla, N., Flagellaten im menschlichen Darm.
Beitrag zur Kenntnis der Infusorienenteritis. In: Wien. klin. Wochenschr.
Jahrg. 22. p. 1560–63.
|
|
693.
|
Knuth, P., Eine Herpetomonas beim Reh. In:
Zeitschr. f. Infektionskrankheiten d. Haustiere. Vol. 6. 1909. p. 357.
|
|
694.
|
Lafont, A., Sur la présence d’un Leptomonas,
parasite de la classe des Flagellés, dans le latex de trois Euphorbiacées.
In: Ann. Inst. Pasteur. Vol. 24. 1910. p. 205–219.
|
|
695.
|
— Sur la transmission du Leptomonas Davidi des Euphorbes
par un hémiptère, Nysius Euphorbiae. In: Compt. rend. Soc. Biol. Paris. Vol.
70. 1911. p. 58.
|
|
696.
|
— Sur la présence d’un parasite de la classe des Flagellés
dans le latex de l’Euphorbia pilulifera. In: Compt. rend. Soc. Biol. Vol.
66. 1909. p. 1011.
|
|
697.
|
Léger, L., Sur les affinités de l’Herpetomonas
subulata et la phylogénie des Trypanosomes. In: C. R. Soc. Biol. Paris. Vol.
57. 1904. p. 615.
|
|
698.
|
— Notes sur les parasites des Diptères piqueurs. Ann.
Université Grenoble. Vol. 17. 1905. p. 92.
|
|
a) — La structure et le mode de multiplication des
Flagellés du genre Herpetomonas Kent. In: C. R. Ac. Sci. Paris. Vol. 134. p.
781. 1902.
|
|
|
b) — Sur la systématique des Cercomonadines fasciculées
sans membrane ondulante. Ibid. Vol. 134. 1902. p. 665
|
|
|
699.
|
Patton, W. S., The life-cycle of a species of
Crithidia parasitic in the intestinal tract of Gerris Fossarum fabr. In:
Arch. f. Protistenk. Vol. 12. 1908. p. 131.
|
|
700.
|
— Herpetomonas Cygaei. Ibid. Vol. 13. 1908. p. 1.
|
|
701.
|
— The life cycle of a species of Crithidia parasitic in
the intestinal tracts of Tabanus hilarius and Tabanus sp. Ibid. Vol. 15.
1909. Heft 3.
|
|
702.
|
— Experimental infection of the Madras bazaar fly, Musca
nebulo Fabr. with Herpetomonas muscae domesticae (Burnett). Bull. de la Soc.
Path. exot. Vol. 3. 1910. No. 4.
|
|
703.
|
— A critical review of our present knowledge of the
Haemoflagellates and allied forms. In: Parasitology. Vol. 2. Nos. 1 and 2.
May. p. 92–143.
|
|
704.
|
— u. Strickland, S., A critical review of the
relation of blood-sucking invertebrates to the life-cycles of the
trypanosomes of vertebrates, with a note on the occurrence of a species of
Crithidia, Cr. ctenophthalmi, in the alimentery tract of Ctenopthalmus
agystes Heller. Ibid. Vol. 1. 1908. No. 4. p. 322.
|
|
705.
|
Porter, A., The life cycle of „Herpetomonas
jaculum“ (Léger), parasitic in the alimentary tract of „Nepa cinerea.“ In:
Parasitology. Vol. 2. 1910. No. 4. p. 367–391.
|
|
706.
|
— The morphology and life-history of „Crithidia Gerridis“,
as found in the british water-bug, „Gerris paludum.“ Ibid. Vol. 2. 1910.
No. 4. p. 348–366
|
|
707.
|
— The structure and life-history of Crithidia melophagia.
In: Quart. Journ. Micr. Sci. Vol. 55. 1910. p. 189.
|
|
708.
|
Prowazek, S. v., Die Entwicklung von Herpetomonas.
In: Arb. a. d. Kais. Gesundheitsamte. Vol. 20. 1904. p. 440.
|
|
709.
|
Rosenbusch, F., Ueber eine neue Encystierung bei
Crithidia muscae domesticae. In: Centralbl. f. Bakt., Par. u. Inf. Abt. I.
Orig. Vol. 53. 1910. p. 387.
|
|
[S. 552]
710.
|
Roubaud, E., Leptomonas Mesnili n. sp. nouveau
flagellé à formes trypanosomes de l’intestin de Muscides non piqueurs. In:
Compt. rend. de la Soc. de Biol. Vol. 65. 1908. p. 39.
|
|
711.
|
Swingle, Leroy, D., A study on the
life-history of a flagellate (Crithidia melophagi n. sp. in the alimentary
tract of the sheep-tick (Melophagus ovinus). In: Journ. of infection
diseases. Vol. 6. 1909. No. 1. p. 98–121.
|
|
712.
|
— — A study on the life-history of a Flagellate (Crithidia
melophagi n. sp.) in the alimentary tract of the sheep-tick (Melophagus
ovinus). In: Journ. Inf. Diseases. Vol. 6. 1909. p. 98–121.
|
|
713.
|
Werner, H., Ueber eine eingeißelige Flagellatenform
im Darm der Stubenfliege. In: Arch. f. Protistenk. Vol. 13. 1908. p. 19–22.
|
5. Schriften über Leishmanien.
|
714.
|
Bethmann u. v. Wasielewski, Zur Kenntnis der
Orientbeule und ihres Erregers. In: Beih. 5 z. Arch. f. Schiffs. u.
Tropenhyg. 1909. p. 56.
|
|
715.
|
Chatterjee, G. C., The cultivation of Trypanosoma
out of the Leishman-Donovan body upon the method of Capt. Rogers. In:
Lancet. 1905. Vol. 1. p. 16.
|
|
716.
|
Di Cristina, G., and Cannata, S., Ueber die
morphologischen und kulturellen Eigenschaften des Parasiten der infantilen
Milzanämie (Leishmania infantum). In: Centralbl. f. Bakt. etc. Abt. I. Orig.
Vol. 55. 1910. p. 494.
|
|
717.
|
— — Ueber die morphologischen und kulturellen
Eigenschaften des Parasiten der infantilen Milzanämie (Leishmania infantum).
Ibid. Abt. I. Orig. Vol. 55. 1910. p. 494–496.
|
|
718.
|
Christophers, S. R., A preliminary Rep. on a
parasite found in persons suffering from the enlargement of spleen in India.
In: Scient. Mem. Off. Med. Sanit. Dpt. Govnt. India. No. 8 u. 11. 1904.
|
|
719.
|
Darling, S. T., Histoplasmosis, a fatal infect.
disease resembling Kala-Azar found amongst natives of tropical America. In:
Arch. internal Medicine. Chicago 1908. Sept.
|
|
720.
|
Donovan, C., Human piroplasmosis. In: Lancet. 1904.
Vol. 2. p. 744.
|
|
721.
|
— Kala-Azar in Madras, especially with regard to its
connexion with the dog and the bug (Conorrhinus). In: Lancet. 1909. Vol. 2.
No. 21. p. 1495–1426.
|
|
722.
|
Gasperini, G., La linfangite protozoaria equina ed
il suo Lymphosporidium secondo le più recenti ricerche. In: Lo Sperimentale.
Anno 63. 1909. Fasc. 2. p. 356–359.
|
|
723.
|
Galli-Valerio, B., L’état actuel de nos
connaissance sur l’agent spécifique de la lymphangite épizootique des
équidés. In: Centralbl. f. Bakt. etc. Abt. I. Ref. Vol. 44. 1909. p. 577.
|
|
724.
|
Jemma, B., Di Cristina, G. and Cannata,
S., Experimentelle Infektion mit „Leishmania infantum“ bei Hunden. In:
Centralbl. f. Bakt. etc. Abt. I. Orig. Vol. 57. 1910. p. 59.
|
|
725.
|
Laveran, A. et Pettit, A., Culture de la
Leishmania Donovani en milieu liquide. In: Compt. rend. Soc. Biol. Vol. 68.
Paris 1910. p. 114.
|
|
726.
|
— — Infections légères du rat et de la souris par la
Leishmania Donovani. Ibid. Vol. 66. 1919. p. 911.
|
|
727.
|
— et Mesnil, Sur un Protozoaire nouveau (Piroplasma
Donovani) parasite d’une fièvre de l’Inde. In: Compt. rend. Ac. Sci. Vol.
137. 1903. p. 957.
|
|
728.
|
— — Nouvelles observations sur Piroplasma Donovani. Ibid.
Vol. 138. 1904. p. 187.
|
|
729.
|
Leishman, The nature of the Leishman-Donovan body.
In: Brit. Med. Journ. 1904. Vol. 2. p. 29.
|
|
730.
|
— Note on the nature of the parasite bodies found in trop.
splenomegaly. Ibid. 1904. Vol. 1. p. 303.
|
|
731.
|
— and Statham, The development of the Leishman body
in cultivation. In: Journ. of the Roy. Army Med. Corps March. 1905.
|
|
732.
|
Marchand und Ledingham, Ueber die Infektion
mit Leishmanschen Körperchen und ihr Verhältnis zur Trypanosomenkrankheit.
In: Zeitschr. f. Hygiene. Vol. 47. 1904. p. 1.
|
|
733.
|
Martini, Trypanosomenkrankheit und Kala-Azar. Jena
1907.
|
|
734.
|
Marzinowsky, E. J., Die Orientbeulen und ihre
Aetiologie. In: Zeitschr. f. Hyg. Vol. 58. 1907. p. 327.
|
|
735.
|
Masson, P., Les Leishmanioses. In: Rev. scient.
Année. Vol. 47. sem. 1. 1909. p. 654–657.
|
|
736.
|
Mesnil, Le Protozoaire du bouton d’Orient. In:
Compt. rend. du VI. Congr. intern. Zool. Bern 1904. Genf 1905. p. 384.
|
|
737.
|
Minchin, E. A., The development of the Parasites of
Oriental Sore in Cultures. In: Brit. Med. Journ. 1909. Vol. 1. p. 842.
|
|
[S. 553]
738.
|
Neumann, R. O., Leishmania tropica im peripheren
Blute bei der Delhibeule. In: Centralbl. Bakt. etc. Abt. I. Orig. Vol. 52.
p. 469.
|
|
739.
|
Nicolle, Ch., Culture du parasite du bouton
d’Orient. In: C. R. Ac. Sci. 1908. p. 842.
|
|
740.
|
— Le Kala-Azar infantile. In: Ann. Inst. Pasteur. Vol. 23.
1909. p. 361–400. 441–472.
|
|
741.
|
— État actuel de la question du Kala-Azar infantile.
(Communication présentée an Congrès de Médecine de Trapani). In: Arch.
de l’institut Pasteur de Tunis. 1910. Vol. 3. p. 109–114.
|
|
742.
|
— et Manceaux, L., Reproduction expérimentale du
bouton d’Orient chez le chien. Origine canine possibilité de cette infection.
In: C. R. Acad. Sc. Paris. Vol. 150. 1910. p. 889–891.
|
|
743.
|
— — Recherches sur le bouton d’Orient. Cultures,
reproduction expérimentale. immunisation. In: Ann. de l’Institut Pasteur.
Vol. 24. 1910. No. 9. p. 673–721.
|
|
744.
|
— et Sicre, A., Faible virulence des cultures de
Leishmania tropica pour le singe (Bonnet chinois). In: Compt. rend. de la
Soc. de Biol. Vol. 65. 1908. p. 143.
|
|
745.
|
— — Reproduction expérimentale du bouton d’Orient chez le
singe. In: C. R. Soc. Biol. Paris. Vol. 64. 1908. p. 1096.
|
|
746.
|
Novy, Successful canine infection with cultures of
Leishmania infantum. In: Journ. of the Americ. Med. Assoc. Vol. 51.
1908. No. 17.
|
|
747.
|
Patton, W. S., Inoculation of dogs with the
parasites of Kala-Azar. In: Parasitology. Vol. 1. 1908. p. 311.
|
|
748.
|
Reinhardt, Der Erreger der Orientbeule. In:
Zeitschr. f. Hyg. u. Inf. Vol. 62. 1908. p. 49. (Daselbst Literatur über
Aleppobeule.)
|
|
749.
|
Rogers, On the development of flagellated organisms
from the spleen. Protozoic parasites of cachexial fevers and Kala-Azar. In:
Quart. Journ. micr. Sci. Vol. 48. 1904. p. 367.
|
|
750.
|
Row, R., The development of the Parasite of
Oriental Sore in Cultures. In: Quart. Journ. Micr. Sc. N. S. Vol. 53. 1909.
p. 747–754.
|
|
751.
|
Thiroux, A., et Teppaz, L., Contribution à
l’étude de la lymphangite épizootique des équidés an Sénégal. In: Ann. Inst.
Pasteur. Vol. 23. 1909. p. 420–425.
|
|
752.
|
Wright, Protozoa in a case of tropical ulcer
(„Delhi Sore“). In: Journ. med. Res. Vol. 10. 1903. p. 472.
|
6. Schriften über Tsetsefliegen.
|
753.
|
Austen, A Monograph of the Tsetse flies. London,
British Museum, 1903.
|
|
754.
|
Degen, E., Observations on the life-history of
Glossina palpalis. In: Bull. Sleep. Sickn. Comm. Vol. 1. 1909. No. 12.
p. 471.
|
|
755.
|
Grünberg, Die blutsaugenden Dipteren. Jena, G.
Fischer, 1907.
|
|
756.
|
Minchin, M. A., Report on the anatomy of the
Tsetse-fly. In: Proc. Roy. Soc. B. Vol. 76. 1905. p. 531.
|
|
757.
|
Roubaud, La „Glossina palpalis“. Sa biologie, son
rôle dans l’étiologie des Trypanosomiases. Thèse de la faculté des sciences.
Paris 1909.
|
|
758.
|
Sander, L., Die Tsetsen. Leipzig 1905 (auch im
Arch. f. Schiffs- u. Tropenhyg. Vol. 9. 1905).
|
|
759.
|
Stuhlmann, Beiträge zur Kenntnis der Tsetsefliege
(Glossina fusca und Glossina tachinoides). Arb. a. d. Kaiserl.
Gesundheitsamt. Vol. 26. p. 3.
|
7. Schriften über Heilmittel gegen Trypanosomen und über allgemeine Ergebnisse der therapeutischen Forschung.
|
760.
|
Beck, M., Experimentelle Beiträge zur Infektion
mit Trypanosoma gambiense und zur Heilung der menschlichen
Trypanosomiasis. In: Arb. Kais. Gesundheitsamt. Vol. 34. 1910. p. 318.
|
|
761.
|
Boyce and Breinl, Atoxyl and Trypanosomiasis.
In: Ann. Trop. Med. and Parasit. Vol. 2. 1908. p. 1. (Enthält einen
Ueberblick über die bis jetzt gewonnenen Resultate der verschiedenen
Autoren.)
|
|
762.
|
Ehrlich, P., Die Trypanosomen und ihre Bekämpfung.
In: Ber. Senckenberg. nat. Ges. Frankfurt a. M. 1909. p. 108*–111*.
|
|
763.
|
— Ueber den jetzigen Stand der Chemotherapie. In: Ber. d.
Deutsch. Chem. Ges. Jahrg. 42. Heft 1.
|
|
764.
|
— Ueber Partialfunktionen der Zelle. In: Münch. med.
Wochenschr. 1909. No. 5.
|
|
765.
|
— Ueber die neuesten Ergebnisse auf dem Gebiete der
Trypanosomenforschung. In: Arch. f. Schiffs- u. Trop.-Hyg. Vol. 13. 1909.
Beiheft 6. p. 91–116.
|
|
[S. 554]
766.
|
— Chemotherapeutische Trypanosomenstudien. In: Berl. klin.
Wochenschr. 1907. No. 9–12.
|
|
767.
|
— und Shiga, Farbentherapeutische Versuche bei
Trypanosomenerkrankung. Ibid. 1904. No. 13 u. 14.
|
|
768.
|
Koch, R., Bericht über die Tätigkeit der deutschen
Expedition zur Erforschung der Schlafkrankheit. In: Deutsche med.
Wochenschr. Jahrg. 33. 1907. No. 2.
|
|
769.
|
— Schlußbericht über die Tätigkeit etc. Ibid. No. 46.
|
|
770.
|
Laveran et Mesnil, Recherches sur le
traitement et la prévention du Nagana. In: Ann. Inst. Pasteur. Vol. 16.
1902. p. 785.
|
|
771.
|
Maja, Antonio, Le processus d’involution du
trypanosome du Surra après l’injection d’émétique et d’atoxyl. In: Compt.
rend. de la Soc. Biol. Vol. 67. 1909. p. 243.
|
|
772.
|
Mesnil et Nicolle, Traitement des
Trypanosomiases par les couleurs de Benzidine. In: Ann. Inst. Pasteur. Vol.
20. 1906. p. 417 u. 513.
|
|
773.
|
— — Traitement des infections expérimentales à Trypanosoma
gambiense. Ibid. Vol. 21. 1907. p. 946.
|
|
774.
|
— — et Aubert, Recherches sur le traitement des
infections expérimentales à Tryp. gambiense. Ibid. Vol. 21. 1907. p. 1.
|
|
775.
|
— et Brimont, Sur les propriétés des races de
trypanosomes résistantes aux médicaments. In: Ann. Inst. Pasteur. Vol. 22.
1908. p. 856.
|
|
776.
|
— — Sur les propriétés préventives du sérum des animaux
trypanosomiés. In: Compt rend. Soc. de Biol. Vol. 65. 1908. No. 25.
p. 77.
|
|
777.
|
Moore, Nierenstein and Todd,
Concerning the treatment of experimental Trypanosomiasis. In: Ann. Trop.
Med. and Parasit. Vol. 2. 1908. p. 265.
|
|
778.
|
Nissle, Blutparasiten und Erythrocytolyse. In:
Arch. f. Hyg. Vol. 45. p. 343.
|
|
779.
|
Schilling, C., Die Ehrlichsche Chemotherapie der
Protozoenkrankheiten. In: Therapeutische Monatshefte. Vol. 23. 1909.
H. 12.
|
|
780.
|
Thiroux et Laveran, Recherches sur le
traitement des Trypanosomiases. In: Ann. Inst. Pasteur. Vol. 22. 1908.
|
|
781.
|
Thomas, H. Wolferstan, Some experiments in the
treatment of Trypanosomiasis. In: Brit. med. Journ. May 1905. Vol. 1.
p. 1140.
|
|
782.
|
— — The experimental treatment of Trypanosomiasis in
Animals. In: Proceed. Roy. Soc. B. Vol. 76. 1905. p. 589.
|
|
783.
|
— and Breinl, Trypanosomes, Trypanosomiasis and
Sleeping Sickness. Memoir XVI. Liverpool School of Tropical Medicine. 1905.
|
|
784.
|
Thomson, S. D. and Cushny, A. R., On the
action of antimony compounds in Trypanosomiasis in rats: being a Report to
a Sickn. Committee of the tropical diseases Committee of the Royal Society.
In: Rep. Sickn. Comm. of the Roy. Soc. 1909. No. 10. p. 67–73.
|
8. Schriften über Polymastigina.
|
785.
|
Alexeieff, A., Un nouveau Trichomonas à quatre
flagelles antérieurs. In: Compt. rend. de la Soc. de Biol. Vol. 67. 1909. p.
713.
|
|
786.
|
— Un nouveau Trichomonas à quatre flagelles antérieurs
(T. Prowazeki n. sp.). In: C. R. Soc. Biol. Paris. Vol. 67. 1909. p.
712–714
|
|
787.
|
Bensen, W., Bau und Arten der Gattung Lamblia. In:
Zeitschr. Hyg. Infektkrankh. Vol. 61. 1908. p. 109.
|
|
788.
|
Blochmann, J., Bemerkungen über einige Flagellaten.
In: Zeitschr. wiss. Zool. Vol. 40. 1884. p. 42.
|
|
789.
|
Bütschli, O., Beiträge zur Kenntnis der Flagellaten
und einiger verwandter Organismen. Ibid. Vol. 30. 1878. p. 205.
|
|
790.
|
Dobell, Cl., On the intestinal Protozoon Parasites
of Frogs and Toads. In: Proc. Cambridge Philos. Soc. Vol. 14. 1908. p.
428.
|
|
791.
|
— Researches on the intestinal Protozoa of Frogs and Toads.
In: Quart. Journ. Micr. Sc. Vol. 53. 1909. Part 2. January. p. 201–277.
|
|
792.
|
Dolley, D. C., Gangrene of the lung with
Trichomonas intestinalis as the only apparent etiologic factor. In: Journ.
Americ. Med. Assoc. Vol. 55. 1910. No. 15. p. 1241–1246.
|
|
793.
|
Foà, A., Ricerche intorno a due specie di
flagellate parassiti. In: Atti R. Acc. Lincei. Vol. 13. 1904. p. 121.
|
|
794.
|
Grassi, R., Intorno ad alcuni protozoi
entoparassiti. In: Atti Soc. ital. Sci. nat. Milano. Vol. 24. 1882. p. 1.
und Arch. ital. Biol. Vol. 2. 1882. p. 402 u. Vol. 3. 1883. p. 23.
|
|
795.
|
Klebs vgl. No. 522 S. 545.
|
|
796.
|
Künstler, T., Observations sur le Trichomonas
intestinalis. In: Bull. scient. France et Belgique. Vol. 31. 1898.
|
|
[S. 555]
797.
|
Laveran et Mesnil, Sur la morphologie et la
systématique des flagellés à membrane ondulante. In: C. R. Ac. Sci. Paris.
Vol. 133. 1901. p. 131.
|
|
798.
|
Metzner, R., Untersuchungen an Megastoma entericum
aus dem Kaninchendarm. In: Zeitschr. wiss. Zool. Vol. 70. 1902. p. 299.
|
|
799.
|
Parisi, B., Su alcuni flagellati endoparassiti. In:
Arch. f. Protistenk. Vol. 19. 1910. p. 232.
|
|
800.
|
Prowazek, S. v., Untersuchungen über einige
parasitische Flagellaten. In: Arb. a. d. Kaiserl. Gesundheitsamte. Vol. 21.
1904. p. 1.
|
|
801.
|
Raff, S. W., Protozoa parasitic in the large
intestine of australian frogs. In: Proc. Roy. Soc. Victoria. Vol. 23. 1911.
N. S. Pt. 11. p. 586.
|
|
802.
|
Ucke, A., Trichomonaden und Megastomen im
Menschendarm. In: Centralbl. Bakt. Abt. I. Orig. Vol. 45. 1907. p. 231.
|
|
803.
|
Wenyon, Observations on the Protozoa in the
intestine of Mice. In: Arch. f. Protistenk. Suppl.-Bd. 1906. p. 169.
|
9. Schriften über Euglenoidina.
|
804.
|
Berliner, E., Flagellatenstudien. In: Arch. f.
Protistenk. Vol. 15. 1909. Heft 3.
|
|
805.
|
Blochmann, R., Ueber die Kernteilung bei Euglena.
In: Biol. Centralbl. Vol. 14. 1894. p. 194.
|
|
806.
|
Bütschli vgl. No. 520 S. 545.
|
|
807.
|
Dangeard, P. A., Recherches sur les Eugléniens. Le
Botaniste. 1901. p. 97.
|
|
808.
|
Dobell, C. C., The structure and life-history of
Copromonas subtilis nov. gen. et nov. spec. a Contribution to our Knowledge
of the Flagellata. In: Quart. Journ. Micr. Sc. (2.) Vol. 52. 1908.
p. 75–120.
|
|
809.
|
Haase, G., Studien über Euglena sanguinea. In:
Arch. f. Protistenk. Vol. 20. 1910. p. 47.
|
|
810.
|
Hamburger, A., Studien über Euglena Ehrenbergii,
insbesondere über die Körperhülle. In: Sitzber. Heidelberg Akad. Wiss. Math.
Nat. Cl. 1911. 4. Abh.
|
|
811.
|
Keuten, J., Die Kernteilung von Euglena viridis
Ehrbg. In: Zeitschr. wiss. Zool. Vol. 60. 1895. p. 215.
|
|
812.
|
|
|
813.
|
Senn vgl. No. 526 S. 545.
|
|
814.
|
Stein vgl. No. 528 S. 545.
|
|
815.
|
Steuer, A., Ueber eine Euglenoide (Eutreptia) aus
dem Canale grande von Triest. In: Arch. f. Protistenk. Vol. 3. 1903. p.
126.
|
|
816.
|
Zumstein, Zur Morphologie und Physiologie der
Euglena gracilis Klebs. In: Jahrb. wiss. Botanik. Vol. 84. 1896. p. 149.
|
10. Schriften über Chromomonadina.
|
817.
|
Bohlin, Knut, Zur Morphologie und Biologie
einzelliger Algen. In: Ofversigt Kgl. Svenska Vet. Ak. Förhandl. 1897.
No. 9.
|
|
818.
|
Brunnthaler, J., Die koloniebildenden
Dinobryon-Arten. In: Verh. K. K. zool.-bot. Ges. Wien. Vol. 51. 1902.
p. 293.
|
|
819.
|
Bütschli vgl. No. 789 S. 554.
|
|
820.
|
Dangeard, P., Recherches sur les Cryptomonadinae et
les Euglenae. Le Botaniste. 1889. Vol. 1. p. 1.
|
|
821.
|
Fisch vgl. No. 582 S. 547.
|
|
822.
|
Iwanoff, L., Beiträge zur Kenntnis der Morphologie
und System. der Chrysomonadinen. In: Bull. Ac. Imp. St. Pétersbourg. Ser.
11. 1899. p. 247.
|
|
823.
|
Klebs vgl. No. 522. S. 545.
|
|
824.
|
Lauterborn vgl. No. 852. S. 556.
|
|
825.
|
Lohmann, H., Die Coccolithophoridae, eine
Monographie der Coccolithen bildenden Flagellaten. In: Arch. f. Protistenk.
Vol. 1. 1902. p. 89.
|
|
826.
|
Oltmans vgl. No. 524. S. 545. Dort weitere
Literatur.
|
|
826a.
|
Pascher, A., Einige neue Chrysomonaden. In: Ber. d.
Dtsch. Bot. Ges. Vol. 27. 1909.
|
|
826b.
|
— Ueber einige Fälle vorübergehender Koloniebildung bei
Flagellaten. Ibid. Vol. 28. 1910. H. 7. p. 339–350.
|
|
826c.
|
— Der Großteich bei Hirschberg in Nordböhmen. I.
Chrysomonaden. In: Monogr. u. Abhandl. Z. intern. Rev. d. ges.
Hydrobiol. u. Hydrographie. Vol. 1. 1910.
|
|
827.
|
Schaudinn, F., vgl. No. 80. p. 131.
|
|
827a.
|
Scherffel, A., Beiträge zur Kenntnis der
Chrysomonadineen. In: Arch f. Protistenk. Vol. 22. 1911. H. 3. p.
299–344.
|
|
828.
|
Senn vgl. 526. S. 545.
|
|
829.
|
Stein vgl. No. 528. S. 545.
|
|
830.
|
Winter, F., vgl. No. 82. p. 131. Dort auch weitere
Literatur über symbiotische Formen.
|
|
831.
|
Ueber Silicoflagellaten s.
Borgert, A., Ueber die Dictyochiden. In: Zeitschr. wiss. Zool. Vol.
51. 1891. p. 629.
|
[S. 556]
11. Schriften über Phytomonadina.
|
832.
|
Blochmann, F., Ueber eine neue Haematococcus-Art.
Habilitationsschrift. Heidelberg 1886. Auch: Verh. Naturh.-Med. Vereins.
Vol. 3. p. 1.
|
|
833.
|
— Kleine Mitteilungen über Protozoen. In: Biol. Centralbl.
Vol. 14. 1894. p. 82.
|
|
834.
|
Bütschli vgl. No. 520. S. 545.
|
|
835.
|
Chatton, E., Pleodorina californica à Banyuls sur
mer. Son cycle evolutif et sa signification phylogénique. In: Bull. Sci.
France et Belg. Ser. 7. Vol. 44. 1911. p. 309.
|
|
836.
|
Cohn, F., Die Entwicklungsgeschichte der Gattung
Volvox. In: Beitr. z. Biol. d. Pflanzen. Vol. 3. 1875. p. 101.
|
|
837.
|
— und Wichura, Ueber Stephanosphaera pluvialis. In:
Nova Acta Leopold. Carol. Vol. 261. 1. Nachtr. 1857.
|
|
838.
|
Dangeard, Mémoire sur les Chlamidomonadinées. Le
Botaniste. Vol. 6. 1898. p. 65.
|
|
839.
|
— Observations sur la structure et le développement du
Pandorina morum. Ibid. Vol. 7. 1900. p. 193.
|
|
840.
|
— Le polytoma uvella. Ibid. Vol. 8. 1901. p. 1.
|
|
841.
|
Francé, R., Studien zur Systematik der
Chlamydomonadinen. In: Bot. Centralbl. Vol. 55. 1893. p. 392.
|
|
842.
|
— Die Polytomeen, eine morphologisch-entwicklungsgeschichtliche
Studie. In: Pringsheims Jahrb. Vol. 26. 1894. p. 295.
|
|
843.
|
Goroschankin, Beiträge zur Kenntnis der Morphologie
und Systematik der Chlamydomonaden. I u. II. Bull. d. l. Soc. Imp.
Naturalistes. Moscou 1890. p. 101. 1891. p. 1.
|
|
844.
|
Hazen, E., The life-history of Sphaerella lacustris
(Haematococcus pluvialis). In: Mem. Torrey Bot. Club. New York. Vol.
6. 1899.
|
|
845.
|
Hieronymus, G., Ueber Stephanosphaera pluvialis
Cohn. In: Cohn, Beitr. z. Biol. d. Pflanzen. Vol. 4. 1884. p. 51.
|
|
846.
|
Klein, L., Vergleichende Studien über die
Morphologie und Biologie der Fortpflanzung bei der Gattung Volvox. In: Ber.
d. naturf. Ges. zu Freiburg i. B. Vol. 5. 1888. p. 29.
|
|
847.
|
— Morphologische und biologische Studien über die Gattung
Volvox. In: Pringsheims Jahrb. Vol. 20. 1889. p. 133.
|
|
848.
|
— Neue Beiträge zur Kenntnis der Gattung Volvox. In: Ber.
d. Deutsch. bot. Ges. Vol. 7. 1889. p. 42.
|
|
849.
|
Kofoid, L. A., Plankton studies II. On Pleodorina
illinoisensis, a new species from the Plankton of the Illinois River.
In: Bull. Ill. State Lab. Nat. Hist. Vol. 5. 1898. p. 273.
|
|
850.
|
— III. On Platydorina, a new genus of the family
Volvocidae. Ibid. Vol. 5. 1899. No. 9.
|
|
851.
|
Krassiltschick, J., Zur Entwicklungsgeschichte und
Systematik der Gattung Polytoma Ehrbg. In: Anat. Anz. Vol. 5. 1882.
p. 426.
|
|
852.
|
Lauterborn, R., Protozoenstudien IV. Flagellaten
aus dem Gebiet des Oberrheins. In: Zeitschr. wiss. Zool. Vol. 65. 1899. p.
370.
|
|
853.
|
Merton, Ueber den Bau und die Fortpflanzung von
Pleodorina illinoisensis. Ibid. Vol. 90. 1908.
|
|
854.
|
Meyer, A., Ueber den Bau von Volvox aureus und V.
globator. In: Bot. Centralbl. Vol. 63. 1895. p. 225.
|
|
855.
|
Migula, Beitrag zur Kenntnis des Gonium pectorale.
In: Bot. Centralbl. Vol. 43. 1890.
|
|
856.
|
Oltmans vgl. No. 524. S. 545. Daselbst weitere
Literatur.
|
|
857.
|
Overton, Beitrag zur Kenntnis der Gattung Volvox.
In: Bot. Centralbl. Vol. 39. 1889. p. 65.
|
|
858.
|
Pringsheim, N., Ueber die Paarung von Schwärmsporen
etc. In: Monatsber. d. K. Ak. d. Wiss. Berlin. 1869. p. 721.
|
|
859.
|
Prowazek, S. v., Die Kernteilung und Vermehrung der
Polytoma. In: Oesterr. bot. Zeitschr. Vol. 51. 1901. No. 2. p. 51.
Nachträgliche Bemerkung hierzu ibid. p. 400.
|
|
860.
|
Reichenow, E., Untersuchungen an Haematococcus
pluvialis, nebst Bemerkungen über andere Flagellaten. In: Arb. a. d. Kais.
Gesundheitsamte. Vol. 33. 1909. p. 1.
|
|
861.
|
Schroeder, B., Pandorina morum, ihre
ungeschlechtliche Vermehrung und ihre Parasiten. In: Schles. Ges. f. vaterl.
Kultur. 1898. 8. Dez.
|
|
862.
|
Shaw, W. R., Pleodorina, a new genus of the
Volvocideae. In: Botanic. Gazette. Vol. 19. 1894. p. 278.
|
|
863.
|
Wills, On the structure and life history of Volvox
globator. In: Midland Naturalist III. 1880.
|
|
[S. 557]
864.
|
Wollenweber, W., Das Stigma von Haematococcus. In:
Ber. Deutsch. Bot. Ges. Vol. 25. 1907.
|
|
865.
|
— Untersuchungen über die Algengattung Haematococcus.
Ibid. Vol. 26. 1908.
|
12. Dinoflagellaten.
|
866.
|
Apstein, C., Knospung bei Ceratium tripos var.
Subsalsa. In: Internat. Revue der ges. Hydrobiol. u. Hydrogr. Vol. 3. 1910.
p. 34.
|
|
867.
|
Bergh, R. S., Der Organismus der Cilioflagellaten.
In: Morph. Jahrb. Vol. 7. 1882. p. 178.
|
|
868.
|
Borgert, A., Kern- und Zellteilung bei marinen
Ceratium-Arten. In: Arch. f. Protistenk. Vol. 20. 1910. p. 1.
|
|
869.
|
Bütschli, O., Einige Bemerkungen über gewisse
Organisationsverhältnisse der Cilioflagellaten und der Noctiluca. In:
Morph. Jahrb. Vol. 10. 1885. p. 529.
|
|
870.
|
Caullery, M., Ellobiopsis Chattoni, parasite de
Calanus helgolandicus, appartenant probablement aux Péridiniens. In: Bull.
Sci. France et Belgique. Sér. 7, Vol. 44. 1910. p. 201.
|
|
871.
|
Chatton, E., Les Blastodinides, ordre nouveau de
Dinoflagellés parasites. In: C. R. Ac. Sci. Paris. Vol. 143. 1906. p.
981.
|
|
872.
|
— Nouvel aperçu sur les Blastodinides (Apodinium
myceloides n. g. n. sp.). Ibid. Vol. 144. 1907. p. 238.
|
|
873.
|
— Paradinium Poucheti flagellé parasite d’Acartia Clausi.
In: C. R. Soc. Biol. Vol. 69. 1910. p. 341.
|
|
874.
|
— Sur l’éxistence de Dinoflagellés parasites coelomiques.
Les Syndinium chez les Copépodes pélagiques. In: C. R. Ac. Sci. Paris
1910.
|
|
875.
|
Dangeard, M., La nutrition animale des Péridiniens.
In: Le Botaniste. Vol. 3. 1892. p. 6.
|
|
876.
|
Dogiel, V., Beiträge zur Kenntnis der Peridineen.
In: Mitt. Zool. Stat. Neapel. Vol. 18. 1906. p. 1.
|
|
877.
|
Entz, G., Ueber die Organisationsverh. einiger
Peridineen. In: Math. u. Naturw. Abh. aus Ungarn. Vol. 25. 1907.
(1909). p. 246.
|
|
878.
|
— Beiträge zur Kenntnis der Peridineen. Ibid. Vol. 30.
1910. p. 96.
|
|
879.
|
Jollos, V., Dinoflagellatenstudien. In: Arch. f.
Protistenk. Vol. 19. 1910. p. 178.
|
|
879a.
|
Jörgensen, E., Die Ceratien. Eine kurze Monographie.
In: Internat. Revue der ges. Hydrobiologie. Biol. Suppl. Ser. 2 zu Vol. 4.
1911. S. 1.
|
|
880.
|
Klebs, G., Ueber die Organisation der
Flagellatengruppen. In: Unters. a. d. bot. Inst. Tübingen. Vol. 1. 1883.
p. 233.
|
|
881.
|
Kofoid, C. A., On the significance of the asymmetry
of the Dinoflagellata. In: Univ. California Public. Zoology. Vol. 3. No. 8.
1906. p. 127.
|
|
882.
|
— Exuviation, Anatomy and Regeneration in Ceratium. Ibid.
Vol. 4. 1908. p. 345.
|
|
883.
|
— New Species of Dinoflagellata. In: Bull. Mus. Comp. Zool.
Harvard. Vol. 50. 1907. p. 163, und weitere Schriften dieses Autors.
|
|
884.
|
— On Peridinium Steini Jörg. with a note on the
nomenclature of the skeleton of the Peridinidae. In: Arch. f. Protistenk.
Vol. 16. 1909. p. 25.
|
|
885.
|
— The structure and systematic position of Polykrikos
Bütschli. In: Zool. Anz. Vol. 31. 1907. p. 291.
|
|
886.
|
Küster, E., Eine kultivierbare Peridinee. In: Arch.
f. Protistenk. Vol. 11. 1908.
|
|
887.
|
Lauterborn, R., Protozoenstudien. 1. Kern- und
Zellenteilung von Ceratium hirundinella. In: Zeitschr. wiss. Zool.
Vol. 59. 1895. p. 167.
|
|
888.
|
Plate, L., Pyrodinium bahamense n. g. n. sp. Die
Leuchtperidinee des Feuersees von Nassau, Bahamas. In: Arch. f.
Protistenk. Vol. 7. 1906. p. 411.
|
|
889.
|
Pouchet, G., Sur l’évolution des Péridiniens et les
particularités qui les rapprochent des Noctilucques. In: C. R. Acad.
Sci. Paris. Vol. 95. 1882. p. 794.
|
|
890.
|
— Contribution à l’histoire des Cilioflagellés. In: Journ.
Anat. Physiol. Paris. Vol. 19. 1883. p. 399.
|
|
891.
|
— Nouvelle contribution à l’histoire des Péridiniens
marins. Ibid. Vol. 21. 1885. p. 28.
|
|
892.
|
— Quatrième contribution à l’histoire des Périd. Ibid.
Vol. 23. 1887. p. 87.
|
|
893.
|
— Cinquième contribution à l’histoire des Périd. Ibid.
Vol. 28. 1892. p. 143.
|
|
894.
|
— Sur l’œil des Péridiniens. In: C. R. Soc. Biol. Paris
(7). Vol. 3. 1886. p. 223.
|
|
895.
|
Schilling, A., Untersuchung über die tierische
Lebensweise einiger Peridineen. In: Ber. d. Bot. Ges. Vol. 9. 1891.
p. 199.
|
|
896.
|
— Die Süßwasserperidineen. In: Flora. 1891. p. 220.
|
|
897.
|
Schütt, F., Ueber die Sporenbildung mariner
Peridineen. In: Ber. D. Bot. Ges. Vol. 5. 1887. p. 364.
|
|
898.
|
— Ueber Peridineenfarbstoffe. Ibid. Vol. 8. 1890. p. 9.
|
|
[S. 558]
899.
|
— Ueber Organisationsverhältnisse des Plasmaleibs der
Peridineen. In: Sitz.-Ber. Akad. Berlin. 1892. p. 377.
|
|
900.
|
— Die Peridineen der Planktonexpedition. Kiel und Leipzig
1895.
|
|
901.
|
— Peridiniales. In: Engler u. Prantl, Die natürlichen
Pflanzenfamilien. I. Teil. 1. Abt. C. 1896.
|
|
902.
|
Stein, F., Der Organismus der Infusionstiere. 3.
Abt. 2. Hälfte. Leipzig 1883.
|
|
903.
|
Zederbauer, E., Geschlechtliche und
ungeschlechtliche Fortpflanzung von Ceratium hirundinella. In: Ber. D. Bot.
Ges. Vol. 22. 1904. p. 1.
|
13. Schriften über Cystoflagellaten.
|
904.
|
Bütschli, O., Einige Bemerkungen über einige
Organisationsverhältnisse der sog. Cilioflagellaten und der Noctiluca. Mit
einem Beitrag von E. Askenasy. In: Morphol. Jahrb. Vol. 10. 1885. p. 529.
|
|
905.
|
Calkins, G. N., Mitosis of Noctiluca miliaris and
its bearing on the nuclear relations of the Protozoa and Metazoa. In: Journ.
of Morphol. Vol. 15. 1899. p. 711.
|
|
906.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen IV. Zur Morphologie und Physiologie der Kern- und Zellteilung.
Nach Untersuchungen an Noctiluca und anderen Organismen. In: Zool. Jahrb.
Abt. Anat. Vol. 14. 1900. p. 1. Auch separat in Zell- und Protoplasmastudien.
Heft 1. Jena.
|
|
907.
|
Hertwig, R., Ueber Leptodiscus medusoides, eine
neue, den Noctilucen verwandte Flagellate. In: Jen. Zeitschr. f. Naturw.
Vol. 11. 1877. p. 307.
|
|
908.
|
Ishakawa, Vorläufige Mitteilungen über die
Konjugationserscheinungen bei den Noctiluceen. In: Zool. Anz. Vol.
14. 1891. p. 12.
|
|
909.
|
— Studies of reproductive elements. II. Noctiluca miliaris
Sur., its division and spore formation. In: Journ. Coll. Science. Univ.
Tokyo. Vol. 6. Pt. 4. 1894. p. 297.
|
|
910.
|
— Further observations on the nuclear division of
Noctiluca. Ibid. Vol. 12. Pt. 4. 1899. p. 243.
|
|
911.
|
Kofoid, C. A., Craspedotella, a new genus of the
Cystoflagellata, an example of convergence. In: Bull. Mus. Comp. Zool.
Harvard. Vol. 46. No. 9. 1905. p. 163.
|
|
912.
|
Mingazzini, P., Contributo alla conoscenza dei
Cistoflagellati: Radiozoum lobatum. In: Ricerche Lab. Anat. Roma etc.
Vol. 10. 1904. 97.
|
|
913.
|
Pouchet, M., Sur l’évolution des Péridiniens et les
particularités d’organisation, qui les rapprochent des Noctilucques. In:
C. R. Ac. Sci. Paris. Vol. 95. 1882. p. 794.
|
|
914.
|
— Contributions à l’histoire des Noctilucques. In: Journ.
Anat. Physiol. Paris. 26. Année. 1890. p. 104.
|
|
915.
|
Robin, Ch., Recherches sur la réproduction
gemmipare et fissipare des Noctilucques. In: Journ. Anat. Physiol. Vol. 14.
1878. p. 563.
|
14. Schriften über Trichonymphiden.
|
916.
|
Comes, S., Lophophora vacuolata (Comes) nuovo
genere e nuova specie di flagellato dell’ intestino dei termiti. Boll. Accad.
Gioenia Sc. nat. Catania (2). 1910. Fasc. 13. p. 11–19.
|
|
917.
|
— Alcune considerazioni citologiche a proposito del
dimorfismo sessuale riscontrato in Dinenympha gracilis Leidy (N. pr.). Ibid.
(2). 1910. Fasc. 13. p. 20–29.
|
|
918.
|
Foà, Ricerchi sulla riproduzione dei Flagellati II.
Processo di divisione delle Triconimfe. Rendic. Atti Accad. Lincei. Ser. 5.
Vol. 13. Fasc. 12.
|
|
919.
|
— Due nuovi Flagellati parassiti. Ibid. Vol. 14. Fasc. 10.
|
|
920.
|
— e Grassi, Ricerche sulla riproduzione dei
flagellati 1. Processo di divisione delle Joenie. In: Rendic. R. Acc. Lincei.
Vol. 13. 1904. p. 241.
|
|
921.
|
Grassi, B., Intorno ad alcuni Protisti parassiti
dei Termitidi. In: Att. Gioenia Sci. Nat. Vol. 18. 1885. p. 464.
|
|
922.
|
— Intorno ad alcuni protozoi parassiti delle Termiti. Att.
Accad. Gioenia Sci. Nat. Catania. Ser. 3. Vol. 18. 1885.
|
|
923.
|
— e Foà, Ricerche sulla riproduzione dei Flagellati.
I. Processo di divisione della Joenia e forme affini. Rendic. Atti Accad.
Lincei. Ser. 5. Vol. 13. Fasc. 5. 2 sem.
|
|
924.
|
— e Sandias, Costitutione e sviluppo della Società
dei Termitidi. Atti Accad. Gioenia Catania 1893. 1896 übersetzt in Quart.
Journ. Microscop. Science. Vol. 39, 40.
|
|
925.
|
Janicki, C., Untersuchungen an parasitischen
Flagellaten. I. Teil. Lophomonas blattarum Stein, L. striata Bütschli.
Zeitschr. wiss. Zool. Vol. 95. 1910. p. 243–315.
|
|
926.
|
— Zur Kenntnis des Parabasalapparates bei parasitischen
Flagellaten. In: Biol. Centralbl. Vol. 31. 1911. p. 32.
|
|
[S. 559]
927.
|
— Contribuzione alla conoscenza di
alcuni protozoi parassiti della Periplaneta orientalis. In: Rend. R. Acc.
Lincei. Vol. 17. Ser. 5a. 2ᵒ. sem. fasc. 3ᵒ. p. 140.
|
|
928.
|
Kent, W. S., Notes on the infusorial Parasites of
the Tasmanian white Ant. Tap. and Proc. Roy. Soc. Tasmania 1884. Abgedr.
in Ann. u. Wag. Nat. Hist. Ser. 5. Vol. 15. p. 450.
|
|
929.
|
Leidy, J., The parasites of the Termites. In:
Journ. Acc. Nat. Sci. Philadelphia. N. S. Vol. 8. 1877. p. 425.
|
|
930.
|
— On intestinal parasites of Termes flavipes. Proc. Acad.
Nat. Sc. Philadelphia. 1877.
|
|
931.
|
Porter, J. F., Trichonympha and other parasites of
Termes flavipes. In: Bull. Mus. Comp. Zool. Cambridge. Vol. 31. 1897.
p. 47.
|
15. Schriften über Mastigamöben.
|
932.
|
Frenzel, J., Untersuchungen über die mikroskopische
Fauna Argentiniens. 1. Die Protozoen. In: Bibl. Zoologica. Heft 12. 1892.
|
|
933.
|
Goldschmidt, R., Lebensgeschichte der Mastigamöben
Mastigella vitrea und Mastigina setosa. In: Arch. f. Protistenk. Suppl.-Bd.
I. 1906. p. 83.
|
|
934.
|
Sabrazès et Muratet, Flagellés de l’intestin
du cheval et de l’âne. In: Gaz. hebd. des Sc. méd. de Bordeaux. 1908. p.
374.
|
|
935.
|
Goldschmidt, R., Lebensgeschichte der Mastigamöben
Mastigella vitrea und Mastigina setosa. In: Arch. f. Protistenk. Suppl.-Bd.
I. 1906. p. 83.
|
[25] Vielleicht handelt es sich in diesen Fällen um Trichomonas hominis. Siehe dieses weiter unten.
[26] Auf Grund der von Schaudinn entwickelten theoretischen Vorstellungen bezeichnen manche Autoren auch den Blepharoplast als Kinetonucleus = Bewegungskern, und den eigentlichen Kern des Trypanosoms als Trophonucleus = Stoffwechselkern. Bei Durchführung dieser Terminologie wird dann das Basalkorn als Blepharoplast bezeichnet, was leicht zu Mißverständnissen Anlaß geben kann.
[27] Plimmer und Bradford beschreiben diese beiden Bildungen, indem sie dieselben Makro- und Mikronucleus nennen.
[28] = Glaucidium noctua (Retz).
[29] Entz, Francé u. a. sind der Ansicht, daß die Vakuole nur der Ausdruck einer Duplikatur am unteren Ende des Trichters sei, bedingt durch dessen spiral-dütenförmigen Bau, welcher von ihnen mit dem Trichter von Spirochona verglichen wird. Ich halte diese Auffassung nicht für richtig. Daß verschiedene Auffassungen möglich sind, ist durch die sehr geringe Größe der Objekte bedingt.
[30] Während Prowazek annahm, daß der Achsenstab sich bei der Teilung zu einem kurzen Gebilde zusammenzieht und sich dann quer zu seiner ursprünglichen Längsachse streckt, wird er nach Dobells Beobachtungen resorbiert, und aus der Substanz des Blepharoplasten entstehen die Achsenstäbe der beiden Tochtertiere.
[31] Wahrscheinlich mit T. hominis identisch sind die drei von Steinberg in der Mundhöhle des Menschen unterschiedenen Trichomonas elongata, T. caudata und T. flagellata (Kiewer Zeitschr. f. gegenwärtige Medizin. Sowremenaja Medicina 1862, No. 21–24 [russisch]).
[32] Hierzu ist zu bemerken, daß die Cellulosereaktionen nicht sicher sind; vor allem bei älteren Zellmembranen sind sie nicht zu erzielen. Bei manchen Stadien und bei Cysten sind sie jedoch wiederholt nachgewiesen worden.
[33] Die Panzersubstanz gibt nicht alle Cellulosereaktionen in einwandfreier Weise, ist aber jedenfalls der Cellulose sehr nahestehend.
[S. 560]
II. Klasse.
Rhizopoda von Siebold.
Die Rhizopoden oder Wurzelfüßler verdanken ihren Namen der Eigenschaft, daß ihr Körperplasma wurzelartige Fortsätze ausstreckt, welche die Bewegung vermitteln und durch Umfließen die Nahrung in das Körperinnere aufnehmen. Diese Pseudopodien, ihre Formen und Bewegungsweisen sind im allgemeinen Teil (S. 29 ff.) ausführlich besprochen worden. Alle Bewegungen der Rhizopoden werden durch das Fließen von Pseudopodien vermittelt, sie dienen auch der Nahrungsaufnahme, indem ihre weiche Substanz das Nahrungsstück allseitig umfließt und so in das Körperplasma aufnimmt. Dieser Tatsache entsprechend ernährt sich denn auch die große Mehrzahl der Rhizopoden holozoisch.
Weit verbreitet unter den Rhizopoden sind Skelettbildungen, welche die zartesten und schönsten Formen annehmen können und welche aus verschiedenartigen Substanzen bestehen. Im Gegensatz zu den Flagellaten kommen bei den Rhizopoden vielkernige Formen nicht selten vor.
Die Größe der Individuen ist sehr verschieden; sie schwankt zwischen wenigen µ und mehreren Millimetern. Kolonienbildung und plasmodiale Verschmelzungen können manchmal erheblich größere Dimensionen verursachen.
Die bisher beschriebenen Fortpflanzungserscheinungen bei Rhizopoden sind sehr mannigfaltig und gestatten keine einheitliche Darstellung. Zweiteilung und multiple Teilung, auch Knospung, sind weit verbreitet. Die geschlechtlichen Vorgänge, welche für Heliozoen am genauesten erforscht sind, ergeben einen großen Gegensatz zwischen diesen und vielleicht den Amöbinen einerseits und den Foraminiferen und Radiolarien andererseits. Bei der Gametenbildung wird für letztere, besonders die Foraminiferen, allgemein die Bildung der Gametenkerne aus Chromidien angegeben. Wenn sich die von mir allerdings mit einigem Zweifel angeführten Deutungen von Schaudinn, Hertwig, Goldschmidt, Prowazek, Hartmann u. a. bestätigen lassen, so wird auch für die Einteilung der Rhizopoden ein wichtiger Gesichtspunkt gewonnen sein.
Nach der Form der Pseudopodien, der allgemeinen Körperform, etwaigen Skelettbildungen und nach den Fortpflanzungserscheinungen [S. 561]unterscheidet man gegenwärtig 4 oder 5 Ordnungen der Rhizopoden:
- 1) Amoebina,
- 2) Heliozoa,
- 3) Radiolaria,
- 4) Foraminifera und
- 5) Mycetozoa.
Nur die erste und letzte dieser Ordnungen kommen als Parasiten in Betracht. Die Mycetozoen oder Myxomyceten werden zwar meist zu den Protophyten gerechnet; die Art und Weise ihres Parasitismus ließ aber eine Erörterung gemeinsam mit den Protozoen wünschenswert erscheinen.
In der Literatur finden sich wiederholt Angaben über Parasitismus von Angehörigen der anderen Ordnungen. Dieselben haben sich aber meist nicht bestätigt. Ob aber parasitische Rhizopoden von dieser oder jener Ordnung der freilebenden abzuleiten sind, wird immer schwer zu entscheiden sein; denn die Rückbildungen infolge der parasitischen Lebensweise und die Anpassungen an dieselbe werden gerade diejenigen Charaktere verwischen, welche für die betreffende Ordnung bezeichnend sind.
Die äußere Erscheinungsweise eines Rhizopoden ist so sehr von den Lebensbedingungen abhängig, daß sie mit denselben verschwindet. Wie sollte eine kalkschalige Foraminifere in einem kalkfreien Medium, ein Radiolar ohne freies Wasser zum pelagischen Leben existieren? Während die Radiolarien zu einseitig angepaßt sind, um ein parasitisches Leben annehmen zu können, muß ein parasitisches Foraminifer oder Heliozoon notwendigerweise einer Amöbine gleichen, so daß es unmöglich ist, etwaige Parasiten aus den drei letztgenannten Ordnungen scharf auseinander zu halten. In welchem Maß das sogar bei einem nicht vollkommen angepaßten Parasiten der Fall ist, wird aus dem unten erörterten Fall der Chlamydophrys stercorea ersichtlich.
I. Ordnung:
Amoebina.
(Ehrenberg).
Unter dem Namen der Amöben fassen wir Protozoen zusammen, welche der beständigen Formveränderung ihres Körpers bei der Bewegung diese Bezeichnung verdanken. Dieselben besitzen im Innern des Plasmaleibes einen oder mehrere Kerne; man unterscheidet mehr oder minder deutlich voneinander getrennt Ekto- und Entoplasma. Die Amöben sind stets nackt, d. h. sie besitzen weder Membranen noch Hüllen oder Gehäuse. Die Fortbewegung geschieht entweder durch Vorwärtsströmen der ganzen Plasmamasse oder durch Aussenden von feineren oder größeren Pseudopodien.
Die Zugehörigkeit eines Organismus zu den Amöbinen ist schwer zu bestimmen, da sehr viel andere Protozoen in ihrem Lebenszyklus ein amöboides Stadium durchlaufen, und da außerdem in normalen und pathologischen Geweben höherer Tiere amöboide Zellen sehr häufig sind.
Je nach den Arten ist das Protoplasma dünnflüssig oder zäher; auch nach physiologischen oder entwicklungsgeschichtlichen Zuständen kann die Konsistenz des Plasmas wechseln. Formen mit zähflüssigem [S. 562]Protoplasma bilden meist nur wenige breite Pseudopodien oder fließen, mit der ganzen Masse ihres Körpers gleichsam ein einziges Pseudopodium bildend, vorwärts. Formen mit dünnflüssigem Plasma bilden nicht selten lange, dünne, oft verzweigte Pseudopodien. Stets handelt es sich aber um Lobopodien resp. Filopodien, Rhizopodien kommen nicht vor. Somit kann die Form des bewegten Amöbenkörpers linsenförmig, abgeplattet eiförmig, bandförmig, breit gelappt, fein gelappt, hirschgeweihförmig, sternförmig, baumförmig und ganz unregelmäßig zerschlissen erscheinen. Im Ruhezustand nehmen die Amöben mehr oder minder vollkommene Kugelform an.
Das Konsistenzverhältnis von Ekto- und Entoplasma kann ebenfalls sehr wechselnd sein und ebenso ihr Mengenverhältnis. Es kann bei sehr zähem Ektoplasma sehr flüssiges Entoplasma vorkommen, in anderen Fällen sind beide Schichten fast gleich flüssig. Während in manchen Fällen eine breite Ektoplasmaschicht deutlich erkennbar ist, ist in anderen eine solche überhaupt nicht sichtbar. Manche Amöben besitzen eine so zähe äußerste Schicht des Ektoplasmas, daß sie fast wie eine pellikulare Hautschicht sich darstellt oder tatsächlich als Pellicula zu bezeichnen ist.
Der Kern der Amöben ist meist von ovalem oder kreisförmigem Umriß, vielfach von oben nach unten stark abgeflacht. Er enthält einen stark färbbaren Binnenkörper, welcher von einer schwächer färbbaren Mantelhülle umschlossen wird (Fig. 493). Für immer mehr Amöben ist eine mitotische Teilung des Kerns beschrieben worden, doch wird für einige Formen auch Amitose, für andere Promitose (vgl. S. 148) angegeben.
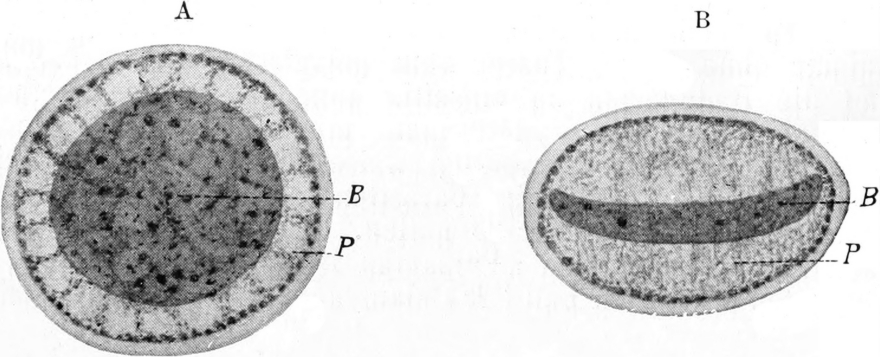
Die meisten Amöben sind einkernig, Pelomyxa binucleata ist zweikernig — ihre beiden Kerne teilen sich genau gleichzeitig — Pelomyxa palustris und andere Formen sind vielkernig. Es ist möglich, daß die kleinen Amöben zum Teil monoenergid sind, während die großen Arten mit einem großen Kern eventuell polyenergide Kerne besitzen (vgl. S. 243).
Die Bewegung wird ausschließlich durch die Pseudopodienbildung vermittelt, wobei ein klebriges Sekret zur Fixation an der Unterlage dient.
Zur Nahrungsaufnahme dienen ebenfalls die Pseudopodien, welche durch Umfließen die Nahrungskörper an beliebigen Stellen der Körperoberfläche ins Plasma aufnehmen.
[S. 563]
Kontraktile Vakuolen sind in einem oder 2–3 Exemplaren vorhanden; bei parasitischen und marinen Formen fehlen sie meist.
Die agame Fortpflanzung der Amöben erfolgt durch einfache Zweiteilung nach vorhergegangener Zweiteilung des Kerns. Doch kommt auch multiple agame Teilung vor, wobei entweder frei oder encystiert die Amöbe wahrscheinlich immer durch Mitose, vielleicht aber in manchen Fällen auch durch multiplen Kernzerfall vielkernig wird, worauf ein Zerfall des Körpers in ebensoviel kleine Amöben als Kerne vorhanden sind, erfolgt. Die jungen Amöben weichen nicht selten in Plasmabeschaffenheit und Kernstruktur von den ausgewachsenen Tieren ab. Meist gehen sehr zahlreiche agame Teilungen vor sich, ehe geschlechtliche Vorgänge sich einstellen.
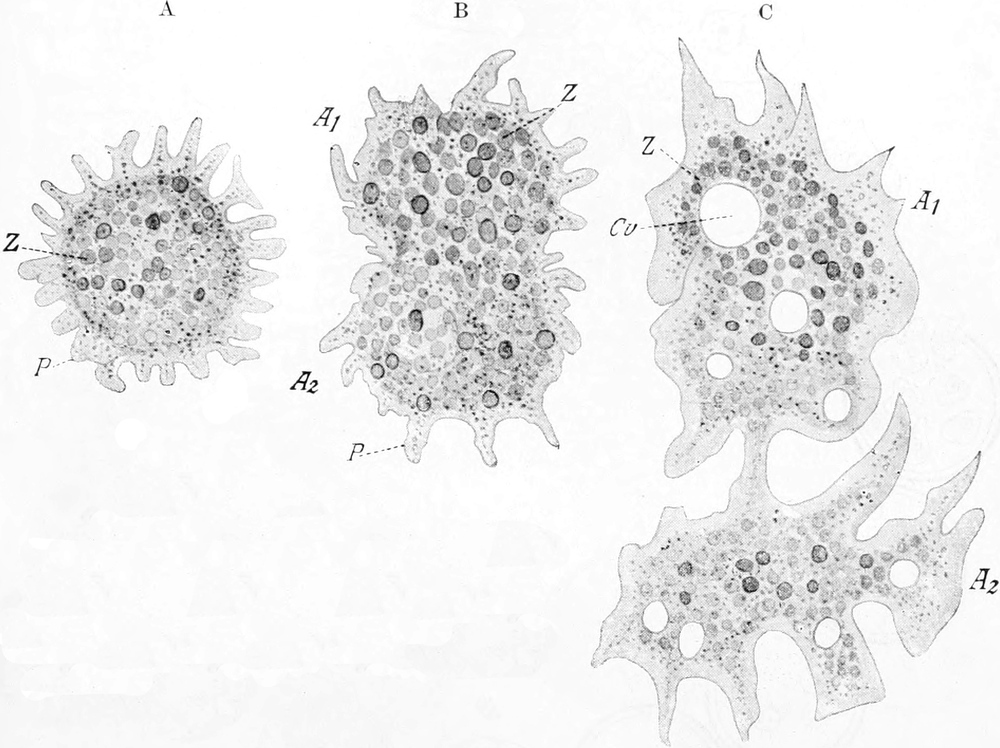
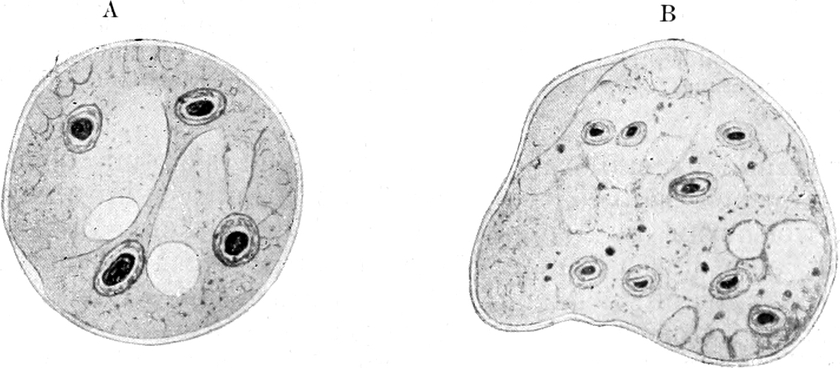
[S. 564]
Daher sind solche bisher noch fast gar nicht bei Amöben beobachtet worden. Schaudinn hat bei Entamoeba coli beobachtet, daß ein einkerniges Individuum nach erfolgter Encystierung durch sehr eigenartige Vorgänge zu einer Autogamie oder Selbstbefruchtung gelangt. Der einzige Kern der Amöbe, welche unter Abkugelung alle Fremdkörper ausgestoßen und sich mit einer Gallerthülle umgeben hat, teilt sich zunächst mitotisch in zwei Tochterkerne, welche an die beiden Pole der Cyste rücken. Zwischen ihnen entsteht eine linsenförmige Lücke; dadurch erscheint der Amöbenkörper in zwei unvollständig getrennte Gameten geteilt.
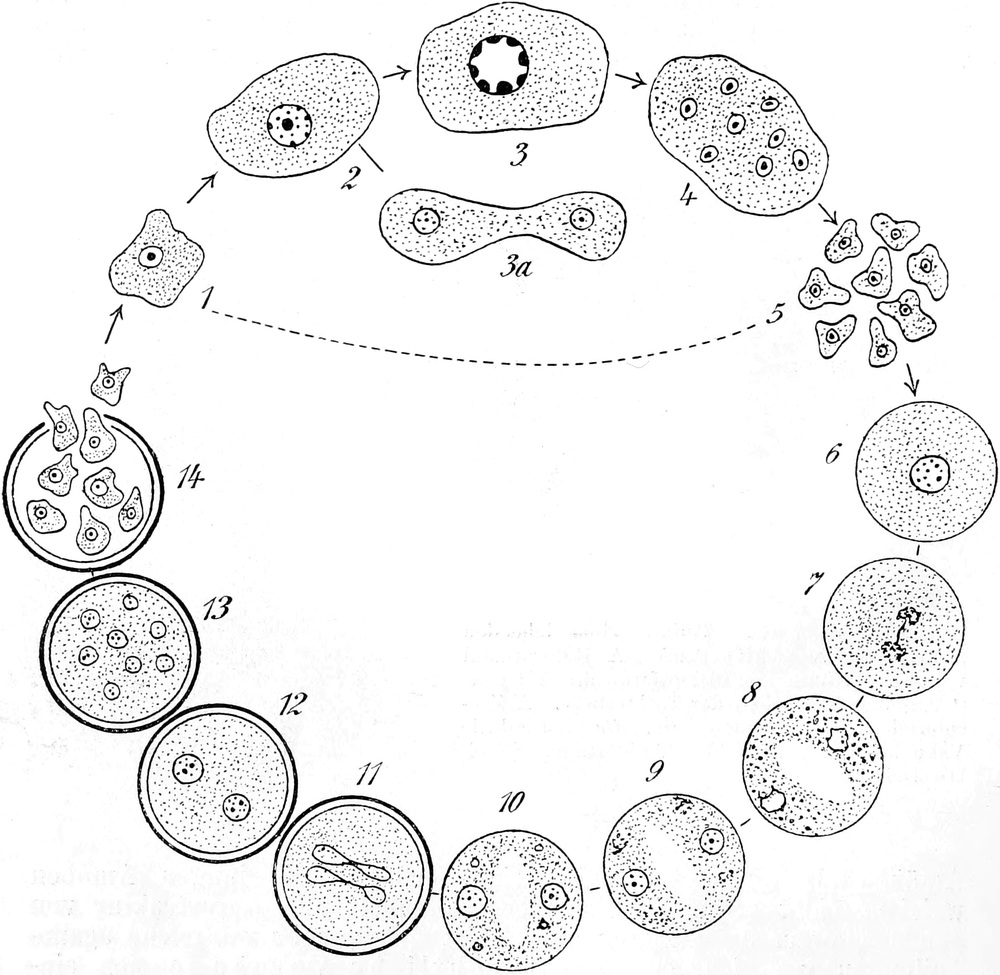
Deren Kerne geben den größten Teil ihres Chromatins unter Chromidienbildung an das Plasma ab. Die Gametenkerne teilen sich hintereinander zweimal mitotisch und bilden so zwei Reduktionskerne, welche ausgestoßen oder resorbiert werden.
[S. 565]
Um diese Zeit bildet sich eine feste Cystenhülle. Innerhalb derselben verschwindet die Spalte im Protoplasma, beide Gameten verschmelzen miteinander. Jeder der beiden Kerne teilt sich wiederum mitotisch; die entstehenden eigentümlich langgestreckten Spindeln stellen sich parallel zueinander. Die aus zwei benachbarten Spindelpolen entstehenden beiden Tochterkerne vereinigen sich nun zu je einem Befruchtungskern oder Synkaryon. Es ist also ganz ähnlich wie bei den Ciliaten eine Doppelbefruchtung erfolgt, wobei in jedem Gameten ein stationärer Kern (weiblich) und ein Wanderkern (männlich) sich bildete.
Nach der Befruchtung erfolgen zwei mitotische Teilungen der Kerne, so daß aus den zwei Befruchtungskernen 8 Kerne entstehen. Dieselben werden beim Platzen der Cyste zu den Kernen von 8 jungen Amöben, in welche der Cysteninhalt zerfällt. Dieselben wachsen heran, teilen sich dann von neuem und eröffnen damit wieder den agamen Abschnitt des Zeugungskreises.
Neuerdings sind weitere Beobachtungen über geschlechtliche Vorgänge bei Amöben gemacht worden. Nägler und Hartmann haben solche z. B. bei Amoeba diploïdea, einer eigenartigen zweikernigen Art beschrieben. Im freien Zustand teilt sie sich, indem die beiden Kerne sich stets simultan teilen, so daß sie immer zweikernig bleibt (Fig. 497 A–C).
Bei der Encystierung vereinigen sich zwei zweikernige Individuen (Fig. 498 A); in jedem derselben verschmelzen die beiden Kerne (Fig. 498 B). Darauf erfolgen an jedem Kern Reifungserscheinungen (Fig. 498 C), worauf sie sich aneinanderlagern, aber nicht verschmelzen, so daß aus der Cyste wiederum ein zweikerniges Individuum auskriecht (Fig. 498 D). Diese Erscheinungen werden so gedeutet, daß die Gametenkerne während des ganzen vegetativen Lebens in unverschmolzenem Zustand nebeneinander liegen bleiben, um erst unmittelbar vor einer neuen Befruchtung ein Synkaryon zu bilden. An die Synkaryonbildung schließt sich direkt die Reduktion an.
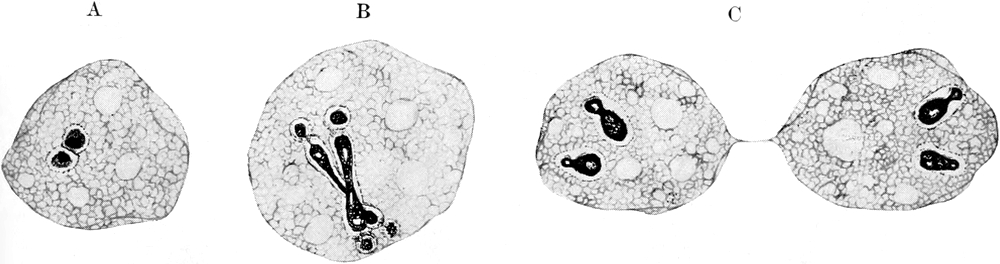
Eigenartige Vorgänge bei einer einkernigen freilebenden Amöbe Amoeba mira Gl. sind wohl jedenfalls als Stadien der Kopulation zu deuten. Die A. mira schreitet nach einem von dem vegetativen abweichenden Kernteilungsvorgang in zweikernigem Zustand zur Encystierung (Fig. 499 A u. B). Während der eine Kern zugrunde geht, macht der andere Veränderungen durch, welche auffallend an die Reifungsvorbereitungen von Geschlechtszellen höherer Tiere erinnern [S. 566](Fig. 499 C–G). Dann teilt er sich in 4 Tochterkerne, von denen wieder 3 zugrunde gehen (Fig. 499 H–L), während der letzte offenbar den Gametenkern darstellt (Fig. 499 M), so daß beim Ausschlüpfen aus der Cyste die Kopulation zu erwarten ist, welche allerdings bisher noch nicht beobachtet worden ist.
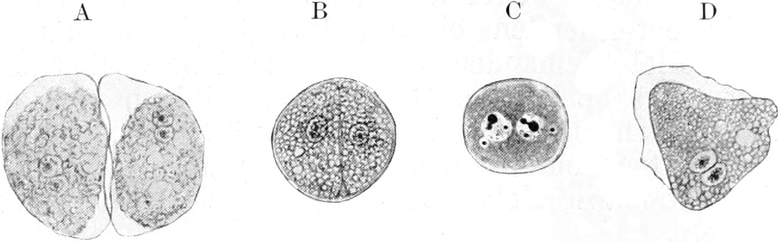
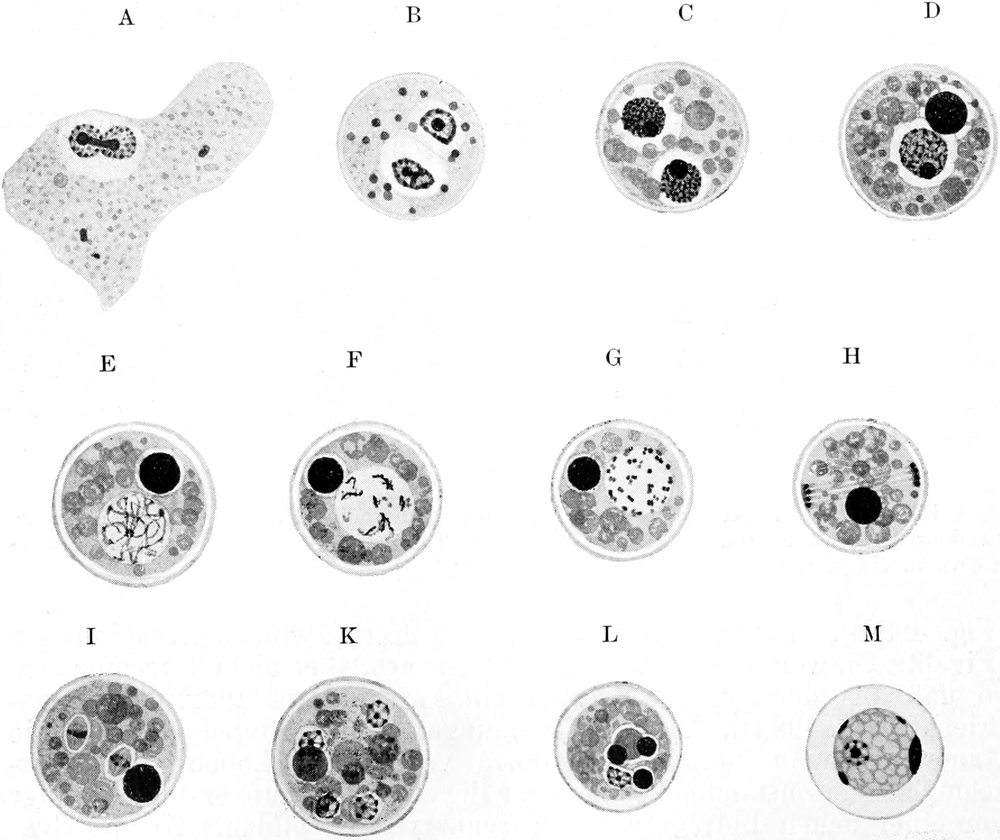
[S. 567]
Schließlich sei noch hervorgehoben, daß für größere Amöbenformen, so für A. proteus, Gametenbildung nach Analogie der entsprechenden Prozesse bei Foraminiferen und Rhizomastiginen beschrieben worden sind. Calkins u. a. nahmen an, daß Sekundärkerne im Plasma der Amöbe auftreten und zu den Kernen der Gameten werden. Damit ist die Vielgestaltigkeit der für Amöbinen beschriebenen Kopulationstypen nicht erschöpft. So werden amöboide und flagellentragende Gameten beschrieben etc.
Die Differenzen in den beschriebenen Vorgängen können auf verschiedene Ursachen zurückgeführt werden. Es können erstens unrichtige Beschreibungen und unrichtige Deutungen vorliegen, zweitens können die Verschiedenheiten ein Ausdruck davon sein, daß in der Ordnung der Amöbinen sehr heterogene Formen vereinigt sind. Schließlich können sie damit zusammenhängen, daß sich in ihnen die Stufen eines Entwicklungsprozesses spiegeln, die etwa von monoenergiden Formen zu solchen mit polyenergiden Kernen führen.
Es ist aber auf alle Fälle hervorzuheben, daß trotz energischer Bemühung zahlreicher Forscher die Fortpflanzungsverhältnisse der Amöben noch recht ungenau erforscht sind.
Zur Biologie der Amöben ist hervorzuheben, daß manche Formen sehr anpassungsfähig sind, doch finden wir im allgemeinen stets bestimmte Formen unter bestimmten Lebensverhältnissen, so daß wir annehmen können, daß die freilebenden Formen äußeren Verhältnissen gegenüber nicht gleichartig reagieren. Die Süßwasser- und Meeresformen finden wir meist im Schlamm oder auf demselben; dabei ziehen manche Formen, wie A. vespertilio, diatomeen- und algenreiches frisches Wasser vor, während A. proteus in bakterienreichen etwas fauligen Gewässern vorkommt und Pelomyxa palustris stark fauligen Schlamm bewohnt. Eine ganze Anzahl Formen sind in feuchtem Sand, in Erde und in Moosrasen gefunden worden, so Amoeba terricola Greeff.
Zahlreiche Formen sind parasitisch und finden sich hauptsächlich in den im Dienste der Ernährung stehenden Hohlräumen des Körpers von Wirbellosen und Wirbeltieren, besonders im Darm. Eine ganze Anzahl von Formen findet sich auch im Menschen, wo sie zu gefährlichen Krankheitserregern werden können.
Der verschiedene Aufenthaltsort der Arten hängt zum großen Teil mit der Art ihrer Ernährung zusammen. Viele Arten ernähren sich vorwiegend von Pflanzen (Diatomeen, Algen), andere sind Bakterienfresser, viele fressen vorwiegend Protozoen; so läßt sich A. proteus sehr gut mit Arcellen, Difflugien und vor allem Paramäcien ernähren. Auch alle möglichen kleinen Tiere und Larven, so Würmer, Rotatorien, Cyclopiden und Daphnien werden von manchen Amöben gern gefressen (Amoeba vespertilio, A. Dofleini, s. Fig. 101, S. 87). Auch Kannibalismus, besonders das Auffressen von Jungen oder Cysten der eigenen Art habe ich oft beobachtet.
Die Schlammbewohner, wie Pelomyxa, nehmen den ganzen Schlamm mit seinem Gehalt an lebender und toter organischer Substanz in ihren Körper auf, wobei die brauchbaren Bestandteile verwertet werden.
Eine ganze Reihe von Arten, welche in fauligen Substanzen, in Lohe, in Erde etc. oder halbparasitisch im Darm von Tieren vorkommen, kann man leicht in ziemlich reinen Kulturen auf Agarplatten [S. 568](Agar 0,5, Leitungswasser 90,0, gewöhnliche alkalische Nährbouillon 10,0) züchten: auf denselben ernähren sie sich von den stark wuchernden Bakterien und vermehren sich bei einer Temperatur von 25° C in 1 bis 2 Tagen in üppigster Weise. Nach Frosch fressen sie nur lebende Bakterien, wobei sie nicht wählerisch sind und auch pathogene Formen nehmen; tote Bakterien verschmähen sie: sie fressen auch nicht Bestandteile des Nährbodens.
Die Parasiten bewohnen vielfach in ähnlicher Weise als Detritusfresser den Darm ihrer Wirte und werden nur bei Gelegenheit anderer Erkrankungen zu Schädigern derselben. Doch scheint es, daß manche Formen, wie Entamoeba histolytica, auch gegen die gesunden Gewebe aggressiv vorgehen und dadurch zu sehr gefährlichen Krankheitserregern werden.
Die parasitischen Formen werden meist nach ihren Wirten unterschieden; doch können wir heute noch keineswegs sagen, bis zu welchem Grad sie von ihnen abhängig sind und ob nicht manche Arten zum Freileben oder zur Uebertragung auf andere Wirte geeignet sind. Durch Experimente ist nachgewiesen, daß die Entamoeba coli des Menschen auch im Darm der Katze gedeiht.
Den äußersten Gegensatz zu der parasitischen Ernährung finden wir bei denjenigen Formen, welche durch Zoochlorelleninfektion unabhängig von einer beständigen Nahrungszufuhr von außen werden. Gruber hat die Amoeba viridis Leidy jahrelang, Doflein die künstlich infizierte A. vespertilio ¾ Jahr lang gezüchtet. Die Amöben konnten sich vollkommen ohne weitere Nahrung halten, solange sie im Licht gezüchtet wurden. Die Ernährung erfolgte durch Verdauung der stets nachwachsenden Zoochlorellen.
Da die Amöben noch so wenig erforscht sind, zudem der Zeugungskreis erst von wenigen Formen annähernd vollständig bekannt ist, kann jede systematische Einteilung nur eine provisorische sein. Bei der großen Zahl der unterschiedenen Arten ist es aber notwendig, eine Anzahl von Gattungen jetzt schon zu unterscheiden, wobei der Habitus und Bau der agamen Stadien, sowie die Lebensweise als Grundlage dient.
Eine Einteilung in Familien hat sich bisher noch nicht als notwendig erwiesen: die Zahl der gegenwärtig unterschiedenen Gattungen ist eine geringe, von denen hauptsächlich Amoeba, Entamoeba, Paramoeba, Pelomyxa hervorzuheben sind.
Die geographische Verbreitung der Amöben ist noch sehr wenig klargestellt, was mit der Unsicherheit der Amöbensystematik zusammenhängt. Die Süßwasserformen scheinen kosmopolitisch zu sein. Die marinen Formen sind bisher nur in den europäischen Gewässern untersucht und da noch sehr mangelhaft. Die parasitischen Formen des Menschen scheinen ihre Hauptverbreitung in den warm-gemäßigten und heißen Gegenden der Erde zu haben.
Gattung: Amoeba Ehrenberg.
In dieser Gattung werden Formen von sehr verschiedenartigem Aussehen zusammengefaßt, deren Zusammengehörigkeit sich aber auf Grund unserer heutigen Kenntnisse weder beweisen noch widerlegen läßt, da wir von kaum einer einzigen die vollständige Lebensgeschichte kennen. Wir vereinigen in der Gattung Amoeba alle freilebenden, [S. 569]nackten einkernigen[34] Amöbinen ohne Glanzkörper, aber mit kontraktiler Vakuole; es gibt sehr große (bis 600 µ) und sehr kleine (6–10 µ) Amoeba-Arten, solche mit ganz geringer Pseudopodienbildung und solche, bei denen der ganze Körper in zahlreiche feine Verästelungen geteilt ist.
Das Plasma ist sehr verschieden in Färbung, Lichtbrechung, Konsistenz und Inhaltsgebilden. Der Kern zeigt meist deutlich Binnenkörper und periphere Substanz.
Die Ernährung der Amoeba-Arten ist eine sehr verschiedenartige; stets erfolgt sie aber durch Aufnahme fester Körper, als Detritus, Schlamm, tote und lebende Pflanzen und Tiere oder deren Teile. Die einzelnen Amöbenarten sind zwar sehr anpassungsfähig an wechselnde Lebensbedingungen, doch gedeihen die meisten Formen besonders gut unter speziellen Lebensbedingungen, z. B. Amoeba Proteus in fauligem, bakterienreichem Wasser, A. verrucosa und vespertilio in klarem Wasser, zwischen Algen und Diatomeen. Andere Formen, wie A. crystalligera, sind Bewohner des Meerwassers.
Die freilebenden Amöben des Süßwassers scheinen meist kosmopolitisch verbreitet zu sein.
Die Amöbenarten werden meist nach ihrer Pseudopodienform, dem Zähigkeitsgrad von Ekto- und Entoplasma, den Einschlüssen des letzteren, sowie der Form des Kerns charakterisiert. Alle diese Merkmale können mit den Lebensverhältnissen variieren, und zwar innerhalb sehr weiter Grenzen. Trotzdem gelingt es, eine größere Anzahl von Arten der Gattung zu unterscheiden, wenn auch allzuviele Formen mit besonderen Namen belegt worden sind. Aus der großen Fülle beschriebener Arten greifen wir einige besonders gut charakterisierte Formen heraus, welche in der Literatur öfter genannt sind, dem Studierenden oft in der Natur begegnen mögen und auch aus verschiedenen Gründen theoretisches Interesse besitzen.
Amoeba Proteus Pallas.
|
1755.
|
Der kleine Proteus Rösel von
Rosenhof.
|
|
1766.
|
Volvox Proteus Pallas.
|
|
1879.
|
Amoeba Proteus (Rös.)
Leidy. Freshwater Rhizopods of North America. In:
U. S. Geol. Survey of the Territories. Vol. 12.
|
|
1902.
|
Amoeba Proteus (Rös.)
Penard, E., in: Faune Rhizopodique du Bassin du
Leman. p. 57.
|
Diese schöne, große Amöbenart ist eine der bestcharakterisierten Formen und ist in der Literatur außerordentlich oft als Musterbeispiel für die Amöben erwähnt.
Amoeba Proteus gehört zu den großen Amöben; sie erreicht oft einen Durchmesser von 200–500 µ. Die Art ist ausgezeichnet durch zahlreiche, dicke, stumpfe Pseudopodien, welche oft den größten Teil des Körpers ausmachen. Ihr Plasma ist glasig bis milchigweiß gefärbt, deutlich in Ektoplasma und Entoplasma getrennt, welch letzteres durch Nahrungskörper und vor allem durch zahllose kleine Exkretionskristalle dunkel, fast schwärzlich gefärbt sein kann. Es ist im gewöhnlichen Leben nur ein Kern vorhanden, welcher ein sehr charakteristisches Aussehen besitzt; er ist ungefähr linsenförmig gestaltet und zeigt eine sehr auffallende Anordnung der großen Chromatinbrocken [S. 570]in peripherer Substanz und Binnenkörper (s. Fig. 493, S. 562). Die Kernteilung ist als Mitose beschrieben.
Das dünnflüssige Entoplasma enthält oft sehr zahlreiche große Nahrungs- und Flüssigkeitsvakuolen. Es ist regelmäßig eine kontraktile Vakuole vorhanden.
Die Vermehrung geht durch Zweiteilung vor sich, doch ist auch eine starke Kernvermehrung (auf 20–200 Kerne) ohne unmittelbar folgende Körperteilung beschrieben, so daß möglicherweise auch multiple agame Teilung vorkommt. Ueber geschlechtliche Vorgänge ist nichts bekannt. Plasmogamie mit gleichzeitiger Abkugelung ist häufig, doch wird sie meist nach kurzer Zeit wieder aufgehoben.
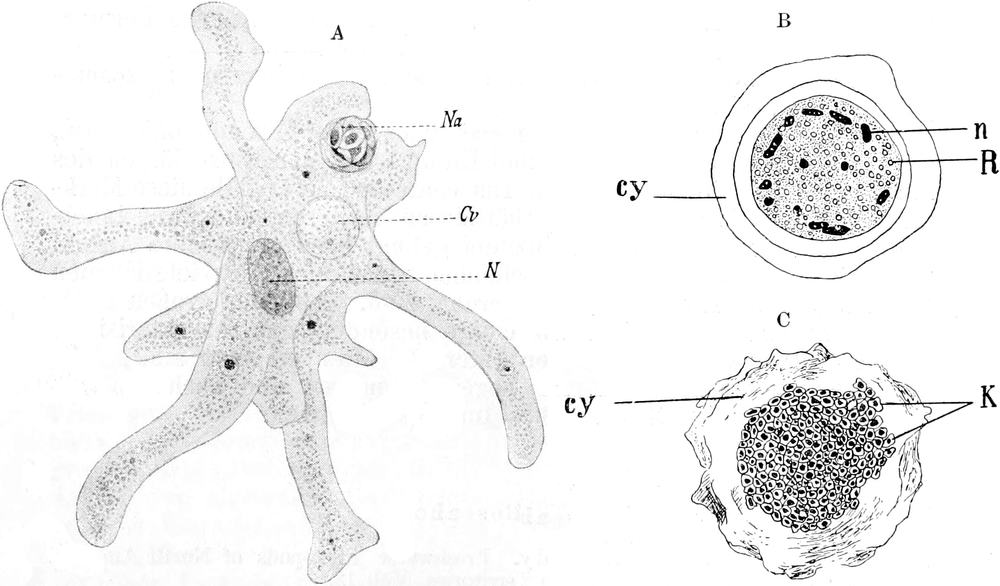
Eigentümliche Vermehrungsvorgänge hat Scheel (1899) für diese Amöbe beschrieben. Viele Individuen encystieren sich in enger Nachbarschaft; die Cystenhüllen sind vielschichtig und derb. Die einkernigen Individuen wandeln ihre Kerne in der Cyste in verästelte chromidienähnliche Stränge um, welche schließlich in zahlreiche kleine Kerne zerfallen. Jeder derselben umgibt sich mit einer kleinen Plasmamasse, welche zu einer kleinen Amöbe wird, deren 200–250 die Cyste verlassen. Die jungen Individuen der A. Proteus haben radiär ausstrahlende, feine zugespitzte Pseudopodien.
A. Proteus kommt am Grund stehender Süßwasseransammlungen, besonders von Teichen und Tümpeln häufig vor; am besten gedeiht sie in leicht fauligen bakterienreichen Gewässern. In Uhrglaskulturen ist sie leicht zu züchten. Doch erfordert ihre Fütterung große Aufmerksamkeit. Sie frißt große Mengen von Algen, Bakterien, Arcellen und anderen [S. 571]Thalamophoren, sowie Infusorien. Ein Individuum von A. Proteus ist imstande, mehrere Paramäcien zu fangen und zu bewältigen.
Die Art ist in Europa und Amerika gefunden worden. Eine genaue Feststellung ihrer Lebensgeschichte ist sehr erwünscht.
Amoeba verrucosa Ehrenberg.
|
1838.
|
Ehrenberg, Die Infusionstierchen
als vollkommene Organismen. Berlin.
|
|
1898.
|
Rhumbler, Analyse der
Lebenserscheinungen der Zelle. I. In: Arch. f. Entwicklungsmech. Vol. 7.
p. 103.
|
A. verrucosa ist viel kleiner als Proteus: 80–100 µ. Es ist eine träge Form mit dickflüssigem Ektoplasma und dicker Hautschicht. Sie ist gelblich bis weißlich durchsichtig, von einfachen Umrissen mit wenig kurzen Pseudopodien, welche lamellenförmig, abgerundet sind und vielfach dem Tier ein faltiges oder schrumpliges Aussehen verleihen.
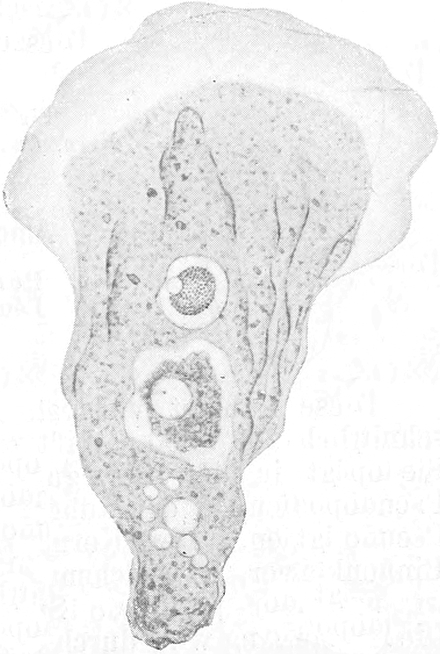
Der Kern ist relativ groß, oval bis rundlich; er besitzt einen sehr stark färbbaren Binnenkörper, einen exzentrischen Nucleolus und schwach färbbare, zarte periphere Substanz. Das Entoplasma weist meistens nicht sehr viele Vakuolen auf. Eine kontraktile Vakuole ist stets vorhanden.
Die Teilung von Kern und Plasma ist neuerdings durch Glaeser untersucht worden (vgl. Fig. 156, S. 153).
Häufig in algenreichen Gewässern; frißt Diatomeen etc. Beschrieben aus Deutschland und Nordamerika.
Der Amoeba verrucosa steht eine ganze Gruppe von Amöben nahe, welche durch dicke, zähe, bei der Bewegung faltenbildende Pellicula ausgezeichnet sind. Sie kommen nicht selten in Moor und feuchter Erde vor. Zu ihnen gehört die A. terricola Greeff, in die Nähe wird auch die eigenartige, oben behandelte, zweikernige A. diploidea H. und N. gestellt.
Amoeba crystalligera Gruber.
|
1884.
|
Gruber, A. Amöbenstudien. In:
Zeitschr. wiss. Zool. Vol. 41. p. 219.
|
|
1894.
|
Schaudinn, F. Ueber Kernteilung
mit nachfolgender Körperteilung bei A. crystalligera
Gruber. In: Sitzungsber. der K. Pr. Akad. d. Wiss.
Berlin. p. 1029.
|
Diese kleine marine Amöbe führe ich deswegen an, weil sie zu den wenigen Amöben gehört, deren Teilungsvorgang genauer studiert worden ist. Der Umriß des Tieres ist ein einfacher, da nur wenige breite bruchsackförmige Pseudopodien gebildet werden. Die Größe beträgt 50–80 µ. Entoplasma und Ektoplasma sind nicht immer deutlich voneinander geschieden. Das Entoplasma ist von blassen Körnchen und zahlreichen rechteckigen Kristallplättchen erfüllt, welch letztere [S. 572]dem Tier seinen Namen verschafft haben; sie können eine Größe von 7–8 µ erreichen. Eine kontraktile Vakuole wird von Gruber erwähnt (?).
Besonders charakteristisch ist der kuglige, 10–20 µ im Durchmesser aufweisende Kern, dessen Binnenkörper sehr schwach färbbar ist, während die periphere Zone sehr chromatinhaltig ist.
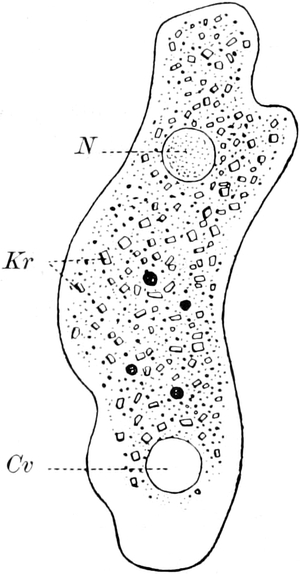
Nur die gewöhnliche Zweiteilung ist bisher bekannt, bei welcher das Tier sich einfach durchschnürt; der Kern teilt sich in der Weise, daß Binnenkörper und periphere Substanz sich beide in die Länge strecken und durchschnüren, ohne daß es in einem der Teile zur Bildung einer mitotischen Figur käme.
Meerwasser. Ostsee. Mittelmeer.
Amoeba vespertilio Penard.
|
1902.
|
Penard, E., Faune rhizopodique
du Bassin du Léman. Genf.
|
|
1907.
|
Doflein, in: Arch. f.
Protistenkunde, Suppl.-Bd. 1. p. 251.
|
Diese äußerst vielgestaltig auftretende Amöbe, welche durchschnittlich 200–300 µ mißt, gehört zu den häufigen Süßwasserformen. Sie zeigt in der Bewegung meist dreieckig-spitzige, zipfelförmige Pseudopodien, in der Ruhe radiär ausgestreckte, oft sehr lange, dünne Pseudopodien. Der Kern ist rundlich; er enthält einen kugligen Binnenkörper, in welchem die Hauptmasse des Chromatins vereinigt ist, und eine periphere Substanz, welche wenig Chromatin enthält. Die Zweiteilung wird durch eine kuglige Zusammenziehung des Körpers eingeleitet, bei welcher die langen Pseudopodien verschwinden und durch zahlreiche zottenförmige Fortsätze ersetzt werden. Bei der Kernteilung teilt sich zuerst der Binnenkörper mitotisch. Nach erfolgter Kernteilung erfolgt die Zweiteilung des Körpers oft erst nach längerer Zeit.
Ruhecysten sind kuglig mit dünner gallertiger Membran; außerdem ist multiple agame Teilung beobachtet, bei welcher die abgekugelten, oft von einer gallertigen Hülle umschlossenen Amöben durch wiederholte Kernteilung 8-kernig werden, worauf Zerfall des Amöbenkörpers in 8 junge Amöben erfolgt.
Geschlechtliche Vorgänge sind noch unbekannt.
Die Art ist in Deutschland und der Schweiz in Sumpf- und in Moorwasser gefunden worden.
Amoeba limax. Penard.
Unter dem Namen von Amoeba limax werden in der Literatur eine Anzahl von Amöben zitiert, welche wahrscheinlich ganz verschiedenartiger Natur sind. Zum Teil bilden sie eine Gruppe zusammengehöriger Organismen, welche in fauligen Flüssigkeiten (Infusionen, Kot etc.) weit verbreitet sind, zum Teil handelt es sich um Stadien und Zustände von ganz differenten Organismen, welche die [S. 573]einfache Form der A. limax annehmen können. Sie alle sind dadurch charakterisiert, daß sie bei der Vorwärtsbewegung eine fingerförmige Gestalt annehmen. Für einzelne hierher gehörige Formen sind Angaben über Fortpflanzung, Cystenbildung etc. durch Vahlkampf, Hartmann u. a. gegeben worden.
Hervorzuheben ist, daß die hierher gehörigen Formen vielfach halbparasitisch vorkommen, daß man sie besonders leicht aus Faeces des Menschen und von verschiedenen Tieren züchten kann. Wahrscheinlich passieren sie, da sie eigentlich freilebenden Formen zuzurechnen sind, nur im encystierten Zustand den Darm, um im Enddarm oder in den bereits abgesetzten Faeces auszuschlüpfen. Hierher zu rechnen ist z. B. Amoeba lacertae (Hartm.). Ferner gehört in die Nähe die einzige bisher beschriebene ektoparasitische Amöbe A. mucicola Chatton, eine wahrscheinlich fakultativ parasitische Form von den Kiemen mariner Fische. Merkwürdig ist die große Verschiedenheit im Teilungstypus der Kerne bei den hierher gerechneten Amöben, was doch darauf hinweist, daß sie nicht so ganz nahe zusammengehören (vgl. A. limax nach Vahlkampf, A. diplomitotica nach Aragao, A. lacertae, A. Froschi, A. hyalina Dang. nach Hartmann).
Gattung: Entamoeba Cas. u. Barb.
|
1897.
|
Casagrandi u.
Barbagallo, in: Annali d’Igiene sperimentale. Vol.
7. p. 103.
|
|
1903.
|
Schaudinn, in: Arb. a. d. Kais.
Gesundheitsamt. Vol. 19. p. 563.
|
Durch die Untersuchungen F. Schaudinns ist festgestellt worden, daß im Darm des gesunden und kranken Menschen mindestens drei Arten von amöbenartigen Organismen vorkommen, auf deren Verschiedenheit auf klinische Beobachtungen hin zwar frühere Untersucher schon aufmerksam geworden waren, welche aber dennoch infolge des Mangels an sicheren Anhaltspunkten stets zusammengeworfen wurden.
Der eine dieser Organismen gehört zu den Thalamophoren (Chlamydophrys stercorea Cienk., s. unten). Die beiden anderen werden von Schaudinn in die Gattung Entamoeba gestellt. Dieser Forscher sah E. coli als gewöhnlich harmlosen Kommensalen des menschlichen Darms an, während er in E. histolytica den Erreger der gefährlichen Tropendysenterie erblickte.
Die Gattung Entamoeba ist noch unvollkommen charakterisiert und abgegrenzt. Sie dient praktischerweise vorläufig zur Aufnahme aller derjenigen im Innern von anderen Tieren lebenden Rhizopoden, welche mit lappigen Pseudopodien versehen sind, nackten Leib besitzen, während ihres ganzen vegetativen Lebens amöboide Beweglichkeit aufweisen und mit Hilfe von Dauercysten sich verbreiten.
Die in verschiedenen Tieren gefundenen Darmamöben scheinen sich nach den bisher vorliegenden Beschreibungen nicht sehr auffallend voneinander zu unterscheiden. Es ist daher sehr wohl möglich, daß eine spätere Zeit viele von ihnen als Formen erkennen wird, welche mehreren Wirten gemeinsam sind. Es ist diese Annahme um so naheliegender, als es z. B. experimentell gelingt, Darmamöben des Menschen auf Katzen zu übertragen. Aber vorläufig müssen wir, um Verwirrungen zu vermeiden, die einzelnen Formen auseinander halten, soweit sie in der Natur bei einem besonderen Wirt gefunden werden [S. 574]und solange ihre Uebereinstimmung mit anderen Arten nicht einwandfrei nachgewiesen ist.
Entamoeba coli (Lösch emend. Schaudinn).
|
1875.
|
Lösch, F., Massenhafte
Entwicklung von Amöben im Dickdarm. In: Virchows Arch. f. path. Anat. Vol.
65. p. 196.
|
|
1879.
|
Grassi, I protozoi parassiti e
specialmente quelli chi sono nel uomo. In: Gaz. Med. ital. Lombardia.
p. 445.
|
|
1882.
|
Grassi, Intorno ad alcuni
protiste endopar. ed appartenenti alle classi etc. In: Atti Soc. ital. Sci.
nat. Milano. Vol. 24. p. 135.
|
|
1893.
|
Schuberg, Die parasitischen
Amöben des menschlichen Darms. In: Centralbl. Bakt. Vol. 13. p. 598,
654, 701.
|
|
1897.
|
Casagrandi u.
Barbagallo, Entamoeba hominis etc. In: Ann. Ig.
sperim. Vol. 5. p. 103.
|
|
1903.
|
Schaudinn, F., Untersuchungen
über die Fortpflanzung einiger Rhizopoden. In: Arb. a. d. K. Ges.-Amt.
Vol. 19. p. 647.
|
|
1905.
|
Kartulis, Die Amöbendysenterie.
In: Kolle u. Wassermann, Handb. d. pathog. Mikroorg. I. Erg.-Bd. p. 347.
|
Entamoeba coli hat in der Regel einen einfach gestalteten, wenig gelappten Umriß; sie ist glasartig durchscheinend, gelblichweiß (nach Craig blaßgrau) gefärbt, soweit nicht Inhaltskörper den Farbton beeinflussen, ihr Plasma ist stark lichtbrechend.
Die Größe von E. coli wird von den verschiedenen Autoren sehr verschieden angegeben. Während die jungen Individuen 7–15 µ im Durchmesser haben, scheinen die erwachsenen Individuen bis 70 µ zu messen. Größen darüber werden nicht angegeben; 25–35 µ scheinen die Durchschnittsgrößen zu sein. E. coli ist also — verglichen mit den oben beschriebenen freilebenden Amöben — eine recht kleine Amöbenart.
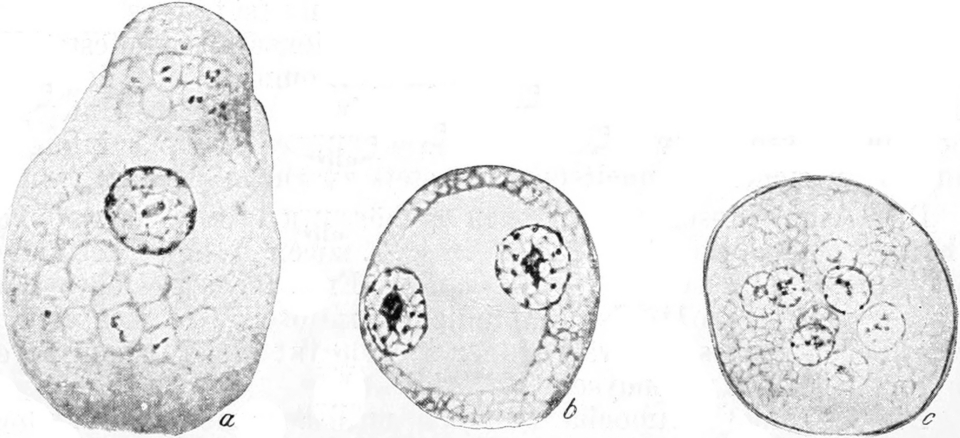
Das Plasma von E. coli ist schwach granuliert, deutlich alveolär gebaut. Bei der ruhenden Amöbe erkennt man keine Sonderung in Ektoplasma und Entoplasma; sobald aber das Tier sich in Bewegung setzt, tritt eine solche hervor: die einfachen, breitlappigen Pseudopodien, deren nur 1–3 in der Regel gebildet werden, bestehen aus hyalinem, im Verhältnis zum jetzt sich sondernden Entoplasma relativ schwach lichtbrechendem Ektoplasma; im gefärbten Präparat ist letzteres ebenfalls stets viel blasser als ersteres.
Der Kern ist bläschenförmig und kuglig gestaltet. Eine derbe Kernmembran ist vorhanden; im Zentrum finden sich ein oder mehrere Klumpen aus Plastin und Chromatin, welche zusammen wohl dem [S. 575]Binnenkörper der anderen Amöben entsprechen, vielfach ist ein typisches Karyosom erkennbar; das periphere Chromatin ist auf dem feinen achromatischen Gerüst im peripheren Teil des Kerns so verteilt, daß es in der Nachbarschaft der Kernmembran eine dichtere Anhäufung bildet. Das Bild des Kerns kann im feineren Bau sehr mannigfaltig sein.
Im Plasma sind je nach den physiologischen Zuständen vielfach zahlreiche Vakuolen vorhanden; eine kontraktile Vakuole ist jedoch nicht nachgewiesen.
Die Ernährung erfolgt durch Aufnahme von allerhand Bestandteilen des Darmbreies: Speisereste, Schleim, Bakterien etc., dagegen nie roter Blutkörperchen.
Die agame Vermehrung geht nach Schaudinn, in ähnlicher Weise wie wir dies oben für A. vespertilio kennen lernten, entweder durch einfache Zweiteilung oder durch multiple Teilung vor sich. Bei der einfachen Teilung kann man bei der Kernteilung eine Karyosommitose konstatieren.
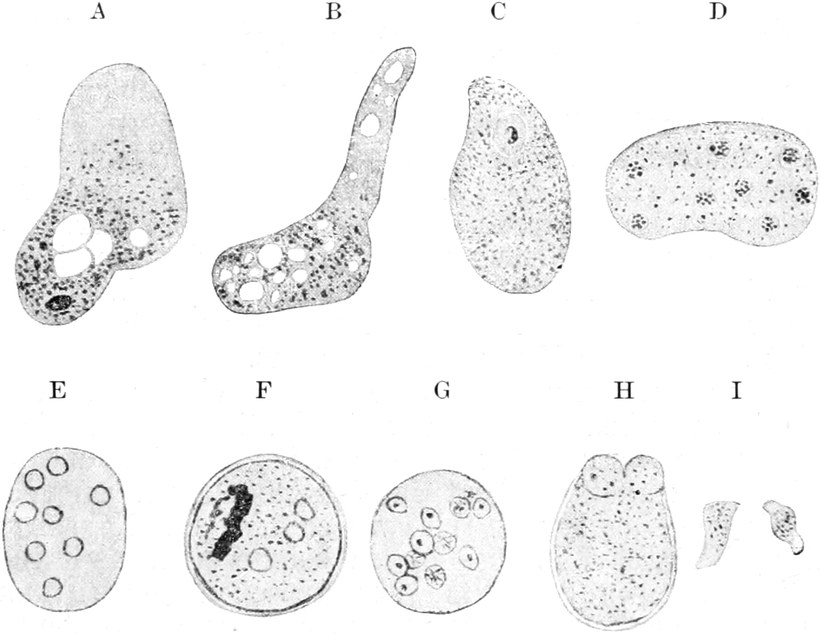
Die multiple Teilung führt stets zur Bildung von 8 Tochterindividuen. Und zwar beschreibt Schaudinn einen Zerfall des Amöbenkerns in 8 Tochterkerne. „Der Kern vergrößert sich durch Flüssigkeitsaufnahme, der Weichkörper entledigt sich aller Fremdkörper und stellt seine Bewegungen ein. Im Kern sondert sich die färbbare Kernsubstanz an der Peripherie in 8 größere Anhäufungen, die nach Auflösung der Kernmembran im Plasma als Tochterkerne verteilt werden. Gleich darauf zerfällt der Weichkörper, entsprechend der Zahl der Kerne, in 8 kleine Amöben, die nach allen Seiten auseinander kriechen.“
[S. 576]
Sehr bemerkenswert sind die ebenfalls von Schaudinn beobachteten geschlechtlichen Vorgänge bei Entamoeba coli, welche zu einer typischen Autogamie führen. (Vgl. oben S. 564.)
Als Resultat der Kopulation und der metagamen Vermehrungsvorgänge entsteht eine Cyste mit 8 Kernen. Diese werden bei der Infektion im neuen Wirt zu den Kernen der 8 jungen Amöben, welche aus der platzenden Cyste auskriechen (vgl. Fig. 496, 14, S. 564). Dieses Auskriechen ist experimentell sowohl durch Casagrandi und Barbagallo, als auch durch Schaudinn nachgewiesen worden. Die 8-kernigen Cysten der Entamoeba coli, welche in fertig ausgebildetem Zustand einen Durchmesser von ca. 15 µ besitzen, sind nach den bisherigen Erfahrungen ein absolut sicheres Erkennungsmerkmal für die Infektion mit dieser Form, da ihnen ähnliche Gebilde im menschlichen Darm sonst nicht vorkommen.
Die Entamoeba coli bewohnt den Darm des Menschen, und zwar, wie schon Schuberg vermutete, finden sie nur im oberen Teil des Dickdarms die für ihr vegetatives Leben geeigneten Bedingungen. Dort lassen sie sich bei Sektionen nachweisen und beim lebenden Menschen kann man sie durch Eingabe von Abführmitteln in den Faeces zur Erscheinung bringen. Wesentlich scheint für das Gedeihen der Entamoeba coli flüssige Konsistenz und alkalische Reaktion des Darminhaltes zu sein. Die in die eingedickten Faeces geratenden Individuen sterben ab, wenn sie nicht reif zu den geschlechtlichen Vorgängen sind. Wenn eine längere Serie von agamen Teilungen erfolgt ist, so treten — oft durch äußere Verhältnisse begünstigt — die inneren Bedingungen zur Kopulation ein. Die agamen Teilungen dienen der Ausbreitung der Infektion im Wirt, die in Begleitung der Kopulation erfolgende Encystierung der Infektion des neuen Wirts, damit der Verbreitung der Art.
Die agame Vermehrung geht besonders reichlich im erkrankten Darm in diarrhoischen Stühlen vor sich. Die geschlechtlichen Vorgänge werden im Darm selbst begonnen, ihr Abschluß und das Festwerden der Cystenhülle erfolgt in den abgelegten eintrocknenden Faeces. Mit dem Staub, mit Trinkwasser oder mit Nahrungsmitteln, eventuell auch durch Kontaktinfektion beim Verkehr mit Infizierten, müssen die Cysten in den Mund des Menschen geraten; unter der Einwirkung der Verdauungssäfte platzt im Darm die Cystenhülle und entläßt im Dickdarm die 8 Sprößlinge. Im entleerten feucht erhaltenen Stuhl sollen die Cysten bald absterben und ihre Infektionsfähigkeit verlieren, während sie im eingetrockneten Zustand wochenlang infektionsfähig bleiben.
Bemerkenswert ist, daß nur 10–20 Proz. der Amöben zur typischen Cystenbildung mit 8 Kernen gelangen; die übrigen 80–90 Proz. entwickeln sich pathologisch.
Entamoeba coli ist mit Sicherheit im Darm des Menschen in Deutschland (Ostpreußen, Berlin, Süddeutschland) und im Mittelmeergebiet (Istrien, Italien an verschiedenen Orten) und in Nordamerika etc. nachgewiesen worden. Wahrscheinlich ist sie sehr weit verbreitet, da die meisten beschriebenen Darmamöben wohl mit dieser Form zu identifizieren sind (aus Rußland, Nordamerika, Nordasien, zum Teil auch Südasien und Afrika). Im Darm von Gesunden findet sie sich in verschiedenen Gegenden verschieden häufig:
[S. 577]
|
in
|
Ostpreußen
|
bei
|
50
|
Proz.
|
der
|
Untersuchten
|
(Schaudinn).
|
|
„
|
Berlin
|
„
|
20
|
„
|
„
|
„
|
„
|
|
„
|
„
|
„
|
2
|
„
|
„
|
„
|
„
|
|
„
|
Istrien
|
„
|
66
|
„
|
„
|
„
|
(Schaudinn).
|
|
„
|
Würzburg
|
„
|
50
|
„
|
„
|
„
|
(Schuberg).
|
|
„
|
München
|
„
|
0
|
„
|
„
|
„
|
mehrere Hundert
(May). |
|
„
|
S. Francisco (Cal.)
|
„
|
0–1
|
„
|
„
|
„
|
(Docke).
|
|
„
|
„ „
|
„
|
65
|
„
|
„
|
„
|
(Craig).
|
|
„
|
Philippinen
|
„
|
65
|
„
|
„
|
„
|
„
|
Man ist auf Grund der Ergebnisse Schaudinns geneigt, sie für nicht-pathogen, sondern für einen harmlosen Kommensalen zu halten. Dafür spricht, daß sie bei sehr vielen Menschen gefunden wird, ohne daß dieselben Krankheitserscheinungen zeigen; ferner, daß man Katzen mit ihr infizieren kann, ohne daß Krankheitserscheinungen auftreten. Doch ist es noch nicht absolut sicher erwiesen, ob nicht Rassen von ihr sich bilden können, welche eine erhöhte Gefährlichkeit besitzen. Auch ist es nicht ausgeschlossen, daß sie im anderweitig erkrankten Darm zu schwereren Symptomen die Veranlassung gibt.
Entamoeba minuta Elmassian ist nach Angaben Hartmanns identisch mit E. coli.
Entamoeba tetragena (Viereck).
|
1906.
|
Viereck, H. Ueber
Amöbendysenterie. In: Med. Klinik. 1906. No. 41.
|
|
1907.
|
Viereck. Studien über die in den
Tropen erworbene Dysenterie. In: Beihefte Arch. f. Schiffs- und Tropenhyg.
Vol. 11. Beiheft 1.
|
|
1907.
|
Entamoeba africana Hartmann. In:
Hartmann und Prowazek.
Blepharoplast, Karyosom und Centrosom. Arch. f. Protistenk. Vol. 10. p. 312.
|
Entamoeba tetragena scheint nach den neueren Untersuchungen die häufigste Dysenterieamöbe zu sein. In der Art der Vermehrung, Cystenbildung etc. gehört sie zum gleichen Typus wie E. coli, doch lassen sich bei ihr einige konstante, charakteristische Unterschiede nachweisen.
E. tetragena mißt 8–60 µ.
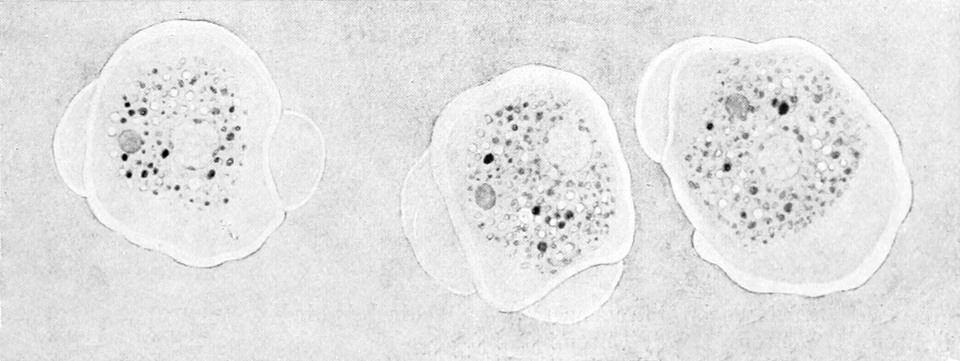
Sie ist durch eine auch in der Ruhe deutliche Sonderung von Ekto- und Entoplasma, fein gekörneltes Entoplasma, Bildung von breitlappigen Pseudopodien und einen sehr deutlich im Leben [S. 578]sichtbaren Kern ausgezeichnet. Das Ektoplasma ist sehr stark lichtbrechend, zähflüssig und allein an der Pseudopodienbildung beteiligt.
Der kuglige Kern ist von einer kräftigen, doppelt konturierten Membran umgeben. Es ist meist reichlich peripheres Chromatin vorhanden und ein Karyosom mit deutlichem Centriol. Das Karyosom bietet infolge „zyklischer Veränderungen“ (vgl. S. 23) sehr verschiedenartige Bilder dar (Fig. 506).
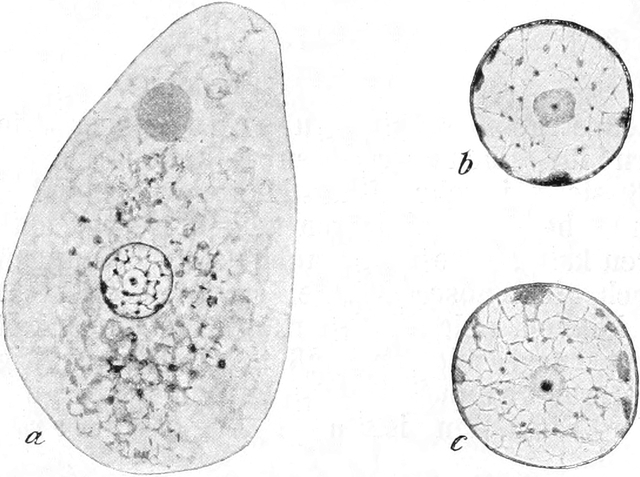
Da das Tier sich von Bakterien, roten Blutkörperchen und Zelldetritus ernährt, so ist das Entoplasma von solchen und ihren Zerfallsprodukten oft sehr reichlich erfüllt; dann kann auch der Kern verdeckt werden.
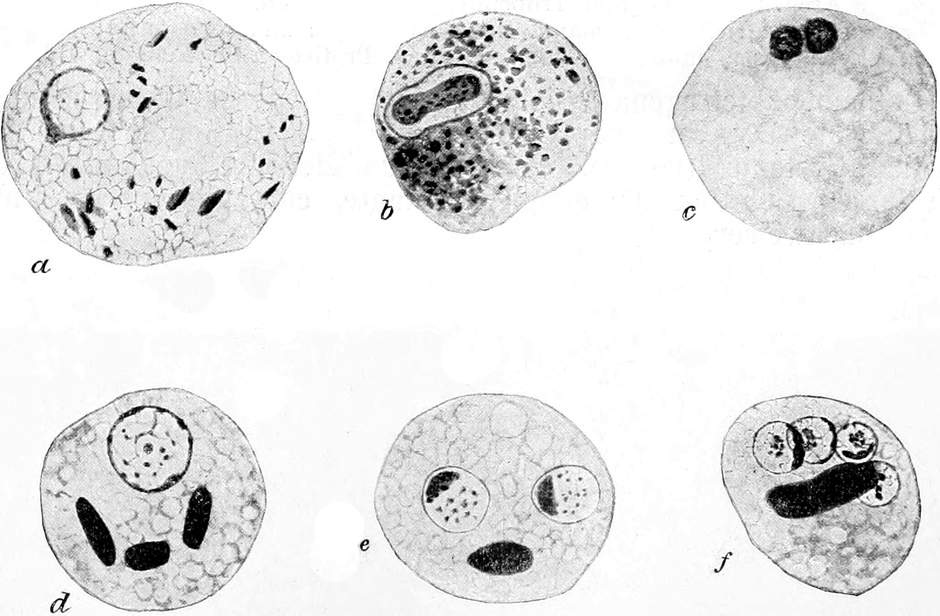
Die agame Vermehrung erfolgt nur durch Zweiteilung. Die noch nicht sehr gut bekannten sexuellen Stadien sind in Fig. 507 dargestellt. Zu Zeiten — sehr selten — findet man sämtliche Individuen von einer Befruchtungsepidemie ergriffen. Sie sind dann sehr klein, [S. 579]ihr Plasma ist von Chromidien erfüllt (Fig. 507 a, b). Nach Kernteilungen und Verschmelzungen, welche an die Autogamiestadien von E. coli und muris erinnern, erfolgt die Bildung von 4-kernigen Cysten. Das wichtigste Charakteristikum dieser Amöbe, welches sie von E. coli unterscheidet, ist die Bildung der 4-kernigen Dauercysten (Fig. 507 f u. 508). Es treten bei ihr nie die 8-kernigen Cysten auf, welche E. coli auszeichnen.
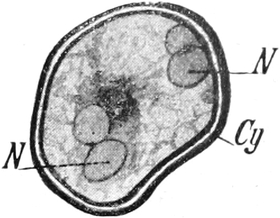
E. tetragena Viereck ist nach Angaben Hartmanns in Afrika, Südamerika und Vorderindien, überhaupt überall in den Tropen, wo Dysenterie vorkommt, verbreitet.
Entamoeba nipponensis Koidzumi ist nach Hartmann mit ihr identisch.
Entamoeba histolytica (Schaudinn).
|
1903.
|
Schaudinn, F., Untersuchungen
über die Fortpflanzung einiger Rhizopoden. In: Arbeiten a. d. Kais.
Gesundheitsamte. Vol. 19. p. 547. (Bezeichnung histolytica p. 564;
Beschreibung p. 570.)
|
Schaudinn, welcher als erster die morphologischen Unterschiede zwischen einer pathogenen und einer nicht pathogenen Darmamöbe — deren Existenz schon früher Kliniker wie Kruse und Quincke aus den klinischen und experimentellen Erfahrungen erschlossen hatten — klar definiert hat, war zu der Annahme gelangt, daß die pathogene Form sich in ganz anderer Weise fortpflanze als die harmlose. Er unterschied sie daher als Entamoeba histolytica von der harmlosen E. coli.
Die neueren Erfahrungen drängen aber zu einer anderen Deutung seiner Befunde. Es ist vor allem das Verdienst Hartmanns, festgestellt zu haben, daß die verbreitetste Dysenterieamöbe E. tetragena ist, und daß sie auch Schaudinn bei einem Teil seiner Untersuchungen vorgelegen hat. Wie wir oben sahen, verhält sich E. tetragena in den meisten Vorgängen ganz analog der E. coli. Eine Form, welche der nach Schaudinns Annahme weit verbreiteten E. histolytica entspräche, hat sich aber trotz angestrengten Nachsuchens nicht mit Sicherheit konstatieren lassen. Es scheint vielmehr, daß Schaudinn durch eigenartige Degenerationserscheinungen getäuscht worden ist. Ebenso scheint es sich in den Arbeiten von Werner [S. 580]und von Noc um einzelne Degenerationsstadien von E. tetragena gehandelt zu haben.
Es ist demnach anzunehmen, daß die Mehrzahl der Angaben, welche man bisher auf E. histolytica bezog, mit E. tetragena in Beziehung zu setzen sind. Doch da die Frage noch nicht definitiv entschieden ist, so sei hier die Beschreibung der E. histolytica in der bisherigen Auffassung angeführt.
Wenn sich die neueren Untersuchungen Hartmanns in vollem Umfang bestätigen lassen, so wird dies wohl folgenden Einfluß auf die Benennung der Dysenterieamöbe haben: der Name E. histolytica hat wohl die Priorität vor dem Namen E. tetragena V. Da die bestätigten Merkmale der Dysenterieamöbe histolytica und tetragena gemeinsam sind, also beide als gesonderte Arten beschriebenen Formen identisch sind, so wäre der Name tetragena fallen zu lassen und dafür der Name histolytica allein anzuwenden. Doch wird es sich vielleicht am meisten empfehlen, streng das Prioritätsgesetz anzuwenden und den Namen Entamoeba dysenteriae (Councilman und Lafleur, 1893) wieder aufzunehmen.
Entamoeba histolytica ist nach Schaudinn von E. coli im lebenden Zustand sehr leicht durch das Verhalten des Protoplasmas zu unterscheiden. Auch im ruhenden Zustand zeigt E. histolytica eine deutliche Sonderung von Ekto- und Entoplasma; das Ektoplasma ist als besondere Zone erkennbar und zeigt stärkeres Lichtbrechungsvermögen als das Entoplasma; es ist zähflüssig und macht einen glasigen Eindruck. (Bei E. coli ist bei ruhenden [runden] Formen ein Unterschied zwischen Ekto- und Entoplasma nicht erkennbar; vergl. jedoch Entamoeba tetragena, S. 577.)
Die Dysenterieamöbe ist ziemlich klein, indem sie 20–30 µ mißt; in der Bewegung kann sie sich zu einer Länge von 70 µ strecken. Ihre Pseudopodien bestehen aus breitlappigen, fast ausschließlich aus Ektoplasma gebildeten Fortsätzen. Das Entoplasma ist gekörnelt, oft ziemlich leichtflüssig, von kleinen Vakuolen erfüllt; in ihm sind verschiedenerlei Nahrungskörper enthalten: rote und weiße Blutkörperchen, Zellreste, Stärkekörner, Bakterien und allerhand Detritus aus dem Darm. Die roten Blutkörperchen und ihre Zerfallsprodukte geben den Amöben vielfach eine rotgelbliche Färbung. Man findet in dysenterischen Därmen die Amöben oft mit enormen Mengen von ihnen vollgepfropft. Dieselben werden ohne Abscheidung irgendeines Pigmentes verdaut (Fig. 510).
Im Leben ist der Kern kaum wahrnehmbar, während er bei E. coli meist sehr deutlich ist. Auch im gefärbten Zustand ergibt sich ein deutlicher Unterschied zwischen den Kernen beider Amöbenarten. Bei Entamoeba histolytica ist der Kern arm an färbbaren Substanzen (während er bei E. coli reich an Chromatin ist und sich daher sehr gut und deutlich färbt). Bei der lebenden E. histolytica kann man oft sehen, wie der Kern durch Nahrungsballen etc. deformiert wird; er ist offenbar sehr weich und plastisch, ebenfalls im Gegensatz zu E. coli. Stets liegt er exzentrisch, oft an der Grenze des Ektoplasmas, dem letzteren angepreßt. Im konservierten Zustand erkennt man, daß eine distinkte, achromatische Kernmembran [S. 581]fehlt; es ist aber ein deutlicher Binnenkörper vorhanden und eine schmale, stark gefärbte Zone peripheren Chromatins (Fig. 511 und 512).
Eine kontraktile Vakuole ist bei E. histolytica nicht vorhanden.
Von Fortpflanzungsvorgängen ist bisher agame Zweiteilung, agame einfache und multiple Knospung, sowie eine eigenartige Dauersporenbildung bekannt geworden. Die kurze Schilderung Schaudinns, welcher selbst zu keinem abschließenden Urteil gelangt war, hat die Vorgänge bei weitem noch nicht aufgehellt. Schaudinn beobachtete beim lebenden Tier in Material aus dem Darmlumen ausschließlich multiple Knospung, d. h. Abschnürung mehrerer kleinerer Tiere von einem größer bleibenden Muttertier. Bei Untersuchung der Darmwand fand er auch einfache Teilung und Knospung bei den zwischen den Zellen des Darmepithels eingezwängten Amöben. Er nimmt an, daß amitotische (einfache resp. multiple) Teilung des Kerns diese Vermehrungsvorgänge begleitet. Da er aber, wie es scheint, die Kernvermehrung nur im Leben verfolgt hat, ist möglicherweise ein anderer Kernteilungsmodus anzunehmen.
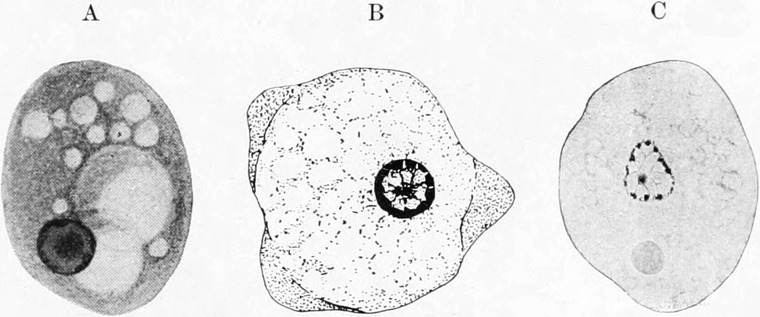
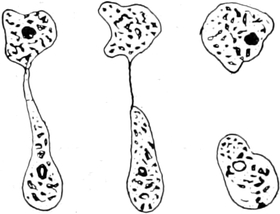
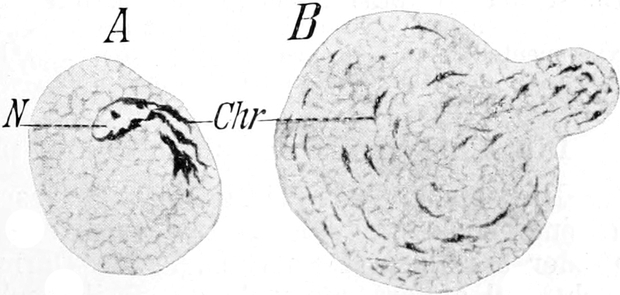
Niemals konnte Schaudinn bei E. histolytica eine Brutbildung mit Zerfall in 8 Tiere, wie wir sie oben für E. coli kennen lernten, auffinden.
Dagegen war er der erste, welcher bei der Dysenterieamöbe Dauerstadien entdeckte. Er fand dieselben und die sie vorbereitenden Phasen des Parasiten niemals auf der [S. 582]Höhe des Krankheitsprozesses, sondern immer erst, wenn die Faeces des Erkrankten wieder fester wurden, wenn der Krankheitsprozeß im Abklingen war.
Dann tritt, während die Begrenzung des Kerns unscharf wird, Chromatin aus ihm aus und erfüllt in Gestalt von lebhaft sich vermehrenden Chromidien allmählich das ganze Plasma, während der Kern selbst degeneriert und oft ausgestoßen wird (Fig. 514). Allmählich ziehen sich die Chromidien aus dem Entoplasma zurück und sammeln sich im Ektoplasma an, welches sie schließlich als einheitliche netzförmige Chromidialmasse durchsetzen. Mit Teilen dieser Masse dicht erfüllte Buckel treten im Verlauf von 2–3 Stunden knospenartig an der ganzen Oberfläche der Amöbe hervor und werden als kleine Kugeln von 3–7 µ Durchmesser abgeschnürt, wobei eine konzentrische faserige Struktur an ihrer Oberfläche auftritt, während sich im Innern des Entoplasmas heftige Strömungserscheinungen abspielen.
Die abgelösten kleinen Kügelchen nehmen in ein paar Stunden eine hellbräunlichgelbe Färbung an; sie werden stark lichtbrechend und ihre Hülle außerordentlich hart, so daß weder Farbstoffe eindringen, noch Anfertigung von Mikrotomschnitten möglich ist. Der zentrale Teil der Amöbe geht allmählich zugrunde.
Diese kleinen braunen Kugeln, welche sich in den Faeces zerstreuen und dann sehr schwer nachweisbar sind, stellen nach Schaudinn die Dauerzustände der E. histolytica dar. Es gelang ihm mit ausgetrockneten Proben dieser Dauerformen experimentell per os Katzen zu infizieren und bei ihnen eine typische ulzeröse Dysenterie des Dickdarms hervorzurufen.
Die Amöben als parasitische und pathogene Organismen.
Die bisher bei Tieren nachgewiesenen parasitischen Amöben scheinen meistens, ohne allzuviel Schaden anzurichten, als mehr oder minder harmlose Kommensalen den Darm ihrer Wirte zu bewohnen. Nicht viel anders, als viele der freilebenden Amöben in fauligen Gewässern, führen sie in dem flüssigen Darminhalt ein halb saprozoisches Dasein, indem sie bei ihren „amöboiden“ Bewegungen lebende und tote organische Materie, wie sie ja im Darminhalt im Ueberfluß vorhanden ist, mit den Pseudopodien umfließen, wobei sie in ähnlicher Weise wie die parasitischen Flagellaten und Infusorien stets auf das [S. 583]Lumen des Darms und eventuell seiner Anhangsgebilde beschränkt erscheinen. Eine rein parasitische Ernährung durch die Säfte ihrer Wirte ist nirgends nachgewiesen, stets erscheint ihr Körper in den Nahrungsvakuolen von allerhand Bestandteilen des Darms ihrer Wirte erfüllt, nicht selten fressen sie sogar die anderen Darmparasiten mit Vorliebe auf.
Vielfach hat man den Eindruck, als handle es sich gar nicht um obligatorische Parasiten, sondern als habe man die gleichen Amöben vor sich, welche sonst ein freies Leben in Infusionen etc. führen, welche aber gelegentlich als Kommensalen im Darm von Tieren die Massen von geeigneter Nahrung ausnützen. Diese Ansicht erscheint mir gar nicht so unwahrscheinlich, nachdem ich selbst beobachtet habe, daß z. B. Amoeba vespertilio sich an eine Temperatur von 37° C anpassen kann, und daß andererseits Entamoeba ranarum, aus dem Darminhalt in Brunnenwasser übergeführt, tagelang zu leben vermag. Musgrave und Clegg sind auf Grund von Infektionen mit auf Nährböden gezüchteten Amöben zur Ansicht gekommen, daß alle freilebenden Amöben, in den Darm von Tieren gebracht, pathogen werden können. Diese Annahme ist sicherlich zu weitgehend, ich halte aber die Frage für durchaus diskutabel, ob nicht manche freilebenden Amöbenformen durch geeignete Kulturmethoden in pathogene Formen umgezüchtet werden können.
Auch Celli und Fiocca haben im Darm des Menschen resp. in Kulturen aus Faeces eine Reihe von verschiedenen Amöbenformen (5 Arten und 3 Varietäten, A. diaphana, A. lobosa [3 Var.], A. reticularis, A. spinosa, A. vermicularis) gefunden, deren Vorkommen vielleicht zum Teil ein gelegentliches ist, zum Teil sich aber auch durch die sogleich zu erörternden Tatsachen erklären wird.
Im Darm zahlreicher Tiere befinden sich naturgemäß neben parasitischen Amöben die Cysten von allerhand Organismen, darunter auch Amöben und Verwandten, welche mit den Nahrungsmassen den Darmkanal passieren und in vielen Fällen dem Angriff der Verdauungsflüssigkeiten widerstehen. Streicht man den Kot von Tieren, z. B. von Eidechsen, auf Agarplatten aus, so entwickeln sich oft reichliche Kulturen von Amöben, von denen man nicht immer mit Sicherheit angeben kann, ob sie mit Parasiten in Beziehung stehen. Hartmann hat in dieser Weise zahlreiche Amöben gezüchtet, welche zum Teil der A. limax (sp. Vahlkampf, s. oben) nahestehen.
Mit einer ähnlichen Methode hat Walker (1908) aus Darminhalt getöteter Tiere eine größere Anzahl amöboider Organismen auf Agarplatten gezüchtet, von denen er eine ganze Reihe als neue Amöbenarten bezeichnet, z. B. A. cobayae, musculi, gallopavonis, ranae, intestinalis, enterica, fecalis etc.
Manche dieser Formen sind wahrscheinlich aus Cysten von Darmpassanten hervorgegangen, andere mögen wohl Darmparasiten sein, welche imstande sind, auf Nährböden zu wachsen, ähnlich wie Amoeba lacertae (Fig. 516), welche im Enddarm von Eidechsen als häufiger Parasit vorkommt. Aber es ist nicht mit Sicherheit zu sagen, ob [S. 584]nicht manche der Formen Stadien von ganz anderen Organismen sind, welche auf dem Nährboden dauernd in Amöbenform wachsen.
Aus all diesen Angaben geht hervor, wie zahlreiche amöboide Organismen in Darminhalt und Fäkalien der Tiere vorkommen, und wie schwer es ist, sich darüber klar zu werden, welche von ihnen gelegentliche Passanten des Darms, welche fakultative und welche spezifisch angepaßte Parasiten sind.
Und eine ähnliche Schwierigkeit erhebt sich von neuem, wenn wir entscheiden wollen, welche unter den parasitischen Amöben eine ätiologische Bedeutung bei den Krankheitsprozessen besitzen, deren regelmäßige Begleiter sie sind.
Nur wenigen der Tierparasiten wird eine aggressive, gewebezerstörende, pathogene Rolle zugeschrieben. Und das ist gerade bei Formen der Fall, welche wir nicht mit absoluter Sicherheit den Amöben anzugliedern vermögen, sondern welche vielleicht amöboide Zustände von Protozoen aus anderen Ordnungen oder Klassen sind.
Dahin gehört z. B.:
Amoeba Blochmanni Doflein.
|
1886.
|
Blochmann, Habilitationsschrift,
Heidelberg.
|
|
1901.
|
Doflein, Die Protozoen. I. Aufl.
Jena. p. 17.
|
Diese Amöbe befällt oft in großen Mengen den Flagellaten Haematococcus Bütschlii Blochmann. Sie wurde von Blochmann entdeckt, welcher sie mit Amoeba limax Duj. verglich; dieser ähnelt sie, solange sie sich frei im Wasser bewegt. Dabei streckt sie, wie Amoeba limax, das ganze vordere Ende wie ein Pseudopod voraus und zieht das Hinterende nach sich (Fig. 517 A). Amoeba Blochmanni besitzt einen bläschenförmigen Kern und eine kontraktile Vakuole.
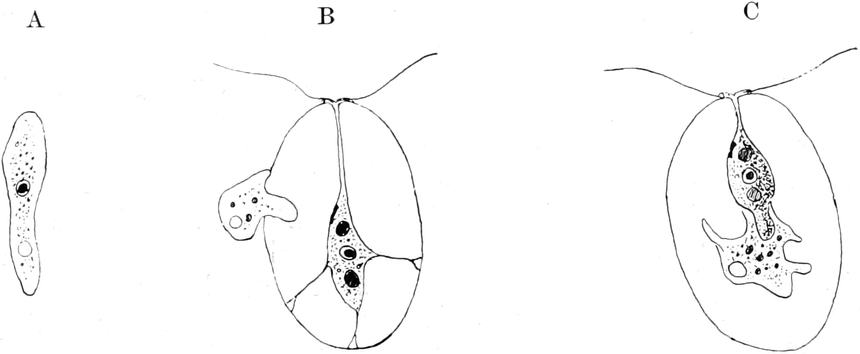
Die Amöbe sucht zu ihrer Ernährung ein Individuum von Haematococcus Bütschlii auf (vergl. S. 516), durchbricht an einer beliebigen Stelle die abstehende Hülle desselben (Fig. 517 B), wobei sie mehrere lappige Pseudopodien ausstreckt. Wenn sie eingedrungen ist, beginnt sie allmählich durch Umfließen den Plasmaleib des Haematococcus aufzufressen (Fig. 517 C). Während sie Plasma und Chlorophyll verdaut, verfärbt sich das letztere gelbrot. Das vorher hyaline Plasma der Amöbe füllt sich dadurch mit gelbroten Körnchen oder Tröpfchen. Wenn die Amöbe den Haematococcus leergefressen hat, verläßt sie seine Hülle wieder.
Der Entwicklungskreis dieser Art ist noch nicht bekannt geworden, nicht einmal Teilung oder Cystenbildung.
Die Lebensweise dieser Form erinnert eher an ein Raubtier als an einen Parasiten.
Dagegen hat Caullery 1906 einen Parasiten aus den Eiern des selbst an Eupagurus reticulosus Roux parasitierenden Krebses Peltogaster curvatus Kossm. [S. 585]beschrieben, welcher ausgedehnte Gewebezerstörungen herbeiführt. Es ist dies die Amoeba paedophthora Caull., welche oft in großen Mengen im Innern der Eier vorkommt, von Dotter lebt, dabei Eier und Embryonen zerstörend (Fig. 518).
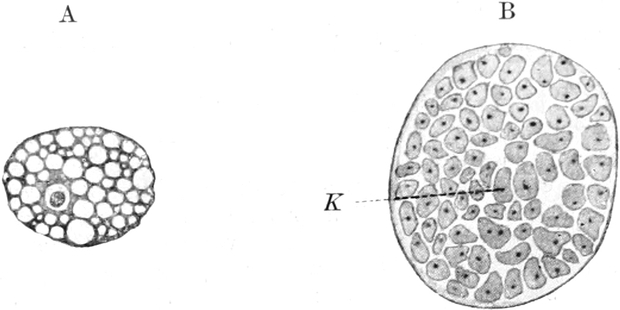
Bei höheren Tieren (abgesehen vom Menschen) sind Amöben als typische Krankheitserreger nirgends mit Sicherheit nachgewiesen. Ganz zweifelhaft ist die
? Amoeba parasitica Lendenfeld.
|
Lendenfeld in: Proceed. Linn. Society of New
South Wales. Vol. 10. T. 6.
|
Diese angebliche Amöbe soll in Australien eine tödliche Krankheit der Schafe erzeugen; sie soll die Epidermis befallen und zerstören. Die durch sie erzeugten Epidemien sollen großen Schaden anrichten. Weder die Abbildungen noch die Beschreibung lassen klar erkennen, ob es sich um eine Amöbe oder überhaupt um einen selbständigen Organismus handelt, welcher im Innern von Epithelzapfen vorkommen soll.
Nicht ganz klar ist die Stellung und pathogene Bedeutung der unten erwähnten Formen Entamoeba meleagridis (Smith) und E. intestinalis (Walker). Die erstere Form ist so ungenügend charakterisiert, daß man an Verwechslung mit einer Coccidie denken könnte; ist sie richtig erkannt, so würde ihre pathogene Bedeutung für den Truthahn derjenigen der E. histolytica für den Menschen sehr ähneln. Und soweit man aus den noch unpublizierten, von Walker kurz erwähnten Beobachtungen Smiths über die von Walker mit E. intestinalis identifizierte, bei Schweinecholera vorkommende und an verletzten Stellen der Darmoberfläche tief ins Gewebe eindringende Amöbe entnehmen kann, verhält sich diese Form ganz ähnlich wie E. coli.
Die Aehnlichkeit von amöboiden Zellen der normalen oder pathologisch veränderten Gewebe mit Protozoen hat oft zu Irrtümern Veranlassung gegeben. So z. B. bei der Beschreibung von
? Protamoeba aphthogenes Piana und Fiorentini.
|
1898.
|
Piana und
Fiorentini in: Centralbl. f. Bakteriol. u.
Parasitenk. Vol. 23.
|
Die angeblichen Amöben der Maul- und Klauenseuche, welche diese Autoren gesehen zu haben glauben, sind kaum etwas anderes gewesen als losgelöste Gewebszellen oder Leukocyten.
Auch für eine ganze Reihe von Erkrankungen des Menschen sind Amöben als Erreger genannt worden, so von Behla für den Keuchhusten usw. So wurde auch von Artault eine Amoeba pulmonalis Art. beschrieben, welche aus dem Inhalt einer Lungenkaverne des Menschen stammte. Diese Form ist sehr ungenügend charakterisiert, so daß man nicht entscheiden kann, ob es sich wirklich um ein Protozoon handelt. (Artault, S., Flore et faune des cavernes pulmonales, in: Arch. de parasitologie. Vol. 1. 1898. p. 27.)
Fast jede Krankheit mit noch rätselhafter Aetiologie hat schon einmal ihre Amöbe zuerteilt bekommen. Meist aber sind seitdem schon die wirklichen Erreger in Gestalt von Bakterien oder anderen Organismen nachgewiesen worden; in anderen Fällen sind die Befunde nicht bestätigt worden, oder es stellte sich heraus, daß die betreffenden Protozoen zu ganz anderen Abteilungen dieses Tierstammes gehören, so der Erreger der Malaria u. a.
[S. 586]
Sehr amöbenähnlich sehen Gebilde aus, welche Miura in Tokio in einem Falle entdeckt hat, und welche beschrieben wurden unter dem Namen
? Amoeba Miurai Ijima.
|
1898.
|
Ijima, J., On a new Rhizopod
parasite of man. In: Annotationes zoologicae japonenses. II. 3. p. 85.
|
Sie fanden sich bei einer Frau, welche an Pleuritis und Peritonitis endotheliomatosa litt, in der serösen Flüssigkeit und traten 2 Tage vor dem Tode der Patientin auch in ihren bluthaltigen Faeces auf.
Die kleinen (Durchmesser 15–38 µ) Körperchen besitzen einen Umriß, welcher sehr an gewisse Amöben erinnert, indem er rundlich bis elliptisch ist, wobei an dem einen Ende ein pseudopodienartiger Fortsatz vorragt, welcher mit kurzen, fadenförmigen Fortsätzen bedeckt ist. Doch wurden keine Bewegungen beobachtet. Das Plasma der Gebilde ist fein granuliert, zeigt keine Sonderung in Ekto- und Entoplasma und ist oft reichlich vakuolisiert. Eine kontraktile Vakuole ist nicht vorhanden, die Zahl der Kerne soll 1–3 betragen.
Die Beschreibung ist nicht genügend genau, um zu entscheiden, ob es sich wirklich um Amöben handelte; Lühe erklärt sie daher für Exsudatzellen. Im Falle es sich wirklich um Amöben handelte, sind Beziehungen zu Entamoeba histolytica nicht ausgeschlossen.
Es bleiben also von den gegenwärtig mit einem gewissen Grad von Sicherheit als parasitische Amöben zu bezeichnenden Formen nur die Darmbewohner übrig: Entamoeba blattae, E. bovis, E. ranarum, E. muris, und andere Bewohner des Darms von Tieren, sowie E. coli, E. tetragena und E. histolytica beim Menschen. Die meisten der Tierparasiten scheinen ihre Wirte nicht in erheblichem Maße zu schädigen. Anders verhält es sich mit den Formen, welche den menschlichen Darm bewohnen. Denn es läßt sich beim Menschen ein unzweifelhafter Zusammenhang zwischen Darmkrankheiten und dem Vorhandensein von Amöben im Darm feststellen.
Die Beziehungen der Amöben zur Dysenterie.
Unter dem Namen Dysenterie faßt man Darmerkrankungen zusammen, bei welchen blutig-schleimige Stuhlentleerungen durch katarrhalische Entzündung, durch diphtherische Zerstörung und Geschwürbildung der Schleimhaut des Dickdarms veranlaßt werden. Die neueren Erfahrungen haben gelehrt, daß diese Krankheitserscheinungen in einem Teil der Fälle durch Bakterien hervorgerufen werden, und zwar scheinbar bei den Epidemien verschiedener Gegenden durch verschiedene Bakterien (in Japan nach Shiga [1898], in Deutschland nach Kruse [1900], in Manila nach Flexner [1900]). Dieser bazillären Dysenterie steht die Amöbendysenterie gegenüber, bei welcher die bei jenen epidemischen Krankheiten nachgewiesenen spezifischen Bakterien fehlen. Dagegen wurden bei dieser in klinischer sowie in pathologisch-anatomischer Hinsicht der bazillären Ruhr durchaus gleichenden Krankheit regelmäßig Amöben im erkrankten Darm nachgewiesen. Lambl hatte (1860) im menschlichen Darm Amöben gesehen, Lewis und Cunningham (1870) hatten entsprechende Beobachtungen gemacht, und Lösch (1875) hatte die Darmamöbe des Menschen mit dem Namen Amoeba coli belegt. Schon die ersten Untersucher der Amöbenbefunde im menschlichen Darm äußerten Zweifel darüber, ob die Amöben in einem ursächlichen Zusammenhang mit den Erkrankungen des Darms ständen. [S. 587]Meist waren es Fälle aus gemäßigten Klimaten, welche diesen ersten Untersuchungen zugrunde lagen.
Schon Cunningham und besonders Grassi betonten ferner, daß die Amöben nicht selten auch im gesunden Darm vorkommen, und daß sie bei den verschiedensten Krankheiten gefunden werden, nicht nur bei Dysenterie, sondern auch bei Typhus, Cholera usw. Dem entsprachen auch die Befunde Schubergs, welcher zu dem Resultat kam, daß Amöben beim gesunden Menschen häufig vorkommen, und zwar in einem bestimmten Teil des Darms, im Anfangsteile des Colons. Hier leben Amöben, wie auch einige Flagellaten (vgl. hierzu übrigens auch S. 493 und S. 503), scheinbar als vollkommen harmlose Kommensalen. Ihr Fortkommen in diesem Teil des Darms wird dadurch ermöglicht, daß hier der Darminhalt normalerweise noch flüssig und von alkalischer Reaktion ist. Gewöhnlich bleiben sie gänzlich unbemerkt; aber man kann sie bei gesunden Menschen leicht nachweisen, wenn man durch Abführmittel künstliche Verflüssigung der Gesamtfaeces und Durchfall herbeiführt. In manchen Gegenden findet man bei dieser Untersuchungsmethode bei einem großen Prozentsatz der Gesunden Amöben, in anderen Gegenden sind sie selten (vgl. S. 577).
Diese Erfahrungen zusammen mit den Entdeckungen über die (amöbenlose) bazilläre Ruhr brachte manche Forscher zu der auch von mir in der ersten Auflage dieses Buches vertretenen Anschauung, daß die Amöben hauptsächlich durch Verschleppung der Bakterien zur Verschärfung der Symptome beitrügen, daß sie aber nicht als die primären Erreger der Dysenterie zu betrachten seien.
Dem schienen allerdings die experimentellen Erfahrungen zu widersprechen. Eine ganze Reihe von Forschern (Kartulis, Quincke und Roos, Kruse und Pasquale u. a.) hatten durch Einspritzung von amöbenhaltigen Faeces in das Rectum von Tieren (Katzen) bei diesen typische Dysenterie erzeugt. Die Beweiskraft dieser Experimente wird einigermaßen dadurch beeinträchtigt, daß in solchen Faeces auch zahllose Bakterien enthalten sind. Aber die Infektion gelingt auch durch Einspritzung von angeblich vollkommen bakterienfreiem Eiter aus den bei Dysenterie häufigen Leberabszessen (s. unten).
Vor allem traten die besten Kenner der tropischen und subtropischen Dysenterie für die ätiologische Bedeutung der Amöben ein. Schon Robert Koch hatte 1883 das Eindringen der Amöben in tiefe Schichten der Darmwandung konstatiert und sie am Boden der dysenterischen Geschwüre auf Schnitten nachgewiesen. Kartulis hatte ihr fast ausnahmsloses Vorkommen bei sämtlichen von ihm untersuchten Fällen subtropischer Dysenterie und ihr Vorhandensein in den Leberabszessen konstatiert. Seither haben noch viele Forscher die Amöbentheorie der tropischen Dysenterie angenommen, und die neuesten Forschungen scheinen diese Theorie durchaus zu stützen, so daß sie heutzutage als die allgemein angenommene gelten kann.
Der Schlüssel für das Verständnis der früher widersprechend erscheinenden Angaben der verschiedenen Forscher wurde durch die Arbeiten Schaudinns gegeben.
Schon die experimentellen Untersuchungen, vor allem von Quincke und Roos und Kruse und Pasquale, hatten die Beobachter zu der Annahme geführt, daß im menschlichen Darm verschiedene Amöbenspecies [S. 588]vorkommen. Doch war eine Verschiedenheit nur aus den klinischen Erscheinungen erschlossen, nicht durch genaue Untersuchung der Amöben selbst erwiesen. Es hatte sich gezeigt, daß die den Katzen durch den Anus injizierten Amöben in manchen Fällen regelmäßig pathogen waren, in anderen ebenso regelmäßig nicht pathogen. So hatten Quincke und Roos drei Formen unterschieden: Amoeba coli felis, welche für Mensch und Katze pathogen war. A. coli mitis, welche nur für den Menschen, aber nicht für die Katze pathogen wirkte, und schließlich die für beide Organismen nicht pathogene A. intestini vulgaris. Aber in diesen Fällen war immerhin die Annahme möglich, daß es sich um Rassen von verschiedener Virulenz handelte.
Eine präzise morphologische und entwicklungsgeschichtliche Unterscheidung der verschiedenen Formen gelang erst F. Schaudinn. Die Entdeckungen dieses genialen Protozoenforschers führten zu dem Ergebnis, daß im menschlichen Darm in den von ihm untersuchten Fällen allein 3 verschiedene amöbenähnliche Organismen vorkommen[35].
Er fand (besonders in Istrien und dem österreichischen Küstenland, in Ostpreußen und in Klinikfällen in Triest und Berlin) im menschlichen Darm:
Letztere ausschließlich in Fällen, welche auf eine Infektion im Ausland hinweisen.
1) Chlamydophrys stercorea Cienk. kann sich bei Darmerkrankungen, welche durch irgendwelche anderweitige Ursachen veranlaßt sind, stark vermehren (s. unten S. 628 ff.). Aber das Aussehen dieses Rhizopoden ist auch im schalenlosen Zustand sehr verschieden von den echten Darmamöben und kann kaum zu Verwechslungen Anlaß geben.
2) Entamoeba coli Lösch (s. S. 574), welche nach unseren obigen Darlegungen im gesunden Darm als Kommensale häufig vorkommt, scheint der Mehrzahl der Beobachter in den gemäßigten Zonen vorgelegen zu haben. Da jedoch vor 1903 die Unterschiede zwischen ihr und der echten Dysenterieamöbe nicht bekannt waren, ist dies nicht mit Sicherheit zu entscheiden.
Für diese Art scheint in der Hauptsache das zuzutreffen, was ich in der ersten Auflage dieses Buches allgemein über die Dysenterieamöbe gesagt habe. Sie kommt in der Regel als harmloser Kommensale im Anfangsteil des Colons beim Menschen vor, da in diesem Darmabschnitt die flüssige Beschaffenheit des Darminhalts und seine alkalische Reaktion ihr Fortkommen ermöglichen. Bei Erkrankungen [S. 589]des Darms, welche die Peristaltik erhöhen und infolgedessen in anderen Abschnitten des Darms alkalischen und flüssigen Inhalt verursachen, können sie ihren Verbreitungsbezirk ausdehnen. So kann es kommen, daß sie z. B. bei bazillärer Dysenterie neben den Bakterien (?), bei echter Amöbendysenterie neben der Dysenterieamöbe in verschiedenen Abschnitten des Darms vorkommen.
Niemals scheinen sie (die echte Entamoeba coli Lösch), soweit wir bis jetzt wissen, als selbständige Krankheitserreger aufzutreten, vor allen Dingen niemals selbständig die Submucosa zu durchbrechen und auf diese Weise Geschwürsbildung herbeizuführen (ganz ähnlich wie sich nach den angeführten Angaben, S. 585, E. intestinalis beim Schwein verhält). Mir scheint es aber auf Grund unserer heutigen Kenntnisse durchaus nicht ausgeschlossen, daß sie bei ihren Wanderungen im Darm und dessen arrodierten Wandungen durch ihr massenhaftes Vorkommen, durch Verschleppung von Bakterien und eventuell auch durch ihre Ausscheidungen zur Verschärfung des Krankheitsbildes beitragen. (Andererseits ist durch Schaudinn wahrscheinlich gemacht geworden, daß bei gewissen bazillären Dysenterien das Vorhandensein der Bakterien die Entwicklung der Entamoeba coli sowie auch der anderen Kommensalen des Darms unterdrückt.)
3) Die Dysenterieamöbe, also nach den neuesten Forschungen wahrscheinlich Entamoeba tetragena V., ist in den Tropen und Subtropen beider Halbkugeln weit verbreitet und verursacht nach dem gegenwärtigen Stand unseres Wissens die gefährlichste Form der tropischen Dysenterie oder Amöbenruhr des Menschen.
Die tropische Dysenterie und die Beziehungen der Dysenterieamöbe zu ihr.
Schaudinn hatte durch seine Untersuchungen die Ueberzeugung gewonnen, daß die Entamoeba histolytica der Erreger der ulcerösen Amöbenenteritis des Menschen sei. Und zwar gründete er seine Ueberzeugung auf folgende Erfahrungen[36]:
Der Zusammenhang zwischen der pathologischen Anatomie der Amöbenruhr und der Biologie der Dysenterieamöbe dürfte sich nach den gegenwärtigen Anschauungen folgendermaßen darstellen:
Die Dysenterieamöbe ist bisher in der Natur nur im Darm und einigen anderen Organen des Menschen beobachtet worden, experimentell gelingt ihre Uebertragung auf Katzen, Hunde und Affen. [S. 590]Im Darm findet sie sich beschränkt auf den Dickdarm und überschreitet niemals die Bauhinsche Klappe. Im Dünndarm wurde sie niemals nachgewiesen; besonders häufig ist sie im Coecum und im Wurmfortsatz. Außerdem wurde die Dysenterieamöbe in Abszessen der Leber, der Lunge, im Gehirn und in Mesenterialdrüsen gefunden; an alle diese Orte sind die Amöben wahrscheinlich sekundär vom Darm aus geraten.
Die aus den Cysten auskriechenden jungen Amöben verbreiten sich unter rapider Vermehrung nach erfolgter Infektion zunächst im Lumen des Darms. Bald beginnen sie aber auch mit Hilfe ihrer kräftigen Pseudopodienbewegungen, unterstützt durch ihr zähes Ektoplasma, in die Tiefe der Darmwandungen zu dringen. Sie werden zu Gewebeparasiten.
[S. 591]
Im Gegensatz zur Entamoeba coli vermag die Dysenterieamöbe tief ins Gewebe einzudringen. Bei Erkrankungen an Amöbendysenterie finden sich nicht nur zahllose Amöben im Darminhalt, mit welchem sie in die Faeces geraten, wo sie am leichtesten in den glasigen Schleimflocken nachweisbar sind, sondern sie leben auch in der Darmwand und durchwühlen deren sämtliche Schichten.
Wie schon Jürgens beobachtete und Schaudinn bestätigte, vermag die Dysenterieamöbe infolge der zähen Beschaffenheit ihres Pseudopodienplasmas sich überall einzuzwängen und durchzudrängen. [S. 592]An frischen Schnitten kann man die Amöben noch stundenlang zwischen den Gewebselementen herumkriechen sehen, wo sie die Zellen des Epithels auseinanderdrängen, sie auch ganz fortschieben, sie vor sich hertreiben, und sich in die engsten Spalten zwängen (zitiert nach Schaudinn).
So erklärt sich ihre pathogene, gewebezerstörende Wirkung; indem sie an einer Stelle durch das Epithel dringen, breiten sie sich in der Tiefe des Gewebes aus. Man findet sie „nicht selten an noch gesunden Stellen der Mucosa in den Lieberkühnschen Drüsen und kann sie dann in der Submucosa verfolgen; die Unterminierung der Schleimhaut und die Abszeßbildung in den späteren Stadien des Krankheitsprozesses erklären sich durch folgende Ueberlegungen. Die Epithelschicht dürfte ein gegen Eindringen von Fremdlingen widerstandsfähigeres Gewebe sein als die geschützteren tieferen Lagen der Darmwand, ferner besitzt sie größere Regenerationsfähigkeit als die Submucosa und drittens nimmt die Zahl der Amöben beim Tieferdringen zu. Diese drei Faktoren genügen meines Erachtens, um das charakteristische Bild der Amöbenenteritis mit ihren tiefen, oft sackförmig abgeschlossenen Geschwüren und Abszessen ungezwungen nur durch die natürlichen Wachstums- und Lebensbedingungen der Schmarotzer selbst und der von ihnen angegriffenen Gewebe zu erklären.“ (Schaudinn.)
Ob die Dysenterieamöbe bei ihren zerstörenden Wirkungen allein durch die Kraft ihrer Pseudopodientätigkeit wirkt, oder ob chemische Wirkung durch ausgeschiedene Stoffe mitbeteiligt ist, läßt sich bei dem gegenwärtigen Stand unserer Kenntnisse nicht mit Sicherheit entscheiden. Letzteres scheint mir anzunehmen. Zwar ist die Zahl der vorhandenen Amöben oft eine ungeheuer große, so daß sie wohl mit den hervorgebrachten Wirkungen im allgemeinen harmonieren würde, aber nach meinen eigenen Erfahrungen steht oft die Zahl der an einem Punkt vereinigten Amöben nicht im Verhältnis zu den dort hervorgerufenen Läsionen.
Die Amöben vermögen weiterhin aus dem Darm, wahrscheinlich mit Benutzung des Lumens des Ductus choledochus, in die Leber einzuwandern. Dort veranlassen sie die Entstehung von Leberabszessen, welche oft vollkommene Reinkulturen von Amöben enthalten. Die Abszesse sollen in solchen Fällen durchaus bakterienfrei sein.
Auch in anderen Organen wurden Amöbenabszesse gefunden, so in Lunge, Magen, Niere, im Gehirn, in Punktionskanälen etc.
Wenn also auch viele Fortschritte in der Erforschung der Amöbendysenterie in den letzten Jahren erzielt worden sind, so hat sich das Problem doch als komplizierter herausgestellt, als man ursprünglich annahm, und es bleibt für die fortschreitende Wissenschaft noch viel zu tun. Ein spezifisches Bekämpfungsmittel der Amöbeninfektion ist bisher nicht gefunden. Man behandelt lokal durch Chinin und Eucalyptolklystiere etc.; vielfach (im akuten Stadium) ist Kalomelkur mit Erfolg angewandt. Geeignete Diät und Aufsuchen der kalt-gemäßigten Zone ist noch immer die zweckmäßigste Kur.
Beim Menschen sind ferner folgende parasitische Entamöben gefunden worden:
[S. 593]
Entamoeba urogenitalis Baelz.
|
1883.
|
Baelz, in: Berliner klinische
Wochenschr. p. 237.
|
|
1892.
|
Jürgens, in: Deutsche
medizinische Wochenschrift. p. 454.
|
|
1893.
|
Posner, Ueber Amöben im Harn.
In: Berl. klin. Wochenschr. Vol. 30. No. 28. p. 674.
|
|
1893.
|
Kartulis, Ueber pathogene
Protozoen bei dem Menschen. In: Zeitschr. f. Hyg. und Inf. Vol. 13. p. 2.
|
In wiederholten Fällen fand man im blutigen Schleim oder Urin des entzündeten Urogenitalapparates Amöben. Ihre Größe wird zwischen 22 und 50 µ angegeben. Sie sollen sich langsam unter Bildung kurzer Pseudopodien bewegen. Das Plasma ist stark granuliert, enthält einen oder mehrere Kerne. Außer Zerfallsprodukten enthielten die Amöben auch rote Blutkörperchen. Gewisse Formen sind auch als Cysten gedeutet worden.
Sie wurden einmal in Schleimhautcysten der Harnblase beobachtet, in anderen Fällen war die Harnblase frei; es muß somit der Sitz der Infektion höher gelegen haben, wie Posner (Berliner klin. Wochenschr. 1893, No. 30, p. 674) annimmt, etwa in einer Cyste des Nierenbeckens.
Nach allen Beschreibungen ist die Amöbe kaum von der Entamoeba histolytica Sch. zu unterscheiden, und auch die klinischen Berichte sprechen nicht gegen eine Identifizierung mit derselben, doch sind unsere Kenntnisse über das Vorkommen der Art zu gering, um etwas Bestimmtes aussagen zu können.
Entamoeba Kartulisi (Doflein)[37].
|
1893.
|
Kartulis in: Zeitschrift für
Hygiene und Infektionskrankh. Vol. 13. p. 9.
|
Kartulis, der unermüdliche Erforscher der parasitischen Protozoen des Menschen, fand in Alexandria bei einem Araber in einem Falle Amöben in einer Geschwulst, welche mit einer Knochennekrose am rechten Unterkiefer zusammenhing. Die Geschwulst war etwa so groß wie eine Orange und sezernierte dicken Eiter durch eine Fistelöffnung. Der Eiter enthielt reichlich Bakterien, daneben Amöben von 30–38 µ Durchmesser. Diese Amöben zeigen keine sehr deutliche Trennung von Ekto- und Entoplasma, das letztere ist grobkörnig. Die Bewegung ist lebhafter als bei Entamoeba histolytica, es wird in der Regel nur ein Pseudopod ausgestreckt, öfters aber auch mehrere; dieselben sind lang und fingerförmig, sie erinnern in der Form oft „an die Fühlhörner einer Schnecke“. Ihre Länge übertrifft oft diejenige des ganzen Tiers. Das Hervortreten der Pseudopodien ist ein sehr plötzliches. Der Kern ist klein, „bläschenförmig, umgeben von einer hellen Zone, und besitzt einen deutlichen Nucleolus“; er tritt erst durch Färbung hervor. Eine kontraktile Vakuole wurde nicht beobachtet.
Die Nahrungsvakuolen enthielten Blut- und Eiterkörperchen. Ueber die Fortpflanzung wurde nichts beobachtet.
Diese Amöbe ist seither von ihrem Entdecker in Aegypten noch öfter beobachtet worden, und zwar in fünf Fällen bei Patienten, welche an Osteomyelitis des Unterkiefers litten. Auch in Nordamerika wurde [S. 594]sie durch Flexner (1892) beobachtet. Da sie nicht nur in Abszeßeiter vorkommt, sondern auch in die tieferen Schichten des Knochengewebes vordringt und dort Substanzverluste bedingt, hält Kartulis die Art für eine ausgesprochen pathogene. Die Beziehungen zur Entamoeba histolytica sind noch ganz unklar.
Entamoeba buccalis (Steinberg).
|
1862.
|
Steinberg in: Sowremenaja
Medicina. = Zeitschrift für gegenwärtige Medizin. No. 21–24 (russisch).
|
ist vielleicht identisch mit der später beschriebenen und neu benannten:
Entamoeba buccalis Prow.
|
1904.
|
Entamoeba buccalis Prowazek in:
Arbeiten aus dem Kais. Gesundheitsamte. Vol. 21. p. 42.
|
|
1905.
|
Leyden in:
Loewenthal, Entamoeba buccalis Prow. bei einem
Fall von Carcinom des Mundbodens. In: Charité-Annalen. Jahrg. 29.
|
Auch diese Amöbenart ist bisher ausschließlich im Menschen in wiederholten Fällen gefunden worden.
Sie ist eine ziemlich kleine, lebhaft bewegliche Amöbe, 6–32 µ im Durchmesser messend; in der Bewegung zeigt sie einen einfachen Umriß, nur wenige breitlappige Pseudopodien werden gebildet. Aehnlich wie E. histolytica und anders als E. coli zeigt sie auch in der Ruhe einen deutlichen Unterschied zwischen Ektoplasma und Entoplasma, welch ersteres stets als deutliche, stark lichtbrechende, homogene Zone ausgebildet ist. Das Entoplasma ist von einer großen Anzahl von Nahrungsvakuolen erfüllt, während eine kontraktile Vakuole fehlt.
Es ist ein relativ kleiner Kern (Durchmesser 1,5–4,5 µ) vorhanden, welcher, ähnlich wie bei E. histolytica, durch seine Armut an [S. 595]färbbaren Substanzen auffällt. Jedoch ist er beim lebenden Tier meist deutlich sichtbar. Er ist bläschenförmig, von rundlicher Form, starr und besitzt, ähnlich wie bei E. coli, eine dicke Membran. Ein Binnenkörper mit Chromatinkörnern ist vorhanden, ebenso eine periphere chromatinhaltige Zone, welche aber chromatinärmer ist als bei E. coli.
Agame Fortpflanzung ist in Form gewöhnlicher Zweiteilung bekannt geworden. Dabei teilt sich der Kern in ähnlicher Weise, wie dies oben (S. 158) für Amoeba vespertilio geschildert wurde, indem der Binnenkörper durch Mitose, die periphere Substanz durch Amitose zerteilt wird.
Prowazek hat auch Stadien beobachtet, welche er für Anzeichen einer ähnlichen Vermehrung hält, wie sie Schaudinn für E. histolytica angegeben hat. Er hat Austritt des Chromatins aus dem Kern und Bildung zahlreicher kleiner kugelförmiger Individuen beobachtet.
E. buccalis wurde beim Menschen in Deutschland, Istrien (Rußland?) beobachtet, und zwar meistens in kariösen Zähnen, aber auch bei einem Carcinom des Mundbodens im Detritus auf dessen Oberfläche. Sie dringt aber nicht in das Gewebe ein. Ihre Nahrung scheint vorwiegend aus Leukocyten und Bakterien zu bestehen.
Sie ist wohl identisch mit Amoeba dentalis Grassi 1879, Amoeba gingivalis Gros 1849 (?). Auch wird vermutet, daß die in Auswurf aus Lungenkavernen gefundene Amoeba pulmonalis Artault 1898 hierher gehört.
Entamoeba undulans Castellani.
|
1905.
|
Castellani, Observations on some
protozoa found in human faeces. In: Centralbl. Bakt. Abt. I. Orig. Vol.
38. p. 66.
|
Diese in Ceylon in einem Fall von Dysenterie beobachtete Form soll ein einziges, langes, schmales Pseudopodium und eine undulierende Membran besitzen. Vielleicht liegt ein Stadium eines darmbewohnenden Flagellaten vor.
In anderen Organismen sind eine ganze Reihe parasitischer Entamöben beobachtet worden, von denen wir folgende anführen:
Entamoeba muris (Grassi).
|
1881.
|
Amoeba muris Grassi, B.,
Intorno ad alcuni protisti endoparassitici ed appartenenti alle classe dei
flagellati, lobosi, sporozoi e ciliati. In: Atti della Società d. Scienze
naturali. Vol. 24. 1881. p. 181.
|
|
1907.
|
Wenyon, C. M., Observations on
the Protozoa in the intestine of Mice. In: Arch. f. Protistenk. Suppl.-Bd.
1. p. 169.
|
Diese Amöbe gleicht sehr der Entamoeba coli, mit welcher sie sich vielleicht bei genauerer Kenntnis als identisch herausstellen wird. Sie ist immerhin kleiner (15–20 µ) als die im Menschen gefundene Form; Grassi gab 13,2 µ als Durchmesser an; Wenyon fand Individuen bis zu 30–40 µ. Das Ektoplasma bildet eine dünne Schicht, welche nur bei der Bildung der Pseudopodien deutlich sichtbar wird. Ein kugliger Kern mit zentralem Binnenkörper ist deutlich sichtbar. Seine Struktur und relative Chromatinarmut erinnert an den Kern von Entamoeba coli. Die Teilung erfolgt unter Spindelbildung. Nur Zweiteilung ist beobachtet.
Vermehrungscysten mit 8 Kernen wurden beobachtet. Wenyon hat im Leben die Stadien verfolgt, welche der von Schaudinn bei Entamoeba coli beschriebenen Autogamie einer einzelnen sich encystierenden [S. 596]Amöbe und der metagamen Teilung des Synkaryons in die 8 Kerne entsprechen.
Die Fig. 526 illustriert diese Vorgänge.
E. muris kommt im Dünndarm, vor allem auch im Blinddarm der Hausmaus vor, oft in großen Mengen. Sie ernährt sich von Darminhalt, vor allem von Bakterien, Flagellaten und anderen etwa vorhandenen Parasiten, losgelösten Epithelzellen etc. und ist nicht pathogen.
Sie wurde in Italien, Deutschland, Frankreich gefunden und ist jedenfalls weit verbreitet.
Entamoeba ranarum (Grassi).
|
1881.
|
Grassi in: Atti della Società
ital. d. Scienze natural. Vol. 24. p. 182.
|
|
1908.
|
Dobell, On the intestinal
Protozoan Parasites of frogs and toads. In: Proc. Cambridge Philos. Soc.
Vol. 14. p. 428.
|
Schon Lieberkühn und Leuckart hatten diese ziemlich häufige Art beobachtet und erwähnt. Grassi gab die erste genauere Beschreibung, der zufolge die lebhaft bewegliche Amöbe ein deutliches Ekto- und Entoplasma zeigt. Im Habitus erinnert sie nach meinen Beobachtungen meist an Amoeba limax, indem sie wenig Pseudopodien [S. 597]bildet und länglich fingerförmig mit abgestumpftem Vorderende gegen das Hinterende verschmälert erscheint. Die Bewegung erfolgt durch Strömen der gesamten Körpersubstanz oder indem kurz vor dem Vorderende ein Pseudopodium bruchsackartig plötzlich nach der Seite hin hervorbricht; dasselbe besteht zuerst ausschließlich aus Ektoplasma, dann strömt Entoplasma nach, und indem die Amöbe sich weiter bewegt, wird das ursprüngliche Vorderende eingezogen und das seitliche Pseudopodium wird zu dem neuen Vorderende.
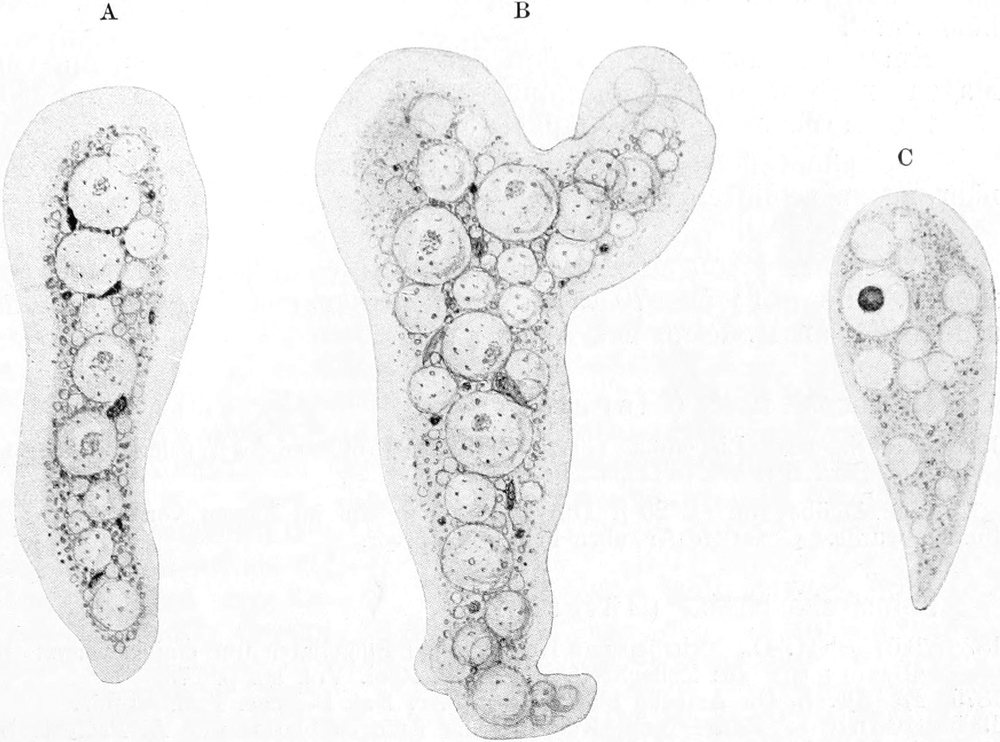
Die Amöbe kann 20–40 µ, selbst 60 µ Länge erreichen; kleinere ruhende Individuen mit lappigem Umriß messen 8–24 µ im Durchmesser (nach Dobell oft nur 3–5 µ).
In dem sehr flüssigen Entoplasma unterscheidet man einen rundlichen Kern mit Binnenkörper und zahlreiche Vakuolen. Der Kern hat einen Durchmesser von 4,4 µ. Nach Dobell verliert der Kern bei den heranwachsenden Formen seinen Binnenkörper. Die kleinen Formen teilen ihren Kern durch eine primitive Mitose (Fig. 528). Die Nahrungsvakuolen enthalten allerhand Detritus aus dem Darminhalt, und nach meinen Erfahrungen vielfach ebenfalls im Froschdarm parasitierende Flagellaten (Trichomonas etc.), welche die Amöbe — wie man leicht beobachten kann — durch Umfließen mit den Pseudopodien aufnimmt.
Während die kleinen Individuen sich nach Dobell häufig encystieren, haben nach ihm die großen die Fähigkeit dazu verloren, [S. 598]degenerieren regelmäßig und sterben ab. Die Cysten enthalten außer einer großen Vakuole zunächst einen Kern, der viel Chromatin an das Plasma abzugeben scheint und sich zweimal teilt. Dobell hat kein Anzeichen einer Autogamie beobachtet, wie Hartmann sie angibt. Vielmehr wird die Cyste in vierkernigem Zustand entleert und scheint bei neuer Infektion 4 junge Amöben zu produzieren. Vielleicht hat jedoch Dobell die eigentlichen Befruchtungscysten nicht beobachtet.
Entamoeba ranarum bewohnt den Darm von Rana esculenta vom Magen (nach meinen Beobachtungen) bis zum Anus (nach Grassi).
Sie wurde in Italien, England und Deutschland gefunden.
Nach dem Befinden der infizierten Frösche und nach ihrer Ernährung zu schließen, ist sie ein harmloser Kommensale.
Entamoeba testudinis Hartmann wurde in Testudo graeca gefunden. Sie mißt 50–70 µ im Durchmesser und erinnert im Aussehen sehr an E. tetragena.
Entamoeba bovis (Liebetanz).
|
1905.
|
Amoeba bovis Liebetanz. Die parasitischen Protozoen des
Wiederkäuermagens. In: Berl. tierärztl. Wochenschr. No. 18.
|
Eine Amöbe von ca. 20 µ Durchmesser, welche im Magen von Rindern gefunden wurde. Genauere Angaben liegen nicht vor.
Entamoeba blattae (Bütschli).
|
1878.
|
Bütschli, O., Beiträge zur Kenntnis der Flagellaten und
einiger verwandter Organismen. In: Zeitschr. f. wissensch. Zool. Vol.
30. p. 273.
|
|
1879.
|
Leidy, I., On Amoeba blattae.
Proc. Ac. Nat. Science. Philadelphia.
|
|
1905.
|
Schubotz, Beiträge zur Kenntnis
der Amoeba blattae und A. Proteus. In: Arch. f. Protistenk. Vol. 6. p. 1.
|
Diese nicht seltene parasitische Amöbe ist vor allem durch zwei auffallende Merkmale gekennzeichnet: durch eine merkwürdige faserige Struktur im Plasma und durch den Mangel an Nahrungsvakuolen. Auch ist die Bewegung sehr träge, und es werden nur wenige breitlappige Pseudopodien gebildet.
Entamoeba blattae erreicht einen Durchmesser von 80–100 µ, doch sind die Individuen meist kleiner (ca. 12–50 µ). Beim lebenden Tier ist kein Unterschied zwischen Ekto- und Entoplasma erkennbar. Die Faserung des Plasmas, welche für diese Amöbe so charakteristisch ist, wird durch das Vorhandensein eines sehr stark lichtbrechenden Bestandteiles im Plasma verursacht, welcher bald in Schollen und Inseln abgesondert, bald mit dem übrigen Plasma innig durchmischt erscheint.
In der Regel ist die Amöbe einkernig, doch finden sich auch Exemplare mit mehr (4–20 Kernen). Bei einkernigen ist der Kern groß (15–20, höchstens 30 µ Durchmesser) und von kugliger oder ellipsoidischer Form. Der Kern ist durch eine auffallend dicke Kernmembran ausgezeichnet (1–2 µ dick) (vergl. Fig. 7, S. 18). Der Kern von A. blattae zeigt eine zentrale Zone, in welcher nach Janicki ein kleines Karyosom liegt; die zentrale Masse ist chromatinarm, das gesamte Chromatin peripher angehäuft; dort finden sich auch die in der Mehrzahl vorhandenen, 2–5 µ im Durchmesser messenden [S. 599]Nukleolen. Kontraktile Vakuolen sind mehrere vorhanden, welche sich über die Oberfläche des Körpers emporheben und bei der Entleerung zusammenfallen.
Ueber die Fortpflanzung sind in der letzten Zeit mehrere Arbeiten erschienen, ohne daß durch sie die Entwicklungsgeschichte der interessanten Form vollkommen aufgeklärt wäre. Agame Zweiteilung ist beschrieben, ferner die Bildung von vielkernigen Cysten, welche aus den vielkernigen freibeweglichen Formen entstehen. Die Cysten haben einen Durchmesser von 30, 40 bis 70 µ. Sie besitzen eine zarte, ziemlich dicht anliegende Hülle von 2–3 µ Dicke, welche vollkommen durchsichtig, aber trotzdem sehr derb und widerstandsfähig ist. Das Plasma in den Cysten ist, wie das der freibeweglichen, aus den beiden Protoplasmaformen gebildet, von denen die dichte, dunkle, in der Mitte gelagerte, meistens die Kerne umschließt, während die weniger stark lichtbrechende peripher gelagert ist. In den Cysten findet man 20–30 Kerne, welche 4–6 µ Durchmesser haben, eine viel feinere Membran besitzen als die Kerne der freien Amöben, und im Zentrum nicht die schwach färbbare Region zeigen, sondern ziemlich gleichmäßig strukturiert sind.
Schon Bütschli und Grassi betrachteten diese Cysten als in den Entwicklungskreis der Entamoeba blattae gehörig; wir können dies heute als sicher annehmen, und wenn sich die Angaben von Mercier bestätigen lassen, so haben wir sie als Gametencysten zu betrachten. Nach diesem Autor nämlich löst sich die Cystenhülle nach Verfütterung im Darm der Küchenschaben ab, die Kerne ordnen sich an der Peripherie des Plasmas an, um jeden Kern kugelt sich eine Plasmapartie ab, und es befreien sich schließlich kleine amöboide Schwärmer von der zentralen Plasmamasse. Diese sind Gameten, sie kopulieren und aus der Zygote, welche amöboid bleibt, geht durch allmähliche Umwandlung und Wachstum die typische, erwachsene E. blattae hervor.
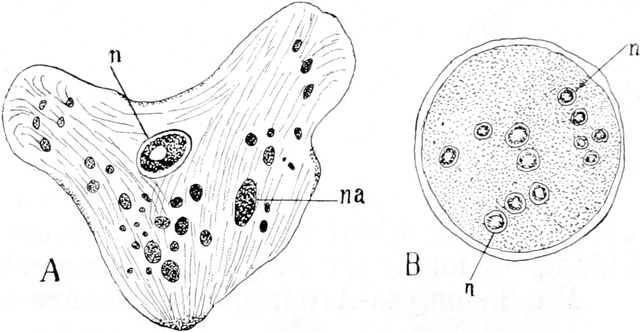
In dem Plasma der Amöbe befinden sich zahlreiche Nahrungspartikel (Fig. 529 A, na), welche nach Grassi aus Stärkekörnern, Sporen, Pilzmycelien und Bakterien bestehen. Diese kommen aus dem Darm des Wirtes, der Küchenschabe (Russen, Schwaben, Blatta [Periplaneta] orientalis), wo die Amöbe in Gesellschaft von Würmern, Infusorien und Flagellaten den erweiterten Anfangsteil des Enddarms, unmittelbar hinter der Einmündungsstelle der Malpighischen Gefäße, bewohnt; im Vorder- und Mitteldarm wird sie nicht gefunden.
Die Nahrung der Küchenschabe, dieses parasitenreichen Hausinsektes, besteht zum großen Teil aus stärkemehlhaltigen Stoffen; Mehl, angeschimmeltes Brot, Kartoffelreste etc. wird von ihm, besonders in den Bäckereien und Mühlen, seinem bevorzugten Aufenthaltsort, gefressen. Die Nahrungskörper im Innern der Amöbe sind also dem [S. 600]normalen Darminhalt des Wirtes entnommen, wenn es auch nicht nachgewiesen ist, ob sie die Stärkekörner zu verdauen vermag.
Jedenfalls ist E. blattae nur ein harmloser Kommensale, welcher seinen Wirt nicht schädigt. Meist sind nicht sehr viele Individuen vorhanden, doch kommen auch recht reichliche Infektionen vor. Meist sind an einem Ort nicht alle Schaben infiziert, sondern nur 5–20 Proz. der untersuchten Exemplare.
Die Art scheint weit verbreitet zu sein. Sie wurde in Deutschland (in Baden, Preußen, Bayern), in Italien und in Nordamerika gefunden. Sie wird wohl ebenso kosmopolitisch geworden sein, wie ihr Wirt.
Gattung: Pelomyxa Greeff.
|
1874.
|
Greeff, Arch. f. mikr. Anatomie.
Vol. 10. p. 51. (Angeblich Chaos-Linnaeus 1767.)
|
Diese Gattung enthält meist große Amöbenarten, welche sich in stumpfer, breitlappiger Form langsam bewegen. Sie fließen resp. rollen meist ohne Pseudopodienbildung dahin, indem sie gegen das Vorderende zu angeschwollen erscheinen. Sie sind zwei bis vielkernig. Ihr Plasma ist meistens nicht deutlich in Zonen geschieden und ist mit vielen Körpern von verschiedener Art angefüllt, vor allem mit kleinen Sand- und Schlammpartikeln, oft auch mit stäbchen- oder bakterienartigen Körpern sowie mit den sogenannten Glanzkörpern; letztere sind Gebilde von glykogenartiger Substanz, welche aus dem Kerne stammen (nach Goldschmidt). Nach Stolc und Bott sind sie als Reservestoffbehälter aufzufassen, welche bei Fütterung anschwellen, bei Hunger abnehmen. Eine kontraktile Vakuole ist nicht nachgewiesen.
Agame Fortpflanzung erfolgt durch Zweiteilung resp. Plasmotomie. Andere agame Fortpflanzungsformen sind unbekannt. Gametenbildung ist unten für P. palustris angegeben, doch unsicher.
Die Pelomyxa-Arten sind Bewohner stark fauligen Süßwassers.
Pelomyxa palustris Greeff.
|
1874.
|
Greeff, R., Pelomyxa palustris,
ein amöbenartiger Organismus. In: Arch. f. mikr. Anatomie. Vol. 10.
|
|
1906.
|
Bott, K., Ueber die
Fortpflanzung von Pelomyxa palustris. Arch. f. Protistenkunde. Vol. 8. p.
120. (Dort die wichtigste Literatur.)
|
Diese größte Amöbe, welche ich als Beispiel einer vielkernigen Amöbe aufführe, erreicht einen Durchmesser von 3–15 mm. Ihr Umriß ist meist ein sehr einfacher, indem ihr ganzer Körper in der Bewegung gleichsam ein einziges breit abgerundetes Pseudopodium darstellt. Meist ist im Leben kein deutlicher Unterschied zwischen Ektoplasma und Entoplasma erkennbar. Das Innere des Entoplasmas ist von zahlreichen Vakuolen erfüllt.
Es sind zahlreiche Kerne vorhanden, bei sehr großen Exemplaren oft über 100, welche klein, bläschenförmig und mit deutlichem zentralen Binnenkörper versehen sind.
Im Plasma sind zahlreiche „Glanzkörper“ und bakterienähnliche Stäbchen enthalten. Die Individuen sind in der Regel mit vielerlei Fremdkörpern, Schlamm- und Sandpartikeln, pflanzlichen Resten, Stärkekörnern etc. erfüllt und sind infolgedessen oft bräunlich bis schwärzlich gefärbt und vollkommen undurchsichtig.
[S. 601]
Greeff, Penard, Bott und andere haben beobachtet, daß aus den Pelomyxen zuzeiten kleine Amöben in Massen auskriechen. Sie fassen dies als eine Fortpflanzungsform der Pelomyxen auf. Bott beobachtete Entstehung dieser kleinen Amöben aus „Keimkugeln“, deren Leib sich aus den Pelomyxakernen bildet, während der Binnenkörper des Kerns den Kern liefert, welcher zwei Reduktionsteilungen durchmacht, worauf das ganze Gebilde sich mit einer eigenartig skulptierten Hülle umgibt. Aus derselben und aus dem Körper der Pelomyxa kriechen dann die kleinen Amöben hervor, welche heliozoenartig mit strahligen Filopodien umgeben sind. Es sind nach Bott die Gameten. Je zwei kopulieren und aus der heranwachsenden Zygote soll sich wieder eine Pelomyxa entwickeln. Es ist nicht ausgeschlossen, daß Täuschung durch Parasitismus vorliegt.
Ziemlich häufig in stehenden Gewässern, auf schlammigem Grund, besonders in ziemlich stark fauligem Wasser.
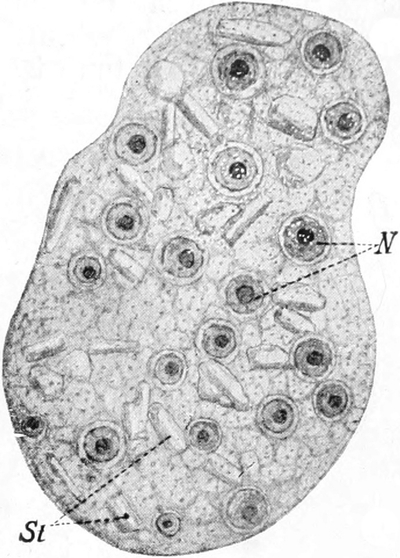
Pelomyxa binucleata Gruber.
|
1884.
|
Amoeba binucleata Gruber, A.,
Studien über Amöben. In: Zeitschr. Wiss. Zool. Vol. 41. p. 208.
|
|
1895.
|
Amoeba binucleata Schaudinn, F.,
Ueber die Teilung von A. binucleata. In: Sitzungsber. Ges. Naturf. Freunde
Berlin. Nr. 6. p. 130.
|
Diese Form gehört offenbar in die Gattung Pelomyxa, mit welcher sie auch an gleichem Ort vorkommt. Sie ist besonders interessant durch ihre Zweikernigkeit und die simultane mitotische Teilung der Kerne (vgl. Fig. 244 A–C, S. 242 und Fig. 531).
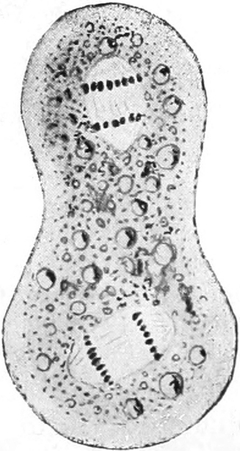
Gattung: Paramoeba Schaudinn.
|
1896.
|
Schaudinn, F., Ueber den
Zeugungskreis von Paramoeba Eilhardi n. g. n. sp. In: Sitzungsber. der K.
Pr. Akad. d. Wiss. Berlin. p. 31.
|
Diese eigenartige Gattung ist nach Schaudinn charakterisiert (in der von ihm beschriebenen Art P. Eilhardi aus Seewasseraquarien) durch einen eigenartigen Nebenkörper neben dem Kern (vgl. Fig. 532), welcher sich wie ein Centrosoma verhält, und durch die Fortpflanzung. Außer der gewöhnlichen Zweiteilung findet nämlich noch Teilung in einer Cyste statt. Kern und Nebenkörper werden in zahlreiche Teilprodukte geteilt, welche sich so zusammenfinden, daß je ein Kern und Nebenkörper sich nebeneinander lagern. Der [S. 602]Teilungsmodus beider wurde nicht beobachtet. Aus der Cyste schlüpfen kleine, farblose zweigeißelige Flagellaten aus, welche je einen Kern und Nebenkörper besitzen und nach einiger Zeit 2 braungelbe Chromatophoren aufweisen. Die Flagellatengeneration, welche also sehr an Cryptomonas erinnert, vermehrt sich durch Längsteilung. Aus den Flagellaten gehen wieder chromatophorenlose Amöben hervor.
Die Angaben über das Verhalten der Chromatophoren mahnen sehr zur Vorsicht und erregen den Verdacht, daß 2 verschiedene Formen kombiniert wurden.
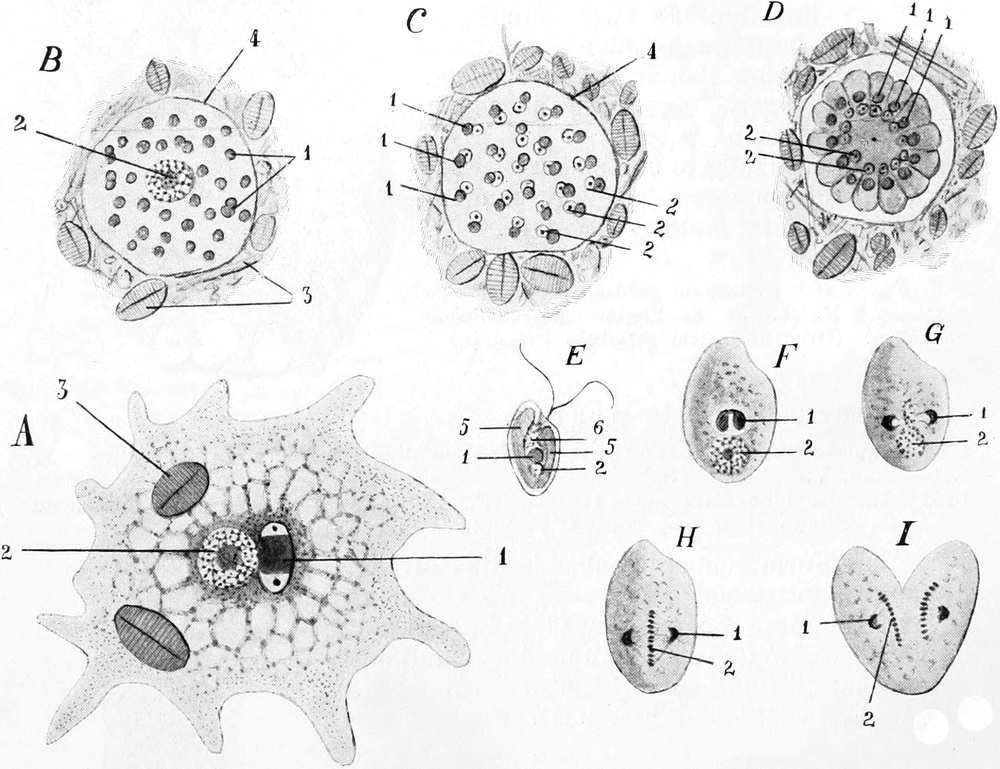
Mit dieser Gattung ist von Craig eine Form in Zusammenhang gebracht worden, welche im Darm des Menschen auf den Philippinen beobachtet wurde. Es ist dies eine kleine Amöbe, Paramoeba hominis Craig 1906 (Craig, C. F., A new intestinal parasite of man: Paramoeba hominis. In: Amer. Journ. Med. Sci. Vol. 132. No. 5. p. 214), welche in 6 Fällen meist allein, einmal mit Entamoeba histolytica zusammen gefunden wurde. Das Amöbenstadium erinnert an Entamoeba coli, indem beim ruhenden Individuum Ekto- und Entoplasma undeutlich, bei dem in Bewegung befindlichen deutlich geschieden sind. Die erwachsene Amöbe hat einen Durchmesser von 15–25 µ. Sie nimmt rote Blutkörperchen auf. In den Faeces kann man sie unter lebhafter Rotation des Plasmas kuglige Cysten bilden sehen, während gleichzeitig auch noch Individuen durch gewöhnliche [S. 603]Zweiteilung sich vermehren. Die Cysten messen 15–20 µ im Durchmesser. Sie sind zunächst einkernig. Dann zerfällt der Inhalt in eine größere Anzahl kugliger Körper, die Cyste verschwindet und aus jedem der Körper wird durch Auswachsen der Geißel ein Flagellat, welches sich lebhaft — die Geißel nach hinten gerichtet — bewegt. Vermehrung der Flagellaten wurde nicht beobachtet. Die Flagellaten wachsen heran und messen schließlich 10–15 µ, sind fast kuglig, mit Ausnahme des Geißelursprungs, welcher etwas vorgezogen ist; in dieser Region liegt auch der Kern. Die Flagellaten nehmen ebenfalls rote Blutkörperchen auf. Später wandeln sie sich nach Verlust der Geißeln in kleine Amöben um, die allmählich zur Normalgröße heranwachsen.
Anzeichen von Kopulation wurden nicht beobachtet.
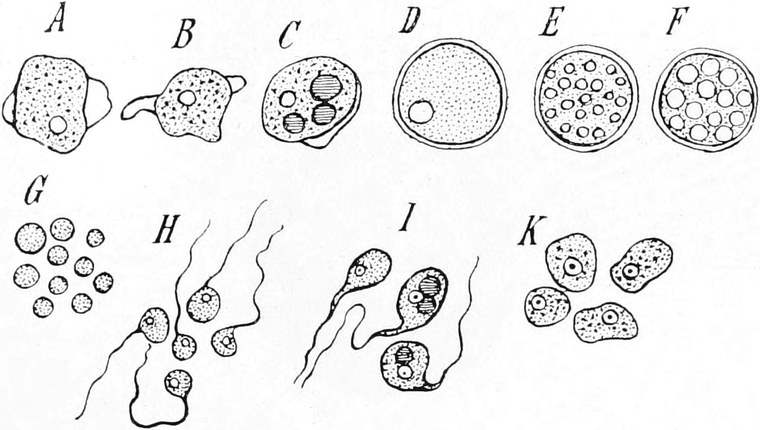
Craig fand die Form auf den Philippinen und bei Eingeborenen, welche an schweren Diarrhöen litten, und vermutet häufigeres Vorkommen. Er bestreitet die Möglichkeit eines Zusammenhangs der Flagellaten mit Trichomonas oder Cercomonas.
Wenn sich seine Befunde bestätigen lassen, so muß jedenfalls für die Form eine besondere Gattung geschaffen werden.
II. Ordnung:
Heliozoa.
Haeckel.
Die Heliozoen gehören zu den bestbekannten Rhizopoden. Sie verdanken ihren Namen der Form ihres Körpers, welcher kuglig ist und von welchem nach allen Seiten die Pseudopodien wie Strahlen abstehen. Eine Hülle, welche aus Kieselsäure besteht, kann vorhanden sein oder fehlen; die Pseudopodien sind Filopodien, oft auch Axopodien. Körnchenströmung ist oft sehr gut sichtbar, Neigung der Pseudopodien zu Anastomosenbildung und Verzweigung ist selten. Die Achsenfäden der Axopodien endigen entweder frei im Plasma oder finden einen Stützpunkt an Zellkernen oder an dem bei manchen Formen vorkommenden Zentralkorn.
[S. 604]
Das Körperplasma zeigt meist eine Scheidung in zwei Regionen, Ekto- und Entoplasma, welche auch als Rinden- und Marksubstanz unterschieden werden. Das Ektoplasma ist gröber vakuolisiert und grobkörniger, als das mit kleineren Vakuolen versehene feinkörnige Entoplasma. Das Entoplasma enthält die Kerne, welche bläschenförmig sind und meist keinen zentralen Binnenkörper besitzen. Es gibt einkernige und mehr- bis vielkernige Heliozoen. Im Entoplasma finden sich oft Massen einer stark lichtbrechenden und färbbaren, chromidienartigen Substanz. Im Ektoplasma finden sich eine oder mehrere kontraktile Vakuolen.
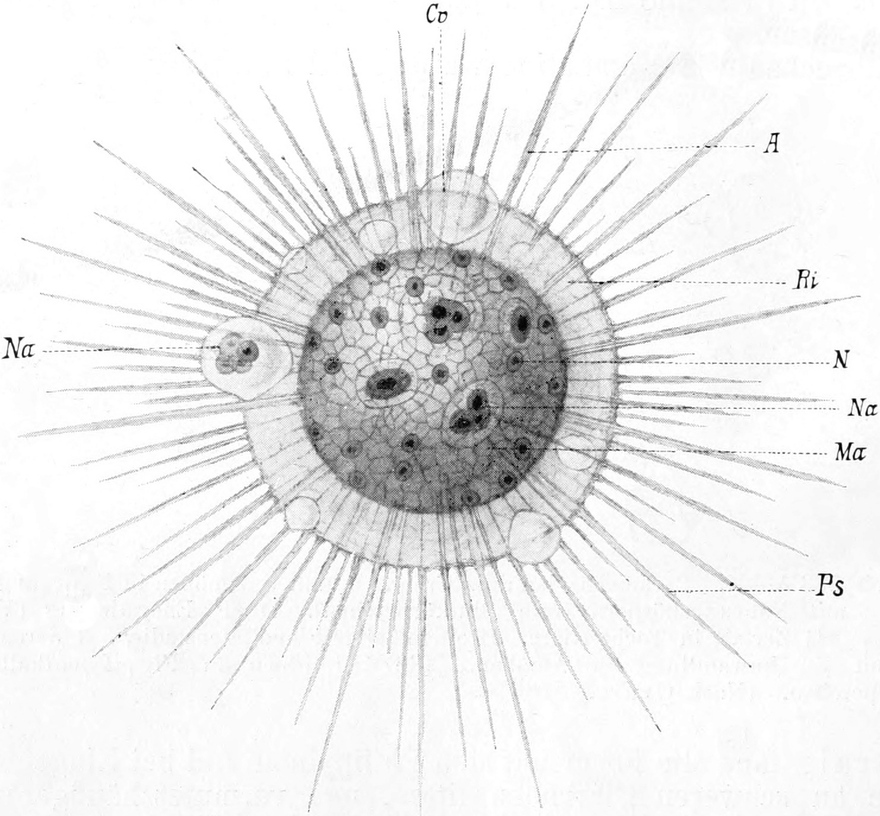
Die Hüllen der Heliozoen bestehen in manchen Fällen aus Gallerte, welche auch Fremdkörper (Diatomeenschalen, Sandkörner) einbeziehen kann. Außerdem kommen die kieseligen Skelette vor, welche entweder aus zahlreichen lockeren Gebilden zusammengefügt oder solid sind, indem sie eine Gitterkugel mit zahlreichen runden oder polygonalen Löchern bilden. Im ersteren Fall kommen als Skelettelemente, Kugeln, Scheibchen, Plättchen, Nadeln, solide und hohle Stacheln aus Kieselsäure vor. Die Form der Nadeln und Stacheln ist eine sehr mannigfaltige, es kommen Sicheln, Trichter, Gabeln, Kopfnadeln etc. vor. Während die übrigen Elemente konzentrische Schichten um den Heliozoenkörper bilden, zum Teil tangential gelagert sind, stehen die Stacheln radial zwischen den Pseudopodien und erhöhen den sonnenartigen Eindruck der sie besitzenden Formen.
[S. 605]
Während die Mehrzahl der Arten freibeweglich, zum Teil im Wasser schwebend lebt, sind einige Gattungen festsitzend und gestielt.
Die Heliozoen leben holozoisch durch Aufnahme geformter Nahrung: sie fangen und nehmen mit den Pseudopodien allerhand kleine Protisten auf, die größeren Formen, wie Actinosphaerium, auch kleine Metazoen. Manche Formen sind grün gefärbt durch den Besitz von symbiotischen Algen. Parasitische Heliozoen sind bisher mit Sicherheit nicht bekannt geworden. Formen, welche möglicherweise zu ihnen Beziehungen haben, sind im Anhang zu den Rhizopoden angeführt.
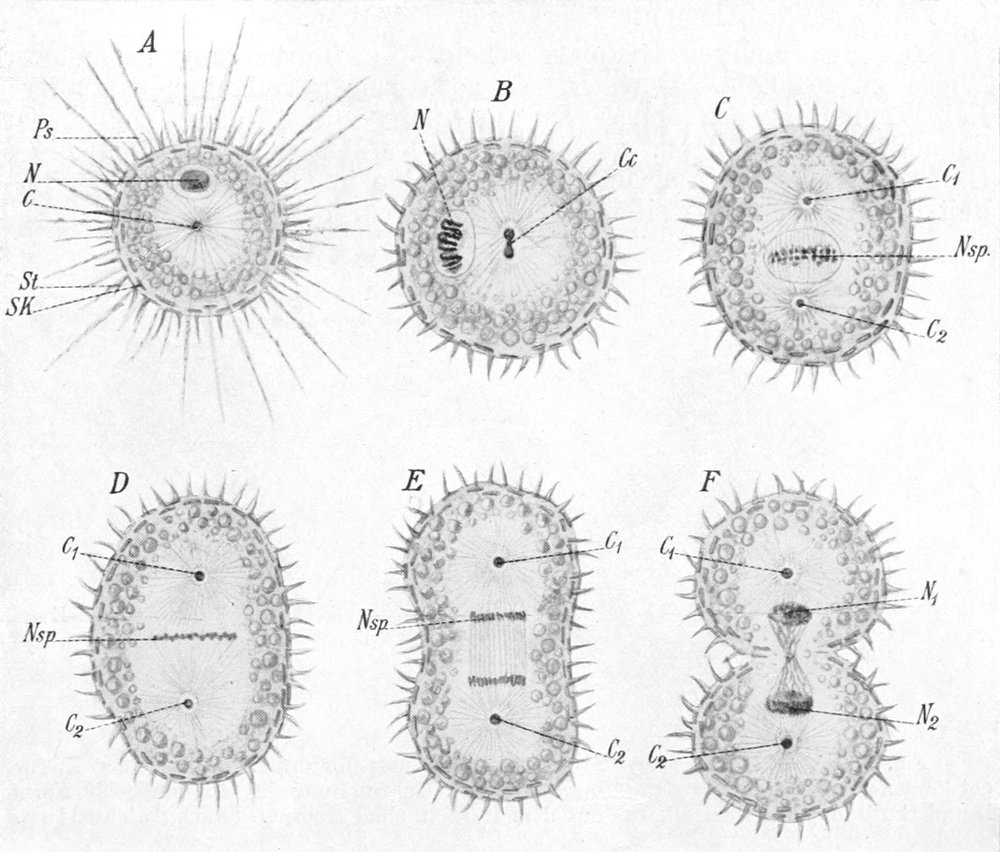
Die agame Fortpflanzung findet durch Teilung und Knospung statt. Bei den vielkernigen Formen handelt es sich um Plasmotomie. Bei den einkernigen Formen wird der Kern, und wenn ein Zentralkorn vorhanden ist, auch dies bei der Körperteilung geteilt (vgl. Fig. 535). Bei der Knospung sind die entstehenden Individuen zunächst ohne Zentralkorn; letzteres wird aus dem Kern neu gebildet. Die bei der Knospung entstandenen Individuen können (z. B. bei Acanthocystis) zwei Geißeln bilden und als Schwärmer davonschwimmen (Fig. 536).
[S. 606]
Geschlechtliche Vorgänge sind nur bei den Aphrothoraca genauer studiert worden. Die eigenartige Form der Isogamie ist bei Actinosphaerium und Actinophrys oben (S. 173 und 207) geschildert worden. Es kommt bei diesen Formen Hologamie resp. eine Art von Autogamie vor, welche bei den vielkernigen Formen von der Bildung einkerniger Individuen ausgeht. Bei Actinosphaerium teilen sich diese Individuen in zwei Gameten (Fig. 211 und 212), deren Kerne Reifungsteilungen mit typischer Richtungskörperbildung durchmachen, um sodann zur Zygote zu verschmelzen. Aus der Zygote schlüpft nach einer Ruheperiode dann ein schon mehrkernig gewordenes kleines Actinosphaerium aus. Alle diese Vorgänge erfolgen innerhalb gallertiger Cystenhüllen, welche kieselige Elemente eingelagert enthalten.
Bei den anderen Gruppen scheint die Befruchtung in anderer Weise zu erfolgen. Doch ist sie noch sehr unvollkommen studiert. Bei Wagnerella soll durch Kernknospung die Bildung zahlreicher Sekundärkerne erfolgen, welche zu den Kernen kleiner zweigeißeliger Gameten werden. Aus letzteren soll eine in der Gestalt Besonderheiten aufweisende zweite Generation hervorgehen.
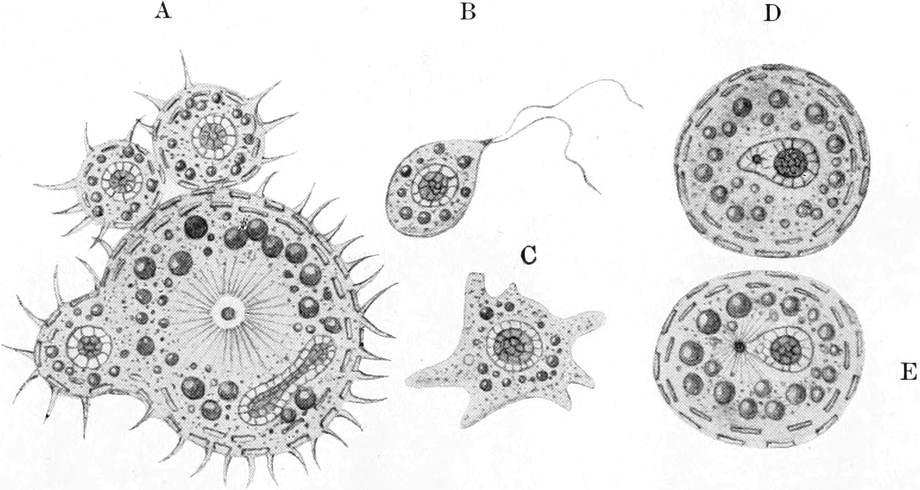
Die Heliozoen sind marine und Süßwassertiere, meist Bewohner der Strandregion, selten pelagisch vorkommend. Sie heften sich vielfach an Wasserpflanzen, Steinen u. dgl. dauernd oder vorübergehend an. Sie ziehen meist klares, sauerstoffreiches Wasser vor, doch kommen z. B. Actinophrys und Actinosphaerium in fauligem Sumpf- und Tümpelwasser oft mit Stentor, Amoeba Proteus, Frontonia etc. massenhaft vor. Die kleinen Formen sind besonders in torfigen Gewässern zu finden.
Es sind nur wenige Arten genauer studiert; daher ist die Systematik noch unsicher. Eine Gruppierung in Familien ist noch nicht möglich, doch ist eine Einteilung in 4 Unterordnungen nach R. Hertwig und Schaudinn durchzuführen, wobei sich die 1. Ordnung (Aphrothoraca) in vielen Eigenschaften den übrigen schärfer gegenüberstellt, so daß vielleicht einmal eine andere Einteilung der [S. 607]Rhizopoden auf diesen Spalt innerhalb der Heliozoen Rücksicht wird nehmen müssen.
Wir teilen die Ordnung folgendermaßen in 4 Unterordnungen:
|
1.
|
Unterordnung:
|
Aphrothoraca R. Hertwig
|
|
2.
|
„
|
Chlamydophora Archer
|
|
3.
|
„
|
Chalarothoraca R. Hertwig und Lesser
|
|
4.
|
„
|
Desmothoraca R. Hertwig und Lesser.
|
Die Einteilung ist wesentlich auf den Bau und die Gestalt der Hüllbildungen und Skelette basiert, welche auch bei der Unterscheidung der Gattungen eine Hauptrolle spielen.
1. Unterordnung.
Aphrothoraca R. Hertwig.
Formen ohne Hüllen und Skelette, welche nur während der Encystierung Hüllen bilden. In diese Unterordnung gehören die besterforschten Heliozoen, welche am meisten zur oben gegebenen Charakteristik der Ordnung beitrugen.
Von Gattungen sind zu erwähnen:
Monobia Aim. Schneider (M. confluens Aim. Sch.). Körperform in der Ruhe kuglig, in der Bewegung amöboid, mit allseitigen, spindelförmige Anschwellungen zeigenden Pseudopodien. Ein Kern und eine kontraktile Vakuole. M. confluens vermehrt sich durch Zweiteilung, wobei die Individuen mitunter durch lange Plasmabrücken kolonial verbunden bleiben.
Süßwasser und feuchte Erde.
Actinophrys Ehrenberg (A. sol Ehrbg., Fig. 179, S. 173). Körper kuglig mit nach allen Seiten abstehenden Pseudopodien; Achsenfaden bis zu dem zentral gelegenen Kern reichend. Die Nahrung besteht in Monaden, Bakterien etc. Zweiteilung und Kopulation (Isogamie und Autogamie) innerhalb einer Cyste ist bekannt (vgl. Fig. 179).
Süßwasser und Meer.
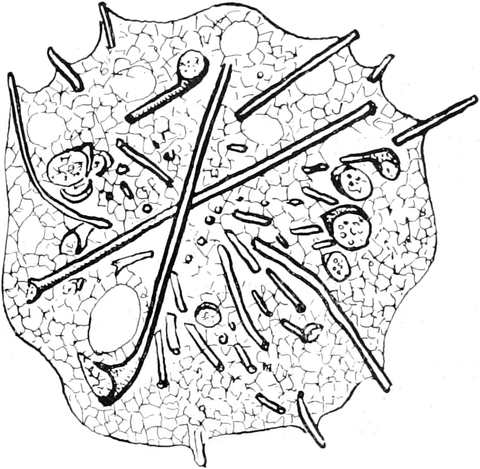
Actinosphaerium Stein (A. Eichhorni Ehrbg., Fig. 534). Kuglige, relativ große Form, 1 mm und etwas darüber Durchmesser erreichend. Ekto- und Entoplasma schärfer geschieden als bei Actinophrys. Achsenfäden der Pseudopodien nur wenig über die Grenze des Ektoplasmas vordringend. Im Entoplasma zahlreiche Kerne (bis 200 und mehr). Im Ektoplasma 2–14 kontraktile Vakuolen. Die Nahrung besteht in größeren Infusorien (besonders Stentorarten), in Arcellen etc., auch kleinen Metazoen. Es kommt auch eine Rasse mit kommensalen grünen Algen vor. Teilung durch Plasmotomie. Bei der Encystierung Abscheidung einer Gallerthülle und Teilung in Sekundärcysten. Autogamie resp. pädogamische Inzucht siehe oben [S. 608] S. 208. Die Art ist im Süßwasser weit verbreitet, sie verträgt ziemlich fauliges, an organischer Substanz reiches Wasser.
Camptonema Schaudinn (Camptonema nutans Schaud., Fig. 537 und 538). Vielkernige, kuglige oder schwach amöboide Form, deren Pseudopodien Achsenfäden besitzen, welche an ihrer Basis je einen der Kerne mit einer kappenartigen Verbreiterung umfassen. Die Pseudopodien machen nutierende Bewegungen und können bei der Berührung umknicken. 120–180 µ Durchmesser.
Marin. Norwegen.
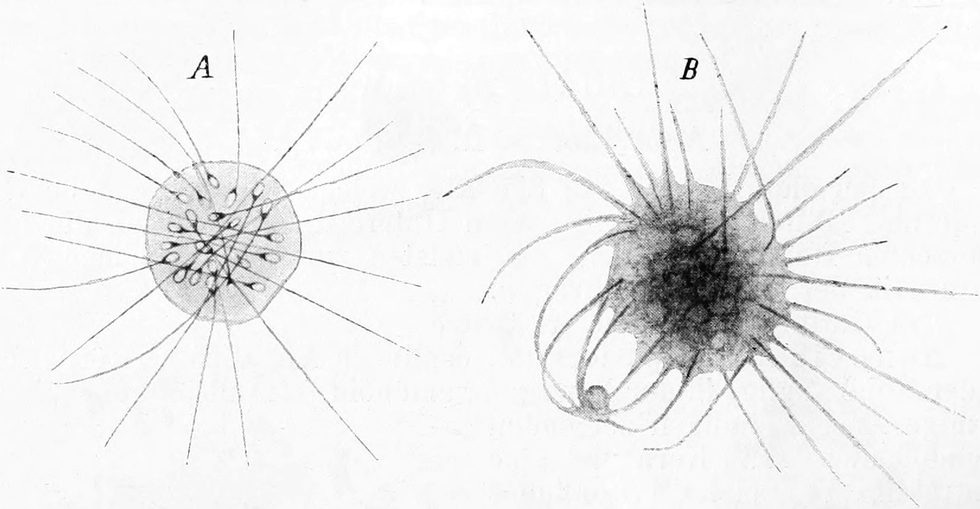
Gymnosphaera Sasaki (G. albida Sas.). Kuglige Heliozoe, deren Entoplasma eine zentrale chromidienartige Differenzierung zeigt. Zahlreiche Kerne, jedoch ein Zentralkorn, in welchem sich die Achsenfäden der sehr zahlreichen, langen (bis 800 µ) Pseudopodien vereinigen. Durchmesser des Körpers bis 140 µ.
Marin; in Aquarienwasser aus der Adria.
2. Unterordnung.
Chlamydophora Archer.
Die noch wenig erforschten Gattungen dieser Unterordnung, welche meist ziemlich klein sind (20–50 µ Durchmesser) besitzen eine kuglige, weiche, meist gallertige Hülle; sie scheiden keine kieseligen Skelettelemente aus, wohl aber agglutinieren sie manchmal Fremdkörper.
Sphaerastrum Greeff (Sph. Fockei [Arch.], Fig. 539). Abgeplattete Form mit dicker Gallerthülle, mit zackigen Fortsätzen an der Oberfläche. Einkernig mit Zentralkorn. Oft in Kolonien von bis zu 20 Individuen vereinigt. Durchmesser des Einzelindividuums ca. 30 µ.
Sumpfwasser.
Elaeorhanis Greeff (E. cincta Gr.). Kuglige, kleine Form mit wenig Pseudopodien, mit einer Hülle aus Diatomeenschalen und [S. 609]Sandkörnchen. Im Innern des farblosen Plasmas ein großer gelber oder brauner Oeltropfen.
Süßwasser. Deutschland.
Lithocolla F. E. Schulze und Lithosphaerella Frenzel sind Gattungen mit einem Kern und einer kontraktilen Vakuole, welche ihren kugligen Körper in einer Hülle aus feinen Sandkörnchen verbergen, aus welcher sie ihre wenig zahlreichen Pseudopodien allseitig hervorstrecken.
Süßwasser und Meer.
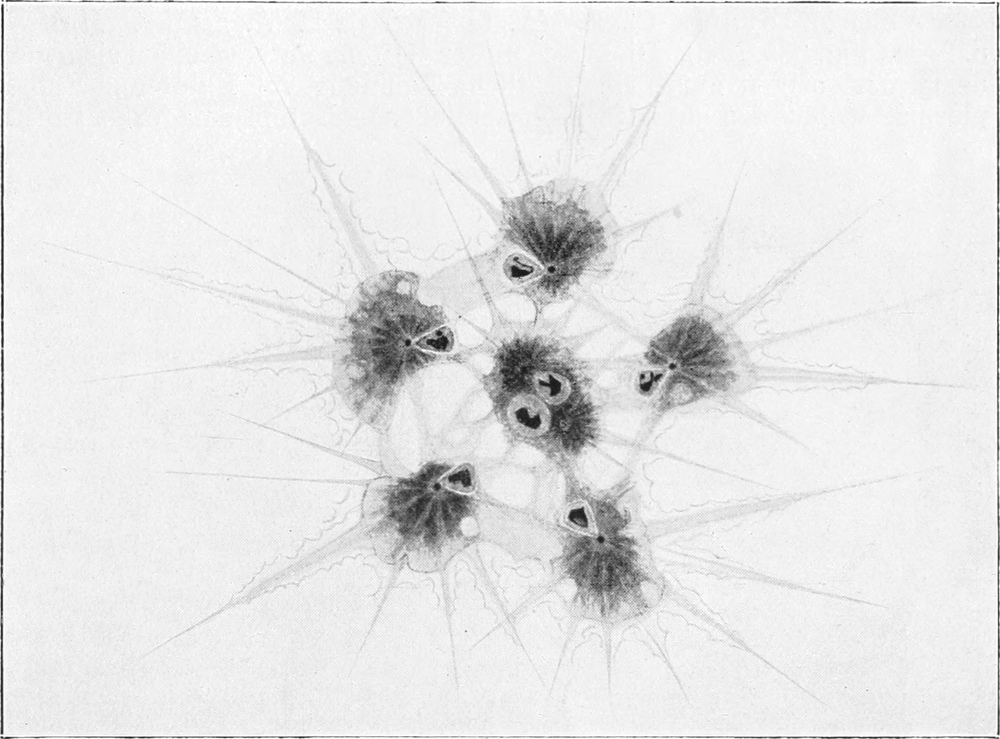
3. Unterordnung.
Chalarothoraca R. Hertwig und Lesser.
Diese interessante Gruppe umfaßt eine größere Anzahl von Arten, welche dadurch ausgezeichnet sind, daß ihr kugliger Körper von einer selbsterzeugten losen Hülle aus einzelnen kieseligen Elementen eingehüllt ist. Die Formen dieser Unterordnung haben besonders interessante Aufschlüsse geliefert über das Verhalten des Zentralkorns, über die Knospung und Schwärmerbildung. Vielleicht ist bei ihnen die Gametenbildung und Kopulation ganz verschieden von den entsprechenden Erscheinungen bei den Aphrothoraca.
Raphidiophrys Archer (Raphidiophrys pallida F. E. Schulze, R. elegans Hertw. u. Less.). Freilebende Gattung von kugliger Körpergestalt, bei welcher Ekto- und Entoplasma nicht deutlich geschieden sind. Dagegen ist der Körper von einer relativ festen Hülle umgeben, [S. 610]welche aus meist tangential gelagerten Nadeln besteht. Die Nadeln sind gerade, schwach oder stark gekrümmt, spitz oder stumpf; nach diesen Unterschieden werden die verschiedenen Arten charakterisiert. An der Basis der Pseudopodien erheben sich die Nadeln manchmal zu radial abstehenden Büscheln. Ein Zentralkorn ist wohl stets vorhanden, aber nicht bei allen Arten nachgewiesen. Es ist ein exzentrisch gelegener Kern, kontraktile Vakuolen eventuell mehrere vorhanden (Fig. 540).
Süßwasserformen, in Europa, Amerika und Australien nachgewiesen.
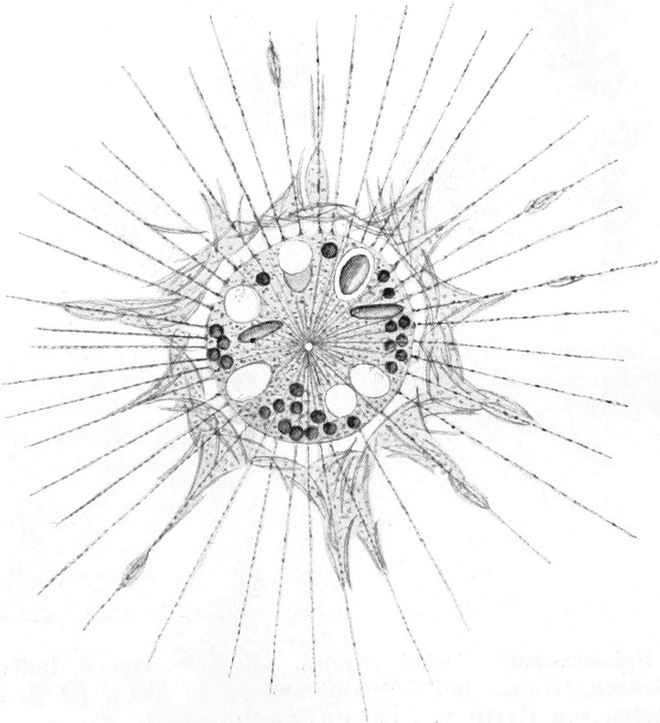
Acanthocystis Carter (A. turfacea Cart., A. aculeata Hertw. u. Less., Fig. 535, 536). Die Arten dieser Gattung unterscheiden sich von denen der vorigen durch die deutliche Trennung von Ekto- und Entoplasma, wobei das den Kern umschließende Entoplasma exzentrisch liegt; in dem letzteren chromidienartige Substanzen. Zentralkorn vorhanden. Bei manchen Arten ist eine Hülle aus tangentialen Nadeln oder Plättchen vorhanden, bei allen sind radiäre Stacheln vorhanden, welche trompetenförmig, gegabelt, stecknadelförmig etc. ausgebildet sein können. Manchmal gibt es zweierlei Arten von Stacheln, von denen die einen vielfach hohl sind. Fortpflanzung durch Teilung, Knospung und Schwärmerbildung beobachtet (Fig. 535, 536). Marin und Süßwasser, in Europa, Australien, Asien nachgewiesen.
Wagnerella Mereschkowsky (Wagnerella borealis Mereschk., Fig. 541). Festsitzende, gestielte Form, von hantelförmiger Gestalt des Plasmakörpers, welche dadurch entsteht, daß die Basis des Tieres, welche der Unterlage aufgewachsen ist, verdickt ist und auf ihr sich der schlanke Stiel erhebt, welcher den Kopf, einen kugligen Plasmakörper, [S. 611]von dem die Pseudopodien ausstrahlen, trägt. Letzterer Achsenfäden vereinigen sich in dem im Mittelpunkt des Kopfes gelegenen stark färbbaren Zentralkorn. In der verdickten Basis liegt der bläschenförmige Kern. Der ganze Plasmakörper, besonders Basis und Stiel, sind von einer eiweißartigen, festen Hülle umgeben, welche zahlreiche kleine, bogenförmige Kieselnadeln enthält; vom Kopf, der selbst aus der Hülle hervorragt, strahlen zahlreiche lange, gerade, solide Stacheln aus, welche durch eine Gallerte zusammengehalten werden.
Die Teilung, welche sehr an die von Acanthocystis erinnert, und bei welcher der Kern in den Kopf hinauf wandert, führt zur Bildung von 2 oder mehreren Tochtertieren. Außerdem kommt Knospung vor, bei welcher sich vom Kern Chromatinpartikel loslösen, welche zu den Kernen der Knospen werden; aus ihnen tritt dann das neue Zentralkorn für die Knospe aus.
Ferner kommt nach Marg. Zülzer Bildung von Sekundärkernen vor, indem der polyenergide Primärkern sich allmählich oder plötzlich in zahlreiche Monokaryen auflöst.
Zülzer unterscheidet zwei Generationen, eine schlanke und eine dicke, von denen sie vermutet, daß die eine geschlechtlich, die andere ungeschlechtlich ist. Aus den Sekundärkernen gehen bei der dicken Generation die zahlreichen Kerne der zweigeißeligen Gameten hervor.
Marin. Weißes Meer und Mittelmeer.
[S. 612]
4. Unterordnung.
Desmothoraca R. Hertwig und Lesser.
Formen mit kugligem, solidem Kieselskelett, welches, von zahlreichen Löchern durchbrochen, eine Gitterkugel bildet. Gestielt oder ungestielt.
Clathrulina Cienkowsky (C. elegans Cienk., Fig. 542). Gattung mit undeutlich in Ekto- und Entoplasma geschiedenem, vakuolärem Zellleib, welcher die Gitterkugel nicht ganz ausfüllt. Kern zentral gelegen, es sind oft mehrere kontraktile Vakuolen vorhanden. Pseudopodien manchmal verästelt. Die Gitterkugel, deren kreisrunde oder polygonale Fenster mehr oder weniger regelmäßig angeordnet sein können, und welche glatt oder mit Höckern versehen ist, sitzt auf einem röhrenförmigen Stiel, der an seiner Basis mit wurzelartigen Ausläufern festgewachsen ist. Fortpflanzung durch Teilung innerhalb der Schale und Ausschlüpfen des einen Tochtertieres als zweigeißeliger Schwärmer.
Süßwasserformen in Europa, Amerika, Australien nachgewiesen.
III. Ordnung:
Foraminifera.
d’Orbigny.
Unter dem Namen der Foraminiferen oder Thalamophoren faßt man schalentragende Rhizopoden zusammen, deren natürliche [S. 613]Verwandtschaft durchaus noch nicht vollkommen geklärt ist. Während die typischen Formen eine wohlgeschlossene Gruppe unter den Protozoen darstellen, schließen sich ihnen mancherlei Formen an, welche zu den Amöbinen und anderen Gruppen überleiten und zum Teil vielleicht auch selbständige Gruppen darstellen.
Die Foraminiferen sind vielfach klein, 20–50 µ groß, doch sind viele Formen auch mit bloßem Auge sichtbar, und manche erreichen sogar Größen von 1 bis mehreren Millimetern, ja die fossilen Nummuliten waren sogar mehrere Centimeter groß; ähnliche Größe erreicht. z. B. auch der rezente Psammonyx vulcanicus Döderlein (5–6 cm).
Pseudopodien und Schalen sind die auffälligsten äußeren Merkmale der Foraminiferen. Wenige Formen, unter ihnen besonders Bewohner des Süßwassers, sind durch lobose oder filose Pseudopodien ausgezeichnet. Die große Mehrzahl besitzt echte Rhizopodien, welche oft sehr weit aus der Schale hervorgestreckt werden, und welche mit ihren zahlreichen Verzweigungen und Anastomosen und der oft sehr deutlichen Körnchenströmung das prachtvollste Material zum Studium lebenden Protoplasmas darbieten.
Nach der Beschaffenheit der Pseudopodien hat man die Foraminiferen früher in die Gruppen der Lobosa, Filosa und Reticulosa geteilt; unsere gegenwärtigen Anschauungen von der wandelbaren Natur der Pseudopodienformen lassen eine solche Einteilung nicht sehr natürlich erscheinen.
Auch die Schalen resp. Gehäuse bieten nur bei den höher entwickelten Formen ein klares Klassifikationsprinzip. Bei den niederen Formen finden wir alle Uebergänge von membranartigen und gallertigen Hüllen bis zu Schalen und Gehäusen, welche reich an anorganischen Substanzen sind. Die Grundlage aller dieser Hüllbildungen ist vom Protoplasma sezernierte organische (gallertige oder pseudochitinige, keratinartige) Substanz. Nur bei wenig Formen sind die Hüllbildungen rein organisch; bei den meisten finden sich die anorganischen Zusätze, welche bald als Fremdkörper, bald als vom Organismus ausgeschiedene Kieselsäure oder Calciumkarbonat auftreten, mit denen dann die organische Grundsubstanz imprägniert ist. Die organische Grundsubstanz ist oft an der Innen- und Außenwand der Schale zu einem „Schalenhäutchen“ verdichtet. Die kieseligen oder kalkigen Schalen können einheitlich oder aus einzelnen, mehr oder weniger regelmäßig gestalteten Einzelstücken zusammengesetzt sein. Die Fremdkörperschalen der sogenannten agglutinierenden Formen sind oft nachgiebig, indem die sie zusammensetzenden Quarzstückchen Diatomeenschalen, Membranen, Schalen, Hüllen anderer Pflanzen und Tiere etc. der organischen Grundlage nur lose eingefügt sind. Die Bestandteile können aber auch durch einen, in der Hauptsache anorganischen (kieseligen oder kalkigen, oft Eisensalze enthaltenden) Kitt (Zementmasse) zusammengefügt sein. Und schließlich kann auch eine innere sezernierte Schicht der kalkigen Schale nach außen von einem Fremdkörpermantel überzogen sein. Die feinere Struktur der organischen und anorganischen Schalen läßt sich oft auf einen alveolären oder alveolär-globulitischen Bau zurückführen.
Bei den Kalkschalen unterscheiden wir solide Schalen von porzellanartig aussehender Schalenmasse von den perforaten Schalen, deren [S. 614]Wände durch eine mehr oder minder große Zahl feiner Poren oft siebartig durchsetzt sind (vgl. unten S. 633).
Die Form der Schalen ist sehr mannigfaltig; im allgemeinen sind die organischen und Fremdkörperschalen einfach in der Form, während die Kalkschalen die höchste Komplikation erreichen. Doch finden sich parallele Reihen steigender Komplikation bei den Fremdkörperschalen und den Kalkschalen.
Die organischen Schalen, die Kieselschalen und viele der Fremdkörperschalen sind von einfacher Form, glocken-, urnen-, becherförmig, mit dichten Wandungen und in der Regel nur einer großen Oeffnung, durch welche die Pseudopodien hervortreten. Sie sind einkammerig.
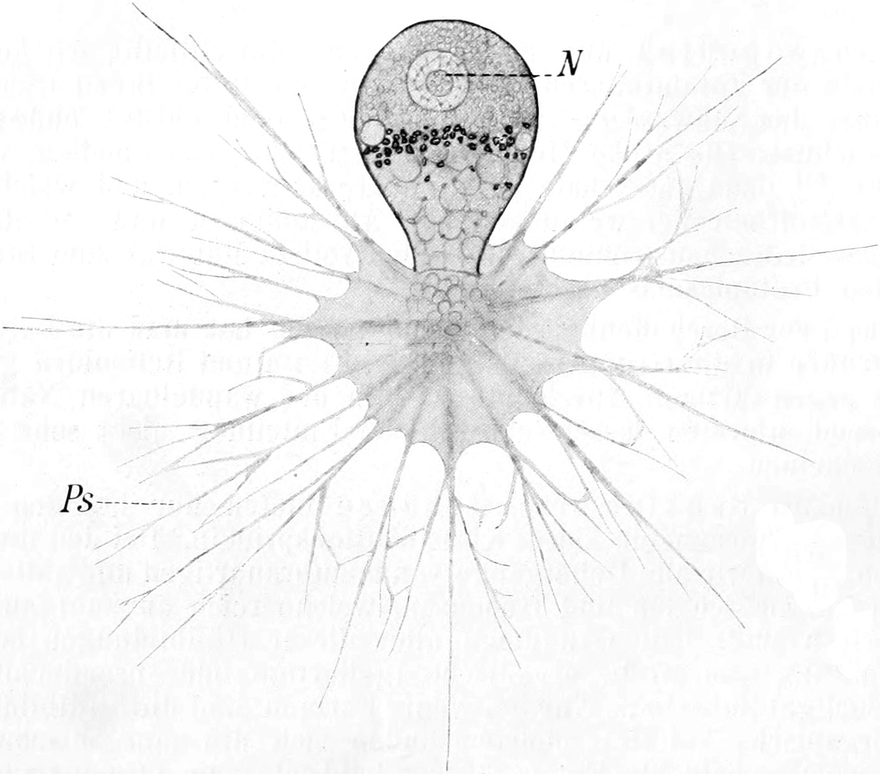
Bei den Fremdkörper- und Kalkschalen der marinen Foraminiferen kommt es zur Bildung mehrerer Kammern, indem infolge des Wachstums ein Teil des Protoplasmas periodisch aus der letzten Kammer herausquillt und sich mit einer neuen Hülle umgibt. Indem jede neu entstehende Kammer sich in bestimmter Gesetzmäßigkeit der vorhergehenden anfügt, entstehen die oft sehr regelmäßigen, vielfach eigenartigen Formen der vielkammerigen Schalen. Die äußere Oberfläche der Schalen kann durch Dornen, Stacheln, Leisten etc. kompliziert sein. Beispiele für die Formenmannigfaltigkeit sind unten angeführt.
Der Weichkörper besteht aus einem oft dünnflüssigen Protoplasma von weißer, grauer, gelber, orangeroter etc. Farbe. Ihm sind vielerlei [S. 615]Fremdkörper eingelagert. Das Protoplasma erfüllt mehr oder minder vollkommen den ganzen Innenraum der Schale; bei den vielkammerigen Schalen sind die Plasmamassen, welche die einzelnen Kammern enthalten, durch verbindende Plasmastränge zu einem einheitlichen Ganzen vereinigt. Diese Stränge durchsetzen die Kammerwände in den Poren (Foramina), welche durch dieselben hindurchführen. — Bei manchen Formen ist durch eine Art von Arbeitsteilung eine zonare Gliederung im Plasma bedingt, indem in einem Teil desselben hauptsächlich die Verdauung, in einem anderen die Ablagerung von Reservematerial, eventuell in einem weiteren die Ablagerung von Exkretions- und Fäkalmassen lokalisiert ist.
Ein großer bläschenförmiger Kern findet sich bei den vielkammerigen Formen in der Regel in den inneren Kammern, doch kann er im ganzen Körper wandern. Nicht selten findet man an seiner Stelle eine größere Anzahl kleiner Kerne.
Chromidialsubstanzen in Form von Netzen, Schalen, Hauben, Gittern etc. sind besonders bei zahlreichen Süßwassermonothalamien nachgewiesen.
Kontraktile Vakuolen fehlen bei der Mehrzahl der marinen Formen, während sie bei den Süßwasserformen allgemein verbreitet sind.
Bei den einkammerigen Süßwasserthalamophoren erfolgt die agame Fortpflanzung entweder durch Längsteilung unter Zerschnürung der Schale (vgl. Fig. 141, S. 143) oder durch den eigenartigen Teilungsvorgang, welcher im allgemeinen Teil, S. 140, beschrieben und in Fig. 138 und 139 abgebildet wurde. Im Prinzip besteht der Vorgang darin, daß das Protoplasma aus der Schalenmündung strömt und einen Tochterkörper knospenartig vor derselben anlegt. Darauf umhüllt sich derselbe mit einer derjenigen des Muttertieres entsprechenden Schale, der Kern teilt sich mitotisch, während die Chromidialsubstanz in feine Stränge aufgelöst wird (Fig. 546). Das alte Tier behält bei der Trennung die alte Schale, das junge Tier erhält die neue.
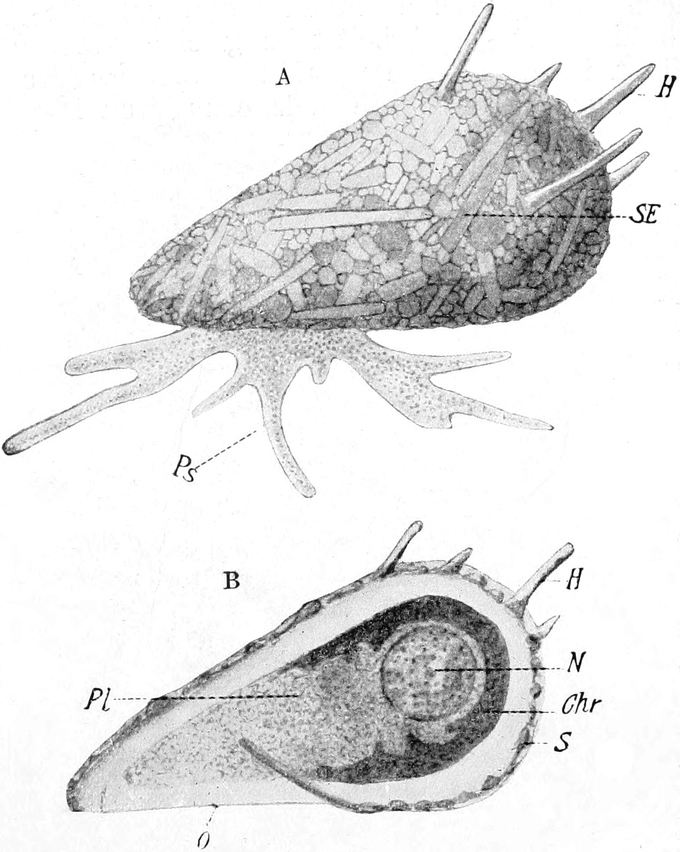
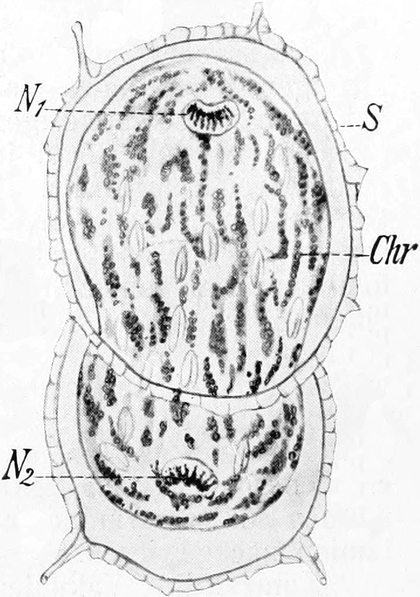
Bei den Polythalamien des Meeres ist die agame Fortpflanzung in allen bisher genauer untersuchten Fällen eine multiple Teilung, welche durch die Festigkeit und den Bau der Schale in bestimmter Weise modifiziert ist. Der anfangs einkernige Inhalt des Foraminifers (z. B. von Polystomella crispa) ist oft schon während des vegetativen Lebens [S. 616]vielkernig geworden (vgl. Fig. 547 D). Die Kernvermehrung soll nicht durch reguläre Teilung, sondern durch multiplen Kernzerfall stattfinden (vgl. Fig. 168, S. 160). Entsprechend der Zahl der Kerne zerfällt das Plasma entweder noch innerhalb der Schale, oder nachdem es als Ganzes ausgekrochen ist, in einkernige Teilstücke, welche in der Literatur manchmal als „Embryonen“ bezeichnet werden. Sie umgeben sich oft schon innerhalb des Mutterkörpers mit einer Schale, welche aus einer oder wenigen Kammern besteht. So schwärmen sie oft in großer Anzahl (Fig. 547 C u. 548) aus dem Muttertier hervor, wobei nötigenfalls teilweise Auflösung des Skelettes des letzteren erfolgt; die Schale des Muttertieres bleibt leer zurück. Die jungen Foraminiferen dieser Generation unterscheiden sich in einigen wichtigen Punkten ihrer Organisation von dem Muttertier, welchem sie entstammen. Schon lange wußte man, daß bei zahlreichen polythalamen Foraminiferen bei der gleichen Art zweierlei Individuen vorkommen: solche mit kleiner und solche mit großer Zentralkammer (vgl. Fig. 547 u. 549); man nannte sie die mikrosphärischen und die makrosphärischen Formen. Durch Lister und Schaudinn ist festgestellt worden, daß es sich um die Repräsentanten zweier [S. 617]Generationen handelt, welche sich entsprechen wie die Polypen und die Medusen bei vielen Cölenteraten mit Generationswechsel.
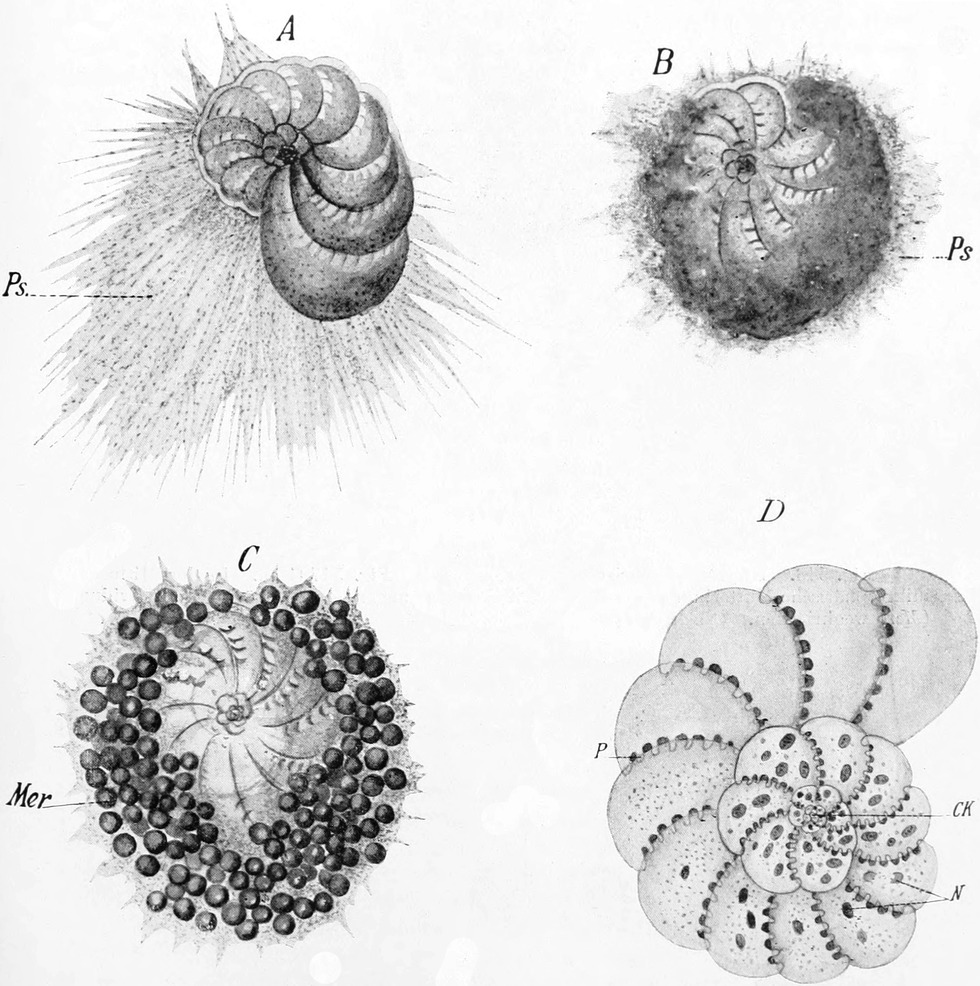
Die mikrosphärischen Formen sind es, welche sich in der beschriebenen Weise ungeschlechtlich fortpflanzen. Die „Embryonen“ wachsen zu makrosphärischen Individuen heran. Man sieht sie von dem Muttertier (Fig. 548 M) sich allmählich entfernen, sie werden heranwachsend allmählich vielkammerig (Fig. 549), wobei von vornherein ihre Zentralkammer größer ist, als bei dem Muttertier. Auch in den Kernverhältnissen zeigen sich bemerkenswerte Unterschiede. [S. 618]Der Kern (Fig. 549 B u. C N) bleibt sehr lange in der Einzahl erhalten.
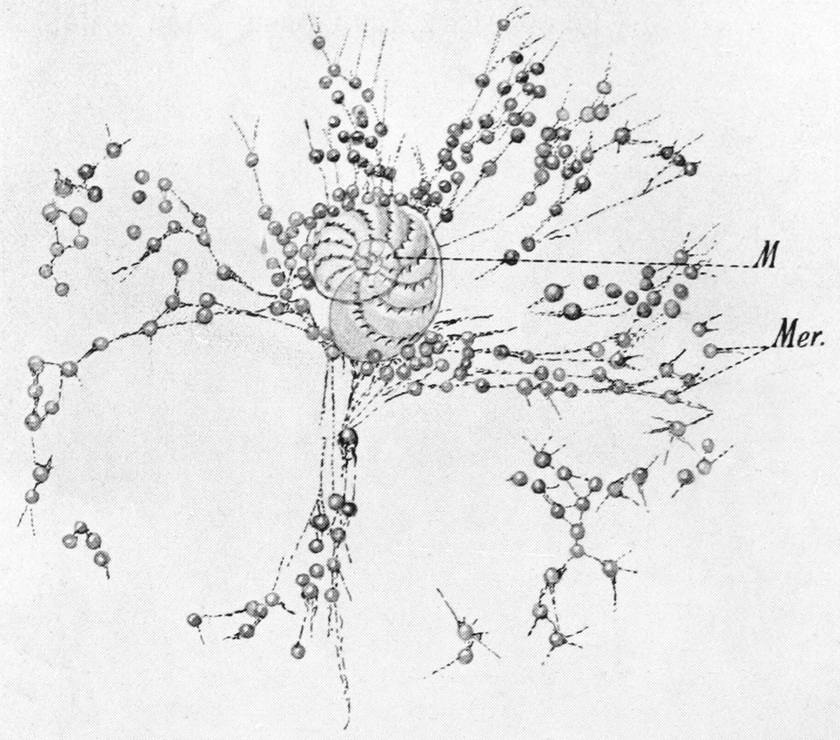
[S. 619]
Schaudinn hatte angegeben, daß in der mikrosphärischen Generation eine reichliche Bildung von Chromidialsträngen nachweisbar sei. Die „Embryonen“ sollten nach seiner Angabe kernlos sein und aus einem Teil ihres reichlich entwickelten Chromidialnetzes sich der „Prinzipalkern“ der jungen makrosphärischen Individuen verdichten. Lister hat diese Annahme nicht bestätigen können. Er findet vielmehr immer einen gut umschriebenen Kern. Winter wiederum bestätigt Schaudinns Angaben.
Jedenfalls ist in den makrosphärischen Individuen neben dem Kern eine Chromidialmasse vorhanden (Fig. 549 B u. C Chr). Die Vermehrung der herangewachsenen makrosphärischen Individuen erfolgt nun in folgender Weise. Uebereinstimmend wird angegeben, daß in ihnen der „Prinzipalkern“ zugrunde geht, während an seiner Stelle eine große Anzahl kleiner Kerne auftreten. Schaudinn nimmt an, daß sie aus der Chromidialsubstanz durch freie Kernbildung entstanden seien, Lister leitet sie von Kernfragmenten ab, welche sich während des Wachstums der makrosphärischen Individuen ablösen.
Die kleinen „Sekundärkerne“ umgeben sich mit je einer kleinen Zone dichten Plasmas und machen je zwei mitotische Kernteilungen durch, so daß 4 Kerne mit zugehörigem Plasma entstehen (Fig. 550). So entstehen zahllose kleine zweigeißelige Schwärmer; sie schwärmen nun aus (Fig. 551), und wenn zwei aus zwei verschiedenen Mutterindividuen stammende Schwärmer zusammentreffen, entpuppen sie sich als Gameten. Es sind Isogameten, welche kopulieren, ihre Geißeln abwerfen, worauf die Zygoten Pseudopodien bilden, vielkammerig werden und sich zu jungen mikrosphärischen Individuen entwickeln (Fig. 552 A–F).
Damit ist der Zeugungskreis geschlossen, welcher uns einen sehr charakteristischen Generationswechsel kennen lehrt, welcher mehr an den Generationswechsel der Metazoen erinnert, als derjenige irgendwelcher anderer Protozoen, denn es handelt sich jeweils um zwei Individuen, welche verschieden sind in Bau und Schicksalen, obwohl eines von dem anderen abstammt.
In Fig. 553 ist nach Winter ein Schema des Zeugungskreises von Peneroplis pertusus gegeben, welcher sehr ähnlich abläuft wie der geschilderte von Polystomella; der Zeugungskreis von Trichosphaerium [S. 620]Sieboldi (Fig. 557, S. 625) ist dadurch ausgezeichnet, daß die Individuen beider Generationen sich noch ungeschlechtlich zu vermehren vermögen.
Weniger klar und einfach scheinen die Verhältnisse bei anderen Formen zu liegen; so wird von Lister Erzeugung von makrosphärischen Nachkommen durch makrosphärische Individuen angegeben für Orbitolites und Cornuspira. Doch wird angenommen, daß dies auf einer Wiederholung der makrosphärischen Generation beruhe und daß Generationswechsel und Dimorphismus bei den marinen polythalamen Foraminiferen allgemein verbreitet sei.
Die Ernährung der Foraminiferen ist holozoisch. Die Pseudopodien fangen Diatomeen, Algen, allerlei Protozoen und kleine Metazoen (Copepoden, Larven etc.) ein und umfließen sie. Dabei wurde in manchen Fällen Lähmung des Beutetieres durch ein ausgeschiedenes Sekret (S. 82) beobachtet. Die Verdauung geht nicht selten in den Strängen der Pseudopodien vor sich, ehe diese in die Schale zurückgezogen werden. Nur eine Form, Paulinella chromatophora, wurde als eigene Chromatophoren besitzende Thalamophore beschrieben. Dagegen ist bei den marinen Polythalamien das Vorkommen von symbiotischen grünen und gelben Algen und Cryptomonaden sehr verbreitet (vgl. S. 77).
Die Foraminiferen kommen im Meer und im Süßwasser vor. Während die Monothalamien fast ausschließlich Süßwasserbewohner sind, erscheinen die Polythalamien auf das Meer beschränkt. Die Mehrzahl der Formen bevorzugt frisches sauerstoffreiches Wasser, doch kommen Süßwasserformen, wie Arcella, Cochliopodium etc., in stark fauligem Wasser zur Entwicklung.
Die Mehrzahl der Formen lebt am Boden des Wassers, langsam hin und her kriechend und manchmal sogar festgewachsen; manche Formen kommen in Tiefen von mehreren tausend Metern vor. Die Globigeriniden sind planktonisch und zeigen im Bau ihres Skelettes entsprechende Anpassungen: Schwebstacheln u. dgl. (vgl. Fig. 268, S. 283).
Die sehr zahlreichen beschriebenen Arten von Foraminiferen werden hauptsächlich auf Grund von Merkmalen der Schalen unterschieden. Wie jedoch Dreyer u. a. nachgewiesen haben, sind diese Merkmale unter dem Einfluß innerer und äußerer Verhältnisse in hohem Grade variabel. Daher ist bei dem gegenwärtigen Stand [S. 622]unseres Wissens keine sichere Abgrenzung der Arten und Gattungen vorzunehmen. So ist denn die Systematik der ganzen Gruppe wenig geklärt.
Im allgemeinen unterscheidet man zwei Hauptgruppen der Foraminiferen:
- 1. Unterordnung Monothalamia Max Schultze,
- 2. Unterordnung Polythalamia Max Schultze.
Diese Einteilung ist im wesentlichen auf die Beschaffenheit der Schalen begründet, welche bei den Monothalamien einkammerig, bei den Polythalamien vielkammerig sind. Dazu kommen Eigentümlichkeiten der Pseudopodien, des Zellleibes und nach neueren Untersuchungen auch der Fortpflanzung, welche bei dem Gros der beiden Gruppen eine verschiedene Ausbildung erkennen lassen.
1. Unterordnung.
Monothalamia M. Schultze.
Die Monothalamien oder einkammerigen Foraminiferen besitzen ein Gehäuse von verschiedenartiger, aber ziemlich einfacher Form, welche sich meist der Gestalt einer Urne, Schüssel, Teller, Hut, Haube nähert und manchmal durch Stacheln und Fortsätze eine geringe Komplikation erfährt. Kalkschalen kommen niemals vor; dagegen sind vorherrschend pseudochitinige Schalen oder solche mit Fremdkörpereinlagerung. Seltener sind Schalen mit kieseligen Plättchen etc. Die Schalen können weich oder starr sein. Die pseudochitinigen Schalen sind vielfach vollkommen durchsichtig (vgl. Fig. 554), die Fremdkörperschalen dagegen oft vollkommen undurchsichtig. Die kieseligen Schalen bestehen in manchen Fällen aus regelmäßigen Plättchen, welche in eigenartiger Weise übereinander gelagert sind (vgl. Euglypha Fig. 555).
Die Pseudopodien sind bei den verschiedenen Formen dieser Unterordnung als Lobopodien, Filopodien oder Rhizopodien ausgebildet. Der Weichkörper ist sehr häufig in Zonen gegliedert, indem in der Regel der Kern mit der ihn umgebenden Chromidialsubstanz den Hintergrund der Schale einnimmt; in der gleichen Zone können auch Reservesubstanzen abgelagert sein. In der davor gelegenen Zone vollzieht sich das Geschäft der Verdauung; da finden wir die Nahrungsvakuolen, kontraktile Vakuole und Fäkalmassen. Der vorderste Teil des Plasmas, das Bewegungsplasma, ist von solchen Einschlüssen meist frei und liefert die Substanz für die Pseudopodien.
Der Kern ist bläschenförmig, mit oder ohne zentralen Binnenkörper und meist auffallend groß, doch oft sehr chromatinarm. Kontraktile Vakuolen sind bei den Süßwasserformen allgemein verbreitet.
Die Teilung ist entweder eine Längsteilung mit Durchschnürung der in solchen Fällen weichen Schale (vgl. Fig. 141, S. 143), oder die eigentümliche „Knospungsteilung“ unter Bildung einer neuen Tochterschale (vgl. Fig. 138, 139 u. Fig. 546), wie sie oben geschildert wurden.
Außerdem wird agame multiple Vermehrung angegeben, wobei nackte Amöben aus der Schale auskriechen und sich nachträglich mit einer neuen Schale umgeben sollen. Ferner ist für Centropyxis und Arcella Kopulation beschrieben worden; die Gameten sollen sich bilden, indem aus dem Chromidium ihre Kerne als Sekundärkerne entstehen, während der „Primärkern“ zugrunde geht. Die amöboiden [S. 623]auskriechenden Schwärmer, welche sich mit einer Schale umgeben und als Mikro- und Makrogameten unterschieden werden, kopulieren, indem sie zu einer Cyste verschmelzen. Diese ganzen Vorgänge sind noch nicht recht klar erforscht.
Die Monothalamien sind fast ausschließlich Süßwasserbewohner; sie leben auf Wasserpflanzen und am Boden der Gewässer im Schlamm etc. Die Mehrzahl der Formen scheint eine sehr weite Verbreitung zu haben, eventuell kosmopolitisch zu sein.
Von manchen Autoren werden Familien unterschieden, z. B. die Familien der Arcelliden, Euglyphiden, Gromiiden und Amphistomiden.
Wir teilen die Monothalamien nach der Form ihrer Pseudopodien vorläufig in zwei Gruppen, welche aber zunächst nicht als natürliche Gruppen des Systems zu bezeichnen sind:
1. Formen mit lobosen und filosen
Pseudopodien.
(Lobosa und Filosa).
Arcella Ehrenberg. (Arcella vulgaris Ehrenberg, Fig. 22, S. 24, und Fig. 30, S. 30.) Stets zwei- oder vielkernige Arten mit uhrglasförmiger, abgeflachter Schale, Umriß kreisförmig, selten eckig oder sternförmig. Schalenoberfläche mit sehr feiner hexagonaler Felderung. Der Durchmesser schwankt zwischen 40 und 200 µ. Chromidium netzförmig. Pseudopodien lappig.
Süßwassertümpel.
[S. 624]
Pyxidicula Ehrenberg. (P. operculata Ehrenberg, Fig. 138, S. 140) ist eine in vielen Merkmalen Arcella sehr ähnliche Gattung und wurde von manchen Autoren für eine Jugendform der ersteren gehalten. Doch ist sie stets einkernig und entbehrt des Chromidiums.
Difflugia Leclerc (D. urceolata Carter) ist eine sehr formenreiche Gattung mit charakteristischem Fremdkörpergehäuse von ballonförmiger Gestalt. Die Schalen sind zusammengekittet aus Diatomeenschalen, Algenmembranen, Spongiennadeln, Quarzkörnern und allen möglichen, den Tieren gelegentlich zur Verfügung stehenden kleinen, harten Partikeln (vgl. Fig. 556). Ein- oder zweikernig, auch vielkernig. Kern groß. Chromidium haubenförmig oder verästelt. Pseudopodien wenige, breit oder schmal, doch fast immer an den Enden abgerundet. Größe der Arten und Stadien zwischen 40 und 500 µ.
[S. 625]
[S. 626]
Centropyxis Stein (Centropyxis aculeata [Ehrenberg], Fig. 545, S. 616). Schale aus Fremdkörpern zusammengesetzt, haubenförmig, mit mehreren Stacheln am apikalen Pol. Mündung exzentrisch. Kern im Haubenende, umgeben vom geweihähnlich verästelten Chromidium. Pseudopodien fingerförmig. Länge der Schale 80–260 µ, Höhe 36–80 µ, Breite 72–220 µ.
Im Sumpfwasser, zwischen Algen, sehr häufig.
Hierher gehören auch Cryptodifflugia (vgl. Fig. 554), eine Gattung mit zartem, durchsichtigem Pseudochitingehäuse, und Quadrula, eine Gattung, deren Schale aus vielen quadratischen Plättchen zusammengesetzt ist.
Euglypha Dujardin (E. alveolata Dujardin, Fig. 23, S. 24, Fig. 31, S. 30, Fig. 139, S. 141, Fig. 158, S. 154). Zarte Formen mit ei- oder flaschenförmiger Schale, bisweilen mit Stacheln am Hinterende. Schale zusammengesetzt aus kreisförmigen oder ovalen Kieselplättchen, welche einander an den Rändern decken. Kern im Hinterende, Chromidium haubenförmig (Fig. 23, S. 24). Zur Seite von demselben die Vorräte von Reserveplättchen für den Bau der Tochterschale. Pseudopodien fadenförmig, aber nicht anastomosierend. Größter Durchmesser der Schale 25–150 µ.
In klarem Sumpfwasser.
In die Nähe gehört Paulinella chromatophora Lauterb. (vgl. Fig. 85, S. 73) mit einer aus viereckigen Platten bestehenden eiförmigen Schale und mit zwei blaugrünen Chromatophoren.
Zwischen Diatomeen in stehendem Süßwasser.
Hierher gehört auch Pseudodifflugia Schlumberger, eine Form mit weicher, aus Fremdkörpern aufgebauter Schale (vgl. Fig. 141, S. 143), deren fadenförmige Pseudopodien sich verzweigen.
Provisorisch muß in der Nähe dieser Formen die von Schaudinn genauer untersuchte Gattung Trichosphaerium Schneider untergebracht werden. Trichosphaerium Sieboldi Schn. ist ein vielkerniges, flache Krusten bildendes Rhizopod mit fadenförmigen Pseudopodien; es besitzt einen eigenartigen Generationswechsel (vgl. Fig. 557), dessen agame Generation in der weichen, gallertigen Körperhülle zahlreiche feine, radiär gestellte Stäbchen aus kohlensaurem Magnesium (nach neueren Untersuchungen doch kohlensaurem Kalk) aufweist, während die gametenbildenden Individuen nur die nackte Gallerthülle haben. Die Hülle ist mit besonders differenzierten, persistenten Oeffnungen für die Pseudopodien versehen. Beide Formen können auch während des vegetativen Lebens durch einfache Zweiteilung, Knospung oder multiple Plasmotomie vermehren. Die stäbchenführende Form jedoch zerfällt zuzeiten innerhalb der Hülle in zahlreiche einkernige Teilstücke (Fig. 557 II u. III), die nach Zerstörung der Hülle als kleine Amöben auswandern und — nach Ausscheidung der rein gallertigen Hülle — zu Individuen der zweiten Generation heranwachsen. Diese erzeugen durch multiple Teilung zahlreiche kleine zweigeißelige Isogameten (Fig. 557 VIII). Die Zygote wächst zu dem stäbchentragenden Individuum der ersten Generation wieder heran.
Marin. Ost-, Nordsee und Mittelmeer.
Gromia Dujardin (G. oviformis Duj., Fig. 558, synonym mit Hyalopus Dujardini, Gromia Dujardini). Schale kugelig oder eiförmig, pseudochitinig, weich, Mündung endständig. Nicht selten bekommt [S. 627]die Schale 2 oder mehr (selbst 20–25) Mündungen, wird schlauchförmig, verzweigt sich und erreicht eine Größe von 5 mm Durchmesser. 26–300 µ Durchmesser der Schale der kugligen, einmündigen Individuen. Pseudopodien fadenförmig, verzweigt, aber nicht anastomosierend (vgl. dagegen Allogromia), oft breit-strangartig, hyalin. Nicht imstande zu extrathalamer Verdauung. Individuen ein- oder vielkernig. Zwischen den Kernen „braune Körper“. Die vielkernigen Individuen zerfallen in nackte, eingeißelige Schwärmer, welche kopulieren. Weitere Entwicklung unbekannt. Süßwasser und Meer.
Chlamydophrys Cienk. [Chlamydophrys stercorea[38] Cienk. von manchen Autoren auch den ähnlich charakterisierten Gattungen Platoum oder Enchelys zugerechnet (Fig. 559, S. 628)]. Diese Form, welche durch Schaudinn genauer studiert wurde, sieht der Microgromia ähnlich; auch bei ihr ist die Schalenmündung oft halsartig ausgezogen, und es kommt ein „Pseudopodienstiel“ vor. Die Pseudopodien sind vielfach verzweigt. Zonare Gliederung im Plasma sehr deutlich, Kern klein, bläschenförmig; das Chromidium umgibt ihn ringsum in Form einer Hülle. Agame Teilung und Gametenbildung beobachtet. Die Zygote bildet eine kuglige Cyste mit dicker, brauner höckeriger Hülle.
Die Cyste muß, um zur Entwicklung zu gelangen, den Darmkanal eines Tieres passieren (Mensch, Maus etc.), im Darm oder in den abgelegten Faeces schlüpft eine kleine Amöbe aus, welche sich nach einiger Zeit mit der typischen Chlamydophrysschale umgibt und sich vermehrt; letzteres kann auch im Darm stattfinden, und zwar besonders bei solchem pathologisch veränderten Zustand des Dickdarms, der die alkalische Reaktion des Inhalts bedingt. Und zwar bildet die Amöbe dann keine Schale und vermehrt sich in atypischer Weise durch Teilung und Knospung. Nach einer kurzen lebhaften Vermehrungsperiode [S. 628]soll aber die ganze Brut unter Degenerationserscheinungen zugrunde gehen.
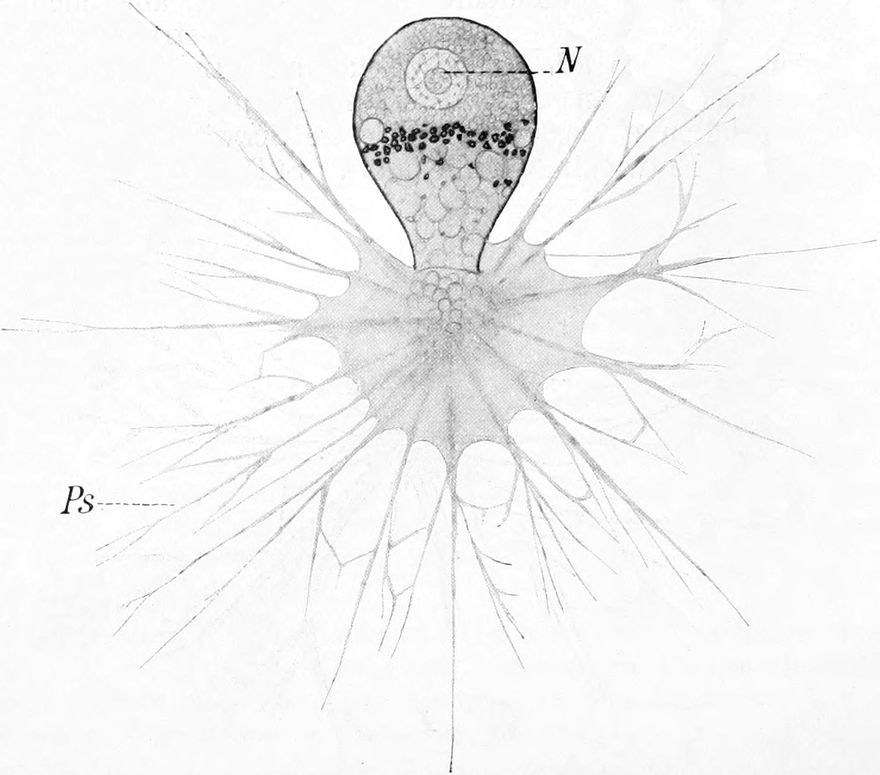
Solche Formen finden bei pathologischen Prozessen im Menschen auch bisweilen günstige Entwicklungsbedingungen außerhalb des Darmlumens. Sie haben sehr viel Beachtung und mannigfache Deutung erfahren. Sie wurden von Schaudinn selbst, der später ihre Zugehörigkeit zu Chlamydophrys angab, als eigenartige Amöben beschrieben unter dem Namen:
Leydenia gemmipara Schaudinn.
|
Sitzungsber. d. Berl. Akad. d. Wiss. 1896. p.
951–963.
|
Schon Lieberkühn hatte in der Ascitesflüssigkeit, welche bei gewissen malignen Tumoren sich bildet, merkwürdige Zellen beobachtet; er hatte ihre Beweglichkeit konstatiert, [S. 629]über ihre sonstige Natur sprach er sich aber in keiner Weise aus. Seitdem sind diese Zellen wohl von vielen Untersuchern gesehen, aber nicht weiter beachtet worden.
Erst 1896 wurde durch Leyden und Schaudinn eine genauere Untersuchung dieser Gebilde vorgenommen, und diese Autoren kamen zu dem überraschenden Resultat, daß es sich um einen neuen, in der Ascitesflüssigkeit des lebenden Menschen parasitierenden Rhizopoden handele. Da dies der erste Fall ist, daß bei einer krebsartigen Erkrankung des Menschen von einem hervorragenden Protozoenkenner die Protozoennatur vorhandener Gebilde konstatiert wurde, wobei zu gleicher Zeit der klinische Befund durch eine der ersten Autoritäten festgelegt ist, so verlohnt es sich, auf die Sache etwas näher einzugehen.
Nach Leydens Darstellung fanden sich die zu besprechenden Gebilde in der Ascitesflüssigkeit eines Mannes, der nach dem späteren Sektionsergebnis an Magencarcinom litt, und eines Mädchens, welches ebenfalls Tumoren im Bereich der Bauchhöhle aufwies. In der Flüssigkeit, welche durch Punktion gewonnen wurde, fielen neben weißen und roten Blutkörperchen und endothelartigen Zellen „gewisse in großer Anzahl vorhandene rundliche, mit fettartigen Tropfen und gelbem Pigment ausgefüllte Zellen“ auf, „welche gewöhnlich in größeren Gruppen zusammenlagen und nur schwer zu trennen waren“. Sie bewegten sich lebhaft mit lappen- oder fadenförmigen Pseudopodien, besonders in den warmen Tagen des Juli. In Flüssigkeit, welche 3 bis 7 Tage steril aufbewahrt wurde, starben sie nicht ab, sondern behielten ihre Bewegungsfähigkeit. Einzelne von ihnen enthielten rote Blutkörperchen in ihrem Körperplasma.
Schaudinn, welcher die Gebilde genau untersuchte, entschied sich, sie für amöbenartige Parasiten zu halten.
Er schildert die Amöben als kuglige oder unregelmäßige polygonale Bildungen im Ruhestand, deren Oberfläche mit Buckeln und Höckern besetzt ist. Ekto- und Entoplasma ist nicht immer regelmäßig abgegrenzt, doch läßt sich ein mehr hyalines Plasma, welches meist die Hauptmasse der Pseudopodien ausmacht, von einem opaken, mit zahlreichen stark lichtbrechenden, gelblichen Körnern durchsetzten Plasma unterscheiden; letzteres nimmt aber auch an der Bildung der Pseudopodien teil (Fig. 561 A–C).
Das Tier bewegt sich ziemlich träge (60 µ in 15 Minuten); dabei wird in der Bewegungsrichtung eine breite hyaline Pseudopodienplatte gebildet, in welche das körnige Entoplasma allmählich übergeht und einzelne dünne Stränge bis zum Rand hin entsendet (Fig. 488 A–C). Die dünnen Stränge können sogar über den Rand hinausragen und lange spitze Pseudopodien bilden, deren Basen dann, wie durch eine Schwimmhaut, durch die lamellösen Platten des hyalinen Plasmas verbunden sind. Alle diese Eigentümlichkeiten der Pseudopodien sind sehr ähnlich denjenigen der freilebenden Amoeba placopus. Das Hinterende der Leydenia zeigt oft fadenförmige körnige Fortsätze.
Das Entoplasma enthält außer gelben, fettartigen Körnern, welche sich in Osmium schwärzen und in absolutem Alkohol auflösen, eckige kristallähnliche Gebilde, welche im polarisierten Licht doppelbrechend sind; Schaudinn faßt sie daher als Exkretkörner auf. Die Leydenia nährt sich von roten und weißen Blutkörperchen, welche sie umfließt und in Nahrungsvakuolen verdaut. Einen Teil der gelblichen Plasmaeinschlüsse [S. 630]führt daher Schaudinn auf unverdautes Hämoglobin zurück.
Das Plasma ist mit zahlreichen Vakuolen erfüllt, welche im zentralen Teil am größten sind. Eine pulsierende Vakuole ist vorhanden, deren Kontraktion etwa viertelstündlich erfolgt.
Die Größe der Leydenia beträgt 3–36 µ. Das Tier ist in der Regel einkernig. Der Kern ist kuglig, bläschenförmig, schon im Leben wahrnehmbar. In Präparaten zeigt er einen chromatischen Nucleolus, umgeben von Lininwaben, wie zahlreiche andere Rhizopoden. Die Kerngröße ist beim konservierten Tier konstant = ⅕ des Körperdurchmessers; ein Tier von 25 µ Durchmesser hat einen Kern von 5 µ.
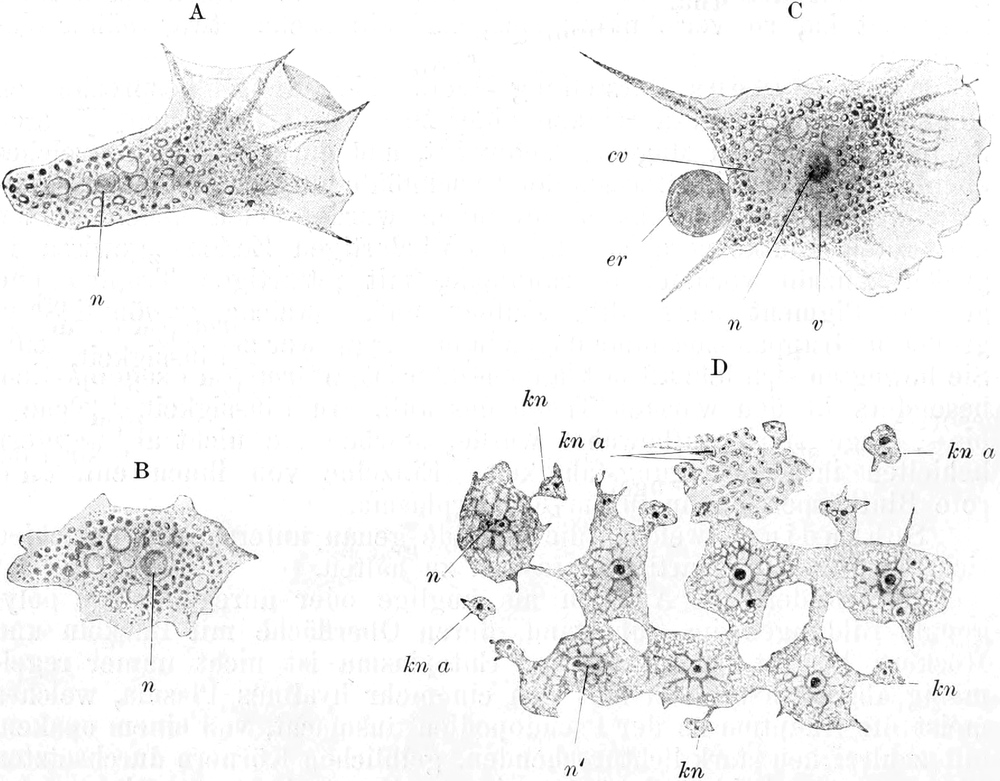
Plastogamie, d. h. Verschmelzung zweier oder mehrerer Tiere, ohne Verschmelzung der Kerne, ist nicht selten. Es werden sogar aus zahlreichen Tieren bestehende Plasmodien gebildet.
Die Fortpflanzung erfolgt durch Teilung oder Knospung; die Tiere zerfallen in zwei Teilstücke, deren Größenverhältnis sehr verschieden sein kann, aber dem Größenverhältnis der Teilstücke des Kerns entspricht. Teilt sich der Kern in zwei gleiche Hälften, so auch das Plasma; bildet der Kern aber nur eine Knospe, so folgt auch jetzt das Plasma diesem Beispiel: stets bleibt das Verhältnis von Kerngröße und Plasmadurchmesser gewahrt (Fig. 561 D).
[S. 631]
Der Kern teilt sich durch direkte Teilung (Fig. 561 D n), die Knospe, welche als Vorsprung über die Oberfläche der Leydenia sich vorwölbt, löst sich allmählich ab und kriecht als selbständige Amöbe davon. Sie kann sich sogleich fortgesetzt weiterteilen, so daß ein Haufen kleinster Amöben entsteht (Fig. 561 D kn. a).
Leyden und Schaudinn erklärten, über den Zusammenhang der Parasiten mit der Krebserkrankung nichts weiter aussagen zu können.
Erst viel später überzeugte sich Schaudinn von dem Zusammenhang der Leydenia mit Chlamydophrys, welche also nur als gelegentliches Vorkommnis bei Carcinom zu betrachten ist. Als Parasit des Menschen und wegen ihrer interessanten Anpassungsfähigkeit verdient die Form besonderes Interesse.
Es empfiehlt sich, die eigenartigen parasitischen Zustände des Tieres durch die Benennung zu unterscheiden und sie als Leydeniaform der Chlamydophrys stercorea zu bezeichnen.
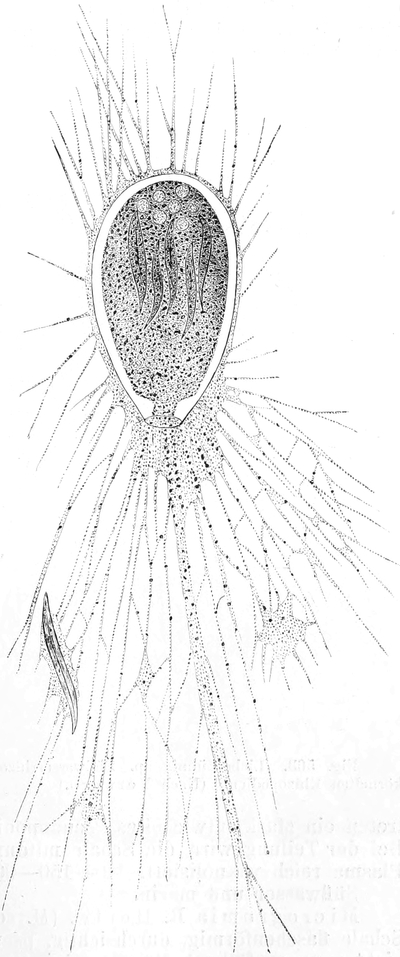
2. Formen mit Rhizopodien.
(Reticulosa p. pte.)
Allogromia Rhumbler umfaßt die früher mit Gromia identifizierten Formen, welche sich von dieser Gattung durch den Besitz von Rhizopodien unterscheiden. Allogromia ovoidea Rhumbl. (früher allgemein als Gromia oviformis Duj. bezeichnet (Fig. 562).) Schale ei- bis kugelförmig, pseudochitinig, biegsam, oft durchsichtig. Mündung terminal. Weichkörper gelb bis rotbraun. 1–2 Kerne. Das aus der Mündung austretende Protoplasma legt sich oft mantelartig [S. 632]um die Schale; von dieser Schicht entspringen dann die Pseudopodien. Fortpflanzung nach Swarczewsky, agame multiple Teilung und Bildung amöboider Gameten.
Marin und Süßwasser.
Lieberkühnia Claparède u. Lachmann (L. Wageneri Cl. u. L., Fig. 563). Gestalt eiförmig, Hülle zart, dicht anliegend, biegsam. Mündung seitlich, Schale bilateral, Pseudopodien entspringen von einem Pseudopodienstiel, der in der Mitte des Weichkörpers entspringt, innerhalb der Schale schon isoliert sichtbar ist und beim Austreten ein stark entwickeltes Pseudopodiennetz von sich ausgehen läßt. Bei der Teilung wird die Schale mitdurchschnürt. 1 bis viele Kerne. Plasma reich vakuolisiert. 40–150–900 µ Durchmesser der Schale.
Süßwasser und marin.
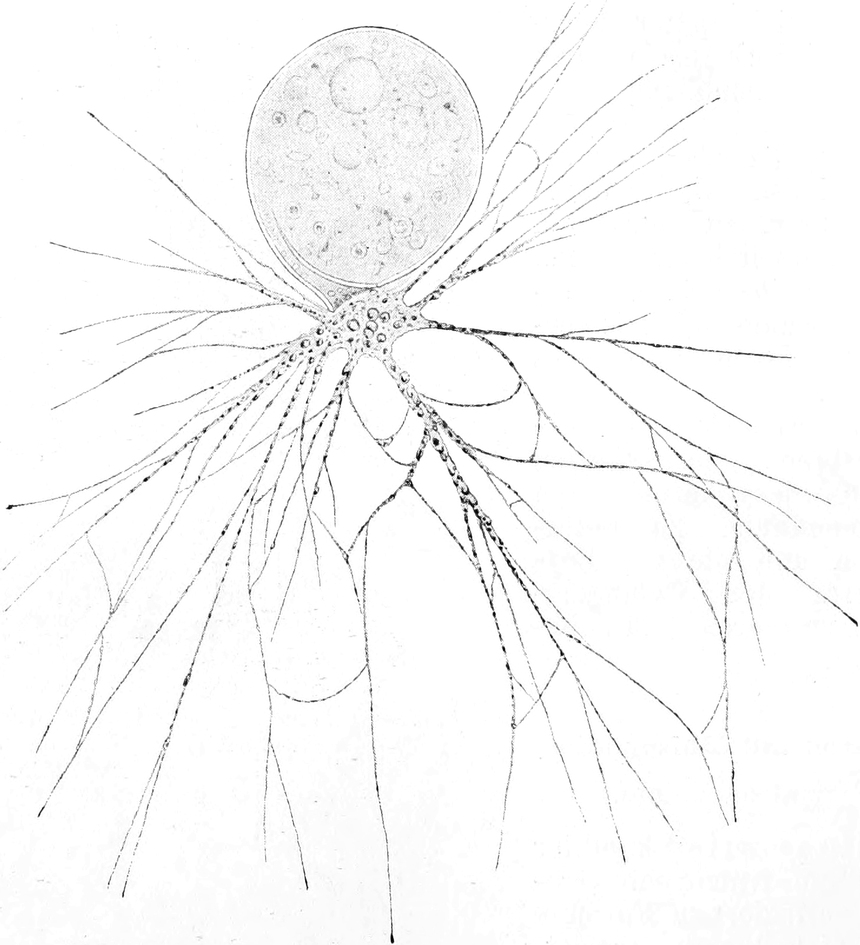
Microgromia R. Hertw. (M. socialis Arch., Fig. 140, S. 142). Schale flaschenförmig, durchsichtig, pseudochitinig, Körper die Schale nicht ganz ausfüllend, Pseudopodien von einer zentralen Masse, einem „Pseudopodienstiel“ entspringend, retikulär. Tochterindividuen, bei der Teilung mit den Pseudopodien vereinigt bleibend, so daß Kolonien entstehen. Schwärmerbildung durch Querteilung.
Süßwasser.
[S. 633]
2. Unterordnung.
Polythalamia M. Schultze.
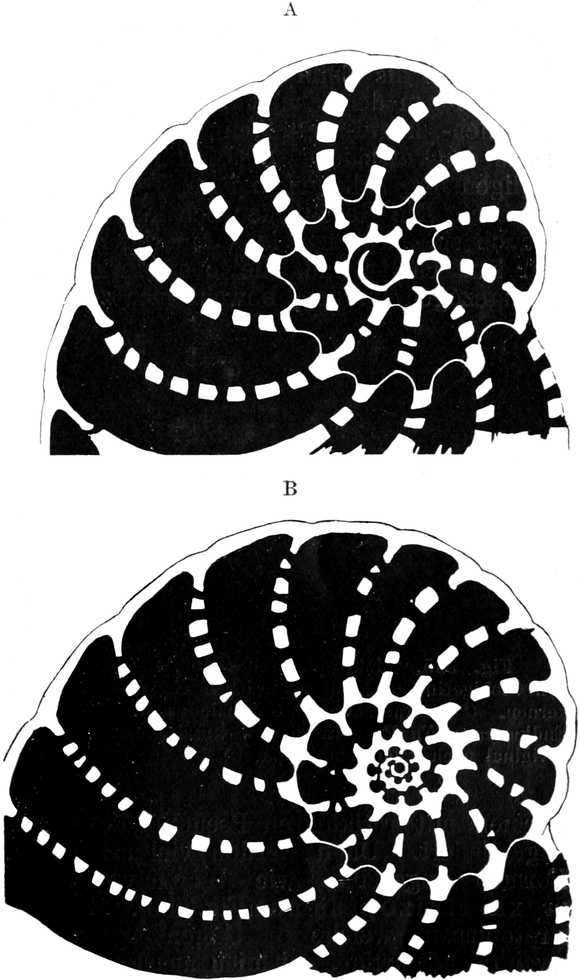
Die ganz außerordentlich formenreiche Gruppe der Polythalamien, welche ausschließlich aus marinen Formen besteht, soll hier nur in aller Kürze behandelt werden. Alle hierher gezählten Formen besitzen Rhizopodien. Die Schalen zeigen eine große Mannigfaltigkeit, indem sie bei den primitiven Formen zum Teil gallertig mit Fremdkörpereinlagerung, zum Teil Fremdkörperschalen mit harter, pseudochitiniger oder kalkhaltiger Kittsubstanz, zum Teil (besonders bei den höheren Formen) ohne Fremdkörper rein kalkig sind. In letzterem Falle besteht die Schalensubstanz stets aus Kalkspat, einerlei ob es sich um perforate oder imperforate Schalen handelt. Die Fremdkörper sind meist Sandkörnchen, daher spricht man von sandschaligen Formen. Die rein kalkigen Formen bilden die große Mehrzahl. Der Schalenhohlraum ist entweder ungeteilt oder (bei der Mehrzahl der Formen) regelmäßig segmentiert, oder in mehrere regelmäßig angeordnete Kammern geteilt; zuweilen ist er mit sekundärer Schalensubstanz unregelmäßig „labyrinthisch“ erfüllt. Bei den Formen mit Kalkschalen ist entweder eine oder einige wenige Oeffnungen vorhanden, welche den Pseudopodien den Durchtritt gestatten (Imperforate), oder die Schale ist von zahlreichen feinen Poren siebartig durchsetzt (Perforate). Diese Poren können entweder relativ weit sein (mehrere µ Durchmesser), dann stehen sie meist weiter auseinander; oder sie sind sehr [S. 634]eng und stehen so eng aneinander, daß die Schale auf Schliffen ein Bild bietet, welches an das Dentin der Wirbeltiere erinnert. Bei solchen Formen fehlt manchmal eine spezielle größere Schalenmündung.
Trotz der Zerlegung der Schale in viele Kammern ist der Weichkörper oft einkernig. Doch pflegt bei den polythalamen Formen während des Wachstums eine größere Anzahl von Kernen aufzutreten. Nur multiple agame Teilung des Weichkörpers und Gametenbildung ist bekannt. Der Generationswechsel und der damit verbundene Schalendimorphismus, welcher eine sehr weite Verbreitung hat, wurde oben schon besprochen (S. 616 ff.). Die Schalen der beiden Generationen sind durch die Größe der Zentralkammer unterschieden, welche auch als Embryonal- oder Anfangskammer bezeichnet wird.
Die Form der Schalen ist sehr mannigfaltig, indem stab-, röhren-, bäumchen-, kugel-, scheiben-, schnecken-, bischofsstabähnliche Formen etc. in den verschiedensten Modifikationen bei sandschaligen, gemischtschaligen und kalkigen, bei perforaten und imperforaten Formen vorkommen. Die Gestalt der Schalen, ferner ihre sonstige Beschaffenheit, ob sie ein- oder vielkammerig, perforiert oder unperforiert, kalk- oder sandschalig sind, alle diese Merkmale müssen bei der Systematik herangezogen werden, obwohl sich eine Unmenge von Uebergängen finden. Auch ist die Schale in ihren verschiedenen Eigenschaften ganz ungemein variabel. Und außerdem finden sich in verschiedenen Gruppen parallele Formenreihen. Das erschwert die Systematik ganz ungemein.
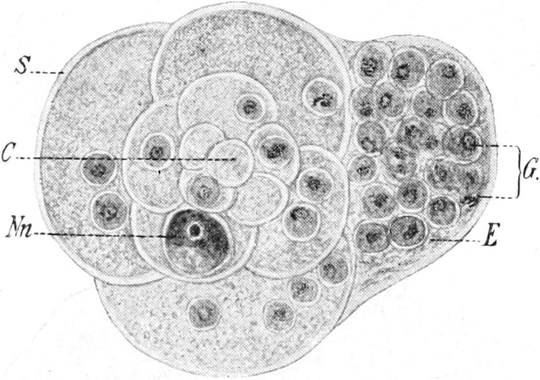
Auch gliedern sich, durch kontinuierliche Uebergänge verbunden, einkammerige Formen den Polythalamien an, so daß manche Autoren ganz andere Einteilungsweisen der in der Ordnung vereinigten Formen durchführen. So werden vielfach die auf S. 631 ff. angeführten einkammerigen Formen mit retikulären Pseudopodien den hier behandelten Formen angegliedert. Dann werden vielfach den „Reticulosa“ auch nackte Formen angereiht, wie Biomyxa, Protogenes, Protomyxa, Rhizoplasma (Fig. 566). Es sind dies Formen mit nacktem Protoplasma, welche im Gegensatz zu den Amöbinen oft fein verzweigte, netzartige, reichlich anastomosierende Pseudopodiengeflechte entwickeln. Von allen diesen Formen wissen wir aber zurzeit noch nicht, ob wir sie als selbständige Formen betrachten dürfen und ob sie nicht vielmehr Stadien von Foraminiferen und anderen Organismen darstellen.
Von den vielen Systemen, nach denen man die marinen Foraminiferen einteilt, ist dasjenige von Rhumbler dadurch ausgezeichnet, daß es neben der Schalenmorphologie und Zusammensetzung gewisse biologische Prinzipien zur Grundlage hat. Unter Berücksichtigung der paläontologischen Befunde nimmt Rhumbler mit Neumayer [S. 635]an, daß die kalkschaligen Formen sich aus sandschaligen, durch Vermittlung von gemischtschaligen Formen entwickelt haben. Bei der Entwicklung der einzelnen Formenreihen seien drei Prinzipien vor allem wirksam gewesen, indem 1) möglichste Festigkeit des Gehäuses, 2) bei deren Erzielung gleichzeitig möglichst großer Rauminhalt und 3) möglichste Einfachheit des Gehäuses das Endziel der Stammreihen darstelle. Dabei ist ähnlich wie in dem älteren System von d’Orbigny der Form der Schale ein Hauptgewicht beigelegt, dagegen die Substanz der Schale erst in zweiter Linie berücksichtigt.
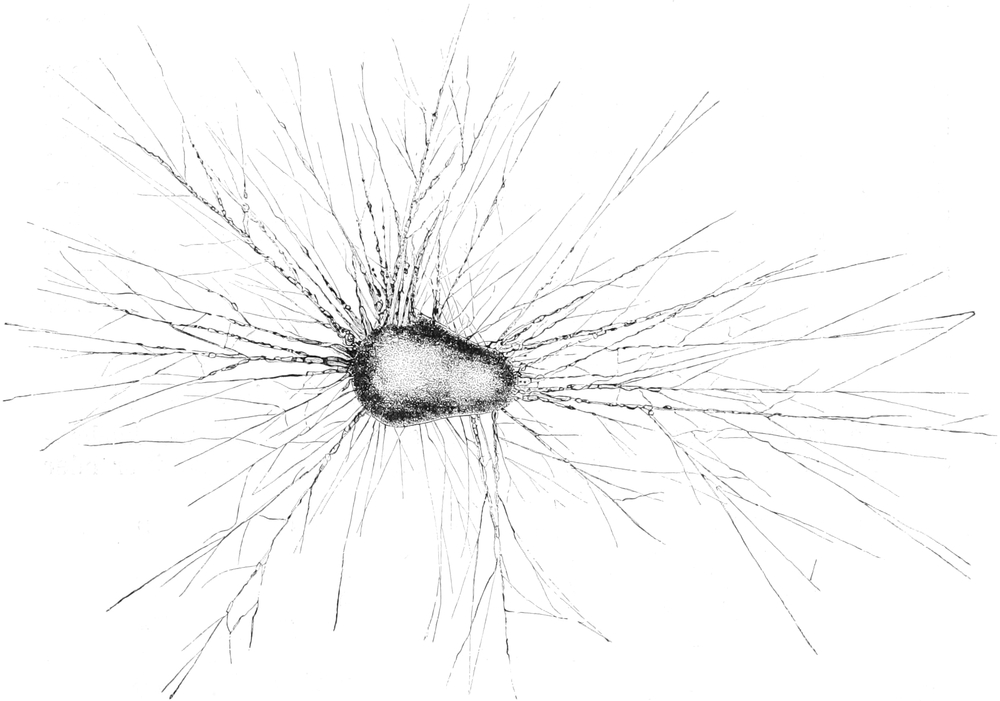
So gelangt er zur Einteilung in 10 Familien:
- 1) Rhabdamminidae Rhumbler,
- 2) Ammodiscidae Rhumbler,
- 3) Spirillinidae Rhumbler,
- 4) Nodosinellidae Rhumbler,
- 5) Miliolinidae Brady em. Rhumbler,
- 6) Orbitolitidae Reuss,
- 7) Textularidae Brady,
- 8) Nodosaridae Rhumbler,
- 9) Endothyridae Rhumbler,
- 10) Rotalidae Brady em. Rhumbler.
In den Lehrbüchern findet man meist eine Teilung in die zwei Legionen:
- Imperforata Carpenter,
- Perforata Carpenter
[S. 636]
durchgeführt. Oder es ist das System von Brady angewandt, welches die folgenden 8 Familien unterscheidet: Gromiidae, Astrorhizidae, Lituolidae, Textularidae, Cheilostomellidae, Lagenidae, Globigerinidae, Nummulitidae.
Die Polythalamien sind in der in diesem Buch vorgenommenen Abgrenzung ausschließlich Meeresbewohner. Sie sind in allen Meeren der Erde verbreitet, doch ist ihr Formenreichtum und die Größe der Individuen in den wärmeren Meeren am höchsten entwickelt.
Die Mehrzahl der Formen lebt auf festem Substrat, am Meeresboden, auf Wasserpflanzen etc. Die Globigerinen sind pelagisch und mit entsprechenden Anpassungen, Schwebstacheln an der Schale etc. versehen.
Die Schalen der in ungeheuren Massen vorkommenden Tiere sind sehr erhaltungsfähig. In manchen Gegenden kommen die leeren Schalen in solchen Mengen vor, daß sich z. B. bei Gaeta in einer Grundprobe in einem Gramm feingesiebten Sandes ca. 50000 Schalen fanden. Wenn sie nicht, wie oft in der Tiefsee, durch den Kohlensäuregehalt des Meerwassers gelöst werden, so werden sie in Schichten abgelagert, welche bedeutende Mächtigkeit erreichen können. Sehr ausgedehnte Schichtenkomplexe der Erdrinde, wie Kreide, Nummulitenkalk, Grünsandstein, sind vollkommen von den Schalen zahlloser Foraminiferen erfüllt, ja bestehen fast ganz aus ihnen.
1. Familie: Rhabdamminidae Rhumbler.
Die stets einkammerigen Schalen sind kuglig, stern-, kuchen- oder röhrenförmig, auch verzweigt, nie aufgewunden, mit einer oder mehreren Mündungen versehen; sie sind gallertig, pseudochitinig oder Fremdkörperschalen.
Myxotheca Schaudinn, kuglige oder halbkuglige Form mit gallertiger Hülle, in welcher Fremdkörper mehr oder weniger lose eingelagert sind.
Astrorhiza Sandahl (Fig. 567 A), freilebende Formen mit Schlamm- oder Sandschalen von Röhren-, Stern-, Astform.
[S. 637]
Saccamina Carpenter, freilebende Formen mit kugligem Fremdkörpergehäuse, Mündung auf kurzem, zitzenförmigem Hals. Gehäuse durch gefärbte Kittmasse gelblich bis braunrot.
Rhabdammina Carpenter (Fig. 567 D), Fremdkörperschalen, stabförmig, sternförmig oder unregelmäßig verzweigt, mit oder ohne zentralen Kammerteil in der Mitte. Die offenen Enden der Röhren stellen die Mündungen dar.
Haliphysema Bowerbank (Fig. 568), säulenförmige Gehäuse, mit einer verbreiterten Fußplatte an der Unterlage festgewachsen, zum großen Teil aus Schwammnadeln zusammengesetzt. Ein Teil der Arten dieser Gattung wurde früher für Schwämme gehalten und von Haeckel zu den Physemarien gestellt.
2. Familie: Ammodiscidae Rhumbler.
Einfache, einkammerige, manchmal unregelmäßig segmentierte Röhren, mit mehr oder weniger spiraler Einrollung; zum Teil sandschalig, zum Teil kalkschalig.
Ammodiscus Reuß (Fig. 569), scheibenförmige Arten, aus einer in einer Ebene aufgerollten Sandröhre von sehr feiner Struktur und braunroter Kittmasse, ca. 3 mm Durchmesser, meist im tiefen Wasser.
Psammonyx Döderlein (Fig. 567 B und C), Schalen zu dünnen Platten komprimiert, die mehr oder weniger spiralig eingekrümmt sind, die späteren Umgänge berühren die Wandungen der früheren nicht.
[S. 638]
Die Schalen sind aus einer inneren Lage von Schwammnadeln und einer äußeren von Sandkörnchen gebildet und erreichen 5–6 cm Durchmesser.
Cornuspira M. Schultze, besitzt eine scheibenförmige Schale mit schlitzförmiger Mündung, welche aus einer rein kalkigen, sich allmählich stark erweiternden Röhre besteht. Kommt ebenfalls in größeren Tiefen vor.
3. Familie: Spirillinidae Rhumbler.
Spiralig gewundene, perforierte, stets kalkige Schalen, welche in ihrer höchsten Entwicklung durch Ausbildung säckchenartiger Ausstülpungen ihrer peripheren Röhrenwand kammerartige Räume erzeugt haben.
Patellina Will. (Fig. 570), kegelförmige Schale mit einer äußeren spiral- oder ringförmigen Lage von Kammern, welche sekundäre Unterabteilungen besitzen; das Innere des Kegels ist entweder mit hyaliner Schalensubstanz oder mit Kammern erfüllt. Die agame Fortpflanzung dieser Gattung ist durch Schaudinn untersucht, welcher fand, daß ihr manchmal Plasmogamie des Inhalts mehrerer Individuen vorausgeht.
4. Familie: Nodosinellidae Rhumbler.
Schalen sandig oder mehr oder weniger kalkig. Wand perforat oder imperforat; vielkammerig, wobei die Kammern eine gerade oder wenig gebogene Reihe bilden. Rhumbler nimmt an, daß diese Familie die Stammformen aller höheren Polythalamien umfaßt.
Nodulina Rhumbler (Fig. 571), Schale eine stabförmige Kammerreihe darstellend, grobsandig.
[S. 639]
5. Familie: Miliolinidae Brady em. Rhumbler.
Schale polythalam; imperforat (mit Ausnahme der Embryonalkammer von Peneroplis); in der Regel rein kalkig, porzellanartig, manchmal mit Sandpartikeln untermengt oder vollständig sandig. Im brackischen Wasser chitinig oder chitinig-sandig; in großen Tiefen zu einer dünnen homogenen, kieseligen Schalenhaut sich verändernd.
Peneroplis Montfort, schneckenförmig aufgerollte Schale, rein kalkig, mit zahlreichen Oeffnungen, ungeteilten Kammern, manchmal die Endkammern reihenförmig angeordnet. Flachwasser. Fortpflanzung durch Winter untersucht (s. oben S. 619).
Calcituba v. Roboz (Fig. 572), röhrenförmige, oft vielfach verzweigte Form mit kalkiger Schale. Nach Schaudinn erfolgt Fortpflanzung durch Teilung des Plasmas und Auswandern nackter amöboider Organismen, welche sich später mit Kalkschalen umgeben. Die Vereinfachung in der Form bei dieser interessanten Art wird als Degeneration aufgefaßt.
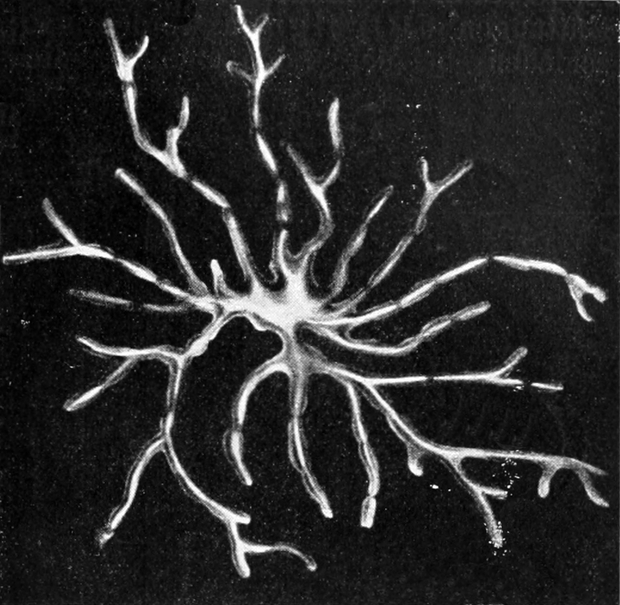
[S. 640]
- Biloculina d’Orbigny,
- Triloculina d’Orbigny,
- Quinqueloculina d’Orbigny:
Diese drei Gattungen, oft jetzt als Genus Miliolina Lamarck zusammengefaßt, besitzen schneckenförmig aufgerollte Schalen, deren letzte Kammern immer die früheren vollkommen umfassen. Die drei Gattungen d’Orbignys werden nach folgenden Merkmalen unterschieden: bei der ersten umhüllen die 2 letzten Kammern das übrige Schalengebilde vollständig, bei den beiden anderen bilden 3 resp. 5 Kammern die äußerste Lage. Die Gattung gehört zu den wichtigsten gesteinsbildenden Foraminiferen der früheren Erdperioden (Eocän von Paris) und der Jetztzeit.
6. Familie: Orbitolitidae Reuss em. Rhumbler.
Diese Familie ist aus Formen zusammengesetzt, welche sandige, kalkig imperforate oder perforate Schalen besitzen, welche ein zyklisches Wachstum besitzen. Die Schalen sind flach, alle Kammern, außer den ersten, sind durch sekundäre Wände untergeteilt.
Orbitolites Lamarck (vgl. Fig. 32, S. 31), kalkig imperforate Form. Die großen Individuen leben litoral in den tropischen und subtropischen Meeren.
7. Familie: Textularidae Brady.
Schalen sandig, kalkig-sandig oder rein kalkig, meist perforat, selten imperforat. Kammern in zwei oder mehr alternierenden Reihen, welche bei den höheren Formen spiral aufgewunden sind.
Textularia Defrance (Fig. 576 A und B), zweireihige Schale mit schlitzförmiger Oeffnung, welche quer zur Schalenlängsachse an der Basis der Innenwand der Endkammer sitzt.
[S. 641]
8. Familie: Textularidae Rhumbler.
Schale stets kalkig, sehr fein perforiert; Kammern perlschnurartig aneinandergereiht in gerader, gebogener oder planospiraler Anordnung. Bei den Lageninen trennen sich die neuen Kammern sofort nach ihrer Entstehung als selbständige monothalame Schalen ab.
Nodosaria Lamarck (Fig. 576 E), gerade oder gebogene Kammerreihen; Kammern meist kuglig mit halsartiger Verlängerung.
Lagena Walker u. Boys (Fig. 576 C u. D), flaschen- oder beutelförmige Schalen von der Gestalt und Struktur der Kammern der Nodosaria.
9. Familie: Endothyridae Rhumbler.
Planospirale oder doch nur um eine kurze Achse aufgewundene einreihige Formen. Zum Teil Kammern durch sekundäre Scheidewände untergeteilt. Perforat und imperforat. Sandig, sandig-kalkig oder rein kalkig.
Endothyra Phil.
10. Familie: Rotalidae Brady em. Rhumbler.
Schale stets kalkig porös; frei oder festgewachsen, spiral, entweder so aufgewunden, daß alle Kammern auf der oberen Fläche sichtbar sind, auf der unteren Schalenfläche (wo die Oeffnung liegt) aber nur die Kammern des letzten Umgangs, oder so, daß auf beiden Seiten nur der letzte Umgang sichtbar ist. Manchmal die Dorsalfläche, manchmal die Ventralfläche mehr konvex. Schale, namentlich bei festgewachsenen Formen, oft unregelmäßig, bei den höheren involuten Formen mit Kanalsystem.
Rotalia Lamarck (Fig. 544, S. 615), flach, schneckenförmig, fein perforiert, mit sekundärer Ablagerung über den Suturen und im Umbilicus, Oeffnung in der Nähe des peripheren Randes der letzten Kammer. Die größeren Arten mit interseptalen Kanälen.
Globigerina d’Orbigny (vgl. Fig. 268, S. 283), und
[S. 642]
Hastigerina Thomson, zwei pelagische Gattungen mit schneckenförmig aufgewickelten, fein perforierten Schalen mit langen Schwebstacheln.
Orbulina d’Orbigny (Fig. 67, S. 54), globigerinaähnliche Formen, deren letzte Kammer die früheren Kammern in Form einer großen Kugel umgibt.
Polystomella Lamarck (vgl. Fig. 66, S. 53 und Fig. 577). Die oft behandelte Form hat eine nautilusartig aufgewickelte Schale mit mehr oder weniger entwickeltem Kanalsystem; die Oeffnung besteht in einer V-förmigen Reihe von Poren.
Nummulites Lamarck (Fig. 578), die größten fossilen Formen umfassend mit wenigen rezenten Repräsentanten.
Anhang: Xenophyophora F. E. Schulze.
In der Tiefsee finden sich eigenartige Organismen von Scheiben- oder Fächerform oder algenartig verästelter Gestalt, welche 2–7 cm Größe erreichen und aus einem Geflecht von zartwandigen, mikroskopisch feinen, teils engeren, teils weiteren Röhren bestehen. Diese sind teils netzig verbunden, teils strauchartig verästelt und in ein Gerüst von untereinander verklebten Fremdkörpern (Xenophya) eingelagert; bei manchen Arten findet sich auch ein Filz von feinen haarartigen Fasern (Linellen) zwischen den Röhren. Die feineren Röhren (Granellare) sind mit vielkernigem Plasma erfüllt, welches manchmal in zahlreiche Stücke zerfallen ist (Schwärmerbildung?). Die gröberen Röhren (Sterkomare) enthalten zahlreiche, den Sterkomen der Foraminiferen zu vergleichende, meist dunkelbraun gefärbte, als Kotballen gedeutete Klumpen.
Die Deutung dieser Organismen, welche früher zu den Spongien gerechnet wurden, als den Foraminiferen verwandte Rhizopoden ist [S. 643]durchaus hypothetisch, da noch keine lebenden Exemplare untersucht worden sind.
Gattungen: Psammina Haeckel, Psammetta F. E. Schulze, Stanomma Haeckel (vgl. Fig. 579 und Fig. 580).
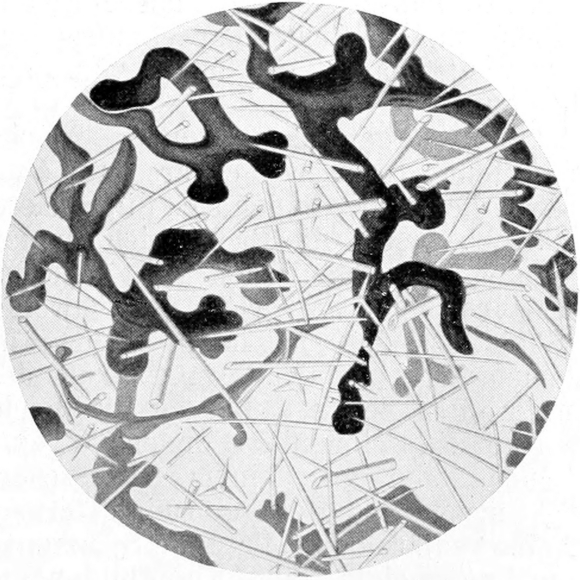
IV. Ordnung:
Radiolaria.
Joh. Müller.
Während bei den Heliozoen eine gewisse Formbeständigkeit des Körpers durch Achsenfäden und Zentralkorn, durch lose Skelettelemente und nur bei wenig Arten durch zusammenhängende Skelette gewährleistet wird, finden wir bei den ebenfalls meist kugligen, allseitig symmetrischen Radiolarien einen formbeständigen Skelettbestandteil, die Zentralkapselmembran, als Grundlage der Gesamtorganisation ausgebildet. Sie umschließt die Zentralkapsel, den wichtigsten, [S. 644]meist zentral gelegenen Bestandteil des Radiolarienkörpers, dessen Protoplasma die Kerne enthält.
Die Zentralkapsel ist stets von dem extrakapsulären Weichkörper umhüllt, einer Plasmaschicht, welche alle möglichen Einschlüsse enthalten kann. Auch bei den Foraminiferen kann das Plasma wie ein Mantel das Skelett und die zentralen Körperteile des Tieres umhüllen (vgl. Fig. 562, S. 631). Aber bei ihnen kann das Plasma jederzeit auf Reiz hin wieder in die Schale zurückgezogen werden. Bei den Radiolarien jedoch ist der extrakapsuläre Weichkörper ein ständiges Organ des Tieres, welches ohne einen schädigenden Eingriff nicht beseitigt werden kann. Auch bei den Radiolarien besteht dieser Teil des Zellleibes aus einem Netz von Protoplasmasträngen, welche aber Gallertmassen (das sog. Calymma) umschließen. Von der Oberfläche der so gebildeten Schicht erst entsendet das Körperplasma die feinen, verzweigten, retikulären, manchmal auch von Achsenfäden gestützten Pseudopodien.
Der Entwicklung der extrakapsulären Gallertmassen verdanken manche der größeren Radiolarien ihren Körperumfang. Die Radiolarien sind überhaupt in der Hauptsache nicht allzu kleine Protozoen, indem ihr Durchmesser von 40–50 µ bis zu mehreren Millimetern mißt. Ja, die Kolonien, welche manche Arten bilden, werden sogar mehrere Zentimeter groß.
Der extrakapsuläre Weichkörper ist für das Leben der Tiere von geringerer Bedeutung als die Zentralkapsel; schält man ihn mit Präparierinstrumenten ab, so vermag ihn die Zentralkapsel zu regenerieren, während er selbst, von der Zentralkapsel und damit vom Zellkern abgetrennt, rasch zugrunde geht.
Die Kapselmembran ist eine organische Bildung, welche wahrscheinlich aus Pseudochitin besteht. In ihrer Nachbarschaft, aber auch im intra- und extrakapsulären Weichkörper finden sich die Skelettbildungen aus anorganischer Substanz, welche die Radiolarien zu den schönsten und zierlichsten Bildungen der organischen Welt machen. Die in der Hauptsache aus Kieselsäure, bei Acanthariern aus schwefelsaurem Strontium bestehenden Skelette setzen sich hauptsächlich aus radiären und konzentrischen Elementen zusammen. Im Zentrum der Zentralkapsel stoßen vielfach nach allen Seiten radiär ausstrahlende Stacheln zusammen; konzentrisch der Kapselmembran finden sich eine oder mehrere zierlich durchbrochene oder aus feinem Gittergerüst bestehende Kugeln. Helm-, käfig-, urnen- und glockenförmige Gerüste prägen nicht selten dem Körper eine radiäre oder bilaterale Symmetrie auf. Stacheln, Nadeln, gegabelte und verzweigte Stäbe, Knopfbildungen, Röhren etc. kombinieren sich in unendlicher Mannigfaltigkeit, um diese Kleinodien des Weltmeers zu schaffen. Die Kieselskelette erweisen sich bei Betrachtung mit gekreuzten Nikols als einfach lichtbrechend.
Mit dem irisierenden Glanz des Kieselskelettes und dem matten Schimmer des Protoplasmas bildet oft eine feine rote, grüne, braune Farbe der Zentralkapsel einen harmonischen Zusammenklang. Dazu kommen noch die Farbennuancen, welche durch die mannigfachen weiteren Inhaltskörper der Radiolarienzelle bedingt werden. Als solche sind anzuführen Oelkugeln, welche besonders innerhalb der Zentralkapsel abgelagert werden. Nahrungskörper, Stoffwechselprodukte, Konkretionen und sehr häufig auch die symbiotischen Zooxanthellen (vgl. S. 77).
[S. 645]
Die Kerne sind bläschenförmig, oft allerdings auch ziemlich massig gebaut. Sie sind zum Teil sehr groß und zeigen sich dann vielfach aus einem dichten Binnenkörper und einer lockeren peripheren Substanz aufgebaut. Die großen Kerne mancher einkerniger Formen werden neuerdings als polyenergid aufgefaßt und der Gesamtheit der Kerne vielkerniger Zentralkapseln gleichgesetzt.
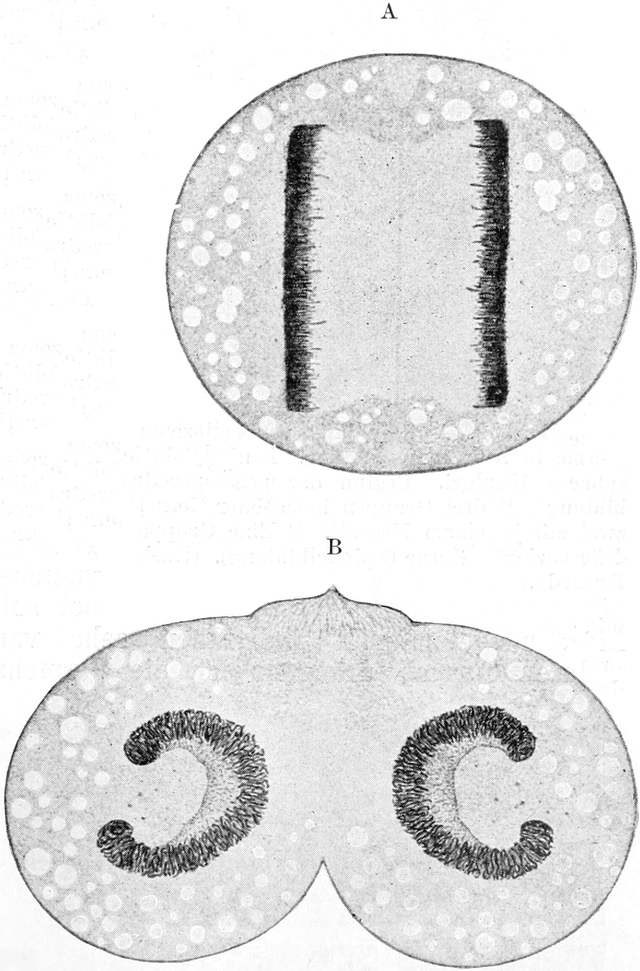
Die agame Fortpflanzung geht selbst bei ziemlich kompliziert gebauten Radiolarien durch Zweiteilung vor sich; es teilt sich dann zuerst der Kern, dann die Zentralkapsel, dann greifen die Teilungsvorgänge auf die extrakapsulären Weichkörper über, wobei die komplizierten Skelettstrukturen verteilt werden, so daß jedes Tochtertier eine Hälfte davon neu bilden muß (z. B. Aulacantha). Bei Formen mit zweiklappigem Skelett, wie den Conchariden, erhält jede Teilhälfte eine Schalenklappe. Bei Formen mit festem einheitlichen Skelettgehäuse kann, wenn eine besondere Mündung vorhanden ist, das eine der Tochtertiere bei der Teilung durch diese Schalenöffnung den Hohlraum des mütterlichen Gehäuses verlassen, und darauf an dessen Oberfläche ein eigenes Skelett abscheiden. Alle diese Vorgänge sind gerade bei den Radiolarien recht wenig studiert, und es ist möglich, daß die kompliziertesten Formen mit festgefügtem Skelett, ähnlich wie die Foraminiferen, nicht imstande sind, eine vollkommene Körperteilung durchzuführen und statt dessen eine größere Anzahl von kleinen Nachkommen produzieren, welche das tot zurückbleibende Skelett des Muttertieres verlassen. Bei Thalassicollen, Tripyleen etc. ist beobachtet worden, daß die gewöhnlichen Zweiteilungen manchmal so schnell aufeinanderfolgen, daß die Zentralkapseln zu 2, 4 oder 8 im gemeinsamen extrakapsulären Weichkörper eine Zeitlang eingeschlossen [S. 646]bleiben. Das stellt einen interessanten Uebergang zu koloniebildenden Formen dar. Als Knospung sind vielleicht gewisse Vermehrungsvorgänge bei Acanthometriden zu deuten, welche sehr an Heliozoenknospung zu erinnern scheinen. Ferner sind von Brandt bei Sphärozoen gewisse Vermehrungserscheinungen an den jugendlichen Zentralkapseln für Knospung gehalten worden.
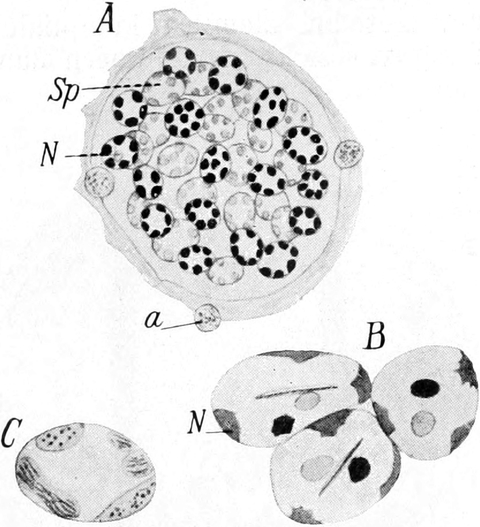
Multiple Vermehrungsvorgänge kommen sicher bei zahlreichen Radiolarien vor. Doch ist es unsicher, ob die bisher bekannte Schwärmer- oder Zoosporenbildung agamen Charakter hat. Da bei manchen Formen große und kleine Schwärmer vorkommen, welche von gesonderten Individuen produziert werden, so liegt die Annahme nahe, daß es sich um Mikro- und Makrogametenbildung handelt.
Die multiplen Vermehrungsvorgänge bestehen stets in einer Aufteilung des Inhalts der Zentralkapsel. Diese, welche bei dem jungen Radiolar einkernig war, wird zunächst vielkernig. Die Teilung der Kerne erfolgt bei manchen Arten sehr langsam; bei solchen Formen findet man in den gefangenen Individuen sehr variable Kernzahlen. Bei anderen Formen drängen sich die Vermehrungsvorgänge auf einen [S. 647]kurzen Zeitraum zusammen, während das Radiolar während des Hauptteils seines Lebens einkernig ist. Von solchen Arten fängt man in der Regel einkernige Individuen und nur selten solche, deren Zentralkapsel von Hunderten kleiner Kerne erfüllt ist.
Die Kernvermehrungsvorgänge in den Zentralkapseln sind erst bei wenig Arten genauer studiert worden. Amitotische Kernteilung unter mannigfachen Modifikationen wird angegeben. Ferner sind Mitosen der ganzen polyenergiden Kerne sowie der aus ihnen hervorgegangenen Sekundärkerne geschildert worden. Und ähnlich wie bei den Foraminiferen werden bei Radiolarien eigenartige Erscheinungen multiplen Zerfalls der Kerne beschrieben. Die Kernmasse löst sich entweder in ihrer Gesamtheit in eine Menge stark färbbarer Brocken auf, welche später bläschenförmig werden und dann noch mitotische Teilungen durchmachen (Fig. 582) oder — bei Kernen mit mächtigem zentralen Binnenkörper und stark entwickelter „Rindenschicht“ wandelt sich letztere in zahllose kleine Kerne um (Fig. 584 A u. B).
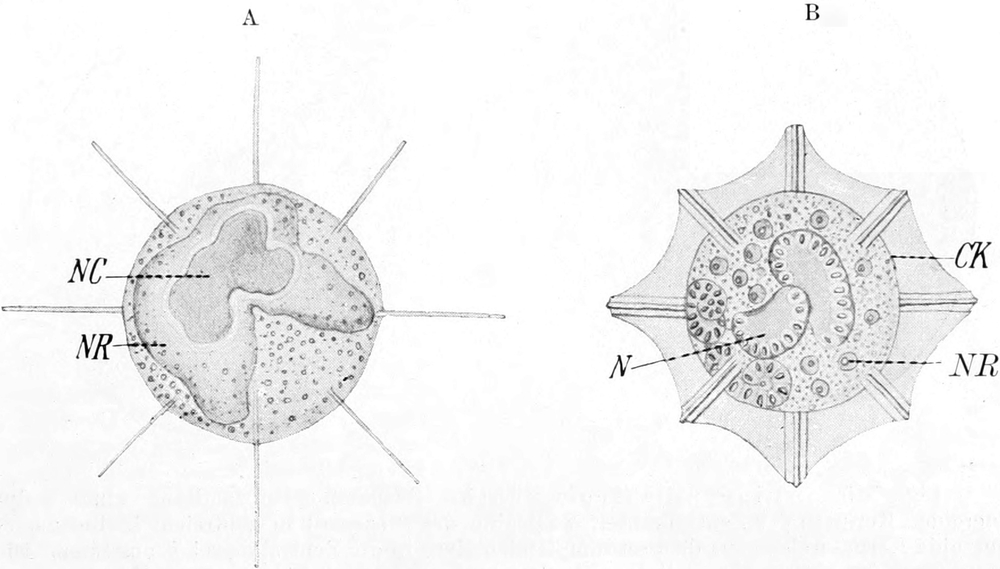
Nach Borgert erfolgt bei Tripyleen, speziell bei Aulacantha, die Gametenbildung folgendermaßen. Der große Kern der einzelligen Zentralkapsel läßt aus seiner Substanz kleine Chromatinbläschen hervorgehen, welche sich in Kerne umwandeln, deren jeder einen chromosomenähnlichen Strang enthält. Die so entstandenen Sekundärkerne vermehren sich durch mitotische Teilung.
Ihre Bildung schreitet so lange fort, bis der ganze große Primärkern, ohne Spuren zu hinterlassen, aufgebraucht ist. Dann löst sich auch die Zentralkapselmembran und das Phaeodium (siehe S. 659) schwindet. Die Plasmamasse zerklüftet sich in kuglige Ballen, welche von zahllosen Kernen erfüllt sind, die sich je nach den Individuen, welche sie enthalten, etwas unterscheiden. Die einen sind kleiner, sind von wenig Plasma umschlossen und enthalten im Innern Kristalloide; die anderen sind etwas größer, von mehr Plasma umschlossen und entbehren [S. 648]der Kristalloide. Erstere werden als Mikrogameten-, letztere als Makrogametenkerne gedeutet. Die Umbildung der Gametenanlagen zu wohl geißeltragenden Schwärmern, wie sie unten für Sphärozoiden, Colliden und Acanthometriden beschrieben sind, wurde nicht beobachtet. Ebensowenig Kopulation.
Bei dem großen, mit einem riesigen Kern versehenen Radiolar, Thalassicolla, geht die Bildung der Sekundärkerne in einer prinzipiell ähnlichen Weise vor sich. Doch ist trotz der Untersuchungen von Brandt, Hartmann und Hammer, Moroff und Huth die Fortpflanzung bei dieser Form noch nicht vollkommen geklärt. Nach dem letzteren Beobachter entstehen aus den Chromatinbestandteilen des polyenergiden Kerns die Sekundärkerne, welche in eigenartigen Schläuchen aus dem Kern auswandern. Dabei lassen sich Verschiedenheiten aufweisen, welche auf eine multiple agame Vermehrung einerseits und Gametenbildung andererseits hindeuten.
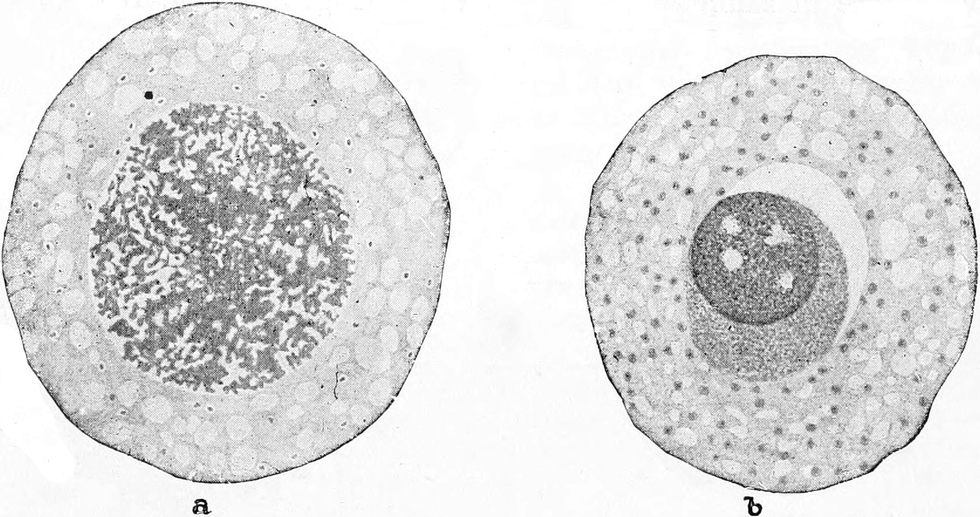
Die Bildung der Schwärmsporen selbst wurde bei einigen Formen studiert.
Nach Haecker kommt bei gewissen Orosphäriden (Oroscena regalis) eine eigenartige Form der Kernvermehrung vor, indem der sehr große (in der Zentralkapsel in der Einzahl vorhandene Kern) sich zunächst in zwei Kerne teilt, von denen der eine als Dauerkern, der andere als Geschlechtskern bezeichnet wird. Der letztere zerfällt in sehr zahlreiche kleine Kerne, welche zu den Kernen der Sporenmutterzellen werden. Der Dauerkern kann aber nach der Annahme Haeckers noch mehrmals einen Geschlechtskern durch Teilung aus sich hervorgehen lassen und dadurch dem kompliziert gebauten Radiolar ermöglichen, mehrmals Bruten von Schwärmern zu „gebären“.
Bei den genauer untersuchten Formen (hauptsächlich Thalassicolla und Sphärozoiden) sondert sich in einer vielkernigen Zentralkapsel um jeden Kern eine Portion Protoplasma; dieselbe nimmt eine ovale oder nierenförmige Gestalt an und schwärmt aus, nachdem eine oder zwei Geißeln hervorgesproßt sind. Schon vor dem Moment des Ausschwärmens [S. 649]beginnt das von dem Zentralkapselinhalt getrennte extrakapsuläre Plasma abzusterben.
Die Radiolarienkörper, welche keine ausgleichenden Reaktionen mehr ausführen können, sinken langsam unter; so kommt es, daß die Schwärmer meist erst in größeren Tiefen ausschwärmen.
Wie schon erwähnt, kommen verschiedene Typen von Schwärmern bei den Radiolarien vor. Der eine Typus wird als Isosporen bezeichnet. Bei ihrer Bildung spielen häufig kleine Kristalloide einer eiweißartigen organischen Substanz eine wichtige Rolle, weshalb sie auch als Kristallschwärmer bezeichnet werden. Die in großer Menge auftretenden winzigen Kristalloide werden je eines in einen der entstehenden Schwärmer aufgenommen, dessen Körper sie oft durch ihre Größe deformieren. Durch sie, welche als von der Isospore mitgenommene Reservesubstanzen gedeutet werden, und durch die massigen und angeblich doppelt lichtbrechenden Kerne werden die Isosporen charakterisiert.
Die Isosporen werden als agame Fortpflanzungsstadien gedeutet, da bei den gleichen Radiolarienarten zum Teil auch die sog. Anisosporen beobachtet worden sind. Es sind dies ebenfalls geißeltragende Schwärmer, welche gleichzeitig in einer größeren und einer kleineren Form vorkommen. Daher hat man sie als Mikro- und Makrogameten gedeutet. Sie sind ferner durch den Besitz bläschenförmiger, einfach lichtbrechender Kerne, welche bei den Makrosporen chromatinarm und bei den Mikrosporen chromatinreich sind, und durch die Abwesenheit der Kristalloide charakterisiert. Bei Iso- und Anisosporen sind Oeltropfen konstatiert worden. Dagegen fehlen bei der Isosporenbildung eigenartige Fettansammlungen, die Fettträubchen, um welche sich bei der Anisosporenbildung die Kerne in radiärer Anordnung gruppieren (vgl. Fig. 583 A).
Ebensowenig wie die agame Entwicklung der Isosporen zu jungen Radiolarien ist die Kopulation der Anisosporen beobachtet worden. Beides ist also nur eine, allerdings sehr wahrscheinliche, Hypothese. Ebenso der Generationswechsel zwischen den Isosporen und den Anisosporen erzeugenden Individuen.
[S. 650]
Bei den meisten untersuchten Formen (Collozoum, Sphaerozoum, Thalassicolla) werden Mikro- und Makrosporen vom gleichen Individuum erzeugt, was ja gegen die Deutung als Gameten sprechen könnte. Bei Collosphäriden entstehen sie jedoch in verschiedenen Individuen. Die Schwärmerbildung setzt das Vorhandensein einer komplizierten Entwicklungsgeschichte voraus, welche von der einfachen Zygote zu dem komplizierten erwachsenen Radiolar führt. Man hat in skelettlosen kleinen Formen, oder solchen, welche sich mit Fremdkörpern inkrustieren, wie den Phäodiniden und Cämentelliden solche Jugendstadien erblicken wollen. Doch ist eine solche Deutung sehr unsicher, in einzelnen Fällen sogar nach neueren Forschungen ausgeschlossen und daher die Entwicklungsgeschichte der Radiolarien noch ganz unklar.
Die Ernährung der Radiolarien ist holozoisch; man findet in ihrem Körper vielfach die aufgenommenen Körper von Flagellaten, Diatomeen etc., welche mit Hilfe der oft weit ausgestreckten, feine Netze bildenden Rhizopodien eingefangen wurden. Bei den Oberflächenformen mögen die symbiotischen Zooxanthellen immerhin eine Rolle spielen. Parasitische Radiolarien sind nicht bekannt. Kontraktile Vakuolen kommen bei Radiolarien nicht vor.
Im Gegensatz zu den Foraminiferen sind die Radiolarien fast ausschließlich pelagische Tiere. Und zwar kommen sie nur im Meer und da von der Oberfläche bis zu großen Tiefen vor. Ja man hat sogar, da manche Formen ganz regelmäßig nur in gewissen Tiefen gefunden werden, die einzelnen Schichten des Meerwassers durch Benennung nach den vorkommenden Radiolarien zu kennzeichnen gesucht: Collidenschicht 0–50 m, Challengeridenschicht 50- ca. 400 m, Tuscarorenschicht 400–1000 oder 1500 m, Pharyngellenschicht 1000 oder 1500–4000 oder 5000 m (nach Haecker).
Die Gallerte, welche in manchen Fällen spezifisch leichter ist als das Seewasser, die Fette und Oeltropfen, die ausgestreckten Pseudopodien und die den Formwiderstand erheblich steigernden zarten Skelette erleichtern den Radiolarien sehr das Schweben im Wasser. Sie vermögen durch hydrostatische Bewegungen auf und ab zu steigen und dadurch günstige Lebensbedingungen aufzusuchen und ungünstige zu vermeiden. So steigen Oberflächenformen bei Regen abwärts usw.; die hydrostatischen Bewegungen werden durch Formänderung, Volumänderung etc. bewirkt.
Auch in der horizontalen Verbreitung der Radiolarien lassen sich gewisse Gesetzmäßigkeiten erkennen, indem Warmwasserformen und Kaltwasserformen sich unterscheiden lassen; auch sind bestimmte Arten Angehörige des Hochsee- resp. Küstenplanktons.
Im Anschluß an Haeckel und R. Hertwig teilen wir die zahllosen, unendlich formmannigfaltigen Radiolarien in die vier Unterordnungen:
|
1.
|
Unterordnung
|
: Spumellaria
|
}
|
Porulosa
|
|
2.
|
„
|
: Acantharia
|
||
|
3.
|
„
|
: Nassellaria
|
}
|
Osculosa
|
|
4.
|
„
|
: Phaeodaria
|
Die entscheidenden Merkmale für die Systematik werden geliefert durch die Beschaffenheit des Skelettes, die Art der Durchbohrung der Wand der Zentralkapsel und den gesamten Habitus der Formen.
[S. 651]
Die beiden Unterordnungen der Spumellaria und Acantharia werden auch infolge der allseitigen Durchbrechung ihrer Zentralkapselwand durch zahlreiche Poren als Porulosa, die Nassellarien und Phäodarien infolge des Besitzes von einer bis höchstens 3 Oeffnungen (Oscula) in der nicht porösen Zentralkapselwand als Osculosa zusammengefaßt.
1. Unterordnung.
Spumellaria Haeckel.
Die Spumellarien (auch Peripyleen genannt) sind durch eine kugelige Zentralkapsel ausgezeichnet, deren Wand von zahllosen feinen Poren durchsetzt ist. Der zentral in der Kapsel gelegene Kern ist meist groß und teilt sich erst spät. Ein Skelett fehlt oft; wenn es vorhanden ist, so ist es kieselig und relativ einfach gebaut, indem es meist aus einer, außerhalb des extrakapsulären Weichkörpers abgelagerten Schicht lockerer Skelettelemente oder einer an der gleichen Stelle befindlichen Gitterschale besteht. Es kommen auch Stachelbildungen etc. vor, auch zu Scheiben abgeplattete Skelette.
Bei den Spumellarien kommt auch Koloniebildung vor, indem bei manchen Formen die Zentralkapseln sich nach der Teilung nicht trennen, sondern in einen gemeinsamen extrakapsulären Weichkörper eingebettet bleiben.
Wir teilen die Spumellaria in die 3 Legionen der
- Sphaerellaria Haeckel,
- Polycyttaria Haeckel,
- Collodaria Haeckel em. Brandt und Häcker.
1. Legion.
Sphaerellaria Haeckel.
Diese durch ihre allseitig poröse Zentralkapsel, durch das Einzelleben der ziemlich kleinen Individuen und den Besitz einer vollkommenen Gitterschale oder eines aus verzweigten und verflochtenen Einzelelementen bestehenden Kieselskelettes gekennzeichnete formenreiche Gruppe teilen wir in 4 Familien von folgenden Charakteren:
1. Familie: Sphaeroidae Haeckel.
Skelett eine Gitterkugel; letztere kann mit mannigfachen Stachelbildungen versehen sein. Auch kommen Formen mit mehreren konzentrischen Gitterkugeln vor. (Cenosphaera Ehrenberg, Staurosphaera Haeckel, Acanthosphaera Ehrenberg.)
2. Familie: Prunoidae Haeckel.
Bei diesen Formen ist die Grundform des Tieres, seiner Zentralkapsel und Gitterschalen, welche in der Struktur den Angehörigen der vorigen Familie gleichen, ellipsoidisch, wobei die senkrechte Hauptachse des Tieres verlängert ist (Druppula Haeckel).
3. Familie: Discoidae Haeckel.
Die Formen dieser Gruppe sind in der horizontalen Achse abgeplattet, sonst denen der vorigen Familie gleichend. Linsenförmige [S. 652]Arten, doch auch Formen mit eigenartigen Fortsätzen. (Archidiscus Haeckel, Euchitonia Haeckel, Chitonastrum Haeckel.)
4. Familie: Larcoidae Haeckel.
Die Larcoiden gleichen den Prunoiden darin, daß ihre senkrechte Achse länger ist als die horizontale; doch ist bei ihnen eine „dorsoventrale“ Abplattung erkennbar (Cenolarcus Haeckel).
2. Legion.
Polycyttaria Haeckel.
Bei diesen Formen, welche im erwachsenen Zustand mehrere Zentimeter große Kolonien von Kugel-, Ellipsoid- oder Bandform bilden, sind die allseitig porösen Zentralkapseln in die gemeinsame extrakapsuläre Gallerte eingebettet, welche von dem kontinuierlich durch Anastomosen zusammenhängenden extrakapsulären Protoplasma der sämtlichen Zentralkapseln durchzogen ist.
Die Zentralkapseln sind vielkernig, die Kerne sind in einer Lage angeordnet, welche die in der Regel das Zentrum einnehmende große farbige Oelkugel umgibt. Das Wachstum der Kolonien findet durch plasmotomische Teilung oder Knospung der Zentralkapseln statt. Nicht selten zerfallen die Kolonien durch Zerschnürung in mehrere Tochterkolonien. Bei den Polycyttarien sind hauptsächlich die oben geschilderten Schwärmer und ihre Entstehung beobachtet worden. Zooxanthellen kommen sehr vielfach vor.
Wir teilen die Polycyttarien in 2 Familien:
1. Familie: Sphaerozoidae Haeckel.
Formen ohne Kieselgebilde oder solche, deren Skelett aus losen Stacheln besteht, welche tangential um die Zentralkapseln angeordnet sind, deren kuglige oder bandförmige, oft vielfach eingeschnürte Kolonien 4–6 cm groß werden (Collozoum inerme, Fig. 587, Sphaerozoum punctatum).
[S. 653]
2. Familie: Collosphaeridae Joh. Müller.
Formen, deren Zentralkapseln je von einer Gitterkugel umhüllt sind (Collosphaera Joh. Müller).
3. Legion.
Collodaria Haeckel em.
Brandt und Häcker.
Diese Legion ist aus zum Teil sehr stattlichen einzellebenden, meist kugligen Radiolarien zusammengesetzt, bei denen ein Kieselskelett entweder vollkommen fehlt oder, wenn vorhanden, einen relativ einfachen Bau besitzt. Die Collodarier besitzen meist eine sehr reichlich entwickelte extrakapsuläre Gallerte. Ihre Zentralkapsel ist einkernig; der Kern oft durch Ausbildung von Binnenkörper und Rindenschicht mit fädigen Strukturen kompliziert gebaut, in anderen Fällen bläschenförmig mit mehreren Binnenkörpern.
Die Collodarier, über deren Fortpflanzungserscheinungen manches bekannt ist (s. oben), leben meist in den oberflächlichen Schichten des Meeres (0–100 m).
Die Collodarier werden eingeteilt, wie folgt:
1. Familie: Physematidae Brandt.
Formen mit kugligem Kern und mit intrakapsulären Vakuolen. Zentralkapselmembran sehr dünn. Nadeln vorhanden oder fehlend. (Physematium Haeckel, Thalassolampe Haeckel.)
2. Familie: Thalassicollidae Haeckel em. Brandt.
Formen mit kugligem Kern und mit extrakapsulären Vakuolen. Zentralkapselmembran derb. Nadeln vorhanden oder fehlend (Thalassicolla pelagica Haeckel, Fig. 588).
[S. 654]
3. Familie: Thalassophysidae Brandt.
Kern meist mit radialen Aussackungen, Kernsubstanz in Binnenkörper und Außenmasse gesondert. (Thalassophysa Haeckel.)
4. Familie: Thalassothamnidae Häcker.
Große Formen mit einer einzigen verzweigten Riesendoppelnadel mit kugliger oder baumartig verzweigter Zentralkapsel (Thalassothamnus Häcker, Cytocladus Schröder).
5. Familie: Orosphaeridae Haeckel.
Formen mit derber Gitterschale, auf welcher sich bedornte und verzweigte Radialstacheln erheben, meist kuppel- oder glockenförmig. Sehr große Formen (bis 4–4,5 mm). (Oroscena Haeckel, O. regalis Borgert, Fig. 589.)
2. Unterordnung.
Acantharia Haeckel.
Die oft unregelmäßig gestaltete Zentralkapsel dieser auch als Actipylea bezeichneten Formen ist allseitig von Poren durchbohrt, welche eine regelmäßige Anordnung in Reihen und Feldern erkennen [S. 655]lassen. In derselben liegt der Kern meist exzentrisch; infolge frühzeitiger Teilung sind vielfach mehrere Kerne vorhanden.
Das Skelett besteht in der Hauptsache aus radiären Elementen; es sind dies im Mittelpunkt der Zentralkapseln zusammenstoßende Stacheln, welche meist eine sehr regelmäßige Anordnung erkennen lassen. Die regelmäßige Anordnung der Stacheln ist durch das sogenannte Müllersche Gesetz ausgedrückt, welches durch folgende Ausführungen veranschaulicht wird: Wenn man den Acantharienkörper mit der Erdkugel vergleicht und auf seiner Oberfläche sich Kreise gezogen denkt, welche dem Aequator, den Wende- und Polarkreisen entsprechen, so erhält man die 5 parallelen Kreise, in denen die aus dem Mittelpunkt entspringenden Stacheln an der Oberfläche des Tieres hervortreten. Und zwar ergeben sich damit 5 Kreise zu je 4 Stacheln = 20 Stacheln. Die Stacheln des Aequator und der Polarkreise stehen nun in regelmäßigem Abstand zueinander so angeordnet, daß sie ihre Parallelkreise in dem Punkt durchbrechen, in welchem diese von Meridianen geschnitten werden, welche um 90° voneinander abstehen. Wenn man einen davon also als 0° bezeichnet, so entsprechen sie je 0°, 90°, 180°, 270°. Die Stacheln der Wendekreise jedoch treten an Punkten hervor, an denen ihre Parallelkreise von den genau in der Mitte zwischen den oben genannten liegenden Meridianen geschnitten werden. Also bei 45°, 135°, 225° und 315°. Bei der Projektion der Radien auf die Ebene des Aequators erscheint diese also in 8 Sektoren von je 45° geteilt. Die im polarisierten Licht doppelt lichtbrechenden Skelette bestehen nicht, wie man früher annahm, aus einer organischen Substanz (Acanthin), sondern, wie neuere Untersuchungen von Bütschli ergaben, aus schwefelsaurem Strontium.
Die Stacheln sind von Gallertscheiden umgeben, welche von kleinen Muskelfäserchen, den Myophrisken (vgl. Fig. 590), bewegt werden. Durch ihre Kontraktion wird die für die hydrostatische [S. 656]Bewegung so wichtige Form- und Volumänderung der Tiere herbeigeführt (vgl. S. 650).
Bei manchen Formen sind die Stacheln untereinander durch Gitterkugeln, welche aus je 20 Platten bestehen, verbunden. Die Platten werden als Auswüchse je eines der Stacheln betrachtet. Es werden zu dieser Unterordnung auch Formen mit unregelmäßiger angeordneten, in verschiedenen Zahlenverhältnissen vorhandenen Stacheln gerechnet.
Bei den Acanthariern kommen außer den gewöhnlichen Rhizopodien auch Axopodien vor. Bemerkenswert ist auch, daß bei ihnen die Zooxanthellen innerhalb der Kapselmembran sich befinden, ferner daß sie im Gegensatz zu denjenigen anderer Radiolarien keine derbe Membran besitzen.
Letztere Tatsachen geben Anlaß, eine neue Interpretation des Baues der Acanthometriden zu erwähnen, welche von Moroff und Stiasny auf Grund ihrer Untersuchungen versucht worden ist. Diese Autoren glauben durch eine zusammenhängende Entwicklungsreihe nachgewiesen zu haben, daß die „gelben Zellen“ keine dem Organismus des Radiolars fremden Gebilde sind, sondern Kerne (trophische Kerne der einzelnen Individuen). Die Acanthometriden sind nach ihrer Auffassung keine einzelnen Individuen, sondern Kolonien von Tieren. Diese Angaben bedürfen noch sehr der Bestätigung.
Sehr viele Acantharien sind Oberflächenformen. Wir teilen sie in 4 Familien:
1. Familie: Acantharidae Haeckel.
Formen mit 20 nach dem Müllerschen Gesetz angeordneten Stacheln, welche meist annähernd gleich lang sind (Acanthometra elastica Joh. Müller, Fig. 590; Zygacanthidium pallidum, Fig. 267 D, S. 282).
2. Familie: Sphaerophractidae Haeckel.
Formen mit ebenfalls 20 nach dem Müllerschen Gesetz angeordneten, etwa gleich langen Stacheln, welche an einer oder mehreren Stellen ihres Verlaufes in gleichmäßigem Abstand vom Zentrum verästelte Fortsätze besitzen. Indem letztere miteinander verschmelzen, entstehen eine oder mehrere konzentrische Gitterkugeln, deren jede aus 20 Elementen zusammengesetzt ist. Sphaerocapsa Haeckel, Phractaspis Haeckel).
3. Familie: Prunophractidae Haeckel.
Aehnlich gebaute Formen, welche sich aber dadurch unterscheiden, daß die Hauptachsen nicht gleich lang sind, sondern verschieden lang, was sich an Zentralkapsel, Gitterkugeln und Stacheln bemerkbar macht (Thoracaspis Haeckel, Diplocolpus cristatus Haeckel, Fig. 267 G, S. 282).
4. Familie: Actinelidae Haeckel.
Die unregelmäßig gestellten Stacheln kommen in unregelmäßigen, oft sehr großen Zahlen vor (Actinelius Haeckel, Podactinelius Schröder, Litholophus Haeckel).
[S. 657]
3. Unterordnung.
Nassellaria Ehrenberg em. Haeckel.
Die Formen dieser Gruppe werden auch Monopyleen genannt, weil ihre dichtwandige Zentralkapsel an der Basis der Hauptachse eine einzige Hauptöffnung besitzt; Nebenöffnungen kommen nicht vor. Diese Hauptöffnung ist durch einen porösen Deckel verschlossen, oder vielmehr, es entspricht ihr ein Feld von feinen Poren, dessen Wand in Form eines Kegels stark verdickt ist. Die Zentralkapsel besitzt oft eine bizarre, radiäre oder bilateral-symmetrische Gestalt. Der oft sehr lange, in der Einzahl persistierende Kern liegt exzentrisch. Die Pseudopodien entspringen in der Mehrzahl unterhalb der Hauptöffnung.
Das stets kieselige Skelett besteht aus soliden (nicht hohlen) Elementen; es kann aus drei Stücken bestehen, welche als Dreifuß (Basalstacheln), Capitulum (Köpfchen, Gitterkugel) und Ring bezeichnet [S. 658]werden. Sie können getrennt oder gemeinsam vorkommen und können durch Anhänge, Stacheln, Verzweigungen und allerhand Zierrat eine schier unendliche Fülle von Kombinationen erreichen, welche bei fossilen und rezenten Nassellarien einen unerschöpflichen Formenreichtum bedingen.
1. Familie: Nassoidae Haeckel.
Formen ohne Skelett.
2. Familie: Plectoidae Haeckel.
Formen ohne Capitulum und Ring, jedoch mit oft verzweigtem Dreifuß.
3. Familie: Stephoidae Haeckel.
Ohne Capitulum, meist ohne Dreifuß, jedoch stets mit einfachem oder mehrfachem Ring.
4. Familie: Cyrtoidae Haeckel.
Mit wohlausgebildetem Capitulum, welches mit dem Dreifuß verwachsen ist, ohne Ring. Vielfach käfigartige Formen.
5. Familie: Spyroidae Ehrenberg.
Mit wohlausgebildetem Capitulum und Dreifuß, Capitulum durch eine sagittale Einschnürung in zwei Hälften geteilt.
6. Familie: Botryoidae Haeckel.
Aehnlich, jedoch mit drei oder mehr vertikalen Einschnürungen des Capitulums, ohne Fuß und mit mantelartiger Verlängerung des Capitulums.
Von den interessanten Formen dieser Unterordnung seien folgende erwähnt:
[S. 659]
Aus der Familie der Cyrtoidae schweben zahlreiche Formen in den verschiedenen Wasserschichten des Ozeans der Gegenwart, deren Skelett die zierlichsten Käfige, Helme, Glocken etc. in der Form nachzuahmen scheint. Und die Mehrzahl der bekannten fossilen Radiolarienarten gehören zu dieser Familie. Wohl 1200 Arten sind bisher beschrieben worden, deren Unterscheidung hauptsächlich auf Vergrößerung und Abänderung des Capitulum durch accessorische Bildungen beruht. Die Gattungen Eucyrtidium Haeckel, Stichophormis Haeckel, Theopera Haeckel, Theophormis Haeckel gehören zu den reizvollsten Vertretern der Gruppe.
In der Familie der Stephoidae ist der sagittal angebrachte „Ring“ das auffallendste Skelettelement, welches bei den Gattungen Cortiniscus Haeckel, Zygostephanus Haeckel, Protympanium Haeckel u. a. zu sehr auffallenden Bildungen führt.
4. Unterordnung.
Tripylea R. Hertwig.
Die Gattungen dieser Unterordnung besitzen ebenfalls eine an der Basis der Hauptachse gelegene Hauptöffnung, welche durch einen radiär gestreiften Deckel bedeckt wird; in dessen Zentrum befindet sich die oft röhrenartig ausgezogene, von einem extrakapsulär gelegenen dunkeln Ballen von Sekrettropfen und Pigment (Phaeodium) umgebene Oeffnung. Meist der Hauptöffnung (Astropyle) gegenüber finden sich noch zwei Nebenöffnungen (Parapylen).
Das kieselige Skelett dieser Arten besteht aus vielfach hohlen Einzelstücken, doch kommen auch solide Skelettelemente vor.
Durch Vermehrung der Zentralkapseln kann eine eigenartige Form der Koloniebildung zustande kommen.
Die Unterordnung der Tripyleen zerfällt nach Häcker in 6 Gruppen von Familien, welche wir hier als Legionen bezeichnen.
System der Tripyleen nach Häcker.
1. Legion.
Phaeocystina Haeckel.
Formen ohne Skelett, oder mit einem solchen, welches aus zahlreichen hohlen Radialstacheln besteht, die mit ihren proximalen Enden entweder frei im Weichkörper stecken oder zentral zu einem Stern verbunden sind.
1. Familie: Aulacanthidae Haeckel.
Skelett aus hohlen Radialstacheln und einem Mantel von feinen Tangentialröhren bestehend. Aulacantha Haeckel (Aulacantha scolymantha Haeckel, Fig. 594 A).
2. Familie: Astracanthidae Häcker.
Dicystine (d. h. mit zwei Zentralkapseln ausgestattete) Formen mit radiär angeordneten, hohlen, am distalen Ende mit verschiedenartigen Endbildungen ausgestatteten Radialstacheln, deren innere Enden an der Oberfläche einer zentralen Hohlkugel zusammenstoßen.
[S. 660]
2. Legion.
Phaeosphaeria Haeckel.
Skelett aus einer oder zwei konzentrischen Schalen bestehend. Pylomöffnung, wenn vorhanden, auf die innere Schale beschränkt.
3. Familie: Aulosphaeridae Haeckel.
Einfache Gitterschale, aus hohlen, von einem Achsenfaden durchsetzten Tangentialbalken bestehend. Keine Pylomöffnung.
4. Familie: Cannosphaeridae Haeckel.
Zwei konzentrische, durch Radialbalken verbundene Schalen. Innere Schale mit Pylomöffnung.
5. Familie: Sagosphaeridae Haeckel.
Eine oder zwei konzentrische Schalen, deren Maschenwerk aus dünnen, biegsamen, soliden Balken besteht. Keine Pylomöffnung.
3. Legion.
Phaeocalpia Haeckel.
Skelett aus einer monaxonen oder polyedrischen Schale bestehend, welche eine Pylomöffnung und allseitig oder kranzförmig angeordnete Radialstacheln besitzt.
6. Familie: Castanellidae Haeckel.
Schale meist kuglig, monaxon, mit gleichmäßig verteilten, rundlichen, weiten Poren und mit meist zahlreichen, allseitig verteilten Radialstacheln.
7. Familie: Circoporidae Haeckel.
Schale kuglig oder polyedrisch, mit Porenkränzen an der Basis der Radialstacheln. Radialstacheln meist in beschränkter Zahl und [S. 661]geometrischer Anordnung, mit Terminalästen. (Beispiel: Circoporus hexapodius Borgert, Fig. 267 F, S. 282.)
8. Familie: Tuscaroridae Haeckel.
Schale meist flaschenförmig, mit engen Porenkanälen und wenigen langen, in ein bis zwei Kränzen um die Hauptachse gruppierten Radialstacheln. Radialstacheln ohne Terminaläste.
9. Familie: Porospathidae Borgert.
Schale mit papillenartigen Erhebungen oder mit einem trigonalen Balkensystem bedeckt, mit allseitig angeordneten Radialstacheln und zylindrischem Peristom.
4. Legion.
Phaeogromia Haeckel em. Häcker.
Skelett in der Regel bilateral-symmetrisch, mit Pylomöffnung und bestimmt lokalisierten Radialstacheln.
10. Familie: Challengeridae J. Murray.
Schale mit „Diatomeenstruktur“. Pylomöffnung mit einseitiger Peristombildung. Radialstacheln, wenn vorhanden, nur in der Medianebene, seltener um den aboralen Pol gruppiert. (Beispiel: Challengeron armatum Borgert, Fig. 267 C, S. 282).
[S. 662]
11. Familie: Medusettidae Haeckel.
Schale vielfach mit Wabenstruktur, glatt oder mit kleinen Dornen besetzt. Radialstacheln ausschließlich den Pylomrand besetzend, gekammert. (Beispiele: Medusetta ansata Borgert, Fig. 596 A; Euphysetta elegans Borgert, Fig. 596 B.)
5. Legion.
Phaeoconchia Haeckel em. Häcker.
Schale aus zwei meist dickwandigen, von rundlichen, ampullen- oder schlitzförmigen Poren durchsetzten Klappen bestehend.
12. Familie: Concharidae Haeckel.
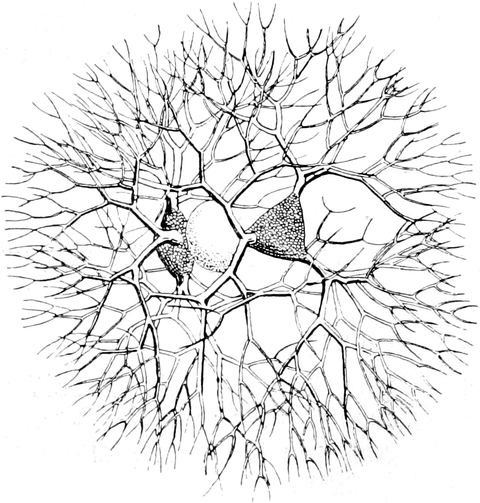
6. Legion.
Phaeodendria Häcker.
Schale aus zwei dünnwandigen Klappen bestehend, jede mit [S. 663]einem konischen Helm- oder Kuppelaufsatz, von welchem divergierende, verzweigte Röhren ausgehen.
13. Familie: Coelodendridae Haeckel em. Häcker.
V. Ordnung:
Mycetozoa
de Bary.
Diese Ordnung hat mit anderen Gruppen der Protozoen mannigfache Beziehungen. Es läßt sich aber auch nicht verkennen, daß in ihren Lebenserscheinungen manches sehr an ausgesprochen pflanzliche Organismen erinnert. Die Mycetozoen oder Myxomyceten, wie sie auch genannt werden, gehören eben dem Grenzgebiet an, wo die niedere Tier- und Pflanzenwelt ihre nahe Verwandtschaft noch deutlich erkennen lassen. Durch ihre Organisation und Entwicklungsgeschichte erweisen sich die Mycetozoen als nicht niedrig stehende, vielmehr hochdifferenzierte Organismen, welche, wie wir oben schon betonten, in manchen Beziehungen die Grenzen des Protozoenreiches überschreiten. Einige Rhizopodenformen, welche wir in keiner der früher behandelten Ordnungen unterbrachten, zeigen gewisse Beziehungen zu den Mycetozoen und sollen daher im Anhang an diese Gruppe behandelt werden.
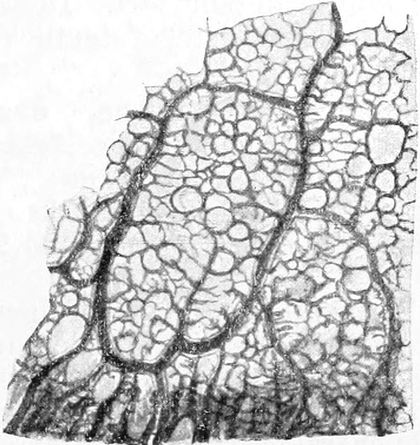
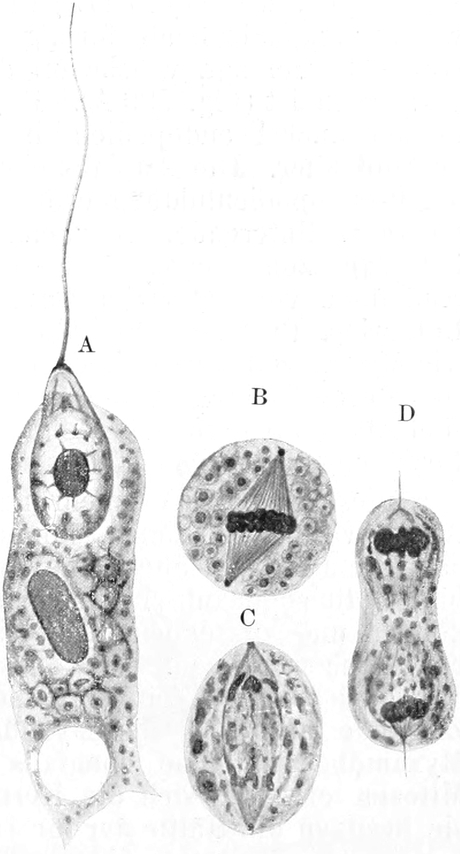
Die jungen Myxomyceten stellen sich als nackte Amöben von geringer Größe dar, welche auch als Myxamöben bezeichnet werden. [S. 664]Sie besitzen einen Kern, welcher von viel dichterer Struktur ist, als bei den echten Amöben. Sie weisen auch eine kontraktile Vakuole auf, sie bilden mehr oder weniger lebhaft Pseudopodien, zeigen Plasmaströmung und nehmen ihre Nahrung durch Umfließen der betreffenden Körper zu sich. In ihrer Form unterscheiden sie sich je nach den Arten einigermaßen. Die meisten Mycetozoen leben von faulenden organischen Substanzen, doch nehmen viele Formen auch Bakterien auf und schließen sie in Nahrungsvakuolen ein.
Während bei manchen Formen die aus den „Sporen“ ausgekrochenen Amöben sehr bald in den Flagellatenzustand übergehen, dauert dies bei anderen länger; auch können im Amöbenzustand Teilungen vorkommen.
Die aus den Amöben durch direkte Umwandlung entstehenden Flagellaten, die Myxoflagellaten, sind meist während der Bewegung ungefähr keulenförmig, wobei an dem verschmälerten Ende die Geißel hervorragt, welche oft durch fädige Strukturen mit dem Kern verbunden ist (Fig. 599 A). Die Myxoflagellaten sind sehr metabolisch, können auch Pseudopodien bilden und gehen leicht in den Myxamöbenzustand über. Die Aufnahme von geformter Nahrung, wie überhaupt die Pseudopodienbildung erfolgt in der Regel bei den Myxoflagellaten nur am Hinterende. Myxamöben, wie Myxoflagellaten scheinen sich teils saprozoisch mit gelösten organischen Substanzen, teils auch durch Aufnahme von geformter Nahrung zu ernähren. Sie fressen vielfach Bakterien, Protozoen und allerhand organischen Detritus. Myxamöben wie Myxoflagellaten besitzen eine kontraktile Vakuole. Sie vermehren sich durch Teilung, wobei der Kern eine Mitose durchmacht. Dabei sind oft Centrosomen beteiligt, welche als Blepharoplaste in deutliche Beziehungen zur Geißelbasis treten können.
Diese agamen Vermehrungen, welche oft schon kurz nach dem Ausschwärmen beginnen, können sich öfter wiederholen. Die Myxoflagellaten zeigen aber eine große Neigung sich zu encystieren; sie bilden die sogenannten Cystchen oder Mikrocysten, welche austrocknen können und aus denen dann wieder Myxamöben resp. Myxoflagellaten hervorgehen können.
Nach einiger Zeit hört die agame Vermehrung der einkernigen Zustände auf, und die Myxoflagellaten verwandeln sich wieder in Myxamöben, welche ebenfalls sich noch teilen können. Bei den Mitosen erweisen sich die Kerne dieser Stadien als haploid, d. h. sie besitzen die Hälfte der für die Art sonst charakteristischen Chromosomen (bei Physarum didermoides Rost. z. B. 8 statt 16).
Sie sind also Gameten, welche nach den neuesten Untersuchungen von Jahn paarweise kopulieren; die Zygoten bilden die Plasmodien, welche durch Kernteilung alsbald mehrkernig werden. Die Kerne dieser Plasmodien erweisen sich bei der Mitose als diploid, d. h. sie haben doppelt soviel Chromosomen als vor der Kopulation.
Bisher nahm man meist auf Grund der Untersuchungen Cienkowskys u. a. an, daß die mehrkernigen Plasmodien durch Verschmelzung der Myxamöben untereinander und mit den schon entstandenen Plasmodien sich bildeten. Die neueren Untersuchungen zeigen aber, daß die einkernigen Myxamöben vor der Kopulation von ihren Genossen nur gefressen werden; Zygoten haben aber alsbald die Tendenz zu verschmelzen.
[S. 665]
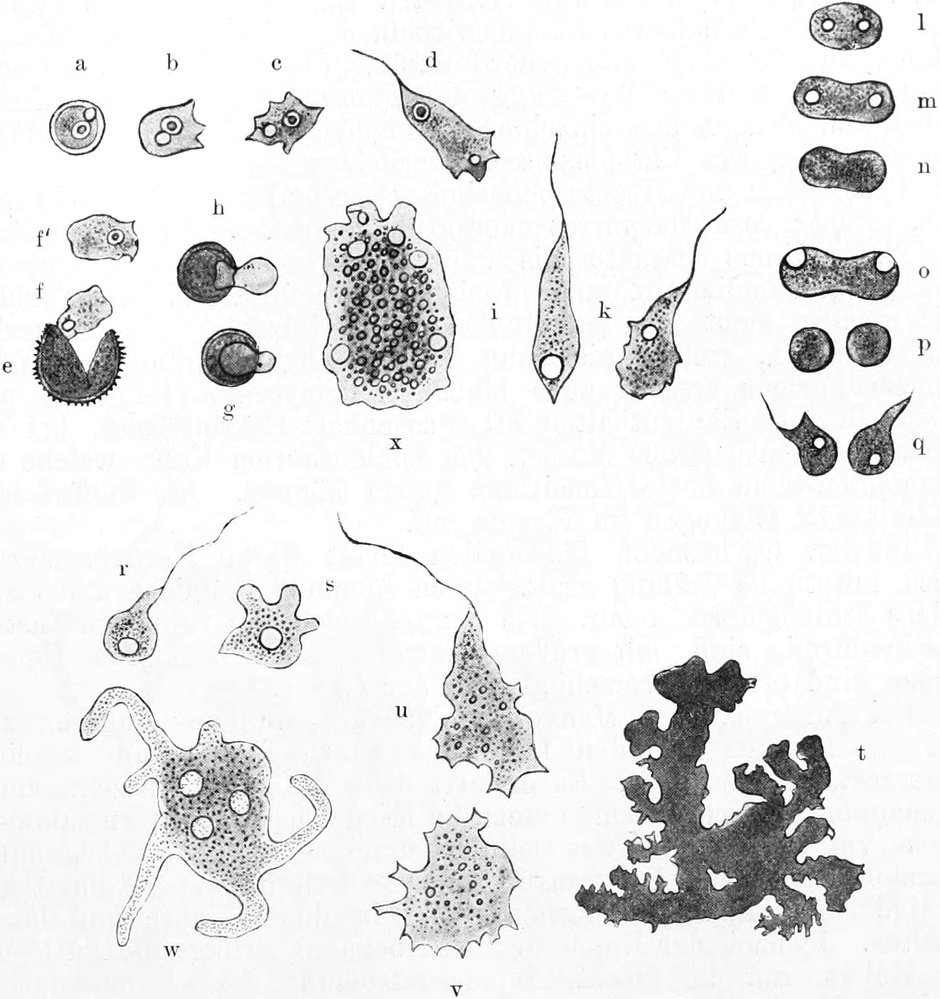
Die Plasmodien haben offenbar eine chemotaktische Anziehungskraft aufeinander, so daß sie sich oft in Mengen miteinander vereinigen. So entstehen oft sehr umfangreiche Plasmodien, welche außerdem auch noch selbst wachsen. Man hat Plasmodien von wenigen Millimetern und darunter, und solche von 1½ qm Ausdehnung gemessen. Die großen Plasmodien sind sehr kernreich, was sie zum Teil den Verschmelzungen, zum Teil regulären Kernteilungsvorgängen verdanken. Ein großes Plasmodium kann also auch ohne Verschmelzungen durch Wachstum bei reichlicher Nahrungsaufnahme entstehen. Sobald die Plasmodien einen gewissen Umfang erreicht haben, setzen sie sich unter lebhaften Plasmaströmungen in Bewegung. Die Art der Bewegung und die Form der Plasmodien ist leicht zu erkennen bei [S. 666]Formen, welche auf der Oberfläche von faulendem Holz, Blättern, Mist etc. hinkriechen. Formen, welche in der Tiefe von morschem Holz wohnen, was ja sehr vielfach vorkommt, werden sich wohl ähnlich verhalten, sind aber nur unter besonders günstigen Verhältnissen zu studieren.
Durch die Ausbreitung der Rhizopodien, deren Verzweigung und Anastomosen bildet bald das ganze Plasmodium ein feines Netzwerk (Fig. 598), dessen Protoplasma überall in lebhafter Strömung sich befindet. Es gehört zu den wundervollsten Anblicken, unter dem Mikroskop das ruhelose Durcheinanderwirbeln der Plasmabestandteile, die Bildung und Verschmelzung neuer Fortsätze, die Umfließung von Gegenständen, die rastlose Bewegung der ganzen Masse zu beobachten. Dabei läßt sich an den einzelnen Strängen eine dichtere Innenmasse und ein flüssigeres Ektoplasma unterscheiden.
Plasmodien von Mycetozoen sind wasserhell oder opak, rein weiß, gelb, orange, rosa, purpurrot oder grün gefärbt. Meist ist die Farbe des Plasmodiums charakteristisch für die Art.
Die Plasmodien nehmen flüssige oder geformte Nahrung lebhaft auf; manche sieht man ganz beladen mit Holzstückchen, Bakterien, Protozoen etc., welche sie dann vor der Fruktifikation ausstoßen. Manche Formen fressen auch lebende Pilzmycelien (Badhamia utricularis Berk.). Sie enthalten oft massenhaft Exkretkörner, bei den Calcarineen auch große Massen von kohlensaurem Kalk, welche den Plasmodien eine harte Konsistenz geben können. Als Stoffwechselprodukt tritt Glykogen im Plasma auf.
In den wachsenden Plasmodien findet starke Kernvermehrung durch mitotische Teilung statt. Doch kommen möglicherweise auch andere Teilungsformen vor. Die Kerne, welche im ruhenden Zustand bläschenförmig sind, mit großem zentralen, stark färbbarem Binnenkörper, sind oft sehr verschieden in der Größe.
Bei Austrocknung, Mangel an Nahrung und aus anderen zum Teil unbekannten Gründen kann das ganze Plasmodium in einen Dauerzustand übergehen. Es erstarrt dann die ganze Masse zu einem sogenannten Sklerotium, indem die Kerne sich zu Nestern sammeln, welche von Cystenhüllen aus Cellulose umgeben werden, welche untereinander verbacken. Die ganze Masse des Sklerotiums bekommt eine hornige Konsistenz. Das Leben bleibt in ihm 3 Jahre und länger erhalten. Je nach der Dauer der Austrocknung erfolgt die Auflösung der Hüllen und die direkte Wiederentstehung des Plasmodiums in wenigen Stunden bis mehreren Tagen.
Sehr bemerkenswert sind die Vorgänge, welche zur Fruktifikation der Mycetozoen führen. Es bildet das ganze Plasmodium oder in der Regel einzelne Portionen desselben je einen Fruktifikationskörper, welcher als Sporangium oder Sporophor (Sporenbehälter oder Sporenträger) bezeichnet wird. Also das Plasmodium wirkt (ähnlich wie die Gregarinenkörper, vgl. S. 314) wie ein individualisierter Mutterkörper, welcher außer den Fortpflanzungsindividuen auch die Apparate zu deren Schutz und Ausbreitung produziert.
Zur Bildung der Fruchtkörper sammelt sich die Masse des Plasmodiums an der Oberfläche des Substrats an; die Plasmamasse staut sich in Erhebungen an, welche je nach den Gattungen zur Bildung eines einzelnen oder zahlreicher nahe beieinander stehender Fruchtkörper führen. Dabei bildet ein Teil der Plasmodienmasse bei der [S. 667]Mehrzahl der Arten eine Hülle, welche oft kohlensauren Kalk enthält. Ein anderer Teil bildet Gerüstsubstanz im Innern dieser Hülle; das Gerüst kann aus netzartig miteinander verbundenen Röhrchen oder Fasern bestehen; häufig kommen auch isolierte Fasern von eigentümlicher spiraliger Struktur vor, welche auch als Elateren bezeichnet werden (Fig. 602 B). Die Hülle wird als Peridium, die Gesamtheit der Fasern als Capillitium bezeichnet. Hülle und Gerüstbildungen bestehen in der Hauptsache aus Cellulose oder celluloseähnlichen Produkten des Plasmas. Die Elateren, deren Bildung bei den Trichiaceen Trichia fallax und Oligonema nitens genauer untersucht wurde, entstehen nach Strasburger aus Saftvakuolen, wobei Wand- und Spiralbänder aus Mikrosomen sich bilden. Die Saftvakuolen werden nach Helene Kränzlin aus dem Centrosomenapparat zugrunde gehender Kerne gebildet.
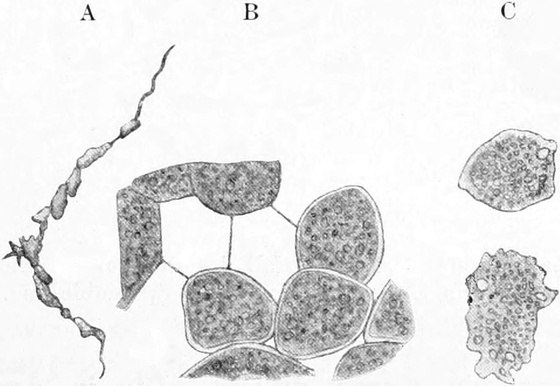
Innerhalb des Gerüstes sind die sogenannten Sporen angehäuft, welche aus der Hauptmasse des Plasmas entstehen. Bei der Mehrzahl der Formen sind diese Sporen einkernig. Doch erfolgt ihre Bildung in verschiedener Weise. Das vielkernige Plasmodienprotoplasma teilt sich im Innern des Sporangiums in zahlreiche kleine Klümpchen, welche entweder gleich einkernig sind (z. B. bei Trichia), oder es erfolgt die Zerklüftung noch während der Kernteilungsvorgänge; es entstehen dann zunächst mehrkernige Portionen, welche dann in einkernige Portionen zerfallen (z. B. bei Fuligo und Comatricha, Fig. 603). Indem alle diese Portionen sich encystieren, d. h. mit einer festen Membran umgeben, entstehen die einkernigen Sporen.
[S. 668]
Bisher wurde auf Grund der Untersuchungen von Prowazek, Kränzlin und Jahn angenommen, daß während der Sporangienbildung Kopulation je zweier Kerne in den jungen Fruchtkörpern erfolge (nach Untersuchungen an Physarum, Arcyria, Trichia, Ceratiomyxa). Nach den vorhin schon erwähnten neueren Untersuchungen Jahns sind aber die jungen aus der Spore ausschlüpfenden Myxoflagellaten und die aus ihnen entstehenden Myxamöben die Gametenstadien, welche nach mehreren Teilungen kopulieren; sie sind in ihrer Kernorganisation haploid, da vor der Sporenbildung eine Reduktionsteilung erfolgt ist. Die Zygoten wandeln sich durch Kernteilung in mehrkernige Plasmodien um, welche eine große Tendenz haben, untereinander zu verschmelzen. Die Kerne der Plasmodien sind diploid, d. h. sie haben die doppelte Chromosomenzahl, wie die reduzierten Kerne der Myxamöben. Während des vegetativen Lebens der Mycetozoen sind also wie bei der Mehrzahl der anderen tierischen und pflanzlichen Organismen die Kerne diploid. Die in den entstehenden Fruchtkörpern unzweifelhaft beobachteten Kernverschmelzungen sind nach Jahn auf Degenerationserscheinungen zurückzuführen. Verschmelzung degenerierender Kerne ist eine bekannte und verbreitete Erscheinung. Die hier bei der Sporangienbildung der Mycetozoen verschmelzenden Kerne sind „somatische“ Kerne, welche aus der Keimbahn ausgeschaltet und für vegetative Zwecke: Bau des Sporangiums etc. geopfert werden.
Die für die Fortpflanzungskörper bestimmten Kerne haben ein anderes Schicksal. Sie machen eine Reifung durch. Die schon von Strasburger entdeckte Karyokinese vor der Sporenbildung ist eine typische Reduktionsteilung, durch welche die Chromosomenzahl in den Sporenkernen auf die Hälfte reduziert wird. Bemerkenswert ist, daß höchstwahrscheinlich die Chromosomenreduktion hier durch einen einzigen Kernteilungsakt herbeigeführt wird.
Die ganze Bildung der Fruchtkörper erfolgt bei vielen Arten innerhalb weniger Stunden; bei anderen dauert sie einige Tage.
Beim „Reifen“ des Sporangiums platzt das Peridium; oft wird der obere Teil in Form eines Deckels abgesprengt, oder es zerfällt, wobei der untere Teil in Gestalt eines Bechers zurückbleibt. Auch gitterartige Durchbrechung des oberen Teils oder der ganzen Wandung [S. 669]des Peridiums, oder Zerspaltung der Wand und Zurückrollung der Teile kommt vor. Dabei bleibt oft in der Mitte des Sporangiums eine Columella aus Gerüstsubstanz zurück.
Die Bestandteile des Capillitiums führen unter dem Einfluß der Luftfeuchtigkeit hygroskopische Bewegungen aus, welche das ganz trocken gewordene Sporenpulver hervordrängen und dem Spiel des Windes preisgeben. Dieser verbreitet die Sporen außerordentlich leicht, welche in geeignet zusammengesetzten Nährflüssigkeiten, oft auch in Wasser „keimen“, d. h. die Myxamöbe austreten und dadurch den Zeugungskreis neu beginnen lassen.
So erklärt es sich, daß die Mycetozoenarten weit verbreitet, oft kosmopolitisch sind. Doch sind manche Arten für die warmen, andere für die kühlen Teile der Erdoberfläche charakteristisch. Auch ist anzunehmen, daß manche Arten von der Verbreitung der von ihnen bevorzugten Nährpflanzen abhängig sind.
Die Arten und Gattungen der Mycetozoen werden durch die Beschaffenheit des Plasmodiums und vor allem die Form und Organisation der Sporangien charakterisiert. Dieselben sind braun, grellgelb oder weiß gefärbt.
Die Einzelsporangien sind kugel-, ei- oder zylinderförmig, auch unregelmäßig gestaltet, gestielt oder ungestielt. Auch ihre Oeffnungsweise ist für die einzelnen Formen charakteristisch. Doch ist hervorzuheben, daß die Form, Größe und Struktur der Sporangien unter dem Einfluß der während ihrer Bildung einwirkenden äußeren (vor allem klimatischen) Faktoren innerhalb weiter Grenzen variieren kann.
Wir teilen die Mycetozoen in folgende Unterordnungen, welche durch Beschaffenheit des Plasmodiums, den Bau der Sporangien und den Bau der Schwärmer gekennzeichnet sind:
1. Unterordnung: Acrasieae van Tieghem.
Myxamöben vorhanden, Myxoflagellaten fehlend. Plasmodium ein sogenanntes Pseudoplasmodium. Sporangien ohne Peridien und Capillitien, aus Anhäufung freier Sporen bestehend.
2. Unterordnung: Phytomyxinae Schröter.
Myxamöben, Myxoflagellaten und echte Plasmodien bildend. Infolge der parasitischen Lebensweise fehlt Peridium und Capillitium. Zellschmarotzer in Pflanzen.
3. Unterordnung: Myxogasteres de Bary.
Myxamöben und Myxoflagellaten vorhanden. Echte Plasmodien bildend. Sporen im Innern von vollkommenen Sporangien mit Peridium und Capillitium gebildet oder an der Außenseite platten- bis säulenförmiger Fruchtkörper.
1. Unterordnung.
Acrasieae van Tieghem.
(Pseudoplasmodidae Zopf-Delage.)
Amöboide Organismen mit lappigen Pseudopodien, welche im vegetativen Zustand einzeln umherkriechen, bilden diese Abteilung. Sie vermehren sich durch Zweiteilung. Zuzeiten kriechen die Amöben [S. 670]an die Oberfläche ihres Nährbodens und vereinigen sich da zu sog. Pseudoplasmodien, d. h. sie bilden große protoplasmatische Klumpen, ohne miteinander zu verschmelzen. Die Grenzen zwischen den Individuen bleiben erhalten; bei Druckwirkung treten sie wieder auseinander. In den Pseudoplasmodien kriechen die Individuen aneinander aufwärts aus dem Nährboden heraus und bilden oft gestielte Fruchtkörper. Die Stiele werden aus erstarrenden Amöben gebildet, an denen die anderen Individuen emporkriechen, um an der Spitze der einfachen oder verzweigten Stiele sich zu encystieren; die Sporen sind durch eine schleimige Masse verbunden. So entstehen keulen-, kolben- oder kugelförmige freie Sporenhaufen, welche in der Erscheinung durchaus an Sporangien erinnern, und welche auch Sori genannt werden.
Aus den Cysten kriechen im geeigneten Nährmedium die kleinen Amöben wieder aus, oft nachdem sie eine längere Austrocknung durchgemacht haben.
Die Acrasieen sind Fäulnisbewohner; meist kommen sie in tierischem Kot vor.
Die nähere Verwandtschaft der Acrasieen mit den höheren Mycetozoen wird von manchen guten Kennern bezweifelt.
Sie werden in folgende 3 Familien eingeteilt:
- 1. Familie: Sappiniidae Dangeard.
- 2. Familie: Guttulinidae Cienkowski.
- 3. Familie: Dictyostelidae Rostafinski.
1. Familie: Sappiniidae Dangeard.
Diese Familie bildet eigentlich — soweit sie bisher bekannt ist — nur einen Uebergang von amöbenartigen Organismen zu Acrasieen. Nach Dangeard soll es sich bei der von ihm beschriebenen Sappinia pedata um einen Organismus handeln, welcher als einzelne Amöbe mit lappigen Pseudopodien in Mist von Pferden, Kühen, Hunden vorkommt. Der Kern wird als eigenartige Doppelbildung beschrieben. Es kommt nicht zur Bildung von Pseudoplasmodien, wohl aber zu einer eigenartigen, an Acrasieen erinnernden Form der Encystierung; die Cysten sind gestielt und erheben sich über das Substrat; dabei besteht eine Neigung der Amöben, an Gegenständen, welche über das Substrat emporragen, in die Höhe zu kriechen und sich in größeren Anhäufungen zu encystieren. Genauere Untersuchung dieser Form ist sehr zu wünschen.
2. Familie: Guttulinidae Cienkowski.
Die Guttuliniden sind kleine Formen, welche unregelmäßige, gestielte oder ungestielte Fruchtkörper tragen, die mit Sporen bedeckt [S. 671]sind; letztere sollen entweder nur eine dünne Hülle besitzen oder mit dicker Cellulosemembran versehen sein. Die Myxamöben haben lappige Pseudopodien, gleichen vielfach der Amoeba limax. Sie leben auf Mist und faulenden Stoffen.
Die Myxamöben vereinigen sich zu Klumpen, aus denen die Sori entstehen.
Gattungen: Guttulina Cienkowski (G. [= Copromyxa] protea Fayod [Zopf] (vgl. Fig. 605), Guttulinopsis Olive.
3. Familie: Dictyostelidae Rostafinsky.
Die Myxamöben dieser Familie sind durch dünne, spitze Pseudopodien ausgezeichnet. Die Fruchtkörper sind ziemlich regelmäßig [S. 672]gestaltet; sie sind gestielt, die Stiele bestehen aus zahlreichen „Einzelzellen“, Myxamöben, welche verhärtet sind und sich mit einer Cellulosemembran umgeben haben und, polygonal gegeneinander abgeplattet, eine Art Gewebe bilden.
Die Gattung Dictyostelium Brefeld hat einfache oder wenig verzweigte Fruchtkörper, auf welchen die Sporen in rundlichen Häufchen zusammengeballt sind. Bei Polysphondylium Brefeld sind die Stiele der Fruchtkörper reichlich und regelmäßig verzweigt. An den Enden der Fruchtkörper und der wirtelig gestellten Aeste derselben sitzen die elliptischen, ca. 8 µ langen, 3 µ breiten Sporen in rundlichen Köpfchen zusammengeballt (Fig. 607). Polysphondylium violaceum Bref., welches auf Mist vorkommt, bildet Fruchtkörper von ca. 1 cm Höhe (Fig. 607).
2. Unterordnung.
Phytomyxinae Schröter.
In dieser Unterordnung werden in wohl nur provisorischer Weise parasitische Mycetozoen zusammengefaßt, welche durch den Mangel von geschlossenen Sporangien an Acrasieen erinnern, während das regelmäßige Vorkommen von geißeltragenden Schwärmern sie an die echten Myxogasteres anschließt. Auch bilden sie echte Plasmodien. Der Mangel eines Peridiums ist wohl auf eine „Rudimentierung“ der Sporangienbildung infolge des Parasitismus zurückzuführen.
Die übrigen Merkmale der Ordnung ergeben sich aus der Darstellung der Gattungen. Vielleicht ist die Unterordnung richtiger als Familie den Myxogasteres zuzurechnen und würde dann, da ohnehin die Bezeichnung Phytomyxinae nach den Prioritätsregeln keine Geltung hat, mit dem alten Namen Plasmodiophoridae Zopf zu bezeichnen sein.
Es werden gegenwärtig 3 Gattungen hierher gerechnet: bei Plasmodiophora sind die Sporen frei, bei Sorosphaera in größerer Anzahl zu hohlen Kugeln (morulaartig) vereinigt, bei Tetramyxa sind je 4 Sporen zu einem Tetraëder vereinigt. Angeschlossen werden die Gattungen Sporomyxa mit freien Sporen und Mycetosporidium mit regellosen Haufen von 75–100 Sporen.
Gattung: Plasmodiophora Wor.
Plasmodiophora brassicae, Woronin.
|
1877/78
|
M. Woronin, Jahrbücher f. wiss.
Botanik. Vol. 11.
|
|
1899.
|
Nawaschin, Flora. Vol. 86.
p. 404.
|
|
1902.
|
Prowazek, Oesterr. Bot.
Zeitschr. No. 6.
|
|
1905.
|
— Arb. a. d. Kais. Gesundh.-Amt. Vol. 22. p. 396.
|
Alle Arten der Gattung Brassica, sowie einige andere Gattungen der Cruciferen werden von diesem gefährlichen Krankheitserreger befallen, welcher an ihren Wurzeln große knollige Auswüchse — eine Art von Gallenbildungen — hervorruft. Da zu diesen Gewächsen alle unsere wichtigen Gemüsearten: weißer, roter Kohl, Wirsing, Kohlrabi, Rettig und Reps gehören, so hat der Schmarotzer in allen Gegenden, wo er auftritt, eine große volkswirtschaftliche Bedeutung; denn die befallenen Pflanzen bilden die wirtschaftlich wichtigen Produkte, z. B. den Kohlkopf, nicht und sterben zum großen Teil ab.
[S. 673]
Wegen der Form der Auswüchse (Fig. 608 u. 609), welche sich meist an der Pfahlwurzel, in kleinerem Maßstab auch an den Nebenwurzeln entwickeln, hat man der Krankheit den Namen der Kohlhernie oder Kropfkrankheit des Kohls gegeben. Sie ist in ganz Europa, von Rußland bis Spanien, und in Nordamerika beobachtet worden.
Die Durchschnitte durch Teile der befallenen Wurzeln unterscheiden sich von den normalen dadurch, daß die Elemente des Rindenparenchyms vermehrt und vergrößert sind, und daß ihr Inneres von einer farblosen, undurchsichtigen, feinkörnigen, plasmatischen Substanz erfüllt wird (Fig. 610). In den größten Geschwülsten sind auch die Elemente der Gefäßstränge angegriffen.
Die Infektion geht durch die Vermittlung des ersten Stadiums: der Myxoflagellaten vor sich (Fig. 611 B); diese dringen (wahrscheinlich durch die Wurzelhaare) in das Rindenparenchym ein. Im Wasser und in der feuchten Erde stellen sie sich nach dem Verlassen der Sporen als schlanke, lanzettförmige Bildungen mit einem lebhaft schlagenden Flagellum am Vorderende dar. Bald jedoch beginnt ihr Körper amöboide Beweglichkeit zu zeigen, ohne daß die Geißel verloren ginge.
Als eigentliche Myxamöben erscheinen die Tiere erst nach dem Eindringen in die Wirtspflanze. Die Wirtszelle zeigt ein wandständiges Protoplasma, welches mit dem zentral gelegenen Kerne durch verschiedene schmale Brücken verbunden ist. Die Zwischenräume sind mit Zellsaft erfüllt, in welchem die jungen Myxamöben zuerst [S. 674]im Körper des Wirtes sich nachweisen ließen. Anfangs sind sie kaum von dem Plasma der Wirtszelle zu unterscheiden. Die frühesten Stadien, welche man zuerst fand, waren schon zweikernig.
Auf fixierten Objekten ließ sich der Bau des Plasmaleibes genau studieren; das Protoplasma besitzt in der Regel einen wabigen Bau und ist von zahlreichen Tropfen oder Körnern einer fettartigen Substanz erfüllt. Mit Osmium behandelt, schwärzt sich dieselbe (Fig. 613 A u. C). In der Regel finden sich mehrere Myxamöben um den Kern der Wirtszelle gelagert. Ihre Kerne besitzen eine Membran, einen großen Nucleolus und ein Chromatinnetz.
Indem die Parasiten heranwachsen, vermehren sich ihre Kerne durch simultane Teilung; die Kernteilung in diesem Stadium stellt sich als eine primitive Karyokinese dar. Auch scheint eine vegetative Teilung der einzelnen Myxamöben durch Zerschnürung ihres Körpers ohne gleichzeitige Kernteilung vorzukommen.
Erst indem die Amöben, immer mehr heranwachsend, den Inhalt der Wirtszelle mehr und mehr verdrängen, vereinigen sich die einzelnen Myxamöben zu einem Plasmodium. Also scheint dieser Vorgang auch hier, wie bei anderen Mycetozoen, durch verschlechterte Lebensbedingungen angeregt zu werden. Nach den Untersuchungen von Prowazek, welcher die Beobachtungen von Nawaschin bestätigte und vervollständigte, folgt nun ein Stadium, in welchem die Kerne einen großen Teil ihres Chromatins an das Plasma abgeben, wobei sie sehr undeutlich werden (Fig. 613 D b, c).
Es folgen zwei simultane Kernteilungen, welche nunmehr ausgesprochene Karyokinesen sind, und welche die Vorbereitung zur Sporenbildung darstellen. Endlich ist das ganze Plasmodium von einer Unmenge kleiner Kerne erfüllt, welche keinen Binnenkörper mehr besitzen. Endlich aber zerfällt das ganze Plasmodium in ebensoviele kleine Protoplasmateile, welche sich abrunden und nach Prowazek Gameten darstellen; je zwei von ihnen verschmelzen, und die Zygoten umhüllen sich mit einer doppelt konturierten Membran. Die Cystchen oder Sporen liegen in der nunmehr abgestorbenen Zelle des Wirtes, welche außer ihnen nur noch einzelne Stärkekörnchen und Detritus enthält (Fig. 613 D f). Innerhalb der Zygote glaubt nun Prowazek noch Reifungsteilungen an dem einen Kern und dann [S. 675]Bildung eines Synkaryons beobachtet zu haben. Auch scheinen ihm gewisse Unterschiede im Bau der Plasmodienkerne auf eine geschlechtliche Differenzierung derselben hinzuweisen. (Die Kopulation wird vielleicht bei dieser Form auch eher nach dem Ausschlüpfen der jungen Myxamöben stattfinden; vgl. oben S. 664 u. 668.)
[S. 676]
Wenn nun die Kohlwurzel fault, so geraten die Sporen in die feuchte Erde, öffnen sich daselbst, das Myxoflagellat schlüpft aus, kriecht in neue Kohlwurzeln, und der Kreislauf beginnt von vorn.
Betrachten wir nun die Einwirkungen des Parasiten auf den Wirt, so ist zunächst zu bemerken, daß die Beobachter noch nicht einig sind, ob die Infektion im Wirt weiterschreitet; während Woronin eine Wanderung der Amöben durch die Tüpfel der Zellwände annimmt, glaubt Nawaschin, daß die ganze Geschwulst ihre Entstehung den Abkömmlingen der zuerst befallenen Zellen verdanke; letztere Ansicht teilt auch Prowazek.
Nach Nawaschin leben auch die Parasiten zunächst symbiotisch in der Wirtszelle; sie verzehren keine Stärkekörner, sondern nähren sich nur osmotisch vom Zellsaft. Auch sollen sie keinen Reiz chemischer Natur durch Ausscheidungen bewirken, sondern nur durch mechanischen Druck die Wirtszelle schädigen. Doch konnte Prowazek besonders durch die Methode der Vitalfärbung schon eine frühzeitige Schädigung der Zelle durch die Parasiten beobachten. Jedenfalls scheidet das Wirtsplasma um sie herum ein feines Plasmahäutchen aus. Auch teilen sich die befallenen Zellen lebhaft, wobei die Kernteilung eine ganz normale ist. Bilder der Amitose sind dabei nie gesehen worden (Fig. 613 B).
In der Folge werden aber die Zellen sehr hypertrophisch, der lebende Inhalt geht immer mehr zurück, der Kern degeneriert, schließlich liegt der Zellwand nur ein ganz dünnes Plasmahäutchen an; auch der letzte Rest stirbt ab, und die ganze Zelle ist nur noch von dichtgedrängten Sporen erfüllt (Fig. 612 und 613).
Die Kohlwurzeln beginnen in diesem Stadium bereits stark zu faulen, und so geraten die Verbreiter der Krankheit in die Erde, in welcher später die jungen Pflanzen sofort wieder infiziert werden.
Als Mittel gegen die Krankheit können nur solche prophylaktischer Art empfohlen werden. Woronin empfiehlt als rationell:
- die Verbrennung der Kohlwurzeln nach der Ernte,
- sorgfältige Auswahl der Setzlinge und
- eine sorgsame Wechselwirtschaft im Gemüsebau, wobei dasselbe Beet höchstens alle 2 Jahre mit Kohl bepflanzt werden sollte.
Die Plasmodiophora hat in der Literatur über die Geschwülste (Carcinome etc.) eine gewisse Rolle gespielt. Einige Autoren wurden durch die Wucherungen, welche in der infizierten Pflanze durch den Parasiten ausgelöst werden, veranlaßt, an Analogien mit einem hypothetischen Krebserreger zu denken. Man versuchte, auf zwei verschiedenen Wegen diese Annahme zu prüfen. Zunächst glaubte man, eine morphologische Aehnlichkeit zwischen den infizierten Pflanzenzellen und den Carcinomzellen des Menschen mit ihren sogenannten Plimmerschen Körperchen („Vogelaugen“ nach Leyden) feststellen zu können. Doch war dieser Vergleich verfehlt, da man in [S. 678]jenen höchstens Kerne ohne Zellleib erblicken konnte, und kein Anhaltspunkt vorhanden ist, um anzunehmen, daß etwa der Zellleib des Krebsparasiten unsichtbar (mit dem Plasma der Wirtszelle verschmolzen) sei. (Vgl. hierzu die Ausführungen von Prowazek. Arb. a. d. Kais. Gesundh.-Amt. Vol. 22. 1905. p. 406.)
Als zweiten Weg versuchte man experimentelle Erzeugung von Geschwülsten bei Tieren durch Injektion von Sporen der Plasmodiophora. Letzteres unternahm Podwyssotzki (Centralbl. f. Bakt. Vol. 27. 1900. No. 3. p. 97, und Zeitschr. f. klin. Med. Vol. 47. 1902). Nach seinen Angaben erfolgt auffallenderweise tatsächlich Geschwulstbildung mit Proliferation von Bindegewebszellen, wobei man die Parasiten in den tierischen Zellen findet. Doch gleichen die so erzeugten Geschwülste durchaus den schon genauer untersuchten Blastomycetengeschwülsten und lassen, so interessant sie auch sind, keinen direkten Vergleich mit Carcinomen zu.
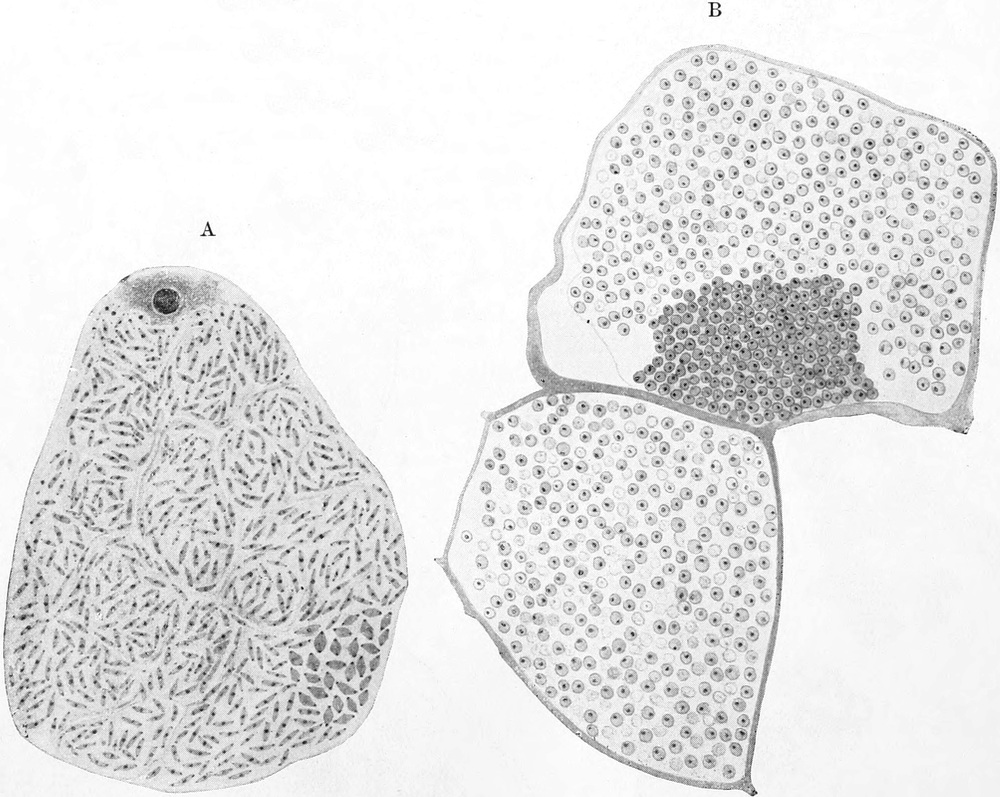
Ich möchte an dieser Stelle nicht unterlassen, darauf aufmerksam zu machen, wie sehr diese und die verwandten Formen auf Grund der neueren Forschungen an gewisse Sporozoen erinnern. Die ganze Entwicklung, dann aber auch die verschiedenen Kernteilungsformen, von denen die eine so sehr an die von Schaudinn bei Coccidien gefundene erinnert, weisen darauf hin.
[S. 679]
Gattung: Sorosphaera Schröter 1886.
Sorosphaera veronicae (Schröter).
|
1877.
|
Schröter, Bemerkungen und Beobachtungen über einige
Ustilagineen. In: Beitr. z. Biol. der Pflanzen. Vol. 2. p. 383.
|
|
1886.
|
— Pilze. In: Cohn, Kryptogamenflora von Schlesien. Vol. 1.
p. 135.
|
|
1889.
|
— Phytomyxineae. in: Engler u. Prantl, Natürl.
Pflanzenfam. Vol. 1. p. 7.
|
|
1909.
|
Maire et
Tison, La Cytologie des Plasmodiophoracées et la
classe des Phytomyxinae. In: Annales Mycologici. Vol. 7. No. 3. p. 226.
|
Dieses parasitische Mycetozoon ruft auf verschiedenen Veronicaarten (V. hederifolia, triphylla, arvensis, chamaedrys) Geschwülste an verschiedenen Teilen hervor. Es befällt die Zellen, in denen die stark mit Fett beladenen Myxamöben sich in vielkernige Plasmodien umwandeln. Dieselben vermehren sich durch agamen Zerfall in einkernige Stücke oder durch Plasmotomie. Unter Fettanreicherung verwandeln sich die agamen Individuen in Sporonten, welche in zahlreiche Sporenmutterzellen zerfallen. Jede derselben zerfällt durch 2 Teilungen in 4 Zellen. Eine dieser Teilungen dürfte analog den Angaben Jahns für Myxogasteres eine Reifungsteilung sein. Die entstehenden Sporen ordnen sich zu morulaähnlichen Hohlkugeln an.
Der Parasitismus von Sorosphaera schädigt die befallenen Pflanzen; ihre Anwesenheit führt zu Zellwucherung und damit zu Tumorenbildung. Ist eine starke Infektion vorhanden, so kommt die befallene Pflanze nicht zur Blüte und Fruktifikation.
Der Parasit wurde in Deutschland, Frankreich, Schweden gefunden und dürfte weit verbreitet sein, ist aber meist ziemlich selten.
Gattung: Tetramyxa Goebel .
Tetramyxa parasitica Goebel.
|
1884.
|
Goebel, Flora, oder Allgemeine
botanische Zeitung. 67. Jahrg. No. 28. p. 517.
|
|
1888.
|
Hisinger, Meddel. Soc. pro Fauna
et Flora Fennica. Vol. 15. p. 53.
|
Diese wahrscheinlich hierher gehörige Form ruft auf Ruppia rostellata und wahrscheinlich auch auf Zanichellia Gallenbildungen hervor.
Infektionsweise und Verbreitungsmodus sind noch unbekannt.
Man findet den Parasiten in durch ihn hervorgerufenen kugligen Knollen, welche mit ganz kleiner Anwachsstelle an der Basis der Seitensprosse der kriechenden Hauptachse der Pflanzen sitzen (Fig. 615 A). Das Gewebe der Galle besteht nur aus Parenchym, welches in zwei Schichten, einer zentralen und einer Rindenschicht, angeordnet erscheint.
In jungen Gallen finden sich in allen Zellen Plasmodien, welche im inneren Teile reichlicher vorhanden sind. Dieselben stellen sich als zusammenhängende Massen oder körnige Stränge dar, welche zuweilen an der einen Seite des Kerns der Wirtszellen dichte Ansammlungen bilden. Die Plasmodien enthalten zahlreiche kleine Zellkerne (Fig. 615 B).
Die Sporenbildung der Tetramyxa wird dadurch eingeleitet, daß das Plasmodium in ebensoviele Portionen zerfällt, wie Zellkerne vorhanden sind (Fig. 615 C).
Jede dieser isolierten Myxamöben teilt sich sukzessive in vier Portionen, welche miteinander im Zusammenhang bleiben und, indem sie sich jede für sich encystieren, die sogenannten „Sporen“ der Tetramyxa bilden. Sie liegen fast stets alle vier in einer Ebene, [S. 680]oft, indem sie sich alle vier berühren, manchmal in einer Reihe, sehr selten tetraëdrisch angeordnet (Fig. 615 D).
Der zentrale Teil der älteren Gallen ist braun gefärbt; dies rührt von abgestorbenen Inhaltsbestandteilen der Wirtszellen her; die Cystenmembranen des Parasiten sind glatt, farblos und geben auch mit den üblichen Methoden keine Cellulosereaktion.
Bei den älteren Gallen sind die Zellen der Rindenschicht parasitenfrei.
Die Tetramyxa veranlaßt durch ihre Anwesenheit eine reichliche Vermehrung der Ruppiazellen und dadurch die Gallenbildung. In plasmodiumhaltigen Zellen finden sich häufig die Zellkerne in der Teilung begriffen.
Nahe steht ihr die von Molliard (Bull. Soc. Bot. de France 1909. p. 23) beschriebene T. triglochinis, welche auch Sporentetraëder bildet, die aber bei der Reife zerfallen. Sie kommt auf Triglochin palustre und maritimum vor und ist in Frankreich beobachtet worden.
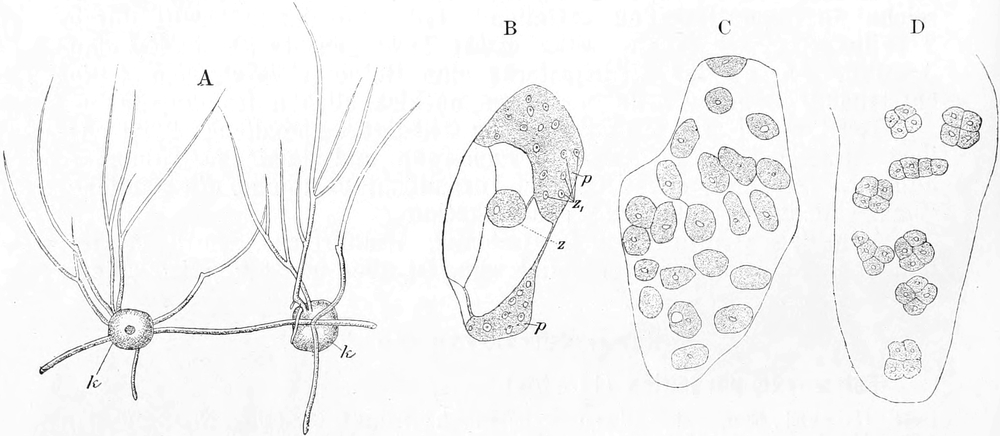
Sporomyxa scauri Léger.
|
1908.
|
Léger, L., Mycetozoaires
endoparasites des Insectes. In: Arch. f. Protistenk. Vol. 12. p. 109.
|
Aehnlich wie Plasmodiophora ist auch diese Form ein Zellparasit, welcher in dem Käfer Scaurus tristis (Ol.) vorkommt. Er bewohnt in diesem Wirt Fettkörper, männliche und weibliche Geschlechtsorgane, auch kommt er frei im Blut vor. In den Zellen tritt er zuerst als einkerniger amöboider Körper auf und wird dann durch mitotische Teilung des Kerns mehrkernig; auch kommt wahrscheinlich plasmodiale Verschmelzung mehrkerniger Individuen vor; die höchste beobachtete Kernzahl ist 8. Obwohl der Umriß der Tiere vielfach amöbenähnlich ist, sind an ihnen keine amöboiden Bewegungen wahrgenommen worden. Das Plasma dieser Stadien ist deutlich alveolär, [S. 681]fein granuliert, kaum chromatisch und nicht in Ento- und Ektoplasma geschieden. Die Kerne sind bläschenförmig mit stark färbbarem zentralen Binnenkörper und deutlichem peripheren Chromatin.
Agame Vermehrung erfolgt im zweikernigen Stadium durch gewöhnliche Teilung (Fig. 616 Mt), im vielkernigen Stadium durch Plasmotomie.
Außer den beschriebenen Formen finden sich im Gewebe solche mit stark färbbarem Plasma, welches außer chromatischen Granula auch Fetttröpfchen enthält, mit kleineren Kernen, deren Chromatin insgesamt in dem Binnenkörper konzentriert ist. Léger hält diese Formen für die Vorstadien der Sporulation. Aus solchen einkernigen Individuen, die wohl oft durch Zerfall eines vielkernigen Körpers vorher entstanden sind, bilden sich die Sporen ohne umhüllendes Sporangium. Einzelne Beobachtungen deuten darauf hin, daß der Sporenbildung eine Kopulation einkerniger Plasmaklümpchen oder wenigstens Vereinigung zweier Kerne vorausgeht.
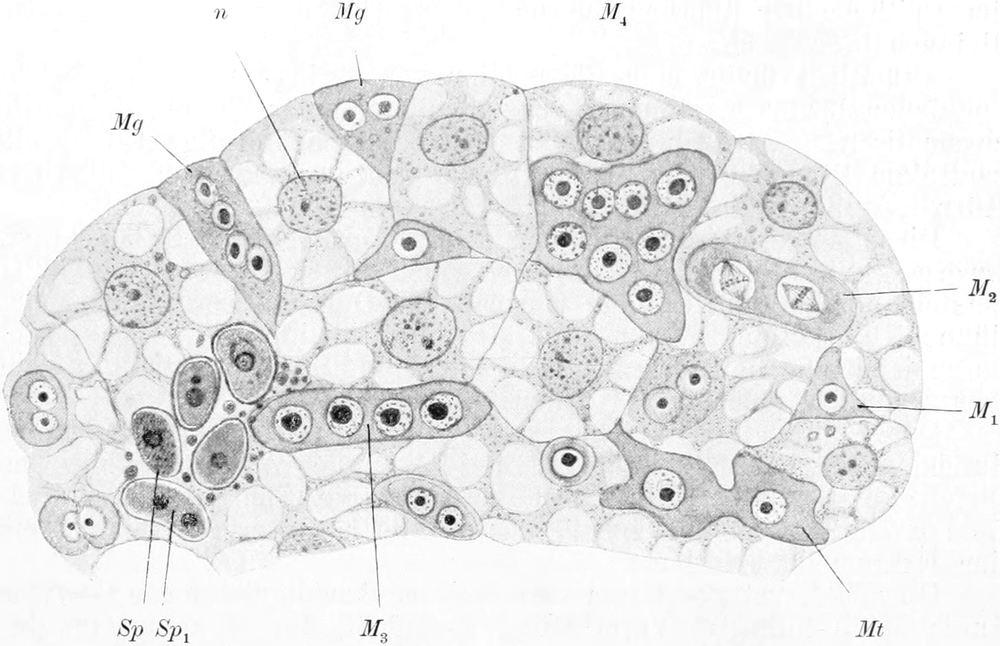
Die Sporen sind oval und messen im Durchschnitt 10 : 8 µ. Doch kommen große Verschiedenheiten in Maßen und Verhältnissen vor. Die meisten sind einkernig, doch gibt es auch zwei- und mehrkernige. Die Cellulosehülle ist farblos und fein gestreift.
Der Parasit führt in dem Tenebrioniden Scaurus tristis (Ol.) in den befallenen Geweben große Zerstörungen herbei, doch findet keine Zellproliferation statt. Die Infektion findet bei der Entleerung des Spermas, weniger wohl mit den Eiern, hauptsächlich aber beim Zerfall der gestorbenen Körper statt.
Die infizierten Käfer stammten aus Algier, Provinz Oran.
[S. 682]
Gattung: Mycetosporidium Léger u. Hesse.
Mycetosporidium talpa Léger u. Hesse.
|
1905.
|
Léger, L., u.
Hesse, E., Sur un nouveau protiste parasite des
Otiorhynques. In: C. R. Soc. Biol. Paris. Vol. 58. p. 92.
|
Eine eigenartige, im Charakter des Plasmodiums und einer Art von Sporangienbildung den höheren Mycetozoen gleichende Form, welche bei dem Käfer Otiorhynchus fuscipes Ol. aus den Wäldern der Chartreuse gefunden wurde (bei 3 Proz.). Man findet gleichzeitig vegetative Formen und Sporen in dem oft sehr stark infizierten Darmepithel. Die Plasmodien stellen oft ein vielverzweigtes Netz zwischen den Epithelzellen dar, während rundliche Individuen sich in den Zellen selbst finden. Diese Formen haben alle ein ziemlich stark färbbares Plasma, die Kerne sind sehr zahlreich und dicht. Agame Vermehrung findet statt durch Plasmotomie und durch simultanen Zerfall in 2 µ große, einkernige Individuen, welche die Neuinfektion der Epithelzellen übernehmen und dort wieder zu vielkernigen Individuen heranwachsen.
Außerdem findet man Plasmodien von geringerer Größe, welche von denen des ersterwähnten Typus abzuleiten sind; sie haben ein nicht chromatisches, fettreiches Plasma, große bläschenförmige Kerne mit zentralem Binnenkörper. Diese teilen sich in zahlreiche einkernige Körper, wobei wahrscheinlich eine Kernkopulation vorausgeht.
Diese einkernigen Zellen von ovaler Form messen 8 : 6,5 µ; sie wachsen, und die Kerne vermehren sich durch Mitose. Schließlich entsteht ein kugliges Gebilde von ca. 30 µ Durchmesser, welches eine dünne Hülle bildet. Dann teilt sich der Inhalt in 75–100 Sporen, deren jede eine polyedrische Hülle bildet und 8 Kerne enthält, welche wahrscheinlich ebensoviel Keimen entsprechen.
Das Sporangium, welches seine ganze Entwicklung im Epithel durchgemacht hat, fällt dann mit den Resten der Wirtszelle ins Darmlumen; die dünne Hülle wird verdaut, die Sporen, deren jede 5–7 µ Durchmesser und eine feste Hülle hat, werden frei und mit den Exkrementen entleert.
Obwohl Mycetosporidium sehr schwere Schädigungen des Gewebes durch seine intensive Vermehrung veranlaßt, hat es keine Gewebewucherungen zur Folge.
3. Unterordnung.
Myxogasteres.
(Mycetozoa s. str., Myxomycetes s. str.)
Diese Ordnung besteht aus den Gattungen der typischen Mycetozoen, denjenigen Formen, deren Naturgeschichte in der allgemeinen Darstellung S. 663 zusammengefaßt wurde. Sie sind ausgezeichnet durch das Vorkommen der Myxamöben und Myxoflagellaten, die echten Plasmodien und die komplizierter gebauten Sporangien, welche mit Ausnahme der Familie der Ceratiomyxiden (Exoporeae) bei allen Formen von einem Peridium umhüllt sind.
Für die Systematik spielen die Sporen und Sporangien die wichtigste Rolle. Die Sporen sind meist kuglig, seltener elliptisch, oft durch gegenseitigen Druck polyedrisch. Ihre Hülle ist glatt, [S. 683]warzig oder mit Stacheln, Platten oder Leisten besetzt. Bei der großen Mehrzahl der Arten sind sie violett gefärbt, bei den anderen weiß, farblos, braun, gelb, rot. Bei den meisten Formen sind die Sporen einkernig, bei wenigen zwei- oder vierkernig.
Die Sporangien besitzen sehr mannigfache Formen, welche bei der Systematik verwertet werden. Vor allem sind folgende besondere Bildungen zu erwähnen. Bei manchen Formen verschmelzen die gleichzeitig entstehenden Sporangien zu einem einheitlichen großen Fruchtkörper, in welchem man bei manchen Formen die Einzelsporangien noch deutlich nebeneinander erkennen kann, während bei anderen das ganze Gebilde mehr oder weniger einheitlich ist, ein einheitliches Capillitium besitzt etc. Solche Fruchtkörper nennt man Aethalien.
Gelegentlich oder auch regelmäßig bildet sich bei anderen Formen das ganze, noch netzförmig ausgebreitete Plasmodium zu einem diese Form beibehaltenden Fruchtkörper um; eine solche Bildung wird als Plasmodiocarp bezeichnet.
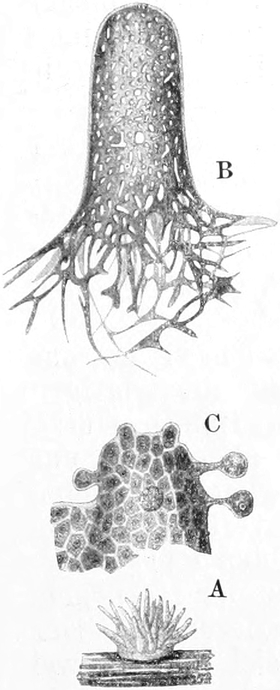
Im Anschluß an Rostafinski und Lister wird die Ordnung folgendermaßen eingeteilt:
1. Unterordnung.
Exosporeae Rostafinski.
Die einzige Familie Ceratiomyxidae Schröter bildet insofern einen Uebergang zu den Acrasieen, als die Fruchtkörper peridienlos sind und aus platten-, hörner- oder säulenförmigen Gebilden bestehen, [S. 684]welche meist zu mehreren büschelweise vereinigt sind. An der Außenseite der Platten entstehen (je eines aus einem polygonalen Abschnitt) kleine Stielchen, welche an der Spitze je eine Spore bilden. Ceratiomyxa mucida (Pers.) kommt in moderndem Holze vor, an dessen Oberfläche sie nach Regen die milchweißen, etwa ⅓ cm hohen Fruchtkörper bildet.
Da die Fruchtkörperbildung von Ceratiomyxa die bestuntersuchte ist, von welcher wir durch die Untersuchungen Jahns die meisten cytologischen Details kennen, so sei sie hier etwas ausführlicher dargestellt. Zu Beginn der Fruchtkörperbildung, wenn das Plasmodium in das sogenannte Polsterstadium übergeht, wurde jene Verschmelzung von Kernen beobachtet (Fig. 618), welche bisher als eigentlicher Sexualakt bei den Mycetozoen betrachtet wurde, jetzt aber auf Degeneration zurückgeführt wird. Es ist ihr also für die normale Entwicklung keine Bedeutung zuzuschreiben.
Es folgt nun das Streckungsstadium, in welchem der massenhaft abgesonderte Schleim sich in Form von Hörnern emporstreckt, an deren Spitze die Hauptmasse körnigen Plasmas sich ansammelt. Während dieses Stadiums bekommen die Kerne einen eigenartigen dichten Bau, welcher mit dem Synapsisstadium bei Metazoengeschlechtszellen verglichen wird (?).
In dem nun sich anschließenden Maschenstadium ist das Protoplasma in Form eines Netzes an der Oberfläche der glasigen Schleimmasse ausgebreitet, welche die Hörnchen im Innern stützt. In ihm hellen sich die Kerne wieder auf, zeigen aber jetzt nur 8 Chromosomen (Diakinese), welche bei der jetzt sogleich folgenden Reduktionskaryokinese auf zwei Tochterkerne verteilt werden, von denen der eine zugrunde geht. In dem folgenden Pflasterstadium bilden sich lauter abgegrenzte Plasmateile auf den Hörnchen. Jeder erhält einen Kern, oft dazu noch einen degenerierenden. Der Kern der nun entstehenden gestielten Spore teilt sich durch zwei Karyokinesen in 4 Kerne. Die aus der Spore auskriechende Myxamöbe hat 4 Kerne; dementsprechend teilt sie sich sofort in 4 Zellen, jede derselben sofort wieder in 2; aus den Teilprodukten entstehen dann sogleich 8 Myxoflagellaten. Die Kerne der Spore und ihrer Produkte haben 8 Chromosomen. Die volle Chromosomenzahl wird durch die Kopulation nach dem Auskriechen der Myxamöben aus der Spore wieder erreicht. Vorher vergeht oft eine ziemlich lange Zeit der Sporenruhe und Austrocknung.
2. Unterordnung.
Endosporeae Rostafinski.
Die Sporen werden in einem mit Peridium umhüllten Sporangium gebildet. Auch hier erfolgt im Anfang der Sporangienbildung Konjugation von je 2 Plasmodienkernen. Die Kerne führen darauf im Gegensatz zu den Exosporeen nur zwei Karyokinesen aus, eine vor der Sporenbildung und eine bei der Keimung. Die erstere ist eine Reduktionsteilung.
Die mannigfaltigen Formen der Unterordnung, von der wir nur einige Gattungen als Beispiele erwähnen, werden folgendermaßen gruppiert.
[S. 685]
1. Legion.
Amaurosporales Rostafinski.
Die Sporen sind violett oder violettbraun, mit Ausnahme einiger Species von Stemonitis und Comatricha, bei denen die Sporen blaß-rostgelb sind.
1. Sublegion: Calcarineae.
Formen, deren Sporangien kohlensauren Kalk enthalten.
1. Familie: Physaridae.
Kalk in feinen Granulationen vorhanden.
Gattungen: Badhamia Perk. (Fig. 598), Physarum Pers., Fuligo Haller (zu dieser Gattung gehört die sog. Lohblüte, Fuligo varians, früher meist Aethalium septicum genannt, eine große, grellgelb gefärbte Form aus der Gerberlohe [Fig. 619]), Chondrioderma Rost., Leocarpus Link (Fig. 602 D).
2. Familie: Didymidae.
Kalk in Kristallen vorhanden.
Gattung: Didymium Schrad. (Fig. 601).
2. Sublegion: Amaurochaetineae.
Sporangien ohne Kalk.
1. Familie: Stemonitidae.
Formen mit Einzelsporangien.
Gattungen: Stemonitis Gled. (Fig. 620 A und Fig. 599), Comatricha Preuss (Fig. 603).
2. Familie: Amaurochaetidae.
Sporangien zu Aethalien vereinigt.
Gattungen: Amaurochaete Rost., Brefeldia Rost.
1. Legion: Lamprosacrales Rostafinski.
Die Sporen haben verschiedene Farben, sind aber nie violett.
2. Sublegion Aneminea.
Sporangien ohne Capillitium, oder letzteres bildet wenigstens kein System gleichartiger Fäden.
[S. 686]
1. Familie: Heterodermidae.
Peridium häutig, mit mikroskopisch kleinen, runden Granulationen bedeckt, oft im oberen Teil ein Netz bildend.
Gattung: Dictydium Schrad. (Fig. 621 A u. B), Cribraria Pers. (Fig. 620 C).
2. Familie: Liceidae.
Peridium knorplig; Sporangien solitär.
Gattung: Licea Schrad.
3. Familie: Tubulinidae.
Peridium häutig, ohne Granulationen; Sporangien röhrenförmig, gesellig zusammengedrängt, verklebt.
Gattung: Tubulina Pers. (Fig. 621 C).
4. Familie: Reticulariidae.
Sporangien zu Aethalien vereinigt, die Peridien unvollkommen, durchlöchert oder ein gemeinsames Capillitium bildend.
Gattung: Reticularia Bull.
2. Sublegion: Calonemineae.
Capillitium vorhanden, aus einem System gleichartiger Fäden bestehend.
1. Familie: Trichiidae.
Capillitium bestehend aus freien Fäden mit Verdickungen in Form von Ringen oder Spiralen oder aus solchen, welche zu einem elastischen Netzwerk verbunden sind.
Gattung: Trichia Haller (Tr. varia H., Fig. 602 A–C).
2. Familie: Arcyriidae.
Das Capillitium besteht aus Fäden, die zu einem elastischen Netzwerk vereinigt sind; die Verdickungen der Fäden bestehen aus Ringen, Netzen, Leisten, Dornen etc.
Gattungen: Arcyria Hill (Fig. 620 B). Perichaena Fries.
3. Familie: Margaritidae.
Das Capillitium besteht aus verschiedenartigen Fäden, die aber nie ein Netzwerk bilden und keine Spiralstrukturen [S. 687]besitzen, oft aber an den einander gegenüberliegenden Wänden des Peridiums befestigt sind.
Gattung: Margarita Lister.
4. Familie: Lycogalidae.
Sporangien bilden ein Aethalium, das Capillitium ist aus glatten oder gerippten, verzweigten, farblosen Röhrchen zusammengesetzt.
Gattung: Lycogala Mich.
Anhang zu den Rhizopoden.
Im Anhang an die Rhizopoden seien hier noch einige Formen erwähnt, welche noch so wenig in ihren Fortpflanzungsverhältnissen und selbst in ihrer Morphologie erforscht sind, daß es schwierig ist, ihnen eine Stellung im System anzuweisen. Es sind nackte Formen mit Rhizopoden, von denen die einen ausschließlich in amöboiden Zuständen bekannt sind, während die anderen geißeltragende Schwärmer zu bilden vermögen.
Es ist möglich, daß manche von ihnen nur Zustände aus dem Zeugungskreis von anderen Rhizopoden darstellen, besonders von Foraminiferen und Mycetozoen. Dies wird noch wahrscheinlicher, wenn wir sehen, daß manche von diesen Formen früher als Moneren beschrieben wurden, da sich die Kerne in ihnen gar nicht oder wohl nur in Chromidienform nachweisen ließen. (Vielleicht sind so aufzufassen Protogenes Haeckel, Gymnophrys Cienkowsky, Pontomyxa Topsent.)
Andere Formen scheinen eher selbständige Organismen zu sein, so vor allem die Vampyrellen und Pseudosporaarten. Diese Formen kann man folgendermaßen gruppieren:
Protomyxidea
Ray Lankester.
a) Azoosporidae Zopf-Delage.
Formen mit amöboiden Produkten der Vermehrungscysten.
Gattung: Vampyrella Cienkowsky .
Die Gattung, welche von manchen für eine nahe Verwandte der niederen Mycetozoen gehalten wird, ist durch verschiedene Arten vertreten, welche in Süßwasseralgen räubern. Das Amöbenstadium ist sehr regelmäßig geformt, der Körper ist deutlich in ein farbloses hyalines Ektoplasma und ein vakuolisiertes, körnerreiches Entoplasma geschieden; das letztere ist oft durch Zerfallsprodukte von gefressenen chlorophyllhaltigen Organismen rot gefärbt; das erstere entsendet zahlreiche fadenförmige Pseudopodien nach allen Richtungen, welche selten sich ein wenig verzweigen und dem Tier ein heliozoenartiges Aussehen geben. Die Hauptmasse des Körpers bildet jedoch auch lappige Pseudopodien.
Es ist ein Kern von dichtem Gefüge vorhanden und ebenso eine kontraktile Vakuole. Der Durchmesser der Individuen beträgt zwischen 0,1 und 0,7 mm.
Es ist die Verschmelzung einiger (2–3) Individuen zu Plasmodien beobachtet worden. Geschlechtliche Vorgänge sind noch unbekannt.
[S. 688]
Die Vermehrung geht durch gewöhnliche Zweiteilung vor sich; häufiger ist eine Teilung in 2–4 einkernige Abkömmlinge innerhalb einer Cyste. Die Tochtertiere kriechen als Amöben aus, indem sie die Cystenmembran durchbrechen (Fig. 623 E). Auch kommt es nicht selten zur Bildung einer Dauercyste, welche oft von zahlreichen konzentrischen Membranen eingehüllt ist. Die Cystenhüllen bestehen aus Cellulose.
Die verschiedenen Arten kommen im Meer und im Süßwasser vor. Sie fressen entweder kleinere Tiere (Euglenencysten etc.) durch Umfließen, als richtige Raubtiere, oder sie befallen als Zellenräuber die Fadenalgen der betreffenden Gewässer. Dabei bohren sie ein rundes Loch durch die Algenzellmembran, strecken dadurch ihre Pseudopodien hinein und saugen den ganzen Inhalt aus, ohne in die Zelle einzudringen. Das Ausfressen einer Spirogyrazelle (Fig. 623 B) dauert nur 15–20 Minuten. Sie vermögen auch große Algenfäden [S. 689]zu umfließen. Nach sehr reichlicher Ernährung kommt es bisweilen zur Bildung von Verdauungscysten.
Sie töten die Zellen einfach, ohne irgendwelche Wucherungsprozesse an ihnen hervorzurufen.
Die bekanntesten Arten sind:
Vampyrella spirogyrae Cienk., Vampyrella lateritia Leidy.
Nahe steht die Gattung Hyalodiscus Hertwig u. Lesser (H. rubicundus H. u. L.), welche einen einfachen Umriß besitzt, breite Lobopodien bildet, sich aber in allen anderen Beziehungen ganz ähnlich einer Vampyrella verhält.
(Haplococcus Zopf.)
|
1884.
|
Zopf, Ueber einen neuen
Schleimpilz im Schweinekörper. In: Biolog. Centralblatt. Vol. 3. p. 673.
|
Haplococcus ist kein Schleimpilz, sondern es hat sich herausgestellt, daß es sich um Bärlappsamen handelt, der wie andere Verunreinigungen sich an manchen Orten auch im Schweinefleisch findet. Gewiß ein Zeichen, wie vorsichtig man bei der Beurteilung auffallender Funde sein muß. Die Sporen des Bärlapps (Lycopodium) geben durch ihre Form sehr leicht Anlaß zur Verwechslung mit manchen Cysten und Cystenkapseln von Protozoen. In dem zitierten Werk von Delage ist Haplococcus noch als Mycetozoon angeführt; es ist aber die erwähnte Verwechslung schon lange bekannt.
b) Zoosporidae Zopf-Delage.
Formen mit geißeltragenden Produkten der Vermehrungscysten.
Gattung: Pseudospora Cienkowsky.
Die Arten dieser Gattung leben parasitisch in Algen, Diatomeen, Flagellaten, so auch in Volvociden. Sie nähren sich durch Aufnahme des Plasmas und Chlorophylls (in geformtem Zustand). Im Wirt sind die Pseudosporen amöboid; sie wachsen heran, bilden eine Cyste und [S. 690]vermehren sich innerhalb derselben; durch rasch aufeinander folgende Teilungen entstehen zahlreiche junge Individuen, welche um einen Restkörper angesammelt sind. Beim Platzen der Cyste schlüpfen die jungen Individuen in Form von zweigeißeligen Schwärmern aus, welche eine neue Zelle aufsuchen, um sich in sie einzubohren und in amöboidem Zustand heranzuwachsen. Auch im freien Zustand kann der Geißelschwärmer in Amöben- (Fig. 624 A) oder Heliozoenform (Fig. 624 C) übergehen.
Was bisher über geschlechtliche Vermehrung der Gattung angegeben wurde, beruht wohl auf irrtümlichen Deutungen.
Art: Pseudospora volvocis Cienk.
Hierher gehören wohl auch die Gattungen Gymnococcus Zopf, bei welcher eine Art von Plasmodienbildung vorkommt, ebenso Protomyxa Haeckel, eine sehr interessante marine Form, welche bei den Canarischen Inseln auf den Schalen von Spirula gefunden wurde.
Gattung: Chlamydomyxa Archer.
In dieser Gegend muß nach den Untersuchungen von Penard auch diese eigenartige Gattung mit den beiden Species Ch. labyrinthuloides Archer und Ch. montana Ray Lankester untergebracht werden.
Ch. montana ist ein nacktes Rhizopod von 20–300 µ Durchmesser, mit farblosem, granuliertem Ektoplasma, Rhizopodien, welche allerdings sich selten verzweigen und selten anastomosieren, mit großen strömenden „Körnchen“, welche früher mit den spindelförmigen Körpern der Labyrinthuliden verwechselt wurden. Das Entoplasma ist grün gefärbt durch die Anwesenheit 2–3 µ großer Körper, welche Penard für Chromatophoren hält.
1–2 träge kontraktile Vakuolen sind vorhanden. Kerne zahlreich (100 und mehr), bläschenförmig, mit zentralem, stark färbbarem Binnenkörper. Möglicherweise kommt Vereinigung von mehreren Individuen zu einer Art von Plasmodium vor (?). Temporäre Cysten und Vermehrungscysten sind bekannt. In letzteren teilt sich der Inhalt in 20, 40 und mehr Sekundärcysten, welche zweikernig sind und aus denen geißeltragende Schwärmer hervorgehen. Weitere Entwicklung unbekannt.
Bemerkenswert ist, daß die Cystenhüllen aus Cellulose bestehen.
(Nähere Angaben und Literatur bei E. Penard, Etude sur la Chlamydomyxa montana, in: Arch. Protistenk. Vol. 4. 1904. p. 296.)
Labyrinthulidae Haeckel.
Die Formen dieser Abteilung, welche ich hier im Anhang anführe, da wir gar zu wenig von ihrer Naturgeschichte wissen, verschmelzen mit den langen fadenförmigen Pseudopodien zu netzartigen Geflechten. Die Körper bestehen aus kleinen, einkernigen, spindelförmigen Gebilden, von denen die Pseudopodien ausgehen.
Gattung: Labyrinthula Cienkowsky.
Das Einzelindividuum ist klein und spindelförmig; sein Protoplasma ist in ein fein granuliertes Entoplasma mit einigen Vakuolen und ein feines hyalines Ektoplasma geschieden. Aus letzterem gehen die dünnen, fadenförmigen Pseudopodien hervor, welche in der Regel [S. 691]nur in der Einzahl an jedem Pol vorhanden sind. Es ist nur ein dicht gebauter Kern vorhanden. Die Amöbe mißt 8–15 µ Länge.
Das „Filoplasmodium“ entsteht dadurch, daß die Pseudopodien der Einzeltiere miteinander verschmelzen. Aber außer den dadurch geschaffenen Hauptverbindungen entstehen auch häufig 1–2 Nebenverbindungen zwischen nahe aneinanderliegenden Myxamöben. So wird das Pseudoplasmodium zu einem weitmaschigen Netz. Man findet die Tiere niemals einzeln, sondern immer in größeren Anhäufungen.
Bei der Bewegung wird stets das hintere Pseudopodium um ebensoviel ausgestreckt, als das vordere eingezogen wird, was vollkommen den Eindruck des Gleitens an einem Faden hervorruft.
Geschlechtliche Vorgänge sind nicht bekannt.
Eine Vermehrung der Einzeltiere im Plasmodium findet regelmäßig statt; dabei teilt sich der Kern, der spindelförmige Körper teilt sich in zwei, bei dem Auseinanderweichen der Tochtertiere zieht sich das Verbindungsstück fadendünn aus und bildet die Pseudopodienverbindung zwischen denselben; später kann es auch ganz durchreißen und die beiden Tochtertiere isolieren.
Es kommt eine Dauercystenbildung vor, wobei die spindelförmigen Individuen sich eng aneinander lagern, ihre Pseudopodien einziehen und sich dann — jedes für sich — encystieren. Beim Verlassen der Cysten bilden sie sofort wieder ein gemeinsames Filoplasmodium.
Bei anderen Arten dienen diese Dauercysten auch der Vermehrung; die Einzelcystchen werden von einer gemeinsamen Hülle eingeschlossen; der Plasmainhalt einer jeden derselben bringt sodann durch Teilung viele junge Individuen hervor (Labyrinthula macrocystis Cienk.).
Die Labyrinthuleen bewohnen das Zellinnere von Diatomeen, Spirogyren usw.; sie dringen durch die Zellwand und verzehren den Zellinhalt, indem sie ihn in einzelnen Körnchen auf den fadenförmigen Pseudopodien in ihren Plasmaleib ziehen, ähnlich den Foraminiferen.
Indem sie die Zellen auf diese Weise allmählich leeren, töten sie dieselben.
Arten: Labyrinthula Cienkowskii Zopf, im Süßwasser, greift Vaucheria an.
L. vitellina Cienk.
[S. 692]
Wichtigste Literatur über Rhizopoden.
|
Amöben.
|
|
|
936.
|
Awerinzew, S., Beiträge zur Struktur des
Protoplasma und des Kernes von Amoeba Proteus (Pall). In: Zool. Anz. Vol.
32. 1907. p. 47.
|
|
937.
|
Baelz, E., Ueber einige neue Parasiten
des Menschen. In: Berl. klin. Wochenschr. 1883. p. 237.
|
|
938.
|
Barbagallo, P., L’Entamoeba hominis e
l’Entamoeba histolytica in rapporto con la cosidetta dissenteria amebica.
In: Policlinico Sez. med. Vol. 12. 1905. p. 282.
|
|
939.
|
Behla, Die Amöben insbesondere vom
parasitären und kulturellen Standpunkt. Berlin, Aug. Hirschwald. 1897.
|
|
940.
|
De Beaurepaire, Aragão, H., Sobre
a Amoeba diplomitotica n. sp. Contribuição para o estudo da divizião nuclear
nas amebas. In: Mem. Inst. Oswaldo Cruz Rio de Janeiro. Vol. 1. 1909.
p. 33.
|
|
941.
|
Calkins, G. N., Evidences of a sexual
cycle in the life-history of Amoeba proteus. In: Arch. f. Protistenk. Vol.
5. I. 1904. p. 1.
|
|
942.
|
— The fertilization of Amoeba proteus. In: Biol.
Bulletin. Vol. 13. 1907. No. 4. p. 219.
|
|
943.
|
Casagrandi e Barbagallo, Entamoeba
hominis. Studio biologico e clinico. In: Annali d’Igiene sperimentale. Vol.
5. Fasc. 1. 1897.
|
|
944.
|
Castellani, Observations on some Protozoa
found in human feces. In: Centralbl. f. Bakteriol. u. Parasitenk. I. Abt.
Vol. 38. 1905. p. 66.
|
|
945.
|
Caullery, Sur un Amoebien parasite des
embryons de Peltogaster curvatus Kossm. In: C. R. Soc. Biol. Paris. Vol. 61.
p. 266.
|
|
946.
|
— Sur un Amoebien parasite de Peltogaster
curvatus Kossm. Ibid. Vol. 41. p. 226–268.
|
|
947.
|
Chatton, E., Une amibe, Amoeba mucicola
n. sp., parasite des branchies des labres, associée à une trichodine. (Note
prélim). In: Compt. rend. Soc. Biol. Vol. 67. 1909. p. 691.
|
|
948.
|
— Protozoaires parasites des branchies des
labres: Amoeba mucicola Chatton; Trichodina labrorum n. sp. Appendice:
Parasites des Trichodines. In: Arch. Zool. expér. et gén. Sér. 5. Vol. 5.
1910. p. 239–266.
|
|
949.
|
— Essai sur la structure du noyau et la mitose
chez les Amoebiens. Faits et théories. Ibid. Vol. 45. 1910. No. 6. p. 267.
|
|
950.
|
Celli, A. und Fiocca, R., Beiträge
zur Amöbenforschung. In: Centralbl. f. Bakt. u. Parasitenk. I. Abt. Vol.
15. 1894. p. 470; Vol. 16. 1894. p. 329.
|
|
951.
|
Councilman and Lafleur, Amebic
dysentery. In: John Hopkins Hospital Reports. Vol. 2. 1891. p. 395.
|
|
952.
|
Craig, C. F., Observations upon Amebas
infecting the human intestine, with a description of two species, Entamoeba
coli and Entamoeba dysenteriae. In: Am. Med. Philad. Vol. 9. 1905. p. 854,
897, 937.
|
|
953.
|
Cunningham, D. D., Sanitary report on
cholera to the Government of India. 1870.
|
|
954.
|
— On the development of certain microscopic
organisms occurring in the intestinal canal. In: Quart. Journ. Micr. Sci.
Vol. 21. 1881. p. 234.
|
|
955.
|
Dangeard, P., Contribution à l’étude des
Acrasiées. In: Le Bot. 1896–1897. p. 1.
|
|
956.
|
Doflein, F., Studien zur Naturgeschichte
der Protozoen. V. Amöbenstudien. In: Arch. f. Protistenk. Suppl. 1. 1907.
p. 250.
|
|
957.
|
Le Dantec, A., Procédés pour obtenir des
Amibes et des Anguillules pour les travaux pratiques de la parasitologie.
In: Compt. rend. Soc. Biol. Vol. 66. 1909. p. 237.
|
|
958.
|
Dobell, C. Cl., Physiological
degeneration and death in Entamoeba ranarum. In: Quart. Journ. of Microscop.
Science. Vol. 53. 1909. Part 4. p. 711–721.
|
|
959.
|
Elmassian, M., Sur une nouvelle espèce
amibienne chez l’homme, Entamoeba minuta n. sp. 1. mém.
(Morphologie—Evolution—Pathogène). In: Centralbl. Bakt. Abt. I. Orig. Vol.
52. 1909. p. 335
|
|
960.
|
— Sur l’Amoeba blattae. Morphologie, génération.
In: Arch. f. Protistenk. Vol. 16. 1909. H. 2. p. 143.
|
|
[S. 693]
961.
|
Erdmann, R., Depression und fakultative
Apogamie bei Amoeba diploidea. In: Festschr. zum 60. Geb. R. Hertwigs. Vol.
1. 1910. p. 325.
|
|
962.
|
Frosch, P., Zur Frage der Reinzüchtung
der Amöben. In: Centralbl. f. Bakt. u. Parasitenk. Vol. 21. 1897. p. 926.
|
|
963.
|
— Beitrag zur Biologie saprophytischer Amöben.
In: Zeitschr. f. Krebsforschung. Vol. 8. 1909. H. 2. p. 183.
|
|
964.
|
Grassi, B., Intorno ad alcuni protisti
endoparassitici ed appartenenti alle classi dei flagellati, lobosi, sporozoi
e ciliati. Atti della Soc. Ital. di Sci. nat. Milano. Vol. 24. 1882.
p. 135.
|
|
965.
|
Gross, A., Beobachtungen über
Amöbenenteritis. In: Deutsch. Arch. f. klin. Med. Vol. 76. 1903. p. 429.
|
|
966.
|
Gruber, A., Studien über Amöben: In:
Zeitschr. f. wiss. Zool. Vol. 41. 1884.
|
|
967.
|
— Amöbenstudien. In: Ber. Nat. Ges. Freiburg i.
B. Vol. 8. 1894.
|
|
968.
|
Harris, H. F., Experimentell bei Hunden
erzeugte Dysenterie. In: Arch. path. Anat. Berlin. Vol. 166. p. 67.
|
|
969.
|
Hartmann, M., Eine neue Dysenterieamöbe
Entamoeba tetragena Viereck syn. E. africana Hartm. In: Arch. f. Schiffs-
und Tropenhyg. Vol. 12. 1908. Beiheft 5.
|
|
970.
|
— Untersuchungen über parasitische Amöben. 1.
Entamoeba histolytica Schaudinn. Mit Benutzung der nachgelassenen Präparate
von F. Schaudinn. In: Arch. f. Protistenk. Vol. 18. 1909. p. 207–220.
|
|
971.
|
— Ueber eine neue Darmamöbe, Entamoeba
testudinis n. sp. In: Mem. do Instit. Oswaldo Cruz. Vol. 2. Fasc. 1. 1910.
p. 3.
|
|
972.
|
— und Nägler, Kopulation bei Amoeba
diploidea etc. In: Sitzber. Ges. naturf. Freunde Berlin. 1908. Vol. 1.
|
|
973.
|
Ijima, I., On a new Rhizopod parasite of
man. In: Annot. zool. Japon. Vol. 2. 1908. p. 85.
|
|
974.
|
Janicki, C. v., Ueber Kern und
Kernteilung bei Entamoeba blattae Bütschli. In: Biol. Centralbl. Vol. 29.
1909. No. 12. 15. Juni.
|
|
975.
|
Jaeger, H., Ueber Amöbenbefunde bei
epidemischer Dysenterie. In: Berl. klin. Wochenschr. 1901. No. 36.
p. 917.
|
|
976.
|
— Untersuchungen über Amöbendysenterie in
Ostpreußen. In: Deutsche med. Wochenschr. 1902. No. 27. p. 208.
|
|
977.
|
Jürgens, Zur Kenntnis der Darmamöben und
der Amöben-Enteritis. In: Veröffentlichungen aus dem Gebiete des
Militär-Sanitätswesens. Vol. 20. 1902. p. 110.
|
|
978.
|
Kartulis, Zur Aetiologie der Dysenterie
aus Aegypten. In: Virchows Arch. f. path. Anat. Vol. 105. 1886. p. 521.
|
|
979.
|
— Zur Aetiologie der Leberabszesse. Lebende
Dysenterieamöben im Eiter der dysenterischen Leberabszesse. In: Centralbl.
f. Bakteriol. etc. Vol. 2. 1887. p. 745.
|
|
980.
|
— Die Amöbendysenterie. In: Kolle und
Wassermanns Handbuch der pathogenen Mikroorganismen. Ergänzungsband. Heft 1.
1895. p. 347.
|
|
981.
|
Koch, R., Arbeiten aus dem Gesundheitsamt.
No. 3. Cholerabericht.
|
|
982.
|
Koidzumi, M., On a new parasitic Amoeba,
Entamoeba nipponica, found in the intestine of Japanese. In: Centralbl.
Bakteriol. Abt. I. Orig. Vol. 51. p. 650.
|
|
983.
|
Kruse, W. und Pasquale, A.,
Untersuchungen über Dysenterie und Leberabszesse. In: Zeitschr. f. Hyg. Vol.
16. 1894. p. 1.
|
|
984.
|
— — Eine Expedition nach Aegypten zum Studium
der Dysenterie und des Leberabszesses. In: Deutsche med. Wochenschr. 1893.
p. 354, 378.
|
|
985.
|
Lambl, Beobachtungen und Studien aus dem
Franz-Joseph-Kinderhospital in Prag. 1. Teil. 1860. p. 362.
|
|
986.
|
Leidy, J., Freshwater Rhizopods of North
America. Washington 1879.
|
|
987.
|
Lesage, A., Culture de l’amibe de la
dysentérie des pays chauds. In: Ann. Inst. Pasteur. Vol. 28. 1905. p. 9.
|
|
988.
|
Loesch, F., Massenhafte Entwicklung von
Amöben im Dickdarm. In: Arch. f. path. Anat., Physiol. u. klin. Med. von R.
Virchow. Vol. 65. 1875. p. 196.
|
|
989.
|
Mercier, L., Le cycle évolutif d’Amoeba
blattae Bütschli. (Note prélim.). In: Arch. f. Protistenk. Vol. 16. 1909.
H. 2. p. 164.
|
|
990.
|
— Contribution à l’étude de l’amibe de la blatte.
(Entamoeba blattae Bütschli). In: Arch. f. Protistenk. Vol. 20. 1910.
p. 143).
|
|
991.
|
Metcalf, M. M., Studies upon Amoeba. In:
Journ. of exper. Zool. Vol. 9. 1910. No. 2. p. 301.
|
|
992.
|
Musgrave, W. E., Intestinal Amoebiasis
without diarrhoea. A study of fifty fatal cases. In: The Philippine Journ.
of Science. B. medical Sc. Vol. 5. July 1910. p. 229.
|
|
993.
|
— and Clegg, Amebas. In: Publ. Biol. Lab.
Manila. No. 18. 1904.
|
|
[S. 694]
994.
|
Nägler, K., Studien über Protozoen aus
einem Almtümpel. 1. Amoeba Hartmanni n. sp. Anhang zur Centriolfrage. In:
Arch. f. Protistenk. Vol. 22, 1911. Heft 1. p. 56.
|
|
995.
|
— Entwicklungsgeschichtliche Studien über Amöben.
In: Arch. f. Protistenk. Vol. 15. 1909. p. 1.
|
|
996.
|
Neresheimer, E., vgl. No. 287 der Liste
p. 273.
|
|
997.
|
Noc, F., Recherches sur la dysentérie
Amibienne en Cochinchine. In: Ann. de l’Inst. Pasteur. Vol. 23. 1909.
p. 177.
|
|
998.
|
Penard, Faune Rhizopodique du Bassin du
Leman. Genf 1902.
|
|
999.
|
— Observations sur les amibes à pellicule. In:
Arch. f. Protistenk. Vol. 6. 1905. p. 173.
|
|
1000.
|
Popoff, M., Ueber den Entwicklungszyklus
von Amoeba minuta n. sp. In: Arch. f. Protistenk. Vol. 22. 1911. p. 197.
|
|
1001.
|
Prandtl, H., Die physiologische
Degeneration der Amoeba proteus. In: Arch. f. Protistenk. Vol. 8. 1907.
p. 281.
|
|
1002.
|
Prowazek, Entamoeba buccalis n. sp. In:
Arbeiten aus dem Kaiserl. Gesundheitsamt. Vol. 21. 1904. p. 42.
|
|
1003.
|
Quincke und Roos, Ueber
Amöben-Enteritis. In: Berl. klin. Wochenschr. Vol. 30. 1893. p. 1089.
|
|
1004.
|
Ruge und Esau, Das Durchwandern
der Dysenterieamöben durch die Darmwand. In: Centralbl. f. Bakt. Orig.
Vol. 46. 1908. p. 129.
|
|
1005.
|
Schaudinn, F., Ueber Kernteilung mit
nachfolgender Körperteilung von Amoeba crystalligera. In: Sitzungsber. Berl.
Akad. 1894. p. 1029.
|
|
1006.
|
— Ueber die Teilung von Amoeba binucleata
(Gruber). In: Sitzungsber. Ges. Naturf. Fr. Berlin. 1895. p. 130.
|
|
1007.
|
— Untersuchungen Über die Fortpflanzung der
Rhizopoden. In: Arb. a. d. Kaiserl. Gesundheitsamt. Vol. 29. 1903. p. 3.
|
|
1008.
|
Scheel, K., Beiträge zur Fortpflanzung
der Amöben. In: Festschr. zum 70. Geb. von K. v. Kupffer. Jena (Gustav
Fischer) 1899. p. 569.
|
|
1009.
|
Schepotieff, A., Amöbenstudien. In: Zool.
Jahrbücher, Abt. Anat., Ontog. d. Tiere. Vol. 29. 1910. H. 4.
|
|
1010.
|
Schuberg, Die parasitischen Amöben des
menschlichen Darmes etc. In: Centralbl. f. Bakt. etc. Vol. 13. 1893. p. 598,
654, 701.
|
|
1011.
|
Schubotz, H., Beiträge zur Kenntnis der
Amoeba blattae und A. proteus. In: Arch. f. Protistenk. Vol. 6. 1905. p. 1.
|
|
1012.
|
Smith, T., An infectious disease among
turkeys by Protozoa. In: U. S. Dept. Agr. Bureau. Animal Industry. Bull. No.
8. 1895.
|
|
1013.
|
Tönniges, C., Die Fortpflanzung von
Pelomyxa palustris. In: Sitzungsber. Ges. zur Beförderung der gesamten
Naturwissenschaften zu Marburg. 10. Febr. 1909. No. 2.
|
|
1014.
|
Tsujitani, Ueber die Reinkultur der
Amöben. In: Centralbl. f. Bakt. I. Abt. Vol. 24. 1898. p. 666.
|
|
1015.
|
Vahlkampf, Beiträge zur Biologie und
Entwicklungsgeschichte von Amoeba limax etc. In: Arch. f. Protistenk.
Vol. 2. 1904. p. 167.
|
|
1016.
|
Viereck, H., Studien über die in den
Tropen erworbene Dysenterie. In: Beihefte Arch. f. Schiffs- u. Tropenhyg.
Vol. 11. 1907. Heft 1.
|
|
1017.
|
Walker, E. L., The parasitic amoebae of
the intestinal tract of man and other animals. In: Journ. med. Research.
Vol. 17. 1908. p. 379.
|
|
1018.
|
Wasielewski, Th. v., Ueber Amöbennachweis.
In: Münch. med. Wochenschr. 1911. No. 3.
|
|
1019.
|
— und Hirschfeld, L., Untersuchungen über
Kulturamöben. In: Abhandl. d. Heidelberger Akad. d. Wiss. Math. Naturw. Kl.
1910. 1. Abh.
|
|
1020.
|
— — Zur Technik der Amöbenuntersuchung. In: Hyg.
Rundschau. 1909. No. 16.
|
|
1021.
|
Werner, H., Studien über pathogene Amöben.
In: Arch. f. Schiffs- u. Tropenhyg. Vol. 12. 1908. Beiheft 11. p. 7.
|
|
1022.
|
Wenyon, Observations on the Protozoa in
the intestine of mice. In: Arch. f. Protistenk. Supplementband 1. 1907.
|
|
Heliozoen.
|
|
|
1023.
|
Boissevain, M., Ueber Kernverhältnisse bei
Actinosphaerium Eichhorni bei fortgesetzter Kultur. In: Arch. f. Protistenk.
Vol. 13. 1908. p. 167.
|
|
1024.
|
Brauer, A., Ueber die Encystierung von
Actinosphaerium Eichhorni. In: Zeitschrift wiss. Zool. Vol. 58. 1899.
p. 189.
|
|
[S. 695]
1025.
|
Cienkowsky, L., Ueber die Clathrulina, eine neue
Actinophryengattung. In: Arch. f. mikr. Anat. Vol. 3. 1867.
|
|
1026.
|
Distaso, A., Sui processi vegetativi e
sull’incistidomento di Actinophrys sol. In: Arch. f. Protistenk. Vol.
12. 1908. p. 277.
|
|
1027.
|
Greeff, Ueber Radiolarien und radiolarienartige
Rhizopoden des süßen Wassers. I. Art. In: Arch. f. mikr. Anat. Vol. 5. 1869.
II. Art. Vol. 11. 1875.
|
|
1028.
|
Grenacher, N., Bemerkungen über Acanthocystis
viridis. In: Zeitschr. f. wiss. Zool. Vol. 19. 1868. p. 289.
|
|
1029.
|
— Ueber Actinophrys sol. In: Vhdl. Würzburger Phys.-med.
Gesellsch. N. F. Vol. 1. 1869. p. 168.
|
|
1030.
|
Hertwig, R., Ueber die Kernteilung bei
Actinosphaerium Eichhorni. Jena 1884.
|
|
1031.
|
— Ueber Kernteilung, Richtungskörperbildung und
Befruchtung bei Actinosphaerium Eichhorni. In: Abh. der math.-phys. Kl. der
Ak. d. Wiss. München. Vol 19. Abt. III. 1898. p. 1.
|
|
1032.
|
— Ueber physiologische Degeneration bei Actinosphaerium
Eichhorni. In: Festschr. für E. Haeckel. Jena 1904.
|
|
1033.
|
— und Lesser, Ueber Rhizopoden und denselben
nahestehende Organismen. In: Arch. mikr. Anat. Vol. 10. Suppl. 1874.
|
|
1034.
|
Keysselitz, G., Studien über Protozoen. In: Arch.
f. Protistenk. Vol. 11. 1908. H. 2/3.
|
|
1035.
|
MacKinnon, Doris, L., The optical properties of the
contractile elements in Heliozoa. Journ. Physiol. London. Vol. 38. p.
254.
|
|
1036.
|
Penard, E., Die Heliozoen der Umgegend von
Wiesbaden. In: Jahrb. Nassau Verein f. Naturk. Vol. 43. 1890.
|
|
1037.
|
Schaudinn, F., s. No. 200. Liste auf p. 270.
|
|
1038.
|
— s. No. 223. Liste auf p. 271.
|
|
1039.
|
— Heliozoa. In: Das Tierreich. Probelieferung. Berlin
1896.
|
|
1040.
|
Schulze, F. E., Rhizopodenstudien. In: Arch. mikr.
Anat. I. Vol. 10. 1874. p. 328. II. Vol. 10. 1874. p. 377.
|
|
1041.
|
Zülzer, M., Bau und Entwicklung von Wagnerella
borealis. In: Sitzungsber. Ges. naturf. Freunde. Berlin 1908. p. 151.
|
|
1042.
|
— Bau und Entwicklung von Wagnerella borealis Mereschk.
In: Arch. f. Protistenk. Vol. 17. 1909. p. 135.
|
|
Mycetozoa.
|
|
|
1043.
|
de Bary, Die Mycetozoen. 2. Aufl. Leipzig 1864.
|
|
1044.
|
Constantineanu, J. C., Ueber die
Entwicklungsbedingungen der Myxomyceten. In: Ann. mycologici. Vol. 4. 1906.
p. 496.
|
|
1045.
|
Delage, Y., Zoologie concrète. Vol. 1. Paris 1896.
|
|
1046.
|
Famintzin und Woronin, Ueber zwei neue
Formen von Schleimpilzen: Ceratium hydnoides und C. porioides. In: Mém.
Acad. Imp. St. Pétersbourg. Sér. VII. Vol. 20. No. 3. 1873.
|
|
1047.
|
Harper, R. A., Cell and nuclear division in Fuligo
varians. In: Botanic. Gaz. Vol. 30. 1900. p. 217.
|
|
1048.
|
Hisinger, Recherches sur les tubercules du Ruppia
rostellata et du Zannichella polycarpa provoqués par le Tetramyxa parasitia.
I. N. pr. Meddel. Soc. pro Fauna et Flora Fennica. Vol. 14. 1888. p. 53.
|
|
1049.
|
Jahn, E., Myxomycetenstudien. 1–8 in Ber. d.
Deutsch. Bot. Ges. 1) Vol. 19. 1901. p. 97. 2) Vol. 20. 1902. p. 107. 3)
Vol. 22. 1904. p. 84. 4) Vol. 23. 1905. p. 489. 5) Vol. 24. 1906. p. 538.
6) Vol. 25. 1907. p. 23. 7) Vol. 26. 1908. p. 342. 8) Sexualakt. Vol. 29.
1911. p. 231.
|
|
1050.
|
Kränzlin, Helene, Zur Entwicklungsgeschichte der
Sporangien bei den Trichien und Arcyrien. In: Arch. f. Protistenk. Vol. 9.
1907. p. 170.
|
|
1051.
|
a) Lister, A., A monograph of the Mycetozoa. London.
Brit. Mus. 1894.
|
|
b) On the division of nuclei in the Mycetozoa. In: Journ.
Linn. Soc. Botany. Vol. 29. 1893. p. 529.
|
|
|
c) On the cultivation of Mycetozoa from spores. In: Journ.
of Botany. 1901.
|
|
|
1052.
|
Macbride, R. H., The northamerican slime moulds.
New York and London 1899.
|
|
1053.
|
Maire, R. et Tison, A., La cytologie des
Plasmodiophoracées et la classe des Phytomyxinées. In: Ann. mycol. Vol. 7.
1909. p. 226.
|
|
1054.
|
Miller, C. O., The aseptic cultivation of Mycetozoa.
In: Quart. Journ. Micr. Sci. New Ser. Vol. 41. 1898. p. 43.
|
|
1055.
|
a) Olive, E. W., Monograph of the Acrasieae. In:
Proc. Boston Soc. Nat. Hist. Vol. 30. 1902. p. 437.
|
|
b) Cytological studies on Ceratiomyxa. In: Transact.
Wisconsin Ac. Sci. Vol. 15. 1907.
|
|
|
[S. 696]
1056.
|
Prowazek, S., Kernverhältnisse in
Myxomycetenplasmodien. In: Oesterr. bot. Zeitschr. Vol. 54.
|
|
1057.
|
Rosen, F., Beiträge zur Kenntnis der Pflanzenzellen
II. Studien über die Kerne und die Membranbildung bei Myxomyceten und Pilzen.
In: Cohns Beiträge. Vol. 6. 1897. p. 237.
|
|
1058.
|
Schröter, Myxomyceten. I: Engler und Prantl, Die
natürlichen Pflanzenfamilien. Vol. 1. Abt. 1. 1896.
|
|
1059.
|
Strasburger, E., Zur Entwicklungsgeschichte der
Sporangien von Trichia fallax. In: Bot. Zeitung. Vol. 42. 1884. No. 20.
|
|
1060.
|
Zopf, Die Pilztiere oder Schleimpilze. In:
Encyclopädie der Naturwissenschaften. Breslau 1887.
|
|
Foraminiferen.
|
|
|
1061.
|
Awerinzew, S., Ueber die Struktur der Kalkschalen
mariner Rhizopoden. In: Zeitschr. wiss. Zool. Vol. 74. 1903. p. 478.
|
|
1062.
|
— Beiträge zur Kenntnis mariner Rhizopoden. In: Mitt.
Zool. Station Neapel. Vol. 16. 1903/04. p. 349.
|
|
1063.
|
— Ueber Zoochlorellen bei Protozoen. Travaux Soc.
Naturalistes St. Pétersbourg. 1900. p. 345.
|
|
1064.
|
— Ueber Gromia Dujardini M. Sch. In: Zool. Anz. Vol. 35.
1910. p. 425.
|
|
1065.
|
Blochmann, F., Zur Kenntnis der Fortpflanzung von
Euglypha alveolata Duj. In: Morph. Jahrb. Vol. 13. 1888.
|
|
1066.
|
Brady, B. Henry, Report on the Foraminifera dredged
by H. M. S. Challenger. 1873–76.
|
|
1067.
|
— Note on the reproductive condition of Orbitolites
complanata var. laciniata. In: Journ. R. Micr. Soc. 1888. p. 693.
|
|
1068.
|
— On the reproduction of Orbitolites. In: Nature. Vol. 47.
1893. p. 119.
|
|
1069.
|
Broek, E. van den, Étude sur le dimorphisme des
Foraminifères et des Nummulites en particulier. In: Bull. Soc. Belgique
Géol. Proc.-verb. Vol. 26. 1893. p. 6.
|
|
1070.
|
Bütschli, O., Sarcodina. In: Bronn, Klassen u.
Ordn. des Tierreichs. Vol. 1. Protozoa. 1880–82.
|
|
1071.
|
— Kleine Beiträge zur Kenntnis einiger mariner Rhizopoden.
In: Morph. Jahrb. Vol. 11. 1886. p. 78.
|
|
1072.
|
Carpenter, William, B., Researches on the
Foraminifera. I. In: Philosophical Transactions R. Soc. London. Vol. 149.
1859. p. 2.
|
|
1073.
|
— Introduction to the Study of the Foraminifera.
London 1862.
|
|
1074.
|
Carter, H. J., On freshwater Rhizopoda of England
and India. In: Ann. and Magaz. Nat. Hist. (3) Vol. 13. 1864.
|
|
1075.
|
— On the freshwater and saltwater Rhizopoda of England and
India. Ibid. (3) Vol. 15. 1865.
|
|
1076.
|
Cienkowsky, L., Ueber einige Rhizopoden und
verwandte Organismen. In: Arch. mikr. Anat. Vol. 12. 1876.
|
|
1077.
|
Doflein, F., Ueber den Teilungsvorgang bei den
Süßwasserthalamophoren. In: Sitzungsber. Ges. f. Morph. u. Physiol.
München 1907.
|
|
1078.
|
Dreyer, Fr., Peneroplis, eine Studie zur
biologischen Morphologie und zur Speciesfrage. Leipzig, W. Engelmann, 1888.
|
|
1079.
|
Eimer, G. Th., und Fickert, C., Die
Artbildung und Verwandtschaft bei den Foraminiferen. Entwurf einer
natürlichen Einteilung derselben. In: Zeitschr. f. wiss. Zool. Vol. 65.
1899.
|
|
1080.
|
Gruber, A., Die Teilung der monothalamen
Rhizopoden. In: Zeitschr. f. wiss. Zool. Vol. 36. 1882.
|
|
1081.
|
Hertwig, R., Ueber Microgromia socialis. In: Arch.
f. mikr. Anat. 10. Suppl. 1874. p. 10.
|
|
1082.
|
— Bemerkungen zur Organisation und systematischen Stellung
der Foraminiferen. In: Jen. Zeitschr. Vol. 10. 1876. p. 41.
|
|
1083.
|
— vgl. No. 303 der Liste p. 273.
|
|
1084.
|
— und Lesser, Ueber Rhizopoden und denselben
nahestehende Organismen. In: Arch. f. mikr. Anat. Vol. 10. 1874.
Suppl.
|
|
1085.
|
Leidy, Freshwater Rhizopods of North America. In:
U. St. Geolog. Survey of the Territories. Vol. 12. 1879.
|
|
1086.
|
Lister, J. J., Contributions to the life-history of
the Foraminifera. In: Proc. Roy. Soc. Vol. 56. 1894. p. 155.
|
|
1087.
|
— Dasselbe. In: Phil. Transact. Roy. Soc. London. Vol.
186. 1895. p. 401.
|
|
1088.
|
— The Foraminifera. In: A Treatise on Zool. ed. by Ray
Lankester I. 1903.
|
|
1089.
|
Lücke, F., Saccamina sphaerica M. Sarc. Inaug.-Diss.
Kiel. 1910.
|
|
[S. 697]
1090.
|
Munier-Chalmas, Études sur les nummulites. In: Bull.
Soc. géol. France. Sér. 3. Vol. 8. 1880. p. 300.
|
|
1091.
|
Neumayr, M., Die Stämme des Tierreichs, Wirbellose
Tiere. Wien u. Prag. (Paläontologie der Foraminiferen.)
|
|
1092.
|
— Die natürlichen Verwandtschaftsverhältnisse der
schalentragenden Rhizopoden. In: Sitzungsber. d. k. Akad. Wiss. Wien.
Math.-naturw. Kl. Vol. 45. 1887. p. 156.
|
|
1093.
|
d’Orbigny, Alcides, Foraminiferas. In: Historia de
la Isla de Cuba por. d. Ramon de la Sagra. 1840. p. 1–180. Tab. 1–12.
|
|
1094.
|
Parisi, B., Sulla composizione chimica dei
bastoncini del Trichosphaerium Sieboldi. In: Boll. Mus. Zool. An. comp.
Torino. Vol. 24. 1910. No. 609. p. 1.
|
|
1095.
|
Penard, s. o. No. 998.
|
|
1096.
|
— Sur quelques Rhizopodes des Mousses. In: Arch. f.
Protistenk. Vol. 17. 1909. p. 252.
|
|
1097.
|
Rhumbler, L., Beiträge zur Kenntnis der Rhizopoden
1. Ueber Entstehung und sekundäres Wachstum der Gehäuse einiger
Süßwasserrhizopoden. In: Zeitschr. wiss. Zool. Vol. 52. 1891. p. 515.
|
|
1098.
|
— Beiträge zur Kenntnis der Rhizopoden 2. Saccammina
sphaerica M. Sars. In: Zeitschr. wiss. Zool. Vol. 57. 1894. p. 433.
|
|
1099.
|
— Die Perforation der Embryonalkammern von Peneroplis
pertusus Forskal. In: Zool. Anz. Jahrg. 16. 1894. p. 335.
|
|
1100.
|
— Aggregatzustand und die physikalischen Besonderheiten
des Zellinhaltes. In: Zeitschr. f. allgem. Physiol. Vol. 2. 1902. p. 183.
|
|
1101.
|
— Mitteilungen über die Foraminiferen. In: Verh. Deutsch.
Zool. Ges. 15. Vers. 1905. p. 97.
|
|
1102.
|
Die Foraminiferen der Plankton-Expedition. 1. Teil:
Allgemeine Organisationsverhältnisse der Foraminiferen. Kiel u. Leipzig
1911.
(Ein ausführliches Werk mit allgemeinen Auseinandersetzungen und eingehender Verarbeitung der gesamten Literatur). |
|
1103.
|
Schacko, G., Untersuchungen an Foraminiferen. In:
Arch. f. Naturgesch. Jahrg. 49. Vol. 1. 1883. p. 428. resp. 443.
|
|
1104.
|
Schaudinn, F., Die Fortpflanzung der Foraminiferen
und eine neue Art der Kernteilung. In: Biol. Centralbl. Vol. 14. 1894. p.
161.
|
|
1105.
|
— Myxotheca arenilega n. g. n. sp. In: Zeitschr. f. wiss.
Zool. Vol. 57. 1894. p. 18–31.
|
|
1106.
|
— Ueber die systematische Stellung und Fortpflanzung von
Hyalopus n. g. Dromia dujardini Schultze. In: S.-B. Ges. naturf. Freunde.
1894. p. 14.
|
|
1107.
|
— Dasselbe in Naturwiss. Wochenschr. Vol. 95. 1894.
p. 169.
|
|
1108.
|
— Untersuchungen an Foraminiferen, Calcituba polymorpha
Roboz. In: Zeitschr. f. wiss. Zool. Vol. 59. 1895. p. 85.
|
|
1109.
|
— Ueber Dimorphismus der Foraminiferen. In: S.-B. Ges.
naturf. Freunde. Berlin 1895. p. 87.
|
|
1110.
|
— Ueber Plastogamie bei Foraminiferen. In: S.-B. Ges.
naturf. Freunde. Berlin 1895. p. 170.
|
|
1111.
|
— Untersuchungen über den Generationswechsel von
Trichosphaerium Sieboldii Schn. In: Abh. K. preuß. Akad. Wiss. Berlin 1899.
Ann. p. 1.
|
|
1112.
|
— Untersuchungen über die Fortpflanzung einiger Rhizopoden.
I. Polystomella crispa. In: Arb. Kais. Gesundheitsamt. Vol. 19. 1903. p.
548.
|
|
1113.
|
Schewiakoff, Wl., Ueber die karyokinetische
Kernteilung der Euglypha alveolata. In: Morph. Jahrb. Vol. 13. 1887–88.
|
|
1114.
|
Schlumberger, Zahlreiche Arbeiten über
Foraminiferen. 1875–1901.
|
|
1115.
|
Schultze, Max, Ueber den Organismus der
polythalamen Foraminiferen, nebst Bemerkungen über die Rhizopoden im
allgemeinen. 1854.
|
|
1116.
|
— Beobachtungen über die Fortpflanzung der Polythalamien.
In: Arch. Anat. Phys. wiss. Med. von Joh. Müller. Berlin 1856. p. 165.
|
|
1117.
|
— Die Gattung Cornuspira unter den Monothalamien, und
Bemerkungen über die Organisation und Fortpflanzung der Polythalamien. In:
Arch. Naturg. Jahrg. 1861. p. 287.
|
|
1118.
|
Schulze, F. E., Rhizopodenstudien III. In: Arch.
mikr. Anat. Vol. 9. 1875. p. 94.
|
|
1119.
|
— Rhizopodenstudien VI. In: Arch. mikr. Anat. Vol. 13.
1876. p. 9.
|
|
1120.
|
Staff, H. v., Die Anatomie und Physiologie der
Fusulinen. In: Zoologica. Vol. 22. 1910. H. 58. p. 93.
|
|
1121.
|
Swarzewsky, B., Zur Kenntnis der Allogromia ovoidea
(Rh.). In: Arch. f. Protistenk. Vol. 14. 1909. p. 395.
|
|
1122.
|
Winter, F., Zur Kenntnis der Thalamophoren. I.
Untersuchungen über Peneroplis pertusus (Forsk.). In: Arch. f. Protistenk.
Vol. 10. 1907, p. 1.
|
|
[S. 698]
1123.
|
Zülzer, M., Beiträge zur Kenntnis der Difflugia
urceolata Carter. In: Arch. f. Protistenk. Vol. 4. p. 240.
|
|
Radiolarien.
|
|
|
1124.
|
Borgert, A., Untersuchungen über die Fortpflanzung
der tripyleen Radiolarien, speziell von Aulacantha scolymantha. 1. Teil. In:
Zool. Jahrb. Abt. Anat. Vol. 14. 1900. p. 203.
|
|
1125.
|
Dasselbe. 2. Teil. In: Arch. f. Protistenk. Vol. 14. 1909.
p. 134.
|
|
1126.
|
— Mehrere Arbeiten über Familien der Tripyleen. In:
Ergebn. d. Planktonexpedition. Vol. 3. 1905–1911.
|
|
1127.
|
— Die nordischen Tripyleenarten. In: Nordisches Plankton.
No. 15. Kiel u. Leipzig 1901.
|
|
1128.
|
Brandt, K., Die koloniebildenden Radiolarien
(Sphärozoen) des Golfes von Neapel und der angrenzenden Meeresabschnitte. In:
Fauna u. Flora des Golfs von Neapel. 13. Monogr. 1885.
|
|
a) Dasselbe. Teil II. In: Arch. f. Protistenk. Vol. 14.
1909. p. 134–261.
|
|
|
1129.
|
— Beiträge zur Kenntnis der Colliden. In: Arch. f.
Protistenk. Vol. 1. 1902. p. 59.
|
|
1130.
|
— Zur Systematik der koloniebildenden Radiolarien. In:
Zool. Jahrb. Suppl. Vol. 8. 1905. p. 311.
|
|
1131.
|
Bütschli, O., Radiolarien. In: Bronns Klassen und
Ordnungen. Vol. 1. Protozoa. 1880–82 u. 1887–89.
|
|
1132.
|
— Beiträge zur Kenntnis der Radiolarienskelette,
insbesondere der Cyrtidae. In: Zeitschr. f. wiss. Zool. Vol. 36. 1881.
p. 685.
|
|
1133.
|
— Ueber die chemische Natur der Skelettsubstanz der
Acantharia. In: Zool. Anz. Vol. 30. 1906. p. 784, und in: Ergebn. d.
Deutsch. Südpolarexpedition. Vol. 9. Zool. Vol. 1. 1907. p. 237.
|
|
1134.
|
Cienkowsky, Z., Ueber Schwärmerbildung bei
Radiolarien. In: Arch. f. mikr. Anat. Vol. 7. 1871. p. 372.
|
|
1135.
|
Dreyer, F., Die Pylombildungen in
vergleichend-anatomischer und entwicklungsgeschichtlicher Beziehung. In:
Jen. Zeitschr. f. Naturw. Vol. 23. 1889. p. 77.
|
|
1136.
|
— Die Prinzipien der Gerüstbildung bei Rhizopoden,
Spongien und Echinodermen. Ibid. Vol. 26. 1892.
|
|
1137.
|
Fowler, G. H., Notes on the anatomy of Gazelletta.
In: Quart. Journ. Micr. Science. Vol. 48. 1904. p. 483.
|
|
1138.
|
Hartmann, M. und Hammer, E., Untersuchungen
über die Fortpflanzung von Radiolarien. In: Sitzungsber. der Ges. naturf.
Freunde. Jahrg. 1909. No. 4. p. 228.
|
|
1139.
|
Haeckel, E., Die Radiolarien. Eine Monographie. I.
1862. II. 1887.
|
|
1140.
|
— Report on the Radiolaria collected by H. M. S.
Challenger. In: Chall. Rep. Zool. Vol. 18. 1887.
|
|
1141.
|
Häcker, V., Tiefseeradiolarien. In: Wiss. Ergebn.
der Deutschen Tiefsee-Exped. a. d. Dampfer „Valdivia“. Vol. 14. 1908.
|
|
1142.
|
— Hierzu 10 vorläufige Mitteilungen, publ. an
verschiedenen Orten 1904–1907.
|
|
1143.
|
— Die Radiolarien in der Variations- und Artbildungslehre.
In: Zeitschr. f. indukt. Abstammungs- und Vererbungslehre. Vol. 1. 1909.
H. 1. p. 1.
|
|
1144.
|
— Vererbungs- und variationstheoretische Einzelfragen. I.
Ueber Transversionen. Ibid. Vol. 1. 1909. H. 5. p. 461–468.
|
|
1145.
|
— Ueber Chromosomen und Sporenbildung bei Radiolarien. In:
Verh. d. Deutsch. Zool. Ges. 1907.
|
|
1146.
|
— Zur Statik und Entwicklung des Coleographidenskelettes.
8. Mitteilung über die Radiolarien der „Valdivia“-Ausbeute. In: Arch. f.
Protistenk. Vol. 9. 1907.
|
|
1147.
|
Hertwig, R., Zur Histologie der Radiolarien.
Leipzig 1876.
|
|
1148.
|
— Der Organismus der Radiolarien. Jena 1879.
|
|
1149.
|
Huth, W., Ueber die Fortpflanzung von
Thalassicolla, nebst Bemerkungen zu der Arbeit von Moroff: „Vegetative und
reproduktive Erscheinungen bei Thalassicolla“ (vorl. Mitt.). In: Sitzungsber.
Ges. naturf. Freunde. 1911. p. 1.
|
|
1150.
|
Immermann, F., Ueber Fremdkörperskelette bei
Aulacanthiden. In: Zool. Anz. Vol. 27. 1903. p. 70.
|
|
1151.
|
Karawaiew, W., Beobachtungen über die Struktur und
Vermehrung von Aulacantha scolymantha. In: Zool. Anz. Vol. 18. 1895.
p. 286, 293.
|
|
1152.
|
Moroff, Th., Ueber vegetative und reproduktive
Erscheinungen bei Thalassicolla. In: Festschr. z. 60. Geb. R. Hertwigs. Vol.
1. 1910. p. 75. Jena, G. Fischer.
|
|
1153.
|
Moroff, Th. und Stiasny, G., Ueber den Bau
und die Fortpflanzung von Acanthometra. In: Centralbl. f. Physiol. Vol. 22.
1908. No. 19.
|
|
[S. 699]
1154.
|
— — Ueber den Bau und die Fortpflanzung von Acanthometra.
In: Centralbl. f. Physiol. Vol. 22. 1908. No. 19.
|
|
1155.
|
Müller, Johannes, Ueber die Thalassicollen,
Polycystinen und Acanthometren des Mittelmeers. In: Abhdl. K. Akad. d. Wiss.
Berlin 1858. p. 1.
|
|
1156.
|
Popofsky, A., Die Acantharia der
Plankton-Expedition. Teil I. Acantharia. In: Ergebn. Plankton-Exp. Vol. 3.
1904.
|
|
1157.
|
— Die nordischen Acantharien I. Nord. Plankton 3. Liefg.
Vol. 16. Acantharien 2. Teil. Nord. Plankton. 6. Liefg. Vol. 16. 1907.
Ebenda cf. Borgert, Schröder, Ueber andere Radiolariengruppen.
|
|
1158.
|
Schewiakoff, W., Beiträge zur Kenntnis der
Radiolaria-Acanthometrea. In: Mém. Acad. Imp. Sci. St. Pétersbourg.
Sér. 8. Vol. 12. 1902.
|
|
1159.
|
Schouteden, H., La formation des spores chez les
Thalassicolla (Radiolaires). In: Ann. de la Soc. Roy. Zool. et
Malacologique de Belgique. Vol. 42. 1907.
|
|
1160.
|
Schröder, O., Eine gestielte Acanthometride
(Podactinelius). In: Ergebn. der Deutschen Südpolarexpedition. Vol. 9. Zool.
Vol. 1. 1907. p. 225.
|
|
1161.
|
— Neue Radiolarien (Cytocladus gracilis und Cytocladus
major). Ibid. Vol. 9. 1906.
|
|
1162.
|
Stiasny, G., Zur Kenntnis der über gelben Zellen
der Sphaerozoen. In: Biol. Centralbl. Vol. 30. 1910. No. 13.
|
|
1163.
|
— Ueber die Beziehung der sog. „gelben Zellen“ zu den
koloniebildenden Radiolarien. (Ein Versuch.) In: Arch. f. Protistenk.
Vol. 19. 1910. p. 144.
|
[34] Wir schließen hier vorläufig die A. diploidea H. u. N. ein, welche während ihres ganzen vegetativen Lebens zweikernig ist, da erst abgewartet werden muß, ob sie nähere Beziehungen zu den echten Amöben besitzt.
[35] Dazu können in anderen Fällen noch weitere Formen kommen (s. u.). Schon Schaudinn selbst erwähnt, daß das oft gleichzeitig mit den Amöben vorkommende Flagellat Trichomonas intestinalis (s. o.) vor der Kopulation die Geißeln verliert und amöboid herumkriecht; dann ist es ebenfalls von einer Amöbe kaum zu unterscheiden. Es ist auch sehr wohl möglich — ja es finden sich in der Literatur bereits Andeutungen hierfür — daß sich im menschlichen Darm noch weitere Formen von parasitischen, eventuell sogar pathogenen Amöben werden nachweisen lassen.
[36] Er hat diese Gründe nicht in dieser Form aufgezählt, ich entnehme sie seinen Gesamtdarlegungen und mündlichen Aeußerungen.
[37] Kartulis benennt in dem Handbuch der pathogenen Mikroorganismen von Kolle und Wassermann, Ergänzungsband I, Jena, Fischer, 1906, die Amöbe mit einem neuen Namen Ent. maxillaris; da meine Benennung schon 1901 erfolgt war, so ist eine Umbenennung nach den zoologischen Nomenklaturgesetzen unzulässig, wenn ich auch sehr gern die Benennung der Art ihrem Entdecker überlassen hätte.
[38] Cienkowsky in: Arch. f. mikr. Anat, Vol. 12. 1876. p. 39; Schaudinn, in: Arb. aus dem Kais. Gesundheitsamt. Vol. 19. 1903. p. 547.
[S. 700]
III. Klasse.
Sporozoa Leuckart.
Die Klasse der Sporozoen umfaßt diejenigen Protozoen, welche einmal in ihrem Entwicklungskreis sich durch zahlreiche Sprößlinge vermehren, welche in einer festen Schale eingehüllt sind und so eine Spore darstellen. Diese Art der Fortpflanzung dient der Verbreitung der Art. Sämtliche Sporozoen sind Parasiten. In Fällen, wo besondere Anpassungen existieren, z. B. bei Wirtswechsel, kann die Sporenhülle auch fehlen. Die Sporenhülle kann die Sprößlinge in Ein- oder Mehrzahl enthalten. Generationswechsel ist bei den Sporozoen weit verbreitet. Sehr vielfach sind die Sporozoen Zellparasiten, viele dauernd, viele auch nur in den Jugendstadien.
Die Ernährung der Sporozoen erfolgt ausschließlich durch osmotische Aufnahme flüssiger Nahrung.
Die Sporozoen sind außerordentlich weit verbreitet und kommen als Parasiten bei allen Abteilungen der höheren Metazoen vor, vor allem bei Anneliden, Arthropoden, Tunicaten, Mollusken und Vertebraten. Bei manchen Arten findet man an gewissen Lokalitäten jedes Exemplar mit Sporozoen infiziert.
Auch diese Klasse des Tierreichs ist nicht als eine Gruppe von einheitlicher Abstammung aufzufassen; sie ist vorläufig noch eine künstlich zusammengestellte Klasse, deren beide Unterklassen offenbar verschiedene Verwandtschaftsbeziehungen haben. Trotzdem sind sie hier nicht getrennt als selbständige Klassen behandelt, da die verschiedene Abstammung noch ganz hypothetisch ist, und das Vorkommen von Zwischenformen nicht ausgeschlossen erscheint. Da sämtliche Angehörige der Klasse Parasiten sind, so sind sie von ihren etwa freilebend existierenden nächsten Verwandten durch eine weite Kluft getrennt.
Meist sind die Sporozoenspecies nur an eine oder wenige Wirtsspecies angepaßt. Sehr ausgebildet ist bei ihnen die verbreitetste Eigenschaft aller Parasiten (auch der metazoischen), eine möglichst große Nachkommenschaft zu erzeugen. Zu diesem Zwecke produzieren sie zahlreiche bewegliche Keime, welche aber in den meisten Fällen in feste Hüllen (Sporen) eingeschlossen sind; denn die Keime müssen meistens den Weg von dem einen Wirtstier zu dem nächsten, welches sie infizieren, durch ein Medium (z. B. Luft, Wasser) zurücklegen, [S. 701]welches ihnen ohne diesen Schutz tödlich sein würde. Sie erlangen dann ihre Beweglichkeit erst, wenn sie im neuen Wirt die Spore verlassen.
Wie schon oben bemerkt wurde, kann diese Hülle dadurch entbehrlich werden, daß die Keime nie in ein fremdes Medium gelangen, sondern direkt nur aus einem Tier in das andere; dies ist z. B. bei denjenigen Tieren der Fall, welche durch blutsaugende Insekten übertragen werden. Wir sehen also, daß die Keime, ob sie in Sporen eingeschlossen sind oder nicht, den Wirt, in welchem sie entstanden sind, verlassen müssen, um die Art auf einen neuen Wirt zu übertragen. Da sie somit der Verbreitung der Art auf viele Wirte dienen, habe ich die Vermehrungsform, welche sie darstellen, die propagative Fortpflanzung genannt.
Mit ihr pflegt noch eine zweite Form der Vermehrung zu alternieren, welche oft mit ihr durch Generationswechsel verknüpft ist; diese führt eine Erhöhung der Parasitenzahl in dem gleichen Wirtsindividuum herbei. Ich habe sie daher als multiplikative Fortpflanzung bezeichnet.
Wo diese letztere Fortpflanzungsart eine hohe Ausbildung erlangt hat, da wird das Sporozoon nicht selten aus einem relativ harmlosen Parasiten zum gefährlichen Krankheitserreger. Die große Mehrzahl der Sporozoen scheint jedoch aus relativ harmlosen Parasiten zu bestehen.
Die Ausdrücke propagative und multiplikative Fortpflanzung bezeichnen einen rein biologischen Gegensatz; wir können sie daher bei allen Abteilungen der Sporozoen, wo Entsprechendes vorkommt, anwenden. Die morphologische Erscheinungsweise dagegen ist bei den einzelnen Abteilungen sehr verschieden und verlangt im einzelnen Fall eine besondere Terminologie.
Während die Morphologie der propagativen Fortpflanzung uns ein Mittel zur Charakterisierung der großen Gruppen unter den Sporozoen an die Hand gibt, kann die multiplikative Fortpflanzung selbst bei nahe verwandten Formen sehr abweichende Bilder bieten.
Wir teilen nach Schaudinn die Sporozoen in die Unterklassen der
- Telosporidia und
- Neosporidia,
von denen die ersteren nur am Ende einer vegetativen Periode ihres Lebenskreises in Keimlinge zerfallen, die letzteren jedoch während der ganzen vegetativen Periode sporulieren können. Wie stets in der Natur, so gibt es auch von diesen Definitionen Ausnahmen.
Zur genauen Identifizierung einer Sporozoenspecies genügt selten ein vegetatives Stadium, obwohl dasselbe bei vielen Gruppen ein sehr charakteristisches Aussehen besitzt. Die besten Anhaltspunkte liefert die propagative Fortpflanzungsperiode, wobei insbesondere die Sporenform und -zahl charakteristisch sind. Doch ist gerade bei den sporenlosen Formen auch die Erscheinungsweise der multiplikativen Fortpflanzung sehr charakteristisch.
Während die Telosporidia offenbar mit Flagellaten näher verwandt sind, zeigen die Neosporidien engere Verwandtschaftsbeziehungen zu Rhizopoden. Hartmann hat diesen differenten Beziehungen dadurch Ausdruck gegeben, daß er die beiden Gruppen als gesonderte Klassen [S. 702]des Protozoenstammes aufführt. Ein solcher Schritt ist bei dem gegenwärtigen Stand unseres Wissens nicht notwendig; auch ist er ohne wesentliche praktische Bedeutung.
I. Unterklasse.
Telosporidia
Schaudinn.
Die Telosporidien sind im erwachsenen Zustand sämtlich einkernig, wenn auch bei einzelnen Formen vorübergehend etwas länger andauernde vielkernige Stadien auftreten.
Der Zerfall in Keimlinge erfolgt nur am Ende der vegetativen Periode, und zwar sind diese Keimlinge meist zu mehreren in eine Sporenhülle eingeschlossen. Eine Ausnahme in dieser Beziehung macht die an spezielle Lebensverhältnisse angepaßte Ordnung der Haemosporidia; bei ihnen fehlt die Sporenhülle[39].
Alle Telosporidien beginnen ihren Lebenskreis in dem neu infizierten Wirt, indem der Keimling — Sporozoit genannt — in eine Zelle oder wenigstens in das Gewebe desselben einwandert. In denselben wächst der Sporozoit heran und wird entweder direkt zu einem Geschlechtsindividuum oder, nachdem erst eine agame Vermehrung (multiplikative Fortpflanzung) vorausgegangen ist. Wo eine solche vorkommt, kann sie sich mehrere Male wiederholen, ehe geschlechtliche Formen auftreten. Die Befruchtung, welche entweder isogam oder anisogam verlaufen kann, liefert als Resultat eine einkernige Zelle, die Zygote, welche sich mit einer dünneren oder dickeren Cystenwand umgibt. Der Kern der Zygote vermehrt sich durch wiederholte Teilungen (ganz selten bleibt er zunächst einheitlich). Entweder sondert sich dann um jeden dieser Kerne eine Plasmaportion, aus welcher durch Abscheidung einer Hülle eine Spore entsteht, in welcher nun durch weitere Teilungen von Kern und Plasma eine bestimmte Anzahl von Keimlingen (Sporozoiten) entstehen; oder die Bildung der Sporenhülle unterbleibt, und die ganze einheitlich bleibende Masse zerfällt in zahlreiche Keimlinge (Sporozoiten).
In allen Fällen jedoch bleibt ein Teil von Protoplasma, welcher nicht in die Bildung der Keimlinge (Sporozoiten) aufgeht, als sogenannter Restkörper zurück. Auch hat vor der Befruchtung stets auf irgendeine Weise eine Reduktion des Kerns der Gameten stattgefunden.
Wir teilen die Telosporidia in folgende Ordnungen:
Vegetatives Stadium dauernd intracellulär; Befruchtung anisogam, Geschlechtsgeneration dauernd oder vorübergehend intracellulär:
I. Ordnung: Coccidiomorpha.
Vegetatives Stadium, wenn überhaupt, nur anfangs intracellulär, erwachsene Tiere extracellulär; Befruchtung anisogam oder isogam, befruchtete Formen stets dauernd extracellulär:
II. Ordnung: Gregarinida.
[S. 703]
I. Ordnung:
Coccidiomorpha
Doflein.
Während früher Coccidien und Hämosporidien stets als ziemlich voneinander abweichende Gruppen der Sporozoen betrachtet wurden, haben die neueren Entdeckungen ihre nahe Verwandtschaft wahrscheinlich gemacht. Dieselbe wurde besonders von Schaudinn betont. Immerhin hielt auch er noch die Trennung in zwei den Gregariniden gleichgestellte Ordnungen aufrecht.
Ich betrachte sie jedoch nur als Unterordnungen, welche besonders durch die Eigenschaft der Anisogamie, den sehr gleichartigen Generationswechsel und den spezifischen Zellparasitismus sich von den Gregariniden unterscheiden.
Wir haben also folgende Unterordnungen anzuführen:
Sporozoiten in Sporen eingehüllt. Zygote unbeweglich, meist bleibend intracellulär
I. Unterordnung: Coccidia Leuckart.
Sporozoiten stets frei, Zygote als Ookinet beweglich, in neue Zellen einwandernd:
II. Unterordnung: Haemosporidia Danilewski em. Schaudinn.
Neuerdings werden nach dem Vorschlag von Hartmann die Hämosporidien wieder von den Coccidien abgetrennt und den Flagellaten in der Nachbarschaft der Trypanosomen eingegliedert. Vgl. hierzu unten.
1. Unterordnung.
Coccidia Leuckart.
Die Coccidien sind fast sämtlich Zellschmarotzer, und zwar vorwiegend (vielleicht ausschließlich) Epithelzellschmarotzer[40]. In der Wirtszelle pflegt der eingewanderte Keimling (Sporozoit) heranzuwachsen, bis er dieselbe ausfüllt; infolgedessen stirbt häufig die Wirtszelle ab.
Die Gestalt der Coccidien ist sehr regelmäßig, wechselt allerdings einigermaßen nach dem Stadium, in welchem das Tier sich befindet. Wie immer bei allen Organismen, geht man bei der Schilderung von dem erwachsenen vegetativen Stadium aus. Dasselbe ist kuglig, oval oder ellipsoid geformt; es gibt Formen, welche mehr als dreimal so lang wie breit sind. Anhangsgebilde irgendwelcher Art gibt es nicht; Bewegungsorgane sind gänzlich unbekannt.
Da dieses Stadium sich stets im Innern einer Wirtszelle befindet, also keine Bewegungs- oder Schutzvorrichtungen notwendig sind, so finden wir keine deutliche Differenzierung von Ekto- und Entoplasma. Das Plasma zeigt meist eine fein granulierte Beschaffenheit, auch eine alveoläre Anordnung ist schon im Leben zu erkennen. Denn vielfach sind diese Stadien sehr schön durchsichtig. Entsprechend der osmotischen Ernährungsweise und dem raschen Wachstum, welches keine Anhäufung von Reservekörpern zuläßt, ist das Plasma frei von besonderen Inhaltskörpern.
[S. 704]
Ein Kern liegt ungefähr in der Mitte des Körpers; derselbe ist bläschenförmig und enthält einen stark färbbaren zentralen Binnenkörper, welchem Schaudinn wegen seiner besonderen Eigenschaften den Namen eines Karyosoms beigelegt hat.
Kontraktile Vakuolen kommen nicht vor. Die Fortpflanzung verläuft bei allen genauer bekannten Arten in der Form eines Generationswechsels zwischen geschlechtlich und ungeschlechtlich sich fortpflanzenden Stadien. Es empfiehlt sich, den Entwicklungskreis einer typischen Form unseren Betrachtungen zugrunde zu legen.
Wir wählen hierzu die von Schaudinn so ausgezeichnet studierte Eimeria (= Coccidium) Schubergi Schaudinn aus dem Darm von Lithobius forficatus.
Ein Keimling (Sporozoit) wandert in eine Epithelzelle ein (Fig. 626, I u. II) und verändert dort alsbald seine längliche oder sichelförmige Gestalt, indem er rundlich, kuglig wird (Fig. 626, III u. IV). Es folgt seine Wachstumsperiode. Nach kurzer Zeit schon beginnt der Kern des herangewachsenen Coccidiums sich zu teilen, es entsteht ein vielkerniges Stadium (Fig. 626, V u. VI). Dann gliedert sich um jeden Kern ein Teil des Protoplasmas ab; die entstehenden Gebilde ordnen sich rosettenförmig um den zentralen Teil, welcher als Restkörper kernlos zurückbleibt und abstirbt (Fig. 626, VII). Die Teilprodukte sind annähernd keulenförmig gestaltet. Sie sind lebhaft beweglich und wandern aus ihrer Wirtszelle aus, um neue Epithelzellen zu infizieren. Ein Teilsprößling kann nun wieder zur Teilung schreiten, oft ohne erst erheblich heranzuwachsen; dann gibt er nur wenigen neuen Sprößlingen den Ursprung, oder er wächst auch zur vollen Größe heran. Die Wiederholung des Vorganges ist in Fig. 626 durch den von VIII zu II zurückkehrenden Pfeil angedeutet.
Diese Periode ungeschlechtlicher Vermehrung faßt man unter dem Namen der Agamogonie zusammen; in der Literatur wird sie auch vielfach nach dem Vorbild von Schaudinn als Schizogonie bezeichnet (vgl. S. 225). Sie dient vorwiegend der Autoinfektion im Wirtstier, also der multiplikativen Fortpflanzung[41]. Mit der Agamogonie wechselt aber eine zweite Art der Fortpflanzung regelmäßig ab; denn die Agamogonie wird im gleichen Zeugungskreis nur wenige Male wiederholt.
Hat sich die Agamogonie einigemal wiederholt, so scheint die Teilungskraft des Individuums erschöpft zu sein, es würde absterben, wenn nicht die Erhaltung der Art durch die Befruchtung gesichert wäre.
Bei den Coccidien führt zu dem bezeichneten Ziel die Ausbildung eines geschlechtlichen Dimorphismus. Die zunächst ungeschlechtlichen Teilprodukte von Individuen, deren Fähigkeit zu Agamogonie erschöpft ist, können ein zweifaches Schicksal haben. Sie wachsen abermals zu ziemlich ansehnlichen Kugeln heran, aber die einen von diesen sind undurchsichtig, enthalten reichlich Reservestoffe, während die anderen ein reines, dicht gefügtes Plasma besitzen (Fig. 626, XIa, XIb, XIIa, XIIb). (Im erwachsenen Zustand bezeichnet man die ersteren auch als Makrogametocyten, die letzteren als Mikrogametocyten.)
[S. 706]
Die ersteren werden zu den weiblichen Gameten, indem der Kern seine Substanz durch Ausstoßung des Karyosoms reduziert. Die letzteren werden durch einen merkwürdigen multiplen Kernteilungsprozeß vielkernig. Jeder von den zahlreichen Kernen rückt an die Oberfläche, sammelt um sich eine Portion von Plasma, diese Plasmaportionen schnüren sich als kleine sichelförmige Körperchen ab, während der größere Teil des Zellplasmas als Restkörper in der Mitte zurückbleibt. Auch bei der Entstehung dieser männlichen Gameten, welche alsbald zwei Geißeln bilden, mit welchen sie sich lebhaft bewegen, geht das Karyosom verloren (Fig. 626, XI c, XII c und d).
Wir sehen also zwei Arten von Gameten entstehen, welche sich schon durch ihre Größe erheblich voneinander unterscheiden (Fig. 626, XIII). Dieser Größenunterschied hat auch die Benennungen verursacht, indem die großen (weiblichen) als Makrogameten, die kleinen (männlichen) als Mikrogameten bezeichnet werden.
In derselben Weise nun, wie zwischen Ei und Spermatozoon bei den Metazoen, erfolgt bei den Coccidien die Kopulation von Makro- und Mikrogamet, deren Resultat die Befruchtung ist.
Sobald nämlich die Mikrogameten frei geworden sind und ihre Geißeln zu bewegen vermögen, folgen sie den Anziehungskräften der Makrogameten und suchen dieselben auf. Der Mikrogamet dringt in den Makrogameten ein (Fig. 626, XIV); sowie ein solcher eingedrungen ist, umgibt sich sofort der Makrogamet mit einer festen Hülle, welche jeden weiteren Mikrogameten am Eindringen verhindert. Darauf vereinigen sich die Kerne des männlichen und weiblichen Elementes, und wir bezeichnen den befruchteten Makrogameten als Zygote (vielfach findet man auch statt dessen speziell für Coccidien den Ausdruck Oocyste, da sie sich bei ihnen mit einer festen Cystenhülle umgibt (Fig. 626, XV).
Die Oocyste bildet den Ausgangspunkt für die propagative Fortpflanzung, indem in ihr (durch metagame Teilungsvorgänge) die Sporen gebildet werden. Man bezeichnet den Vorgang der Sporenbildung auch als Sporogonie und stellt damit die an die Befruchtung anschließende Fortpflanzungsform im Gegensatz zur ungeschlechtlichen Schizogonie.
Wie bei den meisten Coccidien wird die encystierte Zygote (die Oocyste) mit dem Kot des Wirtes entleert, und die Sporogonie erfolgt erst in der freien Natur.
Sie läuft folgendermaßen ab: Der Kern der Zygote teilt sich erst in zwei Tochterkerne, dann diese noch einmal, so daß vier Kerne resultieren (Fig. 626, XVI u. XVII). Diese verteilen sich regelmäßig im Plasma der Zygote, das letztere zerfällt in vier gleiche Teile, die Sporoblasten (Fig. 626, XVIII) genannt, da sie sich mit einer festen Schale umgeben und zu den Sporen[42] werden (Fig. 626, XIX). Die Hülle ist so hart und undurchlässig, daß die Sporen mit dem Kote des Wirtstieres austrocknen können, ohne ihre Lebensfähigkeit zu verlieren.
Jede der vier Sporen enthält also zunächst einen Kern; derselbe teilt sich alsbald in zwei Tochterkerne, und das Plasma der Spore [S. 707]teilt sich in zwei sichelförmige Keime, wobei ein großer Restkörper zurückbleibt (Fig. 626, XIX).
Diese sichelförmigen Keime oder Sporozoiten kriechen aus der Spore aus, wenn dieselbe in den Darm des richtigen Wirtes gelangt und daselbst unter dem Einfluß der Darmsäfte platzt (Fig. 626, XX). Die Sporozoiten bohren sich dann in die Epithelzellen des Darmes ein, und der Kreislauf beginnt von neuem; denn mit diesem Stadium ist der Entwicklungskreis oder Zeugungskreis der Art geschlossen.
Wir schließen noch eine Uebersicht der Entwicklung nach Lühe (mit Abänderungen) hier an, welche sehr geeignet ist, um die Beziehungen der einzelnen Formen zueinander mit einem Blick zu übersehen. Zugleich gibt sie die wichtigsten in der Literatur für Entwicklungsstadien von Coccidien angewandten Bezeichnungen. Die senkrecht untereinander gestellten Stadien, durch einen Strich verbunden, sind durch Vermehrung, die nebeneinander stehenden, durch zwei Striche verbunden, sind durch Wachstum oder Umwandlung auseinander hervorgegangen. Wir führen diese etwas umständliche Terminologie hier an, um etwaige Beschäftigung mit den Spezialarbeiten zu erleichtern. Im übrigen vergleiche man für die Terminologie S. 225.
|
Schizogonie
= Agamogonie multiplikative Fortpflanzung (mehrfach wiederholt) |
 |
Sporozoit = Schizont (erwachsenes agames Coccidium)
|
||
|
|
|
||||
|
Merozoit = Schizont (vermittelt die Autoinfektion)
|
||||
|
(Teilprodukt) |
(junges agames | Coccidium) | |
|
Schizont (Schizogonie bald
erlöschend) |
||
|
Merozoit =
|
Mikrogametocyt
|
|||
|
\
|
||||
|
Makrogamet + Mikrogamet
|
||||
|
||||
|
Sporogonie
(propagative Fortpflanzung) |
|
Copula = Oocyste (Sporont)
|
||
|
= Zygote |
|
||||
|
Sporoblast = Spore
|
||||
|
|
|
||||
|
Sporozoit
|
||||
|
(vermittelt die Neuinfektion)
|
||||
Die Stadien der Agamogonie kannte man zwar schon lange, aber man hielt sie für besondere Arten, welche in die Gattungen Eimeria, Pfeifferella usw. eingereiht wurden. Bei den Synonymieangaben, in der Aufzählung von Vertretern der Coccidien S. 713 ff. sind die Benennungen dieser Stadien immer unter Voraussetzung von (Schiz.) = Schizogonie aufgeführt.
Bei den verschiedenen Gattungen und Familien der Coccidien kommen erhebliche Abweichungen von dem als Typus dargestellten Zeugungskreis von Eimeria Schubergi vor. Dieselben beziehen sich vor allem auf folgende Punkte:
1) Geschlechtlicher Dimorphismus der Agameten ist für eine Anzahl von Formen angegeben (vgl. unten Cyclospora und Adelea).
2) Komplikation bei der Entwicklung der Mikrogameten und der Teilung der Agameten, indem jedes Individuum in eine Anzahl von Sekundärindividuen zerfällt, welche erst die definitiven Teilungsprodukte [S. 708]erzeugen, während die Bildung der Makrogameten dem üblichen Typus entspricht (vgl. unten Caryotropha S. 737).
3) Die Reduktionsvorgänge an den Kernen der Gametocyten erfolgen in verschiedener Weise und zu verschiedenen Zeitpunkten.
4) Im Gegensatz zu den übrigen Coccidien geht bei den Adeleiden (s. u. S. 740) der Befruchtung eine oft frühzeitige Syzygienbildung von Makro- und Mikrogametocyt voran. Bei der Reifung bildet der letztere nur 4 Mikrogameten, welche bei mehreren Gattungen geißellos sind. Die Syzygienbildung stellt mindestens eine interessante Konvergenzerscheinung zu den Verhältnissen bei den Gregarinen dar.
5) Der Zeitpunkt, in welchem sich die Cystenhülle des Makrogameten bildet (ob vor oder nach der Befruchtung), die Bildungsweise der Sporen, die Zahl derselben und die Zahl der von ihnen umschlossenen Sporozoiten, das Vorhandensein oder Fehlen eines Restkörpers in Oocyste und Spore und schließlich die Oeffnungsweise der letzteren bilden Merkmale für die Unterscheidung von Gattungen, Untergattungen und Arten.
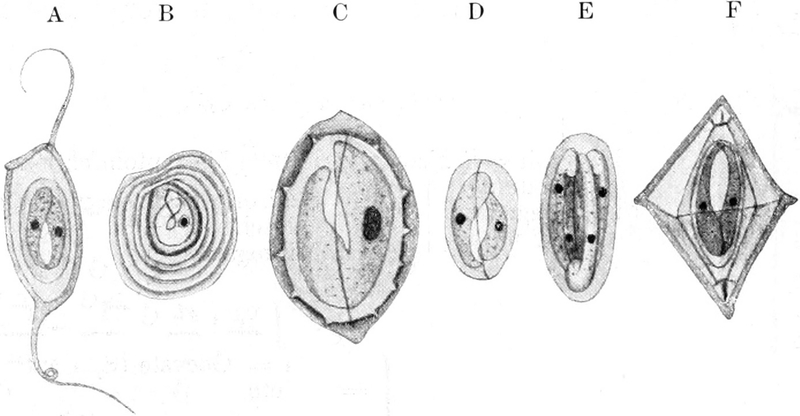
Alle Coccidien ernähren sich auf osmotischem Wege, indem sie die Säfte der befallenen Zelle aufsaugen und verwenden. Die Einzelheiten dieses Vorganges sind mit unserer gegenwärtigen Technik nicht zu verfolgen. Jedes einzelne Stadium wächst auf Kosten der befallenen Zelle heran, und je größer das Coccidium wird, desto mehr nimmt der Zellleib der befallenen Zelle an Masse ab, bis er schließlich ganz zusammengedrängt ist, und auch der Kern degeneriert. Das Plasma war schon vorher allmählich degeneriert, und zwar, wie es scheint, meist in der Form der fettigen Degeneration.
Besonders die rasch aufeinanderfolgenden, rasch und stark wachsenden agamen Generationen schädigen in dieser Weise den befallenen Organismus stark. Auf ihnen beruht auch die pathologische Bedeutung der Coccidien. Wenn sie in hinreichend großer Zahl vorhanden sind, vermögen sie das Gewebe des befallenen Organs so gründlich zu zerstören, daß schwere Erkrankungen und selbst der Tod eintreten können. Da die Sporen sehr bald infektionsfähig [S. 709]sind, so kann sich die Coccidiose sehr rasch in einer Herde von empfänglichen Tieren verbreiten, wobei es zu einem massenhaften Sterben derselben kommen kann.
Was nun die Verbreitung der Coccidien im Wirt anlangt, so können sie in den verschiedensten Organen vorkommen. In den meisten Fällen scheinen sie sich allerdings, wie schon erwähnt, auf Epithelzellen zu beschränken.
Man hat sie deshalb sogar direkt als monophage (vgl. S. 287) Zellparasiten bezeichnet, was aber nicht ganz zutrifft, schon deswegen nicht, weil es gelegentlich vorkommt, daß eine Coccidienart in einer anderen schmarotzt.
Die meisten Formen sind bisher in den Epithelien des Darmes und seiner Anhangsorgane gefunden worden. Man findet sie also in der Darmwand, aber auch sonst in der Schleimhaut des ganzen Magendarmsystems (Mundhöhle, Kehlkopf, Nase, Rachen, Speiseröhre, Magen, Darm in seinen sämtlichen Teilen). Sehr häufig sind Leber- und Gallengänge befallen, bei Insekten die Malpighischen Gefäße und der Fettkörper. Die Milz wird selten infiziert, häufig jedoch die Niere und der Hoden. Im letzteren Fall ist auch das Vas deferens den Angriffen des Schmarotzers ausgesetzt.
Nach einigen Angaben kommen die Coccidien auch in der Haut, in der Muskulatur, im Bindegewebe, im Mesenterium und den Mesenterialdrüsen vor. Sie würden also nicht als ganz obligatorische Epithelzellparasiten zu bezeichnen sein.
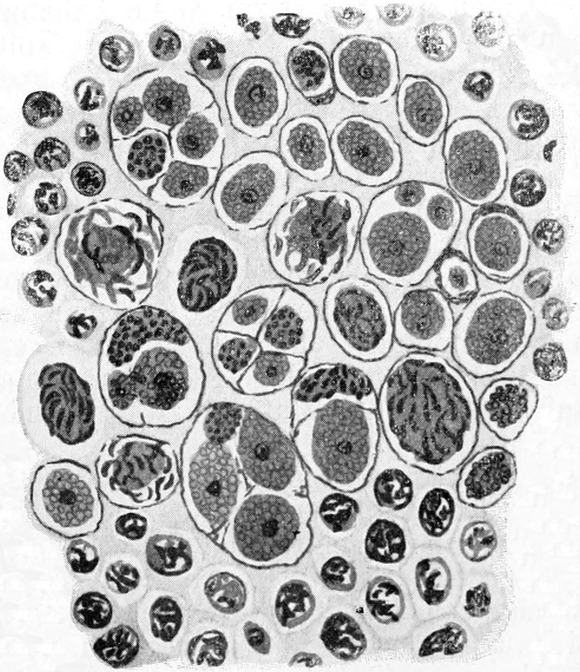
Einige wenige Formen sind extracellulär während ihres ganzen Lebens oder während der wichtigsten Teile desselben: Cryptosporidium muris Tyzzer, Eimeria mitraria Lav. u. Mesn. u. Orcheobius herpobdellae (Kunze). Das ändert natürlich nichts an dem Gesamtcharakter der Ordnung, welche fast ausschließlich von Zellschmarotzern gebildet wird.
Coccidien sind bisher gefunden worden in: Würmern, Myriopoden, Insekten, Mollusken, Fischen, Amphibien, Reptilien, Vögeln, Säugetieren, auch in Menschen.
Die rasch wachsenden, lebhaft im Wirt durch Schizogonie sich vermehrenden Coccidien sind sehr gefährliche Parasiten. Indem sie das ganze Epithel eines Organs oder mehrere, ja zahlreiche Organsysteme eines Tieres überschwemmen, können sie so zahlreiche Zellen zerstören, daß schwere Erkrankungen entstehen. In allen diesen [S. 710]Fällen handelt es sich um Hypertrophie und nachfolgende Degenerationen der Zellen.
Welch schwere Erkrankungen durch solche Gewebedefekte herbeigeführt werden können, dafür sind die Coccidiosen der Kaninchen, Menschen, Rinder (rote Ruhr, S. 728), der Maulwürfe, Gänse etc. wichtige Beispiele. Es ist wohl kaum nötig, hervorzuheben, daß wahrscheinlich in allen diesen Fällen außerdem noch die Wirte schädigende Stoffwechselprodukte auftreten.
Die Infektion mit Coccidien führt manchmal zu regenerativen und hyperregenerativen Wucherungsprozessen im Gewebe, welche früher manchmal zu Vergleichen mit den Gewebewucherungen in bösartigen Geschwülsten veranlaßt haben. Doch sind solche Wucherungen nie sehr weitgehend und kommen meist bald zum Stillstand.
Ueberhaupt sind den Coccidiosen meist für ihre pathogene Wirkung relativ enge Grenzen natürlicher Art gesetzt. Ist die Infektion nicht so intensiv, daß sie durch akute Erkrankung den raschen Tod des betroffenen Individuums veranlaßt, so nimmt die Erkrankung bald an Intensität ab, indem die Coccidien nach einer Anzahl von agamen Generationen zur Gametenbildung, Befruchtung und darauf zur Bildung der Sporen übergehen. Letztere werden meist bald aus dem Körper entleert; aber auch wenn dies nicht der Fall ist, so sind sie als Ruhestadien inaktiv und ohne weiteren schädigenden Einfluß auf den Wirt. Indem allmählich alle Coccidien gleichen Ursprunges und relativen Alters diese Phase durchmachen, kann — wenn keine neue Infektion hindernd dazwischentritt — natürliche Heilung auf einfachste Weise erfolgen. Unter natürlichen Verhältnissen, welche meist keine sehr schweren Infektionen bedingen, scheint dies die Regel zu sein.
Aehnlich wie die meisten Gregarinen, beschränken sich die meisten Coccidien auf den Darm, seine Anhangsorgane oder die nächstbenachbarten Gebiete des Körpers. Die Infektion neuer Wirte wird durch die Nahrungsaufnahme vermittelt, und das hat bei unkompliziertem Verlauf der Infektionserscheinungen diese Beschränkung auf jene Regionen zur Folge.
Schon in der vorigen Auflage dieses Werkes wies ich auf die Tatsache hin, daß manche Coccidien sich auch gelegentlich im Blut ihrer Wirte finden. So ist bekannt, daß Isospora Lieberkühni die Blutbahn zur Ausbreitung über die verschiedenen Organe des Wirts vom Darm aus benützt. Und wie schon Lühe hervorhebt, ist es nicht unmöglich, daß manche als Drepanidien etc. beschriebene, frei im Blutstrom gefundene Parasiten von sporozoiten-ähnlichem Aussehen auf solche in der Blutbahn zirkulierende Stadien von Coccidien zurückzuführen sind.
Es wäre sehr erstaunlich, wenn solche Stadien nicht auch in den Blutzellen gefunden würden. Und in der Tat, man findet in den Leukocyten verschiedener Tiere nicht selten Gebilde, welche sehr an solche Coccidienstadien erinnern. In manchen Fällen sind das Stadien, welche von den Phagocyten gefressen wurden, in anderen handelt es sich um Parasiten, welche ähnlich wie wir dies früher von den Leishmanien (S. 414 und 467) kennen lernten, die Schutzkräfte selbst der Phagocyten zu übertrumpfen vermochten und deren spezifische Parasiten geworden sind. Dazu gehören die Leukocytogregarinen (S. 753) und wahrscheinlich auch die Leukocytozoen (S. 764).
[S. 711]
Aber auch die roten Blutzellen werden von zu den Coccidien gehörigen Parasiten befallen. Die Hämogregarinen sind wenigstens zum Teil sicher echte Coccidien (vgl. S. 746). Alle diese Formen lassen ihre Natur als sekundäre Blutparasiten vielleicht auch daran erkennen, daß sie ihre Vermehrungsstadien stets in den inneren Organen ihrer Wirte durchmachen.
Die Coccidiennatur dieser Formen ist stets wenigstens in gewissen Stadien an dem Besitz fester Hüllen erkennbar. Von ihnen wären eventuell die Hämosporidien abzuleiten, welche durch weitergehende Anpassung an den Parasitismus die Fähigkeit zur Hüllenbildung und dadurch das allgemeinste Kennzeichen der Sporozoennatur eingebüßt haben. Näheres über die mit der Abstammung der Hämosporidien zusammenhängenden Probleme wurde schon oben S. 411 u. 450 ff. erörtert und findet sich weiter unten bei den Hämogregarinen S. 746, sowie bei den Hämosporidien S. 795.
Die Coccidien sind jedenfalls über die ganze Erde verbreitet, doch sind sie bisher hauptsächlich in Europa beobachtet worden.
Nach der Anzahl der Sporen, welche die Oocyste enthält, teilte man bisher die Coccidien meist in 4 Familien:
2 Sporen
4 Sporen
n Sporen (wobei sogar bei derselben Art die Anzahl der Sporen variieren kann
Keine Sporen, Sporozoiten frei in der Oocyste:
Die seither erfolgte bedeutende Vermehrung unserer Kenntnisse von dem Zeugungskreis der Coccidien hat Lühe zur Aufstellung eines neuen Systems veranlaßt, welches außer den Eigenschaften der Sporen auch die wichtigsten Eigentümlichkeiten des gesamten Zeugungskreises berücksichtigt. Ich folgte in der 2. Auflage diesem System, da ich es für natürlicher hielt, wenn es mir auch nicht sicher schien, daß die Familie der Caryotrophidae volle Berechtigung hat. Nach Lühe werden die Coccidien eingeteilt in folgende Familien:
Die rastlose Forschungstätigkeit hat nun auch neue Coccidien kennen gelehrt und altbekannte Formen sind genauer erforscht worden. Das hat zur Folge gehabt, daß auch das System der Coccidien eine weitere Verbesserung erfahren kann. Ein rationelles System ist von dem hervorragenden Sporozoenforscher Léger vorgeschlagen worden, welches die Vorzüge des Lüheschen Systems mit den klassifikatorischen Merkmalen des alten Légerschen System in vorzüglicher Weise vereinigt. Die Zahl der aus einer Oocyste hervorgehenden Sporen und die Zahl der in diesen enthaltenen Sporozoiten sind die leitenden Merkmale für die Abgrenzung der Familien und Familiengruppen, während die größeren Abteilungen, die Legionen, durch die Eigenart der sexuellen Fortpflanzung charakterisiert sind. Ich gebe in der nachfolgenden Tabelle eine Uebersicht dieses Légerschen Systems, wobei ich hervorhebe, daß die etwas künstliche Anordnung nach der Sporozoitenzahl nicht den eigentlichen Vorzug dieses Systems darstellt, aber geeignet ist, in einer bequemen Weise den Ueberblick zu erleichtern.
[S. 712]
Klassifikation der Coccidien.
|
1. Legion
Eimeridae |
|
1. Gruppe
Tetrazoica (die Oocyste umschließt im ganzen 4 Sporozoiten, und zwar:) |
|
1 Spore mit 4
Sporozoiten |
Cryoptosporidae |
|
 |
|
2 Sporen mit je 2
Sporozoiten |
Cyclosporidae |
|
 |
||||
|
2. Gruppe
Octozoica (die Oocyste umschließt 8 Sporozoiten und zwar:) |
|
1 Spore mit 8
Sporozoiten |
Caryosporidae |
|
 |
||
|
2 Sporen mit je 4
Sporozoiten |
Diplosporidae
= Isosporidae |
|
 |
||||
|
4 Sporen mit je 2
Sporozoiten |
Eimeridae |
|
 |
||||
|
3. Gruppe
Polyzoica (die Oocyste umschließt n Sporozoiten, und zwar:) |
|
n Sporen mit je einem
Sporozoiten |
Barrouxidae |
|
 |
||
|
n Sporen mit je 12
Sporozoiten |
Caryotrophidae |
|
 |
||||
|
4 Sporen mit je n
Sporozoiten |
Angeiocystidae
|
|
 |
||||
|
2. Legion
Adeleidea |
|
1. Gruppe
Octozoica (die Oocyste umschließt 8 Sporozoiten, und zwar:) |
|
1 Spore mit 8
Sporozoiten |
Haemogregarinidae |
|
 |
|
2. Gruppe
Polyzoiea (die Oocyste umschließt n Sporozoiten, und zwar:) |
|
1 Spore mit n
Sporozoiten |
Legerellidae |
|
 |
||
|
n Sporen mit je 2, 4
oder n Sporozoiten |
Adeleidae |
|
 |
||||
 |
[S. 713]
Ich habe den Eindruck, als sei in diesem Entwurf des Systems den untergeordneten Kategorien ein zu großer Wert beigelegt; was hier als Familien bezeichnet erscheint, dürfte wohl nur den systematischen Wert von Gattungen besitzen. Ich behalte daher im nachfolgenden die Eimeriden und Adeleiden als Familien bei, ordne jedoch die Gattungen in der Reihenfolge an, welche der Légerschen Tabelle entspricht.
1. Familie: Eimeridae Lühe em. Léger.
Die Eimeriden sind Coccidien mit ungefähr gleich großen Makro- und Mikrogametocyten, welche getrennt voneinander reifen, keine Syzygien vor der Kopulation bilden; je ein Mikrogametocyt bringt zahlreiche Mikrogameten hervor, welche sich mit Hilfe von zwei freien Geißeln bewegen. Die Agameten zerfallen direkt in die jungen Agameten, die Mikrogametocyten direkt in die Mikrogameten (vgl. dagegen unten die Familie Caryotrophidae).
Die typische Entwicklungsgeschichte einer Art dieser Familie ist oben für Eimeria (Coccidium) Schubergi Sch. angegeben worden.
Wir erwähnen folgende Gattungen und Arten:
Gattung: Cryptosporidium Tyzzer.
Cryptosporidium muris Tyzzer.
|
1908.
|
Tyzzer, E., A Sporozoan found
in the peptic glands of the common mouse. In: Proc. Soc. f. exp. Biol. and
Med. Vol. 5. No. 1. p. 12.
|
|
1910.
|
Tyzzer, E., An extracellular
Coccidium, Cryptosporidium muris of the gastric glands of the common mouse.
In: Journ. med. research. Vol. 23. No. 3. p. 87.
|
Diese Form verdient unser Interesse vor allem wegen ihrer extracellulären Lebensweise; sie macht alle Stadien am Drüsenepithel der Magendrüsen der Hausmaus durch. Die Gattung ist definiert dadurch, daß eine Sporenhülle fehlt oder sich der Oocystenhülle dicht anlegt, so daß man nur eine einzige Spore mit 4 Sporozoiten unterscheiden kann. Die Agameten messen 7 auf 6 µ. Sie zerfallen in 8 Sprößlinge. Die Mikrogametocyten erzeugen 16 fadenförmige Mikrogameten. Der stark granulierte, auch Paraglykogen enthaltende Makrogamet wandelt sich nach der Befruchtung in die 7 auf 5 µ messende Oocyste mit ihren 4 Sporozoiten um. Letztere sind gebogen und messen 12–14 µ. Da die Sporen sich im Magen noch öffnen können, findet bei dieser Art wohl Autoinfektion durch Sporen statt.
Die Art ist in weiter Verbreitung, jedoch nur bei den zahmen Varietäten der Hausmaus nachgewiesen worden (Tanzmaus, weiße Mäuse etc.).
Gattung: Cyclospora Aimé Schneider.
Bei dieser Gattung finden sich in der reifen Oocyste 2 Sporen mit nur je 2 Sporozoiten. Der Makrogamet umgibt sich erst nach der Befruchtung mit einer Hülle. Die Sporen sind oval oder spindelförmig, ihre Schale besteht aus zwei Klappen. Besonders charakteristisch ist der Dimorphismus der Agameten; es lassen sich männliche und weibliche Agameten unterscheiden.
[S. 714]
Cyclospora caryolytica Schaudinn.
|
1902.
|
Schaudinn, Studien über
krankheitserregende Protozoen. I. Cyclospora caryolytica, der Erreger der
perniziösen Enteritis des Maulwurfs. In: Arb. Kais. Gesundheitsamt. Vol.
18. p. 378.
|
Die typische Art der Gattung Cyclospora glomericola Ai. Schneider aus dem Darm des Myriopoden Glomeris sp. aus Südfrankreich ist noch wenig erforscht.
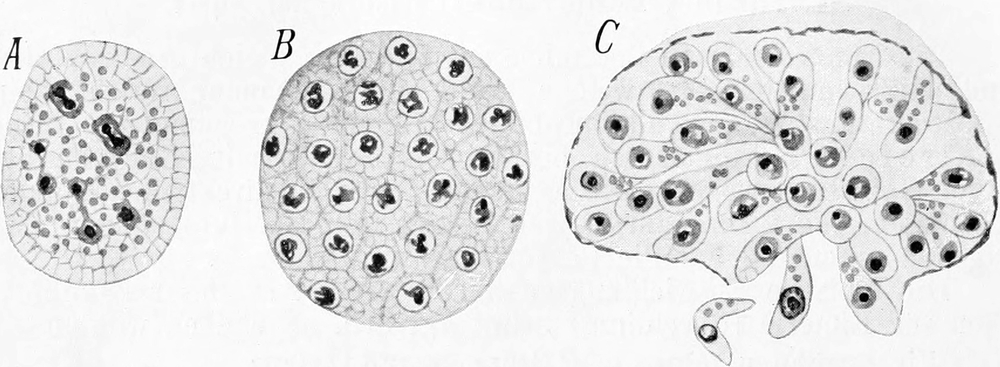
Um so genauer ist durch Schaudinn C. caryolytica bekannt geworden, welche als Zellkernparasit in den Darmepithelzellen des Maulwurfs vorkommt. Bei ihr ist von besonderem Interesse der ausgesprochene sexuelle Dimorphismus der Agameten. Die aus den Sporozoiten entstehenden Individuen lassen während des Wachstums bald Unterschiede erkennen, welche uns erlauben, die einen von ihnen als männliche, die anderen als weibliche Agameten zu bezeichnen (vgl. hierzu auch p. 205).
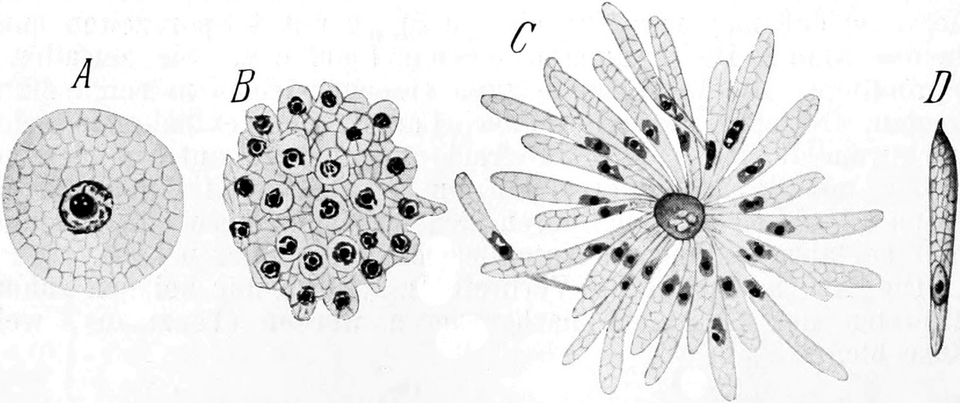
Die männlichen Agameten wachsen relativ langsam und speichern in ihrem Plasma zahlreiche stark lichtbrechende Körner auf. Der Kern vermehrt sich durch Mitose, und es erfolgt eine Teilung nach Art einer superfiziellen Furchung, indem die entstehenden jungen [S. 715]Agameten sich nicht über die Oberfläche des Muttertieres vorwölben. Bei der Trennung der Sprößlinge bleibt kein Restkörper zurück. Die jungen ♂ Agameten haben eine gedrungene Form, der Kern liegt im vorderen Drittel des Körpers, während jedes Individuum im hinteren Drittel des Körpers einige der stark lichtbrechenden Körperchen mitbekommt (Fig. 629).
Die weiblichen Agameten wachsen viel rascher heran, indem sie schon nach 4–5 Stunden fortpflanzungsfähig sind; sie haben ein klares Plasma ohne Reservestoffe. Die Kernvermehrung erfolgt wie bei den männlichen Formen. Der Modus der Zellteilung ist jedoch abweichend. Wie aus Fig. 630 B zu ersehen ist, wölben sich die um die Kerne entstandenen Plasmaportionen knospenartig vor und erfahren im Verlauf der Entwicklung eine starke Längsstreckung (Fig. 630 C). Zum Schluß sind sie in Form einer zierlichen Rosette um den stets deutlichen Restkörper angesammelt. Die jungen ♀ Agameten haben den Kern im hinteren Drittel des Körpers.
4–5 Tage nach der Infektion treten ziemlich plötzlich die Geschlechtsformen auf, am 6. Tag findet man nur noch ganz vereinzelte Agameten.
[S. 716]
Die Mikrogametocyten erzeugen nach einem eigenartigen Kernvermehrungsvorgang zahlreiche zweigeißelige Mikrogameten, in denen übrigens ein Blepharoplast an der Geißelbasis erkennbar ist. Bei der Bildung der Mikrogameten werden die Granulationen im Plasma aufgebraucht.
Die Makrogametocyten wachsen langsam und erreichen nur eine geringe Größe; sie speichern im Plasma viel dotterähnliches Reservematerial auf. Der Kern macht zwei Reifungsteilungen durch; im Plasma liegen dann 3 Kerne (Fig. 631 A), von denen 2 später zugrunde gehen, während der dritte durch einen eindringenden Mikrogameten befruchtet wird.
Da die Hülle des Makrogameten nach der Befruchtung sehr langsam gebildet wird, so tritt in der Regel Polyspermie ein. Doch vereinigt sich nur ein Mikrogamet mit dem Kern des Makrogameten. Die anderen gehen zugrunde und werden gleich den Reduktionskernen vom Plasma bald resorbiert.
Die Sporenbildung erfolgt ähnlich wie bei den Eimerien, doch enthält jede Spore nur 2 Sporozoiten. Die Sporenhülle ist zweiklappig, die Oocystenhülle dagegen wird von den Sporozoiten durch eine Mikropyle verlassen.
C. caryolytica erzeugt bei dem Maulwurf eine schwere Darmerkrankung mit Diarrhöen; die Krankheitserscheinungen werden vorwiegend durch die agame Fortpflanzung bedingt. Oft sterben die Wirtstiere während derselben (also 5–6 Tage nach der Infektion). Wenn sie die Krisis überleben, so sind sie gerettet. Denn durch die Befruchtung und Sporenbildung wird infolge des gleichzeitigen Auftretens dieser Vorgänge bei den meisten Individuen der Darmkanal von den Parasiten gereinigt, sie verlassen denselben als Dauerstadien, und die Epithelregeneration wird nicht mehr durch die Parasiten wirkungslos gemacht.
Gattung: Caryospora Léger.
Coccidie mit Befruchtung nach dem Eimeridentypus; die Agameten sind oval oder annähernd kuglig, die Oocyste umschließt im reifen Zustand nur eine Spore mit 8 Sporozoiten.
Caryospora simplex Léger.
|
1904.
|
Léger, L., Protozoaires
parasites des Vipères. In: Bull. Ass. franç. p. l’Avanc. d. Sc. No. 9.
p. 268.
|
|
1911.
|
— Caryospora simplex, Coccidie monosporée et la
Classification des Coccidies. In: Arch. f. Protistenk. Vol. 22. p. 71.
|
Die Agameten messen 8 bis 10 µ. Die Mikrogametocyten 6 bis 9 µ und erzeugen zahlreiche fadenförmige Mikrogameten. Die Makrogameten sind annähernd kuglig und messen 12 bis 15 µ. Die Oocyste hat eine dicke gelbliche Hülle, welche an einer Stelle eine knotige Verdickung trägt. Die einzige Spore mißt 12 auf 8 µ, ist am einen Pol leicht zugespitzt und umschließt 8 Sporozoiten.
Die Art bewohnt das Darmepithel der Schildviper (Vipera aspis L.) in Südfrankreich.
[S. 717]
Gattung: Pfeifferinella Wasielewski.
Coccidie, deren Befruchtung noch unbekannt ist; monospor, indem die Oocyste nur eine Spore mit 8 Sporozoiten umschließt. Der vorigen Gattung sehr nahe stehend, eventuell mit ihr zu vereinigen.
Pfeifferinella ellipsoides Was.
|
1904.
|
Wasielewski, Studien und
Mikrophotogramme zur Kenntnis der pathogenen Protozoen. Heft 1. Leipzig.
|
Die ca. 20 µ messenden Agameten zerfallen in zahlreiche, bis zu 60 Sprößlinge. Die Oocysten, welche 13–15 µ Länge erreichen, sind oval (Fig. 632); sie umschließen im reifen Zustand mit ihrer dicken Wand außer den 8 Sporozoiten einen granulierten Restkörper. Die Art wurde in Planorbis cornuta in Deutschland gefunden, eine ähnliche Form fand Léger bei Succinea in der Touraine.
Gattung: Isospora Aimé Schneider.
Diese Gattung, welche wahrscheinlich identisch ist mit Diplospora Labbé, weist in der reifen Oocyste 2 Sporen auf, welche je 4 Sporozoiten enthalten (gegenüber 4 Sporen zu je 2 Sporozoiten bei Eimeria). Es ist nicht sichergestellt, ob bei sämtlichen Isosporen geschlechtlicher Dimorphismus der Agameten vorkommt, für Isospora Mesnili wird er angegeben.
Bei genauerer Untersuchung wird es sich vielleicht herausstellen, daß die hier angeführten Arten auf verschiedene Gattungen zu verteilen sind.
1. Isospora rara Aimé Schneider.
|
1881.
|
A. Schneider, in: Arch. Zool.
expér. Vol. 9. p. 401.
|
Diese noch wenig bekannte Coccidie bildet Oocysten von kugliger Gestalt, welche je 2 birnförmige Sporen enthalten. Letztere umschließen je 4 Sporozoiten. Sie kommt in einer Nacktschnecke, Limax cinereo-niger, vor.
[S. 718]
2. Isospora bigemina (Stiles).
|
1892.
|
Coccidium bigeminum Stiles.
In: Journ. comp. med. and vet. sci. Vol. 13. p. 517.
|
|
1899.
|
Labbé. In: Tierreich. Lief. 5.
Sporozoa. p. 67.
|
Die Größe der Oocyste dieser Art beträgt 22–40 µ, die Breite 19–38 µ. Der Plasmainhalt ist erfüllt von großen, stark lichtbrechenden Granulationen. Die 2 Sporen haben die Gestalt eines Rotationsellipsoids, füllen beinahe den ganzen Innenraum der Oocyste aus und enthalten neben den 4 Sporozoiten je einen großen Restkörper (Fig. 634 B). Der Längsdurchmesser der Sporen beträgt 10–18 µ. Gebilde, welche er für Stadien der agamen Vermehrung hält, fand Wasielewski im Darm von Katzen. Nach demselben Autor sind die Sporen wahrscheinlich zweiklappig.
Diese Art bedarf dringend der Nachuntersuchung. Sie kommt im Darm verschiedener Säugetiere vor, und zwar nicht nur im Epithel, sondern auch im Innern der Darmzotten, im Bindegewebe der Submucosa.
Sie kommt beim Hund, beim Iltis (Mustela putorius) und bei der Katze vor.
Einige Fälle von Coccidiose beim Menschen werden ebenfalls auf diese Form zurückgeführt; beim Menschen würde sie dann noch ausgesprochener als E. Stiedae einen nur gelegentlichen Parasiten darstellen, wenn diese Fälle überhaupt auf richtigen Beobachtungen beruhen.
3. Isospora Lacazei (Labbé).
|
1893.
|
Diplospora Lacazei + D. Rivoltae
Labbé. In: Compt. rend. Acad. Sciences. Paris.
Vol. 117. p. 407.
|
|
1899.
|
D. Lacazei Labbé. In:
Tierreich. Lief. 5. Sporozoa. p. 71 (das. Literatur).
|
|
1894.
|
(Schiz.) Pfeifferia (Pfeifferella) avium
Labbé. In: Compt. rend. Acad. Scienc. Paris.
Vol. 119. p. 537 (s. auch Tierreich p. 61).
|
Die erwachsenen ungeschlechtlichen Tiere haben einen Durchmesser von etwa 30 µ (bis 50 µ); die jungen Agameten haben eine Länge von 7–8 µ. Die Makro- und Mikrogametocyten sind ebenfalls bekannt.
Die kugligen Oocysten variieren in der Größe, so daß man zwei Varietäten unterscheiden kann, welche früher für zwei Arten gehalten wurden. Bei der einen, welche 22 µ im Durchmesser mißt, ist die Hülle dünn, bei der anderen die Hülle dick bei einem Cystendurchmesser von 16–22 µ. Es finden sich aber zwischen beiden Varietäten alle Uebergänge.
In der Oocyste bilden sich zwei Sporoblasten, deren jeder sich, nachdem die Oocyste aus dem Darm des Wirtes herausgefallen ist, in 1 Spore mit 4 Sporozoiten umwandelt.
Dabei unterscheiden sich beide Varietäten in merkwürdiger Weise, indem diejenige mit der dünnwandigen Oocyste diese Umwandlung in [S. 719]3–4 Tagen durchmacht, während die dickwandige dazu 12–14 Tage braucht.
Die Sporen sind birn- oder spindelförmig; nach Wasielewski besitzen sie eine Mikropyle.
Die Art schmarotzt im Darm von sehr vielen Arten der Sperlingsvögel, auch in dem gewöhnlichen Sperling, in Lerche, Distelfink etc. Bei diesen verursacht sie akute oder chronische Darmaffektionen, welche von ziemlich schwerer Art sein können. Künstlich infizierte junge Vögel starben an der Krankheit in 2–3 Tagen.
4. Isospora Lieberkühni (Labbé).
|
1896.
|
Hyaloklossia Lieberkühni Labbé.
In: Arch. Zool. expér. Sér. 3. Vol. 4. p. 535.
|
|
1902.
|
Isospora Lieberkühni Laveran
et Mesnil, Sur la coccidie trouvée dans le rein
de la Rana esculenta et sur l’infection générale qu’elle produit. In:
C. R. Acad. Sci. Paris. Vol. 135. p. 82.
|
Bei diesem Froschparasiten ist besonders der Infektionsmodus von großem Interesse. Wie gewöhnlich, schlüpfen die Sporozoiten unter der Einwirkung der Darmsäfte aus und infizieren die Darmepithelzellen. Sie dringen aber aus diesen weiter, geraten in die Blutbahn, und es entsteht eine allgemeine Infektion des Organismus. In Lumen und Endothelzellen der Blutgefäßkapillaren von Lunge, Leber, Milz, Dickdarm, Fettkörper und Niere, besonders in den Glomerulis der letzteren finden sich die Parasiten.
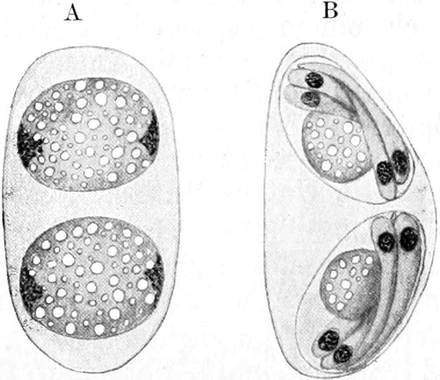
Besonders in diesem Organ erfolgt die weitere Entwicklung. Agame Fortpflanzung ist nicht mit Sicherheit erkannt. Mikro- und Makrogametocyten finden sich in den Nierenepithelien. Die Befruchtung findet im Lumen der Harnkanälchen statt. Die Oocystenhülle wird erst nach der Befruchtung gebildet. Erst nachdem das Synkaryon sich zweimal geteilt hat, zerschnürt sich das Oocystenplasma in 2 zweikernige Sporoblasten (Fig. 635 A); aus ihnen entstehen die ovalen Sporen mit je 4 Sporozoiten und einem großen Restkörper.
Hier anzuschließen wäre noch:
5. Isospora Mesnili Sergent.
|
1902.
|
Sergent, E., Sur une Coccidie
nouvelle parasite du Caméléon vulgaire. In: C. R. Soc. Biol. Paris. Vol.
54. p. 1260.
|
Diese Art ist Kernparasit in den Darmepithelzellen (Dickdarm) von Chamaeleon vulgaris. Bei ihr ist mit Sicherheit die agame Fortpflanzung und damit der Generationswechsel nachgewiesen. Die Mikrogameten sollen kurz sein, von gedrungenem Bau, nicht in die Länge gezogen, wie diejenigen anderer Coccidien.
[S. 720]
Gattung: Eimeria Aimé Schneider[43].
|
1875.
|
Eimeria Aimé Schneider. Note
sur la psorospermie oviforme du Poulpe. In: Arch. Zool. Expérim. Vol. 4.
p. 40.
|
|
1879.
|
Coccidium Leuckart, Die
Parasiten des Menschen. 2. Aufl. Leipzig u. Heidelberg. p. 254.
|
Die Angehörigen dieser Gattung bilden in der Oocyste 4 Sporen mit je zwei Sporozoiten. Hervorzuheben ist ferner, daß die Agameten keinen Dimorphismus in männliche und weibliche Individuen aufweisen (vgl. S. 205). Die Eimerien sind am genauesten von der ganzen Unterordnung studiert worden, da einige Vertreter der Gattung eine große pathologische Bedeutung besitzen.
Schon in dem allgemeinen Abschnitt gingen wir von der Betrachtung des Entwicklungskreises von Eimeria Schubergi aus; diese Art möge auch als Vertreter der Gattung dienen, wenn unten noch einige weitere Einzelheiten über die einzelnen Stadien angeführt sind. Wir lassen sie daher auch in der Reihenfolge dem Typus, nach welchem die Gattung aufgestellt wurde (Eimeria falciformis), vorangehen. Die zahlreichen Arten der Gattung Eimeria werden in 5 Gruppen zerlegt, welche von früheren Autoren meist als selbständige Gattungen betrachtet wurden, welche Lühe aber wohl mit Recht für Untergattungen hält. Sie werden nach dem Verhalten und der Form der Sporenhülle, nach dem Zeitpunkt des Auftretens der Oocystenhülle und schließlich nach einem eigenartigen Verhalten der Sporoblasten unterschieden. Im „Pyramidenstadium“ nehmen die Sporoblasten bei Eimeria falciformis und Stiedae eine gestreckte Form an und stoßen das sogenannte Spitzenkörperchen aus, ein Vorgang, dessen eigentliche Bedeutung noch unbekannt ist.
Die Untergattungen werden folgendermaßen unterschieden:
|
1
|
|
Sporenhülle sich erst im Darm des neuen Wirtes öffnend
|
2.
|
|
Sporenhülle sich sofort nach Bildung der Sporozoiten
wieder auflösend
|
|||
|
Untergattung Paracoccidium Lav. u. Mesn.
|
|||
|
2
|
|
Sporen kuglig oder oval
|
3.
|
|
Sporen in Gestalt einer Doppelpyramide:
|
|||
|
Untergattung Crystallospora Labbé.
|
|||
|
3
|
|
Oocystenbildung erst nach der Befruchtung
|
4.
|
|
Unbefruchteter Makrogamet schon von Hülle umgeben:
|
|||
|
Untergattung Orthospora Ai. Schn.
|
|||
|
4
|
|
Sporoblasten mit Pyramidenstadium. Sporen mit Mikropyle:
|
|
|
Untergattung Eimeria s. str.
|
|||
|
Sporoblasten ohne Pyramidenstadium. Sporen zweiklappig:
|
|||
|
Untergattung Goussia Labbé.
|
a) Untergattung: Goussia Labbé.
|
1896.
|
Labbé in: Arch. Zool. Expér.
Sér. 3. Vol. 4. p. 551.
|
Oocystenbildung nach der Befruchtung. Sporoblasten ohne Pyramidenstadium. Sporen kuglig oder oval. zweiklappig, sich erst im [S. 721]Darm des neuen Wirtes öffnend. Hierher gehören einige Darmparasiten aus Fischen, welche Labbé beschrieben hat. Ferner entspricht der Diagnose der Untergattung die nachfolgende Art:
1. Eimeria Schubergi Schaudinn.
|
1900.
|
Schaudinn, Untersuchungen über
den Generationswechsel bei Coccidien. In: Zool. Jahrb. Abt. Anat. Vol.
13. p. 197.
|
Die Sporozoiten dieser Art, welche eine Länge von 15–20 µ, einen Querdurchmesser von 4–6 µ besitzen, sind schwach sichelförmig gestaltet; ihr Vorderende läuft in eine scharfe Spitze aus. Außer der Fähigkeit, ringförmige Einziehungen und Knickbewegungen auszuführen, vermag der Sporozoit sich auch von der Stelle zu bewegen, indem er, wie die Gregarinen, einen Gallertstiel bildet.
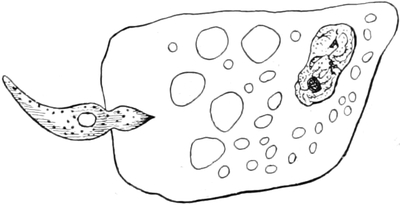
Mit Hilfe dieser verschiedenen Bewegungen bohrt sich der Sporozoit in eine Darmepithelzelle des Wirtstieres ein (Fig. 636). Während es 1–2 Stunden, nachdem die Sporen in den Darm gelangt sind, dauert, bis die Sporozoiten ausschlüpfen, dringen sie nach dem Ausschlüpfen sofort in benachbarte Zellen ein.
In 24 Stunden wachsen die Sporozoiten nun zu den kugligen agamen Eimerien heran. Dieselben haben keine Cystenmembran. Während der Kern des Sporozoiten ein gleichmäßiges Kernnetz besaß, ist derselbe jetzt durch ein großes „Karyosom“ ausgezeichnet (Fig. 637 A).
Dieser Kern beginnt sich bald durch fortgesetzte Zweiteilung zu vermehren (Fig. 637 B). Indem um die Kerne Plasmateile sich abschnüren, vollzieht sich die agame Vermehrung. Die Eimerie hatte bereits die Wirtszelle vollständig ausgefüllt und den Kern an die Wand gedrückt. Nun fällt sie in einem früheren oder späteren Stadium der Vermehrung in das Darmlumen, und die Sprößlinge, welche sich von ihm unter Zurücklassung eines zentralen Restkörpers loslösen (Fig. 637 C), wandern in neue Wirtszellen ein. Die Kerne der Sprößlinge besitzen ein Karyosom.
Durch diese jungen Agameten wird die Infektion im Darm des Wirtes schnell weiter verbreitet. Einige (4–5) Tage lang geht diese Vermehrung intensiv vor sich. Dann müssen wohl durch die Erkrankung des Wirtes auch für die Parasiten weniger günstige Verhältnisse eintreten. Sie schreiten am 5. und 6. Tag zur Bildung von geschlechtlich differenzierten Individuen, wie das oben schon geschildert wurde (S. 704).
Die Makrogametocyten enthalten Reservestoffe in ihrem Protoplasma, die Mikrogametocyten keine. Die letzteren haben ein fein granuliertes, sehr dichtes Plasma. Durch eine sehr merkwürdige multiple Vermehrung entstehen nach Auflösung des Kerns aus den gebildeten Chromidien durch freie Kernbildung (vgl. S. 239 und Fig. 237 B) zahlreiche Kerne, welche an der Oberfläche der Zelle Mikrogameten bilden (Fig. 637 D). Diese besitzen eine scharfe Spitze und zwei Geißeln, von denen eine am vorderen, die andere am hinteren Ende inseriert ist (Fig. 638).
[S. 722]
Die Makrogameten erlangen beim Heranwachsen zunächst eine etwa bohnenförmige Gestalt, ehe sie zur Kugelform gelangen (Fig. 637 E). Die Formwandlung wird durch einen Kontraktionsvorgang bewirkt, bei welchem zu gleicher Zeit der Kern sich seines Karyosoms entledigt (vgl. Fig. 202, S. 199).
Die Trümmer des ausgestoßenen Karyosoms scheinen bei ihrer Auflösung auf die Mikrogameten chemotaktisch zu wirken. Denn dieselben nähern sich alsbald dem Makrogameten; der letztere bildet einen Befruchtungshügel, in welchen ein Mikrogamet eindringt, während die Zygote sofort von einer Membran eingehüllt wird, die das Eindringen weiterer Mikrogameten unmöglich macht (Fig. 637 F u. G).
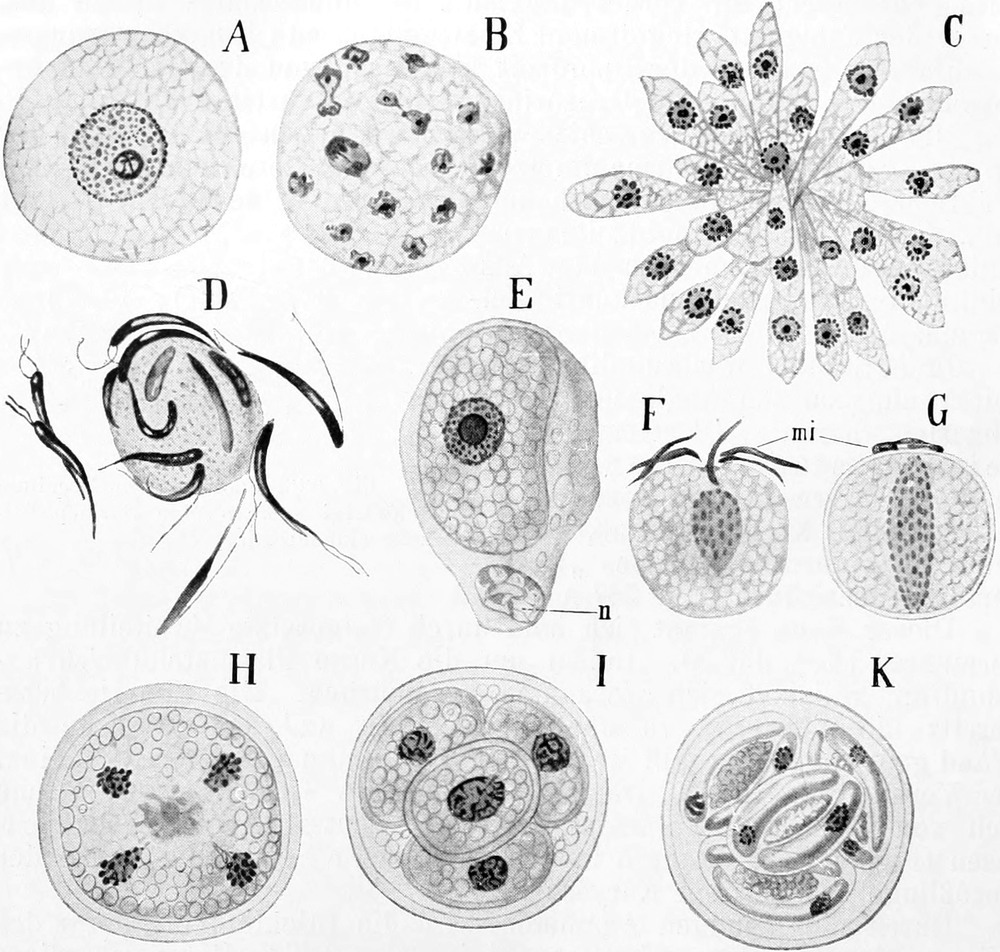
Im Gefolge der Befruchtung bildet sich eine merkwürdige Kernspindel, die Befruchtungsspindel (Fig. 637 G), welche noch 24 Stunden sich erhält, nachdem die befruchtete Oocyste aus dem Darm des Wirtes herausgefallen ist. Dann wird der Kern wieder kugelförmig und teilt sich nach einigen weiteren Veränderungen zweimal (Fig. 637 H). Um die entstandenen 4 Kerne gliedern sich Plasmaportionen, die 4 Sporoblasten (Fig. 637 I). Die Bildung der letzteren dauert [S. 723]4 Stunden, während die Entstehung der Sporozoiten in den aus ihnen gebildeten Sporen 10 Stunden in Anspruch nimmt. Jede Spore enthält außer zwei Sporozoiten einen großen glänzenden Restkörper (Fig. 637 K).
Die Sporen öffnen sich nur unter dem Einfluß des Darmsaftes des Wirtes, nicht etwa auch in anderen Tieren. Dabei zeigt sich die Sporenwand aus zwei klappenförmigen Hälften zusammengesetzt.
Eimeria Schubergi kommt im Darm von Lithobius forficatus, einem häufigen Tausendfüßler, in Gesellschaft mehrerer anderer Sporozoen vor. Die Art ist jedoch ziemlich selten. Sie infiziert die Epithelzellen des Darms.
Infolge der Schizogonie kann das ganze Epithel mit den Parasiten überschwemmt werden. Es kann dies so weit gehen, daß eine einzelne Zelle mehrere Eimerienindividuen enthält.
Durch die Infektion wird die Darmepithelzelle zunächst hypertrophisch, dann erliegt sie einer fettigen Degeneration; ihre gesamte Substanz wird von den Parasiten resorbiert, bis auf einen geringen Rest, welcher mit dem ganz zusammengeschrumpften Zellkern im Darm aufgelöst wird, wenn sie samt der herangewachsenen Eimeria in das Lumen hineinfällt.
In der Regel hält die Epithelregeneration gleichen Schritt mit den Verlusten, welche hierdurch entstehen. Doch kommen bei Masseninfektion auch akute Fälle vor, in denen die Epithelregeneration nicht nachkommt. Dann bestehen die, im Gegensatz zu den gesunden, dünnflüssigen Faeces fast nur aus Epithelresten und Coccidienstadien. Die Lithobien werden dadurch sehr geschwächt und liegen ganz matt da. Doch tritt in der Regel eine natürliche Heilung ein, da die ungeschlechtliche Vermehrung, welche, wie wir sagen, ja allein die Autoinfektion vermittelt, ihre Grenzen hat. Alle Coccidien, welche nicht degenerieren, gelangen schließlich zur Sporogonie und werden als Oocysten entleert. Wenn dann keine Neuinfektion eintritt, so wird schließlich der Darm ganz coccidienfrei.
Die Infektion wird meist dadurch vermittelt, daß die Lithobien, welche schlimme Raubtiere sind, Arthropoden fressen, welche selbst den Kot der Lithobien mit den Sporen gefressen haben. In dem Darm dieser Vermittler öffnen sich die Sporen nicht; wenn aber jene im Darm der Lithobien verdaut werden, gelangen die Darmsäfte der Lithobien auch zu den Sporen; diese öffnen sich sofort, entlassen die Sporozoiten, und die Neuinfektion ist geschehen.
Der gesamte Zeugungskreis von Eimeria Schubergi verläuft in 7–8 Tagen.
Hier anzufügen sind einige Fischparasiten wie: Eimeria clupearum (Thél.), E. subepithelialis Moroff und Fiebiger aus Karpfen, E. minuta (Thél.) aus der Schleie etc. Ferner Eimeria (Goussia) gadi Fiebiger aus der Schwimmblase von Gadus virens, wo sie pathogen auftritt.
b) Untergattung: Eimeria Aimé Schneider s. str.
Oocystenbildung nach der Befruchtung. Sporoblasten mit Pyramidenstadium. Sporen kuglig oder oval, mit Mikropyle, also nicht [S. 724]beim Oeffnen in zwei Klappen auseinanderfallend; sich erst im Darm des neuen Wirtes öffnend.
2. Eimeria falciformis (Eimer).
|
1870.
|
Gregarina falciformis Eimer
in: Ueber die ei- und kugelförmigen Psorospermien der Wirbeltiere.
Würzburg. p. 4.
|
|
1892.
|
Coccidium falciforme Schuberg.
Ueber Coccidien des Mäusedarms. In: Sitz.-Ber. Nat. Med. Gesellsch. p. 65.
|
|
1874.
|
(Schiz.) Eimeria falciformis A.
Schneider: Arch. Zool. expér. Vol. 4, u. Pfeifferia Schubergi
Labbé. Ebenda (3) Vol. 5 p. 541
(auch Mikrogametocyten).
|
|
1899.
|
Literatur: Labbé in: Tierreich.
Lief. 5. Sporozoa. p. 58, 61 u. 68.
|
Bei dieser Art ist die Schizogonie vor der Sporogonie gefunden worden, umgekehrt wie bei den meisten anderen Arten, daher hat man sie längere Zeit einer anderen Gattung zugewiesen.
Das erwachsene agame Stadium ist rund bis leicht eiförmig. Seine Größe schwankt zwischen 18 und 26 µ. Die Produkte der ungeschlechtlichen Fortpflanzung entstehen in der Zahl von 7–12, ohne einen Restkörper zu hinterlassen; sie messen 9–10 µ. Sie sind lang und sichelförmig (Fig. 639).
Mikrogametocyten wurden von Schuberg beobachtet, welcher auch die Makrogametocyten und die Sporulation studierte.
Die Makrogametocyten sind zylindroid, oval oder kuglig; bisweilen sind sie an einem Pol abgeflacht. Nach der Befruchtung besitzt die Oocyste eine etwa 0,8 µ starke Hülle; sie ist 16–21 : 11–17 µ groß.
Die Entstehung der Sporen erfolgt außerhalb des Darmes des Wirtes. Die Sporen sind oval und von einer sehr feinen Hülle umgeben; sie enthalten 2 Sporozoiten und einen großen Restkörper (Fig. 640 D).
Eimeria falciformis ist ein Parasit der Hausmaus (Mus musculus), in deren Darmepithel sie haust; seltener kommt sie in der Leber vor. Die Mäuse erkranken oft sehr heftig unter Schwächezuständen und Diarrhöen, und gehen nicht selten an der Infektion zugrunde. Die Erkrankung tritt manchmal als endemische Seuche auf.
[S. 725]
3. Eimeria Stiedae Lindem.
|
1865.
|
Monocystis Stiedae Lindemann,
K. in: Bull. Soc. Imp. Nat. Moscou. Vol. 38. 2. ptie. No. 4. p. 385.
|
|
1878.
|
Psorospermium cuniculi Rivolta,
in: Giorn. Anat. Physiol.
|
|
1879.
|
Coccidium oviforme Leuckart,
Parasiten. 2. Aufl. Vol. 1. p. 255.
|
|
1879.
|
Coccidium perforans Leuckart,
ebenda, p. 278.
|
|
1899.
|
Coccidium cuniculi (Rivolta) Labbé,
in: Tierreich. Lief. 5. Sporozoa. p. 66.
|
|
1899.
|
Coccidium perforans Leuckart,
Labbé, ebenda, p. 66 (dort Literatur).
|
|
1896.
|
(Schiz.) Pfeifferia princeps Labbé,
in: Arch. Zool. éxp. (3) Vol. 4.
|
|
1903.
|
Coccidium cuniculi Metzner,
in: Arch. f. Protistenk. Vol. 2. p. 13.
|
Auch für dieses meistbeschriebene Coccidium sind jetzt alle Stadien des Entwicklungskreises bekannt, wenn sie auch nicht mit aller Sicherheit durch direkte Beobachtung eines aus dem anderen entstehend gesehen wurden[44].
Auf die Entwicklungsgeschichte, welche derjenigen von Eimeria Schubergi sehr gleicht, brauchen wir nicht näher einzugehen. Wir schildern diejenigen Stadien, welche zur Unterscheidung von anderen Arten wichtig sind.
Die ungeschlechtlichen Formen sind oval und messen bei 20–50 µ Länge 20–39 µ in der Breite. Sie teilen sich in zahlreiche Sprößlinge, welche sich in der Zahl von 30–200 bilden (Fig. 641 und 642 e).
Makro- und Mikrogameten sind ebenfalls beobachtet worden. Erstere sind durch stark färbbare Granula ausgezeichnet, die Mikrogametocyten erreichen eine auffallende Größe.
Die Oocysten sind am häufigsten gesehen worden, und die Entstehung der Sporen aus ihnen ist gut bekannt.
Die Oocysten sind lang-oval (Fig. 643 C und D), ihre Größenverhältnisse können sehr wechseln; ihre Farbe ist grünlich; die oberflächlichen [S. 726]Plasmaschichten enthalten zahlreiche Granula, welche zu Verwechslungen mit kleinen Kernen Anlaß geben können (Fig. 642 g). Wie es scheint, erreichen diejenigen Individuen, welche Leber und Gallengänge befallen, regelmäßig eine bedeutendere Größe als die im Darmepithel schmarotzenden. Während man von ersteren solche von 36–49 µ Länge und 18–28 µ Breite kennt, findet man im Darm meist nur solche von 24–36 µ Länge und 11–23 µ Breite.
Die Oocyste ist ziemlich dick (Fig. 643 C–H) und glattwandig; am einen Ende ist die Hülle viel dünner, es findet sich da eine große Mikropyle. Die Oocysten zeigen sich stets von einer Gallerthülle umgeben, welche in der Gegend der Mikropyle besonders dick ist (Fig. 644 A). Die Sporenbildung geschieht außerhalb des Wirtes. Der Protoplasmainhalt, welcher sie anfänglich ganz ausfüllt, zieht sich vor der Sporulation von den Polen zurück und bildet eine zentral gelegene Kugel (von etwa 17 µ Durchmesser, Fig. 643 E). Die Kugel teilt sich alsbald gleichzeitig in 4 Sporoblasten, welche später von einer derben Hülle umgeben werden. Vorher machen die Sporoblasten das sogen. „Pyramidenstadium“ durch, indem sie sich an einem Ende zuspitzen und ein kleines Körperchen (das sogen. Schneidersche Körperchen) abstoßen. Außerdem bleibt zwischen den 4 Sporoblasten ein Restkörper zurück. Die Sporen werden oval (Fig. 643 F–I, Fig. 644 B–E) und bilden im Innern 2 Sporozoiten, wobei wiederum je ein Restkörper übrig bleibt. Eine Spore mißt etwa 12–15 µ in der Länge, 7 µ in der Breite.
[S. 727]
Die Sporenbildung dauert 3–5 Tage und kann sogar Wochen in Anspruch nehmen, wenn der Sauerstoffzutritt behindert ist; auch hohe Temperatur hemmt die Entwicklung.
Das Auskriechen der Sporozoiten aus den Sporen erfolgt unter dem Einfluß des Pankreassaftes des Wirtes (vgl. Metzner a. a. O.). Beim Auskriechen, welches also normalerweise im Duodenum erfolgt, schlüpfen die beweglichen Sporozoiten zuerst durch die Mikropyle der Spore, sodann durch diejenige der Oocyste (Fig. 644 E).
Eimeria Stiedae ist ein häufiger Parasit des Kaninchens (Lepus cuniculus domesticus); bei diesem schmarotzt sie im Epithel des Dünndarms in der Leber und im Epithel der Gallengänge. Unter den Kaninchen ruft sie nicht selten Epidemien hervor, welche besonders in Züchtereien großen Schaden anrichten können.
Die Erscheinungen der Krankheit beim Kaninchen sind vor allem sehr heftiger Durchfall, die kranken Tiere magern ab und fressen nicht mehr. Aus Mund und Nase fließt ihnen gelblicher Schleim. Die Faeces enthalten massenhaft Oocysten der Coccidie. Viele Tiere, besonders die jungen, gehen an der Krankheit ein. Die Infektion geschieht durch Futter, welches mit sporenhaltigem Kot beschmutzt ist.
In der Leber bilden sich Infektionsherde aus, welche vom Epithel der Gallengänge ausgehen und welche schließlich die Coccidienknoten erzeugen. Sie können die ganze Leber durchsetzen und allmählich bis zur Größe einer Haselnuß heranwachsen. Beim Einschneiden in einen solchen Knoten quillt eine weißliche oder gelbliche, käsige oder eiterartige Flüssigkeit hervor, welche außer zahlreichen zerfallenden und zerfallenen Zellen viele Coccidien enthält. Während der akuten Erkrankung findet man meist Stadien der agamen Fortpflanzung, später Oocysten. Auch in den Gallengängen und der Gallenblase findet man dann die aus dem Epithel herausgefallenen Oocysten.
Die Knoten entstehen durch Umwandlung der infizierten Gallengänge, welche sich erweitern und von außen oft zu mehreren von einer Bindegewebswucherung umschlossen werden. Nach außen hin sind also die Knoten von konzentrischen Bindegewebsschichten, welche nach dem Innern des Knotens septenartige Schichten entsenden, umschlossen (Fig. 646), auf welche nach innen zu das Gallengangepithel folgt; dieses ist aber stark verändert, an manchen Stellen ist es gänzlich zerstört, an anderen ist es stark gewuchert. Denn die Coccidieninfektion hat eine Zellvermehrung im Gefolge. Ueberall aber sind die Epithelzellen mit Coccidien in verschiedenen Stadien erfüllt; immerhin kommt es vor, daß hie und da kleine Epithelregionen intakt geblieben sind. Im Innern des Knotens liegen zum Teil in enormer Menge die Oocysten der Coccidie in verschiedenen Stadien der Ausbildung. Die Oocysten in älteren Coccidienknoten [S. 728]sind oft nicht mehr entwicklungsfähig, da sie durch den hohen Kohlensäuregehalt der Leber stark geschädigt werden.
Beim Menschen sind in wiederholten Fällen Infektionen der Leber und in wenigen Fällen solche des Darms durch Eimeria Stiedae beobachtet worden. Offenbar handelte es sich meist um Menschen, welche irgendwie mit Kaninchen häufiger zu tun hatten.
Aehnlich wird es sich mit denjenigen Fällen verhalten, in denen der Parasit (oder eine Varietät desselben, s. Labbé, Tierreich p. 66 u. 67) in Haustieren gefunden wurde; auch da wird die Infektion sich wohl meist vom Kaninchenstall herleiten lassen. Infiziert gefunden wurden bisher Ochse, Pferd, Ziege und Schwein.
Die interessanteste Krankheit, welche von der Eimeria Stiedae erzeugt wird, ist:
Die rote Ruhr des Rindes.
|
1892.
|
Zschokke, Schweiz. Arch. f.
Tierheilk.
|
|
1893.
|
Hess, ebenda.
|
|
1894.
|
Guillebeau, ebenda und
Centralbl. f. Bakteriol. u. Parasitenk. Vol. 14.
|
Bei Rindern tritt nicht selten eine Krankheit auf, welche nach einer Inkubationsdauer von etwa 3 Wochen mit hohem Fieber und Schüttelfrösten beginnt. In den Faeces finden sich größere und kleinere Blutgerinnsel, in schweren Fällen entsteht eine wässerig-blutige Diarrhöe mit diphtheritischen Membranen.
Schwere Fälle enden schon nach 2 Tagen tödlich; es erliegen jedoch nur 2–4 Proz. der befallenen Tiere der Krankheit. Leichte Fälle gehen nach 8–10 Tagen, schwerere nach 14–21 Tagen in Heilung über. Es dürften diese Fristen mit der Entwicklungsdauer der Coccidien in Zusammenhang stehen, und die spontane Heilung ebenso erfolgen wie bei Eimeria Schubergi.
Im Kot der erkrankten Tiere finden sich massenhaft die Oocysten von Eimeria Stiedae; die Zahl nimmt mit dem Fortschreiten der Heilung ab.
[S. 729]
Untersucht man den Darm, so findet man in demselben ebenfalls zahlreiche Oocysten, im Epithel — besonders im Dickdarm und Rectum — eine Menge von Coccidien aller Stadien. Zschokke fand in einem Stückchen der Mastdarmschleimhaut von 1 mm Länge 1500 Coccidien. Die Schleimhaut zeigt sich meist stark gerötet, oft auch eitrig und mit diphtherischen Membranen bedeckt. Stets findet man zahlreiche größere und kleinere Hämorrhagien.
Die Krankheit ist vorwiegend in der Schweiz, und zwar in den Sommermonaten und im Herbst beobachtet worden. Und zwar fast ausschließlich auf den höheren Alpenweiden.
Dies hat seinen Grund darin, daß die Rinder im Sommer mit frischem Gras gefüttert werden und Wasser aus kleinen Tümpeln saufen. In den Düngerhaufen gehen die Coccidien nämlich nach Guillebeau bald zugrunde, während sie auf der Weide und in den Tümpeln wohl fortkommen. In trockenen Jahren soll die Krankheit nicht auftreten.
Meistens handelt es sich um endemisches Auftreten der Krankheit.
Um eine Ausbreitung der Krankheit zu verhindern, muß man natürlich die erkrankten Tiere isolieren und ihren Kot vernichten.
c) Untergattung: Orthospora Aimé Schneider.
|
1881.
|
Orthospora Aimé Schneider.
|
|
1892.
|
Caryophagus Steinhaus, s. unten.
|
Coccidien, bei welchen der Makrogamet sich schon vor der Befruchtung mit einer Cystenhülle umgibt; Sporoblasten ohne Pyramidenstadium. Sporen kuglig oder oval, sich erst im Darm des Wirtes öffnend.
Die bekannten Arten sind sämtlich Parasiten des Darmepithels von Amphibien.
4. Eimeria salamandrae (Steinhaus).
|
1889.
|
(Schiz.) Caryophagus salamandrae
Steinhaus. In: Virchows Archiv path. Anat.
Vol. 115. p. 176.
|
|
1897.
|
Coccidium salamandrae (Steinh.)
Simond. In: Ann. Inst. Pasteur. Vol. 11. (das.
Literatur).
|
|
1899.
|
Caryophagus salamandrae (Steinh.)
Labbé. In: Tierreich. Lief. 5. Sporozoa. p. 78
(das. Literatur).
|
Von dieser Coccidie waren bis vor kurzem nur die Stadien der Schizogonie bekannt, erst Simond hat diejenigen der Sporogonie entdeckt.
Die jungen Coccidien sind kuglige, einkernige Körperchen, welche sich von den entsprechenden Stadien anderer Coccidien nicht unterscheiden lassen. Dieselben wachsen heran, der Kern teilt sich wiederholt, bis 16–24 Kerne vorhanden sind; um jeden derselben gliedert sich ein Stück Plasma ab; diese Plasmakugeln strecken sich allmählich in die Länge und werden im allgemeinen so lang wie der Durchmesser des Muttertiers war (Fig. 648 A u. B). In der Regel läßt sich an dem einen Pol ein kleiner Restkörper nachweisen. Eine Cystenmembran ist um das ungeschlechtliche Individuum nicht ausgebildet worden und existiert zu keiner Zeit während des geschilderten Zyklus.
Die Mikrogametocyten sind größer, ihr Plasma ist fein granuliert. Durch fortgesetzte Teilung entstehen sehr viele Kerne, [S. 730]welche schließlich in mehreren Schichten an der Peripherie des Mikrogametocyten übereinander liegen können. Um sie bilden sich die Mikrogameten, welche man in der lebenden Wirtszelle im fast aufgezehrten Kern sich lebhaft bewegen sehen kann (Fig. 649 C).
Die Oocysten sind mit einer derben Membran umgeben, welche bis zu 1–1,5 µ Dicke erreichen kann, und welche schon bei dem unbefruchteten Makrogameten vorhanden war. Sie besitzt daher eine Mikropyle für den Durchtritt des Mikrogameten. Der Durchmesser der kugligen bis schwach ovalen Oocyste selbst schwankt bei den verschiedenen Wirtsindividuen; bei den einen beträgt er 18–25 µ, bei den anderen 20–30 µ. Sie ist in der Regel dunkelgrünlich gefärbt und von Granulationen erfüllt (Fig. 650 A).
In diesem Zustande verlassen sie den Darm des Wirtes; im feuchten Kot zieht sich dann zunächst der Plasmainhalt zu einer Kugel zusammen (Fig. 650 B); die Kugel teilt sich in zwei Etappen [S. 731]zu den 4 Sporen, welche sich mit einer Membran umgeben und in sich 2 Sporozoiten entstehen lassen. Die Sporen sind kuglig. Die Sporozoiten sind keulenförmig und gebogen; sie liegen mit den dicken Enden aneinander und umfassen mit den zugespitzten einen ziemlich großen Restkörper (Fig. 650 C–E).
Die Ausbildung der Sporen bis zu diesem Zustand vom Moment ab, wo die Oocyste den Darm verließ, dauert 10–14 Tage.
Eimeria salamandrae kommt im Darmepithel von Salamandra salamandra (L.) (Salamandra maculosa) vor. Sie ist weit verbreitet.
In den Epithelzellen liegt der Parasit entweder zwischen dem Kern und der freien Oberfläche des Cylinderepithels (Fig. 648), oder häufiger sitzt er im Kern der Zelle (Fig. 649). Wir haben also hier einen Fall des seltenen Zellkernparasitismus. Der Schmarotzer nutzt übrigens den Kern nur wie sonst eine Zelle aus. Er ist — was sehr auffallend ist — in seiner Größe an den Zellkern insofern angepaßt, als er nicht, wie die meisten anderen Coccidien, herangewachsen, die ganze Zelle ausfüllt, sondern er nimmt nur den Raum des Kernes ein (Fig. 647), und wie sonst der Kern, zur Seite gedrückt, [S. 732]abstirbt, so geschieht es hier mit den Resten von dessen Chromatin. Wie sonst die Zellreste eine Cyste um das ungeschlechtliche Coccidium vortäuschen, so hier die Kernreste. Liegt der Parasit nicht im Kern, so bleibt er dennoch erheblich kleiner als die Wirtszelle; die Teilungsprodukte liegen dann frei in einer Vakuole der Wirtszelle.
Bei starker Infektion wirkt natürlich auch E. salamandrae als Erreger eines krankhaften Zustandes.
Der Untergattung Orthospora werden ferner folgende Arten zugezählt:
5. Eimeria propria Aimé Schn. aus Molge = (Triton-)Arten (Molge cristata, palmata, punctata).
Die Oocyste dieser Art ist gestreckt-oval bis kuglig und mißt 21–30 : 30–36 µ. Sie enthält einen großen Restkörper und 4 Sporen, welche 30–35 µ lang werden und ebenfalls einen großen Restkörper neben 2 Sporozoiten enthalten (Fig. 652).
6. Eimeria ranarum Labbé, aus dem Dünndarm von Rana esculenta, ist der vorigen Art sehr ähnlich.
Vielleicht gehören hierher die Fischparasiten:
E. gasterostei (Thél.) aus dem Stichling, E. Wierzcjskii Hofer aus dem Karpfen. Letztere Form ist dadurch ausgezeichnet, daß sie stets im Körper eines Myxosporids eingebettet gefunden wurde.
d) Untergattung: Paracoccidium Lav. u. Mesn.
Der Makrogamet bildet seine Hülle erst nach der Befruchtung. Die Sporoblasten machen kein Pyramidenstadium durch, und was das Bemerkenswerteste ist, die Sporenhülle wird alsbald nach Bildung der Sporozoiten wieder aufgelöst, so daß letztere frei in der Oocyste liegen.
7. Eimeria Prevoti (Laveran u. Mesnil).
|
1902.
|
Paracoccidium Prevoti Laveran
et Mesnil, in: C. R. Soc. Biol. Vol. 54. p. 857.
|
Diese Form weicht in der agamen Fortpflanzung nicht wesentlich von E. Schubergi ab. Auch die Gametenbildung und Befruchtung ist [S. 733]ähnlich. Bei der Sporenbildung entstehen zunächst 4 Sporoblasten nebst einem Restkörper. Die Sporoblasten bilden dann eine dünne Sporenhülle und innerhalb derselben 2 Sporozoiten nebst einem Restkörper. Unmittelbar darauf wird die Sporenhülle wieder aufgelöst, und die 8 Sporozoiten liegen neben den Restkörpern (4 + 1) frei in der Oocyste.
Die Art, welche im Darm von Rana esculenta L. vorkommt, ist offenbar von typischen Eimerien abzuleiten.
e) Untergattung: Crystallospora Labbé.
Diese Untergattung, welche sich sonst im allgemeinen an die typischen Eimerien anzuschließen scheint, unterscheidet sich von den übrigen Untergattungen durch den Besitz von Sporen, welche die Gestalt einer Doppelpyramide haben.
8. Eimeria crystalloides (Thélohan).
|
1893.
|
Coccidium crystalloides Thélohan,
in: C. R. Acad. Sci. Paris. Vol. 117. p. 247.
|
Die einzige bisher bekannte Art dieser Gruppe enthält in der kugligen dünnwandigen Oocyste 4 kristallförmige Sporen (vgl. Fig. 627 F, S. 708) mit je 2 Sporozoiten. Die Oocyste hat einen Durchmesser von 20 bis 24 µ, die Sporen 9–10 : 15 µ.
Die Art lebt im Darmepithel von Motellaarten (M. maculata, fusca, tricirrata).
Wahrscheinlich in die Untergattung Eimeria gehören noch folgende Formen:
9. Eimeria avium (Silvestrini u. Rivolta).
|
1873.
|
Psorospermium avium Silvestrini
e Rivolta, in: Giorn. Anat. Fisiol.
|
|
1886.
|
C. rivolta Harz in: Koch,
Enzyklop. d. ges. Tierheilk. u. Tierzucht.
|
|
1891.
|
C. perforatum Railliet et
Lucet, in: Compt. rend. Soc. Biol. Vol. 43.
p. 820.
|
|
1891.
|
C. tenellum Railliet et
Lucet, in: Bull. Soc. Zool. France. Vol. 16.
p. 250.
|
|
1899.
|
C. avium (S. e R.) Labbé, in:
Tierreich. Lief. 5. Sporozoa. p. 68 (das. Literatur).
|
|
1899.
|
? (Schiz) Pfeifferella avium
(Labbé), in: Arch. Zool. exp. Sér. 3. Vol. 4.
p. 541 und: Tierreich. Lief. 5. Sporozoa. p. 61.
|
|
1908.
|
Morse, G. B., White Diarrhea
of chicks, with Notes on Coccidiosis in Birds. Circular 128. U. S. Dept.
Agricult. Bureau of Animal Industry.
|
|
1909.
|
Hadley, P. B., Studies in
avian Coccidiosis. 1. White Diarrhea of chicks, 2. Roup of fowls. In:
Centralbl. f. Bakteriol. etc. I. Abt. Orig. Vol. 50. p. 348.
|
|
1909.
|
Fantham, H. B., The life-cycle
of Eimeria (Coccidium) avium Silvestrini and Rivolta. In: Proc. Zool. Soc.
London. p. 886.
|
|
1910.
|
— The morphology and life-history of Eimeria (Coccidium
avium): a sporozoon causing a fatal disease among young grouse. Ibid.
p. 672.
|
|
1910.
|
— Experimental studies on avian Coccidiosis, especially
in relation to young grouse, fowls and pigeons. Ibid. p. 708.
|
[S. 734]
Die ungeschlechtlichen Individuen dieser Art haben eine Länge von 10–12 µ. Bei der agamen Fortpflanzung sind die Sprößlinge in einem Bündel mit parallelen Längsachsen gelagert.
Die geschlechtlichen Zustände sind bekannt. Die Oocysten sind grünlich oder gelblich gefärbt durch zahlreiche Granula, welche sie enthalten. Die Hülle ist dünn. Es kommen verschiedene Gestalten der Oocyste vor; gewöhnlich ist sie oval, indem sie 24–36 µ lang und 12–22 µ breit ist; sie kann aber auch birnförmig und kuglig bei einem Durchmesser von 24 µ sein.
Der Restkörper in der Oocyste nach Entstehung der 4 Sporen ist sehr klein; auch die letzteren enthalten einen Restkörper.
Die Sporen entwickeln sich im Kot in 2–3 Tagen. E. avium kommt im Hausgeflügel vor: in Hühnern, Gänsen, Enten, Truthühnern, Fasanen, Pfauen. Sie kommt aber auch bei wilden Vögeln vor, so beim Moorhuhn, Lagopus scoticus. Dort schmarotzt sie im Darmepithel und kann schwere Erkrankungen hervorrufen. Epidemien in einzelnen Züchtereien sind in Europa und Amerika nicht selten beobachtet worden. Dabei waren es vor allem die jungen Tiere, welche in Mengen starben. (Wahrscheinlich gehört der unter dem Namen Amoeba meleagridis von Smith beschriebene Parasit hierher.) In Amerika wird die Coccidiosis des Geflügels auch als weiße Diarrhöe bezeichnet. Nach einigen Autoren sind aber bei letzterer Krankheit Bakterien die Erreger oder doch mitbeteiligt. In Amerika wurde auch Infektion der Leber durch die Coccidien beobachtet. Fantham gelang Uebertragung des E. avium von Lagopus scoticus auf Tauben und Hühner.
10. Eimeria truncata (Railliet u. Lucet).
|
1891.
|
Railliet et
Lucet, in: Compt. rend. Soc. Biol. Vol. 43.
|
|
1899.
|
Labbé, in: Tierreich. Lief. 5.
Sporozoa. p. 68 (das. Literatur).
|
Von dieser Coccidie ist nur die Sporogonie bekannt. Die Oocysten messen 10–20 µ in der Länge und 13–16 µ in der Breite. Sie zeigen am oberen Ende eine breite Mikropyle.
E. truncata kommt in den Darmkanälchen der Niere von Hausgänsen vor.
In der Niere kommen Substanzzerstörungen vor, welche aber nicht so weit gehen wie etwa in der Kaninchenleber bei Infektion mit E. Stiedae.
Die Krankheitserscheinungen sind sehr eigentümliche, die erkrankten Tiere sollen nicht mehr stehen können, sondern stets mit gespreizten Beinen auf den Rücken fallen.
11. Eimeria Pfeifferi (Labbé).
|
1896.
|
Labbé, in: Arch. Zool. expér.
(3) Vol. 4. p. 548; auch: Tierreich. Lief. 5. Sporozoa. p. 68.
|
Die Oocyste ist 18 µ lang, 16 µ breit. Die Sporen entwickeln sich in 3 Tagen.
Das Coccidium lebt im Darm der Taube; auch ruft es heftige endemische Krankheiten hervor. Die Faeces sind dabei sehr flüssig und enthalten zahlreiche Oocysten.
[S. 735]
12. Eimeria Faurei (Mouss. u. Mar).
|
1902.
|
Moussu et
Marotel, La coccidiose du Mouton et son parasite.
In: Arch. Parasitol. Vol. 6. p. 82.
|
Eine noch nicht einwandfrei erforschte Form aus dem Darmkanal von Lämmern, deren Sporogonie typisch verläuft, während die agamen erwachsenen Individuen und die Mikrogametocyten 250–300 µ Durchmesser erreichen sollen. Sehr merkwürdig wäre auch die außerordentliche Kleinheit der agamen Sprößlinge.
13. Eimeria mitraria (Lav. u. Mesn).
|
1902.
|
Laveran u.
Mesnil, Sur quelques Protozoaires parasites
d’une Tortue d’Asie. In: C. R. Acad. Sci. Paris. Vol. 135. p. 609.
|
Diese schon durch ihre Oocystenform sehr merkwürdige Coccidie wurde im Dickdarm von Damonia Reevesi entdeckt. Sehr eigenartig ist, wenn sie sich bestätigt, die Tatsache, daß diese Art den Hauptteil ihrer Entwicklung extracellulär durchmacht. Denn außer den Oocysten fanden sich frei im Dickdarmlumen, dem Epithel nur angelagert, Agameten in allen Vermehrungsstadien, Mikrogametocyten, Makrogameten. In den Epithelzellen ließ sich keine Spur von den Parasiten nachweisen.
Wir haben damit nur einen kleinen Teil der Arten von Eimeria erwähnt. Eine größere Anzahl der erwähnten Formen besitzt eine nicht unbeträchtliche praktische Bedeutung; andere Formen sind hauptsächlich aus theoretischem Interesse angeführt. Es ist aber sehr wohl möglich, daß von den zahlreichen Arten, welche in nicht domestizierten Tieren vorkommen, manche unter diesen auch Seuchen hervorrufen können. Dies anzunehmen, ist besonders naheliegend bei den zahlreichen Formen in Seevögeln und Fischen, deren Infektionsverhältnisse noch ganz unbekannt, jedenfalls aber von besonderem Interesse sind.
Gattung: Barrouxia Schneider.
Zur Gattung Barrouxia gehören Arten mit zahlreichen Sporen in der Oocyste; jede dieser Sporen enthält nur einen Sporozoiten. Wahrscheinlich werden sich nach dem Vorschlage von Mesnil die Arten folgendermaßen auf Untergattungen verteilen lassen:
|
1
|
|
Sporenhülle zweiklappig
|
2.
|
|
Die ovale Spore besitzt eine Mikropyle
|
|||
|
Untergattung Diaspora Léger.
|
|||
|
2
|
|
Spore mit schwanzartigem Anhang an einem Pol.
|
|
|
Untergattung Urobarrouxia Mesnil.
|
|||
|
Spore ohne solchen
|
3.
|
||
|
3
|
|
Spore oval, bestachelt
|
|
|
Untergattung Echinospora Léger.
|
|||
|
Spore linsenförmig, glatt
|
|||
|
Untergattung Barrouxia s. str.
|
Die verschiedenen Arten parasitieren meist im Darm von Myriopoden. Wir erwähnen nur:
[S. 736]
Barrouxia ornata Schneider.
|
1885.
|
Aimé Schneider, Tablettes
zoologiques. Vol. 1. p. 4.
|
|
1897.
|
(Schiz.) Eimeria nepae
Schneider, ebenda Vol. 2. p. 5.
|
Alle Arten der Untergattung Barrouxia s. str. sind durch scheibenförmige Sporen ausgezeichnet, deren Hülle aus zwei durch eine schon im frischen Zustand sichtbare Naht verbundenen Halbschalen besteht (Fig. 655 C–F). Die Sporen enthalten nur einen relativ großen Sporozoiten (Fig. 655 F).
Barrouxia ornata ist durch sehr schöne klare Verhältnisse ausgezeichnet; die geschlechtlichen Zustände der Art sind allerdings nicht genauer bekannt, während sie bei einigen anderen Arten der Gattung studiert worden sind. Aber besonders die jungen ungeschlechtlichen Formen und Sporozoiten von B. ornata sind durch ihre ungewöhnlichen Dimensionen sehr zur Demonstration geeignet.
Das junge Tier ist oval, beim erwachsenen sind die Größenverhältnisse 33 : 24 µ. Das Protoplasma ist fein granuliert, gelblich oder grau. Der Kern ist sehr groß (13 : 11 µ), der zentrale Binnenkörper in ihm erreicht einen Durchmesser von 4 µ (Fig. 654 A u. B).
Die Sprößlinge der ungeschlechtlichen Vermehrung sind ebenfalls sehr groß (55 µ); sie sprossen nur auf einer Hemisphäre des Muttertieres [S. 737](Fig. 654 C–E). Sie sind sichelförmig und haben einen großen deutlichen Kern (Fig. 654 F u. G).
Die Oocyste ist kuglig und erreicht einen Durchmesser von 34 bis 37 µ (Fig. 655 A). In ihr werden zahlreiche Sporen gebildet, welche ellipsoid gestaltet sind und zwei Hüllen besitzen: die äußere (Exospor) zeigt schon im geschlossenen Zustand die Längsnaht sehr deutlich (Fig. 655 C, D), in welcher die beiden Schalenhälften unter dem Einfluß des Darmsaftes des Wirtes sich öffnen, die innere (Endospor), ein einfacher Sack, reißt ein und läßt den einzigen großen Sporozoiten austreten (Fig. 655 E u. F). Die Sporen können bis zu 20 µ Länge, 10 µ Breite erreichen, die Sporozoiten 20 : 5,25 µ. B. ornata lebt im Darmepithel von Nepa cinerea, dem Wasserskorpion.
Gattung: Caryotropha Siedl.
Coccidien mit etwas kompliziertem Generationswechsel, bei welchem der Befruchtung keine Syzygienbildung der Gametocyten vorangeht. Die Bildung der jungen Agameten erfolgt nicht direkt, sondern nach vorhergehender Teilung des erwachsenen Coccids in eine Anzahl von „Agametoblasten“ (Fig. 656 B) durch multiple Teilung. Aehnlich erfolgt eine multiple Teilung vor der Bildung der Mikrogameten, während der Makrogametocyt ohne eingeschaltete multiple [S. 738]Teilung als Ganzes zum befruchtungsreifen Makrogameten wird, indem, außer den Erscheinungen am Kern, Aufspeicherung von Reservesubstanzen und Abscheidung einer von einer Mikropyle durchbohrten Hülle eintritt. Die Oocyste enthält zahlreiche Sporen, deren jede wiederum eine größere Anzahl von Sporozoiten beherbergt.
Caryotropha Mesnili Siedlecki.
|
1902.
|
Siedlecki, Cycle évolutif de
la Caryotropha Mesnili. In: Bull. Acad. Sci. Cracovie. p. 561.
|
Diese einzige bekannte Art der Gattung schmarotzt in der Leibeshöhle des marinen Polychäten Polymnia nebulosa, und zwar in den Spermatogonien, welche in Büscheln vereinigt sind. Die großen ovalen Agameten haben einen großen Kern mit sehr großem zentralen Binnenkörper. Infolge ihrer eigenartigen Vermehrung (Fig. 656 C u. D) findet man in einer Wirtszelle immer entweder ganze einzelne Individuen oder Ansammlungen von solchen. Die Einzelindividuen sind entweder ungeteilte [S. 739]Agameten (Fig. 656 A) oder Makrogameten (Fig. 656 D). Die Individuengruppen sind entweder geteilte Agameten, welche sich dann zu den sichelförmigen jungen Agameten (10–15 Bündel von je 20 bis 30 Sprößlingen) weiter teilen (Fig. 656 C u. D); oder es sind Mikrogametocyten, welche eine Zwischenteilung durchgemacht haben, ehe sich die einzelnen (10–15) entstandenen Produkte in Büschel von Mikrogameten weiterteilen (Fig. 656 E u. F).
Die Oocyste, welche erst nach der Befruchtung eine Hülle erhält, schließt ca. 20 kuglige Sporen ein, je zu 12 Sporozoiten.
Gattung: Klossiella Smith und Johnson.
Klossiella muris Smith und Johnson.
|
1902.
|
Smith and
Johnson, On a Coccidium, parasite in the renal
epithelium of the mouse. In: Journ. exp. Medic. Vol. 6. p. 303.
|
In der Niere der Maus findet sich als einziger Vertreter dieser Gattung ein Parasit, der wohl in diese Familie einzureihen ist. Die für die agamen Stadien erklärten Formen finden sich in den Glomerulis, während die angebliche Sporogonie im Epithel der Tubuli contorti vor sich geht. Letztere Stadien erinnern allerdings vielmehr an die agamen Stadien von Caryotropha. Genauere Untersuchung der interessanten Form wäre sehr erwünscht.
Der Parasit wurde in Cambridge, Massachusetts, Amerika, gefunden.
Gattung: Angeiocystis Brasil.
Angeiocystis audouiniae Brasil.
|
1904.
|
Brasil, Sur une Coccidie
nouvelle, parasite d’un Cirratulien. In: C. R. Acad. Sci. Paris. Vol. 139.
p. 645.
|
|
1909.
|
— Documents sur quelques Sporozoaires d’Annelides. In:
Arch. f. Protistenk. Vol. 16. H. 2. p. 125.
|
[S. 740]
Aehnlich wie bei der unten erwähnten Gattung Orcheobius sind auch bei dieser die Agameten sehr langgestreckt (Monocystis-ähnlich), indem sie bei 50 µ Länge nur 15 µ Breite besitzen. Die Oocysten enthalten 4 Sporen, deren jede zahlreiche, bis zu 30 Sporozoiten einschließt.
2. Familie: Adeleidae Lühe.
Die Adeleiden haben dieselbe einfache Form des Generationswechsels wie die Eimerien. Doch sind bei ihnen in der Regel die Mikrogametocyten merklich kleiner als die Makrogametocyten; während des Wachstums erfolgt oft schon auf jungen Stadien Syzygienbildung zwischen den Gametocyten. Stets teilen sich die Mikrogametocyten in 4 Mikrogameten, welche relativ kurz und plump sind und bei den meisten Gattungen keine Geißeln ausbilden, sondern sich durch wurmartiges Schlängeln bewegen. Der Makrogamet umgibt sich erst nach der Befruchtung mit einer Cystenhülle.
Hier wäre entsprechend der Tabelle S. 712 zuerst die Gattung Haemogregarina Dan. einzufügen. Aus besonderen Gründen wird sie aber erst unten S. 746 behandelt.
Gattung: Legerella Mesnil.
Gattung mit geschlechtlichem Dimorphismus der Agameten. Die doppelte (oder sogar dreifache) Oocystenhülle umschließt direkt die nicht auf mehrere Sporen verteilten, meist in einem Bündel vereinigten Sporozoiten.
Legerella nova Ai. Schneider.
|
1881.
|
Eimeria nova Aimé Schneider,
in: Arch. Zool. expér. Vol. 9. p. 397.
|
|
1900.
|
Eimeria nova Léger, in: Compt.
rend. Soc. Biol. Paris. Vol. 52. p. 575.
|
|
1900.
|
Legerella nova Bonnet-Eymard,
Sur l’évolution de l’E. nova. Ibid. Vol. 52. p. 659.
|
Von allen zahlreichen Arten, welche man früher als Gattung Eimeria zusammenfaßte, ehe man die geschlechtliche Fortpflanzung bei den Coccidien kannte, haben die meisten sich als Entwicklungsstadien anderer Coccidien herausgestellt und zwar als die ungeschlechtliche Generation derselben. Sie sind aber stets nackt und so als Stadien gekennzeichnet, welche den Körper ihres Wirtes nicht verlassen können, ohne durch Eintrocknung zugrunde zu gehen.
Nur wenige Arten zeigen die zahlreichen sichelförmigen Keime, welche sonst so charakteristisch die ungeschlechtlichen Teilsprößlinge repräsentieren, in eine dicke Cyste eingeschlossen. Sie werden jetzt in die Gattung Legerella zusammengefaßt; denn wie Léger nachgewiesen hat, sind tatsächlich diese Cysten die Oocysten, die sichelförmigen Keime, deren sie etwa 30–40 enthalten, die Sporozoiten (Fig. 658 B).
Die Agameten von Legerella sind natürlich ebenfalls nackt; sie sind in weibliche, größere Formen, welche in ca. 30 Sprößlinge zerfallen, und in kleinere, männliche, welche nur 6–8 Sprößlinge bilden, differenziert. Die Gametocyten erinnern sehr an diejenigen von Adelea. Die Syzygienbildung erfolgt manchmal, ehe der Makrogametocyt ausgewachsen ist; dann umwächst er nicht selten den Mikrogametocyten, [S. 741]der dann in eine Vertiefung des ersteren eingebettet wird. Wie bei Adelea, werden 4 Mikrogameten gebildet.
Die Oocysten von Legerella nova haben einen Durchmesser von 32–37 µ, dabei eine doppelte Wandung, während die ungeschlechtlichen Individuen ebenfalls kuglig, aber erheblich kleiner sind und keine Spur einer Wandung besitzen. Die Oocysten finden sich in den Exkrementen ihrer Wirte, und zwar gewöhnlich schon in vollständig reifem Zustand. Doch kann man sie auch außerhalb des Wirtes in der feuchten Kammer zur Reife bringen, wozu sie dann 14 Tage brauchen.
Legerella nova kommt in den Malpighischen Gefäßen von Glomerisarten (Tausendfüßlern) vor, z. B. Glomeris guttatus Risso in der Provence.
Das Fehlen von Spezialhüllen der Sporozoiten kann sowohl, wie Léger dies tat, als sekundäre Rückbildung gedeutet werden, als auch, worauf Lühe aufmerksam gemacht hat, als Vorhandensein einer einzigen Spore mit vielen Sporozoiten ausgelegt werden. Darauf würde eventuell die doppelte Hülle hinweisen. Die erstere Deutung ließe einen Vergleich mit den Hämosporidien zu, die letztere würde einen interessanten Spezialfall der Coccidiensporulation darstellen.
Legerella testiculi Cuénot aus dem Hoden von Glomeris ist durch ovale Oocysten, 15–28 Sporozoiten und dreifache Oocystenhülle ausgezeichnet.
Gattung: Adelea Ai. Schneider.
Agameten geschlechtlich differenziert. In der reifen Cyste finden sich 4 oder mehr ovale, scheibenförmige Sporen mit je 2 Sporozoiten. Von den zahlreichen Arten, welche vorwiegend in Arthropoden vorkommen, seien folgende hervorgehoben:
Adelea ovata Ai. Schneider.
|
1875.
|
Aimé Schneider, in: Arch. Zool. expér. Vol. 4.
p. 598.
|
|
1899.
|
Labbé, in: Tierreich, Lief. 5.
Sporozoa. p. 56 (das. Literatur).
|
|
1899.
|
Siedlecki, in: Ann. Inst.
Pasteur. Vol. 13. p. 169 (das. neueste Literatur).
|
|
1881.
|
(Schiz.) Eimeria Schneideri Bütschli,
in: Zeitschr. wiss. Zool. Vol. 35. p. 405 und Labbé
a. a. O. p. 59.
|
Der Generationswechsel bei dieser Art ist durch einen früh auftretenden sexuellen Dimorphismus gekennzeichnet.
Die ungeschlechtlichen Stadien scheinen von vornherein unterschieden zu sein; es gibt große und kleine Individuen, welche sich zuerst eine Zeitlang durch Schizogonie vermehren (Fig. 659), bis sie nach einer Anzahl von Generationen zur Bildung von Gameten schreiten, und zwar geschieht dies in folgender Weise:
Die großen (♀) Individuen sind 40–70 µ lang, 16–22 µ breit, von meist regelmäßig ellipsoider Form. Sie teilen sich unter Zurücklassung eines Restkörpers (Fig. 659) in 20–40 Sprößlinge, welche sich in die Makrogametocyte umwandeln, nachdem sie in eine neue Zelle eingewandert sind. Durch einen Kernreduktionsvorgang [S. 742]verwandeln sie sich in Makrogameten und fallen in das Darmlumen.
Die kleinen (♂) Individuen erreichen höchstens eine Länge von 40 µ; ihre Gestalt ist oval, sie enthalten einen relativ sehr großen Kern mit einem großen, peripher gelegenen chromatischen Binnenkörper. Sie teilen sich in 8–14, gewöhnlich 12 Nachkommen, und zwar ohne Hinterlassung eines Restkörpers. Diese Sprößlinge, welche im Gegensatz zu den weiblichen im Hinterende des Körpers stark färbbare Granulationen aufweisen, machen nun entweder noch einige ungeschlechtliche Vermehrungszyklen durch, oder sie wachsen direkt zu den Mikrogametocyten heran.
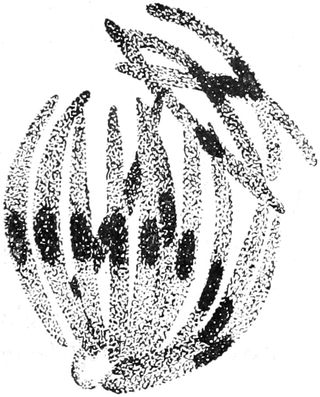
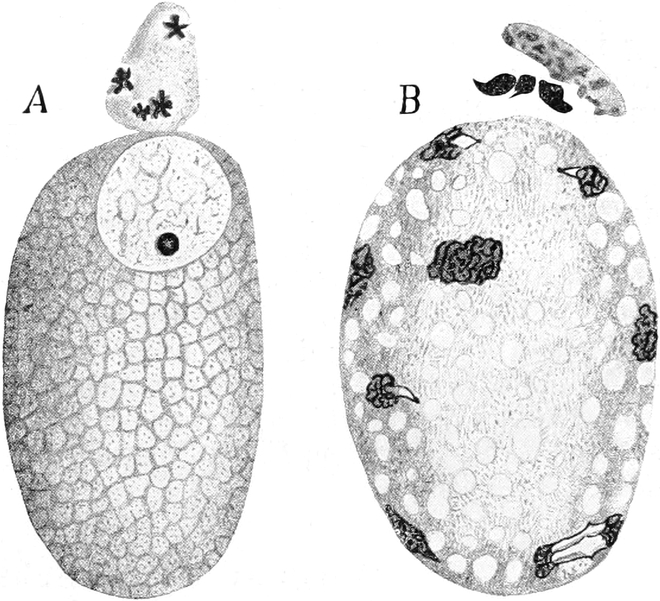
Diese letzteren wandern aus der Wirtszelle in das Darmlumen aus und suchen — wohl durch chemotaktische Wirkung angezogen — die Makrogameten auf. Meist heftet sich nur einer an einen Makrogameten, nach Dobell nicht selten auch zwei. Sie heften oder kleben sich an irgendeiner Stelle der Körperoberfläche derselben an, wandern aber sodann regelmäßig nach dem einen Pol der ellipsoiden Makrogameten. Dort teilt sich im Mikrogametocyten der Kern, so daß 4 Kerne vorhanden sind (Fig. 660 A), um welche sich 4 Mikrogameten bilden. (Nach Dobell geht der Entstehung der 4 Kerne eine chromidiale Auflösung des Kerns voraus, worauf freie Kernbildung [vgl. S. 239] zur Bildung der 4 Mikrogametenkerne führt, Jollos hat Auflösung eines polyenergiden Kerns in seine Komponenten angegeben [vgl. S. 243, Fig. 247]). Auch hier bleibt ein Restkörper übrig, welcher noch lange neben der Oocyste nachweisbar ist, ebenso wie die 3 übrig bleibenden Mikrogameten; denn es dringt [S. 743]von ihnen nur einer ein, um die Befruchtung zu vermitteln (s. Fig. 660 B), nachdem vorher der Makrogametenkern durch eine Art von Reifeteilung einen Teil seiner Substanz abgestoßen hat.
Der Kern der Oocyste teilt sich viele Male (Fig. 660 B), und so entstehen zahlreiche Sporen in der Oocyste. Jede derselben enthält zuletzt 2 Sporozoiten und einen großen Restkörper (Fig. 661 und 662). Die Kerne der Sporozoiten, welche nach der Teilung je an einem Pol liegen (Fig. 661), wandern später noch in die Mitte der Sporozoiten.
Geraten die Sporen in den Darm des Wirtes, Lithobius forficatus, so öffnet sich ihre Schale in 2 Klappen, wie eine Muschel, und die Sporozoiten dringen in Darmepithelzellen.
Die übrigen Arten der Gattung Adelea sind in den meisten Punkten sehr ähnlich:
Adelea Mesnili Perez.
|
1903.
|
Perez, Sur une Coccidie
nouvelle, Adelea Mesnili, parasite coelomique d’un Lépidoptère. In:
C. R. Soc. Biol. Paris. Vol. 51. p. 694, und: Arch. f. Protistenk. Vol. 2.
p. 1.
|
Bei dieser Form ist der geschlechtliche Dimorphismus der Agameten zwar wahrscheinlich, aber nicht ganz sicher nachgewiesen. Die Befruchtung geht jedoch ganz wie bei A. ovata vor sich. Bemerkenswert ist, daß die Entwicklung der Mikrogameten vor sich gehen kann, ohne daß Syzygienbildung mit einem Makrogametocyten erfolgt ist. Die Oocysten messen 30–50 µ in der Länge und 20–35 µ in der Breite. Sie enthalten 3–9 (durchschnittlich 6–8) Sporen von 15 µ Durchmesser. Die Art befällt fast alle Organe, vor allem aber die Fettkörperzellen der Motte Tineola biseliella Zll. (vgl. Fig. 275 und 276, S. 292).
Sehr ähnliche Entwicklung scheinen Adelea dimidiata Ai. Schn., A. akidium Léger, A. tipulae Léger, Adelea zonula Moroff (Fig. 662) und andere Formen zu haben. A. dimidiata bildet übrigens durch die kuglige Gestalt ihrer dickwandigen, in einer kugligen dickwandigen Oocyste eingeschlossenen Sporen einen Uebergang zu Klossia.
[S. 744]
Eine weitere, Adelea in der Entwicklung nahestehende Form, deren Oocysten jedoch im reifen Zustand 3 Sporen zu je 4 Sporozoiten enthalten, wurde von Léger zur Vertreterin der Gattung Chagasia gemacht. Es ist dies Chagasia Hartmanni (Chagas) aus der brasilianischen Hemiptere Dysdercus ruficollis L. Einen Uebergang zwischen Adelea und Klossia bildet die Gattung Hyaloklossia Labbé, bei welcher (H. Pelseneeri Léger) in der nämlichen Oocyste zahlreiche Sporen mit 2 und mit 4 Sporozoiten vorkommen.
Mit Reserve wird hier auch die Gattung Minchinia Labbé eingefügt, deren Sporen zwei Sporozoiten umschließen; die Sporenhülle ist in lange Fäden verlängert (vgl. Fig. 627 A), doch ist von dieser Gattung die geschlechtliche Entwicklung noch unbekannt. M. chitonis R.-L. kommt in der Leber von Chitonen vor, ähnliche Formen in anderen marinen Schnecken (Trochus, Patella).
Gattung: Klossia Ai. Schneider.
Klossia helicina Ai. Schneider.
|
1875.
|
Aimé Schneider, in: Arch. Zool.
expér. Vol. 4.
|
|
1898.
|
Labbé, in: Tierreich. Lief. 5.
Sporozoa. p. 54 (das. Literatur).
|
|
1899.
|
Laveran, in: Compt. rend. Soc.
Biol. Paris. (10) Vol. 5. p. 1083.
|
Die Klossien sind durch kuglige Sporen ausgezeichnet, welche 4 Sporozoiten und einen Restkörper enthalten. Wie bei Legerella, verläuft die Sporogonie innerhalb des Wirtes. Schizogonie ist bekannt. Die geschlechtlichen Vorgänge verlaufen sehr ähnlich wie bei Adelea (s. dort). Sie sind sämtlich Parasiten von Mollusken.
Die reifen Oocysten von K. helicina sind sehr groß und ragen als granulierte Kugeln in das Lumen der Nierenkanälchen ihrer Wirte hinein. Sie erreichen durchschnittlich einen Durchmesser von 100 µ. [S. 745]In den Oocysten entstehen bis zu 160 Sporen von Kugelform mit 4 Sporozoiten und einem Restkörper.
Der Parasit lebt in der Niere von Helix hortensis, hispida, nemoralis, arbustorum, fruticum, umbrosa, Succinea Pfeifferi und gigantea (Landschnecken). In Helix hortensis und hispida ist er stellenweise sehr häufig.
Gattung: Orcheobius Schuberg und Kunze.
Von Klossia eigentlich nur durch die langgestreckte, Monocystis-ähnliche Form der Gametocyten unterschieden.
Orcheobius herpobdellae Schuberg u. Kunze.
|
1907.
|
Ueber Orcheobius herpobdellae Kunze,
in: Arch. f. Protistenk. Vol. 9. p. 382.
|
Bei dieser Form ist keine Differenzierung in männliche und weibliche Agameten nachweisbar. Die agame Fortpflanzung findet innerhalb der „Cytophoren“ des Herpobdellahodens statt. Die letzte Generation der Agameten wird in die Lymphocyten des Hodens aufgenommen, wo sie zu den Gametocyten heranwachsen. Infolge der Größe der Gametocyten werden die sie umschließenden [S. 746]Lymphocyten zu einer dünnen Hülle deformiert. Die Mikrogametocyten und vor allem die sehr großen Makrogametocyten erinnern in der Form an eine Monocystis, doch sind sie unbeweglich; sie besitzen reichlich Zooamylum (Paraglykogen). Die erwachsenen Makrogameten messen 780 µ Länge und 30 µ in der Breite, die Mikrogametocyten 50 µ Länge und 12 µ Breite, woraus hervorgeht, daß auch letztere wie bei Klossia oder im Gegensatz zu Adelea und Legerella ein nicht unerhebliches Wachstum durchmachen.
Es werden 4 Mikrogameten, ähnlich wie bei Adelea, gebildet, dieselben sind zweigeißelig und kurz (vgl. Fig. 200 D1 u. D2, S. 196). Die Oocyste ist ellipsoid mit zahlreichen (25–30) kugligen Sporen, welche wie bei Klossia 4 Sporozoiten enthalten.
Die Art wurde im Hoden von Herpobdella atomaria (= Nephelis vulgaris) gefunden. Bei Heidelberg beginnt die agame Fortpflanzung im April, die Sporogonie endigt Anfang bis Mitte August.
Hämogregarinen.
Wir fügen an dieser Stelle die Hämogregarinen ein, von denen jedenfalls ein Teil nach den neueren Untersuchungen zu den echten Coccidien zu rechnen ist. Ja, wie wir oben sahen, wäre der einzigen genau untersuchten Form eine bestimmte Stelle im Coccidiensystem bei den Adeleiden zuzuweisen. Es ist jedoch praktischer bei dem gegenwärtigen Stand unserer Kenntnisse alle ähnlichen Formen hier zusammenzustellen, da uns erst neue Untersuchungen genaue Aufschlüsse über ihre natürliche Verwandtschaft bringen werden.
Die hier zusammengestellten Formen sind coccidien-ähnlich aussehende Blutkörperchenschmarotzer von Wirbeltieren (Fischen, Amphibien, Reptilien, Vögeln und Säugetieren). Sie scheinen ihr Wachstum meist innerhalb der roten, zum Teil auch der weißen Blutzellen, durchzumachen. Ihnen fehlt (meist?) das bei den echten Hämosporidien typische Pigment. Ihre Form ist relativ beständig, wohl bedingt durch eine festere pellikulare Bildung; sie ist meist wurm- oder gregarinenähnlich. An Gregarinen erinnern diese Protozoen auch durch die Art ihrer Körperbewegungen, welche ohne Formänderungen erfolgen können.
Im Anschluß an die oben (S. 450) angeführten Arbeiten und theoretischen Anschauungen Schaudinns wurde von seinen Schülern, so von Hartmann und Prowazek die Anschauung vertreten, daß die sämtlichen Blutkörperchenschmarotzer der Wirbeltiere von den Trypanosomen direkt abzuleitende Flagellaten seien. Auch für die Hämogregarinen und ihre Verwandten wurde dies angenommen. Die Annahme Schaudinns, daß Trypanosomen und hämogregarinen-ähnliche Blutkörperchenschmarotzer Stadien desselben Organismus seien, wurde noch besonders gestützt durch die Tatsache, daß so auffallend oft im selben Wirtstier gleichzeitig Hämogregarinen und Trypanosomen gefunden werden. Doch ist dies gemeinsame Vorkommen offenbar darauf zurückzuführen, daß beide Parasiten einen gemeinsamen Ueberträger haben.
Wie ich schon in der vorigen Auflage dieses Buches hervorhob, war es von vornherein wahrscheinlich, daß Coccidien auch in die Blutbahn gelangen und Parasiten der Blutkörperchen werden können. Es ist nun mittlerweile mit Sicherheit nachgewiesen worden, daß gewisse [S. 747]Hämogregarinen jedenfalls als derartige Blutcoccidien aufzufassen sind. Es erhebt sich damit die Frage, ob wir nunmehr berechtigt sind, alle Blutkörperchenschmarotzer der Wirbeltiere hier einzuordnen. Wir müssen vorläufig zugeben, daß dies nicht sichergestellt, ja für manche Formen (z. B. Babesien) nicht einmal wahrscheinlich ist. Es ist auch darauf hingewiesen worden, daß gewisse hämogregarinenähnlich aussehende Blutkörperchenschmarotzer sich in einem interessanten Punkt ihrer Organisation von den Hämogregarinen unterscheiden. Es findet sich nämlich bei gewissen Formen regelmäßig neben dem Kern ein rundliches Körperchen, welches sich ähnlich wie ein Blepharoplast färbt und das gelegentlich auch durch einen feinen Faden mit dem Karyosom des Kerns verbunden sein kann. Dieser Körper wird von Hartmann und seinen Schülern nun tatsächlich als Blepharoplast gedeutet, und es wird angenommen, daß es neben den echten Hämogregarinen eine zweite Gruppe von Blutkörperchenparasiten gibt, welche — wie Haemoproteus und Leucocytozoon — von Flagellaten direkt abzuleiten sind, eventuell sogar ein Trypanosomenstadium durchmachen, und welche von den Flagellaten zu den Plasmodien den Uebergang vermitteln.
Ich bin nun der Ansicht, daß es nicht angeht, einen solchen färbbaren Tupfen in einer Protozoenzelle ohne weiteres zum Ausgangspunkt folgenreicher Deutungen zu machen, da es nicht erwiesen ist, ob es sich um ein Zellorgan handelt, nicht bekannt ist, wie es sich bei Vermehrungsvorgängen verhält etc. Doch will ich zugeben, daß möglicherweise die große Uebung der betreffenden Untersucher im Studium feinster Zellstrukturen sie zu einer richtigen Deutung befähigt. Möglicherweise ist also die Verwandtschaft von Lankesterella, Haemoproteus und Leucocytozoon mit den Hämogregarinen und damit mit den Coccidien keine so enge, als ihr Aussehen und Bau zunächst vermuten läßt. Sie sind also den echten Hämogregarinen zunächst provisorisch angefügt, wie denn auch die Stellung von Karyolysus und Leucocytogregarina, welche sicher den Coccidien anzugliedern sind, aber deren geschlechtliche Fortpflanzung nicht genau erforscht ist, noch nicht im einzelnen festgelegt werden kann.
Gattung: Haemogregarina Danilewsky.
Auch die Gattung Haemogregarina besteht aus zahlreichen, von den verschiedensten Autoren beschriebenen, aber sehr ungenügend definierten Arten. Von der Mehrzahl kennen wir nur einzelne Stadien, und die genaueren Angaben über einige hierher gerechneten Formen sind vorläufig mit einiger Vorsicht zu betrachten. Die zur Gattung gegenwärtig gerechneten Arten gehören vielleicht zu verschiedenen Gattungen. Die beschriebenen Stadien aus dem Blut der Wirbeltiere sind bohnen- bis hantelförmig, bisweilen kommen auch keulen- und kaulquappenähnliche Formen vor.
Beschrieben sind Hämogregarinen aus Säugetieren, Eidechsen, Schlangen, Schildkröten, Krokodilen und Fischen. Als Ueberträger werden Blutegel, Zecken, Läuse und Flöhe und eventuell Pentastomen verdächtigt. Wenigstens hat Prowazek im Darmtraktus des Pentastomiden Porocephalus moniliformis aus einem javanischen Python Ookineten und Cysten gefunden, welche möglicherweise zu Haemogregarina [S. 748]pythonis Bill. gehören. Für die Cysten wird das allerdings von Patton bestritten.
Neuerdings wurde die Entwicklungsgeschichte einer Form, der Haemogregarina Stepanowi von Reichenow genau untersucht. Es stellte sich dabei heraus, daß die früher von Siegl gemachten Angaben über den Entwicklungszyklus dieser Art unrichtig waren, und daß die Hämogregarinen, wie ich schon in der 2. Auflage dieses Werkes andeutete, als echte Coccidien aufzufassen sind.
Die Entwicklung dieser Hämogregarine verläuft nach Reichenow folgendermaßen: Im Blut der Sumpfschildkröte, in welches sie durch das Saugen des Blutegels Placobdella geraten sind, dringen die jungen agamen Stadien in die roten Blutkörperchen. Nur im Knochenmark finden sich die Vermehrungsstadien, welche im Anfang der Infektion bis zu 24 Sprößlinge liefern. Später werden die Schizonten allmählich kleiner; während sie im Anfang so groß wurden, daß sie sich zu einem zweischenkligen Gebilde umbogen (Fig. 667 B), wachsen sie jetzt heran, ohne dies zweischenklige Stadium durchzumachen. Sie liefern dann bei der Teilung, welche nunmehr auch im peripheren [S. 749]Blut erfolgen kann, nur eine kleine Zahl (ca. 4) Sprößlinge. Diese sind es nun, welche zu Gameten werden, wobei sich bald eine Differenzierung zwischen den männlichen und weiblichen Individuen erkennen läßt. Die Makrogameten sind durch Reichtum an Reservestoffen ausgezeichnet (Fig. 669 A); sie haben einen kleinen runden Kern. Die Mikrogametocyten dagegen sind etwas weniger reich an Reservestoffen, haben am Vorderende eine eigentümliche Streifung aufzuweisen (Fig. 669 B), welche durch scheibenweise Schichtung des Protoplasmas bedingt ist, und einen länglichen, fast rechteckigen Kern.
Diese beiden Gametenformen konjugieren im Darm des Blutegels. Und zwar geht der Vorgang ganz nach dem Typus der Adeleiden vor sich. Beide Elemente legen sich aneinander und verkleben (Fig. 670 A). Aus dem Mikrogametocyten bilden sich 4 Mikrogameten (Fig. 670 B), deren einer den Makrogameten befruchtet (Fig. 670 C). Die Befruchtungsspindel, welche ganz wie bei anderen Coccidien entsteht, geht in ein Synkaryon über, aus welchem nun durch Teilung 8 Kerne entstehen, welche zur Bildung von 8 Sporozoiten führen, die einen Restkörper umgeben. Diese Sporozoiten sind nicht in eine feste Sporenhülle eingeschlossen, vielmehr nur von einer ganz harten Oocystenmembran umschlossen. Sind sie fertig ausgebildet, so lösen sie sich vom Restkörper los und dringen durch die [S. 750]Darmwand in die den Darm umhüllenden Bluträume des Egels. Von hier verbreiten sie sich weiter in das Rückengefäß, in dem sie sich zum Teil mit dem einen Ende an der Wandung festhaften. Sie werden aber bei den Pulsationen des Rückengefäßes in diesem hin und her bewegt und besonders beim Saugakt durch die Erweiterung des sich füllenden Magens nach vorn in die Rüsselgegend gedrängt. Dort gelangen sie durch eine Ruptur, wie Reichenow annimmt, gegen Ende des Saugakts in den Rüssel und von da in das Blut der Schildkröte.
Ehe wir nicht von einer größeren Anzahl von Formen die Lebensgeschichte kennen, wird es nicht möglich sein, in die verwirrende Menge von Arten, die beschrieben sind, Ordnung zu bringen. Doch ist wohl jetzt schon anzunehmen, daß die zur Gattung Haemogregarina gerechneten Arten auf mehrere Gattungen verteilt werden müssen. Hartmann und Chagas haben in einer allerdings bisher noch lückenhaft gebliebenen Untersuchung gezeigt, daß bei Schlangenhämogregarinen (H. Lutzi H. u. Ch., H. serpentinum Lutz) sich ebenfalls im Anfang der Infektion besonders große Stadien entwickeln, welche, nachdem sie aus den zerstörten Erythrocyten herausgefallen sind, sich in den Leber- und Lungenkapillaren auf das Vielfache ihres Umfangs (bis 50 µ Durchmesser) vergrößern und in 32 bis 64 Merozoiten zerfallen. Später treten kleinere Formen auf, von denen eventuell wiederum die Gameten abgeleitet werden können. Letztere sind nicht mit Sicherheit beobachtet worden, doch werden sie mit gewissen Stadien aus der Leber in Beziehung gesetzt, welche nur 2 Keimlinge enthalten und eventuell die Oocysten mit ihren Sporozoiten darstellen. Falls sich die Deutungen bestätigen, würde hier eine Entwicklung ohne Wirtswechsel vorliegen.
Für alle genauer untersuchten Formen ist es charakteristisch, daß die agame Vermehrung nur ausnahmsweise im peripheren Blut, [S. 751]regelmäßig jedoch in inneren. vor allem blutbereitenden Organen, erfolgt, so in Milz, Knochenmark, doch auch Niere, Lunge, Leber.
Von Arten seien erwähnt:
Haemogregarina Stepanowi Dan.
Ferner sei hier nur hingewiesen auf die große Menge von Hämogregarinenarten. welche vor allem aus Reptilien und Fischen (vgl. vor allem die im Literaturverzeichnis angeführten Schriften von Sambon, Neumann etc.). Auch von den Vogelparasiten dürfte eine Anzahl Arten hierher gehören, die bald zur Gattung Haemoproteus, bald zu Halteridium (s. unten S. 758 und S. 764) gestellt werden.
Von besonderem Interesse sind ferner einige Formen aus Säugetieren, welche wir hier kurz anführen:
Haemogregarina Balfouri Laveran.
|
1905.
|
Balfour, A., A Haemogregarine
of Mammals. In: Journ. trop. Med. Vol. 8. p. 241; Vol. 9. p. 81.
|
|
1906.
|
— A Haemogregarine of Mammals. In: Second Rep. Wellcome
Res. Lab. Khartoum. p. 97.
|
Dieser Parasit ist im Sudan in den roten Blutkörperchen der Springmaus, Jaculus jaculus L. (der sog. Jerboa), gefunden worden. Die erwachsenen Formen ähneln denjenigen von Leucocytogregarina perniciosa (S. 753), auch sie können in Würmchenform die Blutzellen verlassen. Die agame Vermehrung geht in Cysten in Leber, Niere und Knochenmark vor sich. Die Stadien erinnern außerordentlich an die entsprechenden von Coccidien.
Haemogregarina gerbilli Christophers.
|
1905.
|
Christophers, Haemogregarina
gerbilli. In: Sci. Mem. Offic. Med. San. Depart. Govt. India. N. S. No.
18.
|
Auch diese Art parasitiert in roten Blutkörperchen, und zwar bei Gerbillus indicus, einem in Indien häufigen Nagetier; in der Gestalt erinnert sie an die vorher beschriebenen Formen. Agame Vermehrung nicht bekannt. In der auf dem Gerbillus vorkommenden Laus Haematopinus Stephensi wurden die freien Würmchenstadien und Cysten gefunden, von denen es aber noch unsicher ist, ob sie mit den Hämogregarinen etwas zu tun haben.
Gattung: Karyolysus Labbé.
Die Gattung Karyolysus hat ihren Namen von dem ausgiebigen Einfluß, den ihr Parasitismus auf die kernhaltigen roten Blutkörperchen der befallenen Reptilien (Eidechsen und Schlangen) zeigt. Die frisch infizierten Blutkörperchen erfahren nämlich an Zellleib und Kern zunächst eine Vergrößerung. Dann aber zerfällt der Kern, und es tritt eine so vollkommene Zerstörung des Zellleibs ein, daß nur kümmerliche Reste desselben wie eine Cystenhülle die agamen Vermehrungsstadien [S. 752]des Parasiten umgeben. Die bestbekannte Form unter den zahlreichen beschriebenen ist Karyolysus lacertarum (Danil.), welche in einigen Lacertaarten vorkommt. Es sind relativ große Organismen (11–14 µ im erwachsenen Zustand). Bei der agamen Vermehrung, welche nach Labbé hauptsächlich in der Milz der Eidechsen vor sich geht, zeigt sich ein interessanter Dimorphismus der Individuen, von denen die einen große Sprößlinge (von 7–8 µ Länge) bilden, die anderen kleine (von 4–5 µ Länge). Die großen Sprößlinge können zu 4–5 entstehen, die sie einschließenden Hüllen messen dann 14–15 µ im Durchmesser, oder es bilden sich 20–25 Keime in Hüllen von 25–27 µ Durchmesser. Die kleinen Sprößlinge entstehen stets in großer Zahl in Hüllen von 15–30 µ Längsdurchmesser.
Die Uebertragung wird durch die Zecke Ixodes ricinus (L.) vermittelt, in welcher nach Schaudinn Befruchtung, Ookinetenbildung und Sporogonie erfolgt. Und zwar sind die Ueberträger die Larven und Nymphen dieser Zecke, welche im geschlechtsreifen Zustand nur noch auf Säugetieren, nicht mehr auf Reptilien lebt.
Genaueres über den Teil des Zeugungskreises, welcher in der Zecke verläuft, ist noch nicht bekannt. Doch gibt Schaudinn an, [S. 753]daß eine Vererbung der Parasiten auf Tochtertiere der Zecke stattfindet. Aber nicht nur solche, sondern auch die primär infizierten Zeckenindividuen können die Infektion verbreiten.
Gattung: Leucocytogregarina Porter.
|
1909.
|
Porter, A., The Leucocytozoa.
In: Science Progress. No. 14. p. 248.
|
Es erscheint mir praktisch, den Namen Leucocytogregarina wenigstens vorläufig anzunehmen, um bei dem gegenwärtigen Stand unseres Wissens die Parasiten der weißen Blutkörperchen der Säugetiere und eventuell anderer Wirbeltiere zusammenzufassen. Ob sie wirklich zusammengehören, wird erst das Studium ihrer Entwicklungsgeschichte lehren, die auch entscheiden muß, ob sie nähere Beziehungen zu den hämogregarinenartigen Parasiten der roten Blutkörperchen von Säugetieren (vgl. S. 751) und anderen Wirbeltieren besitzen. Wir trennen sie damit auch von den Leukocytozoen, die bisher ausschließlich als Vogelparasiten bekannt sind und deren Verwandtschaftsverhältnisse noch ungeklärt sind. Bisher wurden die Säugetier- und Vogelparasiten in eine Gattung (Leukocytozoon) gestellt.
1. Leucocytogregarina perniciosa (Miller).
|
1908.
|
Miller, W. W., Hepatozoon
perniciosum, a Haemogregarine pathogenic for white rats etc. Treasury
Depart. Public Health and Marine Hospital Service U. S., Hygienic Lab.
Bull. No. 46, Washington.
|
Wie mehrere der anderen in Säugetieren gefundenen verwandten Formen, so findet sich auch dieser Parasit der weißen Ratten im peripheren Blut in den Leukocyten, und zwar in Form von großen ovalen einkernigen Gebilden. Der Parasit kommt auch in „Würmchen“-Form frei im Blut vor und kriecht dann umher, wobei das vorwärts gerichtete Ende zugespitzt, das Hinterende abgerundet ist; die Länge der Parasiten beträgt 15–16 µ. Im Leukocyten sind sie von einer cystenartigen Hülle umgeben.
Diese Formen stammen nach Miller von Stadien ab, die in der Leber der Ratten sitzen; die im Blut nachgewiesenen Stadien sind alle gleich groß und von gleichem Entwicklungsstadium; diese findet man auch in Milz, Niere und Hirn. Aber nur in der Leber wurden die Vermehrungs- und Wachstumsstadien nachgewiesen. Hier finden sie sich zunächst als kleine, einkernige kuglige Körper, welche bis zu ovalen Gebilden von 25 : 30 oder selbst 28 : 35 µ Größe heranwachsen. Der Kern vermehrt sich in diesen von einer dünnen Cystenhülle umgebenen Agameten bis zu 12–20 Tochterkernen, welche vor der agamen Vermehrung in zwei Gruppen an beiden Polen gruppiert sind. Durch die agame Vermehrung (die Schizogonie) entstehen 12–20 würmchenähnliche Individuen, welche entweder neue Leberzellen infizieren oder ins Blut geraten und dort in den mononukleären Leukocyten das Hämogregarinenstadium durchmachen.
Die Ratten erkranken schwer und sterben vielfach an der Infektion.
Nach Miller wird die Infektion durch eine Acaride aus der Familie der Gamasiden, Lelaps echidninus Berlese, übertragen; die Weibchen dieser Milbe sind echte Blutsauger, aber die kleinen Tiere haben einen weniger ausdehnbaren Körper als die Zecken. Sie saugen daher immer wieder kleine Portionen Blut auf demselben oder auf [S. 754]verschiedenen Tieren; sie verlassen den Wirt bei Tag und saugen nur nachts.
Milben, welche an infizierten Ratten gesaugt haben, enthalten in ihrem Körper alle möglichen Stadien des Parasiten. Nach dem Saugen werden zunächst die Stadien von Hepatozoon in Form von Würmchen frei, indem die Leukocyten aufgelöst werden. Sie erweisen sich nach Miller als Gameten, indem je zwei von ihnen kopulieren. Der Gestalt nach sind sie als Isogameten zu bezeichnen, doch verhalten sie sich bei der Kopulation insofern etwas verschieden, als der eine den anderen in eigenartiger Weise umfaßt und umfließt, ehe die Verschmelzung und darauf die Karyogamie erfolgt. (Sollte hier vielleicht eine ungenaue Darstellung und unrichtige Deutung von Vorgängen vorliegen, welche den von Reichenow bei Haemogregarina Stepanowi entdeckten Kopulationsstadien entsprechen? Auch bei der unten erwähnten L. canis kann man sich des Verdachts nicht erwehren, als seien zwar ganz richtige Beobachtungen gemacht, die entscheidenden Stadien aber übersehen worden. Es wäre dann die vermeintliche Kopulation die Konjugation der Gametocyten, aus denen sich dann erst etwa nach dem Adeleidentypus die Gameten entwickeln). Die Zygote wird zu einem beweglichen Ookineten, der im Darmlumen heranwächst und nach 48 Stunden einen Durchmesser von 25–50 µ erreicht.
Nun sollen manche von den oft sehr zahlreichen Ookineten mit den Faeces entleert werden, während die anderen teils in der Darmwand, teils jenseits derselben in allen möglichen Hohlräumen des Körpers nachweisbar sind. 4–5 Tage nach der Infektion der Milbe findet man in ihr die Ookineten zu Cysten von 60–75 µ Durchmesser herangewachsen; diese Oocysten erreichen schließlich nach 6–7 Tagen einen Durchmesser von 200–250 µ. Wenn sie noch etwas kleiner sind, beginnt die Kernvermehrung, welche zur Bildung von 50–100 oder mehr kugligen, einkernigen Gebilden von 25–30 µ Durchmesser führt, welche Miller als Sporoblasten bezeichnet; denn sie werden vielkernig, umgeben sich mit einer Cystenhülle, und es entstehen in ihnen 10–24, meist 16 Sporozoiten. Solche reifen Oocysten finden sich 10–12 Tage nach der Infektion der Milben in deren sämtlichen Organen, auch in den Speicheldrüsen.
Die Infektion wird von den Milben wiederum auf Ratten übertragen, und zwar zeigte sich bei den Experimenten, daß die Infektion prompt erfolgt, wenn reife Oocysten (meist mit den sie enthaltenden Milben) von den Ratten verschluckt werden. Die Sporen öffnen sich leicht im Duodenalsaft der Ratten, und in ihm werden die Sporozoiten lebhaft beweglich.
Die Art wurde in Washington in weißen Ratten gefunden, bei denen sie eine tödliche Epidemie erzeugte.
Ebenfalls in Ratten, und zwar in wilden Exemplaren der Wanderratte, fand Balfour in Khartum eine Leukocytogregarine (L. muris B.). Eine eventuell identische Form wurde von Cleland in Westaustralien ebenfalls bei Ratten nachgewiesen. Beide sind vielleicht identisch mit L. ratti Adie (1906 Adie, Note on a Leucocytozoon found in Mus rattus in the Punjab; in: Journ. trop. Med. Vol. 9. p. 325). Und alle diese Formen sind eventuell nicht zu trennen von L. perniciosa, welche nur durch eine größere Virulenz ausgezeichnet zu sein scheint.
[S. 755]
2. Leucocytogregarina canis James.
|
1905.
|
James, On a parasite found in
the white corpuscles of the blood of dogs. In: Sci. Mem. Off. Med. San.
Depart. Governm. India. N. S. No. 14.
|
Diese in Indien in den weißen Blutkörperchen von Haushunden gefundene Form ähnelt in vielen Eigenschaften der vorigen. Agame Vermehrung wurde im Knochenmark nachgewiesen; die Gamogonie und metagame Vermehrung geht nach Christophers im Darmepithel der Hundezecke Rhipicephalus sanguineus vor sich. Dieser Teil des Zyklus ist in den Einzelheiten noch nicht ganz klar; vor allem ist die Gametenbildung, die metagame Teilung und die Neuinfektion der Hunde noch problematisch. Nach Gerard kommt L. canis auch auf Malakka, nach französischen Autoren in Tonkin vor.
Ferner ist hier zu erwähnen Leucocytogregarina musculi (A. Porter) aus weißen Mäusen (in London), L. felis domesticae Patton aus der Hauskatze, L. leporis Patton aus Lepus nigricollis (letztere beiden in Indien). Dorther stammt auch L. funambuli aus Funambulus Pennanti. [S. 756]Bei dieser Art geht die agame Vermehrung in der Lunge des Wirtes vor sich und erinnert an die unten geschilderten Stadien von Haemoproteus columbae (vgl. S. 761). Leucocytogregarinen sind auch noch aus den weißen Blutkörperchen des Amphibs Leptodactylus ocellatus (Leucocytozoon ranarum Carini) beschrieben worden.
Gattung: Lankesterella Labbé.
Lankesterella ranarum (Lank.).
|
1871.
|
Lankester, in: Quarterly
Journ. Micr. Sci. N. Ser. Vol. 11. p. 387.
|
|
1882.
|
Drepanidium ranarum Lankester,
ibid. Vol. 22. p. 53.
|
|
1890.
|
Haemogregarina ranarum Kruse
(p. pte.), in: Arch. f. path. Anat. Vol. 120. p. 541.
|
|
1892.
|
Laverania ranarum Grassi und
Feletti, in: Atti Accad. Catania. Ser. 4. Vol.
5. p. 15.
|
|
1894.
|
Dactylosoma splendens Labbé,
in: Arch. Zool. expér. Sér. 3. Vol. 3. p. 100.
|
|
1894.
|
Drepanidium princeps Labbé,
in: Arch. Zool. expér. Sér. 3. Vol. 2. p. 76.
|
|
1899.
|
Lankesterella ranarum Labbé,
in: Tierreich. Lief. 5. p. 74. (Daselbst auch Literatur.) Sporozoa.
|
|
1901.
|
Lankesterella minima (Chaussat) R.
Hintze, Lebensweise und Entwicklung von L. m. In: Zool. Jahrb. Abt.
Anat. Vol. 15. p. 693.
|
|
1902.
|
Durham, Depranidium in the
Toad. In: Liverpool School of trop. Med. Mem. 7. p. 78.
|
|
1907.
|
Dutton,
Toad and Tobey,
Concerning certain parasitic protozoa observed in Africa. In: Ann. tropic.
Medic. Vol. 1. p. 287.
|
Die Lankesterellen sind Formen, welche meist in Gestalt kleiner „Würmchen“ gefunden werden, die neben den Kernen der Erythrocyten in den letzteren liegen. Und zwar haben diese Würmchenform sowohl die jungen Agameten, als auch die Gameten. Erstere runden sich später ab, und die agame Vermehrung geht nach verschiedenen Typen vor sich, indem die jungen Sprößlinge um einen Restkörper bald rosetten-, bald fächerförmig angeordnet sind.
Ueber die geschlechtliche Fortpflanzung können wir bei dem augenblicklichen Stand unserer Kenntnisse keine bestimmten Angaben machen. Zwei verschiedene Darstellungen, beide in ihrer Entstehung durch Theorien bedingt, sind in den letzten Jahren aufgetaucht, um beide schnell wieder unhaltbar zu werden.
Hintze nahm im Anschluß an frühere Meinungen Schaudinns an, daß die Befruchtung in der Blutbahn des Frosches erfolge, worauf der Ookinet in die Darmwand des Frosches einwandere, um als beschalte Oocyste in den Darm zu geraten und mit dessen Inhalt in [S. 757]die Außenwelt entleert zu werden. Diese Annahme wurde später von Schaudinn selbst aufgegeben, indem er vermutete, wie das auch durch Lühe geschehen war, daß Verwechslung mit Coccidien vorgekommen sei.
Billet hatte unter dem Einfluß der Theorie von dem engen Zusammenhang der Trypanosomen mit Hämosporidien das Trypanosoma inopinatum aus dem Frosch für ein Stadium der Lankesterella erklärt, was sich auch nicht bestätigt hat. Auch gibt neuerdings Hartmann an, daß neben dem Kern bei Lankesterella ranarum ein Blepharoplast liege.
Dagegen hat Durham wahrscheinlich gemacht, daß die von ihm in Südamerika in einer Kröte entdeckten Drepanidien in ähnlicher Weise wie die genauer studierten Hämosporidien durch Wirtswechsel in einer Zecke (Ixodes sp.) den geschlechtlichen Teil ihres Zeugungskreises durchmachen. Genaueres ist aber bisher nicht bekannt geworden.
Die Art kommt im Blut von Rana esculenta L. vor, wo sich auch eine zweite Art, L. monilis (Labbé), findet. Eine ganze Reihe anderer Formen sind in Anuren und Urodelen in den verschiedensten Gegenden der Erde gefunden worden. Vgl. dazu auch die Untersuchungen von Lutz, Lit.-Verz. am Schluß des Kapitels über die Sporozoen.
[S. 758]
Gattung: Haemoproteus Kruse.
Wir haben oben S. 450 u. 746 dargestellt, in welcher Weise nach der Ansicht Schaudinns und seiner Schüler die unter den Gattungsnamen Haemoproteus und Halteridium beschriebenen Parasiten der roten Blutkörperchen von Vögeln in den Zeugungskreis von Trypanosomen gehören. Da diese Annahme, wie ich dort auseinandersetzte, sehr an Wahrscheinlichkeit verloren hat, sei hier dargestellt, in welcher Weise sich diese Formen als echte Hämosporidien auffassen lassen. Es sei jedoch hervorgehoben, daß die Schaudinn-Schüler jetzt nur mehr für diejenigen Vogelblutparasiten die Flagellatenableitung aufrecht erhalten, bei denen sich neben dem Kern ein als Blepharoplast gedeuteter Körper findet. Er soll das Kennzeichen der nahen Trypanosomenverwandtschaft sein, doch wird noch dahingestellt gelassen, in welcher Weise diese sich im Entwicklungszyklus kundgibt, da eine Bestätigung der Schaudinnschen Angaben in einwandfreier [S. 759]Weise bisher nicht gelang. Wenn die Verschiedenheit beider Gruppen von Blutparasiten sich definitiv nachweisen läßt, wird es sich auch empfehlen, die mit Blepharoplast versehenen zur Gattung Halteridium zu vereinigen, während die Formen ohne Blepharoplast zu Haemoproteus zu stellen wären. Es ist eine solche Teilung schon von verschiedenen Seiten vorgeschlagen worden.
In den roten Blutkörperchen von Vögeln findet man sehr kleine Parasiten, welche jungen Malariaparasiten ähneln. Indem diese heranwachsen, werden sie zu den sogenannten „Halteridien“; es sind dies bohnenförmige große Parasiten, welche schließlich den größten Teil des Innenraums eines Erythrocyten einnehmen, dessen Kern zur Seite drängen und Reservesubstanzen ablagern. Aber man hat an ihnen im Erythrocyten des Vogels keine Vermehrungsvorgänge mit Sicherheit nachweisen können. Es sind zwar von Labbé 1894 bei den Formen aus Feldlerche und Buchfink eigenartige Vermehrungsstadien beschrieben worden (vgl. Fig. 686 S. 762). Diese sind jedoch von neueren Autoren nicht wieder gefunden, und Lühe vermutet daher, daß Labbé sich getäuscht hat, indem er bei der mangelhaften mikroskopischen Technik jener Zeit durch amöboide Umrisse des Parasiten zu seiner Deutung veranlaßt wurde. Doch ist es möglich, daß Labbés Deutung dennoch richtig war, und daß die Parasiten agame Vermehrungsstadien durchmachen, ehe sie zu den Halteridienformen heranwachsen.
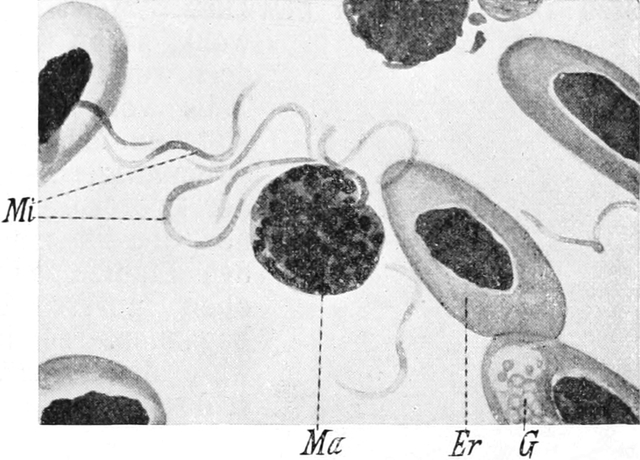
Für letztere ist durch zahlreiche Untersuchungen mit Sicherheit erwiesen, daß sie die Gametocyten des Haemoproteus sind. An ihnen, und zwar an dem Haemoproteus aus der Krähe, hat MacCallum als erster die geschlechtlichen Vorgänge bei den Hämosporidien nachgewiesen; seine Beobachtungen sind seither von vielen Untersuchern bestätigt worden und werden alljährlich in vielen Kursen demonstriert.
Die Halteridien sind, wie die Gametocyten der Coccidien und Malariaparasiten, geschlechtlich differenziert; sie sind entweder reservestoffreiche Makrogametocyten oder reservestoffarme Mikrogametocyten. Im Blut eines blutsaugenden Insekts erfolgt die Reifung der Gametocyten, [S. 760]die Bildung der Mikrogameten und die Befruchtung (vgl. Fig. 682 und Fig. 683). Dann wandelt sich bei H. columbae die Zygote in einen Ookineten um, welcher nicht in die Darmwand eindringen soll, sondern welcher, ohne im Insekt Vermehrungsvorgänge erlebt zu haben, durch dessen Stich in die Blutbahn eines Vogels gelangen soll.
Dort sollen erst die der Sporogonie entsprechenden Vermehrungsvorgänge eintreten. In Leukocyten, welche sich an die Wand von Lungenkapillaren anheften, sollen sich die Ookineten in relativ große schlauchförmige Gebilde umwandeln, eine sehr reichliche Kernvermehrung erfahren und schließlich in eine Unmenge kleiner Keime zerfallen. Diese „Cysten“ bilden in feinen Kapillaren oft einen vollkommenen Ausguß des Lumens. Sie platzen und entlassen ihren Inhalt, die Sporozoiten, in den Blutstrom, welche dort nun die Infektion der roten Blutkörperchen bewirken. Meist erfolgt letztere wohl schon in der Lunge, doch werden auch Cysten oder Teile von solchen in ungeplatztem Zustand vom Blutstrom mitgerissen. Die Keime der Sporozoiten sind die kleinen, den Plasmodien gleichenden Stadien, mit denen wir oben unsere Schilderungen begannen. In dieser Weise wäre der Zeugungskreis geschlossen.
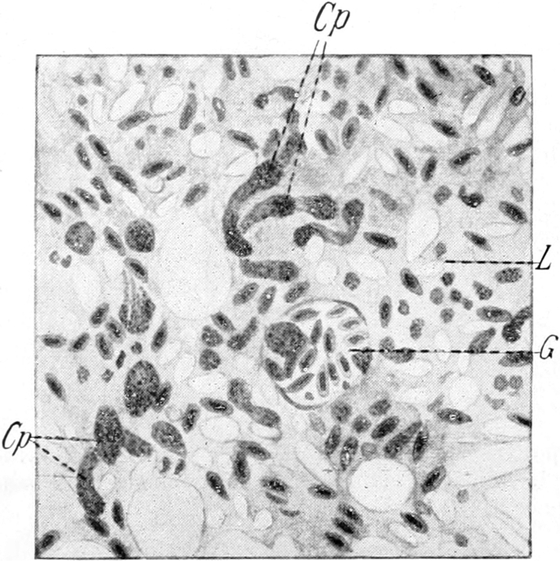
In diesem Zeugungskreis des H. columbae sollen also die von Schaudinn für H. noctuae angegebenen Trypanosomenstadien vollkommen fehlen. Da wohl kaum anzunehmen ist, daß bei so nahe verwandten Formen die Entwicklung so verschieden verläuft, wird wohl eine der beiden Darstellungen unrichtig sein.
Haemoproteusarten werden aus zahlreichen Vögeln beschrieben, und zwar aus Singvögeln und Raubvögeln. Viele sind als besondere Arten beschrieben worden, doch können wir über die Abgrenzung der Formen noch kein Urteil abgeben.
Die bekanntesten Formen sind:
1. Haemoproteus noctuae Celli u. Sanfelice.
|
1904.
|
Schaudinn, Generations- und
Wirtswechsel bei Trypanosoma und Spirochaete. In: Arb. Kais.
Gesundheitsamt. Vol. 20. p. 387.
|
Aus dem Blut des Steinkauzes Glaucidium (= Athene) noctua (Retz.) und anderer Eulenarten. Die Art wurde in Europa (Deutschland, Oesterreich, Italien, Frankreich etc.), in Algier und Nordamerika nachgewiesen. Nach Schaudinn wird sie durch die Schnake Culex pipiens (L.) übertragen (vgl. Fig. 699, S. 773).
[S. 761]
2. Haemoproteus columbae Celli u. Sanfelice.
|
1891.
|
Celli u.
Sanfelice, Ueber die Parasiten des roten
Blutkörperchens im Menschen und in Tieren. In: Fortschr. der Medizin.
Jahrg. 1891. No. 12. p. 499 etc.
|
|
1906.
|
Sergent, E. u. E., Sur le
second hôte de l’Hémoproteus (Halteridium) du pigeon. In: C. K. Soc. Biol.
Vol. 61. No. 64.
|
|
1908.
|
Beaurepaire-Aragao, H. de,
Ueber den Entwicklungsgang und die Uebertragung von Haemoproteus columbae.
In: Arch. f. Protistenk. Vol. 12. p. 154.
|
Die Entwicklung dieses Parasiten der Haustaube wurde oben geschildert. Er wurde in Italien, Algier, Frankreich, Brasilien gefunden.
Als Ueberträger wurde in Algier die Hippoboscide (Fliege) Lynchia maura Bigot, in Brasilien L. brunea oder lividicolor (Oliv.) nachgewiesen, welche sich dauernd auf den Tauben aufhalten und schon die jungen Nestlinge infizieren.
3. Haemoproteus Danilewskyi (Grassi u. Feletti).
|
1890.
|
Laverania Danilewskyi Grassi
u. Feletti. In: Centralbl. f. Bakt. u.
Parasitenkunde. Vol. 9. p. 463.
|
|
1899.
|
Literatur s. Labbé. In:
Tierreich. Lief. 5. Sporozoa. p. 79.
|
Es ist vorläufig unklar, bis zu welchem Grad sich die unter verschiedenen Namen (H. passeris, alaudae, fringillae etc.) beschriebenen Arten voneinander trennen lassen. Die älteren Untersuchungen nahmen an, daß es sich um eine Art handele; möglicherweise handelt es sich aber dennoch um mehrere Formen. Auch ist die Unterscheidung gegenüber Proteosoma (S. 771) unsicher, da die Beschreibungen aus älterer Zeit stammen und unvollständig sind.
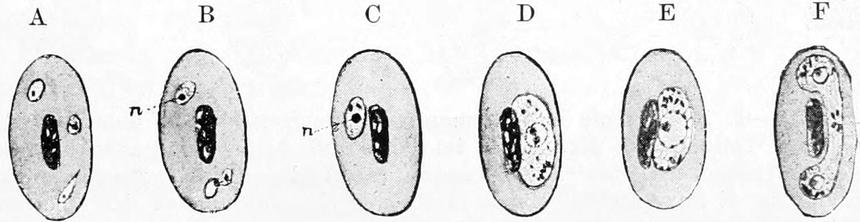
Die jung eingewanderten Sporozoiten nehmen im roten Blutkörperchen bald eine ungefähr ovale Form ein; sie haben eine Größe von nur 1,5–2 µ (Fig. 685 A, B), doch bald wachsen sie zu länglich-ovalen, dann etwas gebogenen, etwa gurkenförmigen Gebilden heran, dabei wird der Kern deutlich bläschenförmig, der Binnenkörper läßt sich gut nachweisen. In dem Parasiten, welcher seiner Längenausdehnung nach dem Kern der Blutzelle parallel liegt, lagert sich reichlich Pigment ab (Fig. 685 C–E).
Die ungeschlechtliche Vermehrung soll folgendermaßen erfolgen. Es geht jedesmal dem Zerfall in zahlreiche Sprößlinge eine einfache Teilung des erwachsenen Hämosporids voraus. Der Kern teilt sich in zwei Tochterkerne, welche an die entgegengesetzten Enden des Tieres wandern; darauf wird der Körper des letzteren hantelförmig, indem seine Enden keulenförmig anschwellen, während der mittlere Teil sich verschmälert. Schließlich sind die zwei kugelförmigen [S. 762]Endstücke nur durch ein feines Verbindungsstück vereinigt: die Teilung bleibt insofern auch dauernd eine unvollständige, und man kann das übrig bleibende Verbindungsstück gewissermaßen als einen Restkörper bezeichnen (Fig. 686 A–C).
Unmittelbar im Anschluß an diese unvollständige Teilung teilt sich der Kern jeder der beiden Kugeln in 6–15 sekundäre Kerne, welche sich an die Peripherie begeben; dort wölbt sich mit jedem eine zitzenförmige Protoplasmaportion vor (Fig. 686 D–I), welche sich allmählich in einen ovalen Sprößling umwandelt. Die Sprößlinge können in verschiedener Weise um den Plasmateil angeordnet sein, welcher des weiteren in jeder der Kugeln als Restkörper zurückbleibt und das Pigment einschließt (Fig. 686 C).
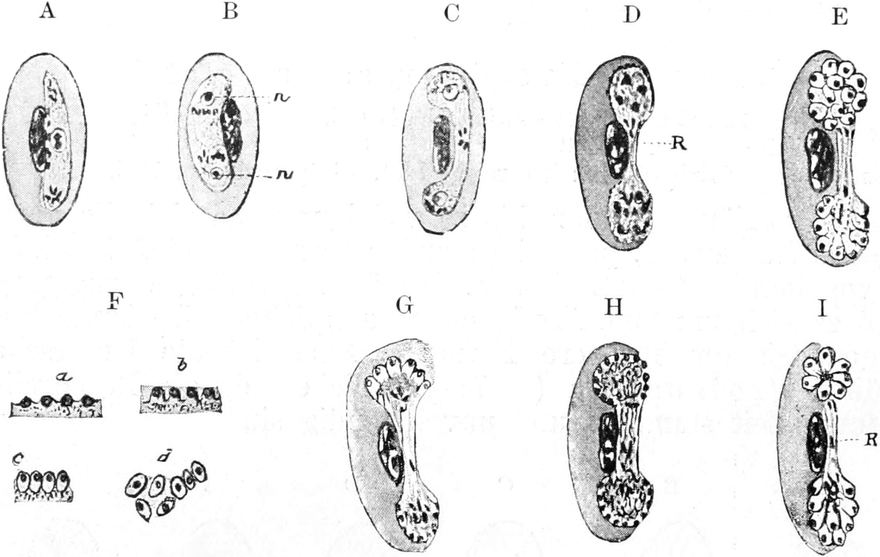
Die Sprößlinge wandern in neue Blutzellen ein und geben neuen Generationen von gleicher Vermehrungsweise den Ursprung, bis schließlich die Gametocyten auftreten. Nach der Schilderung Labbés ist anzunehmen, daß auch die Mikrogametocyten in den hantelförmigen Zustand übergehen (Fig. 687 C u. D).
Auch bei dieser Gattung erfolgt Befruchtung und Sporogonie in Culex-Arten; bis jetzt ist aber noch keine eingehende Studie über den Gegenstand erschienen.
Die Schizogonie dauert etwa 7 Tage; am 2. Tage enthalten die jungen Parasiten 1–2 Pigmentkörner, am 3. Tage sind sie schon auf 5–6 µ herangewachsen, also das 4–5-fache ihrer ursprünglichen Größe. Am 7. Tage findet man vorwiegend die großen Hantelformen mit 2 Kernen, deren Vermehrung sehr rasch verläuft, so daß man nur selten die Sprößlingshaufen in den Präparaten findet.
Die Infektion mit Haemoproteus scheint den Vögeln viel weniger zu schaden, als diejenige mit Proteosoma. Erst wenn die Hantelform [S. 763]ausgebildet ist, verschwindet das Hämoglobin aus dem Blutkörperchen, auch der Kern degeneriert nicht sehr schnell. Allerdings findet man am 8. Tage der Infektion im Blutplasma zahlreiche Trümmer von zerfallenen Blutkörperchen und in Menge das Pigment aus den Restkörpern; auch wird die Milz stark vergrößert und vom Pigment schwarz gefärbt, ebenso wie Leber, Nieren und Knochenmark.
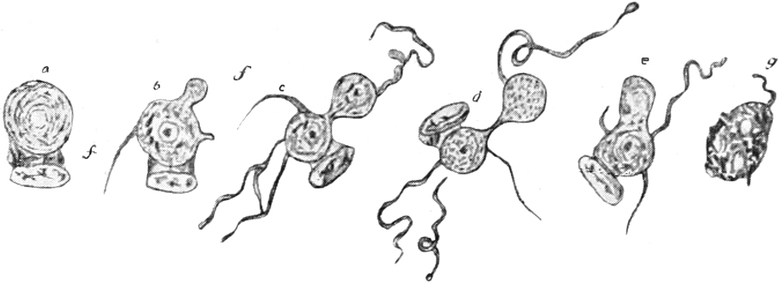
Haemoproteus Danilewskyi oder ähnliche Formen kommen im Blut von Vögeln (Sperlingsvögeln, besonders Lerchen, ferner Raben, Raubvögeln etc.) vor und sind in Europa (Deutschland, Frankreich, Italien, Rußland), in Nordafrika, im tropischen Afrika, in Indien sowie in Amerika beobachtet worden.
4. Haemoproteus oryzivorae Anschütz.
|
1909.
|
Anschütz, G., Ueber den
Entwicklungsgang des „Haemoproteus oryzivorae“ n. sp. In: Centralbl. Bakt.
Paras. Abt. I. Orig. Vol. 51. p. 654.
|
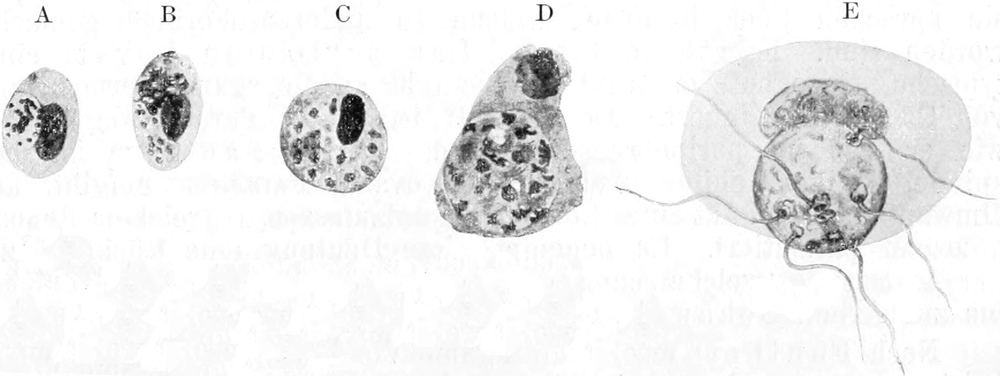
In dem Reisvogel (Padda oryzivora) kommt ein Haemoproteus vor, der sich in den wesentlichen Zügen dem Haemoproteus columbae nach der Darstellung von Aragao anschließt. Die Mehrzahl der importierten Reisvögel ist nach Anschütz mit dem Parasiten infiziert. Im Blut findet dasselbe sich stets in zwei differenten Formen, welche [S. 764]auf primäre sexuelle Differenzierung hinweisen. Die Agameten zeigen in großen mononukleären Zellen in den Kapillaren von Knochenmark, Gehirn, Lunge, Milz, seltener Leber Schizogonie, die der von Aragao für H. columbae beschriebenen ähnelt, und zwar geht diese Vermehrung der Agameten nach zwei verschiedenen Typen vor sich, welche mit der sexuellen Differenzierung in Zusammenhang gebracht werden.
Die sich vermehrenden Agameten sind pigmentfrei. Die sich entwickelnden Gameten werden halbmondförmig; die Makrogameten enthalten ein gelbschwärzliches Pigment. Die Mikrogametocyten kugeln sich nach der Blutaufnahme im Präparat rasch ab und entwickeln nach 4 Minuten in der typischen Weise die Mikrogameten (Fig. 689 E).
Anzuführen wären hier ferner:
Haemoproteus syrnii Mayer, die Form aus dem Kauz Syrnium aluco, bei welcher Mayer einen Beweis für die Richtigkeit der von Schaudinn beschriebenen Entwicklungsweise von Haemoproteus gefunden zu haben glaubt (vgl. S. 450). Er hat in kleinen sorgfältig geprüften Bluttropfen keine Trypanosomen, wohl aber Haemoproteus gesehen; trotzdem entwickelten sich bei Kultivierung aus den Tropfen nur Trypanosomenformen.
H. fringillae Labbé aus Fringilla coelebs.
H. Mansoni Sambon aus Lagopus scoticus.
H. agamae Wenyon aus der Eidechse (!) Agama colonorum im Sudan.
In Vögeln besonders in Afrika wurden noch eine Menge Formen gefunden und zum Teil benannt, zum Teil als H. Danilewskyi bezeichnet.
Gattung: Leucocytozoon Danilewsky.
Schließlich sei an dieser Stelle auch nochmals der Gattung Leucocytozoon gedacht, deren Stellung im System durch die neueren Untersuchungen von neuem zweifelhaft geworden ist. Auf S. 455 ist die Darstellung wiedergegeben, welche Schaudinn von dem Zeugungskreis dieser interessanten Form gegeben hat. Seine Auffassung wird in den neueren Untersuchungen vorwiegend durch die Bestätigung des blepharoplastähnlichen Körpers neben dem Kern gestützt. Gegen sie sprechen aber Befunde, welche an anderen Formen gemacht worden sind. Fantham hat bei Leucocytozoon Lovati eine typische Schizogonie entdeckt, welche sehr an die agame Vermehrung von Coccidien erinnert. In Fig. 691 ist dieser Parasit abgebildet, wie er sich im peripheren Blut findet. Nach Fantham ist das spindelförmige Gebilde, welches den ovalen Parasiten umgibt, als Umwandlungsprodukt eines Leukocyten aufzufassen, in welchem Leucocytozoon parasitiert. Es bedeutet diese Deutung eine Rückkehr zu der Auffassung, welche schon Danilewsky gehegt hatte, und welche bis zur Arbeit Schaudinns angenommen wurde.
Nach Fantham erfolgt die agame Vermehrung in der Milz des Wirts, und zwar in einer Weise, welche nicht ganz einwandfrei geklärt erscheint, welche aber, wenn sie bestätigt wird, veranlassen müsste, die Leukocytozoen den Coccidien anzuschließen. Nach der [S. 765]neuen Darstellung kommt im Zeugungskreis kein Trypanosomenstadium vor. Doch ist noch nicht recht klar, wie die eigenartige Umhüllung des im peripheren Blut kreisenden Parasiten zu deuten ist. Sambon nimmt an, daß Schaudinns Annahme, der Parasit selbst erzeuge diese Hülle, nachdem er einen Erythrocyten verschluckt habe, widerlegt werde durch die Tatsache, daß sich bisweilen in einer solchen Hülle zwei junge Parasiten nachweisen lassen. Ueberhaupt, das Vorkommen der jungen Stadien in typischen Blutzellen weist durchaus darauf hin, daß Leucocytozoon Zellparasit in den farblosen Blutzellen ist: doch sind die Meinungen noch geteilt, ob die Wirtszellen Leukocyten oder junge Erythrocytoblasten sind.
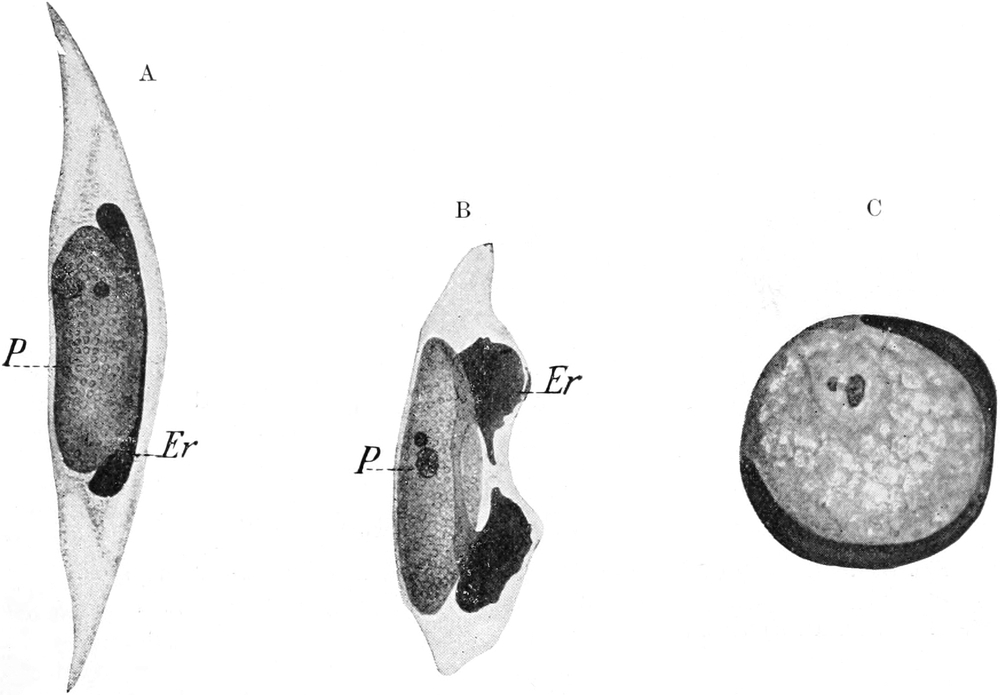
Wahrscheinlich ist, daß die von Schaudinn beschriebenen geschlechtlichen Vorgänge in der Stechmücke richtig mit Leucocytozoon in Zusammenhang gebracht sind. Es wären demnach außer den agamen Stadien im peripheren Blut Makrogameten und Mikrogametocyten zu unterscheiden; die Befruchtung erfolgt nach einem Typus, welcher an den der Eimeriden sich anschließt und überleitet zu dem der Plasmodiden resp. echten Hämosporidien.
Leukocytozoen sind bei Vögeln weit verbreitete Parasiten. Sie sind in Europa und in den verschiedensten überseeischen Gegenden gefunden worden.
Wir heben hervor:
Leucocytozoon Ziemanni (Laveran) im Blut von Raubvögeln.
Leucocytozoon Lovati Seligmann und Sambon im Blut des Moorhuhns Lagopus scoticus, in England und Schottland. Die Gametocyten messen ♂ 13–17 µ : 6–12 µ; ♀ 14–20 µ : 10–16 µ. Ueberträger höchstwahrscheinlich Ornithomya lagopodis.
L. Neavei Balfour in Numida ptilorhynchus im Sudan.
[S. 766]
L. Caulleryi Mathis et Léger im Haushuhn in Tonkin. Die periodische Vermehrung der Stadien im peripheren Blut weist auch bei dieser Form auf das Vorkommen von Schizogonie in den inneren Organen hin.
2. Unterordnung.
Haemosporidia Danilewsky em.
Schaudinn.
Die Hämosporidien sind Formen, über deren Zugehörigkeit zu den Sporozoen in den letzten Jahren beachtenswerte Zweifel ausgesprochen worden sind. Da die Debatte über diese Frage nicht abgeschlossen ist, belassen wir sie an der üblichen Stelle im System.
Aehnlich den Coccidien sind auch die Hämosporidien Zellschmarotzer; sie leben sämtlich während der agamen Periode ihres Lebens in den Blutzellen, vorwiegend den Erythrocyten, ihrer Wirte; nur ausnahmsweise findet man sie in anderen Zellen, z. B. in den blutbereitenden Organen. Die Sporogonie jedoch, wenn wir die metagame Fortpflanzung im Anschluß an die Verhältnisse bei anderen Sporozoen mit dieser Bezeichnung belegen, findet bei den genauer untersuchten Formen, den Hämosporidien von Säugetieren und Vögeln, in einem anderen Tier, einem Insekt, statt und verläuft in den Zellen resp. Geweben der Darmwand. Es ist also mit dem Generationswechsel ein Wirtswechsel kombiniert.
Die jüngsten Stadien der Hämosporidien, welche in den roten Blutkörperchen vorkommen, sind einkernige Gebilde von sehr geringer Größe. Beim Heranwachsen verändern sie ihre Gestalt, oft entspricht dieselbe schließlich annähernd der Form der infizierten Blutzelle. Viele Formen zeigen dauernd eine ausgeprägte amöboide Beweglichkeit, auch innerhalb des roten Blutkörperchens äußert sich [S. 767]dieselbe durch amöboide Formänderungen. Bei anderen Formen geht dieselbe frühzeitig verloren oder fehlt ganz.
Außer der amöboiden Beweglichkeit fällt bei den Hämosporidien als weitverbreitete Erscheinung die Ablagerung eines dunkeln, doppelt lichtbrechenden Pigments auf, welche im heranwachsenden Tier auf Kosten des Hämoglobins der Blutzelle stattfindet. Der Kern, dessen Lage eine sehr verschiedene sein kann, ist, wie bei den Coccidien, durch den Besitz eines Karyosoms ausgezeichnet.
Kontraktile Vakuolen kommen nicht vor, doch sind große. oft sehr auffallende Vakuolen eine verbreitete Erscheinung.
Die Fortpflanzung erfolgt in Form eines Generationswechsels zwischen geschlechtlicher und ungeschlechtlicher Fortpflanzung. Sie ist jedoch bei den genauer erforschten Formen, wie schon erwähnt, noch durch einen Wirtswechsel kompliziert; während nämlich die ungeschlechtliche im Blut des Warmblüters verläuft, kann die geschlechtliche nur im Körper eines für jede Art bestimmten blutsaugenden Insektes erfolgen. Wie das letztere sich durch den Stich selbst infiziert, indem es das parasitenhaltige Blut einsaugt, so infiziert es umgekehrt sein Opfer, indem es mit seinem Speichel Keime des Hämosporids in die Stichwunde preßt.
Bei Proteosoma, welche Gattung uns als typischer Vertreter der Unterordnung dienen soll, gelangen die Sporozoiten durch den Stich einer Mücke (Culex) in die Blutbahn eines Vogels. Sie besitzen amöboide Eigenbeweglichkeit und dringen alsbald in rote Blutkörperchen ein. In denselben wachsen sie ziemlich rasch heran (Fig. 693, 1), ohne dabei ihre amöboide Beweglichkeit aufzugeben. Während des Wachstums zehren sie allmählich die Substanz des roten Blutkörpers auf; bei dem Stoffwechsel des Parasiten verwandelt sich das Hämoglobin in ein dunkles Pigment (Melanin), welches sich im Plasma desselben in feinen Körnchen ablagert (Fig. 693, 2).
Die herangewachsenen Hämosporidien teilen sich in eine größere Anzahl von Nachkommen (Fig. 693, 3), nachdem der Kern sich durch indirekte, mehrmals nacheinander erfolgende Zweiteilung entsprechend vervielfacht hatte. Bei diesem Vorgang der agamen [S. 768]Fortpflanzung (Schizogonie) bleibt ein Teil des Plasmas mit dem abgelagerten Pigment als Restkörper zurück (Fig. 693, 4).
Ebenso wie die Sporozoiten sind die aus diesem Vermehrungsvorgang entstandenen jungen Tiere beweglich und imstande, neue Blutkörperchen zu infizieren. Auch hier also dient die agame Vermehrung der multiplikativen Fortpflanzung, der Autoinfektion des Wirtes. Es pflegen eine Reihe von Generationen, welche durch Schizogonie entstehen, aufeinander zu folgen, ehe die zweite Fortpflanzungsweise, die geschlechtliche Fortpflanzung, sie ablöst.
Wie viele Generationen etwa durchlaufen sein müssen, wenn sich das Bedürfnis nach einer Reorganisation der Parasitenzellen durch einen geschlechtlichen Akt einstellt, ist noch nicht bekannt. Jedenfalls verhalten sich die Hämosporidien in dieser Beziehung nicht anders als die übrigen Protozoen, z. B. die Infusorien. Nachdem eine gewisse Zeit nach der Infektion verstrichen ist, welche wohl je nach den Lebensbedingungen variieren kann, treten im Blut neben den Formen der Schizogonie ganz anders geartete Individuen auf. In den Blutkörperchen finden sich Stadien, welche aus den Produkten einer gewöhnlichen ungeschlechtlichen Teilung entstanden sind, welche aber die früher vorhandene Teilungsenergie nicht mehr aufweisen (Fig. 693, 5 u. 5a).
Sie wurden früher für Degenerationsprodukte gehalten, weil man wohl sah, daß sie mit der multiplikativen Fortpflanzung nichts zu tun hatten, aber nicht ahnte, daß auch eine propagative Fortpflanzung existierte: also gerade der entgegengesetzte Irrtum gegenüber dem, welchen man bei den Coccidien begangen hatte. Diese, bei einigen Hämosporidien bohnenförmigen Stadien findet man in der älteren Literatur meist als „Halbmonde“ bezeichnet. Bei den meisten Hämosporidien sind sie Scheiben von mehr oder weniger ausgesprochen kreisförmigem Umriß.
Schon früh zeigen dieselben sich deutlich differenziert: die einen scheiden in ihrem dichten Plasma neben dem feinkörnigen Pigment andere fein verteilte Substanzen (wohl Reservestoffe) ab, die anderen haben ein hyalines Plasma und grobkörniges Pigment. Die ersteren sind die Makrogametocyten (Fig. 693, 5), die letzteren die Mikrogametocyten (Fig. 693, 5a).
Sind sie vollkommen herangewachsen, so verlassen beide Formen den roten Blutkörper; dabei verlieren sie, im Falle, daß sie solche besaßen, die Bohnenform und verwandeln sich in Kugeln (die sogen. „Sphären“). Die Formänderung ist von einer Kontraktion in der Längsrichtung begleitet, jedenfalls spielt aber auch Wasseraufnahme eine Rolle bei dieser Erscheinung. Zu gleicher Zeit gehen Reifungserscheinungen an den Kernen vor sich, welche an die Reifungserscheinungen bei den Coccidien erinnern.
Die Makrogameten sind damit empfängnisreif geworden (Fig. 693, 6).
Die Mikrogametocyten erzeugen jedoch erst noch aus einem Teil ihrer Substanz die Mikrogameten in genau derselben Weise, wie dies bei den Coccidien geschieht; der Kern teilt sich auf multiple Weise, und es entstehen bei Proteosoma 4–8 Mikrogameten an der Oberfläche, während der innere Teil der Mikrogametocyte als Restkörper übrig bleibt (Fig. 693, 6a). Die Mikrogameten haben keine Geißeln, sondern bewegen sich durch schlängelnde Biegungen des [S. 769]Körpers; sie sind langgestreckte Spindeln, und der größte Teil der Leibessubstanz besteht aus Kernsubstanz, welche von einer dünnen Plasmaschicht überzogen ist. Von Hartmann wird das Vorkommen einer undulierenden Membran angegeben (Fig. 698 C).
Die beiden geschlechtlichen Formen sind dazu bestimmt, sich zu vereinigen und dadurch die Befruchtung herbeizuführen.
Diese letztere erfolgt aber, wie auch die Reifung der Geschlechtsprodukte nicht in dem Blut des warmblütigen Wirtes, sondern erst im Darm eines blutsaugenden Insektes. Man vermutet, daß die Uebertragung aus dem einen Wirt in den anderen zugleich den Reiz zur Vereinigung beider Geschlechtsindividuen herbeiführt. Dabei sind die Autoren nicht einig, ob die Abkühlung oder Wasseraufnahme resp. Aenderung des Mediums die Entscheidung herbeiführt. Vielleicht wirken die verschiedenen äußeren Verhältnisse zusammen dahin.
Die Mikro- und Makrogameten von Proteosoma geraten aus dem Blut des Vogels durch den Stich einer der gewöhnlichen Schnaken der Gattung Culex in deren Darm. Die männlichen Elemente schwärmen von ihrem Restkörper weg, und je ein Mikrogamet dringt durch einen Empfängnishügel in einen Makrogameten ein, und ihre Kerne verschmelzen (Fig. 693, 7).
Der befruchtete Makrogamet (die Zygote) zeigt gegenüber den Coccidien in seiner weiteren Entwicklung eine bemerkenswerte Abweichung. Während bei den Coccidien der Befruchtung sogleich eine Encystierung der Copula folgt, worauf die Cyste mit dem Darminhalt entleert wird, bedarf das Hämosporid einer anderen Entwicklung, um den Vorteil des Uebertrittes in einen neuen Wirt auch auszunützen.
Zu diesem Zweck macht die Zygote ein bewegliches Zwischenstadium durch, welches Schaudinn den Ookineten nannte (Fig. 693, 8). Dieses bewegliche, gregarinenähnliche Stadium bohrt sich in eine Zelle des Mückendarmepithels ein, verliert daselbst seine Beweglichkeit und wandelt sich in eine kuglige Cyste um. Die letztere, die Oocyste, wächst gewaltig heran, gerät bald aus ihrer Zelle in die äußeren Darmschichten und wölbt sich mit denselben weit in die Leibeshöhle vor. Denn die Oocyste wächst auch während der weiteren Entwicklung noch bedeutend, wodurch sie sich erheblich von den Oocysten der anderen Sporozoengruppen unterscheidet.
Der Kern der Oocyste teilt sich in zahlreiche Kerne, und das Plasma zerfällt dementsprechend in zahlreiche Sporoblasten, welche sich aber nicht durch Abscheidung einer Schale in Sporen verwandeln (Fig. 693, 9).
Vielmehr, um die Neuinfizierung des Warmblüters durch die Mücke zu ermöglichen, teilen sich die Sporoblasten direkt in eine Unmenge von Sporozoiten (Fig. 693, 10), welche nach dem Platzen der Oocystenwand in die Leibeshöhle der Mücke gelangen. Von dort können sie durch den Lymphstrom im ganzen Körper der Mücke verschleppt werden; sie sammeln sich aber, offenbar einer chemotaktischen Reizung folgend, in den Speicheldrüsen der Mücken; mit dem Speichel werden sie von dem Insekt beim Stechen in das Blut des warmblütigen Wirtes gepreßt, wo sie in rote Blutkörperchen eindringen, um den Lebenskreis von neuem zu beginnen (Fig. 693, 11, 1).
Schaudinn glaubte, bei den Tertianaparasiten den entsprechenden Formen der Trypanosomen vergleichbare „männliche“, „weibliche“ [S. 770]und „indifferente“ Sporozoiten unterscheiden zu können. Ebenso glaubte er, die Agameten im Blut in drei entsprechende Typen einteilen zu können, unter denen die „männlichen“ durch trypanosomenähnliche, geißeltragende Fortpflanzungsstadien ausgezeichnet seien. Eine Bestätigung dieser Annahmen muß abgewartet werden.
Die Hämosporidien sind Schmarotzer, welche ihre agamen Stadien stets in den Blutkörperchen von Wirbeltieren durchmachen. So kommen sie in Amphibien, Reptilien, Vögeln und Säugetieren vor, und zwar in zahlreichen Arten derselben. Da sie ihre Befruchtung und metagame Vermehrung in Arthropoden durchmachen, so bezeichnet man in der bei anderen Parasiten üblichen Weise das Wirbeltier als den Zwischenwirt, den wirbellosen Blutsauger als den eigentlichen Wirt des Hämosporids.
Die Art und die Folgen ihres Parasitismus sind unten ausführlich besprochen. Es ist von Vorteil, die einzelnen Formen erst zu schildern, ehe die allgemeinen Tatsachen zur Darstellung gelangen.
Hämosporidien sind über die ganze Erde, wohl mit Ausnahme des höchsten Nordens, verbreitet; doch ist eine größere Formenmannigfaltigkeit und weitere Verbreitung in den tropischen und subtropischen Gegenden der Erde zu konstatieren.
Treten die Formen der Schizogonie in einem Wirt massenhaft auf, so können sie durch die Zerstörung der roten Blutkörperchen und Erzeugung schädlicher Stoffwechselprodukte sehr schwere Erkrankungen herbeiführen. Für den Menschen ist vor allem die Malaria in ihren verschiedenen Formen von größter Bedeutung.
Die verschiedenen Arten von Hämosporidien stehen einander sehr nahe, so daß die Grenzen zwischen den einzelnen Gattungen sehr wenig scharf zu ziehen sind. Sie bilden zusammen eine einzige Familie, die
Plasmodidae.
Blutkörperchenschmarotzer von Säugetieren, Vögeln (und wohl Reptilien), welche ihre Wachstumsperiode als Agameten in oder auf je einem Erythrocyten durchmachen, meist sehr ausgesprochene amöboide Beweglichkeit und im Zusammenhang damit keine stärkere Oberflächendifferenzierung des Ektoplasmas besitzen, und fast stets durch die Abscheidung eines dunklen hämatogenen Pigments in ihrem Plasma ausgezeichnet sind.
Wir unterscheiden folgende, noch nicht scharf gegeneinander abzugrenzende Gattungen:
- 1) Proteosoma
- 2) Plasmodium
- 3) Laverania
- 4) Achromaticus
- 5) Polychromophilus
- 6) Haemocystidium.
Meist sind die Gattungen durch Besonderheiten der agamen Fortpflanzung, durch die Form der Gameten, durch die Tiergruppe, in welcher progame und metagame Stadien schmarotzen, gekennzeichnet.
[S. 771]
Gattung: Proteosoma Labbé.
Vogelparasiten, welche sich wohl kaum von den Angehörigen der Gattung Plasmodium unterscheiden, wenn auch nach Hartmann gewisse „primitive“ Merkmale sich konstatieren lassen sollen. Bei dem gegenwärtigen Stand unseres Wissens und der greulichen Verwirrung in der Hämosporidien-Nomenklatur ist es nützlich, die Gattung vorläufig zu unterscheiden. Außer den Arten P. Majoris Lav. und P. Vaughani Novy u. Mc Neal werden alle Formen zu der nachfolgenden Art zusammengefaßt. Wie schon Lühe annimmt, ist es wahrscheinlich, daß später eine Aufteilung in mehrere Arten vorgenommen werden muß.
Proteosoma praecox (Grassi und Feletti).
|
1890.
|
Haemamoeba praecox Grassi e
Feletti, Ancora sui parassiti malarici degli
uccelli. In: Boll. mens. della Acc. Gioenia di Sci. nat. Catania. Fasc. 14
(s. auch Fasc. 13).
|
|
1891.
|
Haemoproteus Celli und
Sanfelice, Ueber die Parasiten des roten
Blutkörperchens im Menschen und in den Tieren. In: Fortschritte der
Medizin, Vol. 9. No. 12–14.
|
|
1891.
|
Cytosporon malariae Danilewsky,
Contribution à l’étude de la microbiose malarique. In: Ann. Inst. Pasteur.
Vol. 5. p. 758.
|
|
1892.
|
Haemamoeba subpraecox Grassi e
Feletti. Contribuzione allo studio dei parassiti
malarici. In: Atti Accad. Gioenia di Sci. nat. Catania Mem. 5. Ann. 69.
|
|
1894.
|
„Proteosoma Grassi“, Labbé,
Parasites endoglobulaires du sang des vertébrés. In: Arch. Zool. expér.
Sér. 3. Vol. 2. p. 142, 157.
|
|
1898.
|
Opie, On the Haemocytozoa of
birds. In: Journ. exper. Med. Vol. 3. p. 79.
|
|
1898.
|
Ross, Report on investigation
into malaria. In: Ind. med. Journ. April und Mai.
|
|
1899.
|
Schaudinn, F., Ueber den
Generationswechsel der Coccidien und die neuere Malariaforschung. In:
Sitz.-Ber. Ges. naturf. Freunde Berlin. No. 7. p. 159.
|
|
1900.
|
Grassi, B., Studi ulteriori
sulla malaria. In: Rendic. R. Accad. Lincei. Cl. nat. Vol. 9. Ser. 5.
Fasc. 7.
|
|
1901.
|
Ruge, R., Unters. über das
deutsche Proteosoma. In: Centralbl. f. Bakt. Orig. Vol. 39. p. 187.
|
|
1907.
|
Proteosoma Hartmann, Das
System der Protozoen. In: Arch. f. Protistenk. Vol. 10. p. 139.
|
|
1908.
|
Plasmodium praecox Wasielewski,
Studien und Mikrophotogramme zur Kenntnis der pathogenen Protozoen 2. Heft.
Unters. über Blutschmarotzer. Leipzig 1908.
|
Diese oben zur Grundlage der Charakteristik der Unterordnung gewählte Art ist weit verbreitet.
Die kleinen amöboiden Sporozoiten wandeln sich, nachdem sie in die roten Blutkörper eingedrungen sind, in gelappte, oft dreieckige Formen mit einem runden bläschenförmigen Kern, mit allmählich deutlich werdendem Karyosom, um. Beim Heranwachsen lagert sich Pigment in ihrem ursprünglich wasserklaren Zellleib ab. (Danilewsky [S. 772]nannte die jungen Stadien „Pseudovacuolae“). Das Plasma selbst ist fein granuliert.
Nach Labbé gibt es zwei verschiedene Formen des erwachsenen Proteosoma: jedenfalls sieht man solche, welche rosettenförmig in eine geringe Anzahl (6–7; Fig. 694 B), und solche, welche in sehr zahlreiche, maulbeerförmig angeordnete Sprößlinge zerfallen, so daß das ganze Blutkörperchen von ihnen erfüllt ist (Fig. 696). Beim Zerfall des Tieres in die Nachkommen bleibt das Pigment im Restkörper zurück.
Neben den geschilderten Formen sieht man einige Zeit nach der Infektion runde, birnförmige oder nierenförmige Stadien auftreten. Es sind dies die Gametocyten, deren Entwicklung schon oben (S. 768) geschildert wurde.
Nachdem im Darm der Mücke die Konjugation vollzogen ist, die bewegliche Zygote in das Darmepithel eingedrungen und sich encystiert hat, beginnt sie stark zu wachsen und die äußeren Darmschichten hoch über die Oberfläche des Darmes zu erheben. Da oft sehr zahlreiche Oocysten vorhanden sind, so bietet der Darm dann ein sehr auffallendes Bild (Fig. 697).
Die Uebertragung erfolgt, wie es oben (S. 769) dargestellt wurde.
Die agame Vermehrung von Proteosoma verläuft im Blute einer großen Anzahl von Vögeln (Raubvögeln, Sperlingsvögeln, Tauben, Raben usw.).
Die Sporogonie geht in Mücken der Gattung Culex vor sich, und zwar spielen in den verschiedenen Gegenden der Erde die verschiedensten Arten der Gattung die Rolle des Ueberträgers.
[S. 773]
In Europa ist es hauptsächlich Culex pipiens L. (Fig. 699), nach Koch auch C. nemorosus Meig. In Indien spielt C. fatigans Wiedemann die gleiche Rolle, in anderen Ländern sind es andere Arten.
Nach Hartmann lassen die verschiedenen Stadien vor allem Gametocyten und die Mikrogameten Doppelkernigkeit erkennen; entsprechendes gibt Sergent für die Sporozoiten an.
In den roten Blutkörperchen der Vögel drängen die Schizonten den Kern ganz zur Seite, meist an einen Pol des länglichen Körperchens; sie zerstören das Hämoglobin und speichern es in Form von Melanin auf. Die Blutkörperchen werden häufig deformiert, manchmal geht ihre ellipsoide Form ganz in eine kreisförmige über (Fig. 696 D).
Die Schizogonie kann sowohl im fließenden Blut, als auch besonders häufig in den blutbereitenden Organen, vor allem der Milz, vor sich gehen. Man findet den Schmarotzer dort auch in den jungen Erythro- und Leukoblasten.
Die geschlechtliche Generation gedeiht am besten zwischen 24° und 30°. Unter 16° findet gar keine Entwicklung statt. Die Mikrogametenbildung dauert im Magen von Culex bei ca. 27° ½–¾ Stunde, die Kopulation ½–1 Stunde, die Ookinetenbildung 10–12 Stunden, [S. 774]die Cystenbildung ca. 30 Stunden, die Sporozoitenbildung 6–7 Tage, das Ueberwandern in die Speicheldrüsen 9–11 Tage. Ca. 12 bis 16 Tage nach dem Saugen kann die Mücke neu infizieren. Alle Prozesse werden bei sinkender Temperatur sehr verlangsamt.
Die Einwirkung des Parasiten auf den Vogel ist eine ziemlich intensive; denn die Blutkörperchen verlieren ihr Hämoglobin, der Kern wird verdrängt und degeneriert, und schließlich geht die ganze Blutzelle zugrunde. Das hat eine bedeutende Anämie des Vogels zur Folge, und offenbar treten auch Vergiftungserscheinungen des Organismus auf. Wir sehen den Vogel regelrechten Malariaanfällen ausgesetzt. Die Temperatur erfährt eine Steigerung von 1–1,5°. Die Vögel werden dann still und fressen nicht; das Gefieder sträubt sich, und sie blasen sich auf. Nicht selten ist die Infektion tödlich; dann findet man massenhaft die Blutkörperchen sogar mehrfach infiziert; es finden sich bis zu 5 oder 6 der jungen Parasiten in ihnen.
Am Magen des Culex sitzen oft Hunderte von Oocysten, welche in verschiedenen Stadien des Wachstums sich befinden können (vgl. Fig. 697).
Die Sporozoiten findet man später hauptsächlich in dem Mittellappen der Speicheldrüsen; in demselben bleiben sie sehr lange am Leben, sicher länger als 45 Tage (Ruge).
Der Parasit scheint kosmopolitisch zu sein; er wurde in Europa (Deutschland, Frankreich, England, Rußland, Italien usw.), Amerika, Asien, Afrika gefunden.
Nach Versuchen von Neumann gelingt es auch, die Culicide Stegomyia fasciata (den Ueberträger des gelben Fiebers) mit Proteosoma praecox zu infizieren. Aber es gehen dann viel weniger Cysten an, als bei Culex, auch sind alle Entwicklungsprozesse sehr verlangsamt. Doch sind alle Prozesse normal, und es gelingt auch die Neuinfektion der Vögel.
Gattung: Plasmodium Marchiafava und Celli.
|
1885.
|
Plasmodium Marchiafava e
Celli, in: Annali di Agricoltura.
|
|
1890.
|
Syn. Laverania + Haemamoeba Grassi
e Feletti, in: Riforma medica.
|
|
1894.
|
Haemamoeba Labbé, in: Arch.
Zool. expér. Sér. 3. Vol. 2.
|
|
1900.
|
Literatur bei: Grassi, Studi
di un zoologo sulla malaria. In: R. Accad. de Lincei, Roma, Mem. della
Classe di Scienze fisiche etc. Ser. 5. Vol. 3 (Anno 296).
|
|
1901.
|
Deutsch: Studien eines Zoologen über die Malaria.
2. Aufl. Jena.
|
|
Ich gebe hier nicht die ganze Synonymie, da die älteren Bezeichnungen zum Teil gar keine wissenschaftliche Bedeutung haben. |
|
Die Gattung Plasmodium ist bekannt und berüchtigt dadurch, daß ihre Arten die verschiedenen Formen der menschlichen Malaria, des Wechsel- oder Sumpffiebers hervorrufen. Erst in den letzten 15–20 Jahren ist die Natur dieser Parasiten erkannt worden, aber schon jetzt kennen wir ziemlich genau die Einzelheiten des gesamten Zeugungskreises, [S. 775]wenn auch noch manches zu erforschen bleibt. Wir werden die am genauesten bekannte Form in nachfolgendem als Typus der Gattung unserer Beschreibung zugrunde legen. Es ist jedoch vorher in Kürze eine Frage zu erörtern: haben wir in den drei allgemein anerkannten Formen, welche beim Menschen vorkommen, drei verschiedene Varietäten einer Art, drei verschiedene Arten oder gar Angehörige verschiedener Gattungen vor uns? Nach meiner Ansicht ist das letztere ganz ausgeschlossen, die Entscheidung zwischen den zwei ersten Möglichkeiten jedoch vorläufig noch der Willkür des einzelnen überlassen. Ganz theoretisch gefaßt, ist das Problem wohl so zu formulieren: Wir haben es mit drei wahrscheinlich konstanten Formen zu tun, welche als Parasiten im Wirtswechsel zwischen zwei Organismen: dem Menschen und den Angehörigen einer Mückengattung leben. Da beide Wirte für alle drei Formen die gleichen sind, zudem die Formen offenbar aufs engste verwandt, nach den Anschauungen der Deszendenztheorie also auseinander hervorgegangen sind, so ist mehr oder weniger ins Belieben des einzelnen gestellt, ob man sie Arten oder Rassen nennen will, ehe nicht der Entwicklungskreis in allen Details bekannt ist, und ehe nicht durch Experimente eine gewisse Sicherheit über die Konstanz der Formen gewonnen ist.
Aus praktischen Gründen ist es jedoch vorläufig ratsam, die drei Formen als getrennte Arten zu behandeln.
Das gleiche gilt für die in immer größerer Zahl bekannt werdenden Plasmodien aus anderen Tieren, besonders Affen. Es ist im gegenwärtigen Augenblick durchaus noch nicht mit Bestimmtheit zu sagen, ob es sich um selbständige Arten handelt und ob sie den Parasiten des Menschen gegenüber scharf abgegrenzt sind.
Manche Autoren betrachten den Parasiten des Tropenfiebers wegen der Halbmondform seiner Gametocyten als Vertreter einer besonderen Gattung Laverania. Eine solche Annahme hat den Vorteil, daß sie die Nomenklatur erleichtert.
Die Nomenklatur der Parasiten der menschlichen Malaria ist in einem so verworrenen Zustand, daß die vulgären Bezeichnungen eine sicherere Unterscheidung zulassen, als die wissenschaftlichen Namen. Ich setze daher den Vulgärnamen voraus und füge dann die meist angewandten wissenschaftlichen Bezeichnungen hinzu.
1. Tropicaparasit.

Plasmodium praecox Grassi und Feletti em.
|
1890.
|
Haemamoeba malariae praecox + H. malariae immaculatum
Grassi und Feletti,
in: Atti Accad. Catania. Ser. 4. Vol. 5. p. 10.
|
|
1890.
|
Laverania malariae (p. p.?) Grassi
und Feletti. In: Riforma medica.
|
|
1897.
|
Plasmodium falciparum Welch.
|
Der Tropicaparasit ist von den drei Arten die kleinste, sie erreicht im ausgewachsenen Zustand nur einen Durchmesser von 5 µ.
Die frisch eingedrungenen Sporozoiten sind sehr klein und wachsen nur bis zu ⅔ der Größe des roten Blutkörperchens heran. Eine große Vakuole im Innern gibt im gefärbten Präparat dem Parasiten in der Regel ein ringförmiges Aussehen; der Kern ist dann [S. 776]ganz in der Peripherie gelegen (Fig. 703). Die Wandung des Ringes ist oft sehr dünn und zart. Diese kleinen und noch die mittelgroßen Ringstadien sind durch ihre geringen Dimensionen von den Ringbildungen des Tertiana- und Quartanaparasiten gut zu unterscheiden.
Die jungen Keime sind im Blutkörperchen von geringer amöboider Beweglichkeit; das Pigment ist in Körnchen von mäßiger [S. 777]und sehr großer Feinheit vorwiegend in den peripheren Regionen des jungen Parasiten angeordnet. Später hat es die Tendenz, sich in einer zentralen Masse anzusammeln. Doch kann bei starker Vermehrung die Pigmentbildung auch unterbleiben. Diese Formen werden von manchen als besondere Varietät betrachtet (Fig. 706).
Die Infektion eines Blutkörpers mit mehreren (bis 5) Parasiten ist bei Tropicaparasiten nicht selten. Auf solche Mehrfachinfektionen sind jedenfalls auch Verschmelzungen zurückzuführen, die von manchen Autoren (Craig) beobachtet und als Konjugation gedeutet wurden, jedenfalls aber Plasmogamie sind. Während des Wachstums des Parasiten werden die Blutkörperchen eher kleiner als größer und zeigen Neigung zum Schrumpfen.
Bei der agamen Vermehrung (Schizogonie) zerfällt der erwachsene Parasit, welcher dann etwa ⅔ des roten Blutkörperchen ausfüllt, in wenig zahlreiche, kleine Teilprodukte; es sind deren 7, 10, 12, selten 15–16. Sie haben je einen Durchmesser von etwa 1–1,5 µ (Fig. 702, 703 u. 704 G).
Die Entwicklungsdauer der Schizogonie des Tropicaparasiten festzustellen, ist noch nicht definitiv gelungen, und zwar aus einem besonderen Grunde. Es geht nämlich die Schizogonie bei ihm in der Regel nicht im peripheren Blut, sondern in den inneren Organen, besonders der Milz, vor sich. Es ist daher die Entwicklung viel schwieriger zu kontrollieren. Jedenfalls scheint die Entwicklungsdauer bei weitem nicht so gesetzmäßig zu verlaufen, wie bei den beiden anderen Arten. Die meisten Beobachtungen sprechen für eine Dauer von 48 Stunden, andere für eine solche von nur 24 Stunden, doch ist auch die Annahme einer solchen von 72 Stunden nicht absolut auszuschließen. Die neueren Erfahrungen deuten immer mehr auf eine Dauer von ca. 48 Stunden.
[S. 778]
Bemerkenswert ist, daß die agame Vermehrung in den Tropen sich noch ausschließlicher in den inneren Organen vollzieht, als in den gemäßigten Klimaten. Maurer hat beobachtet, daß die roten Blutkörperchen, und zwar sowohl infizierte, als nicht-infizierte, bei Tropica nicht selten eine eigenartige ziemlich grobe und unregelmäßige Fleckung aufweisen können. Diese sog. Maurersche Fleckung oder Körnelung ist aber durchaus nicht so konstant wie die feine, gleichmäßige Schüffnersche Tüpfelung bei Tertiana (vgl. Fig. 704 mit Fig. 719 S. 786).
Hat die agame Vermehrung eine Zeitlang ihren Fortgang genommen, so treten die Gametocyten auf. Gerade beim Tropicaparasiten sind sie schon früh bemerkt worden und haben zu den mannigfaltigsten Deutungen Anlaß gegeben. Meist wurden sie für Degenerationsprodukte gehalten.
Sie nehmen schon frühzeitig eine charakteristische, von den zur Schizogonie schreitenden Individuen abweichende Form an. Sie sind nämlich bohnen- oder halbmondförmig. Es sind dies die „Halbmonde“, welche in der Malarialiteratur vor 1898 eine große Rolle spielen (Fig. 705 D u. 707).
Aus diesen Halbmonden, welche bemerkenswerterweise besonders im Blut des Knochenmarks des Menschen entstehen, werden sowohl die Makro- als auch die Mikrogametocyten gebildet. Im Knochenmark kann übrigens zur gleichen Zeit, während die Gametocyten sich ausbilden, auch die Schizogonie ihren Fortgang nehmen. Es sind also vorwiegend innere, im Parasiten selbst gelegene Gründe, welche diese Erscheinung veranlassen. In den Halbmonden ist das Pigment hauptsächlich um den Kern herum angeordnet; es ist gerade bei dem Tropicaparasiten in den Gametocyten im Gegensatz zu den agamen Stadien ganz besonders grobkörnig und dunkel.
Oft noch im Blut des Menschen teilt sich bei den Mikrogametocyten der Kern in direkter Weise. Ist das Blutkörperchen mit dem Mikrogametocyten in den Darm einer Anopheles-Art gelangt, so runden sich die Halbmonde zu Sphären ab (Fig. 707 e) und fallen aus den Blutkörperchen heraus, in die von der Schnake aufgesaugte Blutflüssigkeit. Es werden nur wenige 4, 6 bis 7 Kerne gebildet, welche sich an die Oberfläche begeben und sich dort mit einer sehr geringen Protoplasmahülle umgeben (Fig. 708 B u. C). Sie strecken sich samt [S. 779]derselben sehr stark in die Länge und werden zu fadenförmigen, beweglichen Mikrogameten. Die Mikrogameten lösen sich von dem relativ großen Restkörper ab, welcher, das Pigment enthaltend, zurückbleibt, und schwimmen lebhaft in der Umgebung umher, ohne jedoch Geißeln zu besitzen (Fig. 708 E u. D).
Mittlerweile haben auch die Makrogametocyten im Darm des Anopheles sich abgerundet, sind aus den Blutkörperchen herausgefallen und durch Ausstoßung des Karyosoms „reif“ geworden.
Nunmehr bildet sich — wie bei der Befruchtung des Metazoeneies und der Coccidien — ein Empfängnishügel. Durch denselben dringt ein einziger der zahlreichen Mikrogameten, welche den Makrogameten umschwärmen, in das Innere des letzteren; indem die Kernsubstanzen beider verschmelzen, erfolgt die Befruchtung.
Wie die Umwandlung der Halbmondstadien in Sphären auf die Flüssigkeitsaufnahme, so wird von Schaudinn unter anderen das Eintreten der Befruchtung im Darm der Mücke auf den Reiz zurückgeführt, welchen die Abkühlung des Blutes beim Uebertritt aus den Gefäßen eines Warmblüters in den viel kühleren Darm des Insektes ausüben muß.
Die befruchtete Oocyste bleibt — im Gegensatz zu den Coccidien — zunächst nackt, verändert ihre Form, indem sie lang-spindelförmig wird (Fig. 709 A), und zudem wird sie beweglich.
[S. 780]
Dieses Gebilde ist mit verschiedenen Namen belegt worden (Vermiculus, Würmchen, Ookinet). Es erreicht eine Länge bis zu höchstens 20 µ. Am einen Ende ist es gewöhnlich dicker und mit einer Spitze versehen, während das dünnere Ende abgestumpft ist.
In der Magenflüssigkeit des Anopheles, dem in der Verdauung begriffenen menschlichen Blut, sieht man zahlreiche dieser Oocysten sich bewegen (Fig. 709 A); man sieht sie sich krümmen und strecken und Drehbewegungen ausführen.
Sie bohren sich sehr bald in je eine Darmepithelzelle ein, in welcher sie aber nur kurz verweilen. Nachdem sie dieselbe verlassen haben (nach neuerer Auffassung sollen sie ziemlich rasch nicht durch die Zellen selbst, sondern zwischen ihnen hindurchwandern), liegen sie zwischen dem Darmepithel und einer Darmschicht, welche sehr elastisch ist und je nach dem Füllungszustand des Darms ihr Volumen verändert; dieselbe führt nach ihrer histologischen Beschaffenheit den Namen Tunica elastico-muscularis (Fig. 709 A u. B em). Hier beginnt alsbald die Oocyste sehr stark zu wachsen (Fig. 709 B, O′); der Kern vermehrt sich stark. Die in der Darmwand steckende Oocyste beginnt bald vorzuragen, indem sie dabei die Elastico-muscularis mit sich vorwölbt.
Nach Grassi bildet auch die Oocyste keine besondere Cystenhülle, sondern der Wirt bildet mit seiner Elastico-muscularis eine solche um ihn (Fig. 713).
Die ursprünglich nur wie ein Buckel vorgewölbten Oocysten ragen schließlich als gestielte Kugeln in die Leibeshöhle vor, indem sie den Fettkörper (Fig. 709 B, FK) und schließlich selbst das Ovarium etwas zur Seite drängen können.
Während die Oocysten anfangs noch oval waren (Fig. 709 B, O′), werden sie schließlich kuglig. Dabei steigt ihr Durchmesser von 4–5 µ auf 30, selbst 60 und ganz selten 70 bis 90 µ.
Die Oocysten zeigen während der ganzen Entwicklung deutliches Pigment in ihrem Plasma.
Man findet sie nicht überall auf dem Darm der Mücke, sondern fast ausschließlich auf dem erweiterten Teil des Mitteldarms der Mücke, dem sogenannten Magen, und zwar besonders im hinteren Drittel dieses Organs, in dem sich bei der Verdauung infolge der Haltung der Mücke die schwereren Bestandteile des Bluts angesammelt hatten. [S. 781]Hier gibt es aber oft eine große Anzahl, bis zu 200, ja 500, welche eine sehr verschiedene Größe haben können, offenbar je nach ihrem Ernährungszustand, und außerdem, weil sie ja von verschiedenen Infektionen der Mücke herrühren können (Fig. 711). Ferner schwankt ja die Zeit, welche nach dem Blutsaugen bis zum Eintritt der Befruchtungserscheinungen bei den einzelnen Gameten vergeht, innerhalb ziemlich weiter Grenzen.
Die Kerne, deren es während des Wachstums der Oocyste immer mehr geworden sind, haben sich durch einfache oder multiple Amitose vermehrt (Fig. 712 A). Dieselben sind in allen Teilen des Protoplasmas zerstreut. Ist die Teilung bis zu einem gewissen Grade weitergegangen, so wird der Zahl der Kerne entsprechend auch das Plasma in Portionen zerklüftet; und zwar geschieht das in der Weise, daß Lücken in dem vorher einheitlichen Protoplasma der Oocyste auftreten.
Wenn diese Auffassung richtig ist, so haben wir also darin einen weiteren Schritt in der Entwicklung der Oocyste zu erblicken, und zwar einen, welcher der Sporoblastenbildung bei den Coccidien entspricht. Nur daß bei den Hämosporidien die Sporoblasten sich weniger vollständig voneinander trennen. Bei dem Tropicaparasiten sind sie nach Grassi noch durch Protoplasmabrücken verbunden. Auch tritt in der Folge keine Sporenbildung ein, welche diese Protoplasmaportionen scharf voneinander abgrenzte, wie dies bei der Mehrzahl der Coccidien der Fall ist. Von diesen Plasmaportionen enthält übrigens eine das Pigment, welches sich während der ganzen Entwicklung aus der Wachstumsperiode des Makrogameten erhalten hat (Fig. 712 A). (Schaudinn deutet die geschilderten und in Fig. 712 A und B abgebildeten Bilder anders; er nimmt an, daß die zahlreichen Plasmainseln auf den Durchschnitten entstehen, indem der einheitliche, wurstförmige, aufgeknäuelte Körper der Oocyste in zahlreichen Querschnitten getroffen sei.)
Wie bei den Coccidien, beginnt hierauf die Bildung der Sporozoiten. In jeder der ursprünglich einkernigen Plasmaportionen beginnt der Kern durch einfache oder multiple Amitose sich weiter zu vermehren. Die Zahl der so entstehenden Kerne ist eine sehr große. Sie begeben sich an die Oberfläche ihrer Plasmaportionen, wo dann die sehr kleinen Kerne sich in dichten Mengen anhäufen. Um jeden gliedert sich wiederum eine kleine Plasmaportion ab, welche zunächst kuglig ist und wie eine kleine Knospe mit ihrem Kern über die größere zentrale Masse der „Sporoblasten“ vorragt (Fig. 712 B).
Diese kleinen Knospen beginnen dann in die Länge zu wachsen, bis sie zu lang fadenförmigen Gebilden werden. Es sind dies die Sporozoiten, welche um die Restkörper in langen Reihen und Bündeln angeordnet sind, indem sie in der Längsrichtung alle annähernd einander parallel sind (Fig. 712 C u. D). Sie haften zunächst noch an den Restkörpern, welche aus dem ganzen großen zentralen Teil der Sporoblasten bestehen (Fig. 712 E). Anfangs ist ihr Kern noch rundlich, aber wie sie sich immer mehr strecken und verdünnen, so nimmt auch ihr Kern, welcher ungefähr genau in der Mitte liegt, schließlich eine schmale, langgestreckte Form an. Sie erreichen eine Länge von etwa 14 µ, eine Dicke von 1 µ. Sie haben ein dichtes, homogenes, stark lichtbrechendes Plasma (Fig. 712 E und Fig. 714).
Wie dies bei Sporulationsprozessen die Regel ist, entwickeln sich und reifen alle Sporozoiten zu gleicher Zeit.
[S. 782]
In einer einzigen Oocyste können nach Grassi bis gegen 10000 Sporozoiten entstehen; doch hängt die Zahl von mancherlei Umständen ab, vor allem von der Größe, welche die Oocyste erreicht hat; manchmal konnten sogar nur einige Hundert nachgewiesen werden.
Ist die Reifung eine vollständige, so platzt die Oocyste in der Richtung gegen die Leibeshöhle des Anopheles und entleert ihre ganzen Sporozoiten in die Flüssigkeit der Leibeshöhle, die Blutflüssigkeit des Insekts (vgl. Fig. 715).
Es wird vermutet, daß die Quellung der Restkörper das Platzen der Cyste herbeiführt.
[S. 783]
Die Sporozoiten sind in ähnlicher Weise wie die Mikrogameten beweglich: sie schlängeln sich und vermögen sich zu krümmen.
Mit dem Blutstrom werden sie in alle Teile der Leibeshöhle des Anopheles getragen; sie sammeln sich aber schließlich alle, wahrscheinlich einem chemotaktischen Zwang folgend, in den Speicheldrüsen an. Die Sporozoiten verhalten sich dort ruhend, nachdem sie in die Speichelzellen gelangt sind, in deren Sekretklumpen sie liegen; man findet sie aber auch in dem in die Speichelgänge entleerten Sekret (Fig. 716, 717 u. 718).
Wenn nun ein Anopheles einen Menschen sticht, so gelangen die Sporozoiten in dessen Blut und dringen dort wahrscheinlich sofort wieder in die roten Blutkörperchen. Es beginnt dann der ganze Entwicklungszyklus von neuem.
Der ganze Zyklus im Körper des Anopheles dauert bei dem Tropicaparasiten bei dem Temperaturoptimum von etwa 28–30° C ungefähr 8 Tage. Der Tropicaparasit (Laverania malariae) ist in den [S. 784]ganzen Tropen weit verbreitet, ebenso in den Subtropen und den wärmeren Gegenden der gemäßigten Zone. Doch gehört zu der Entwicklung im Körper des Anopheles eine Temperatur von mindestens 18° C. Denn bei 17° erzeugen die Mikrogametocyten im Anophelesdarm keine Mikrogameten mehr.
Daher werden in der gemäßigten Zone eingeschleppte Fälle nicht zu Endemien.
Es scheint jetzt ziemlich sicher zu sein, daß die oft getrennt beschriebenen Formen, welche wir hier zusammengefaßt haben, einer Art angehören, daß Pigmentlosigkeit in den Stadien der Schizogonie nur durch rapide Vermehrung bedingt ist, daß die Ringformen mit der Vakuole sich bei der Bewegung genau so verhalten, wie die mehr amöboid geformten Individuen usw. Doch ist es nicht ausgeschlossen, daß sich Unterscheidungen werden nachweisen lassen, die man früher nicht vermutete. Manche Autoren wollen in der Zahl der Sprößlinge bei der agamen Vermehrung etc. Unterschiede zwischen den mediterranen und den tropisch-afrikanischen „Tropicaparasiten“ machen. Möglicherweise handelt es sich aber dabei um Unterschiede von untergeordneter Bedeutung, welche durch Klima etc. bedingt sein mögen.
Der Tropicaparasit (Laverania malariae) ist der Urheber der Fieberformen, welche als Perniciosa, Tertiana maligna, Quotidiana, Aestivo-Autumnalfieber, Bidua, Tropica etc. bekannt geworden sind und die gefährlichsten Malariaformen darstellen.
Näheres über die Krankheitstypen findet sich am Schluß dieses Abschnittes S. 794.
2. Tertianaparasit.
Plasmodium vivax Grassi und Feletti.
|
1892.
|
Haemamoeba vivax Grassi und
Feletti, in: Atti Accad. Catania. Ser. 4. Vol.
5. p. 10.
|
|
1889.
|
Plasmodium var. tertiana Golgi,
in: Arch. per le Sci. med. Vol. 13. p. 173.
|
|
1894.
|
Haemamoeba Laverani var. tertiana
Labbé, in: Arch. Zool. expér. Sér. 3. Vol. 2.
p. 170.
|
|
1899.
|
Plasmodium malariae tertianum Golgi
bei Labbé, Sporozoa. In: Tierreich. Lief. 5.
p. 82.
|
Die jungen Stadien der Schizogonie zeichnen sich im roten Blutkörperchen des Menschen durch lebhafte amöboide Beweglichkeit aus, wodurch sie gegenüber den beiden anderen Formen [S. 785]auffallen. Lebhaftere Strömungen im Protoplasma zeigen auch das regelmäßig vorhandene Pigment in steter Bewegung. Die Pigmentstäubchen sind fein, von körniger Beschaffenheit und von lichtbrauner Farbe. Der ganz junge Parasit hat einen Durchmesser von 1–2 µ. (Fig. 719 A). Infolge der Beweglichkeit ist die Form sehr wechselnd, viel seltener als bei den anderen Formen ein kreisrunder Umriß.
Der heranwachsende Parasit kann schließlich das Blutkörperchen ganz ausfüllen; dasselbe ist noch dazu in der Regel gequollen und hat seinen Farbstoff verloren (Fig. 719 B, C). Ja, er kann den 1½-fachen Durchmesser des roten Blutkörperchens erreichen. Das gequollene Blutkörperchen zeigt das Phänomen der Schüffnerschen Tüpfelung. Es ist das eine bei den üblichen Blutfärbemethoden hervortretende ungleichmäßige Färbung des Erythrocytenstromas. Die Tüpfelung ist minimal und sehr fein im Anfangsstadium der Infektion, wird aber je mehr der Parasit heranwächst, um so gröber und ausgebreiteter (Fig. 720).
Der erwachsene Parasit hat einen Durchmesser von 8–10 µ; er zerfällt bei der Teilung in eine größere Anzahl von Sprößlingen; meist sind es deren 15–20 (Fig. 720 B).
Meist liegt dabei das Pigment in der Mitte, zu einem dichten Klumpen zusammengebacken; die Sprößlinge liegen als unregelmäßiges [S. 786]Häufchen darum (Fig. 720 B), wenn sie nicht, was manchmal vorkommt, in zwei konzentrischen Ringen angeordnet sind. Von dieser Sporulationsweise kommen manchmal geringe Abweichungen vor, je nachdem der Restkörper kleiner oder größer ausfällt und je nachdem das Pigment in einem oder zwei Häufchen angesammelt ist. So regelmäßige Teilungsformen, wie beim Quartanaparasiten, kommen nicht vor. Die Zahl der Sprößlinge beträgt in der Regel 14–20, besonders häufig 16, selten 12 oder 22–24.
Die Zeit, welche von einem Teilungsakt zum anderen verläuft, beträgt 48 Stunden.
Infolge davon erzeugt der Parasit den Malariatypus, welcher als Tertiana bekannt ist.
Bei Plasmodium vivax findet man die agamen Vermehrungsstadien im peripheren Blut ebenso häufig wie in den inneren Organen.
Genau wie bei dem Tropicaparasiten, bilden sich nach einiger Zeit statt der Teilungsstadien massenhaft Gametocyten aus.
Dieselben unterscheiden sich jedoch von denen des Tropicaparasiten durch die Form. Sie sind rund und wenig beweglich, und zeigen das Pigment in anderer Form als die erwachsenen ungeschlechtlichen Formen (Fig. 723). Es sind gröbere Körnchen und selbst [S. 787]stäbchenartige Gebilde vorhanden. Während der Bildung der Gametocyten erfolgen lebhaft wirbelnde Bewegungen im Plasma.
Während die Makrogametocyten noch im Wachstum begriffen sind, läßt sich schon keine Spur eines sie einschließenden Blutkörperchens mehr nachweisen. Nachdem sie die Hauptmasse seiner Substanz aufgebraucht haben, sind sie aus demselben herausgefallen; sie können schließlich zwei- bis dreimal so groß werden als ein rotes Blutkörperchen. — Die Mikrogametocyten werden in der Regel nicht größer als die Agameten. Die Mikrogametenbildung läßt sich in der feuchten Kammer verfolgen (Fig. 724) und bietet keine Besonderheiten gegenüber P. praecox.
Die Befruchtung des Tertianaparasiten ist von Schaudinn genauer studiert worden (vgl. Fig. 725). Der Mikrogametocyt bildet an seiner Oberfläche 4–8 Mikrogameten, der Makrogametocyt reift heran, indem sein Kern eine richtungskörperartige Bildung abschnürt. Der nach der Befruchtung entstehende Ookinet soll noch längere Zeit zweikernig sein.
Grassi gibt an, daß in der Regel der Ookinet von Plasmodium vivax im Darm des Anopheles größer sei als derjenige des Tropicaparasiten.
Auch hat er bei der ferneren Entwicklung wenigstens die früheren Stadien der Sporogonie unterscheiden können; es soll bei Plasmodium vivax das Pigment durch seine hellere Farbe und weniger dichte Lagerung und das Plasma durch den etwas größeren Reichtum an Vakuolen ausgezeichnet sein.
Die sonstigen Unterschiede, welche Bignami und Bastianelli gesehen haben wollen, hält Grassi für Kunstprodukte, bedingt durch [S. 788]die Konservierungsmethode. Auch neuere Untersuchungen haben keine sicheren Unterschiede erkennen lassen.
Der Lebensabschnitt im Körper des Anopheles wird bei Plasmodium vivax ebenfalls in 8 Tagen bei einer Temperatur von 28–30° C vollendet, während bei niedrigerer Temperatur die Entwicklung verlangsamt wird.
Für die Weiterentwicklung der Gametocyten ist auch hier 16° das Minimum, 18–20° eine günstige, etwas höhere Grade (24–30° C) die optimale Temperatur.
Diesen Tatsachen entsprechen die Verbreitungsverhältnisse des Plasmodium vivax. Er ist weit in den Tropen, Subtropen und in der gemäßigten Zone verbreitet.
Er erzeugt das Tertianafieber, eine der weniger gefährlichen Malariaformen (s. S. 798).
3. Quartanaparasit.
Plasmodium malariae Laveran.
|
1883.
|
Oscillaria malariae Laveran
bei E. Richard in: Rev. sci. Vol. 31. p. 113.
|
|
1890.
|
Plasmodium var. quartana Golgi,
in: Arch. ital. biol. Vol. 14. Fasc. 1. 2.
|
|
1892.
|
Haemamoeba malariae Grassi und
Feletti in: Atti Accad. Catania. Ser. 4. Vol. 5.
p. 10.
|
|
1894.
|
Haemamoeba Laverani var. quartana
Labbé, in: Arch. Zool. expér. Sér. 3. Vol. 2.
p. 170.
|
|
1899.
|
Plasmodium malariae quartanum Golgi
bei Labbé, in: Tierreich. Lief. 5. Sporozoa.
p. 82.
|
Das junge Plasmodium malariae erscheint kurz nach der Infektion des roten Blutkörperchens als unpigmentiertes Kügelchen.
Es entsendet lange und dünne Pseudopodien in trägen Bewegungen. Auch die Protoplasmaströmung, welche an den Bewegungen des sich allmählich ablagernden Pigments erkannt werden kann, ist eine langsame. Das Pigment tritt in Form von ziemlich groben, tiefdunklen Körnchen oder Stäbchen auf. (Fig. 727 und 728.) Die Vakuole ist nicht so groß und dem Plasma gegenüber dominierend, wie das bei dem Tropicaparasiten der Fall ist.
Entsprechend dem Wachstum des Parasiten häuft sich in dessen Protoplasma das Pigment an, und diesem entspricht wieder eine stets abnehmende Beweglichkeit des Plasmodiums, welches immerhin noch seine lappige Gestalt beibehält (Fig. 727 D). Schon wenn der Parasit [S. 789]⅓–½ des Blutkörperchens ausfüllt, wird er rundlich und unbeweglich. Sehr häufig hat der erwachsene Quartana-Agamet einen bandförmigen Körper (Fig. 727 C).
Wenn der Parasit erwachsen ist, füllt er fast das ganze Blutkörperchen aus, ohne daß dies indes sehr geschädigt würde; dessen Form bleibt vielmehr gut erhalten und die periphere Zone behält auch ihre Farbe. Bei Quartana kommt keinerlei Fleckung oder Tüpfelung des roten Blutkörperchens vor, wie sie bei Tropica und Tertiana beschrieben wurden (S. 778 u. S. 785).
Ist der Parasit erwachsen — er hat dann einen Durchmesser von etwa 7 µ — so erfolgt die Teilung in eine geringe Anzahl von Sprößlingen in meist sehr regelmäßiger Form. Es entstehen 9–12, sehr häufig 8, selten nur 6 oder auch bis 14 Sprößlinge. In den frühen Teilungsstadien sieht man, um den zentralen Restkörper mit dem Pigment, radiäre Durchfurchungslinien, wie die Speichen eines Rades auftreten. Dementsprechend liegen schließlich auch die Sporen in einem regelmäßigen Kranz um den Restkörper angeordnet (Fig. 727 E u. F).
Die agame Vermehrung erfolgt im Blut des Menschen in je 72 Stunden. Man nennt daher die durch den Parasiten erzeugte Malaria die Quartana.
[S. 790]
Die Vermehrung geht regelmäßig im strömenden Blut vor sich, man kann keine Ansammlung der Teilstadien in den Blutgefäßen der inneren Organe erkennen, wie bei den anderen Arten.
Die Gametocyten sind rundlich (Fig. 728) und unterscheiden sich von den erwachsenen ungeschlechtlichen Formen vor allen Dingen durch die lebhaften Strömungen im Protoplasma, welche an der Beweglichkeit des Pigments erkannt werden können. Sie sind von den ungeschlechtlichen Stadien im gefärbten Präparat relativ schwer zu unterscheiden. Haben sie eine gewisse Größe erreicht, so fallen sie aus dem aufgebrauchten roten Blutkörperchen heraus, dessen Größe sie etwas übertreffen können.
Die Befruchtung und Weiterentwicklung im Anopheles (maculipennis) sind noch nicht im Detail studiert; doch wird wohl gegenüber den anderen Arten kein großer Unterschied bestehen.
Jedenfalls steht fest, daß diese Entwicklung schon bei einer Temperatur von nur 16,5° C, ja nach Jancsó sogar 14° C, aber nicht mehr bei einer Temperatur von 30° C vor sich geht. Die Verbreitung des Plasmodium malariae ist denn auch eine andere als diejenige [S. 791]der beiden anderen Formen; sie erstreckt sich weiter polwärts, aber im allgemeinen weniger weit äquatorwärts.
Plasmodiumarten aus verschiedenen Säugetierarten.
Von diesen seien zunächst die theoretisch und vielleicht auch praktisch sehr wichtigen Affenparasiten erwähnt.
a) Plasmodium Kochi Laveran.
|
1899.
|
Kossel, Ueber einen
malariaähnlichen Blutparasiten bei Affen. In: Zeitschr. f. Hygiene. Vol.
32. p. 25.
|
|
1908.
|
Gonder und
v. Berenberg-Gossler, Untersuchungen über
Malariaplasmodien der Affen. In: Malaria. Vol. 1. p. 47.
|
Die jungen Agameten dieser Form erinnern sehr an die Tropicaringe; die älteren Stadien jedoch, auch durch die Beweglichkeit, mehr an den Tertianaparasiten. Gelegentlich kommt auch Tüpfelung der roten Blutkörperchen vor. Die Parasiten sollen extra- und intraglobulär sein. Die Periode der agamen Vermehrung ist nach Gonder und Rodenwaldt, entgegen früheren Angaben, 48 Stunden.
Gefunden bei afrikanischen Affen: Meerkatzen, Mangaben und Pavianen (nach Kossel), Schimpansen (nach Ziemann und Lühe). Nach Gonder und Rodenwaldt gelingt die direkte Uebertragung auf den Menschen nicht. Bei Affen ist die Art nicht sehr pathogen, wird es aber in hohem Grad, wenn man Versuchstieren die Milz exstirpiert.
b) Plasmodium pitheci Halb. u. Prow.
|
1907.
|
Halberstädter und
Prowazek, Untersuchungen über die
Malariaparasiten der Affen. In: Arb. Kais. Gesundheitsamt. Berlin. Vol.
26. p. 37.
|
Die jüngsten Formen dieser Parasiten stellen Ringe dar, welche den Tropicaringen ähneln; die agame Vermehrung gleicht im Typus derjenigen des Tertianaparasiten, während die Gameten am meisten an diejenigen der Quartana erinnern. Die heranwachsenden Stadien sind zum Teil stark schwarzbraun pigmentiert. Aehnlich wie beim Tertianaparasiten erscheinen die infizierten Blutkörperchen bei geeigneter [S. 792]Färbung getüpfelt (nach Shibayama soll eine Tüpfelung nicht nachweisbar sein). Die Entdecker glauben, daß die weiblichen Gametocyten äußerlich auf den Blutkörperchen schmarotzen, während die anderen Stadien intraglobulär seien.
Der Parasit wurde in Orang-Utans (Pithecus satyrus) aus Borneo gefunden, eine analoge Form wurde von Ziemann in Kamerun beim Schimpansen (Anthropopithecus troglodytes) entdeckt.
c) Plasmodium inui Halb. u. Prow.
|
1908.
|
Mayer, M., Ueber
Malariaparasiten bei Affen. In: Arch. Protistenk. Vol. 12. p. 314.
|
|
1908.
|
Flu, P. C., Untersuchungen über
Affenmalaria. Ibid. p. 323.
|
Diese gleichzeitig mit der vorigen beschriebene Form (Fig. 731) ist zunächst durch ihr gelbes, zartes Pigment unterschieden. Sonst ist sie dem Orang-Utanparasiten sehr ähnlich. Auch Tüpfelung der roten Blutkörperchen wurde nachgewiesen. Im ganzen ähnelt sie also sehr dem Tertianaparasiten.
Sie wurde beobachtet bei Macacus (Inuus) cynomolgus aus Java und bei Macacus (Inuus) nemestrinus aus Sumatra und Borneo, nach Kossel auch bei anderen Affen, z. B. Cynocephalus babuinus.
Mayer hält die von ihm bei Macacus cynomolgus gefundene Form für möglicherweise verschieden von P. inui und hat sie P. cynomolgi genannt. Diese Form wird wahrscheinlich durch Anopheles maculipennis übertragen.
d) Plasmodium brasilianum Gonder u. v. Gossler.
|
1908.
|
Gonder und
v. Berenberg-Gossler, Untersuchungen über
Malariaplasmodien der Affen. In: Malaria. Vol. 1. Heft 1. p. 47.
|
Eine der menschlichen Quartana ähnliche Form, auch darin ähnlich, daß die Periode der agamen Entwicklung 72 Stunden dauert. [S. 793]Es sollen alle Stadien extraglobulär sein. Die Autoren glauben ähnliche Differenzierung in indifferente und geschlechtliche Formen schon im Verlauf der agamen Vermehrung unterscheiden zu können, wie dies Schaudinn für den Tertianaparasiten annahm.
Die Art wurde gefunden in Brachyurus calvus, dem Ouakari, einer seltenen Affenart aus dem Amazonasgebiet.
Außer in Affen wurden auch in Eichhörnchen (in Annam) plasmodiumähnliche Blutparasiten gefunden. Bei Fledermäusen kommen dem Plasmodium sehr ähnelnde Formen vor, welche ihr Entdecker Dionisi in die Gattung Polychromophilus eingereiht hat (Polychromophilus melanipherus Dion. aus dem Blut von Miniopterus Schreibersi, Fig. 733, murinus in Vespertilio murinus).
Gattung: Achromaticus Dionisi.
Achromaticus vesperuginis Dionisi.
|
1898.
|
Dionisi, A., Ein Parasit der
roten Blutkörperchen in einer Fledermausart. In: Moleschotts Unters. z.
Naturl. d. Menschen u. d. Tiere. Vol. 16. p. 531.
|
|
1900.
|
— Die Malaria einiger Fledermausarten. Ibid. Vol. 17.
Heft 3 u. 4.
|
|
1905.
|
Kisskalt, R., Blutparasiten
bei Fledermäusen. In: Centralbl. f. Bakteriol. etc. Orig. Vol. 40. p. 213.
|
|
1906.
|
Gonder, R., Achromaticus
vesperuginis. In: Arb. Kais. Gesundheitsamt. Berlin. Vol. 24. p. 220.
|
Diese Form scheint in manchen Beziehungen einen Uebergang zwischen Babesien (siehe unten) und Plasmodien herzustellen. Sie bildet Ringe, die stark heranwachsen. Anzeichen der agamen Vermehrung sind bekannt. Relativ große Birnformen werden als Gameten gedeutet. Pigment wird nicht gebildet. Einzelheiten der Entwicklung sind noch unbekannt. Ueberträger unbekannt. Neumann glaubt, Weiterentwicklung bei den Fledermausmilben (Pteroptus vespertilionis) gefunden zu haben, doch sind die von ihm aufgefundenen Stadien noch nicht mit Sicherheit zu deuten. Im Winterschlaf der Fledermäuse treten eigenartige Veränderungen an den Parasiten auf.
Die Art kommt in Fledermäusen der Gattung Vesperugo vor und wurde in Italien, Deutschland und Oesterreich gefunden.
[S. 794]
Gattung: Haemocystidium Castellani und Willey.
|
1904.
|
Castellani and
Willey, Observations on the Haematozoa of
Vertebrates in Ceylon. In: Spolia Zeylanica. Vol. 2. p. 78.
|
Die Arten dieser Gattung kommen bei Reptilien in den roten Blutkörperchen vor. Sie sind die einzigen pigmentbildenden Hämosporidien aus Kaltblütern, welche bisher bekannt wurden. Sie sind nicht amöboid beweglich.
Nach Dobell ist die agame Vermehrung von H. Simondi, welche im zirkulierenden Blut stattfindet, eine einfache Zweiteilung, höchstens kommt noch Vierteilung vor. Die Sprößlinge sind auffallend groß. Die Gametocyten sind ausgesprochen dimorph, so daß man von weiblichen und männlichen sprechen darf, ohne daß die Weiterentwicklung bekannt ist. Sehr merkwürdig ist die Tatsache, daß die reifen ♂ und ♀ Gametocyten stets durch eine gleichhälftige Kernteilung zweikernig werden. Die Gametocyten sind groß und ungefähr bohnenförmig.
Haemocystidium Simondi Cast. und Will. in dem Gecko Hemidactylus Leschenaultii Gray in Ceylon, H. Metschnikowi (Simond) aus der Schildkröte Chitra indica (Gray) in Indien bei Agra. Andere Formen hat Bouet bei westafrikanischen Schildkröten und Schlangen gefunden (H. Mesnili [B.] in Naja sp., H. Roumei [B.] in Cinnyxis belliana Gray. Beide an der Elfenbeinküste).
Ferner ist zu erwähnen H. testudinis (Laveran) aus Testudo pardalis (Südafrika), H. najae Wenyon aus Naja haje und N. nigricollis (Chartum).
Fraglich ist, ob H. (Plasmodium) maburae Wenyon hierher gehört, eine Form, welche sehr an die Proteosomen der Vögel erinnert (aus der Eidechse Mabura quinquetaeniata vom Bahr-el-Ghazal). Die Schizonten sind amöboid, manchmal scheinbar intranukleär. Die Schizogonie liefert nur 6 Nachkommen. Die Gametocyten sind oval.
Dieser Form und den Vogelparasiten zu ähneln scheinen auch zwei brasilianische Arten H. (Plasmodium) diploglossi Aragao und Neiva aus Diploglossus fasciatus D.-B., dessen Schizogonie ca. 40 Sprößlinge liefert, und besonders H. (Plasmodium) tropiduri Ar. u. N. (aus Tropidurus torquatus Wied.) mit 12 Merozoiten.
Es ist hervorzuheben, daß alle diese Formen bisher nur dadurch in der Gattung Haemocystidium zusammengehalten werden, daß sie plasmodienähnliche Reptilienparasiten sind. Von den meisten ist kaum etwas über die Lebensgeschichte bekannt. Einige Autoren sind der Ansicht, daß die Arten mit der Gattung Plasmodium zu vereinigen, resp. auf die Gattungen Plasmodium und Haemoproteus zu verteilen seien. Was richtig ist, wird erst die Zukunft lehren. Zunächst scheint ja die Art der Schizogonie und die Bildung der Gameten für einige Besonderheiten zu sprechen. Ueber die Validität der aufgestellten Arten ist bisher auch noch nichts Sicheres auszusagen.
Parasitismus und pathogene Bedeutung der Hämosporidien.
Wir haben gesehen, daß die Hämosporidien, gleich den Coccidien, echte Zellparasiten sind, und daß sie wie diese durch einen typischen Generationswechsel ausgezeichnet sind. Die Befruchtungserscheinungen sind prinzipiell denjenigen der Eimeriden zu vergleichen und man [S. 795]könnte demzufolge sie als Coccidien betrachten, welche in manchen Punkten durch die Anpassung an den Blutparasitismus abgeändert sind. Wie die Hämogregarinen sich mit Sicherheit als derart angepaßte Coccidien vom Typus der Adeleiden erwiesen haben, so könnte man die Plasmodien und ihre näheren Verwandten als solche vom Eimeridentypus betrachten. Das hat z. B. Léger getan und ich bin ebenfalls zu dieser Auffassung geneigt.
Nun sind aber andererseits in den letzten Jahren Tatsachen und Gedankengänge bekannt geworden, welche auf eine direkte Abstammung der Hämosporidien von Flagellaten hinweisen. Nach den theoretischen Anschauungen, welche vor allem von Schaudinn, Hartmann, Prowazek u. a. entwickelt wurden, sind die Hämosporidien von Trypanosomen abzuleiten. Während Formen, wie Haemoproteus resp. Halteridium (vgl. S. 450 und S. 758) noch einen großen Teil ihres Lebens im Trypanosomenzustand zubringen, tritt dieser bei den typischen Parasiten der roten Blutkörperchen immer mehr zurück. Formen wie Endotrypanum (S. 466) und Schizotrypanum (S. 464) leiten zu den echten Hämosporidien, vor allem den Plasmodiden, über. Diese Uebergangsformen sind als solche charakterisiert durch den Besitz eines neben dem Kern vorhandenen Blepharoplasts, welcher auf die noch nicht lange aufgegebene Flagellatennatur hinweist. Achromaticus (S. 793) und Proteosoma (S. 771) würden die Brücke zu den Plasmodiumarten schlagen, bei denen nur gelegentlich noch Stadien auftreten, welche auf die Abstammung hinweisen (vgl. S. 769 u. 773).
Ich habe oben an verschiedenen Stellen an den Grundlagen dieser Theorie Kritik geübt oder die von anderen geübte Kritik angeführt. Es ist nicht zu bestreiten, daß die ihr zur Grundlage dienenden Tatsachen von vielen Seiten sehr stark angezweifelt werden. Wir müssen sie daher, so genial sie auch konzipiert ist, und so verführerisch sie für jeden Protozoenkenner zunächst erscheint, mit einer gewissen Reserve betrachten.
Ehe diese phylogenetischen und systematischen Fragen entschieden werden können, müssen weitere Forschungen abgewartet werden.
Bisher nahm man an, daß die Unterschiede in der Morphologie der Hämosporidien und Coccidien vornehmlich durch den Wirtswechsel der ersteren veranlaßt seien. Der Mangel an Sporenhüllen bei diesen blutbewohnenden Sporozoen wurde durch die eigenartige Form des Wirtswechsels erklärt, welche es den Parasiten erspart, dem austrocknenden Einfluß der Luft oder der schädigenden Wirkung des Wassers ausgesetzt zu werden.
Neuere Befunde sind geeignet, diese Anschauung zu stützen. Die Stadien, welche man als Sporogonie von Leukocytogregarinen und Hämogregarinen beschrieben hat, zeigen, daß bei dem unvollkommenen Wirtswechsel derselben die coccidienähnlichen Stadien nicht verloren gegangen sind.
Ferner hat sich gezeigt, daß bei den Aggregatarien, welche ebenfalls zur Vollendung ihres Zeugungskreises auf Wirtswechsel angewiesen sind, die bei der Neuinfektion ohne Aufenthalt in der Außenwelt direkt in die neuen Wirte gelangenden Stadien, ähnlich wie bei den Hämosporidien, einer schützenden Sporenhülle entbehren.
Derartigen biologischen Uebereinstimmungen ist allerdings nur eine sekundäre Bedeutung zuzuschreiben.
[S. 796]
Die Plasmodiden verdanken ihre außerordentlich große pathogene Bedeutung ihrer rapiden Vermehrungsfähigkeit und der rasch zerstörenden Wirkung, welche ihr Zellparasitismus auf die von ihnen befallenen roten Blutkörperchen ausübt.
Ihr Einfluß auf den Organismus ist ein um so größerer, als die von ihnen zerstörten Zellen, die Erythrocyten, eine so große Bedeutung für die Gesundheit ihrer Wirte (ausschließlich höhere Wirbeltiere) besitzen.
In diesem Zusammenhang sei übrigens auch hervorgehoben, daß nach Argutinsky, Schaudinn u. a. die Malariaparasiten nicht immer im Erythrocyten, sondern vielfach nur an dessen Außenfläche angeheftet, bezw. in dessen Stroma eingesenkt, ihren Sitz haben (vgl. Fig. 704, S. 776); es ist noch unklar, ob dies für bestimmte Stadien oder Phasen derselben die Regel ist.
Die große Beachtung, welche die Plasmodiden gefunden haben, verdanken sie weniger dem sehr bedeutenden wissenschaftlichen Interesse, welches ihre Naturgeschichte fordert, als vielmehr dem Umstand, daß sie als Krankheitserreger des Menschen und — wenn wir die Babesien hinzuziehen — unserer kostbarsten Haustiere eine verhängnisvolle, gewaltige Rolle spielen. Neben den Spirochätosen, Trypanosomosen, Babesiosen und Leishmaniosen sind die Plasmodiosen die gefährlichsten unter den spezifischen Krankheiten der Tropen. Sie sind es, welche die Besiedelung der Tropen durch die weiße Rasse bisher sehr erschwerten und zum Teil sogar unmöglich machten.
Plasmodiosen.
Die wichtigsten unter ihnen sind die Plasmodiosen, welche als Krankheiten bei Vögeln, Fledermäusen und Affen vorkommen, vor allem aber beim Menschen wüten, bei welchem sie bekannt sind unter dem Namen der
Malaria,
des Sumpffiebers, oder Wechselfiebers, in seinen verschiedenen Erscheinungsweisen. Die beiden erwähnten deutschen Namen weisen auf besondere Eigentümlichkeiten der Malariaerkrankungen hin, welche in engem Zusammenhang mit den biologischen Verhältnissen der Malariaparasiten stehen.
Wechselfieber wird die Malaria deswegen genannt, weil bei den Erkrankten Fieberperioden mit fieberfreien Zeiten abwechseln, in welch letzteren der Kranke, abgesehen von Schwäche und Müdigkeit, sich vollkommen wohlfühlen kann.
Diese Eigentümlichkeit ist durch die Fortpflanzungsverhältnisse der Parasiten bedingt.
Hat eine Stechmücke aus der Gattung Anopheles mit infizierten Speicheldrüsen einen gesunden Menschen gestochen, so hat sie dessen Blut in der Regel eine sehr große Anzahl von Keimen der betreffenden Plasmodiumart einverleibt; denn wie ich schon früher erwähnte, kann eine einzelne Oocyste bis zu 10000 Sporozoiten enthalten, und auf dem Darm eines einzigen Anopheles können 200 und mehr Oocysten gefunden werden.
Diese Menge von Infektionskeimen genügt jedenfalls, um die oft so plötzlichen und heftigen Krankheitsausbrüche zu erklären. Trotzdem nimmt Grassi an, daß [S. 797]in der ersten Periode der Erkrankung, der Inkubationsperiode, eine dritte Vermehrungsart der Plasmodiumkeime stattfinde: und zwar schließt er darauf aus dem verschiedenen Aussehen der Kerne in den Sporozoiten und in den jüngsten Keimen, welche man im Blutkörperchen nachweisen kann. Mir scheint diese Begründung nicht ausreichend; denn auch bei den anderen Telosporidien sehen wir oft den Kern des in eine Wirtszelle eingedrungenen Sporozoiten sich sehr bald verändern und vor allem eine mehr aufgelockerte Form annehmen.
Der Fieberausbruch trifft immer mit einer Vermehrungsperiode des Parasiten zusammen. Jedenfalls wird der erste merkbare Fieberausbruch erst dann erfolgen, wenn durch einige Generationen der Schizogonie eine hinreichende Anzahl von Blutkörperchen geschädigt ist.
Denn zwei der wichtigsten Symptome der Malaria: die Anämie und die sog. Melanämie, sind offenbar die Ausgangspunkte für die Beurteilung der Schädigung des infizierten Organismus.
Die Anämie kann bei heftigen Infektionen einen sehr hohen Grad erreichen. Der Mensch besitzt normalerweise im Kubikmillimeter Blutes über 5 Mill. rote Blutkörperchen. Die Zahl kann bis auf 500000 im Kubikmillimeter sinken. In 4 Tagen sinkt sie in manchen Fällen um 200000 im Kubikmillimeter (Kelsch nach Mannaberg). Dionisi konnte feststellen, daß ein einziger Anfall von Perniciosa dem Menschen 500000–1000000 Blutkörperchen pro Kubikmillimeter kostet. In schweren Fällen, besonders beim sog. Schwarzwasserfieber der Tropen, kann der Verlust noch ein größerer sein und zur Hämoglobinurie führen. Unter Schwarzwasserfieber versteht man nämlich eine Erkrankungsform, welche wie eine sehr schwere Malaria verläuft, bei welcher aber gerade das spezifische Heilmittel gegen Malaria, das Chinin, Hämoglobinurie und Lebensgefahr auslöst. Nach mannigfachen Theorien über die Entstehung dieser Krankheitsform ist man jetzt zur Ueberzeugung gelangt, daß sie durch einen besonderen Zustand des durch starke Infektion mit Tropica beeinflußten Blutes des Erkrankten bedingt ist. Man hält sie also für eine spezielle Form schwerster Malaria. Nach Gonder und Rodenwald kann es nur auftreten, wenn die Milz vorhanden ist. Versuchstiere ohne Milz bekommen kein Schwarzwasserfieber.
Unter Melanämie versteht man die Erscheinung, daß sich im Blut und besonders in der Milz und anderen Organen schwarzes oder braunes Pigment ablagert; es ist dies das sog. Melanin, ebenjenes Pigment, welches sich im Protoplasma des Parasiten aus dem Hämoglobin des roten Blutkörperchens bildet und welches mit den Restkörpern ausgestoßen wird. Im kreisenden Blut, noch mehr aber in den Organen, besonders der Milz und Leber, werden von Phagocyten (Leukocyten, Makrophagen, gewisse Endothelien) die Restkörper mit ihrem Pigment aufgenommen und das letztere in den Organen aufgespeichert.
Daß dies Melanin und der sonstige Inhalt der Restkörper keine Reservestoffe des Parasiten sind, geht schon aus ihrer Ausstoßung hervor. Es sind für den letzteren vielmehr unbrauchbare Stoffwechselprodukte, Fäkalien.
Offenbar enthalten die soeben geschilderten Symptome in sich auch die Ursachen zu dem dritten, wichtigsten und bekanntesten Symptom der Malaria, dem Fieber oder Fieberparoxysmus. Doch ist hier das Kausalverhältnis noch durchaus nicht vollständig aufgeklärt.
Das aber steht bereits fest, daß die Teilungsperiode der Parasiten den Fieberanfällen unmittelbar vorausgeht; es wurde dies schon von [S. 798]Golgi für die Tertiana und Quartana, von Marchiafava und Celli auch für die Perniciosa nachgewiesen.
Im einzelnen betrachtet, würde das bei der Tertiana sich folgendermaßen darstellen: Bei einem Infizierten tritt nach einer Inkubationsperiode, welche jedenfalls je nach der Zahl der in das Blut geratenen Sporozoiten eine verschiedene sein muß, der erste Fieberanfall auf. Derselbe bezeichnet den Zeitpunkt, in welchem die Menge der Parasiten eine gewisse nicht näher bestimmte Höhe erreicht hat; gewöhnlich ist dies nach 8–12 Tagen der Fall. Zu der Zeit kurz vor dem Fieberanfall findet man im Blut vorwiegend Vermehrungsstadien des Parasiten. Die Sprößlinge gelangen dann ins freie Blutplasma und infizieren neue Blutkörperchen. Nachdem dies geschehen ist, tritt die fieberfreie Zeit ein. Der Parasit wächst heran, teilt sich wieder, und wenn die sämtlichen gleichaltrigen Individuen nach 48 Stunden wieder ihren Vermehrungsakt vollzogen haben, tritt der neue Fieberanfall ein. Wir haben also einen fieberfreien Tag alternierend mit einem Fiebertag. Der Anfall kann von verschiedener Dauer sein, meist währt er einige Stunden.
Die schematische Fig. 735 mit der dazu gehörigen Fieberkurve veranschaulicht dieses Verhältnis.
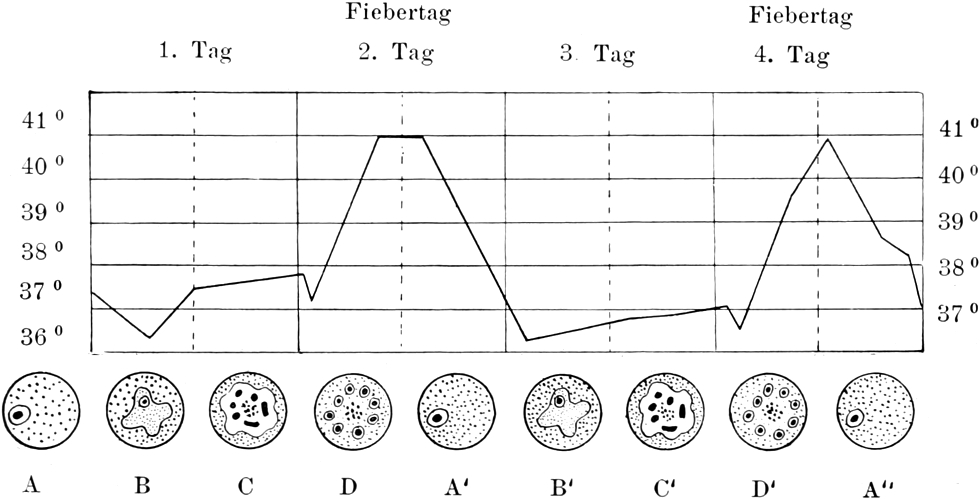
Aehnlich ist es bei der Quartana, deren Parasit jedoch in Abständen von 72 Stunden zu je einer neuen Teilung schreitet; daher sehen wir bei dieser Malariaform auf einen Fiebertag stets zwei fieberfreie Tage folgen.
Es ist leicht einzusehen, daß eine zweite oder dritte Infektion des Kranken mit der Plasmodiumart das Bild der Krankheit bedeutend abändern kann, besonders dann, wenn die zweite Infektion so erfolgt, daß die von ihr gebrachten Parasiten ihre Vermehrung an einem der bisher fieberfreien Tage durchmachen. Nach dem Vorbild von Mannaberg können wir uns dies in folgender Weise leichter verständlich machen. Dabei bedeutet 0 den fieberfreien Tag, 1 die aus der ersten, 2 die aus der zweiten Infektion stammende Parasitendeszendenz [S. 799]usw. Die Klammern verbinden die zusammengehörigen Nummern.
Ganz ähnlich verhält es sich wahrscheinlich bei der Tropica, der Laverania malariae. Hier ist wahrscheinlich die Dauer einer Generation auf 48 Stunden bemessen, so daß sie auch die Form einer Tertiana besitzen würde. Aber meist ist dieselbe durch Mehrfachinfektionen und durch die Heftigkeit der Erkrankung verdeckt, und wir sehen durch L. malariae fast stets eine Quotidiana, ein Fieber mit täglichen Anfällen erzeugt.
In der Natur verlaufen natürlich alle diese Vorgänge durchaus nicht so glatt und gleichmäßig, wie im Schema. Die Einzelindividuen einer Generation machen ihre Teilung in Sprößlinge durchaus nicht alle gleichzeitig ab, sondern zum Teil nacheinander, wenn auch in sehr kurzen Intervallen. Wir können mehrere Stunden lang die betreffenden Stadien im Blut nachweisen; es dauert dann auch der Fieberanfall nicht nur einige Augenblicke, sondern mehrere Stunden, oft einen halben Tag lang (bei der Tertiana). Das verhütet allerdings eine Heftigkeit des Anfalls, dessen Plötzlichkeit der Körper kaum widerstehen könnte.
Daher ist auch bei der Malaria die Hämoglobinurie vergleichsweise selten, im Gegensatz zu dem Verhalten des Texasfiebers, bei welchem tatsächlich eine viel größere Anzahl von Blutkörperchen in kürzerem Zeitraum durch die Parasiten zugrunde gerichtet wird.
Wie mehrere Generationen der gleichen Art, so können beim Menschen und bei Anopheles Angehörige der verschiedenen Arten von Plasmodium gleichzeitig vorkommen. Es kann also beim Menschen Tertiana mit Quartana oder mit Tropica als Mischinfektion vorkommen usw.
Es wirken nach dem oben (S. 302) Gesagten neben der Zerstörung der Blutkörperchen und der dadurch hervorgerufenen Anämie auch Stoffwechselprodukte des Parasiten auf den Wirt ein, und man spricht von einer spezifischen Giftwirkung der Malariaplasmodien. Ja, es hat sich auch herausgestellt, daß die Virulenz bei Tropica, Tertiana und Quartana im einzelnen Fall sehr verschieden sein kann, so daß man giftigere und weniger giftige Stämme oder Rassen der drei Arten unterscheiden kann. Es zeigt sich dies darin, daß in einem Fall wenig Parasiten genügen, um eine schwere Krankheit hervorzurufen, während in anderen Fällen sehr zahlreiche Parasiten nur eine relativ schwache Erkrankung bedingen.
Es gibt aber unter den Menschen Individuen und selbst ganze Völker, welche gegen diese Giftwirkung unempfindlich sind, welche [S. 800]eine natürliche Immunität besitzen; man hat sofort daran gedacht, daß infolgedessen eine künstliche Immunität sich ebenfalls erzielen lassen müsse. Bekanntlich wird allerdings ein Erwachsener, welcher die Malaria übersteht, eher für eine Neuinfektion empfänglicher als ein Gesunder.
Aber nach Koch soll in denjenigen Gegenden der Tropen, wo die Erwachsenen gegen die Malaria immun sind, dieselbe eine Kinderkrankheit sein. Und es sollen die Kinder, welche sie überstehen, unempfindlich gegen sie werden und es als Erwachsene bleiben. Das würde eine bemerkenswerte Analogie mit dem Texasfieber sein (s. unten). Diese natürliche Immunität kann sich aber nur in solchen Gegenden entwickeln, in welchen infolge der klimatischen Verhältnisse Malaria das ganze Jahr hindurch vorhanden ist. Sie wird nur aufrecht erhalten durch fortgesetzte Neuinfektionen. Erwachsene Eingeborene aus solchen Gegenden (z. B. Gebieten in Neu-Guinea und Westafrika) verlieren ihre Immunität, wenn sie eine Zeitlang in malariafreien Gegenden verweilen; sie können wieder infiziert werden, wenn sie in die Heimat zurückkehren.
Natürlich entsteht eine solche Immunität niemals nach Chininbehandlung der Malaria.
Spontanheilung der Malaria ist bei kräftigen Individuen, nach nicht allzu schweren Infektionen nichts Seltenes; wenn eine neue Infektion vermieden wird, und der Erkrankte eine gesunde und kräftigende Lebensweise führt, verschwinden nach einiger Zeit die Parasiten vollkommen aus seinem Blut und seinen Organen.
Es ist dies, biologisch genommen, ein notwendiges Postulat; denn wenn alle ungeschlechtlichen Individuen nach einer Reihe von Teilungen zu Gametocyten geworden sind, ohne Gelegenheit zur Befruchtung zu finden, so sollten sie alle zugrunde gehen und vom menschlichen Organismus vertilgt werden. Dies geschieht offenbar auch in vielen Fällen, doch erhalten sich besonders die Makrogametocyten sehr lange lebensfähig (s. unten).
Perniciosakranke, welche aus den Tropen in unser Klima zurückgekehrt sind, enthalten in ihrem Blut nach einiger Zeit fast ausschließlich Gametocyten. Doch hängt dies offenbar auch von dem Zustande des Kranken ab; es scheint nach den Beobachtungen der Kliniker, daß für das Auftreten der geschlechtlichen Formen nicht nur die Zahl der durchlaufenden geschlechtlichen Generationen, sondern auch Zustände des Wirts von Einfluß sind.
Bei dem Zugrundegehen der Parasiten in den Heilungsprozessen spielt auch der Phagocytismus eine nicht geringe Rolle. Zum mindesten werden die geschwächten und abgestorbenen Plasmodien von den Phagocyten gefressen, aber man hat in solchen auch schon Teilungszustände gefunden.
Besonders interessant sind in biologischer Beziehung die Rezidive.
Es ist eine bekannte Erscheinung, daß auch ohne neue Infektion von der Malaria scheinbar Genesene, selbst in malariafreien Gegenden, nach längeren Intervallen wieder erkranken können. Während manche Forscher dies auf die in Phagocyten eingeschlossenen, nach ihnen zeitweise latenten Fortpflanzungsstadien zurückführen wollten, ist man in der neuesten Zeit geneigt, anders geartete Dauerformen anzunehmen. Die von Plehn beschriebenen eigenartigen Latenzformen, [S. 801]kleine geißeltragende Gebilde, welche auch Schaudinn wiedergefunden zu haben glaubte, werden von den meisten Autoren für Degenerationsstadien oder sonstige fremde Gebilde gehalten.
Dagegen hat Schaudinn nachgewiesen, daß die Vermutung Grassis begründet ist, welcher annahm, daß die Rezidive durch eine Parthenogenese der Makrogameten veranlaßt seien. Schaudinn hat gezeigt, daß sich in der Milz scheinbar geheilter Malariakranker oft noch zahlreiche Plasmodien nachweisen lassen, und daß die am längsten persistierenden Stadien Makrogameten sind. Er hat weiter gefunden, daß in Zeiten, in denen durch irgendwelche Schädigungen der Körper geschwächt ist, diese zurückgebliebenen Makrogameten einen Prozeß durchmachen, welcher an die Richtungskörperbildung, die sonst nur im Anophelesdarm erfolgt, erinnert. Sie erfolgt aber nur unvollständig und wird zum Teil wieder rückgängig gemacht.
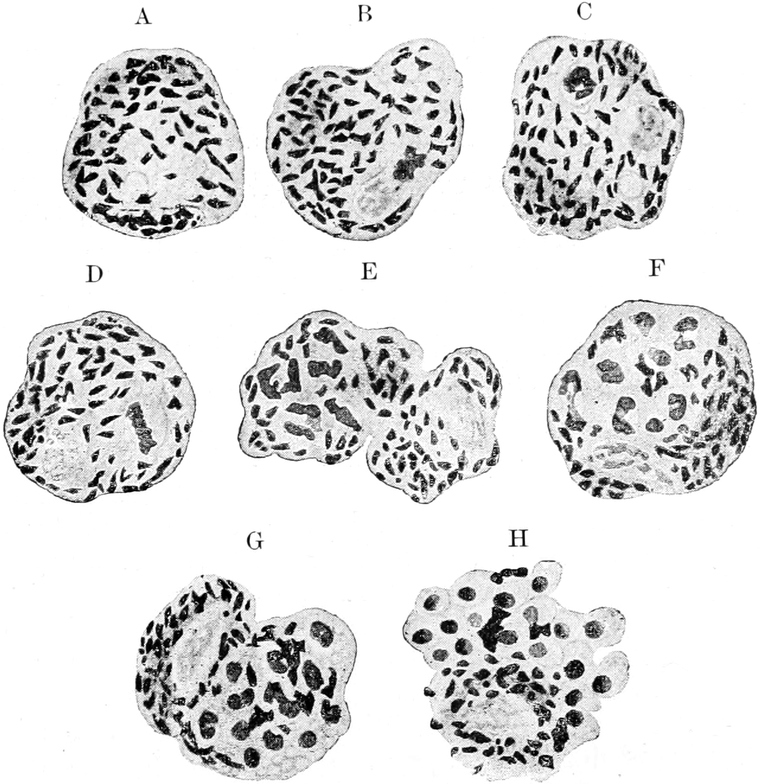
Im Gefolge dieses Prozesses wird aber der vorher vermehrungsunfähige Makrogamet von neuem zu einer intensiven Vermehrung befähigt, welche nach dem gewöhnlichen Typus der Schizogonie erfolgt und zur erneuten Ueberschwemmung des Bluts mit dem Plasmodium führt (von Schaudinn nachgewiesen bei der Tertiana). Neuerdings gibt Neeb ähnliche Befunde für die halbmondförmigen Gameten des Tropicaparasiten an. Uebrigens ergaben Versuche v. Berenberg-Gosslers bei Affenmalaria, daß Verimpfung von Milzextrakt einer [S. 802]scheinbar ausgeheilten Mangabe auf eine gesunde zur Infektion der letzteren führte.
Sumpffieber, die zweite deutsche Bezeichnung der durch die Plasmodien erzeugten Krankheit, der italienische Name Malaria, und alle Erfahrungen der Aerzte seit alter Zeit weisen auf einen Zusammenhang der Erkrankung mit feuchten Orten, Sümpfen, Flußniederungen und flachen Küsten hin.
Die Brücke, welche diesen Zusammenhang vermittelt, zu entdecken und die Einzelheiten der Beziehungen zwischen Bodenbeschaffenheit und Klima einerseits und der Malaria andererseits aufzuklären, war den englischen Aerzten Manson und vor allem Ross vorbehalten.
Die Uebertragung auf den Menschen erfolgt durch Stechmücken der Gattung Anopheles, und zwar ausschließlich durch Arten dieser Gattung.
Ross hatte als erster die Entwicklung von Proteosoma (also des Malariaparasiten der Vögel) in den Stechmücken der Gattung Culex nachgewiesen. Doch war es ihm anfänglich nicht geglückt, die Malariaparasiten des Menschen in Stechmücken überhaupt zur Entwicklung zu bringen. Wohl aber fand Ross bei anderen — jetzt als Anopheles bestimmten — Moskitos ähnliche Cysten, wie er sie bei mit Proteosoma infizierten Culexarten gefunden hatte.
Im weiteren Verlauf seiner Untersuchungen gelang es ihm, den ganzen oben im speziellen Teil dargestellten Zusammenhang, speziell für den Tropicaparasiten, nachzuweisen. Seinen Entdeckungen beim menschlichen Malariaparasiten waren aber die italienischen Malariaforscher zum Teil zuvorgekommen.
Ross’ geniale Entdeckungen waren mit primitiven Hilfsmitteln erzielt und sind seiner echt englischen nachhaltigen Energie zu verdanken. Manches war dabei in zoologischer, vor allem cytologischer Beziehung unklar geblieben. Diese Lücken wurden ausgefüllt durch die sorgfältigen Untersuchungen Grassis, welcher unabhängig von Ross und zum Teil gleichzeitig mit ihm die „Moskitotheorie“ der Malaria zum Gegenstand seiner Forschungen gemacht und gemeinsam mit anderen italienischen Forschern (Bignami, Bastianelli, Dionisi u. a.) auf breiter Basis die Zoologie der Malaria und außer dem Zeugungskreis des Tropicaparasiten auch denjenigen des Tertiana- und Quartanaparasiten studiert hatte. Grassi und seine Mitarbeiter haben als erste mit Sicherheit festgestellt, daß wenigstens in Italien nur Arten der Gattung Anopheles die Malaria übertragen. Die Entdeckungen von Ross und Grassi sind der Gegenstand heftiger literarischer Fehden gewesen; wie so oft bei wichtigen wissenschaftlichen Resultaten, hat sich auch in diesem Fall ein lebhafter Streit um die Priorität entfacht. Wir können uns heute wohl auf den Standpunkt stellen, daß Ross der erste war, welcher den Entwicklungskreis des Malariaparasiten erkannte, während der exakte wissenschaftliche Beweis und die genügende zoologische Darstellung zuerst von Grassi gegeben wurde. Die Forschungen von Rob. Koch und die weitblickenden, im Zusammenhang mit seinen Coccidien- und Hämosporidienuntersuchungen entwickelten Ideen Schaudinns brachten ungeahnte Klarheit in die früher so rätselhaften biologischen Zusammenhänge der Malariainfektion.
[S. 803]
Die Stechmücken der Gattung Culex sind nach allen neueren Untersuchungen nicht imstande, die Infektion zu verbreiten, da in ihnen die Plasmodiumarten sich nicht weiterentwickeln; man kann also nicht annehmen, daß sie gelegentliche Ueberträger sein könnten.
Von der Gattung Anopheles sind in Europa vier Arten als Ueberträger nachgewiesen worden, deren Unterschiede hauptsächlich an den Flügelzeichnungen erkennbar sind. Sie stehen sich offenbar sehr nahe, vielleicht ebenso nahe, wie die verschiedenen Menschenrassen, auf welche sie die Malariakeime übertragen.
Drei der Arten zeichnen sich ganz besonders durch die Fleckung der Flügel vor den Culexarten aus, während die vierte keine solchen Flecken besitzt. Von den Culexweibchen unterscheiden sich diejenigen von Anopheles durch die viel größeren Taster (vgl. Fig. 699 und 737). Bei sämtlichen Moskitos sind es ja nur die Weibchen, welche Blut saugen.
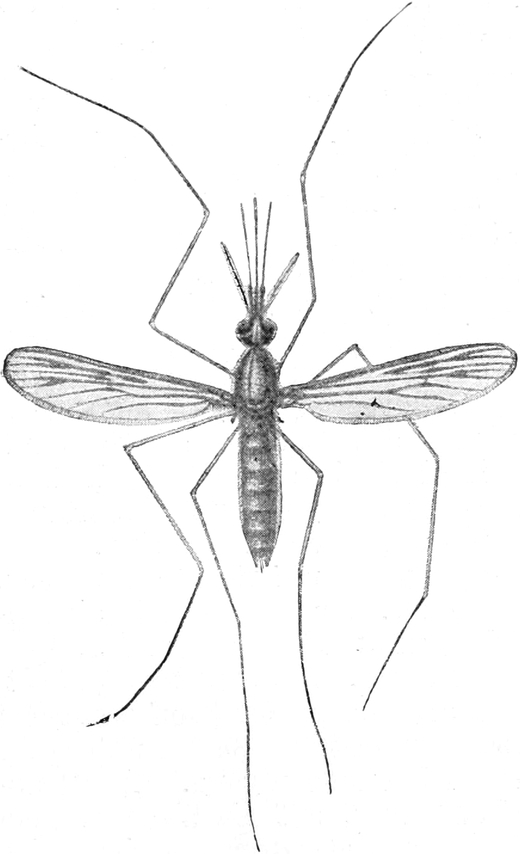
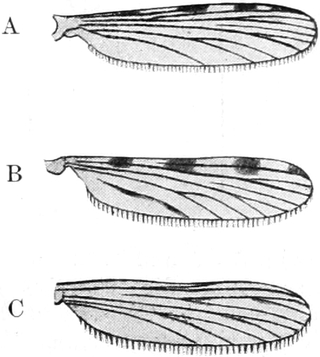
Die in Europa am weitesten verbreitete Anophelesart ist A. claviger Fabricius (synonym A. maculipennis Meigen) (Fig. 737). Sie kommt in Südeuropa in allen Malariagegenden vor, im nördlichen Europa ist sie ebenfalls weit verbreitet, ohne daß natürlich ihr Vorkommen auch das Vorkommen von Malaria bedingte. Die Unterschiede der vier Anophelesarten lassen die Fig. 737 und 738 erkennen. Alle italienischen Anophelesarten sind an der Uebertragung der Malaria beteiligt. Nach neueren Untersuchungen kommen in den Tropen auch andere Gattungen von Anophelinen als Ueberträger der Malaria in Betracht. Doch handelt es sich in all diesen Fällen eigentlich nur um Untergattungen der Gattung Anopheles, welche von derselben [S. 804]nur durch untergeordnete Merkmale geschieden sind. So die „Gattungen“ Mansonia, Theobaldia.
Schon durch die bedeutendere Größe lassen sich die Anophelesarten meist von Culex unterscheiden. In manchen Gegenden Italiens sind sie schon von alters her als Zanzarone und Zanzare unterschieden. Leicht sind beide Gattungen zu unterscheiden, wenn man sie an senkrechten Mauern sitzend beobachtet. Es hält dann Culex den Leib stets mehr oder weniger parallel der Mauer, während der Leib von Anopheles in einem spitzen Winkel absteht (Fig. 739).
Die Anophelesarten unterscheiden sich in der ganzen Lebensweise von den Culexarten. Die Larven von Anopheles leben mit Vorliebe in Sümpfen, kleinen Tümpeln, seichten Gewässern, vor allen Dingen bevorzugen sie auch Orte, welche nicht so sehr von der Sonne beschienen werden.
Die fliegenden Anopheles entfernen sich selten weit von dem Ort ihrer Geburt; sie fliegen auch nicht hoch über dem Boden; es ist bekannt, daß in Malariagegenden hoch über dem Erdboden gelegene Wohnräume ziemlich sicher vor ihnen sind.
Sie sind sehr häufig in Gebüschen, Wäldern etc., kommen aber in die Ansiedelungen der Menschen und dringen in die Häuser. Sie sind meist nächtliche Tiere und stechen vorherrschend in den Stunden nach Sonnenuntergang und vor Sonnenaufgang. Auch abgesehen davon, daß die Uebertragung schon experimentell nachgewiesen ist, würden alle diese Tatsachen schon für einen Zusammenhang der Anopheles mit der Malaria sprechen.
Während im allgemeinen normalerweise die Larven von Anopheles an der Malariaübertragung unbeteiligt sind, soll ausnahmsweise nach Schaudinn Vererbung der Parasiten durch Infektion der Ovarialeier stattfinden. Diese Angabe ist aber noch nicht einwandfrei nachgewiesen und die Stadien des Parasiten sind in den einzelnen Phasen der Entwicklung noch nicht aufgefunden worden.
Eine andere Uebertragungsweise der Malaria als durch die Moskitos kann es nach dem jetzigen Stand unseres Wissens nicht geben.
Aus der gewonnenen Kenntnis von der Lebensgeschichte der Plasmodiumarten und ihrer Ueberträger hat man bereits versucht, Maßnahmen der Prophylaxe abzuleiten. Es ist dies ein Gebiet, um welches sich besonders R. Koch hervorragende Verdienste erworben hat.
Man versucht den Kampf gegen die Malaria:
- 1) durch Vertilgung der Anopheles und ihrer Larven,
- 2) durch Schutzmaßregeln gegen die Stiche der Anopheles,
- 3) durch Mittel, welche im menschlichen Körper die Entwicklung der Parasiten verhindern.
[S. 805]
Alle drei Methoden führen zu Resultaten; die besten werden sich ergeben, wo man alle drei vereinigen kann. Die erste wird sich aber nur an wenigen Orten sofort verwirklichen lassen; allerdings wird sie schon teilweise befolgt, indem man längst schon die Fiebergegenden zu entwässern sucht etc. In manchen abgegrenzten Gebieten, auf Inseln, Oasen etc., in der Umgebung von Tropenstädten hat sich mit der Beseitigung der Tümpel und der Bekämpfung der Anophelesbrut schon manches ausgezeichnete Sanierungsresultat erzielen lassen.
Die zweite Methode ist von Italienern und Engländern in Italien und anderen Ländern mit großem Erfolg angewendet worden. Sie bestand darin, daß die bedrohten Menschen nach Sonnenuntergang niemals ohne dichte Schleier und dicke Handschuhe ausgehen durften; die Häuser waren durch Räucherungen moskitofrei gemacht worden und wurden durch Gitter, Gaze und Vorhänge auch moskitofrei erhalten. Der Erfolg war glänzend.
Die dritte Methode ist die, daß man durch Chinin, das altbewährte Mittel gegen Malaria, die Parasiten im Blut des Menschen tötet. Einmal wird so der Ausbruch der Krankheit verhindert, indem jedesmal, nachdem ein Mensch gestochen wurde — oder die Möglichkeit dazu vorhanden war — Chinin gegeben wird. Dann aber kann man, indem man die Malariakranken konsequent mit Chinin behandelt, die Ansteckung der Anopheles verhindern. Auch wird wohl das mit dem Blut von den Anopheles gesaugte Chinin in diesen selbst weiter wirken und vielleicht ältere Generationen von Plasmodium töten können (?).
Alle diese Maßnahmen werden wohl zunächst die Malaria nur in den zivilisierteren Gegenden abnehmen machen. Aber die individuelle Prophylaxe durch Chinindosen und Absperrung der Moskitos ist wohl überall anwendbar.
Für den praktischen Mediziner, besonders in den Tropen, ist es natürlich erforderlich, zur Diagnose der Malaria im Blut des Patienten die Plasmodien nachweisen zu können. Ohne den Nachweis derselben kann heutzutage keine Malariadiagnose mehr als sicher gelten. Vielleicht sind auch viele jener Angaben über die Verbreitung der Malaria, welche sich scheinbar nicht gut mit der Uebertragung durch Anopheles vereinen lassen, auf Verwechslung mit anderen Krankheiten zurückzuführen.
Wir haben oben erwähnt (S. 800), daß in manchen Gegenden der Tropen die erwachsenen Eingeborenen malariafrei sind; trotzdem erkranken die Europäer in solchen Gegenden heftig an der Malaria. Man glaubte daher früher, eine Rassenimmunität annehmen zu müssen. Nachdem aber festgestellt worden war, daß Eingeborene aus anderen Gegenden beim Einwandern ebenso wie der Europäer erkranken, ja daß die früher immunen Landesbewohner, wenn sie eine Zeitlang außerhalb des Landes geweilt hatten, diese Immunität verlieren, mußte man diese Idee aufgeben.
Die Kochsche Entdeckung der Kindermalaria, welche seither von Dutton, Dempwolff u. a. bestätigt worden ist, hat die Quelle der stets drohenden Malariainfektionen in solchen Gegenden in infizierten Kindern nachgewiesen.
So wurden auch die Versuche wieder aufgegeben, in irgendeinem anderen Wirbeltier den eigentlichen und ursprünglichen Wirt der menschlichen Malaria zu finden. Eine Zeitlang hatte man angenommen, [S. 806]daß die in Fledermäusen und anderen Säugetieren, vor allem in niederen und höheren Affen (auch Menschenaffen) gefundenen Plasmodien von den Anophelinen auf den Menschen übertragen werden könnten. Diese Annahme hat man jetzt verlassen, und man ist allgemein geneigt, die in den verschiedenen Tierformen gefundenen Plasmodien für spezifisch zu halten; man hält sie für auf ihren Wirt jeweils beschränkte Arten und hat für sie auch, wie oben im speziellen Teil auseinandergesetzt wurde, morphologische und sonstige Merkmale festgestellt, welche sie untereinander und von den Plasmodiumformen des Menschen unterscheiden.
Immerhin muß betont werden, daß diese Frage noch nicht hinreichend geklärt ist. Es ist zwar in einer Reihe von Fällen gezeigt worden, daß die agamen Stadien des Blutes sich nicht von einer Wirtsspecies auf die andere übertragen lassen, auch mit Hilfe der Stechmücken ist dies nicht gelungen. Auch hat sich gezeigt, daß die einzelnen Plasmodien sich nur in bestimmten Stechmücken entwickeln. Es ist aber recht wohl möglich, daß wir vorläufig noch nicht die richtige Versuchsanordnung kennen, um eine Uebertragung zu erzielen, und daß zu einer solchen ganz besondere Vorbedingungen erfüllt sein müssen.
 Tropica
 Tertiana
 Quartana
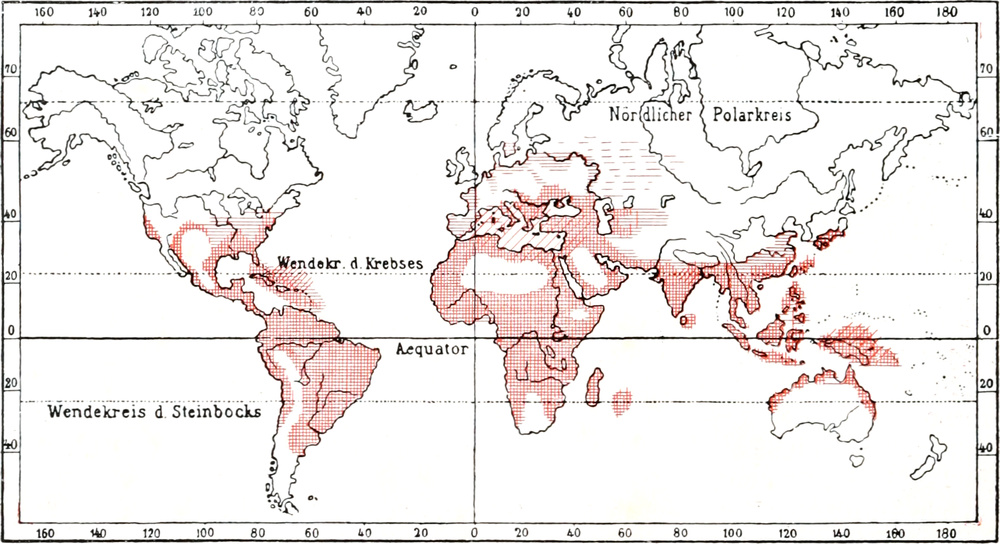
Im Zusammenhang damit ist es angebracht, nochmals kurz auf die Unterscheidung der Plasmodiumarten zurückzukommen. Für die bei so vielen verschiedenen Vögeln vorkommenden Plasmodien und für die Parasiten der Affen ist man durchaus noch nicht entschieden, wie viele Arten zu unterscheiden sind. Für die Malariaparasiten des Menschen ist man im Laufe der Zeit zur Unterscheidung von drei Formen gelangt, welche drei verschiedene Krankheitsformen erzeugen [S. 807] (vgl. S. 775, 798 etc.). Diese drei Formen haben eine sich durchaus nicht vollkommen deckende Verbreitung, wie aus der Karte Fig. 740 hervorgeht.
Noch neuerdings nimmt ein so hervorragender Kenner wie Donovan an, daß in Indien noch eine weitere Form vorkommen müsse.
Wie S. 784 erwähnt worden ist, sind manche Autoren geneigt, anzunehmen, daß die bisher als Tropicaparasit bezeichnete Form einen Sammeltypus darstellt, in welchem verschiedene gesonderte Arten vereinigt seien, und andererseits nehmen so bedeutende Autoritäten wie Laveran an, daß die drei allgemein unterschiedenen Malariaparasiten (Tropica, Tertiana, Quartana) nur einer einzigen „polymorphen“ Art angehören. Unsere gegenwärtigen Kenntnisse sprechen aber gegen diese Annahme.
Anhang: Die Babesien.
(Piroplasmen).
Die Babesien sind eigenartige Zellparasiten der roten Blutkörperchen, deren Natur und Verwandtschaftsverhältnisse immer noch nicht aufgeklärt sind. Es sind außerordentlich kleine Organismen, welche selten einen Durchmesser von mehr als 5 µ erreichen. Infolgedessen sind feinere Strukturen schwer zu untersuchen. Doch kann man stets Kern- und Plasmasubstanz unterscheiden. Ja man glaubt auch in vielen Fällen eine Unterscheidung von zweierlei Kernen durchführen zu können, welche auf Grund gewisser Theorien als Hauptkern und Blepharoplast gedeutet werden (vgl. Fig. 741, 742, 743 u. 746).
Teilungsstadien sind bei verschiedenen Formen beobachtet worden; es kommt durch Zweiteilung oft zu intensiver Infektion der roten Blutkörperchen. Auch multiple Teilungen kommen vor bei manchen Arten im peripheren Blut, bei anderen in den inneren Organen. Es liegt nahe, diese Stadien mit der agamen Vermehrung der Hämosporidien zu vergleichen.
Im späteren Verlauf der Infektion treten vielfach größere Stadien auf, welche sich nicht mehr zu teilen scheinen, und welche daher als Gameten gedeutet wurden. Der ganze Vergleich mit den Hämosporidien wurde noch unterstützt durch die Tatsache, daß die Babesien durch Arthropoden (Zecken) auf ihre Wirte, die, soweit bisher bekannt ist, sämtlich Wirbeltiere, und zwar Säugetiere sind, übertragen werden.
Die bisherigen Forschungen unterstützen diese Annahmen sehr, wenn wir auch noch nicht sagen dürfen, daß sie einwandfrei bewiesen sind. Manche Autoren sind allerdings der Ansicht, daß sogar noch mehr bewiesen sei, nämlich die Natur der Babesien als Zwischenformen zwischen den echten Hämosporidien und den Blutflagellaten.
Zu den Babesien werden eine ganze Reihe von Arten gestellt, die man in einige Gattungen verteilt hat. Während für die Babesia- und Theileriaarten die nahe Zusammengehörigkeit erwiesen ist, sind einige andere Formen, wie Toxoplasma etc. (S. 820) nur provisorisch hier untergebracht, da Vorkommen und Aussehen dies rechtfertigen, bis eine genauere Untersuchung des Zeugungskreises vorliegt.
[S. 808]
Gattung: Babesia Starcovici.
|
1893.
|
Babesia Starcovici, in:
Centralbl. f. Bakteriol. Vol. 14. p. 1.
|
|
1893.
|
Pyrosoma Th. Smith and
Kilborne, in: Bull. Dep. Agric. Animal Industry.
No. 1. p. 67.
|
|
1895.
|
Apiosoma Wandolleck, in:
Centralbl. f. Bakteriol. Vol. 17. p. 554.
|
|
1895.
|
Piroplasma W. H. Patton, in:
American Naturalist. Vol. 29. p. 498.
|
Die Babesien sind unpigmentierte Parasiten der roten Blutkörperchen von Säugetieren, welche durch Zecken übertragen werden.
Die meisten Babesien sind in zwei verschiedenen Erscheinungsformen beschrieben worden. Man hat rundliche resp. amöboide Formen und meist größere birnförmige Stadien jeweils bei derselben Art beschrieben. Die ersteren erinnern sehr an die agamen Stadien der Plasmodien; wie letztere, sind sie durch Vorhandensein einer Vakuole im Innern oft ringförmig. Ihr Umriß kann rund oder lappig sein; Pigment enthalten sie keines. Sie besitzen einen Kern, der vielleicht einen Binnenkörper enthält. Durch dessen Teilung wird die Babesia zweikernig und zerfällt dann in Tochtertiere. Ob multiple Teilung vorkommt, ist unsicher. Ferner wird das regelmäßige Vorkommen einer zweiten Masse färbbarer Substanz angegeben, welche von vielen Autoren für einen Blepharoplast erklärt wird.
Die birnförmigen Stadien sind relativ groß; ihr Körper ist regelmäßig in eine Spitze ausgezogen. Sie finden sich im Blutkörperchen in der Einzahl, öfter noch zu 2, 4, 8 und eventuell größeren Zahlen. Auch bei diesen birnförmigen Stadien ist Vermehrung, und zwar durch eine Art von Längsteilung, nachgewiesen. Von verschiedenen Autoren wird angegeben, daß die amöboiden Stadien auf den roten Blutkörperchen äußerlich ansitzen, während die birnförmigen Stadien im Innern derselben sich befinden. Nach anderen sind es nur die jungen [S. 809]Stadien, welche beim Eindringen in die Erythrocyten vorübergehend äußerlich angeheftet sind.
Die Annahme, daß sich Babesien direkt in Trypanosomenstadien umwandeln können, wie man auf Grund von Kulturergebnissen eine Zeitlang glaubte, ist wohl als definitiv widerlegt zu betrachten. Es handelte sich bei diesen Befunden um Doppelinfektionen mit Babesien und jenen Trypanosomen der T. Theileri-Gruppe (vgl. S. 428), welche oft in so geringer Zahl auftreten, daß nur Kultur im künstlichen Medium ihre Anwesenheit enthüllt.
Es ist aber von verschiedenen Autoren angegeben worden, daß dennoch geißeltragende Formen im Blut des Wirbeltieres vorkommen. Nuttall und Graham Smith haben solche beobachtet. Sie sahen kleine birnförmige Stadien im Innern der Erythrocyten rotierende Bewegungen ausführen und aus denselben herausschlüpfen, wobei die Blutkörperchen oft verletzt und zerstört wurden. Die freien Parasiten zeigten eigenartige Bewegungen und schwammen lebhaft, ziemlich rasch umher. Scheinbar waren diese Bewegungen durch eine Geißel bedingt (welche allerdings auf den Figuren nicht wie ein normales Gebilde aussieht). Oft sieht man freie Parasiten (und zwar solche von Birnform) wieder in Erythrocyten eindringen, wobei das stumpfe Ende vorausgeht; sie kugeln sich ab, werden amöboid und wachsen. Dann können sie von neuem birnförmig werden, ausschlüpfen und ein neues Blutkörperchen infizieren; oder sie teilen sich durch eine Art Knospung, nachdem sie zu einer beträchtlicheren Größe herangewachsen sind, und bilden 2 (eventuell mehr) Birnformen. Letztere hängen zunächst noch zusammen, trennen sich dann, schlüpfen aus und infizieren neue Blutkörperchen. Danach hätten die Birnformen nichts mit Gameten zu tun; letztere wären noch unbekannt, wenn nicht etwa die oben beschriebenen amöboiden Bildungen in den Zecken als solche zu deuten sind, was vorläufig nicht wahrscheinlich ist.
Breinl und Hindle machen über die begeißelten Stadien folgende Angaben (bei B. canis): Wenn man einen Hund ohne Anwendung von Chloroform zu der Zeit tötet, in welcher die Krankheit ihren Höhepunkt erreicht hat und der Hund ohnehin bald sterben würde, so kann man im Herzblut nach dessen Vermischung mit der gleichen Menge 2,5–5-proz. Natrium citricum-Lösung lebhaft bewegliche Individuen mit langer Geißel beobachten. Dieselben sind sehr schwer gut zu konservieren; gelingen die Präparate jedoch, so zeigen sie, daß die Geißel vom „Blepharoplast“ entspringt (Fig. 743).
Aus den sämtlichen bisherigen Angaben dürfte sich folgendes ergeben: die jungen Stadien der Babesien sind amöboid und vermehren sich durch einfache und multiple Teilungen. Im Verlauf der Infektion treten bei vielen Arten die birnförmigen Stadien auf, welche aber selbst noch teilungsfähig sind und sich lebhaft vermehren können. Dann treten die Gameten auf, welche birnförmig sein können, es aber nicht immer sind. Sie sind geschlechtlich differenziert.
Die Gameten gelangen im Darm der Ueberträger, also der Zecken, zur Vereinigung. Dieselbe erfolgt, ohne daß etwa neue Teilungen und eine weitere Differenzierung (etwa Bildung spermatozoenförmiger Mikrogameten) erfolgt wären. Sie führt zur Bildung einer Zygote, die wurmförmig wird, sich eventuell in verschiedene Formen differenziert zeigen kann, und welche sich dann im Körper der Zecken, in den [S. 810]Blindsäcken des Darms oder sonstwo weiter entwickelt. Es wurden die wurmförmigen Stadien nämlich auch in den Ovarien gefunden. Diese kugeln sich dann ab, wachsen, werden vielkernig und geben vielen kleinen Keimen den Ursprung, welche die Speicheldrüsen der Zecke, aber auch ihre Ovarien infizieren können und so die Verbreitung und Vererbung der Krankheit vermitteln (vgl. hierzu Fig. 752–755).
Dieser Entwicklungszyklus ist zwar durch einige Arbeiten wahrscheinlich gemacht; bei der Kleinheit des Objekts, der enormen Schwierigkeit der Technik und dem Vorkommen von ungeahnt viel Mischinfektionen bleibt aber immer noch mancher Zweifel zu beseitigen.
Die Uebertragung sämtlicher Babesien findet, wie mehrfach erwähnt, durch Zecken statt. Und zwar sind dabei in den verschiedenen Gegenden der Erde und bei der Uebertragung der verschiedenen Babesiaarten verschiedene Gattungen und Arten dieser Arthropoden tätig. In ihnen müssen die erwähnten Umwandlungen der Parasiten vor sich gehen, welche eine gewisse Zeit beanspruchen. Denn es erfolgt (mit Ausnahme von Theileria parva) die Infektion nicht durch die Zecke, welche das infizierte Blut gesaugt hat, sondern durch deren Nachkommenschaft. Es werden also offenbar die Ovarialeier infiziert und so die Krankheit vererbt. Und zwar vermögen die jungen erblich infizierten Zecken die Krankheit nicht sofort zu übertragen, sondern erst nach Ablauf einer gewissen Zeit; meist sind sie während der ganzen Larven- und Nymphenzeit nicht infektiös und übertragen erst, wenn sie nach der zweiten Häutung erwachsen sind.
Die Unterscheidung der Babesiaarten ist unsicher und hauptsächlich auf die Verschiedenheit der Wirte, die Nichtübertragbarkeit auf fremde Wirte, die Größenverhältnisse etc. begründet.
[S. 811]
1. Babesia canis (Piana u. Galli-Valerio).
|
1895.
|
Pyrosoma bigeminum var. canis Piana
e Galli-Valerio, Su di un’infezione di cane con
parassiti endoglobulari nel sangue. In: Moderno Zooiatro. No. 9. p. 163.
|
|
1899.
|
Piroplasma canis Labbé, in:
Tierreich. 5. Lief. Sporozoa. p. 128.
|
|
1902.
|
Nocard et
Motas, Contribution à l’étude de la
piroplasmose canine. In: Ann. Inst. Pasteur. Vol. 16. p. 257.
|
|
1904–1907 Nuttall and
Graham-Smith, Canine Piroplasmosis I–VI. In:
Journ. Hygiene. Cambridge. Vol. 4–7.
|
|
|
1907.
|
Kinoshita, Untersuchungen über
Babesia canis. In: Arch. f. Protistenk. Vol. 8. p. 294.
|
|
1907.
|
Christophers, S. R., Piroplasma
canis and its life-cycle in the tick. In: Sci. Mem. by Offic. of the Med.
and Sanit. Dptmt. India N. S. No. 29. Calcutta.
|
|
1908.
|
Breinl and
Hindle, Contributions to the morphology and
life-history of Piroplasma canis. In: Ann. trop. Med. and Parasit. Vol. 2.
p. 233.
|
Babesia canis, die größte der bekannten Arten, ist jetzt wohl die am genauesten untersuchte Form der Gattung, vgl. die allgemeine Darstellung der Gattung oben S. 808. Wesentliche morphologische Unterschiede gegenüber B. bovis konnten nicht festgestellt werden, doch mißlangen Uebertragungsversuche auf andere Tiere als Hunde. Daher wird an der Selbständigkeit der Art festgehalten.
B. canis wird ebenfalls durch Zecken übertragen, und zwar in Südafrika durch Haemophysalis Leachi Aud., in Indien durch Rhipicephalus [S. 812]sanguineus, in Frankreich durch Dermacentor reticulatus (Fabr.). Es wird angegeben, daß diese Zecken nicht imstande sind, die Infektion direkt auf andere Hunde zu übertragen; auch wenn sie ererbt ist, wird sie nicht von Larven und Nymphen, sondern erst nach der zweiten Metamorphose übertragen.
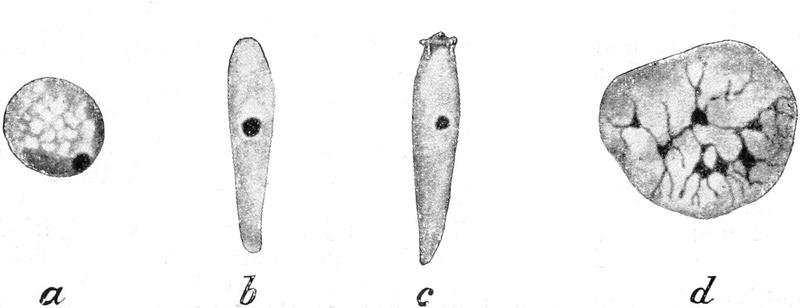
Die Blutinfektion bei Hunden hat eine Erkrankung zur Folge, welche als infektiöser Ikterus, „malignant jaundice“ bezeichnet wird. Die Krankheit wurde in Frankreich (Paris), Italien, in Süd- und Ostafrika, Senegambien, China und Indien nachgewiesen.
2. Babesia bigemina (Smith u. Kilborne).
|
1893.
|
Pyrosoma bigeminum Smith and
Kilborne, in: Bull. Dep. Agric. Animal Industry.
No. 1. p. 67.
|
|
1899.
|
Laveran et
Nicolle, Contribution à l’étude du Pirosoma
bigeminum. In: C. R. Soc. Biol. Vol. 51. p. 748.
|
|
1900.
|
Lignières, J., La tristeza ou
malaria bovine dans la république Argentine. Aus: Laboratoire de
l’Association des éleveurs argentins (Palermo) Buenos Aires. Peuser. 1900.
|
|
1900.
|
Kossel u.
Weber, Ueber die Hämoglobinurie der Rinder in
Finnland. In: Arb. Kais. Gesundheitsamt. Vol. 17. p. 460.
|
B. bigemina mißt 2–4 µ in der Länge und 1,5–2 µ in der Breite. Das gilt jedoch nur für die größeren birnförmigen Stadien, welche sich fast stets zu zweien in einem Erythrocyten finden; dieselben sind meist gleich groß, mit den zugespitzten Enden einander zugekehrt oder sogar sich berührend. Ihr Plasma ist gleichmäßig blaß, meist nicht granuliert. Im Innern finden sich 1–2 färbbare Körper. Außer den Birnformen kommen auch rundliche und amöboide Formen vor, welche sehr klein sein können.
Nach Nuttall und Graham-Smith verläuft die Entwicklung, speziell die Teilung, genau wie bei B. canis. Doch scheint mir dabei die Entstehung der ganz kleinen Stadien, welche man so oft in den Erythrocyten findet, noch nicht geklärt. Vielleicht müssen wir zu ihrer Erklärung auf die kleinen Zweiteilungs- und multiplen Teilungsstadien zurückgreifen, welche Laveran, Nicolle und Doflein (1. Auflage dieses Buchs) beschrieben haben (Fig. 747 C–F).
Die Entwicklung in der Zecke (Boophilus bovis, s. unten) ist noch unbekannt und muß ihre Besonderheiten haben, da die infizierte Zecke nicht selbst die Krankheit weiter überträgt, sondern erst ihre Nachkommenschaft (s. unten).
[S. 813]
Babesia bigemina ist weit verbreitet; sie ist in den Vereinigten Staaten von Nordamerika, in Cuba, Portorico, Argentinien, Chile, Uruguay, im Kaukasus, in Transvaal, Südafrika, Deutsch-Ostafrika, im Sudan und Westafrika, auf den Philippinen, in Ostindien, Indonesien und in Australien aufgefunden worden. Sie kommt also im ganzen tropischen und subtropischen Gebiet der Erde vor und, wenn die sogleich anzuführende Art mit ihr identisch ist, auch in den ganzen gemäßigten Zonen.
[S. 814]
Der Parasit kommt in dem Blut von Rindern vor; neuerdings wurde er auch bei Hirschen nachgewiesen, eine Beobachtung, von deren Richtigkeit ich mich selbst überzeugen konnte (ob gleiche Art?). Im Zoologischen Garten in St. Petersburg fand Yakimoff Piroplasmen auch beim chinesischen Yak und beim Rentier.
Die in Europa, in Finland, Norddeutschland, Rußland, Dänemark, Rumänien, der Türkei, in Italien, Sardinien, Frankreich, Portugal sowie in Nordafrika verbreitete Form wird von manchen für eine besondere Art gehalten und als Babesia bovis (Babes) bezeichnet. Sie soll größere, plumpere Birnformen besitzen als B. bigemina. Die Uebertragung erfolgt im nördlichen Europa durch Ixodes ricinus (L.). Auch glauben manche Autoren in den einzelnen Stämmen von B. bigemina Unterschiede zu erkennen, welche sich als morphologisch konstant erweisen und bei den Immunisierungsversuchen in den Serumreaktionen deutlich hervortreten sollen. (So nach Lignières Stamm A und B in Argentinien.) Welche Beziehungen die von Ziemann in Kamerun bei verschiedenen Huftieren entdeckten Babesien zu B. bigemina haben, ist noch unsicher. Auch beim Elefanten soll eine Art vorkommen.
Die Uebertragung erfolgt in Nordamerika durch Rhipicephalus (Boophilus) annulatus Say; in Südamerika durch Rh. australis Fuller (= Rh. Dugesi), durch dieselbe Form in Cuba, Portorico, den Philippinen und Australien; durch Rh. decoloratus und Rh. capensis Koch in Ost- und Südafrika.
Die erzeugte Krankheit wird als Blutharnen, Hämoglobinurie, Redwater, Tristeza bezeichnet, s. unten S. 821.
Babesia mutans (Theiler).
|
1907.
|
Piroplasma mutans Theiler, in:
Rep. of the Govt. Veterinary Bacteriologist of Transvaal 1903–06, 1907–10.
|
|
1911.
|
Piroplasma mutans Theiler,
Transmission des spirilles et piroplasmes, in: Bull. Soc. Path. exot.
1909. No. 6.
|
|
1911.
|
Babesia mutans Gonder, R.,
Theileria parva und Babesia mutans, Küstenfieberparasit und
Pseudoküstenfieberparasit, in: Arch. f. Protistenk. Vol. 21. p. 222.
|
Babesia mutans ist eine Form, welche im Blutpräparat der Theileria parva (s. u.) sehr ähnlich ist. Sie unterscheidet sich von dieser jedoch schon biologisch dadurch, daß sie bei Blutinjektion ohne weiteres übertragbar ist.
Im Blut erreicht B. mutans eine etwas beträchtlichere Größe als die ausgewachsenen Mikro- und Makrogametocyten von Theileria parva im peripheren Blut des Rindes; sie erreichen 2,8–3 µ Länge gegenüber den 2,5–2,7 µ, welche bei Theileria parva die Maximalgrößen darstellen.
[S. 815]
B. mutans kommt oft mit anderen Parasiten gleichzeitig im Blut vor, so mit Theileria parva und Babesia bigemina. Es wurde daher vielfach mit diesen oder Stadien desselben verwechselt. Experimentell sind die betr. Formen aber relativ leicht zu trennen. So liefert Blut, welches mit B. mutans und bigemina infiziert ist, wenn man es Tieren injiziert, welche gegen bigemina immun sind, nur Infektion mit mutans. Die Zecke Rhipicephalus (= Boophilus) decoloratus überträgt aus doppelt infiziertem Blut nur B. bigemina. Der Ueberträger von B. mutans ist noch unbekannt.
B. mutans wurde bisher nur in Afrika beobachtet, vor allem in Südafrika, wo so gut wie alle Rinder von ihr infiziert sind.
3. Babesia ovis (Babes).
|
1888.
|
Haematococcus ovis Babes. In:
C. R. Ac. Sci. Paris. Vol. 107. p. 692.
|
|
1893.
|
Babesia ovis Starcovici. In:
Centralbl. f. Bakt. Vol. 14. p. 1.
|
|
1895.
|
Amoebosporidium polyphagum Bonome.
In: Arch. pathol. Anat. Vol. 139. p. 1–16.
|
|
1903.
|
Motas, La Piroplasmose ovine,
Carceag. In: C. R. Soc. Biol. Vol. 54. p. 1522.
|
Diese Form kommt beim Schaf vor, bei welchem sie die als Ikterohämaturie oder Carceag beschriebene Krankheit erzeugt. Sie kommt in Ungarn, in Deutschland (?), in Rumänien, auf der Balkanhalbinsel, in Italien vor und wird durch die Zecke Rhipicephalus bursa Canestr. u. Fanz. übertragen; auch die erblich infizierte Zecke überträgt den Parasiten nur im erwachsenen Zustand, nicht als Larve oder Nymphe. Die Krankheit ist auch in Westindien und Südafrika nachgewiesen worden.
4. Babesia equi (Laveran).
|
1901.
|
Piroplasma equi Laveran,
Contribution à l’étude de P. equi. In: C. R. Soc. Biol. Vol. 53. p. 385.
|
|
1905.
|
Bowhill, T., Equine
Piroplasmosis or biliary fever. In: Journ. Hygiene Vol. 5. p. 7.
|
In Rußland, Südafrika, Madagaskar, Indien findet sich beim Pferd eine kleine von Theiler entdeckte Babesia (einzelne Individuen ½–2½ µ im Durchmesser), von der man früher annahm, daß sie besonders durch das häufige Auftreten von vier kreuzweise gestellten Birnformen in einem Blutkörperchen charakterisiert sei. Jedoch hat man seither die gleiche Erscheinung bei den meisten anderen Formen gelegentlich gefunden. Marzinowsky hat Weiterentwicklung dieser Form bei Aufbewahrung von mit Natriumcitrat versetztem Blut erhalten. Es tritt Kopulation ein wie im Zeckenmagen.
Sie erzeugt das Gallenfieber „biliary fever“, „fièvre bilieuse“ der Pferde und wird in Südafrika durch Rhipicephalus Evertsi Neum. übertragen, welcher sich als Nymphe infiziert und dann im erwachsenen Zustand den Parasiten auf ein neues Pferd überträgt. In Rußland findet die Uebertragung durch Dermatocentor reticulatus statt. B. equi kommt auch bei Maultieren und Eseln vor; letzteres Vorkommen hat zur Beschreibung einer besonderen Art B. asini Chauv. geführt, welche wohl nicht sicher ist. Kudicke hat die Art auch in Zebras [S. 816]entdeckt. B. equi ist auch in Italien gefunden worden (in und bei Rom).
5. Babesia muris (Fantham).
|
1906.
|
Piroplasma muris Fantham, P.
m. from the blood of the white rat, with remarks on the genus Piroplasma.
In: Quart. Journ. Micr. Sci. Vol. 50. p. 493.
|
In den roten Blutkörperchen weißer Ratten wurde in London eine Babesia gefunden, welche etwas kleiner ist als B. bigemina. Sie kommt in ovalen Stadien von 0,5–1,5 µ Durchmesser und in Birnformen, welche 2–3 µ lang und 1–1,5 µ breit sind, vor. Vermehrung erfolgt durch Zweiteilung. Während meist 1–2 Individuen im Blutkörperchen sich finden, kommen gelegentlich auch zahlreiche Individuen in einem solchen vor (Fig. 750 E u. F). Gewisse Stadien könnten als Gametocyten oder freie geißeltragende Formen gedeutet werden (Fig. 750 G u. H). B. muris erzeugt bei weißen Ratten ein intermittierendes Fieber mit eigenartigen Geschwürbildungen an Schwanz und Ohren.
Eine ähnliche Form wurde in Rußland bei Feldmäusen gefunden und als Ueberträger Dermatocentor reticulatus festgestellt.
[S. 817]
6. Babesia pitheci P. H. Ross.
|
1905.
|
Piroplasma pitheci P. H. Ross,
in: Journ. Hygiene Cambridge. Vol. 5. p. 18.
|
|
1908.
|
Nuttall and
Graham-Smith, in: Parasitology. Vol. 1. p. 134.
|
Die Vermehrung erfolgt nach Nuttall und Graham-Smith genau wie bei B. canis und B. bigemina.
Die Art wurde von Ross in Uganda bei einem Affen, Cercopithecus sp., gefunden.
Ferner wären noch zu erwähnen:
7. Babesia ninense (Yakimoff).
|
1909.
|
Yakimoff, W. L., Die Zecken u.
Piroplasmen des Igels. In: Centralbl. f. Bakt. Abt. I. Orig. Vol. 52.
p. 472.
|
Diese Art kommt in Rußland beim Igel vor. Sie ist künstlich nicht übertragbar auf Pferd, Hund, Meerschweinchen, Mäuse, Zieselmaus, Kaninchen, Tauben. Auf den infizierten Igeln finden sich Zecken, nämlich Dermatocentor reticulatus, der Ueberträger der Babesiose des Pferdes und der Feldmaus.
Von Raubtieren wurden bisher Herpestes in Portugal und Bären in Rußland mit Babesien infiziert gefunden.
8. Babesia soricis Christophers.
9. Babesia quadrigemina (Nicolle).
|
1907.
|
Nicolle, Sur une Piroplasmose
nouvelle d’un rongeur (Ctenodactylus gondi). In: Arch. Inst. Pasteur de
Tunis. Vol. 4. p. 216.
|
Diese in Nordafrika gefundene Form scheint sich in manchen Punkten von den typischen Piroplasmen zu unterscheiden und wird von Nuttall mit der vorhergehenden zum Repräsentanten einer neuen Gattung Nicollia gemacht.
Gattung: Theileria B. F. u. B.
Theileria parva (Theiler).
|
1903.
|
Piroplasma parvum Theiler, in:
Journ. R. Army Med. Corps.
|
|
1907.
|
Theileria parva Bettencourt,
França et Borges.
|
In den Rindern findet sich (in Ost- und Südafrika zuerst entdeckt), eine morphologisch deutlich differenzierte Babesia. Die Stadien in den roten Blutkörperchen sind sehr klein, ringförmig oder meist stäbchenförmig. Im letzteren Fall sind sie ca. 3 µ lang und weniger als ½ µ breit. Der Kern liegt am einen Ende des Stäbchens, [S. 818]während das andere Ende oft eine Vakuole enthält (nach Lühe). Nicht selten sind kreuzförmig gestellte Parasiten im Erythrocyten. Birnformen sind bei Th. parva nicht mit Sicherheit nachgewiesen worden.
Der wichtigste biologische Unterschied von Theileria parva gegenüber allen anderen Babesien ist in der Entwicklungsgeschichte dieser Art begründet, welche Gonder erforscht hat. Es ist nämlich seit den Untersuchungen Kochs schon bekannt, daß Theileria und damit das Küstenfieber der Rinder nicht durch Blutinjektion übertragen werden kann. Selbst sehr bedeutende Dosen führen zu keiner Erkrankung; die injizierten Theilerien gehen zugrunde. Pflanzt man jedoch größere Milzstücke kranker Tiere gesunden unter die Haut, so läßt sich mit ihnen das Ostküstenfieber übertragen. Dies hat seinen Grund in folgenden Tatsachen.
[S. 819]
Die durch den Biß der Zecke ins Blut gelangten jungen Theilerien vermehren sich nicht im peripheren Blut, sondern in inneren Organen, vor allem in Milz und Lymphdrüsen. Dort bilden sie größere kugelige vielkernige Gebilde, die sog. Plasmakugeln Kochs, welche also entgegen anderen Angaben doch in den Entwicklungszyklus der Theilerien gehören. Sie stellen die Schizogonie derselben dar. Da sie durch Punktion leicht nachzuweisen sind, so sind sie das sicherste Merkmal zur Differentialdiagnose des Küstenfiebers.
Sie können in Massen vorhanden sein, die Tiere können sehr krank sein, ohne daß Theilerien sich im peripheren Blut nachweisen lassen. Im peripheren Blut tritt erst die gamogene Generation auf. Diese — die bekannten Stäbchenformen — sind differenziert, in solche, aus denen Mikro- und solche, aus denen Makrogameten hervorgehen.
Die Umwandlung geht im Darm der Zecken vor sich. Als Ueberträger fungieren in Südafrika Rhipicephalus reticulatus, Evertsi, nitens, simus und capensis, dagegen entgegen früheren Angaben Kochs nicht decoloratus. Die Zecken sind im geschlechtsreifen Stadium infektiös, wenn sie als Larven und Nymphen, als Nymphen schon infektiös, wenn sie im Larvenstadium infiziert wurden. Dagegen ist hervorzuheben, daß im Gegensatz zu den Babesiaarten Theileria nicht durch Ovarialinfektion vererbt wird.
Im Darm der Zecke machen die Gametocyten ihre fertige Entwicklung zu kleinen, kriechend sich bewegenden, würmchenförmigen Gameten durch. Dieselben entbehren der Geißeln; ihre Entwicklung besteht in geringen Veränderungen an der Kernsubstanz, welche ebensowenig wie etwaige Reifungserscheinungen infolge der Kleinheit der Gebilde bisher klar erkannt sind. Die Zygoten kugeln sich ab und wachsen in den Blindsäcken des Zeckendarms zu vielkernigen Kugeln heran. Diese zerfallen in zahlreiche sehr kleine, keilförmige Keime, welche wohl mit Vermittlung der Speicheldrüsen die Infektion der Rinder bewerkstelligen. Mit deren Eindringen in die Blutbahn ist der Entwicklungszyklus geschlossen.
Theileria parva ist in Ost- und Südafrika gefunden worden, auch in Transkaukasien, auf den Philippinen, in Japan etc. Sie erzeugt das ostafrikanische Küstenfieber oder Rhodesiafieber.
In Portugal haben Bettencourt, França und Borges beim Damhirsch (Dama dama L.) eine ähnliche Form entdeckt, welche sie als Babesia (resp. Theileria) dama bezeichnen.
[S. 820]
Eine andere Form kommt im Blut des Aristoteleshirsches in Annam vor; ferner solche bei indischen Hirschen. Doch ist bei ihnen die Zugehörigkeit zur Gattung Theileria nicht mit Sicherheit erwiesen.
Eine gewisse Aehnlichkeit haben Gebilde, welche in den roten Blutkörperchen des Maulwurfs gefunden wurden (Fig. 756).
Im Anschluß an die Babesien müssen wir hier einige sichere und unsichere Parasiten erwähnen, deren Natur und Verwandtschaftsverhältnisse noch nicht klargestellt sind, und zwar zunächst:
Toxoplasma gondii Nicolle und Manceaux ist ein intracellulärer Parasit des Gondi, eines kleinen nordafrikanischen Nagers (Ctenodactylus gondi Pallas). Es ist rundlich oder länglich, im freien Zustand halbmondförmig (vgl. Fig. 757) mit einem etwas zugespitzten Ende. Es ist unbeweglich, mißt 5–5,4 µ auf 3–4 µ. Die intracellulären Formen erreichen bis zu 7 auf 5 µ. Ein Kern ist gut sichtbar, dagegen weder Geißel noch Blepharoplast. Der Parasit findet sich häufig in Milz, Leber, Mesenterialganglien, Niere, Lunge selten in Knochenmark und Herzblut. Experimentelle Uebertragung auf den Gondi gelingt und erzeugt eine tödliche Krankheit; ebenso auf Meerschweinchen, bei welchem die Krankheit nur leicht ist. Dagegen werden Affen und Ratten nicht infiziert.
Eine ähnliche Form wurde von Splendore in Brasilien bei den Kaninchen entdeckt und Toxoplasma cuniculi (Spl.) genannt. Es hat eine Länge von 5–9 µ, eine Breite von 2–4 µ. Es läßt sich nicht auf andere Säugetiere übertragen, dagegen merkwürdigerweise auf Tauben, welche daran sterben.
Beim Menschen wurden immer wieder Befunde von babesien-ähnlichen Organismen angegeben, die sich aber bisher in keinem Fall haben bestätigen lassen, so beim spotted fever im nordamerikanischen Felsengebirge, beim Flecktyphus etc. Ja man wollte auch das Schwarzwasserfieber auf eine Babesieninfektion zurückführen. Es [S. 821]ist nicht ausgeschlossen, daß noch einmal eine menschliche Babesiose nachgewiesen wird, bisher ist aber noch kein Beweis für eine solche erbracht. Immerhin ist es von Interesse, auf die merkwürdigen Bildungen hinzuweisen (Fig. 758), welche Krompecher, Goldzieher und Augyán beim Flecktyphus in den roten Blutkörperchen auffanden.
Auch beim gelben Fieber sollen nach Seidelin solche Einschlüsse in den Erythrocyten vorkommen.
Daß übrigens eventuell gelegentliche Infektionen vorkommen können, die zu Täuschungen über die Aetiologie epidemischer Krankheiten führen können, darauf weisen die eigenartigen, sicher wie Organismen aussehenden Gebilde (Fig. 759) hin, welche Höfer im Blut einer Frau fand, die nie aus Leipzigs Umgebung herausgekommen war. Sie erkrankte unter Fieber und Anämie, nachdem sie in den Flußniederungen der Leipziger Umgebung viel unter Mückenstichen gelitten hatte.
Wir haben früher schon (S. 471) erwähnt, daß ein eigenartiger Parasit, welcher die epizootische Lymphangitis der Pferde verursacht, und welcher auch gelegentlich als Babesia bezeichnet wurde (Lymphosporidium equi, Leucocytozoon piroplasmoides etc.), von neueren Untersuchern nicht mehr für ein Protozoon, sondern für einen „Blastomyceten“ erklärt wird.
Babesiosen.
Sie werden auch vielfach als Piroplasmosen bezeichnet, nach dem mit Babesia synonymen Gattungsnamen Piroplasma. Bis jetzt sind Babesiosen nur bei Säugetieren nachgewiesen, und zwar vorwiegend bei Wiederkäuern, auch bei Raubtieren und Nagern. Für den Menschen ist eine Babesiose bisher nicht mit Sicherheit bekannt. Zwar wurde eine Zeitlang das sog. spotted fever im Felsengebirge Nordamerikas für eine Babesiose erklärt, doch ist diese Angabe nicht bestätigt worden. Ebenso verhält es sich mit Angaben über Babesien als Erreger des Flecktyphus. Auch dachte man infolge der Aehnlichkeit klinischer Symptome daran, daß das Schwarzwasserfieber durch eine Babesieninfektion veranlaßt sei; doch auch hierfür haben sich keine Anhaltspunkte ergeben, vielmehr wird diese Krankheit mit immer größerer Sicherheit für eine besondere Form der Malaria erklärt (vgl. S. 797).
Zum Verständnis der biologischen Zusammenhänge zwischen den Vorgängen an den Babesien und dem pathologischen Effekt auf ihre Opfer wird es zweckmäßig sein, wenn wir in Kürze die bestbekannte unter den Babesiosen kurz besprechen. Es ist dies die
Hämoglobinurie des Rindes.
(Texasfieber, Southern Cattle fever, Tristeza, Tick fever, Redwater,
Rindermalaria etc.)
Diese Krankheit war seit Jahrzehnten durch ihre Epidemiologie ganz rätselhaft, bis man den Erreger und die Uebertragungsweise erkannt hatte.
In den Vereinigten Staaten von Nordamerika, wo die Krankheit in den achtziger Jahren besonders verheerend auftrat, hatte man beobachtet, daß das Vieh aus den Südstaaten den Träger der Krankheit darstellte, ohne dabei selbst in auffälliger Weise krank zu sein. Man [S. 822]unterschied daher in den Südstaaten (Süd-Carolina, Texas etc.) ein permanent infiziertes Gebiet, von dem aus das „Texasfieber“ nach Norden immer wieder verschleppt wurde, ohne jedoch im Norden dauernd Fuß zu fassen. In dieses infizierte Gebiet konnte nördlichen Staaten entstammendes erwachsenes Vieh nicht ohne die größte Gefahr für den Bestand der Herden eingeführt werden. Geschah dies trotzdem, so starben fast alle erwachsenen Tiere ab.
Dieselbe Erfahrung macht man auch in Südamerika (Argentinien und Uruguay), wo z. B. Lignières feststellen konnte, daß bei der Wanderung äquatorwärts von einer einzigen Herde von 1000 erwachsenen Rindern 630 Stück starben, während von den 450 Kälbern der gleichen Herde nur 10 eingingen.
Die Erscheinungen, unter welchen die Verschleppung der Krankheit nach dem Norden der Vereinigten Staaten erfolgt, sind ebenfalls höchst merkwürdig. Südliches Vieh verschleppte die Krankheit nur in der warmen Jahreszeit, im tiefen Winter jedoch war es harmlos.
Die Infektion erfolgt aber nicht direkt von Tier zu Tier, sondern die Weiden, über welche das südliche Vieh getrieben wurde, werden zu den Trägern der Infektion. Dabei werden die südlichen Rinder, wenn die Wanderung lange dauert, oder der Aufenthalt im Norden eine Zeitlang fortgesetzt ist, selbst wieder harmlos.
Kamen nördliche Rinder auf eine Weide, welche durch vorübergehenden Aufenthalt von südlichen Rindern infiziert war, so wurden sie von der Krankheit ergriffen, aber erst nach Verlauf von mindestens 30 Tagen. Auch wurde von den Züchtern behauptet, daß die kranken nördlichen Rinder nicht imstande seien, die Krankheit weiter zu verbreiten.
Alle diese merkwürdigen Verhältnisse werden durch die Uebertragungsweise von Babesia bigemina (vgl. S. 812) bedingt.
[S. 823]
Die Uebertragung erfolgt nämlich in Nordamerika durch die Vermittlung einer Zecke Rhipicephalus (Boophilus) annulatus (Say) (Fig. 760), während in Afrika Boophilus decoloratus Koch (Fig. 761), in Südamerika, Westindien, Australien und Ostasien Boophilus australis Fuller diese Rolle übernimmt (vgl. hierzu auch S. 814). Dabei ist die auffallende Tatsache hervorzuheben, daß die Infektion eines neuen Opfers nicht etwa durch die Zecke selbst, welche das keimhaltige Blut gesaugt hat, erfolgt, sondern erst durch deren Nachkommenschaft.
Die Zecke ist der einzige Ueberträger der Krankheit; da nun eine Zecke ihre Wachstumszeit auf nur einem Rind zubringt und nicht imstande ist, ein anderes Rind aufzusuchen und sich auf demselben festzusetzen, so muß die Uebertragung auf einem komplizierteren Wege vor sich gehen, als es etwa bei der Tsetse-Fliege und der Uebertragung des Trypanosoma Brucei der Fall zu sein scheint. Man könnte sich zwar denken, daß die vollgesogenen abfallenden Zecken das Piroplasma in irgendeinem encystierten Zustand auf der Weide verbreiteten, und daß die Dauerzustände später mit dem Futter von den Rindern aufgenommen würden, daß also die Infektion durch den Darm vor sich ginge. Das trifft aber nicht zu.
Die Experimente haben vielmehr ergeben, daß die abgefallenen vollgesogenen Zecken am Boden der Weiden ihre Eier ablegen, daß aus diesen junge Zecken hervorgehen, welche neue Rinder aufsuchen und daß diese, nachdem sie sich an den Rindern festgesogen haben, bei denselben die Krankheit hervorrufen, indem alsbald im Blut Piroplasma bigeminum auftritt und sich ungeheuer vermehrt.
Die Perioden der Krankheit, Ansteckungsfrist usw. stimmen in vollendetster Weise mit den Perioden in der Lebensgeschichte der Zecke überein.
Eine Zecke kriecht nach 20–45 Tagen (bei höherer Temperatur schneller, bei tieferer langsamer) aus dem Ei aus. Sie kann sodann Wochen bis Monate hungernd existieren, bis sie ein Rind findet, welches sie sofort befällt. Im günstigsten Fall, der ja auf den Weiden großer Viehherden sehr häufig sich realisiert, finden die Zecken sofort ein neues Opfer, entwickeln sich da in 14 Tagen zur Geschlechtsreife, in weiteren 8 Tagen saugen sie sich zum Abfallen voll, worauf die befruchteten Weibchen eine neue Generation erzeugen. Die normale Dauer einer Generation erstreckt sich also auf 41–68 Tage.
Es wurden auch einzelne Fälle festgestellt, in denen das Ei der Zecke in kälterem Klima unentwickelt zu überwintern scheint, um dann im nächsten Frühjahr die Infektion weiter zu verbreiten. Im warmen Klima findet man jedoch die Rinder das ganze Jahr hindurch mit Rhipicephalus annulatus behaftet.
In der Zecke muß die Babesie eine eigenartige Entwicklung durchmachen. Jedenfalls ist schon das Ei, aus welchem die junge Zecke hervorgeht, infiziert. Solche Fälle, wo die Infektion schon vom Ei an dem Individuum anhaftet, kennen wir ja mehr; bei den Myxosporidien werden wir weitere kennen lernen. Nicht alle Babesien werden übrigens in dieser Weise vererbt (vgl. Theileria).
Wie allerdings die Babesie in der Zecke parasitiert, und welche besonderen Entwicklungszustände sie in ihr durchmacht, ist noch nicht in allen Punkten aufgeklärt. Bei manchen der Babesien übertragenden [S. 824]Zecken ist sogar festgestellt, daß die junge aus dem Ei ausgeschlüpfte Zeckenlarve noch nicht imstande ist, die Babesien auf neue Wirte zu übertragen. Es bedarf einer gewissen weiteren Frist, ja bei Babesia ovis und canis müssen die betreffenden Zecken sogar vollkommen erwachsen sein, ehe sie zu infizieren vermögen. Man muß wohl daraus schließen, daß die Babesien ganz bestimmte Zustände während dieser Zeit zu durchlaufen haben (vgl. S. 817 die Angaben bei Theileria parva).
Die Krankheit, welche durch die Uebertragung des Piroplasmas hervorgerufen wird, ist sehr charakteristisch. Sie tritt in zwei Formen, einer milden und einer schweren, auf.
Die milde Form befällt meist nur die Kälber, selten die erwachsenen Rinder. Die schwere Form richtet unter den letzteren schreckliche Verheerungen an. Die befallenen Rinder sind sehr niedergeschlagen, still und starr, oft auch von delirienartigen Anfällen heimgesucht. Meist stehen sie aber ruhig mit dem Kopf nahe am Boden. Das Fieber erreicht 40–41°. Weitere Symptome sind Diarrhöen und vor allem Blutharnen; letztere Erscheinung ist fast in allen Fällen zu konstatieren, daher auch in vielen Gegenden die Benennung der Krankheit.
In den schweren Fällen tritt der Tod meist schon 48 Stunden nach dem Auftreten der Symptome ein. Doch kann die Frist sich auf 3, 4, 8–14 Tage verlängern.
Das ungeheuer massenhafte Auftreten des Parasiten im Blut führt zur Zerstörung des größten Teiles der roten Blutkörperchen des befallenen Tiers.
Die normale Blutkörperchenzahl bei einem Rind beträgt pro Kubikmillimeter 8–9 Millionen; sie sinkt am 1. Tage um 1 bis 2 Millionen, am 2. Tage um 4–5 Millionen! Bei der milden Form fällt sie bis auf 4 Millionen, bei der schweren kann sie auf 31000 sinken!
Einen besonders schweren Fall teilt Lignières mit, bei welchem vor dem Auftreten der Symptome vorhanden waren
Im Blut findet man massenhaft die Blutkörperchen, welche ihren Farbstoff verloren haben. Infolgedessen ist das Blutserum tief rot gefärbt: eine Vorstufe der Hämoglobinurie. Zur letzteren ist vor allen Dingen der plötzliche Zerfall so zahlreicher Blutkörper Vorbedingung.
Das Blut ist übrigens durch auffallend toxische Eigenschaften ausgezeichnet; die Injektion geringer Quantitäten tötet in wenigen Sekunden bis Minuten kleine Versuchstiere.
Spontane Heilung tritt bei der schweren Form sehr selten ein. Es können sich übrigens Tiere noch erholen, deren Blutkörperchenzahl pro Kubikmillimeter auf 300000 gesunken ist. Dabei steigt die Zahl in wenigen Tagen auf 3 Millionen, aber erst nach Monaten auf 7 Millionen. Die Tiere sind denn auch auffallend anämisch.
Es kann bei den Verwüstungen, welche der Parasit im Blut anrichtet, nicht verwundern, daß die Sterblichkeit eine sehr große ist. Das gilt aber nur für die erwachsenen Rinder: von diesen geht der größte Teil einer befallenen Herde zugrunde.
[S. 825]
Lignières führt, wie oben schon erwähnt, einen typischen Fall an, wo von einer Herde Rinder, welche in Argentinien nordwärts in das infizierte Gebiet getrieben wurde, von 1000 erwachsenen 630 zugrunde gingen, während von den 450 Kälbern nur 10 starben.
In den infizierten Gegenden ist denn auch die Babesiosis eine „Kinderkrankheit“; die Kälber erkranken an der leichten Form, bei welcher man nur relativ wenig Parasiten im Blut findet (vgl. oben S. 800 die Angaben über Kindermalaria). Es tritt keine Hämoglobinurie ein, und die Krankheit bleibt gewöhnlich unbemerkt. Sie dauert etwa 14 Tage, worauf spontane Heilung eintritt, ohne daß jedoch die Parasiten gänzlich aus dem Blut zu verschwinden brauchen.
Rezidive sind hier, wie auch bei den von der schweren Form genesenen erwachsenen Rindern, nicht selten, aber sie treten in sehr milder Form auf, woraus man auf einen gewissen Grad von Immunisierung schließen kann.
Auf andere Tiere als auf Rinder die Krankheit zu übertragen, ist nicht gelungen. Zu den Versuchen wurden Ratten, Meerschweinchen, Schafe und Tauben verwendet.
Eine künstliche Immunität oder Heilung mit Sicherheit zu erzielen, ist bis jetzt in größerem Umfang nicht gelungen. Einmalige Erkrankung soll auch bei Erwachsenen nach neueren Forschungen eine weiter gehende Immunisierung herbeiführen, als Smith und Kilborne annehmen. Lignières nimmt an, daß das Fortexistieren der Parasiten im Blut zu einer fortwährenden Erneuerung der Immunität führe.
Tatsächlich scheint eine Immunisierung zu gelingen, wenn man junge Tiere (unter 1 Jahr) künstlich infiziert, d. h. ihnen Blut von scheinbar geheilten Tieren injiziert. Serum oder sterilisiertes Blut sind unwirksam.
Frisches Blut erzeugt jedoch eine milde Reaktion und darauf Immunität gegen heftige Erkrankung.
Doch hat besonders Koch darauf hingewiesen, eine wie große Gefahr in dieser Weise immunisierte Rinder für die Viehzucht bedeuten, da sie dauernd Parasitenträger bleiben und imstande sind, gesunde Herden anzustecken, welche dann schwere, zerstörende Epidemien zu überstehen haben, während die immunen Tiere, von denen die Infektion ausging, einen ganz gesunden Eindruck machen.
Im großen und ganzen verhalten sich die übrigen Babesiosen der Hämoglobinurie der Rinder ähnlich. Alle sind sehr gefährliche, todbringende Krankheiten. Um welche Krankheiten es sich handelt und durch welche Zecken jede Babesie übertragen wird, haben wir oben im speziellen Teil S. 811 ff. besprochen.
Die Babesiosen sind weltweit verbreitet, doch kommen sie in größerer Ausbreitung und mehr bemerkbarer Wirkung in den Tropen vor. Ganz auf wärmere Klimate beschränkt scheint Theileria parva, der Erreger des Küstenfiebers, zu sein.
Auch bei den Babesien ist ähnlich wie bei den Plasmodien, eine relativ große Anzahl von besonderen Arten beschrieben worden, welche sich durch meist recht geringfügige morphologische Unterschiede voneinander unterscheiden, aber im pathogenen Effekt und in der Spezifizität für ihren Wirt klar voneinander getrennt sind. Bei dem gegenwärtigen Stand unseres Wissens müssen wir sie daher als [S. 826]gesonderte Arten betrachten, wenn wir auch noch nicht mit Sicherheit voraussagen können, ob sich diese Unterscheidung wird dauernd aufrecht erhalten lassen.
II. Ordnung:
Gregarinae.
Die Gregarinen, einkernige, mittelgroße oder große Protozoen, sind meist durch ein relativ langdauerndes agames Stadium ausgezeichnet, welches durch seinen oft eigenartigen Bau für die Ordnung sehr charakteristisch ist. Dieses Stadium ist im Gegensatz zu den Coccidiomorphen niemals während seiner ganzen Entwicklung intracellulär. Die Befruchtung findet nach Syzygienbildung (vgl. S. 829) zwischen zwei Individuen, welche in zahlreiche Gameten zerfallen, als Isogamie oder Anisogamie statt. Aus der Zygote bildet sich eine einzige Spore, welche mehrere Sporozoiten enthält.
Die erwachsenen Gregarinen haben zum Teil eine sehr charakteristische Form. Während die primitiveren Arten mehr oder weniger metabol sind, infolgedessen keine sehr konstante Körperform und keine besonderen Differenzierungen der Körperteile aufweisen, zeigen die übrigen Arten eine deutliche Zwei- oder Dreiteilung des meist [S. 827]wenig beweglichen Körpers: man unterscheidet ein Anheftungsorgan am Vorderende des Körpers, den Epimeriten, welcher mit allen möglichen Anhängen, Zähnen, Widerhaken besetzt sein kann; der eigentliche Zellleib ist durch eine ektoplasmatische Brücke abermals in zwei Teile zerlegt, welche auch äußerlich oft durch eine Furche getrennt erscheinen. Der vordere, Protomerit genannt, ist gewöhnlich kürzer und breiter als der hintere, Deutomerit genannte, welcher fast stets den Kern enthält (Fig. 762).
Die ektoplasmatische Scheidewand ist sehr dicht und trennt das Entoplasma beider Teile so vollkommen, daß keine Vermischung bei den Bewegungen der Gregarine stattfindet, und daß ein Teil für sich ausfließen kann, wenn man durch Druck das Ektoplasma sprengt.
Das Ektoplasma zeigt oft einen komplizierten Bau, indem es aus 4 Schichten zusammengesetzt sein kann. Zu äußerst befindet sich eine Cuticula (auch als Epicyt bezeichnet), eine widerstandsfähige Abscheidung des Ektoplasmas, die den ganzen Körper überzieht, und aus welcher auch die Häkchen, Zähne und Fäden am Epimerit bestehen. Sie ist auf der Oberfläche mit Längsrippen bedeckt, welche vom Vorderende nach dem Hinterende verlaufen. Zwischen den Rippen befinden sich Furchen, aus denen ein gallertiges Sekret hervordringt, welches bei der Bewegung der Tiere die S. 42 geschilderte Rolle spielt.
Diese Gallerte stammt aus der zweiten ektoplasmatischen Schicht, welche unter der Cuticula gelegen ist, der Gallertschicht (Fig. 763 C u. D 2).
Auf die beiden genannten Schichten, welche nur Ausscheidungen darstellen, folgt das eigentliche lebende Ektoplasma. Aus diesem besteht auch bei den mehrkammerigen Formen die Zwischenwand zwischen Proto- und Deutomerit, bei den Gregarinen wird diese (dritte) Schicht auch Sarkocyt genannt.
Die vierte Schicht (Myocyt oder Fibrillenschicht) bildet schon den Uebergang zum Entoplasma: sie ist durch die Entwicklung von muskelfibrillenartigen Fasern ausgezeichnet, welche ringförmig um den Körper laufen. Demgemäß kann man sie nur auf Längsschnitten [S. 828]erkennen, wo sie einen ungefähr kreisförmigen Durchschnitt zeigen (Fig. 763 D 7). Sie sind es jedenfalls, welche die ruckweisen Zusammenziehungen und Bewegungsvorgänge am Körper der Gregarinen herbeiführen.
Das Entoplasma ist in der Regel sehr dicht, mit großen Granulationen erfüllt, von denen die Mehrzahl aus Paraglykogen, einer dem Glykogen nahestehenden Substanz, besteht (vgl. S. 99). Außerdem sind im Entoplasma auch alle möglichen sonstigen Granulationen, Kristalle von proteinartigen Substanzen und oxalsaurem Kalk, Chromidien etc. gefunden worden.
[S. 829]
Die Gregarinen sind oft weißlich, grau, gelblich oder bräunlich gefärbt.
Vakuolen kommen selten vor, nie erreichen sie eine erhebliche Größe. Kontraktile Vakuolen fehlen stets. Doch scheinen bei manchen Formen Exkretionsorgane in Form von nicht-kontraktilen Lakunen mit ausführendem Kanal vorzukommen.
Der Kern, stets in der Einzahl vorhanden, ist groß, bläschenförmig, kuglig und enthält meist einen großen, ebenfalls kugligen Binnenkörper.
Es ist jedoch hervorzuheben, daß bei gewissen großen, kompliziert gebauten Gregarinen im Protomeriten ein kleines kernartiges, sich auch wie ein Kern färbendes Gebilde vorkommt, welches als Protomeritenkern bezeichnet wird. Seine eigentliche Natur und Entstehung sind noch unbekannt (vgl. Fig. 766 Nn).

Die Größe der Gregarinen ist je nach den Arten sehr verschieden, man kennt solche von nur 10 µ und solche von bis zu 16 mm Durchmesser.
Sehr häufig sind bei den Gregarinen Verklebungen der Individuen zu mehreren, oft zu langen Ketten, wobei je ein Individuum mit dem Vorderende am Hinterende des vorderen hängt (Fig. 767). Die Verklebungen sind wohl nur durch die Gallertausscheidung bedingt. Sie sind interessant durch die Aehnlichkeit mit der Syzygienbildung; unter einer Syzygie versteht man die Vereinigung zweier Individuen, wobei man das vordere als den Primiten, das hintere als den Satelliten bezeichnet. Letzterer haftet mit seinem Vorderende am Hinterende des Primiten. Der Satellit bildet seinen Epimeriten, oft auch den ganzen Protomeriten zurück.
Die Syzygienbildung, welche oft schon auf frühen Wachstumsstadien ein männlich und ein weiblich determiniertes Individuum vereinigt, ist wichtig als Einleitung zu den Befruchtungsvorgängen.
Ueber letztere sind in den letzten 10 Jahren zahlreiche Untersuchungen gemacht worden, welche wichtige Resultate gehabt haben.
Nach diesen Untersuchungen verläuft die agame Entwicklung der aus den Sporozoiten entstehenden Gregarinen in sehr verschiedener Weise. Es entstehen durch intensives Wachstum die vielfach so sehr voneinander abweichenden Gregarinenformen. Die Konjugation, in deren Vorbereitung stets zwei wohl in allen Fällen geschlechtlich [S. 830]differenzierte Individuen in einer Cyste vereinigt werden, kommt in allen Erscheinungsformen, von absoluter Isogamie bis zu extremer Anisogamie, vor. Die metagame Entwicklung, speziell die Sporenbildung, weist nicht viel Unterschiede bei den einzelnen genau untersuchten Formen auf. Doch sind die Sporen selbst in ihrer äußeren Erscheinung sehr mannigfaltig.
In ihrem Verhalten zum Wirt und in ihren Wachstumserscheinungen zeigen die Gregarinen folgende Haupttypen:
1) Formen mit intracellulärer Wachstumsperiode; die herangewachsene Gregarine gelangt durch Zerstörung der Wirtszelle in den Darm des Wirts (Monocystideen, Fig. 765, 1–5 und Stenophoriden).
2) Formen, welche durch das Darmepithel durchwandern und erst im Cölom ihrer Wirte heranwachsen (Monocystideen).
3) Formen, bei denen die Sporozoiten sich zunächst mit einem spitzen Fortsatz an das Epithel befestigen, worauf zunächst der in der Darmepithelzelle steckende Teil stark heranwächst und auch den Kern enthält. Dann beginnt der außerhalb der Zelle liegende Teil viel intensiver zu wachsen, Proto- und Deutomeriten zu bilden und die definitive Form der Gregarine auszubilden, wobei der Kern in den Deutomeriten verlagert wird (Polycystideen; Beispiele: Stylorhynchus, Gregarina).
4) Formen, bei denen der Sporozoit mit einem dünnen Vorderende in die Wirtszelle eindringt. Dieser Teil wird zu einem Epimeriten, der stets relativ klein bleibt, abgestoßen und regeneriert werden kann, während der außerhalb der Zelle befindliche, stets den Kern enthaltende Teil stark heranwächst und Proto- und Deutomerit entwickelt (Polycystideen; Beispiel: Pyxinia, Fig. 795, S. 849).
5) Formen, welche sich mit dem Epimeriten nur oberflächlich in den Epithelzellen befestigen, die heranwachsende Gregarine bleibt stets vollkommen extracellulär, sie entwickelt aber fadenförmige Fortsätze, welche zum Teil tief ins Epithel eindringen (Polycystideen; z. B.: Pterocephalus, Fig. 793, S. 847).
[S. 831]
Viele Arten findet man nach einiger Zeit frei im Darm des Wirts, wo sie eventuell miteinander verkleben, wie schon oben erwähnt wurde, und zu ihrer vollen Größe heranwachsen (Fig. 767, 789 I).
Bei allen tritt nach einer gewissen Zeit Encystierung ein, wobei normalerweise zwei Individuen sich aneinander legen, sich abrunden und mit einer Hülle umgeben. Die Cyste selbst ist meist noch in einer dicken Gallerthülle eingeschlossen (Fig. 776). Solitär encystierte Individuen degenerieren wohl stets und schreiten jedenfalls nicht zur Gametenbildung und Kopulation.
B Gregarina ovata. (Nach Schnitzler.)

D Schaudinella Henleae. (Nach Nusbaum.)
E Stylorhynchus longicollis. (Nach Léger.)
F Pterocephalus nobilis. (Nach Duboscq u. Léger.)
F′ Mikrogamet von Echinomera hispida.
[S. 832]
Der normale Vorgang ist die gemeinsame Encystierung von zwei Individuen, welche oft vorher schon lange in einer Syzygie vereinigt gewesen waren. In beiden Individuen tritt dann, ohne daß die Grenzen ihrer Körper sich verwischt hätten, eine intensive Kernvermehrung ein (vgl. Fig. 765). Dabei zerfällt der große Gregarinenkern mit seinem mächtigen Karyosom, und aus einem kleinen Teil seiner Masse bildet sich ein kleiner neuer Kern, welcher meist sogleich in Gestalt einer Spindel sichtbar wird (vgl. Fig. 771). Es folgen zahlreiche Karyokinesen, welche vielfach durch sehr schön ausgebildete Centrosomen ausgezeichnet sind (Fig. 25, S. 27).
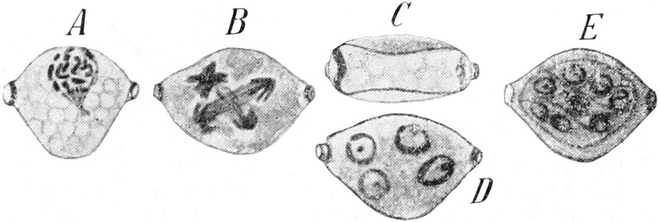
Diese Form der Verwandlung des großen Gregarinenkerns in die kleinen Kerne der Gameten ist für die Mehrzahl der genauer untersuchten Formen angegeben worden. Doch sind auch eigenartige multiple Teilungsbilder (Selenidium nach Caullery und Mesnil, Aggregata nach Moroff, vgl. Fig. 810 D) und Auflösung des ganzen Kerns und Rekonstruktion durch freie Kernbildung aus chromidialem Zustand (Gregarina cuneata nach Kuschakewitsch) beschrieben worden. Erstere sind wohl ungezwungen auf den Typus der Primärspindelbildung zurückzuführen, da ein Centriolenpaar die erste Spindel bildet; letztere Angaben sind durch neuere Untersuchungen zweifelhaft geworden.
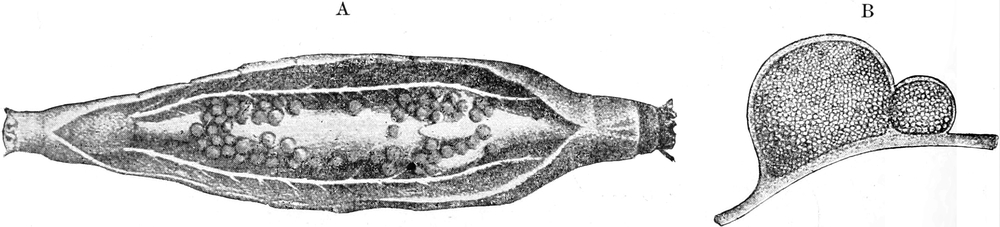
Die entstehenden kleinen Kerne sammeln sich allmählich an der Peripherie der Syzygiten oder von lappenförmigen Teilen desselben an, indem sich gleichzeitig Plasmaportionen um sie abgrenzen: Perlenstadium (Fig. 765, 10). Ein großer Teil des Körpers bleibt als Restkörper zurück. In ihm bleiben bei manchen Formen Kerne zurück, welche später degenerieren und von manchen Autoren den Gametenkernen als somatische Kerne gegenübergestellt werden. Die sich abgrenzenden Plasmaportionen werden zu den Gameten, welche bei manchen Arten geringe oder gar keine Unterschiede zeigen (Isogameten), bei manchen anderen jedoch sehr verschieden sein können (Anisogameten). Die in einer Cyste vereinigten Individuen (die Syzygiten) [S. 833]erweisen sich im letzteren Fall als geschlechtlich differenziert, indem das eine Makro-, das andere Mikrogameten hervorbringt (Fig. 784 u. 785). In manchen Fällen weist übrigens das Plasma der Syzygiten eine Verschiedenheit in Struktur und Färbbarkeit auf, in anderen nicht. Meist sind die beiden Gametenformen in der Größe nicht allzusehr verschieden, um so mehr aber in manchen Fällen in der Struktur und Beweglichkeit (vgl. Fig. 768 u. 769).
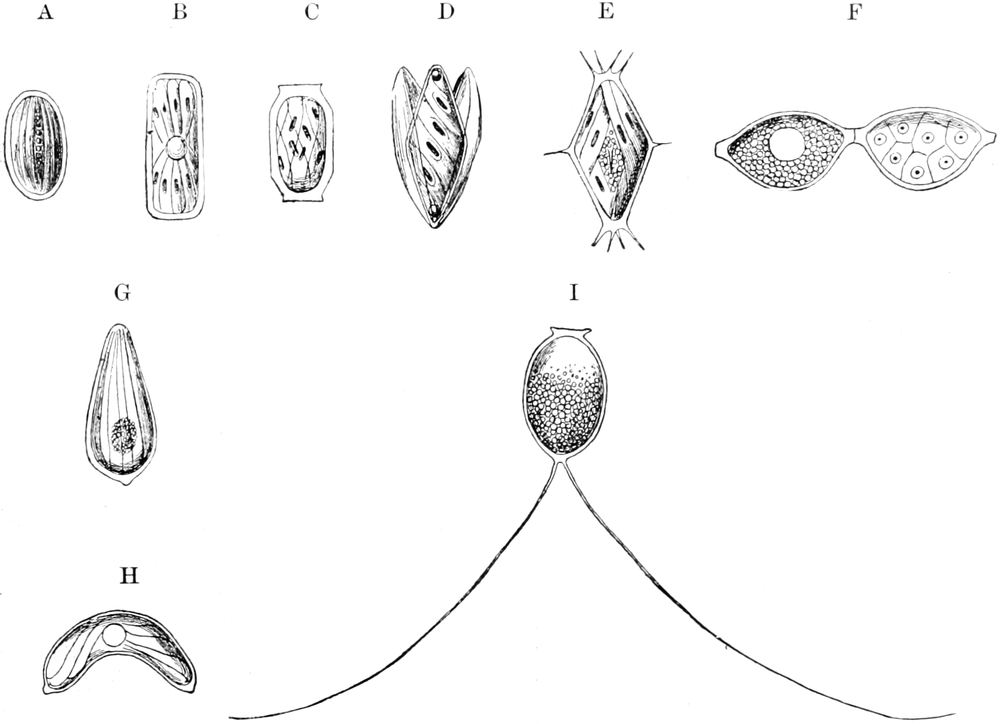
Nach der Loslösung der Gameten vom Restkörper erfolgen Bewegungen, durch welche die Gameten paarweise zur Vereinigung gebracht werden. Durch die Verschmelzung ihrer Zellleiber und Kerne entsteht die meist kuglige einkernige Zygote (Fig. 765, 13 u. 769 G). Vor der Vereinigung der Kerne erfolgen nach der Angabe einiger Autoren Reifungsteilungen.
Jede Zygote wandelt sich in eine spindelförmige Spore (früher Pseudonavicelle genannt) um (Fig. 772 u. 774); der Kern teilt sich mehrmals, und um die entstehenden (gewöhnlich 8) Kerne sondert sich je ein Sporozoit ab. Dieselben sind lang-spindelförmig (früher sog. sichelförmige Keime) und in einem dichten Bündel um einen Restkörper vereinigt (Fig. 772 E). Die Kerne liegen in den Sporozoiten nicht zentral, wie sie in den meisten Figuren schematisch eingezeichnet sind, sondern an dem einen Ende (Fig. 782).
[S. 834]
Die in der ursprünglichen Cyste um den Restkörper regellos oder in bestimmter Anordnung (Fig. 777) vereinigten Sporen können nun aus dem Darm des Wirts entleert werden; sie verlassen ihre Cyste entweder, indem Quellung des Restkörpers diese sprengt, oder indem sie durch einen besonderen Mechanismus entleert werden; diese Vorrichtungen bestehen in Sporodukten, Röhren, welche in das Innere der Cyste hineinreichen und sich bei Einwirkung von Feuchtigkeit handschuhfingerartig umkrempeln, indem sie nach außen die Gallerthülle der Cyste durchbohren (Fig. 790 u. 791). In anderen Fällen wandelt sich der Restkörper des einen Syzygiten in einen exzentrisch gelegenen Quellkörper um, durch dessen Ausdehnung die Cyste zersprengt und die Sporen entleert werden (Fig. 792).
In solchen Fällen ist die ganze Einrichtung für die Ausschleuderung der Sporen eine vom Mutterkörper mit prospektiver Bedeutung ausgebildete, vom mütterlichen Protoplasma aufgebaute. Es empfiehlt sich für manche Betrachtungen, solche komplizierten Sporenbehälter von den einfachen Cysten der übrigen Protozoen zu unterscheiden, und sie durch die Bezeichnung als Sporangien den entsprechenden Bildungen bei Mycetozoen und Protophyten an die Seite zu stellen (vgl. Fig. 620 u. 621).
Die Sporen sind gegen Austrocknung durch ihre Schale sehr gut geschützt; sie müssen, um Weiterentwicklung zu ermöglichen, in den Darm des spezifischen Wirts gelangen, wo sie platzen und die Sporozoiten entlassen, welche wieder zum Darmepithel wandern und dort den Entwicklungskreis von neuem beginnen.
Ganz selten fehlt die Sporenbildung; die ursprüngliche Cyste enthält dann zahlreiche freie Sporozoiten.
Die Sporenhülle ist eine doppelte, indem sie meist aus zwei Lagen besteht, welche als Epispor (oder Exospor) und Endospor bezeichnet werden (Fig. 774 D u. 782). Die Form der Sporen ist sehr mannigfaltig und dient bei der systematischen Abgrenzung der Arten als geeignetes Merkmal. Zum Ausschlüpfen der Sporozoiten sind entweder Oeffnungen präformiert oder die Spore öffnet sich in zwei Klappen.
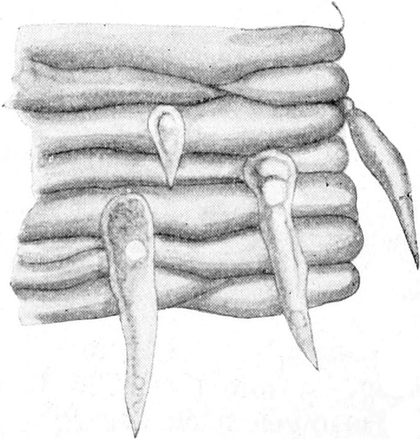
Die Gregarinen sind fast ausschließlich Darm- oder Leibeshöhlenparasiten bei niederen Tieren. Sie wurden bei Echinodermen, Würmern, Mollusken, Molluscoiden und Tunicaten, vor allem aber bei Anneliden und Arthropoden gefunden. In Vertebraten sind sie bisher noch gar nicht gefunden worden.
Im Darm können die jungen Gregarinen oft große Strecken des Epithels befallen (Fig. 764 u. 775); auch frei im Darmlumen findet man die Tiere oft in großen Scharen, welchem Umstande sie ihren Namen verdanken.
[S. 835]
Die sogenannten Cölomformen sitzen in den äußeren Schichten der Darmwand und wölben dieselben bei ihrem Wachstum meist kugelförmig vor (Fig. 773 A u. B). Sie encystieren sich auch an dieser Stelle. Ihre Sporen verlassen dann mit anderen Entleerungen der Leibeshöhle (z. B. Geschlechtsprodukten) den Wirt, oder kommen erst nach dem Tode ihres Wirts ins Freie. Manche Formen kommen auch frei im Cölom und den Blutgefäßen etc. vor.
Alle Gregarinen ernähren sich auf osmotischem Wege. Für manche Formen wird angenommen, daß die Aufnahme der Nährflüssigkeit nicht an der ganzen Körperoberfläche erfolge, sondern an dem Anheftungsende eventuell durch Vermittlung der oft tief ins Gewebe eindringenden Haftfasern und sonstigen Fortsätze des Vorderendes (vgl. Fig. 788 u. 793–95).
Bei einer Form allerdings gibt Drzewiecki Vorkommen von Mundöffnung, Peristom und Zellafter an; es ist dies Stomatophora coronata (Hesse), welche in einem afrikanischen Wurm (Pheretima sp.) vorkommt und sich von dessen Samenfäden ernährt, die in Nahrungsvakuolen eingeschlossen werden.
Ihren Wirten fügen sie, soweit es bis jetzt bekannt ist, keinen sonderlichen Schaden zu. Lebens- und Vermehrungsweise machen die meisten Formen nicht sehr geeignet zu Krankheitserregern.
Es gab eine Zeit, in welcher man aufs eifrigste nach Gregarinosen des Menschen und der höheren Tiere suchte, und in der man solche beschrieben hat. Der Nimbus, den auf diese Weise die Gregarinen eine Zeitlang für die praktische Medizin gewonnen hatten, ist ihnen wieder genommen worden. Man kennt heute überhaupt keine eigentlich pathogenen Gregarinen, auch keinen einzigen Angehörigen dieser Ordnung beim Menschen oder irgendeinem Wirbeltier.
Sämtliche Telosporidia, welche pathogene Bedeutung haben, üben ihre gefährliche Wirkung auf den Wirtsorganismus im Zusammenhang mit Zellparasitismus aus. In allen denjenigen Fällen, in denen man eine besondere Einwirkung von Gregarinen auf den Wirtsorganismus feststellte, handelte es sich um in Zellen oder doch in Geweben schmarotzende Stadien der betreffenden Arten. Es ist ja wohl anzunehmen, daß im Darm und in der Leibeshöhle frei vorkommende Gregarinen, abgesehen von der Entziehung von Stoffen, auch durch Ausscheidung von Stoffwechselprodukten in ähnlicher Weise schädigend auf den Wirt wirken, wie etwa Bandwürmer und große Nematoden etc. Aber ähnlich, wie in diesen Fällen, ist die Schädigung wohl ganz selten eine irgendwie erhebliche. Die außen an den Epithelien haftenden Gregarinen schädigen dieselben ebenfalls nicht sehr stark, da ihr Einfluß sich erst im Verlauf längerer Zeiträume bemerkbar macht. Er ist ein ähnlicher, wie derjenige der zellparasitischen Stadien von Gregarinen, welche die Zellen zuerst zu Hypertrophie und im Anschluß daran zur Degeneration veranlassen. Der Epithelverlust kann aber in solchen Fällen meist leicht durch Regeneration gedeckt werden, da es sich fast ausschließlich um Formen ohne Schizogonie, d. h. ohne multiplikative Fortpflanzung handelt. Das infizierte Tier wird also nicht fortgesetzt stärker angegriffen, wenn nicht der Zufall immer neue Infektionen veranlaßt. Und die langdauernde, langsame Entwicklung der Gregarinen verteilt die schädigenden Einflüsse auf einen längeren Zeitraum.
[S. 836]
Nach den neueren Forschungen, bei welchen sich Léger und seine Schüler das größte Verdienst erworben haben, teilen wir die Gregarinen in 3 Unterordnungen; dies System ist wohl noch kein ganz natürliches, vor allem werden wohl die Schizogregarinen aufzuteilen und zum Teil wenigstens unter die Eugregarinen einzureihen sein.
1) Eugregarinaria Doflein.
Gregarinen ohne Schizogonie, mit anisogamer oder isogamer Befruchtung, jede Syzygie liefert zahlreiche Zygoten und damit Sporen.
2) Schizogregarinaria Léger.
Gregarinen mit Schizogonie, isogamer Befruchtung, wobei eine Syzygie entweder nur eine oder viele Sporen liefert.
3) Aggregataria Labbé.
Gregarinen mit Schizogonie und Wirtswechsel. Ohne Syzygienbildung, doch liefert ein weibliches Individuum zahlreiche Makrogameten, aus denen je eine Spore entsteht.
1. Unterordnung.
Eugregarinaria Doflein.
Die Eugregarinarien sind typische Gregarinen ohne Schizogonie, mit lange dauernder Wachstumsperiode der agamen Individuen, welche als Syzygiten zu je zweien sich gemeinsam encystieren, um die Gameten zu produzieren. Die Kopulation ist isogam oder anisogam. Die Sporen enthalten bei weitaus der Mehrzahl der Gattungen 8 Sporozoiten. Man kann den hierher gehörigen bei weitem größeren Teil der Gregarinen folgendermaßen einteilen:
1. Epimerit bleibend oder vorübergehend vorhanden 2
Epimerit in keinem Entwicklungsstadium vorhanden: 2. Legion Monocystidea
2. 1. Legion Polycystidea
Sporenhülle fehlend Sublegion Gymnosporea
Sporenhülle vorhanden Sublegion Angiosporea.
[S. 837]
1. Legion.
Acephalina Koelliker
(= Monocystidea Stein).
Die Acephalinen sind Gregarinen mit einem einfachen, nicht in Merite geteilten Körper, welche in keinem Stadium Epimerite ausbilden. Sie sind vielfach sehr metabol. Die Befruchtung ist isogam oder anisogam. Die meisten Arten sind Cölomparasiten.
Gattung: Monocystis Stein 1848.
Die Gattung Monocystis ist durch sehr metabole Körperform und ausgesprochen spindelförmige Sporen mit polaren Verdickungen der Sporenhülle charakterisiert. Die einzelnen Arten, welche vor allem in den Samenblasen von oligochäten Würmern vorkommen, sind nicht sehr gut definiert. Es kommen in der Gattung Monocystis in ihrer heutigen Umgrenzung sowohl isogame als auch anisogame Arten vor.
Da erfahrungsgemäß die Art der Entwicklung mancher Monocystideen des Regenwurmhodens dem Verständnis einige Schwierigkeiten bereitet, so habe ich hier zwei Abbildungen eingefügt, welche die eigenartigen Beziehungen der Gregarinen zu den Spermatozoen erläutern sollen. Die Monocystideen dringen in jungen Entwicklungsstadien in das Cytophor (resp. Blastophor) (Fig. 779 A), an welchem die sich entwickelnden Spermamutterzellen außen befestigt sind. Im Laufe der Entwicklung entsteht ein Bild, wie es sich auf Fig. 779 B darstellt, eine Gewebsmasse, welche die schon ziemlich große Gregarine umschließt und an der äußerlich die Spermatogonien anhängen. Ist die Gregarine erwachsen, so sind auch die Spermatozoen ausgebildet, das Blastophor ist aber verbraucht, vielleicht ist von ihm [S. 838]noch eine ganz dünne Schicht übrig, und an dieser und damit an der ganzen Oberfläche der Gregarine hängen wie ein Wimpermantel die Regenwurmspermatozoen.
Zu Verwechslungen können diese Erscheinungen um so mehr Anlaß geben, als bei gewissen Monocystideen, so bei Rhynchocystis pilosa Cuénot, haarartige plasmatische Anhänge vorkommen, welche sehr dem Spermatozoenmantel der erwähnten Formen ähneln, aber dennoch integrierende Bestandteile des Gregarinenkörpers darstellen (Fig. 780), die sie allerdings im Alter einbüßen kann.
Die Monocystisarten des Regenwurmhodens.
Die neueren Untersuchungen zeigen, daß die in den verschiedenen Arten der zentraleuropäischen Regenwürmer gefundenen Monocystisarten sich durch Eigenschaften unterscheiden können, auf welche früher nicht geachtet wurde. Daher kann man ohne eingehende Untersuchungen die früher beschriebenen Stadien nicht mit Sicherheit unterbringen. Neben einer Gruppe kleiner Formen, welche bis zu 400 µ Durchmesser erreichen, und als deren Vertreter Monocystis agilis lumbrici zu bezeichnen ist, kommt eine Gruppe von größeren Formen vor, deren Durchmesser bis 5 mm betragen soll, die Gruppe der [S. 839]Monocystis magna. Gut unterscheidbar scheinen ferner M. porrecta A. Schmidt und die interessante M. rostrata Muls. zu sein. Vgl. außer den sogleich unter M. lumbrici zitierten Schriften von Cuénot, Prowazek, Hoffmann und Mulsow, vor allem L. Brasil, Nouvelles recherches sur la réproduction des Grégarines monocystidées, in: Arch. Zool. exp. Sér. 4. Vol. 4. 1905. p. 69 und die wichtige Arbeit von Hesse, ibid. Sér. 5. Vol. 3. 1909. p. 27.
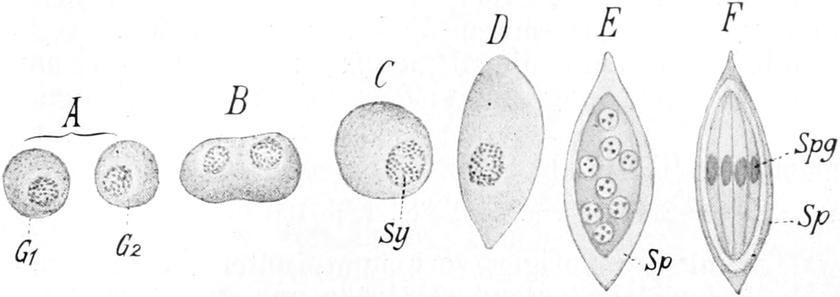
Monocystis lumbrici (Henle).
|
1845.
|
Gregarina lumbrici Henle, in:
Arch. Anat. Physiol. Med. p. 371.
|
|
1848.
|
Monocystis agilis F. Stein,
in: Arch. Anat. Physiol. Med. p. 182.
|
|
1854.
|
Monocystis cristata A. Schmidt,
in: Abh. Senckenberg. Ges. Vol. 1. p. 168.
|
|
1899.
|
Labbé, in: Tierreich. 5.
Lief. Sporozoa. (Daselbst Literatur.)
|
|
1901.
|
Cuénot, Recherches sur
l’évolution et la conjugaison des Grégarines. In: Arch. Biol. Vol. 17.
p. 581.
|
|
1902.
|
Prowazek, Zur Entwicklung der
Gregarinen. In: Arch. Protistenk. Vol. 1. p. 297.
|
|
1908.
|
Hoffmann, R., Ueber
Fortpflanzungserscheinungen von Monocystideen des Lumbricus agricola. In:
Arch. Protistenk. Vol. 13. p. 139.
|
|
(Die Benennung M. tenax [Duj.] nach dem Proteus tenax
Dujardin 1835 ist nicht zulässig, da letztere Benennung durch die
Verwechslung mit einem Flagellaten veranlaßt war.)
|
[S. 840]
Die kleine Gregarine des Regenwurmhodens ist sehr lebhaft beweglich, der Körper sehr metabol. Das Vorderende des länglichen Körpers ist oft (nach Cuénot stets) durch einen Büschel haarähnlicher plasmatischer Fortsätze ausgezeichnet. Eine deutliche Längsstreifung ist auf der Cuticula sichtbar. Das Plasma ist stark granuliert, grau. Das ausgewachsene Tier mißt meist ca. 200 µ. Die Befruchtung scheint anisogam mit geringer Differenz der Gameten zu sein.
Die Sporen sind spindelförmig, symmetrisch gebaut und an jedem Pol mit einer auffallenden knopfförmigen Verdickung versehen.
Monocystis lumbrici bewohnt die Samenblasen von Lumbricus terrestris L. Dort ist sie sehr häufig, ohne jedoch Schaden anzurichten.
Monocystis magna A. Schmidt.
|
1854.
|
Schmidt, A., in: Abh.
Senckenberg. Ges. Vol. 1. p. 168.
|
Diese Art, welche mit der vorigen vorkommt, unterscheidet sich hauptsächlich durch ihre viel bedeutendere Größe und geringere Beweglichkeit. Die Farbe ist glänzend weiß. Sie erreicht 5 mm Durchmesser. Die Tiere sind meist länglich, zylindrisch; das vordere verschmälerte Ende steckt oft wie ein Epimerit im Gewebe am Wimpertrichter der männlichen Segmente, dem ausschließlichen Sitz der Art im nicht encystierten Zustand (Fig. 778). Wahrscheinlich erfolgt die Befruchtung durch Isogamie. Kommt bei Lumbricus terrestris L. und Allobophora terrestris Sav. vor.
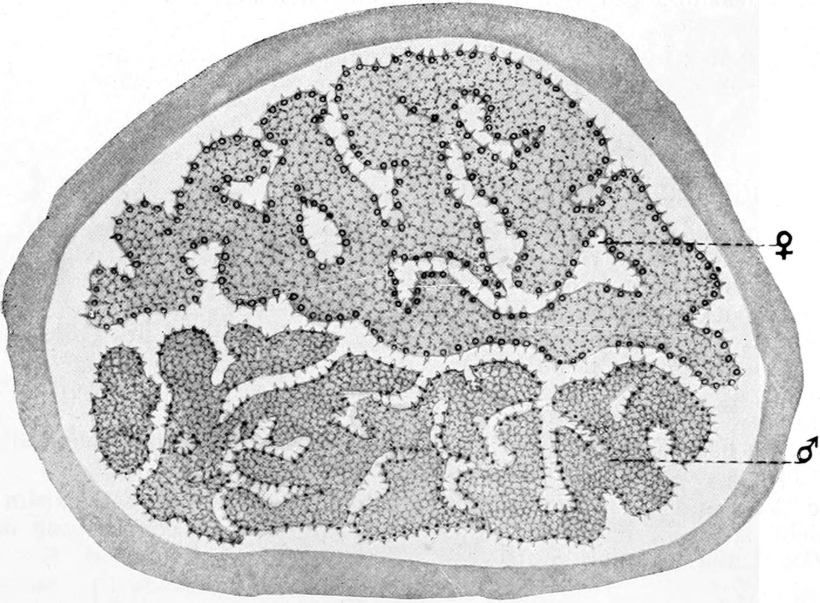
Von den zahlreichen sonstigen Gattungen des Tribus seien folgende erwähnt:
Eirmocystis Léger, deren Individuen sich zu langen Ketten vereinigen (Fig. 767). Lithocystis Giard. große ovale bis wurmförmige Gregarinen, deren Entoplasma mit Kristallen von oxalsaurem Kalk angefüllt ist. Die Sporen besitzen an dem einen Pol lange, [S. 841]schwanzartige Fortsätze. Die einzige Art L. Schneideri Giard. lebt in der Leibeshöhle verschiedener Seeigel (Fig. 776).
Die Gattungen Urospora Ai. Schneider und Gonospora Ai. Schneider sind besonders bekannt geworden durch die Untersuchungen Brasils über den Gametendimorphismus. Dieser Autor stellte fest, daß in den beiden Syzygiten, welche bei der Gametenbildung lappenförmig zerfallen, die Kerne verschieden groß und verschieden dicht gebaut sind, so daß man den einen Syzygiten als männlich und den anderen als weiblich bezeichnen kann (Fig. 784 u. 785 A). Auch in den Zygoten erkennt man kurz nach der Kopulation eine verschiedene Größe der beiden noch nicht verschmolzenen Gametenkerne. Beide Gattungen haben auch sehr charakteristische Sporen (Fig. 774 G u. I).
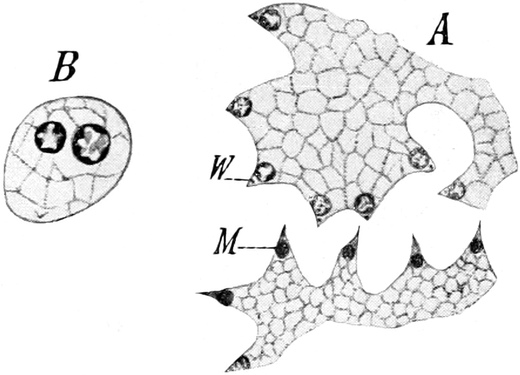
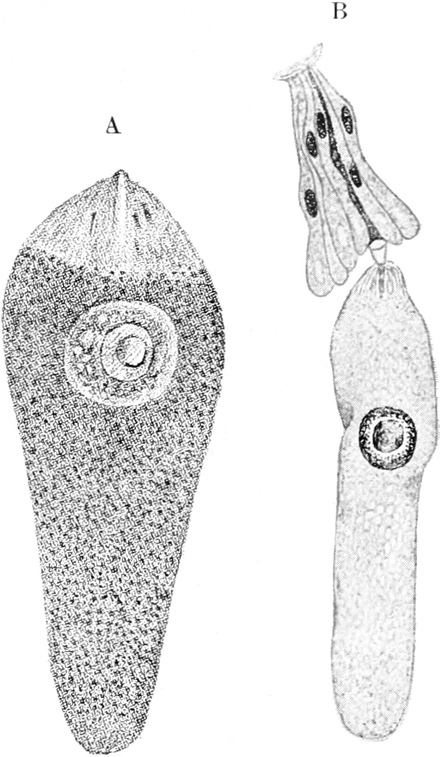
Gattung: Lankesteria Ming.
Lankesteria ascidiae Lank.
|
1872.
|
Monocystis ascidiae Lankester,
in: Quart. Journ. micr. sci. N. ser. Vol. 12. p. 342.
|
|
1899.
|
Lankesteria ascidiae Mingazzini
s. Labbé, in: Tierreich. Lief. 5. Sporozoa.
p. 46.
|
|
1899.
|
Monocystis ascidiae Siedlecki,
in: Bulletin Acad. Sci. Cracovie. p. 515.
|
Diese Art ist deswegen bemerkenswert, weil sie die erste war, bei der wir Genaueres über die geschlechtlichen Vorgänge erfahren haben, und zwar geschah dies durch die Untersuchungen Siedleckis (vgl. Fig. 765, S. 828).
Die Art ist ungefähr blattförmig, ohne echten Epimerit, der Körper ungeteilt. Der Kern ist sehr groß mit großem Binnenkörper. Die Exemplare messen 40–125 µ (Fig. 786). Am Vorderende befindet [S. 842]sich eine Oeffnung der Cuticula, durch welche eine Art von Tastpseudopod hervorragt.
Zwei Individuen pflegen sich gemeinsam zu encystieren: dabei findet eine intensive Rotation statt, während welcher eine große Menge von Gallerte als Gallerthülle ausgeschieden wird. Nach dem Aufhören der Rotation wird die eigentliche Cystenhülle ausgeschieden. An den Stellen, wo die beiderseitigen Pseudopodienöffnungen sich berühren, tritt in dem Plasma eine intensive Strahlung auf (Fig. 787 A).
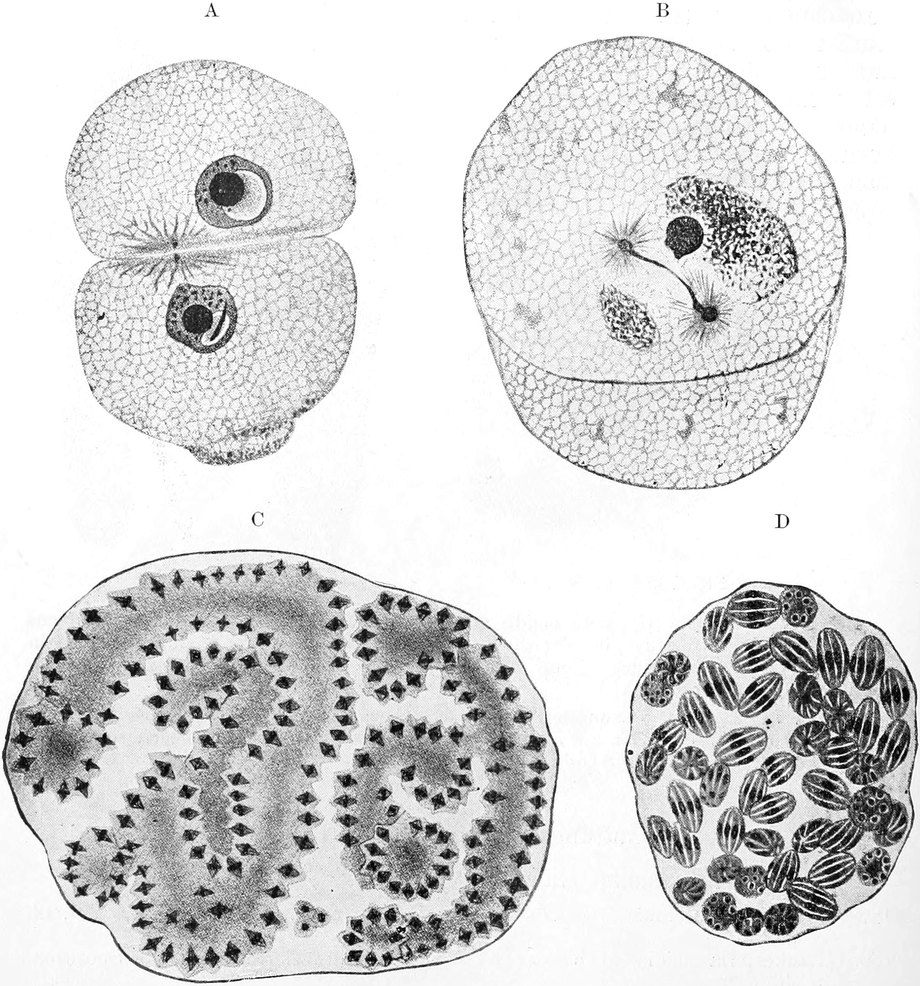
Dann geht in jedem der beiden Individuen ein Kernreproduktionsprozeß vor sich, indem die Hauptmasse des Kerns mit dem Karyosom [S. 843]zugrunde geht; aus geringen Teilen des alten Kerns bildet sich ein winziger neuer Kern, welcher sofort zur Teilung schreitet (Fig. 787 B).
Nach zahlreichen Teilungen sind alle Kerne an der Oberfläche unregelmäßiger Restkörper angeordnet (Fig. 787 C). In jedem der beiden Syzygiten entstehen dann durch Abschnürung kleiner Plasmaportionen um jeden Kern gleichartige kuglige Gameten. Je ein solcher Isogamet aus dem einen Syzygiten verschmilzt mit einem aus dem anderen. Die so gebildete Zygote wird länglich, es erfolgen Teilungen des Synkaryons, so daß sich in der dann ausgeschiedenen Sporenhülle 8 Sporozoiten (Fig. 787 D) bilden.
Die Cysten öffnen sich einfach durch Einreißen der Wand.
Die Art schmarotzt im Darmtraktus von Ciona intestinalis (L.), und zwar wachsen die Einzelindividuen im Epithel heran. Die erwachsenen Tiere bewegen sich lebhaft im Darm und kopulieren auch daselbst. Die späteren Entwicklungsvorgänge erfolgen nach der Entleerung der Cysten mit dem Kot im Meerwasser.
Erwähnenswert ist schließlich an dieser Stelle die Tatsache, daß bei Anopheles maculipennis am Darm, besonders am Magen, der Imagines von Johnson in Nordamerika (Boston) Cysten einer Gregarine gefunden wurden, welche zu Verwechslungen mit Entwicklungsstadien der Malariaparasiten Anlaß geben könnte. Der Entdecker hält dieselbe für eine Monocystidee.
Auch R. Ross hatte in Indien ähnliche Cysten und alle möglichen Stadien von Gregarinen in den Larven von Stechmücken gefunden.
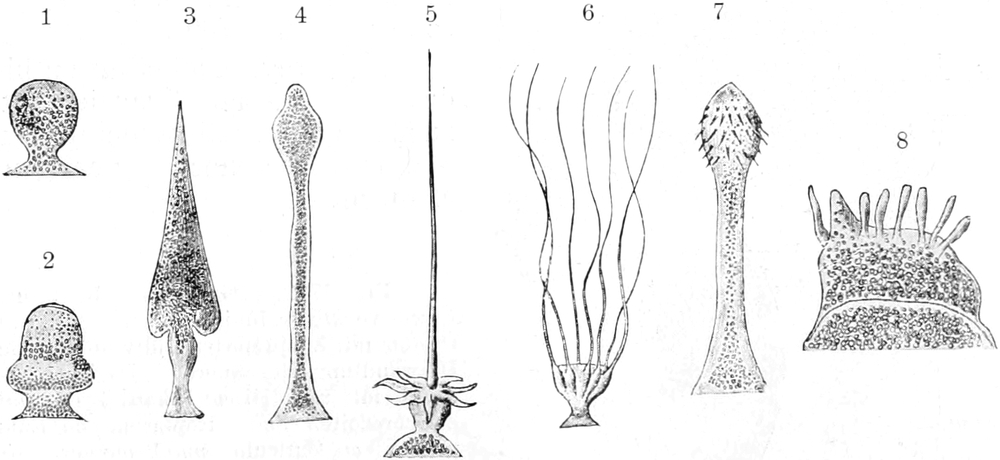
2. Legion.
Cephalina Delage
(= Polycystidea + Doliocystidae).
Die Gregarinen dieser Gruppe besitzen sämtlich einen Epimeriten, welcher in manchen Fällen allerdings früh verloren geht. Von der Mannigfaltigkeit der Epimeritformen gibt Fig. 788 eine Anschauung. Vielfach ist der Körper durch ein Septum in Proto- und Deutomerit geteilt.
[S. 844]
Wir erwähnen und behandeln nur einige wenige Formen aus der sehr großen Anzahl der bis jetzt bekannten Arten, welche meist Darmparasiten von Arthropoden sind.
Die Cephalina werden in folgende 9 Familien eingeteilt:
|
1)
|
Gregarinidae Labbé
|
||
|
2)
|
Stenophoridae Léger u. Duboscq
|
||
|
3)
|
Didymophyidae Léger
|
||
|
4)
|
Dactylophoridae Léger
|
||
|
5)
|
Actinocephalidae Léger
|
|
= Actinocephalidae s. l.
em. Léger u. Duboscq. |
|
6)
|
Acanthosporidae Léger
|
||
|
7)
|
Menosporidae Léger
|
||
|
8)
|
Stylorhynchidae Ai. Schneider.
|
||
|
9)
|
Doliocystidae Léger.
|
||
1. Familie: Gregarinidae Labbé.
Gregarinen mit einfachem Epimeriten, Cysten mit oder ohne Sporodukte. Bei Arten mit Sporodukten sind die Sporen tonnenförmig und mit den abgeflachten Enden zu Ketten vereinigt, bei solchen ohne Sporodukte sind sie oval.
Gattung:
Gregarina Dufour 1828.
(Clepsidrina Hammerschmidt 1888.)
Gregarina blattarum (Siebold).
|
1839.
|
Siebold, in: N. Schr. Ges.
Danzig. Vol. 3. p. 57.
|
|
1875.
|
Clepsidrina blattarum Schneider,
in: Arch. Zool. expér. Vol. 4. p. 580.
|
|
1881.
|
Bütschli, in: Zeitschr. wiss.
Zool. Vol. 35 p. 384.
|
|
1891.
|
Wolters, in: Arch. mikr. Anat.
Vol. 37. p. 115.
|
|
1899.
|
Gregarina blattarum Sieb. Labbé,
in: Tierreich. Lief. 5. Sporozoa. p. 10.
|
Diese oft untersuchte und leicht zu beschaffende Art findet man gewöhnlich zu mehreren verklebt. Die Form ist eine längliche, der Epimerit geht leicht verloren, Proto- und Deutomerit sind sehr deutlich geschieden (Fig. 789).
Die Gregarina blattarum bildet eine kuglige Syzygiencyste zur Kopulation; die feineren Verhältnisse sind noch ungenügend erforscht.
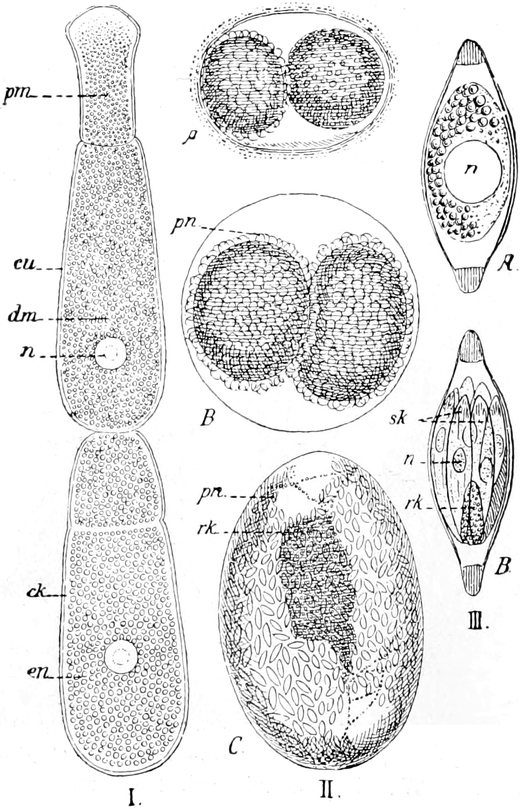
[S. 845]
Jedenfalls entstehen in den Cysten massenhaft Sporoblasten um große Restkörper angeordnet; aus den Sporoblasten bilden sich spindelförmige Sporen, welche je 8 Sporozoiten enthalten (Fig. 789 III B).
Die Entleerung der Sporen aus der Cyste wird durch lange Sporodukte vermittelt, welche ausgestoßen werden, wenn die reife Cyste in eine feuchte Umgebung gerät (Fig. 790).
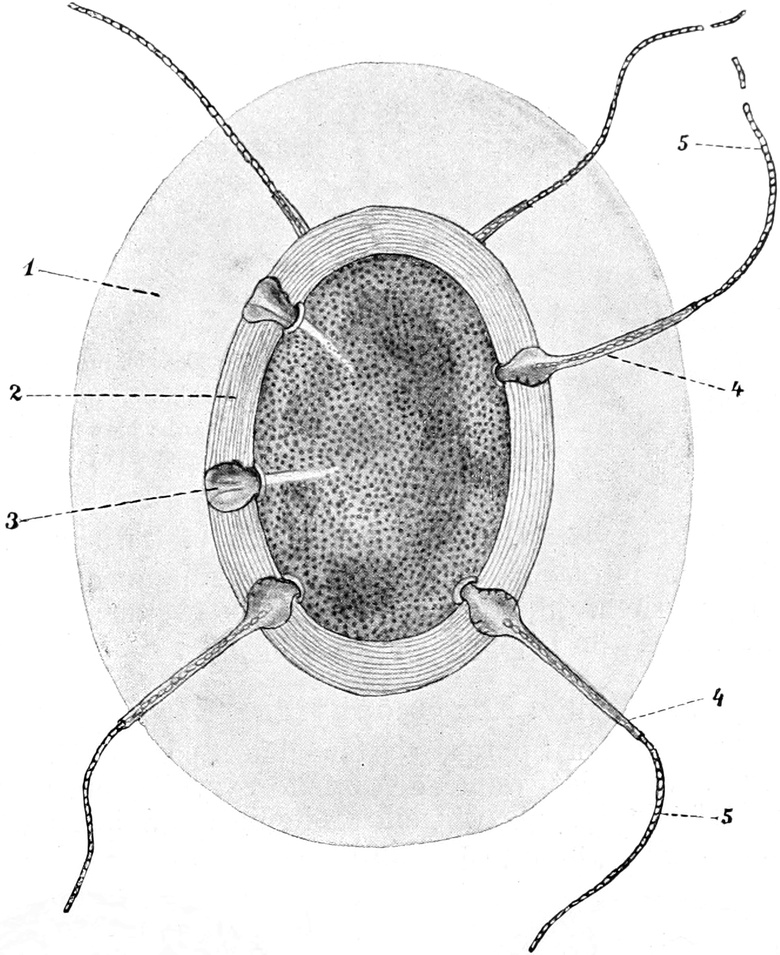
Die Art kommt sehr häufig im Darm der Küchenschabe Periplaneta (Blatta) orientalis (L.) vor.
Zu dieser Gattung gehören von bekannteren Arten ferner noch Gregarina Munieri (Ai. Schn.), eine Form mit ovaler Cyste (Fig. 776), G. ovata Duf., eine Form aus dem Ohrwurm Forficula auricularia L., mit dicker Cystenhülle und so kurzen Sporodukten, daß die zylindrischen Sporen kaum außerhalb der Cystenhülle entleert werden (Fig. 224, S. 223). Ferner ist hier anzuführen G. polymorpha (Hamm.) aus den Larven des Mehlkäfers (Tenebrio molitor L.), G. cuneata F. St. aus demselben Wirt (Fig. 791).
Hierher gehört auch die Gattung Frenzelina (Lég. u. Dub.), welche man früher für die agamen Stadien der Aggregataria hielt (s. u. S. 852).
[S. 846]
2. Familie: Stenophoridae Léger u. Duboscq.
Formen mit intracellulärer Entwicklung, ohne oder mit rudimentären Epimeriten. Sporen oval mit sehr weitem, abstehendem Epispor. Parasiten von Diplopoden. (Stenophora; St. iuli [Frantzius].)
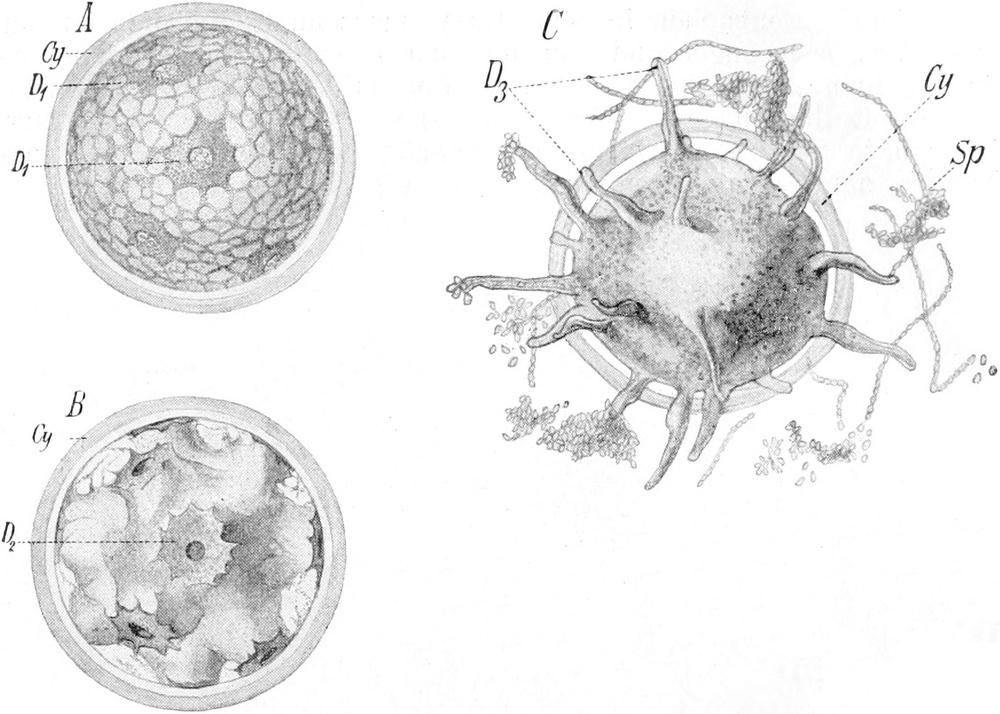
3. Familie: Didymophyidae Léger.
Formen mit ovalen Sporen, Cysten ohne Sporodukte. Syzygiten stets paarweise vereinigt, wobei der zweite Syzygit seinen Protomerit verliert, so daß die Syzygie wie ein dreiteiliges, zweikerniges Individuum aussieht. (Didymophyes Stein.)
[S. 847]
4. Familie: Dactylophoridae Léger.
Formen mit asymmetrischem, unregelmäßig gebautem Epimeriten resp. Protomeriten, welcher finger- oder wurzelförmige Fortsätze trägt und dadurch einen komplizierten Haftapparat bildet. Anisogamie mit großer Verschiedenheit der Gameten. Cysten ohne Sporodukte; Entleerung durch einen Quellkörper (Pseudocyste, Fig. 792) bedingt. Sporen zylindrisch, langgestreckt.
Aus dieser Familie, welche reich an interessanten Gattungen ist, seien folgende Formen erwähnt:
Gattung:
Echinomera Labbé.
(E. hispida [Ai. Schn.], Fig. 774 B, 792; E. horrida
Léger, Fig. 794 E).
Eine schlanke Form, mit dünnem, stachligem Epimeriten, deren Szygiencyste durch einen Quellkörper zersprengt wird, um die in Reihen angeordneten zylindrischen Sporen zu entleeren (Fig. 792 A u. B). Die einzige Art ist Parasit im Darm des Tausendfußes Lithobius forficatus L.
Gattung:
Pterocephalus Ai. Schneider = Nina
Grebnicki[46].
(P. nobilis Ai. Schn. = Nina gracilis Grebn., Fig. 793; P. Giardi
Léger, Fig. 794 A; P. indicus Merton, Fig. 766.)
Der Protomerit der erwachsenen Gregarinen dieser Gattung ist bilateral-symmetrisch und in zwei Lappen geteilt. Die Sporen sind [S. 848]oval, zu schiefen Bändern vereinigt. Bemerkenswert ist die Fixierung am Darmepithel des Wirts durch den komplizierten Apparat des Epimerits und die Entwicklungsgeschichte dieses Organellensystems (Fig. 794).
[S. 849]
5. Familie: Actinocephalidae Léger[47].
Formen, welche stets solitär angetroffen werden (keine freien Syzygien bilden); der Epimerit ist symmetrisch, einfach oder mit Anhängen. Cysten ohne Sporodukte. Die Sporen haben die Form einer Spindel, eines Doppelkegels oder Zylinders mit kegelförmigen Enden.
Man unterscheidet eine Reihe (5) Unterfamilien, um die zahlreichen Gattungen dieser Familie unterzubringen, welche fast ausschließlich bei fleischfressenden (Raub-)Arthropoden schmarotzen.
Die Unterfamilien sind folgende:
Aus letzterer Unterfamilie erwähnen wir noch die
Gattung Pyxinia
Hammerschmidt
(P. Moebuszi, Léger u. Duboscq, Fig. 795).
Der Epimerit dieser Gattung, welcher sich als junger Sporozoit an das Darmepithel des Wirts äußerlich anheftet, wächst im Lauf der Entwicklung zu einem mächtigen, tief in die Wirtszelle eindringenden Rüssel heran. Unterdessen nimmt der Körper stark an Volumen zu und teilt sich in Proto- und Deutomerit (Fig. 795 A–F).
[S. 850]
Hier wäre auch die Gattung Taeniocystis Léger anzugliedern, welche wir früher schon wegen der eigenartigen metameren Gliederung ihres Deutomeriten und des dadurch erzielten bandwurmähnlichen Habitus erwähnt haben (Fig. 796 B).
6. Familie: Acanthosporidae Léger.
Ebenfalls ohne freie Syzygien, Epimerite symmetrisch, einfach, ohne oder mit Fortsätzen. Cysten ohne Sporodukte. Sporen mit Stacheln an den Polen oder am Aequator.
Gattung: Corycella Léger (C. armata Lég., Fig. 797).
|
1892.
|
Léger, in: Tablettes
zoologiques. Vol. 3. p. 144.
|
Als Beispiel einer Gregarine mit schön ausgebildetem Epimerit erwähnen wir diese ansehnliche Form.
[S. 851]
Protomerit und Deutomerit sind angeschwollen und durch eine ziemlich tiefe Kerbe getrennt (Fig. 797 a). Der Epimerit ist knopfförmig und mit einer Krone von 8 dicken, spitzen, nach rückwärts eingebogenen Haken versehen (Fig. 797 b).
Das Entoplasma des Tieres ist durch eine graubraune Färbung ausgezeichnet.
Das erwachsene Tier mißt 280–300 µ, die Cysten 250 µ; die letzteren platzen einfach durch Einreißen der Wand. Die Sporen sind durch feine, fadenartige Verlängerungen an den Polen ausgezeichnet. Sie haben eine Länge von 13–14 und eine Breite von 6,5 µ.
Die Art lebt im Darm von Gyrinus natator (L.), dem gewöhnlichen Wassertaumelkäfer.
Ferner gehört hierher:
Ancyrophora Léger (A. gracilis Léger) aus Carabidenlarven (C. auratus, violaceus etc.), s. Anm. S. 849–50.
7. Familie: Menosporidae Léger.
Ebenfalls ohne freie Syzygien. Epimerite symmetrisch mit Anhängen und mit dem Protomeriten durch einen langen Hals verbunden. Cysten kuglig ohne Sporodukte. Sporen halbmondförmig mit spiraler Drehung. (Menospora Léger, Hoplorhynchus Carus, s. Anm. S. 849–50).
8. Familie: Stylorhynchidae Ai. Schneider.
Langgestreckte Gregarinen mit symmetrischem Epimeriten; Fortsätze an denselben vorhanden oder fehlend. Cysten mit doppelter Hülle, Entleerung derselben mit Hilfe eines zentralen Quellkörpers erfolgend. Die Sporen sind geldbörsenförmig, mit brauner oder schwärzlicher Hülle, in Ketten vereinigt und öffnen sich in einer Naht, welche an der meist konvexen Kante verläuft.
Zahlreiche Gattungen, von denen wir erwähnen:
Gattung: Stylorhynchus Stein (St. longicollis St., Fig. 798).
Protomerit in einen langen, rüsselförmigen Fortsatz verlängert, welcher an seinem Ende einen kleinen knopfförmigen Epimeriten trägt. Die Anisogamie (vgl. S. 182), der Dimorphismus der Mikrogameten, die Bildung der geldbörsenförmigen Sporen ist oben beschrieben und abgebildet (Fig. 769, 770, 772, 774 F).
[S. 852]
9. Familie: Doliocystidae Léger.
Epimerit einfach, symmetrisch. Körper nicht in Merite geteilt. Sporen oval. (Doliocystis Léger.)
Gattung: Porospora Schn.
Porospora gigantea (E. Bened.).
|
1869.
|
Gregarina gigantea E. Van
Beneden, in: Bull. Ac. Belg. Sér. 2. Vol. 28. p. 444.
|
|
1875.
|
Porospora gigantea Aimé
Schneider, in: Arch. Zool. expér. Vol. 4. p. 585.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 7.
|
Die Porospora gigantea hat eine sehr langgestreckte, wurmartige Gestalt (Fig. 789). Der Epimerit ist knopfförmig und geht sehr leicht verloren. Proto- und Deutomerit sind deutlich geschieden.
Die Art ist durch ihre riesenhaften Verhältnisse ausgezeichnet: die frei beweglichen Individuen erreichen eine Länge von 1 cm und mehr.
Die Cysten haben einen Durchmesser von 3–4 mm. In denselben, welche gewöhnlich aus einem einzigen Individuum entstehen, bilden sich mehrere Sporoblasten; diese scheiden aber keine Sporenhülle aus, sondern teilen sich in nacktem Zustand in zahlreiche, sehr kleine Sporozoiten, welche radiär um je einen Restkörper angeordnet sind, so daß sphärische bis ovoide Gruppen gebildet werden.
Die Cysten öffnen sich einfach durch Einreißen der Wand, um die Sporozoiten zu entleeren.
Jeder Sporoblast hat einen Durchmesser von 5–8 µ; die Sporozoiten sind 3 µ lang und 1 µ breit.
Die Art ist sehr häufig im Darm von Astacus gammarus L. (Homarus vulgaris M. Edw.), dem gemeinen Hummer. Die befallenen Exemplare scheinen unter der Infektion nicht zu leiden.
Eine Zeitlang vereinigte man zahlreiche Formen aus dem Darm von dekapoden Krebsen mit Porospora zur Gruppe der Gymnosporeen, da man, falsch kombinierend, die freien Gregarinen der jetzt Frenzelina Léger u. Duboscq genannten Angiosporeen mit den Schizogoniestadien (Cölomcysten) der Aggregataria vereinigte (s. oben S. 845). Nach den neuesten Untersuchungen von Léger und Duboscq (1909) ist auch Porospora eine Schizogregarine, deren Schizogonie im Darmlumen des Hummers verläuft und deren Sporogonie noch vollkommen unbekannt ist, was dadurch sehr wahrscheinlich gemacht wird, daß sie sich solitär encystiert.
2. Unterordnung.
Schizogregarinaria Léger.
(= Amoebosporidia Ai. Schneider.)
Die Schizogregarinen sind vor den Eugregarinarien durch das Vorkommen einer agamen (resp. progamen) Vermehrung ausgezeichnet (Schizogonie). Die metagame Vermehrung, d. h. die Sporozoitenbildung, und der [S. 853]Bau der Sporen zeigen keinen wesentlichen Unterschied gegenüber dem, was wir bei den Eugregarinarien kennen gelernt haben. Während die agamen Stadien bei einigen Gattungen intracellulär sind, ist bei den typischen Formen das ganze Leben extracellulär.
Die Lebensgeschichte, besonders Gametenbildung und Befruchtung verläuft bei den einzelnen Formen sehr verschiedenartig und ist nur bei einigen genauer erforscht.
Die Schizogregarinen sind Parasiten des Darms und seiner Anhangsorgane bei Arthropoden, Anneliden und Tunicaten.
Die Schizogregarinen werden von Léger und Duboscq nach der Zahl der aus einer Syzygie hervorgehenden Sporen in Monospora und Polyspora, von Fantham nach dem extra- oder intracellulären Sitz der sich vermehrenden Agameten in Ectoschiza und Entoschiza eingeteilt. Es werden folgende Familien unterschieden:
- 1) Ophryocystidae Léger u. Duboscq,
- 2) Schizocystidae Léger u. Duboscq,
- 3) Seleniidae Brasil,
- 4) Merogregarinidae Porter.
1. Familie: Ophryocystidae Léger u. Duboscq.
Diese Familie enthält die bestbekannten Formen. Die agamen Stadien sind extracellulär, wachsen unter Kernvermehrung heran, teilen sich, zerfallen in Individuen, welche selbst wieder mehrkernig sein können (Fig. 800). Diese zerfallen in die Syzygiten, welche zu je zweien sich vereinigen und durch einen eigenartigen Prozeß im Innern je einen Gameten bilden, welcher von Restplasma umschlossen ist; letzteres enthält 2 als Reduktionskerne gedeutete Kerne (Fig. 801).
Die Gameten verschmelzen zur Zygote, aus welcher, immer innerhalb der plasmatischen Hülle, eine Spore mit 8 Sporozoiten entsteht.
Gattung: Ophryocystis Ai. Schneider.
Von der Gattung Ophryocystis sind ca. 9 Arten (sämtlich aus Käfern) bekannt, welche kegelförmig gestaltet und mit wurzelförmigen plasmatischen Fortsätzen, die früher für Pseudopodien gehalten wurden, am Epithel der Malpighischen Gefäße ihrer Wirte befestigt sind. Wir erwähnen:
[S. 854]
- Ophryocystis Bütschlii Ai. Schneider aus Blaps sp. (Fig. 802),
- O. Schneideri Léger u. Hagenmüller aus Blaps magica,
- O. Mesnili Léger (Fig. 800 u. 801) aus Tenebrio molitor,
- O. Francisi Ai. Schn. aus Akis algeriana und acuminata (Fig. 803).
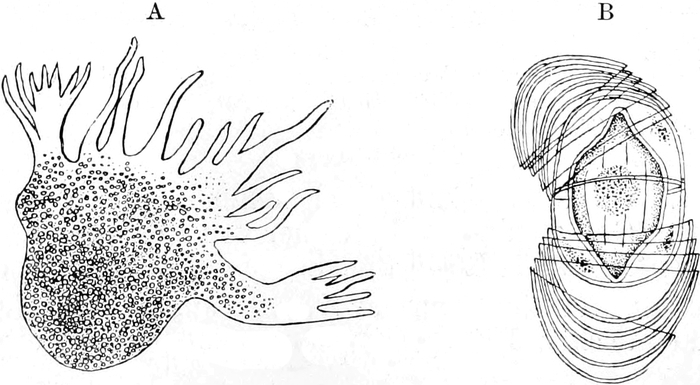
2. Familie: Schizocystidae Léger u. Duboscq.
Formen von zylindrischer oder langgestreckter Gestalt mit differenziertem Vorderende, agame Stadien extracellulär. Syzygienbildung, [S. 855]Gametenentwicklung, Kopulation und Sporen mit 8 Sporozoiten nach dem Typus der Eugregarinaria. Gattung: Schizocystis Léger.
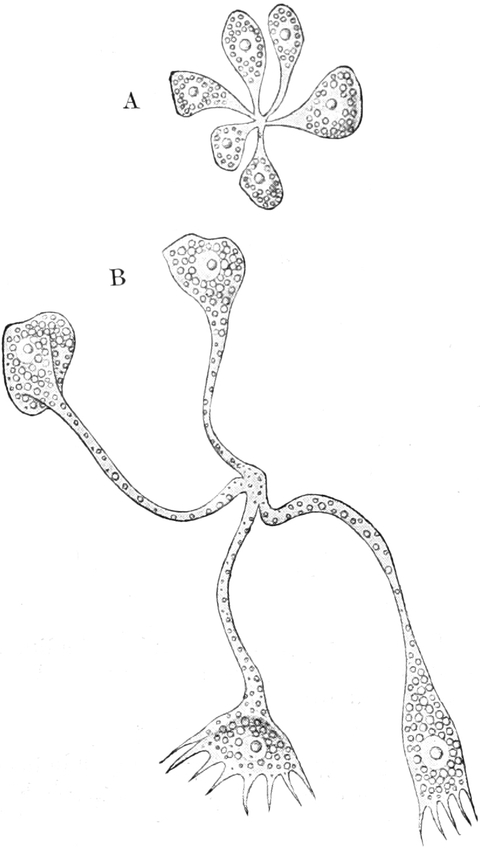
3. Familie: Seleniidae Brasil.
Formen von wurmartiger Gestalt, großer Beweglichkeit mit einem Epimeriten und die ganze Länge des Tiers durchsetzenden Myonemen. Die jungen Agameten sind intracellulär, wachsen in einkernigem Zustand heran, um dann zur agamen Vermehrung vielkernig zu werden. Die erwachsenen Produkte dieser Vermehrung (deren Bau in dem ersten Satze dieser Diagnose beschrieben ist) vereinigen sich als Syzygiten zu je zweien in einer Cyste, in welcher die Isogameten nach dem Typus der Eugregarinaria sich entwickeln und kopulieren. Die kugligen und stachligen Sporen enthalten 4 Sporozoiten.
Gattung: Selenidium Giard, deren zahlreiche Arten bisher nur aus Anneliden und Gephyreen beschrieben wurden.
Gattung: Merogregarina Porter aus der Ascidie Amaroecium sp. (Australien).
Hier ist auch des sehr interessanten Selenococcidium intermedium Léger u. Duboscq Erwähnung zu tun, welches im Hummer vorkommt. Die Art gleicht in ihrer nematodenähnlichen Gestalt und in der Art ihrer agamen Vermehrung den Seleniiden, die geschlechtliche Fortpflanzung scheint sich aber vollkommen an diejenige der Coccidien anzuschließen. Es bilden sich kleine, spermienähnliche Mikrogameten und ein ganzes Individuum bildet sich zu einem Makrogameten [S. 856]um, ohne daß Aneinanderlagerung der Gameten stattgefunden hätte. Die eigentlichen Sporogoniestadien sind noch unbekannt.
Es handelt sich jedenfalls um eine Form, welche den Uebergang von Gregarinen zu Coccidien oder wohl eher umgekehrt vermittelt.
3. Unterordnung.
Aggregataria Labbé.
Man kann im Zweifel sein, ob man diese wichtige Gruppe als Ordnung oder als Unterordnung der Gregarinen betrachten, oder ob man sie nicht eher als den Coccidiomorphen und Gregarinen gleichgeordnete Gruppe betrachten sollte. Vorläufig scheint uns die hier gewählte Unterbringung am meisten den natürlichen Verhältnissen zu entsprechen.
Die Aggregataria sind Gregarinen mit agamer Vermehrung ähnlich den Schizogregarinen, die Stadien der agamen Vermehrung veranlaßten frühere Untersucher, sie zu den Gymnosporeen zu stellen. [S. 857]Sie unterscheiden sich von sämtlichen übrigen Gregarinen durch das vollkommene Fehlen einer Syzygienbildung.
Die Gametenbildung erfolgt in räumlich voneinander getrennten Individuen, welche von keiner Cystenhülle umgeben sind.
Schizogonie und Sporogonie erfolgen in verschiedenen Tieren: mit dem Generationswechsel ist Wirtswechsel verbunden. Die Schizogonie geht in Crustaceen (Krabben) vor sich, die Sporogonie in Tintenfischen. Die jungen Agameten entwickeln sich im Darmepithel der letzteren zu männlichen und weiblichen Individuen, aus denen die Gameten entstehen. Die Befruchtung der kugligen Makrogameten (vgl. Fig. 811 A) durch die langen, bandförmigen, zweigeißeligen Mikrogameten (Fig. 809 B) ist noch nicht beobachtet. Die Zygote wandelt sich in eine Spore, welche 3–24 Sporozoiten enthalten kann (Fig. 811 C). Ehe man den Zusammenhang des Generationswechsels erkannt hatte, stellte man die Gametocysten der Aggregaten, welche man für Vertreter besonderer Gattungen hielt, zu den Coccidien.
Gattung: Aggregata Frenzel.
|
1885.
|
Aggregata Frenzel, Ueber
einige in Seetieren lebende Gregarinen. In: Arch. f. mikr. Anat. Vol. 24.
|
|
1875.
|
Benedenia Aimé Schneider, in:
Arch. Zool. expér. Vol. 4.
|
|
1883.
|
Klossia Aimé Schneider.
|
|
1900.
|
Légeria Blanchard, Les
coccidies et leur rôle pathogène.
|
|
1902.
|
Eucoccidium Lühe, Ueber
Geltung und Bedeutung der Gattungsnamen Eimeria und Coccidium. In:
Centr. f. Bakt. u. Paras. Abt. I. Orig. Vol. 31. p. 771.
|
|
1903.
|
Légerina Jacquemet, Sur la
systématique des Coccidies des Céphalopodes. In: Arch. f. Protistenk.
Vol. 2.
|
|
1908.
|
Aggregata Moroff, Die in den
Cephalopoden vorkommenden Aggregata-Arten etc. Ibid. Vol. 11. p. 1.
|
|
1908.
|
Aggregata Léger et
Duboscq, L’évolution schizogonique de Aggregata
Eberthi. Ibid. Vol. 12. p. 44.
|
Die zahlreichen Arten der Gattung kommen als wirtswechselnde Parasiten bei dekapoden Krebsen (Arten von Carcinus, Portunus, Pinnotheres, Eupagurus) und bei Tintenfischen (Arten von Octopus, Sepia usw.) vor. Die Cysten, welche aus dem Darm der letzteren herausgefallen sind, werden mit Detritus usw. von den Krebsen gefressen. In ihrem Darm öffnen sich unter dem Einfluß der Darmsäfte die Cysten, die Sporozoiten kriechen aus, durchbohren die Darmwand bis zur subepithelialen Schicht und wachsen dort gewaltig heran. Die Cysten erinnern nicht nur durch die Vorwölbung in die Leibeshöhle, sondern auch durch die im Innern vor sich gehenden Teilungsvorgänge (welche hier allerdings progam sind) an die Cysten der Plasmodien im Darm der Stechmücken.
Durch eigenartige Kernteilungsvorgänge wird die Gregarine vielkernig und zerfällt dabei in größere Partien; die Kerne ordnen sich an der Oberfläche dieser Partien an, umgeben sich mit Plasma, und während große Restkörper zurückbleiben, strecken sich die jungen Individuen in die Länge, so daß ein ganz ähnliches Bild entsteht, wie in den Plasmodiencysten bei der Sporozoitenbildung (Fig. 807 und 808).
Die räuberischen Cephalopoden verfolgen und fressen die Krabben. So können die Aggregaten, ohne ins Wasser geraten zu sein, einen neuen Wirt infizieren; sie können also ähnlich wie die Hämosporidien einer schützenden Cystenhülle entbehren.
[S. 858]
Die jungen Keime bohren sich im Tintenfisch in die Darmwand ein und gelangen meist in einer Zelle der Submucosa zur Ruhe. Dort wachsen die Individuen heran und erfahren eine geschlechtliche Differenzierung. Sie verhalten sich, abgesehen davon, daß sie nicht in einer gemeinsamen Cyste vereinigt sind, wie Syzygiten; die weiblichen Individuen bilden an ihrer Oberfläche um die großen Restkörper herum zahlreiche Makrogameten, die männlichen Mikrogameten. Die von Moroff genauer untersuchten Vorgänge im Kern und Zellplasma sind von größtem cytologischen Interesse.
Die großen zweigeißeligen Mikrogameten müssen die Makrogameten aufsuchen und befruchten, Vorgänge, welche bisher noch nicht untersucht sind. Aus den Zygoten entwickelt sich je eine Spore mit einer bei den Sepiaparasiten 3–4, bei den Octopusparasiten [S. 859] 8–24 betragenden Zahl von Sporozoiten. Letztere schlüpfen nur aus, wenn sie mit dem Kot der Cephalopoden in den Darm geeigneter [S. 860]Crustaceen geraten. Während sich zahlreiche Arten in den wenigen untersuchten Cephalopodenarten vereinigt fanden, sind die in den Crustaceen vorkommenden Stadien der Schizogonie an eine viel größere Zahl von spezifischen Wirten gebunden.
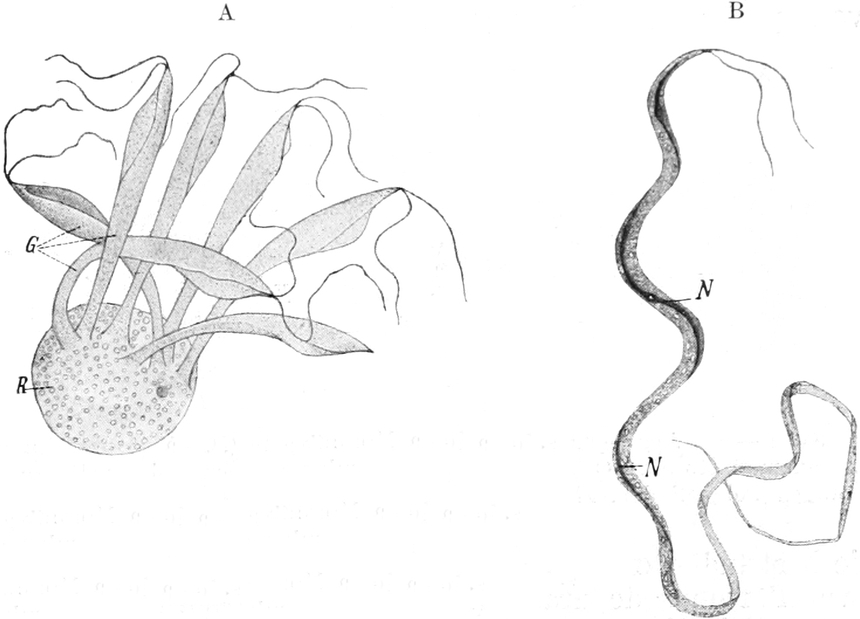
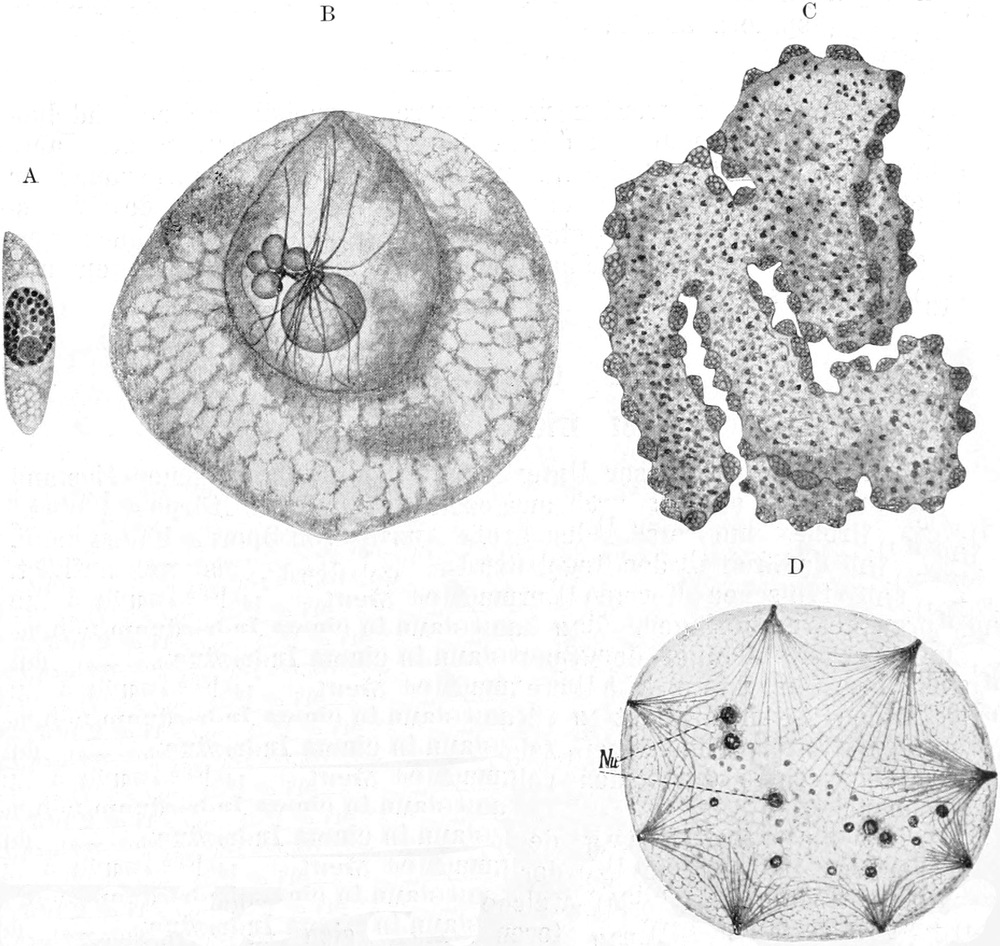
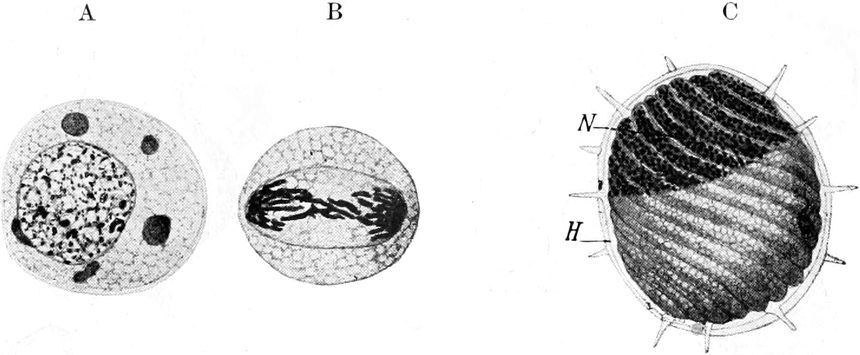
Die beststudierten Arten sind Aggregata Eberthi (Labbé) aus dem Darm von Portunus depurator (Leach) und P. armatus (Leach), sowie von Sepia officinalis L., ferner A. octopiana Ai. Schn., A. Jacquemeti Moroff, A. spinosa Moroff.
Die Aggregaten werden wegen ihrer morphologischen und biologischen Besonderheiten in der Protozoenliteratur der nächsten Jahre sicher eine besondere Rolle zu spielen haben. Von ganz besonderem Interesse ist die Tatsache, daß bei ihnen wirklich durch den Wirtswechsel der Verlust der Cystenhüllen der agamen Generationen veranlaßt ist, wie man es früher schon für die Malariaparasiten und ihre Verwandten annahm.
II. Unterklasse.
Neosporidia
Schaudinn.
Die Sporozoen dieser Unterklasse sind im erwachsenen Zustand vielkernig; sie sind dadurch ausgezeichnet, daß ihr Körper, je nach seiner Größe, eine verschieden große Anzahl von Sporen bilden kann, ohne daß dadurch in der Regel das Individuum zu existieren aufhört. Bei den typischen Formen vermag es weiterzuwachsen und neue Sporen hervorzubringen. Man kann dann in einem Individuum nebeneinander alle Stadien der Sporenbildung finden. Doch verwischen sich diese Charaktere, je höhere Stufen des Parasitismus von den betreffenden Arten erreicht werden, und die am besten angepaßten Formen, Gewebeschmarotzer, zeigen nicht selten das Ende einer Entwicklungsperiode durch den vollständigen Zerfall in Sporen gekennzeichnet.
Die Sporenbildung der Neosporidien ist charakteristisch: sie erfolgt indirekt, indem der Körper zunächst eine Anzahl von Pansporoblasten bildet, welche ihrerseits erst wieder in Sporoblasten zerfallen; diese letzteren wandeln sich durch Ausscheidung [S. 861]einer Hülle und sonstige komplizierte Vorgänge in die Sporen um. Jede Spore enthält nur einen Keim.
Ich betrachte die Neosporidien als selbständig entstandene Gruppe, welche mit den Telosporidien nicht in engster Verwandtschaft steht. Daher ist es auch nicht zulässig, die nämlichen Ausdrücke für die einzelnen Stadien des Wachstums und der Sporenbildung bei beiden Unterklassen anzuwenden; ganz abgesehen davon, daß der gegenwärtige Stand unserer Kenntnisse uns auch den Versuch einer Homologisierung verbietet.
Die Neosporidien sind überhaupt immer noch weniger genau bekannt als die Telosporidien.
Die vegetativen Zustände der Neosporidien können je nach der Lebensweise ein sehr verschiedenartiges Bild darbieten; infolgedessen lassen sie sich nicht allgemein darstellen, es kann dies erst bei den einzelnen Ordnungen und Unterordnungen geschehen.
Wir teilen die Neosporidien in folgende Ordnungen ein:
1. Die Sporen entstehen in der Zahl von zwei bis vielen in einem Pansporoblasten und besitzen eine oder mehrere Polkapseln.
2. In einem Pansporoblasten entstehen zahlreiche Sporen, wahrscheinlich ohne Polkapseln. Parasiten von landbewohnenden Wirbeltieren.
Zu ihnen gesellen sich noch eine Anzahl kleinerer Abteilungen, welche ebenfalls keine Polkapseln besitzen. Sie berühren sich zum Teil innig mit pflanzlichen Parasiten, und für manche derselben ist es vorläufig nicht zu entscheiden, ob wir sie für Tiere oder Pflanzen halten müssen.
Ich führe einige derselben, welche von mehreren Autoren den Neosporidien zugerechnet werden, anhangsweise an, da sie sich im Parasitismus den Neosporidien anschließen. Meist handelt es sich um seltene, vereinzelt gefundene Formen, welche bisher ungenügend beschrieben sind. Doch sind manche Gruppen, wie die Haplosporidien und Exosporidien, schon relativ gut untersucht.
I. Ordnung.
Cnidosporidia Doflein.
(Myxosporidia + Microsporidia aut. + Actinomyxidea.)
In dieser Ordnung sind alle jene Neosporidien vereinigt, deren Sporen von klappenförmigen Schalen umhüllt sind und im Innern, außer dem Keimling, eine oder mehrere Polkapseln beherbergen. Die Polkapseln erinnern in ihrem Bau sehr an die Nesselkapseln der Cölenteraten. Sie bestehen aus einem etwa birnförmigen Körperchen, welches am verschmälerten Ende in einen langen, hohlen (?) Faden verlängert ist. Dieser Faden ist in das Innere der Kapseln handschuhfingerartig eingestülpt und an der Wand derselben in Spiraltouren aufgewickelt (Fig. 812, 815 u. 820). Bei der Einwirkung gewisser Reagentien, besonders im Darmsafte des infizierenden Wirts, werden die Fäden der Polkapseln ausgeschnellt, und auf diese Weise wird die Spore an der Darmwand des Wirts fixiert, wo dann der Keim auswandert, um wahrscheinlich das Darmepithel des Wirts zu durchdringen.
[S. 862]
Die Cnidosporidien können im erwachsenen Zustand ein sehr verschiedenartiges Aussehen darbieten, je nach den Organsystemen, welche sie in ihrem Wirt bewohnen. Wir können in dieser Beziehung zwei große Kategorien unterscheiden, welche zwar durch Uebergänge verbunden sind, in der Regel sich aber scharf unterscheiden lassen.
Die eine derselben besteht aus denjenigen Formen, welche in Hohlräumen im Körper der Wirte, besonders in flüssigkeiterfüllten hohlen Organen, z. B. Gallen- und Harnblase, vorkommen. Diese Arten sind durch eine relativ hohe Organisation ausgezeichnet, sie bewegen sich mit Hilfe von Pseudopodien; dabei kann die Hauptmasse ihres Körpers eine konstante Form beibehalten, oder der ganze Körper bewegt sich amöboid. Bei ihnen sind alle Formen von Pseudopodien vertreten, fadenförmige, verästelte und lappenförmige.
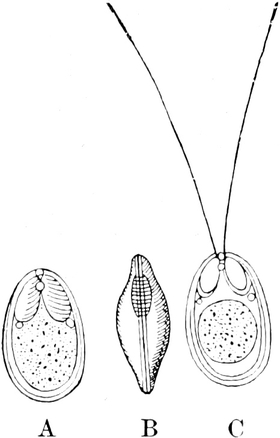
Die zweite Gruppe wird von den Arten gebildet, welche im Gewebe schmarotzen. In der Jugend sind natürlich auch alle diese Arten beweglich, aber mit zunehmendem Alter verlieren sie meist die Beweglichkeit mehr oder weniger vollständig. Im Gewebe können sie in dreierlei Form vorkommen:
- 1) in Cysten eingeschlossen,
- 2) im Zustand der sog. „diffusen Infiltration“,
- 3) als Zellparasiten.
Die Cysten bestehen meist zum größten Teil aus konzentrischen Schichten von Bindegewebe des Wirts; doch soll bisweilen die innerste Schicht eine Abscheidung des Parasiten sein.
Unter diffuser Infiltration versteht man einen intercellulären Parasitismus. Man findet bei demselben die Zellen des Wirtsgewebes auseinander gedrängt und die Lücken mit den Parasiten ausgefüllt, so daß auf Schnitten Zellen und Zellstränge des Wirts mit Einzelindividuen des Parasiten und Nestern von solchen bunt durcheinander gewürfelt sind. Dabei leidet in den Anfangsstadien das Gewebe scheinbar nicht erheblich. Ein Organ kann schon stark mit den Parasiten infiltriert sein, ohne daß entzündliche Prozesse oder Wucherungen eintreten, und vielfach funktioniert es auch weiter. Die Giftwirkung der Cnidosporidien auf ihre Wirte scheint nicht sehr erheblich zu sein. Denn oft sehen wir die von ihnen befallenen Tiere mit vollkommen durchseuchten Geweben oder mit relativ kolossalen Cysten weiterleben und die meisten Funktionen des Körpers ungestört ausüben, bis eine zu weitgehende Zerstörung Krankheit und Tod verursacht.
Die Zellinfektion, welche für die Jugendstadien sämtlicher Cnidosporidien wahrscheinlich ist, ist bei manchen Formen die dauernde Art des Parasitismus. Bei denselben verhält sich das Plasma des [S. 863]Parasiten zu dem des Wirts ähnlich, wie wir es bei Plasmodiophora brassicae S. 674 kennen lernten. Die betreffenden Arten sind allerdings meist so klein, daß es sehr schwer fällt, Details zu beobachten.
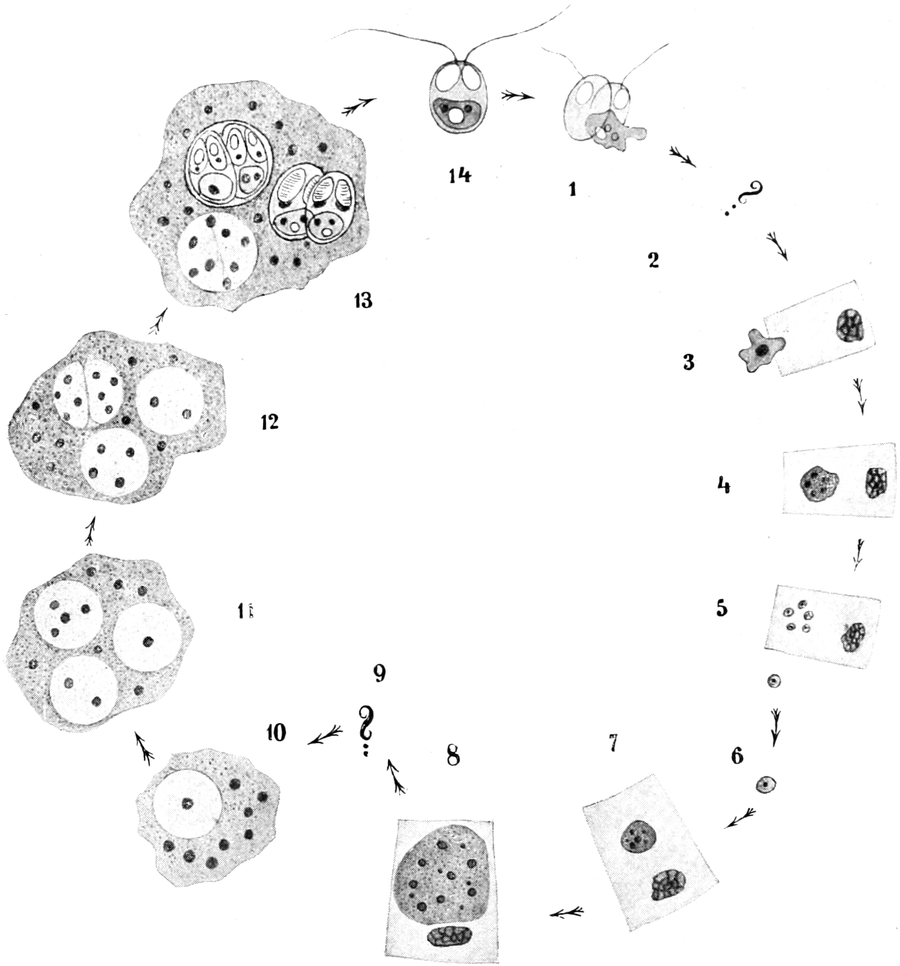
Wir betrachten als Beispiel für den Entwicklungskreis eines Cnidosporids denjenigen einer Myxobolusart, wobei wir jedoch die einzelnen Stadien verschiedener Arten kombinieren müssen, da keine Art so genau erforscht ist, daß wir alle Stadien kennen. Auch so bleibt noch manches hypothetisch.
Aus der Spore, welche sich unter dem Einfluß des Darmsaftes des spezifischen Wirts öffnet, kriecht ein amöboider Keim aus [S. 864](Fig. 813, 1). Derselbe dringt wahrscheinlich durch die Darmwand hindurch und gerät in den Kreislauf des Wirtes; von dem Blut werden solche Keime nun zwar durch alle Organe getragen, lassen sich aber mit Vorliebe in gewissen Organen nieder: in Kiemen, Leber, Niere und Muskeln. Es ist bemerkenswert, daß dies gerade diejenigen Organsysteme sind, welche von besonders feinen Kapillarnetzen durchzogen werden.
In diesen Organen dringt der junge Keim nach Doflein in eine Zelle ein (Fig. 813, 3) wo er nach kurzem Wachstum sich durch multiple Teilung vermehrt (Fig. 813, 5). (Ob eine solche bei allen Cnidosporidien vorkommt, ist fraglich.) Die Teilsprößlinge vermitteln die multiplikative Fortpflanzung; sie dringen in neue Zellen ein (Fig. 813, 6 und 7) und wachsen daselbst zu vielkernigen Gebilden heran, welche bald aus den Zellen herausfallen und schon frühzeitig Sporen zu bilden anfangen (Fig. 813, 10-13) und damit zur propagativen Fortpflanzung schreiten.
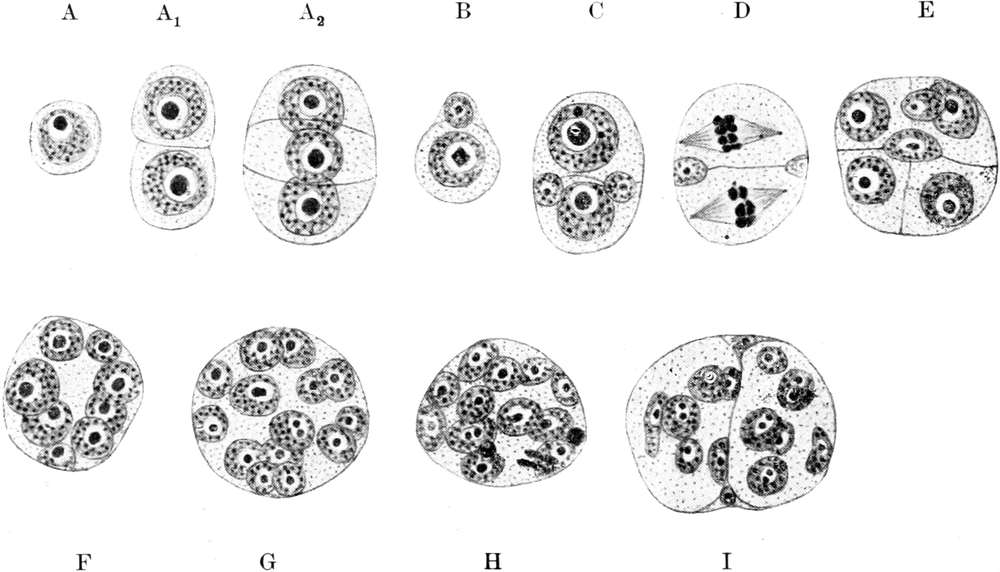
Die Sporenbildung geht in folgender Weise vor sich. In dem vielkernigen Plasma des Cnidosporids isoliert sich um einen der Kerne ein Teil des Plasmas durch die Entstehung einer Grenzzone, einer „Lücke“. Es ist dies ein sehr merkwürdiger Vorgang, eine Art innerer Knospung (Fig. 813, 10). Aus solchen Plasmaportionen entstehen durch einen komplizierten Prozeß die Sporen.
Gleichzeitig oder danach bilden sich bei den hier als Beispiel behandelten Formen noch zahlreiche derartige abgegrenzte Plasmaportionen, daher können sich im Plasma des noch wachsenden Cnidosporids alle Stadien der Sporenbildung nebeneinander vorfinden (Fig. 813, 11–13). Als Pansporoblasten bezeichnen wir mit einem [S. 865]in der Literatur allgemein gebräuchlichen Ausdruck diese Plasmaportionen, welche mehrere Sporoblasten und fernerhin mehrere Sporen aus sich hervorgehen lassen. Damit sollen sie vorläufig von den Sporonten der Telosporidia unterschieden werden.
Solche Pansporoblasten können nach Keysselitz noch Vermehrungsvorgänge durchmachen (vgl. Fig. 814 A–A2); man unterscheidet dann Pansporoblasten 1. und 2. Ordnung.
Die späteren Vorgänge, welche zur Bildung der Sporen führen, sind in der neueren Zeit von mehreren Untersuchern geschildert worden (Schröder, Keysselitz, Mercier, Awerinzew, Auerbach u. a.). Ihre Arbeiten haben unsere Kenntnisse in manchen Punkten sehr vermehrt, aber das Problem der Fortpflanzung, speziell der sexuellen Vorgänge, bei den Cnidosporidien noch nicht vollkommen geklärt. Dies ist bei den Schwierigkeiten, welche die Kleinheit der Elemente, die langsame Entwicklung und die eigenartige Lagerung der Parasiten im Wirt mit sich bringen, wohl zu begreifen. Und da man bei der Untersuchung meist auf die Kombination gefärbter Präparate angewiesen ist, so ist es begreiflich, daß jeder der Autoren eine von den anderen abweichende Darstellung der Entwicklung gibt.
Ich hatte in der 1. Auflage dieses Buches in dem Schema der Entwicklung der Myxosporidien zwei Stellen angegeben (Fig. 813, 2 und 9), an denen hypothetisch Befruchtungsvorgänge für möglich erklärt wurden. Für beide Stellen resp. ihre Nachbarschaft in dem Zeugungskreis sind derartige Vorgänge angegeben worden, deren Deutung allerdings noch Zweifeln begegnen kann.
Das Plasma eines Pansporoblasten[48] zeichnet sich durch größere Dichtigkeit und dementsprechend intensivere Farbspeicherung im gefärbten Präparat vor dem umgebenden Plasma aus.
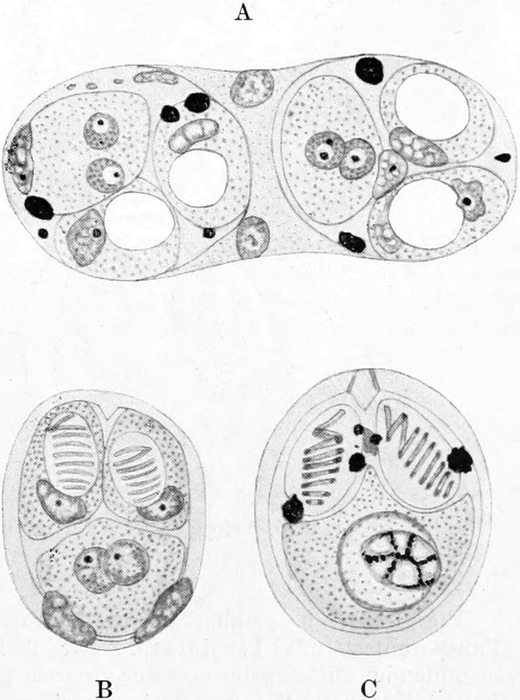
Durch Kernvermehrung wird er nun zunächst vielkernig; die Zahl der entstehenden Kerne ist verschieden nach den Familien der Cnidosporidien. Für viele der Myxosporidien ist die Zahl von 14 Kernen typisch. Vielfach lassen sich, wenigstens zunächst, um die einzelnen Kerne abgegrenzte Plasmaportionen erkennen, später ist meist eine scheinbar einheitliche Plasmamasse vorhanden.
Sie zerfällt in zwei Partien (Fig. 814 I), welche je 6 Kerne umschließen, während zwei als „Restkerne“ oder richtiger „Pansporoblastenkerne“ außerhalb bleiben und im Lauf der weiteren Entwicklung allmählich zugrunde gehen. Die beiden in dem Pansporoblasten [S. 866]entstandenen Plasmamassen stellen die Sporoblasten dar, aus deren jedem je eine Spore hervorgeht.
In jedem der Sporoblasten sondert sich nun wieder das Plasma in verschiedene Portionen, wobei die 6 Kerne verschiedene Schicksale haben.
Zwei der Kerne, umgeben von dünnen Plasmalagen, welche sich an der Oberfläche des Sporoblasten abspalten und die Schalen der Spore produzieren, sind die Schalenbildungskerne. Je einer entspricht einer der Schalenklappen der fertigen Spore.
Um zwei weitere sondert sich je eine ovale Portion Plasma ab, welche eine Polkapsel produziert; wir bezeichnen sie als die beiden Polkapselbildungskerne. Im Innern der Plasmaportion bildet sich eine Vakuole, in welcher sich ein spiral aufgewundener hohler Schlauch, der Polfaden, entwickelt.
[S. 867]
Die zwei letzten Kerne sind in derjenigen Plasmaportion eingeschlossen, welche den Amöboidkeim darstellt, denjenigen Bestandteil der Spore, welcher die Infektion neuer Wirte vermittelt und damit der propagativen Fortpflanzung dient. Für manche Formen (vgl. Sphaeromyxa, Fig. 816 b) wird auch die Abstoßung von rasch zugrunde gehenden Reduktionskernen durch die Kerne des Amöboidkeimes angegeben.
Während man früher annahm, daß der Amöboidkeim zuerst einkernig sei und erst sekundär zweikernig werde, berichten neuere Untersucher übereinstimmend, daß er aus dem Sporoblasten zweikernig übernommen werde, und daß die beiden Kerne nachträglich zu einem verschmelzen. Es wird nun angenommen, daß diese Verschmelzung den Abschluß eines geschlechtlichen Vorganges darstelle, dessen Vorbereitung lange vorher begonnen habe und von den verschiedenen Autoren verschieden geschildert wird.
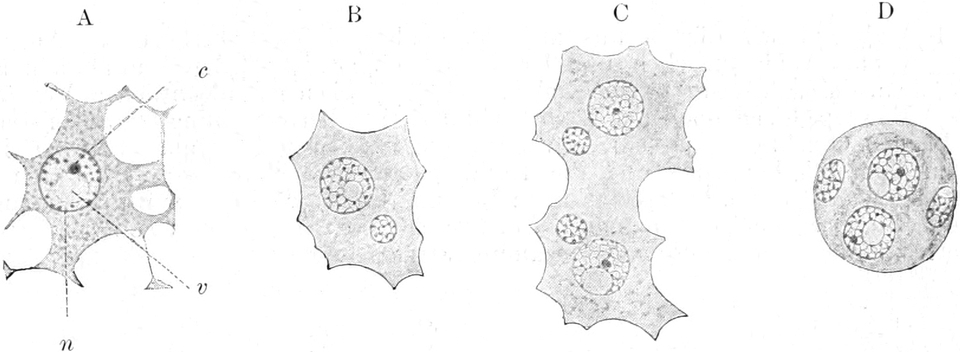
Die meisten Autoren stimmen jetzt in der Darstellung folgender Vorgänge überein:
Im vielkernigen Protoplasma des Myxosporids sondern sich die Pansporoblasten oder Gametoblasten in der oben geschilderten Weise als einkernige Plasmaportionen — zellengleiche Bildungen — ab (Fig. 817 A). Sie werden durch Kernteilung zweikernig. Der eine Kern kann kleiner sein als der andere. Je zwei solche zweikernige Gametoblasten verschmelzen nun zu einem vierkernigen Pansporoblasten (Fig. 817 C). Die kleinen Kerne werden nun zu Hüllkernen resp. Pansporoblastenkernen. Die anderen Kerne machen lebhafte Vermehrungsvorgänge durch, in deren Verlauf die Pansporoblasten 14-kernig werden. Dann tritt die oben angegebene Sonderung in die beiden 6-kernigen Sporenanlagen ein, deren Kerne sich differenzieren, so daß zuletzt im Amöboidkeim 2 Gametenkerne übrig sind, während die übrigen Kerne resp. ihr Plasma zu Hilfsapparaten der Spore verbraucht wurden.
In der reifen Spore verschmelzen die beiden Kerne des Amöboidkeimes; es kommt auch vor, daß die Verschmelzung erst nach dem Auskriechen des Amöboidkeimes im neuen Wirt stattfindet (so bei Myxidium bergense nach Auerbach).
Nach dieser Darstellung wäre die Befruchtung bei den Myxosporidien ein automiktischer Vorgang (vgl. S. 206). Wenn sich aber die Angaben Auerbachs bestätigen, so geht im Entwicklungszyklus ein Plasmogamievorgang voraus, welcher die Befruchtung zu einem Vorgang der Amphimixis stempelt. Nach diesem Autor dringen nämlich die jungen einkernigen Amöboidkeime von Myxidium bergense Auerb. in die Epithelzellen der Gallenblase von Gadus virens ein. Von dort wandern sie in das Lumen der Gallenblase über. Daselbst vermehren sie sich durch Teilung. Später legen sich zwei gleich große Keime aneinander. Der Kern des einen wird durch eigenartige Vorgänge auf die Hälfte seiner Größe reduziert, und es wird mit [S. 868]der einen Hälfte des Chromatins auch eine Portion Plasma abgestoßen. Nach der Verschmelzung der beiden Keime enthält nun das Produkt zwei Kerne, einen großen und einen kleinen, welche nicht miteinander verschmelzen, sondern beim Wachstum des Myxosporids sich durch Teilung unabhängig voneinander vermehren. Auf sie sind dann die stets in einem Myxosporid vorhandenen verschieden großen Kerne zurückzuführen.
Viele der Angaben anderer Autoren, so von Mercier, Awerinzew u. a. weisen ebenfalls auf eine Vereinigung von eventuell sexuell differenzierten Kernen in einem Pansporoblasten hin.
Ich glaube, wir dürfen uns nicht verhehlen, daß die vorliegenden Angaben noch voll von Widersprüchen und Unklarheiten sind. Es scheint mir nicht ausgeschlossen, daß alle bisherigen Angaben die eigentlichen geschlechtlichen Vorgänge bei den Myxosporidien noch gar nicht berühren. Die Untersuchung der außerordentlich kleinen Objekte ist ja sehr schwierig; die Stadien müssen aus den toten Präparaten kombiniert werden und die Kombination wird sehr erschwert durch die an Metazoen erinnernde Komplikation in Bau und in der Bildung der Fortpflanzungskörper. Sind ja doch bei manchen Formen die Sporen aus wohl voneinander gesonderten Zellen in einheitlichem Zusammenwirken aufgebaut.
[S. 869]
Für einige Formen wird auch angegeben, daß sie nur je eine Spore in einem als isolierter Sporoblast aufzufassenden Gebilde entwickeln, welches sich genau so verhält wie die Sporoblasten, die sonst zu zweien in einem Pansporoblasten vereinigt sind (Ceratomyxa drepanopsettae Awerinzew, Chloromyxum cristatum Léger).
Manche Formen bilden bei diesen Prozessen nur einige Sporen, andere bis zu ungeheuren Mengen, welche dann in umfangreichen Cysten beieinander liegen und meist durch den Tod ihrer Wirte ins Freie gelangen.
Da jede einzelne Spore eine ziemlich widerstandsfähige Schale bildet, so können sie mancherlei Unbilden widerstehen. Geraten sie jedoch in den Darm ihres Wirts, so werden sofort die Fäden der Polkapseln ausgestoßen (Fig. 813, 14), und die Spore so wahrscheinlich an die Wand des Darmes angeheftet. Die Schale der Spore fällt meist in zwei Hälften auseinander, der Amöboidkeim schlüpft aus (Fig. 813, 1).
Dann muß er, um seinen definitiven Sitz im Wirtsorganismus zu erreichen, eine Wanderung unternehmen. Während derselben oder im Anschluß an dieselbe erfolgt die oben erwähnte multiplikative Fortpflanzung.
In manchen Punkten weicht von der hier gegebenen Schilderung die Entwicklung der hoch differenzierten Actinomyxideen ab (s. u. S. 912).
Wir teilen die Cnidosporidia auf Grund der Sporenmorphologie in folgende Unterordnungen:
1. Im Pansporoblasten entstehen immer (1–)2 Sporen mit 2–5 Polkapseln, welch letztere im frischen Zustand sichtbar sind:
2. Im Pansporoblasten entstehen 4, 8 oder viele Sporen mit einer Polkapsel, welche meist erst nach Behandlung mit Reagentien sichtbar wird
3. Das ganze Tier besteht bei der Sporulation aus einer zweikernigen Hülle, welche 8 Sporen umschließt: diese besitzen 3 in frischem Zustand deutliche Polkapseln und enthalten entweder zahlreiche einkernige Amöboidkeime oder eine vielkernige Masse:
1. Unterordnung.
Myxosporidia Bütschli.
Die Form der Sporen ist eine sehr verschiedenartige und für die einzelnen Gattungen charakteristisch. Um sie zu beschreiben, ist es notwendig, eine bestimmte Orientierungsweise durchzuführen, wobei wir Thélohan folgen. Die Spore ist von zwei schalenartigen Klappen umhüllt und besitzt mehrere Polkapseln. Man orientiert nun die Spore folgendermaßen: Die Polkapseln bezeichnen das Vorderende der Spore bei einer Art, wie Myxobolus z. B. (Fig. 820). Die Ebene der Naht zwischen beiden Schalen ist senkrecht zur Unterlage zu orientieren, so daß wir also von einer rechten und linken Schale sprechen, nicht von einer oberen und einer unteren (Fig. 820 B).
Von diesem Grundtypus lassen sich alle Haupttypen der Myxosporidiensporen ableiten; die verschiedenen Formen entstehen, indem [S. 870]bald die eine, bald die andere Achse sich verlängert oder sich verkürzt, oder der Zwischenraum zwischen den Polkapseln sich vergrößert. Weitere Mannigfaltigkeiten werden durch Skulptierung der Oberfläche oder durch Anhangsgebilde geschaffen. Die langen Fortsätze bei manchen Sporen werden von Doflein als Schwebevorrichtungen aufgefaßt, welche die Verbreitungsfähigkeit der Art erhöhen (vgl. auch unten bei den Actinomyxidien).
Bei den Formen, welche in hohlen Organen der Wirte vorkommen, ist eine multiplikative Fortpflanzung durch Zerfall der vielkernigen Tiere in vielkernige Nachkommen nachgewiesen worden: Plasmotomie. Es kommt sowohl einfache als auch multiple Plasmotomie vor (s. auch Fig. 830 u. 827 C), letztere ist allerdings bestritten worden.
Die Myxosporidien sind ausschließlich Parasiten von Fischen und einigen Reptilien und Amphibien, welche wenigstens teilweise im Wasser leben.
Die höher organisierten Formen kommen in der Gallenblase, der Harnblase und den Nierenkanälchen vor, die Gewebeschmarotzer bewohnen alle Gewebe ihrer Wirte, nur im Hoden sind sie noch nicht gefunden worden. Bemerkenswert ist, daß kein einziges Myxosporid als spezifischer Parasit des Darmlumens bekannt ist.
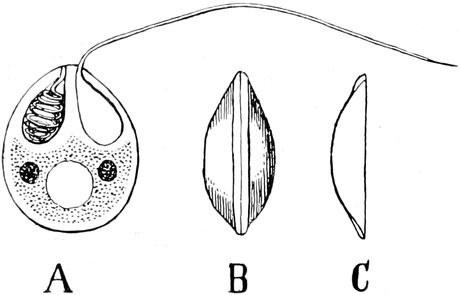
Eine große wirtschaftliche Bedeutung haben die Myxosporidien dadurch erhalten, daß mehrere Arten als gefährliche Krankheitserreger bei Nutzfischen vorkommen. Die von ihnen hervorgerufenen Epidemien sind zum Teil sehr verheerend gewesen.
Wir teilen die Myxosporidien auf Grund der Zahl der Pansporoblasten und des Baues der Sporen in folgende Legionen.
1. Ein Individuum enthält nur einen Pansporoblasten und geht nach der Sporenreife zugrunde
2. Ein Individuum enthält zahlreiche Pansporoblasten, welche allmählich während des Wachstums entstehen und heranreifen:
Die Eigenschaft gewisser polysporen Formen, sowohl in großen Individuen aufzutreten, welche sehr zahlreiche Sporen erzeugen, als auch unter gewissen Umständen nur zu einer geringen Größe heranzuwachsen und dann nach Erzeugung von nur wenigen (oft nur 2–4) Sporen zugrunde zu gehen, weist darauf hin, daß die disporen Formen [S. 871]die ursprünglicheren sind, aus denen die polysporen sich durch unvollständige Teilung ableiten lassen.
1. Legion.
Disporea Doflein.
Die hierher gehörigen Formen sind alle Bewohner von Körperhöhlen, meist der Gallenblase. Sie sind amöboid beweglich, oft von keulenförmiger oder langovaler Form und dann mit fadenförmigen Pseudopodien versehen.
Die Bewohner der Gallenblasen sind meist durch Aufnahme zahlreicher Gallentröpfchen in ihr Plasma entsprechend der Farbe dieser Flüssigkeit: gelb, grün, rötlich gefärbt.
In dem Plasma sondert sich nur ein Pansporoblast ab; das Myxosporid erreicht höchstens die Zahl von 10 (oder ob 12?) Kernen. Von diesen gehen 8 (oder 10?) in die Bildung der Sporen auf, während 2 weitere im Plasma des Tiers bleiben, dort, wie es scheint, aber als Restkerne degenerieren, was natürlich auch den Untergang des Individuums nach der Reifung der Spore zur Folge haben muß (s. Fig. 825; vgl. hiermit auch die Organisation der Actinomyxidien).
Disporeen sind bisher nur in Fischen und Fröschen (?) gefunden worden.
Wir kennen bisher nur eine einzige Familie, welche ebenso zu charakterisieren ist, wie die Legion.
Familie: Ceratomyxidae Doflein.
Wir führen 2 Gattungen dieser Familie an, die einzigen, welche bisher als sicher zu ihr gehörig nachgewiesen wurden. Sie enthalten meist sehr kleine Arten mit Sporen, deren längster Durchmesser senkrecht zur Nahtebene steht.
1. Schalenhälften der Spore kurz, abgerundet:
2. Dieselben konisch, in Fortsätze ausgezogen, welche entweder abgestumpft oder zu langen Spitzen verlängert sind:
Gattung: Leptotheca Thél.
Leptotheca agilis Thélohan.
|
1892.
|
Ceratomyxa agilis Thélohan,
in: Compt. rend. Ac. Sci. Paris. Vol. 115. p. 962.
|
|
1895.
|
Leptotheca agilis Thélohan,
in: Bull. Sc. France et Belg. Vol. 26. p. 332.
|
|
1898.
|
Doflein, Zool. Jahrb. Abt.
Anat. Vol. 11. p. 294 ff. etc.
|
Die Gestalt des Tiers ist etwa keulenförmig, vorn abgerundet und nach hinten in ein langes, fadenförmiges Pseudopodium ausgezogen. Sonst werden ebenfalls fadenförmige Pseudopodien nur am Vorderende gebildet (Fig. 822 u. 819 B u. C). Die Art ist ziemlich klein, die größten Individuen messen 85 µ in der Länge und 20–25 µ in der Breite.
Das Entoplasma zeigt gewöhnlich eine gelbe Färbung infolge der zahlreichen Tröpfchen von Galle, welche in ihm aufgenommen sind. In erwachsenem Zustand, vor der Sporulation ist das Tier meist nur zwei- bis vierkernig; während der Sporulation enthält es 10 Kerne.
[S. 872]
Die Sporen sind oval, ein wenig in die Breite gezogen; bei einer Länge von 5–6 µ erreichen sie eine Breite von 6–7 µ (Fig. 823).
Multiplikative Fortpflanzung, geschlechtliche Vorgänge und Infektionsmodus sind noch ganz unbekannt.
Die Art lebt in der Gallenblase von Trygon pastinaca (L.) und von anderen marinen Fischen, wo sie entweder frei in der Galle flottiert oder an dem Epithel der Gallenblase hinkriecht.
Schädliche Folgen für den Wirt hat der Parasit augenscheinlich nicht, obwohl er sich nicht selten in ungeheuren Mengen findet.
Zu erwähnen wären ferner Leptotheca polymorpha Labbé, L. macrospora Auerb.
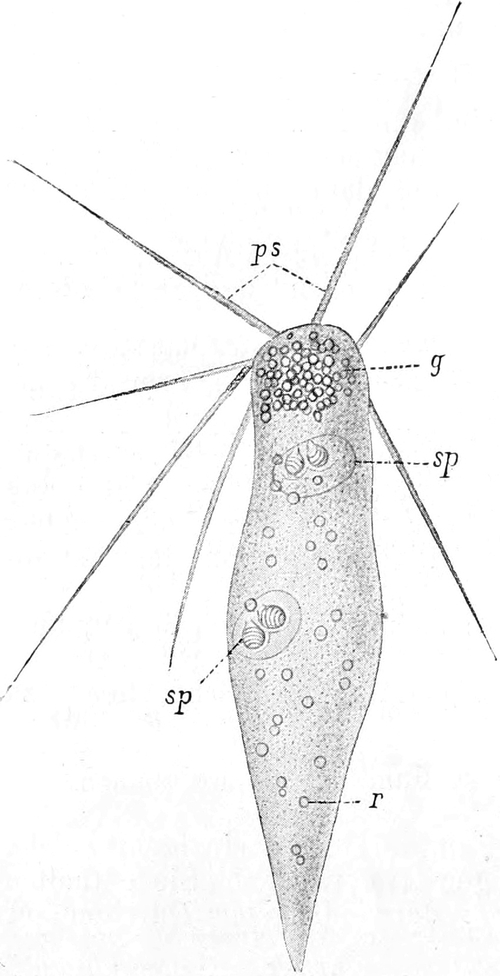
Gattung: Ceratomyxa Thélohan.
1. Ceratomyxa appendiculata Thél.
|
1892.
|
Thélohan in: Compt. rend. Ac.
Sciences Paris. Vol. 115. p. 963.
|
|
1898.
|
Doflein in: Zool. Jahrb. Abt.
Syst. Vol. 11. p. 281.
|
|
1899.
|
Labbé in: Tierreich. Lief. 5.
Sporozoa. p. 91. (Daselbst Literatur.)
|
Das Myxosporid ist polymorph, es kann sowohl kugelförmig als auch langgestreckt und in zahlreiche Lappen zerschlitzt sein (Fig. 824). Die Pseudopodien sind entweder lappig oder fadenförmig, das Protoplasma ist fein granuliert.
Multiplikative Fortpflanzung, geschlechtliche Vorgänge und Infektionsmodus sind unbekannt.
Die Sporen des einzigen Pansporoblasten sind nicht sehr in die Breite gezogen (50 µ), während der Durchmesser in der Nahtebene nur 5–7 µ beträgt (Fig. 825).
Der Parasit bewohnt die Gallenblase von Lophius piscatorius L. und Lophius bedegassa Spin. Er wurde sowohl im Atlantischen Ozean, als auch im Mittelmeer gefunden.
[S. 873]
2. Ceratomyxa inaequalis Dof.
|
1897.
|
Doflein, Zool. Jahrb. Abt.
Anat. Vol. 11. p. 284.
|
Die Gestalt dieser Art ist gewöhnlich keulenförmig; das Plasma ist lebhaft beweglich, Ekto- und Entoplasma sind deutlich voneinander geschieden. Die Färbung ist durch Granulation im Entoplasma gelblichbraun.
Die Pseudopodienbildung ist eine sehr schwache. Das Tier mißt 20–40 µ in der Länge, 5–10 µ in der Breite. Dazu kommt ein Schwanzfortsatz, der 30 µ Länge erreichen kann.
Fig. 825 gibt uns ein Beispiel von der Sporenbildung in einem disporen Myxosporid. Die mit 2 bezeichneten Kerne sind die degenerierenden Restkerne; da außer ihnen keine freien Kerne im Plasma vorkommen, muß das Tier wohl nach der Sporulation zugrunde gehen.
Die Sporen sind sehr durchsichtig; sie sind massiger und gedrungener gebaut, als bei den meisten anderen Arten der Gattung. Die Enden sind ungleichmäßig ausgebildet, indem das eine kolbenförmig angeschwollen ist. Die Spore ist senkrecht zur Nahtebene abgeflacht.
[S. 874]
Die Polkapseln sind, von oben gesehen, kreisrund und sind mit der Sporenwand durch eine Plasma(?)-Brücke verbunden. Die Polfäden sind im frischen Zustand nicht sichtbar.
Die Spore mißt in der Länge 6 µ, in der Breite 31 µ, die Polkapsel hat einen Durchmesser von 2½-3 µ.
Die Art lebt in der Gallenblase von Crenilabras mediterraneus und C. pavo, wo sie oft in sehr großen Mengen als harmloser Schmarotzer vorkommt.
3. Ceratomyxa linospora Dof.
|
1898.
|
Doflein in: Zool. Jahrb. Vol.
11. p. 285.
|
Diese Art führe ich nur an, um die mit außerordentlich feinen Fortsätzen versehenen Sporen zu demonstrieren. Dieselben scheinen besonders zum Schweben geeignet (Fig. 826). Bei einer Länge des Sporenkörpers von 10–12 µ und einer Breite von 5 µ messen die feinen Fortsätze bis zu 20 µ in der Länge, so daß eine Gesamtlänge der Spore von 50 µ resultiert.
4. Ceratomyxa drepanopsettae Awerinzew.
|
1908.
|
Awerinzew, Studien über
parasitische Protozoen. I. Die Sporenbildung bei Ceratomyxa. In: Arch. f.
Protistenk. Vol. 14. 1908. p. 74.
|
Diese Art aus der Gallenblase von Drepanopsetta platessoides hat neuerdings ihrem Entdecker zu sehr interessanten Untersuchungen über die Entstehung der Sporen ohne Pansporoblasten in isolierten Sporoblasten und über die geschlechtlichen Vorgänge das Material geboten (vgl. S. 868).
2. Legion.
Polysporea Doflein.
Diese Gruppe umfaßt die meisten Gattungen der Myxosporidien, sowohl Bewohner der Körperhöhlen als auch echte Gewebeschmarotzer. Es kommen da die verschiedensten Körperformen und Sporenformen vor.
Die beim Wachstum entstehenden, oft sehr großen Individuen können eine große Anzahl von Kernen enthalten, ehe sie zu sporulieren beginnen. Die Sporenbildung geht darin in der Weise vor sich, wie sie oben (S. 864) geschildert wurde. Unterdessen kann das Wachstum des Individuums andauern, doch wird schließlich der ganze Körper bis auf Reste, welche als unbrauchbar zurückbleiben, in Sporen aufgeteilt. Besonders bei cystenbildenden Formen findet man oft nur noch Sporen in der Cyste, während von dem ursprünglich vorhandenen Körperplasma kaum noch Spuren nachweisbar sind (Fig. 840).
Die Zahl der Sporen kann eine ungeheuer große sein, dies gilt besonders für die Gewebeparasiten. Hier kann es vorkommen, daß eine Cyste die Größe eines Hühnereies erreicht; in diesem Fall zählen natürlich die Sporen nach Millionen. Doch haben in [S. 875]manchen solchen Fällen mehrere Individuen zum Zustandekommen der Cyste beigetragen. Die Bewohner der Körperhöhlen sind meist von kleineren Dimensionen; immerhin finden sich Exemplare, welche mehrere hundert Sporen enthalten. In den Gallenblasen findet man manchmal Arten, welche als einheitliche Masse das Endothel überziehen, indem sie in Form einer Hohlkugel eine Blase in der Blase darstellen. — Diese großen Individuen sind jedoch auf die plasmogamische Verschmelzung zahlreicher kleinerer zurückzuführen.
Polysporeen kommen in Fischen, Reptilien und Amphibien und Arthropoden vor. Einige Arten sind die Erreger von verheerenden Fischkrankheiten.
Wir teilen die Legion in mehrere Familien, welche sich folgendermaßen nach dem Bau ihrer Sporen charakterisieren:
1. Familie: Myxidiidae Thélohan em. Doflein.
Die Abgrenzung dieser Familie ist auch nach Ausscheidung der Ceratomyxidae noch keine natürliche; doch muß man eventuell genauere Untersuchungen abwarten, ehe dies nachgeholt werden kann.
Es gibt zwar unter den Myxidiiden sowohl Parasiten der hohlen Organe als auch Gewebeparasiten, aber die letzteren sind ziemlich harmlos, nicht mit den echten Krankheitserregern vergleichbar. Wir behandeln daher nur einige Gattungen in wenigen Arten als Beispiele.
Gattung: Myxidium Bütschli.
Myxidium Lieberkühni Bütschli.
|
1882.
|
Bütschli, in:
Bronn, Klassen und Ord. des Tierreichs. Vol. I.
Protozoa. p. 593.
|
|
1895.
|
Cohn, L., Ueber die
Myxosporidien von Esox lucius und Perca fluviatilis. in: Zool. Jahrb.
Anat. Vol. 9. p. 227.
|
|
1899.
|
Labbé, in: Tierreich. Lief. 5.
Sporozoa. p. 92. (Daselbst Literatur.)
|
|
1902.
|
Laveran und
Mesnil, Sur la multiplication endogène des
Myxosporidies. In: C. R. Soc. Biol. Paris. 2. Mai.
|
Das Myxosporid ist von veränderlicher Form. Ekto- und Entoplasma sind deutlich geschieden; die äußere Zone des letzteren (Cohns Mesoplasma) ist auch nach innen scharf abgegrenzt. Bei älteren Exemplaren ist das Entoplasma von zahlreichen gelben Granulationen, von Fetttröpfchen und Hämatoidinkristallen erfüllt.
Ungeschlechtliche Fortpflanzung durch Bildung zahlreicher Knospen ist angegeben (Fig. 827 C); dieselbe findet bei Exemplaren statt, welche noch keine Sporen gebildet haben. Nach Laveran und Mesnil kommt eine solche nicht vor, sondern nur Teilung kleiner Individuen.
Die älteren Exemplare enthalten sehr zahlreiche Sporen (Fig. 827 D). Dieselben sind spindelförmig mit sehr spitzen Enden, ihre Oberfläche ist längsgestreift; die Polkapseln befinden sich an den beiden Enden (Fig. 827 E, F) die Sporen sind 18–20 µ lang und 5–6 µ breit.
[S. 876]
M. Lieberkühni kommt in der Harnblase des Hechts vor, wo es oft in ungeheueren Mengen die ganze Innenwand überzieht.
Geschlechtliche Vorgänge und Infektionsmodus sind noch ganz unbekannt. Jedenfalls sind die Behauptungen, M. Lieberkühni sei als Gewebeparasit in der Wand der Harnblase gefunden worden, darauf zurückzuführen, daß das Myxosporid oft tief in den Falten des Harnblasenepithels vorkommt: auf Schnitten wird dann eine Lage im Gewebe selbst vorgetäuscht.
Für die Tatsache der Autoinfektion genügt als Erklärung wohl die oben angeführte multiplikative Vermehrungsform; frühere Behauptungen, daß sich die Sporen in der Harnblase selbst öffnen und ihre Amöboidkeime entlassen können, sind wohl als widerlegt zu betrachten.
Hierher gehören ferner: Myxidium inflatum Auerb., M. bergense Auerb., letztere Form, aus der Gallenblase von Gadus virens, wurde auf ihre Entwicklungsgeschichte genauer untersucht.
Gattung: Sphaerospora Thél.
Sphaerospora divergens Thélohan.
|
1895.
|
Thélohan, in: Bull. sci.
France. Belgique. Vol. 26. 1895. p. 339.
|
Diese ziemlich regelmäßig gestaltete Art erreicht in scheiben- oder kugelförmigen Gebilden einen Durchmesser von 60–65 µ auf [S. 877]20–55 µ. Das Ektoplasma ist scharf von dem Entoplasma geschieden; es ist sehr durchsichtig und bildet unter trägen Bewegungen breite lappenförmige Pseudopodien (Fig. 828).
Das Entoplasma ist granuliert, mit Fetttröpfchen und gelben Körnchen erfüllt. Es sind in der Regel nur einige Sporen vorhanden, welche kugelig sind und einen Durchmesser von 10 µ besitzen. Die Sporenschale ist ganz fein gestreift. Die Polkapseln sind in der Nahtebene gelegen und divergieren mit ihren Enden im stumpfen Winkel (Fig. 828).
Die ziemlich seltene und harmlose Art kommt in den Nierenkanälchen von Blennius pholis L. und Crenilabrus melops (L.) vor.
Multiplikative Fortpflanzung, Geschlechtsvorgänge und Infektionsmodus sind noch unbekannt.
Hierher gehört auch die Gattung Sphaeromyxa Thélohan (wahrscheinlich synonym mit Cystodiscus Lutz), welche viele interessante Arten enthält, z. B. die von Schröter genauer untersuchte Sphaeromyxa Sabrazesi Laveran und Mesnil aus der Gallenblase des Seepferdchens (vgl. S. 866); ferner: Zschokkella Auerb. mit eigentümlich hutförmigen Sporen.
2. Familie: Chloromyxidae Thél.
In der einzigen Gattung dieser Familie vereinigt man die Myxosporidien mit vier Polkapseln in der Spore. Im Myxosporidium selbst finden wir die Charaktere der Myxidiiden wieder, auch dieselben Sporenformen kehren wieder, nur daß eine Parallelreihe mit je vier Polkapseln zu jenen Formen mit je zwei Polkapseln existiert. Alle Typen [S. 878]sind zwar noch nicht gefunden worden, es ist aber zu vermuten, daß sie noch sich entdecken lassen werden. Die Einteilung ist aber noch nicht eine natürliche.
Ein Pansporoblast, in welchem ebenfalls je zwei Sporen gebildet werden, enthält also bis zu 18 Kernen, von denen wieder zwei zu Restkernen werden, 16 zur Bildung der beiden Sporen dienen.
Gattung: Chloromyxum Ming.
Die Arten der Gattung Chloromyxum finden sich in Fischen, Amphibien und Insekten.
Wir erwähnen C. mucronatum Gurley und C. dubium Auerb. aus Lota vulgaris Cuv., C. truttae Léger aus Trutta trutta L., C. cristatum Léger aus Tinca vulgaris Cuvier, C. protei Joseph aus dem Grottenolm Proteus anguineus. Bei der letzteren Art sind intracelluläre Jugendstadien von Joseph nachgewiesen worden.
Chloromyxum Leydigi Mingazzini.
|
1890.
|
Mingazzini, in: Boll. Soc.
Napoli. Vol. 4. p. 160.
|
|
1898.
|
Doflein, in: Zool. Jahrb. Abt.
Anat. Vol. 11. p. 310.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 95. (Literatur.)
|
Der Körper des erwachsenen Tieres stellt lappige, unregelmäßige Massen dar; die Pseudopodien sind sehr dünn, oft verästelt und in Büscheln vereinigt. Das Entoplasma ist mit gelben Granulationen erfüllt (Fig. 830 A).
Doflein hat bei jungen Individuen multiplikative Fortpflanzung durch einfache Teilung beobachtet (Fig. 830).
Die erwachsenen Tiere sind vielkernig und bilden zahlreiche Pansporoblasten (Fig. 831).
Die Sporenschalen sind in der Nahtebene zu einer Leiste verbreitert, welche nach vorn einen knopfartigen und nach hinten einen vierseitigen Fortsatz bildet; an dem hinteren entspringen eine Anzahl Fäden (Fig. 832 A u. B). Jede der ovalen Schalenhälften ist parallel zum Hinterrand gerippt; die Rippen stehen leistenförmig vor (Fig. 832 B). Am verschmälerten Ende der Spore finden sich die vier Polkapseln. Die Länge der Sporen beträgt etwa 8 µ.
Das Myxosporid parasitiert in der Gallenblase einer ganzen Reihe von Selachiern und hat eine sehr weite Verbreitung. Es ist ein harmloser Parasit.
[S. 879]
Geschlechtliche Vorgänge und Infektionsmodus sind noch nicht bekannt.
3. Familie: Myxobolidae Thél.
Die wenigen Gattungen dieser Familie sind meist sehr artenreich und enthalten zum größten Teil Gewebeparasiten. Eine ganze Reihe von ihnen sind pathogen, und von zahlreichen anderen ist es möglich, daß sie es unter bestimmten Umständen werden können.
Sie werden entweder als freie Protoplasmamassen in den Nierenkanälchen oder auch im Gewebe des Wirts gefunden, im letzteren Fall entweder als große vereinzelte Körper oder in der Form der diffusen Infiltration, indem das ganze Gewebe von zahlreichen kleinen Individuen durchsetzt ist. Außerdem aber werden sie häufig in Form größerer oder kleinerer Cysten gefunden, d. h. Individuen, welche vom Wirtsgewebe mit einer vielzelligen Cyste umschlossen worden sind. Diese Cysten scheinen aus einem diffus infiltrierten Bezirk hervorzugehen, aber auch durch Wachstum eines einzelnen Individuums entstehen zu können.
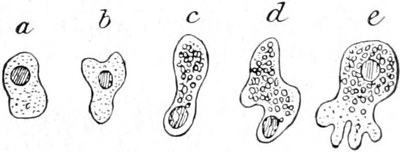
Ich werde im nachfolgenden die Arten so auswählen, daß die verschiedenen Formen des Parasitismus an ihnen erläutert werden können.
Es ist für die Myxoboliden charakteristisch, vielleicht auch für viele andere Cnidosporidien, daß dieselbe Art in ganz verschiedener Weise parasitieren kann; gerade bei den gefährlichen Krankheitserregern läßt sich diese Eigenschaft nachweisen. Es ist dies eine Folge davon, daß die Tiere in jeder Größe zur Sporulation fähig sind. Dieselbe Art kann z. B. in den Muskeln sehr große Cysten bilden, während sie in Niere, Milz, Leber in zahlreichen kleinen Individuen, welche vielleicht nur 2–4 Sporen erzeugen, das Gewebe durchsetzt.
[S. 880]
Die Sporen der Myxoboliden sind in der Nahtebene abgeplattet, am Vorderende befinden sich die zwei birnförmigen Polkapseln; der Amöboidkeim enthält außer den beiden Kernen eine Vakuole, welche mit einer paraglykogenartigen Substanz erfüllt ist; sie färbt sich mit Jod weinrot und ist offenbar ein Reservematerial für den ausgeschlüpften Amöboidkeim (die jodophile Vakuole). Sie läßt sich nach dem Ausschlüpfen desselben im Darmsaft des Wirts in dessen Inneren noch eine Zeitlang sehr genau erkennen (Fig. 833).
Während eine Gattung ohne jodophile Vakuole im Amöboidkeim provisorisch hier eingefügt wird (vgl. Lentospora M. Plehn), werden unter den typischen Myxoboliden mit jodophiler Vakuole nach der Gestalt der Sporen einige sehr nahe untereinander verwandte Gattungen unterschieden:
1. Gattung: Myxobolus Bütschli.
Diese sehr artenreiche Gattung ist besonders in Fischen des Süßwassers weit verbreitet. Während die meisten Arten mehr oder weniger harmlose Gewebeparasiten sind, haben sich einige in den Gewässern der Kulturländer zu gefährlichen Krankheitserregern entwickelt; dabei hat jedenfalls die zunehmende Verunreinigung der Gewässer eine bedeutende Rolle gespielt, indem die Virulenz der Arten in den geschwächten Wirten allmählich zunahm.
Die gefährlichsten Arten kommen in vielen Organsystemen vor, und zwar im Zustand der diffusen Infiltration und als Cysten. Fig. 835 gibt ein Bild der diffusen Infiltration. Wir sehen in der Schwimmblasenwand [S. 881]der Schleie zahlreiche kleine Individuen von Myxobolus ellipsoides, ohne daß zunächst das Gewebe eine Reaktion zeigt (vgl. auch Fig. 846). Die Infektion kann harmlos verlaufen, man findet dann nach einer gewissen Zeit das Gewebe in den Lücken zwischen den Zellen von zahlreichen Sporen des Parasiten durchsetzt. Dieselben sind frei, man findet im ganzen Gewebe keine Myxosporidienkörper mehr, nur hie und da Reste von solchen und von Zellen des Wirts, welche infolge der Anwesenheit der Parasiten degeneriert sind.
In anderen Fällen aber wandelt sich die diffuse Infiltration in eine Cyste um, indem das Wirtsgewebe im Zentrum des Infektionsherdes vollkommen schwindet, die Myxosporidien zusammengedrängt und von außen her durch eine bindegewebige Cyste umhüllt werden, welche der Wirt hervorbringt. Solche Cysten findet man fast nur von Sporen und Degenerationsprodukten erfüllt; die bindegewebige Hülle ist oft sehr kompliziert gebaut, indem sie mehrere kleine Cysten und nachträgliche Vorstöße der Infektion miteinschließt.
Nicht selten kommen auch Mischinfektionen vor, wobei man dann die Sporen verschiedener Arten in einer Cyste oder sonstwie in enger Nachbarschaft finden kann.
Ebenso häufig, besonders in den Kiemen der Fische, finden sich Cysten, welche nur von einem Individuum gebildet werden; man findet solche oft in großer Zahl auf engem Raume, wobei große und kleine nebeneinander liegen (Fig. 836). Auch bei diesen ist der auffälligste Teil der Cyste vom Wirt gebildet; bei manchen Arten verhärtet zwar die äußerste Schicht des Ektoplasmas in eigenartiger Weise, wobei eine merkwürdige radiäre Strichelung entsteht, aber eine eigentliche Cystenhülle wird nicht gebildet.
[S. 882]
Diejenigen Myxobolen, welche den Tod der von ihnen befallenen Wirte herbeiführen, vermögen dies zum Teil durch ihre eigene Wirkung, indem die Größe der gebildeten Tumoren, oder die durch sie herbeigeführten Funktionsstörungen in Organen genügen, um das Tier zu töten; zum Teil aber werden die von den Myxosporidien geschwächten Tiere durch andere Ursachen, z. B. Bakterieninfektionen, vollends getötet.
1. Myxobolus Pfeifferi Thélohan.
|
1895.
|
Thélohan, in: Bull. sci.
France. Belgique. Vol. 26. p. 350.
|
|
1898.
|
Doflein, in: Zool. Jahrb.
Abt. Anat. Vol. 11. p. 339.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 99.
|
|
1908.
|
Keysselitz, Die Entwicklung
von Myxobolus Pfeifferi. I. Teil. In: Arch. f. Protistenk. Vol. 11. p.
252. II. Teil. Ibid. p. 276. (Das. neuere Literatur.)
|
Diese Art tritt in verschiedenen Formen auf. Gewöhnlich wird sie als harmloser Parasit in der Niere gefunden, wo sie eine meist beschränkte diffuse Infiltration hervorruft. Sie findet sich daselbst in kleinen Individuen im Nierenparenchym.
Die kleinen Sporen sind eiförmig; der Nahtrand zeigt einige leichte Falten (Fig. 837). Zwischen den beiden Polkapseln befindet sich ein kleiner dreieckiger Körper.
Die Spore mißt 12 : 10 µ. Geschlechtliche Vorgänge, multiplikative Fortpflanzung und Infektionsmodus sind noch unbekannt.
Die Art schmarotzt in der Barbe (Barbus barbus [L.]) und ist mit derselben in den Stromsystemen von Mitteleuropa überall verbreitet. Sie bietet ein besonderes Interesse als Erzeugerin der
Barbenseuche.
(Vgl. hierzu auch Hofer, Handbuch der
Fischkrankheiten, München 1904.)
Myxobolus Pfeifferi, welcher, sonst ebenso harmlos, wie zahlreiche seiner Verwandten, in den meisten Flüssen die Nieren seines Wirts bewohnt, hat in einigen der stark verunreinigten Flüsse des westlichen Mitteleuropa eine besondere Virulenz erworben. In der Seine, Marne, in Maas, Rhein, Mosel und einigen anderen Nebenflüssen des Rheines ist er als sehr gefährlicher Krankheitserreger bei den Barben aufgetreten, hat Hunderttausende dieser geschätzten [S. 883]Nutzfische getötet und den Bestand derselben dezimiert, an manchen Stellen nahezu ausgerottet.
Der Parasit kommt in fast allen Organen des Wirts vor: im Bindegewebe des Darmes, in der Niere, der Milz, der Leber, dem Ovarium, hat aber seinen primären Sitz in der Muskulatur der Barben. Die Infektion der Muskeln ist ganz besonders charakteristisch für das Bild der Krankheit. In der Muskulatur entstehen nämlich sehr große Geschwulstbildungen, welche über die Oberfläche des Tiers emportreten und dasselbe vollkommen deformieren können (Fig. 838 u. 839). Diese Tumoren können die Größe eines Hühnereies erreichen und übertreffen. In der Regel ist aber der Durchmesser der Tumoren zwischen ½ und 2 cm.
Durch die Infektion werden die Barben matt, sie taumeln im Wasser und suchen die Oberfläche auf.
Meist treten in den Tumoren Bakterien auf; die oberflächlich liegenden durchbrechen oft die Haut, dabei fließt ihr Inhalt, Degenerationsprodukte und Sporen, aus, und es entstehen große kraterförmige Geschwüre.
Die Geschwulstbildung geht von der Infektion einzelner Muskelzellen aus. Inmitten der Muskelzelle wächst ein Myxosporid heran, und es ist bemerkenswert, daß es zwischen den Muskelfibrillen liegen kann, ohne daß die Zelle degeneriert oder daß irgendeine entzündliche Reaktion aufträte. Ja, es kann ein Individuum sogar vollkommen zu Sporen geworden sein, ohne daß an diesem Zustand sich etwas geändert hätte.
Gewöhnlich aber wächst das Myxosporid bis an den Rand der Muskelzelle und erregt dann eine lebhafte Reaktion des umgebenden Gewebes. Dasselbe kann der Fall sein, wenn es von vornherein in einer Intercellularlücke zu wachsen begann. Dann wird es in kurzer Zeit von einer bindegewebigen Cyste eingeschlossen, welche im Muskelgewebe in ähnlicher Weise entsteht, wie eine Trichinenkapsel (Fig. 840).
[S. 884]
Die Dicke der Cyste kann eine sehr verschiedene sein und hängt nicht von dem Durchmesser des Myxosporids ab. Man findet oft ganz kleine Individuen von Cysten eingeschlossen, deren Dicke ihren eigenen Durchmesser übertrifft; umgekehrt haben große Myxosporidien oft sehr dünne Cysten. Es hängt dies offenbar von dem Zustand des Wirts ab.
In mittleren Stadien der Infektion sieht man oft einen großen Teil der Geschwulst von Degenerationsprodukten erfüllt (Fig. 841). Vielfach werden die umgebenden Muskeln zur Wucherung veranlaßt und ebenfalls infiziert. Es entstehen dann kombinierte Geschwülste, wie sie Fig. 842 veranschaulicht.
In den ganz großen Geschwülsten findet man in der Regel nichts mehr von dem Körper der Myxosporidien, sondern alles nur noch mit Sporen erfüllt, welche zu Millionen die Stelle des zerstörten Muskelgewebes einnehmen (Fig. 842).
Nach meinen Beobachtungen, welche mit den praktischen Erfahrungen übereinstimmen, ist im Sommer eine Wachstumsperiode der Parasiten, im Winter dagegen ist dieselbe sistiert. Am Ende des Winters findet man meist nur noch Sporen, welche von sehr starken Cysten umhüllt sind, in den Geweben. Im Sommer dagegen findet ein sehr lebhaftes Wachstum statt; es ist dies die Zeit, in welcher die Fische durch Sauerstoffmangel im Wasser leiden und geschwächt sind.
Aeußerlich sind die erkrankten Tiere, auch wenn die Beulen noch nicht hervortreten, durch Abnahme des Glanzes zu erkennen. Später sind die Anschwellungen mißfarbig; wenn die nußgroßen, kraterförmigen Geschwüre sich gebildet haben, sind sie meist mit einer im Zentrum schwarzen Eiterjauche erfüllt. Da die Muskulatur bei der Krankheit sehr zerstört wird, erscheinen die kranken Barben besonders im Schwanzteil stark abgemagert.
Da die Sporen, welche beim Verfaulen der im Wasser abgestorbenen Fische zu Millionen ins Freie geraten, die Krankheit immer weiter verbreiten müssen, so hat man als prophylaktische Maßregel vor allem das Herausfangen und die Vernichtung (Vergrabung oder Verbrennung) der erkrankten Barben angeraten, auch wenn sie nur einige kleine Tumoren zeigen. Man vergleiche auch die Angaben von Keysselitz in der oben zitierten Arbeit (1908). Dieser Autor [S. 885]fand in den Barben in bestimmten Organsystemen noch 3 Species von Myxobolen (M. squamae Keyss., M. cordis Keyss., M. musculi Keyss.), welche aber nicht pathogen sind.
2. Myxobolus Lintoni Gurley.
|
1893.
|
Gurley, in: Bull. U. S. Fish.
Coram. Vol. 11. p. 414.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. (Daselbst Literatur.)
|
Diese Art kommt in Cysten (?) von 2½-4 und selbst 10 mm Durchmesser vor. Die Cysten (?) sind unregelmäßig gestaltet, pilzartig verzweigt. Der eigentliche Körper des Myxosporids ist noch nicht beobachtet worden, bisher nur jene verzweigten Gebilde, welche mit Sporen und Degenerationsprodukten erfüllt waren.
[S. 886]
Die Sporen sind bikonvex, linsenförmig, ihr Umriß breit-elliptisch. Sie messen 13,9 µ in der Länge, in der Breite 11 µ, in der Dicke 8 µ (Fig. 844).
Der Nahtrand der Spore ist breit.
Die Art verursacht Hauttumoren bei Cyprinodon variegatus Lacép. (Fig. 843). Sie wurde an der Ostküste von Nordamerika (Massachusetts) gefunden.
Im Unterhautbindegewebe richtet sie Zerstörungen an; man findet die Sporen mit unregelmäßig gestalteten Kalkpartikeln zusammen (Fig. 844), welche wohl als Degenerationsprodukte aufgefaßt werden müssen. Die Haut über den Tumoren ist oft gerissen und die Schuppen gesträubt.
3. Myxobolus cyprini Doflein u. Hofer.
|
1898.
|
Doflein, in: Zool. Jahrb.
Abt. Anat. Vol. 11. p. 288.
|
|
1904.
|
Hofer, in: Handbuch der
Fischkrankheiten, p. 61.
|
Die Art wurde bisher nur im Zustand der diffusen Infiltration, also in kleinen Individuen, gefunden.
Als jüngste Stadien deutet Doflein gewisse kleine ein- und mehrkernige Formen, welche sich in den Nierenepithelzellen des Karpfens finden (Fig. 845). Dieselben vermehren sich wahrscheinlich auf multiple Weise, nachdem sich ihr Kern durch multiple Amitose geteilt hat. Diese jungen Tiere vermitteln vermutlich die Neuinfektion von Zellen, in denen sie heranwachsen. Später fallen sie aus den Zellen heraus und finden sich im Nierenparenchym diffus zerstreut (s. Fig. 846), sie müssen auch im Epithel vorkommen oder dasselbe durchbrechen; denn man findet sie nicht selten massenhaft im Kot der erkrankten Tiere.
[S. 887]
Die Sporen besitzen in der Nahtebene einen ziemlich breiten Rand (Fig. 847). Sie messen in der Länge 10–16 µ und in der Breite 8–9 µ.
Geschlechtliche Vorgänge und die feineren Vorgänge bei der Infektion sind noch unbekannt. Dagegen ist nachgewiesen, daß die Infektion durch Verschlucken der Sporen auf die Karpfen übertragen wird.
Myxobolus cyprini schmarotzt in der Niere von Karpfen und wurde daselbst in den Karpfen der Zuchtteiche von Deutschland, Oesterreich, der Schweiz und Rußlands nachgewiesen.
Da die Art häufig bei pockenkranken Karpfen vorkommt, so wurde ihr eine Rolle beim Zustandekommen dieser Krankheit zugeschrieben.
Pockenkrankheit der Karpfen.
Als Symptom dieser Krankheit, welche die Karpfen entwertet und vielfach tötet, sind weiße, knorpelharte Verdickungen in der Epidermis besonders auffällig. Dieselben sind oft sehr zahlreich, ziemlich umfangreich und erinnern an Geschwülste (Fig. 848). Auf Schnitten erkennt man, daß die Geschwülste ausschließlich aus Epithelzellen bestehen, dazwischen finden sich einige Leukocyten, und von der Cutis aus wachsen Blutgefäße in sie hinein (Fig. 849).
In der ganzen Haut läßt sich keine Spur von einem Krankheitserreger nachweisen. Die Krankheit ist aber infektiös, Bakterien sind nicht aus den Geschwülsten oder anderen Organen zu züchten gewesen.
Dagegen fanden Hofer und Doflein in der Niere der erkrankten Karpfen stets Myxobolus cyprini, oft in so großer Menge, daß der größte Teil des Nierengewebes durch die Parasiten und Degenerationsprodukte ersetzt war.
Da zudem bei der Infektion gesunder Karpfen mit Myxobolus cyprini auch die Pockenkrankheit übertragen wird, so hielten Hofer und Doflein das Myxosporid für den Erreger der Krankheit. Neuerdings hat dies Lühe auf Grund vorwiegend pathologisch-anatomischer [S. 888]Erwägungen bezweifelt, und er neigt der Annahme zu, „daß die Myxosporidienkrankheit des Karpfens eine Prädisposition zur Pockenerkrankung bedingt“.
Hofer und Doflein erklären sich die Wirkung der Nierenerkrankung auf die Haut folgendermaßen: Da das exkretorische Gewebe der Niere durch die Infektion zum größten Teile zerstört wird, so mögen sich in der Haut Stoffe ansammeln, welche sonst durch die Niere ausgeschieden werden. Die gesteigerte exkretorische Tätigkeit der Haut wirkt als Reiz auf die Zellen und führt somit jene seltsamen Epithelwucherungen herbei. Nach Angaben von M. Plehn finden sich in manchen Fällen bei pockenkranken Karpfen nur wenige oder gar keine Exemplare von M. cyprini. Dieser von anderen Autoren bestätigte Befund veranlaßt alle neueren Untersucher zu der Annahme, daß das gleichzeitige Vorkommen von Pockenkrankheit und Myxobolen in den von Hofer und Doflein untersuchten Fällen auf eine Mischinfektion zurückzuführen sei. Einige Autoren glauben, „Chlamydozoen“ als Erreger der Karpfenpocken bezeichnen zu dürfen.
Viele Details der Krankheit sind noch nicht erforscht und bieten der Untersuchung ein dankbares Feld. Es gilt dies besonders für die „gelben Körper“, welche in den inneren Organen bei der Infektion massenhaft auftreten, und welche wahrscheinlich Degenerationsprodukte von Zellen des Wirts darstellen. Nicht selten finden sich in diesen „gelben Körpern“ Sporen von Myxobolus cyprini eingeschlossen. [S. 889]Uebrigens kommen analoge Bildungen bei anderen Myxosporidieninfektionen vor, z. B. bei der Barbenseuche.
Einsetzen der Karpfen in frisches fließendes Wasser bessert ihren Zustand und führt oft Heilung herbei, indem es den Körper des Fisches in den Stand setzt, die Infektion energischer zu bekämpfen.
Von besonderem Interesse ist ferner Myxobolus neurobius Schuberg und Schröder, welcher in den Nerven und im Rückenmark der Bachforelle als gefährlicher Krankheitserreger auftritt.
Außer den genannten beherbergt die Gattung Myxobolus noch eine große Zahl interessanter Formen. Ich erwähne nur M. Mülleri Bütschli, M. aeglefini Auerbach aus den Kopf- besonders den Skleralknorpeln von Gadusarten (G. aeglefinus, morrhua, Esmarkii [?] und merlangus) und Molva vulgaris.
Einige Formen mit nur einer Polkapsel in der Spore werden ebenfalls hierher gerechnet: M. piriformis Thél. bei Tinca vulgaris und Cobitis fossilis, M. Fuhrmanni Auerbach aus Leuciscus rutilus L. und M. unicapsulatus Gurley. M. piriformis erzeugt nach M. Plehn bei Leuciscusarten riesige Geschwülste, welche den Charakter von papillären Adenokystomen besitzen.
2. Gattung: Lentospora M. Plehn.
|
1904.
|
Plehn, Marianne, Ueber die
Drehkrankheit der Salmoniden. In: Arch. f. Protistenk. Vol. 5. p. 145.
|
Diese Gattung, bisher durch eine Art vertreten, stimmt in allen Merkmalen mit Myxobolus überein, mit Ausnahme des Umstandes, daß stets die jodophile Vakuole fehlt. Wir fügen sie auf Grund ihrer allgemeinen Erscheinung und ihres Parasitismus hier ein, obwohl sie infolge des Fehlens der Vakuole den Myxidiiden einzureihen wäre.
Lentospora cerebralis (Hofer) besitzt linsenförmige Sporen von fast kreisrundem Umriß, deren Durchmesser meist 7–9 µ beträgt; ein deutlicher flacher Rand ist vorhanden. Sie ist das erste Myxosporid, bei welchem Parasitismus im Skelett des Wirts bekannt wurde (vgl. oben Myxobolus aeglefini Auerb.). Und zwar befällt er den Knorpel, und das Perichondrium, der Knochen wird nicht angegriffen; das hat zur Folge, daß sie als Krankheitserreger besonders bei jungen Fischen mit vorwiegend knorpligem Skelett auftritt. Vor allem werden Kopf-, Schwanz- und Flossenskelett infiziert, an welchen Teilen oft erhebliche Deformierungen verursacht werden. Da am Kopf oft das Gehörorgan und vor allem die halbzirkelförmigen Kanäle befallen werden, so sind die eigentümlich drehenden und taumelnden Bewegungen erklärlich, welche die Infektion bei den Jungfischen begleiten.
Im Gewebe führt die Infektion mit Lentospora cerebralis typische Granulosebildung herbei (Fig. 851).
Der Parasit ist der Erreger einer sehr gefährlichen Epidemie der verschiedensten gezüchteten Salmonidenarten, welcher in den Züchtereien großen Schaden anrichtet. Für Jungfische ist er viel gefährlicher als für alte Fische mit größtenteils verknöchertem Skelett.
[S. 890]
Außerdem wurde er von M. Plehn auch in allen möglichen Gadiden aus den nördlichen Meeren (G. morrhua, G. virens, G. aeglefinus) nachgewiesen, in denen er am knorpelreichen Skelett auch im Alter noch gute Existenzbedingungen findet, ohne scheinbar allzu großen Schaden anzurichten. Durch Fütterung mit solchen Schellfischen wird der Schädling offenbar in die Fischzuchtanstalten des Binnenlandes eingeschleppt.
3. Gattung: Henneguya Thélohan.
Diese mit Myxobolus sehr nahe verwandte Gattung ist auch in der Lebensweise und der Form des Parasitismus sehr ähnlich.
Auch die Spore ist im allgemeinen ganz nach dem Typus der Myxobolusspore gebaut, nur mit dem Unterschied, daß sich die beiden Schalenhälften in einen langen Fortsatz verlängern, welcher nach hinten wie ein Stiel über den Schalenrand vorragt.
1. Henneguya psorospermica Thélohan.
|
1892.
|
Thélohan, in: Bull. Soc.
philom. Sér. 8. Vol. 4. p. 667.
|
|
1896.
|
Cohn, L., Ueber die
Myxosporidien von Esox lucius und Perca fluviatilis. In: Zool. Jahrb.
Abt. f. Anat. Vol. 9. p. 227.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 101. (Daselbst Literatur.)
|
Die Sporen sind im vorderen Teil sehr langgestreckt elliptisch, ebenso die Polkapseln. Der Schwanzanhang hat etwa dieselbe Länge wie der Sporenkörper (Fig. 819 D).
Die Spore mißt 28–42 µ in der Länge und 5–20 µ in der Breite. Der Anhang ist 14–20 µ lang.
[S. 891]
Man hat je nach dem Vorkommen der Art verschiedene (5) Varietäten unterschieden, welche in dem Ausmaß der Sporen und dem Bau der Cysten ein wenig differieren.
H. psorospermica ist in verschiedenen Flußfischen gefunden worden, meist in Form von Cysten der Kiemen.
Die Varietät oviperda Cohn ist dadurch interessant, daß sie die Eizellen vom Hecht befällt, ausfrißt und in demselben Sporen bildet, ohne sich zu encystieren. Hier dient die Eihülle als schützende Kapsel.
Gewöhnlich wird die Form in den Kiemen von Perca fluviatilis und Esox lucius unter dem Epithel gefunden.
Multiplikative Fortpflanzung, geschlechtliche Vorgänge, Infektionsmodus sind noch ganz unbekannt.
2. Henneguya Zschokkei Gurley.
|
1893.
|
Myxobolus Zschokkei Gurley,
in: Bull. U. S. Fish. Comm. Vol. 11. p. 416.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 101. (Literatur.)
|
|
1893.
|
M. Kolesnikovi Gurley, a. a. O.
p. 417.
|
|
1899.
|
Henneguya Kolesnikovi Labbé,
a. a. O. p. 103. (Literatur.)
|
|
1899.
|
H. spec. Claparède Labbé,
a. a. O. p. 104. (Literatur.)
|
|
1899.
|
Myxobolus bicaudatus Zschokke,
in: Centralbl. f. Bakt. Abt. I. Vol. 23. p. 602 ff. (Diagnose p. 634).
|
Die Art bildet sehr große rundliche oder ovale Cysten, welche bis 3 cm Durchmesser erreichen. Die Cysten sind von einer derben, vom Wirt ausgeschiedenen Hülle umgeben.
[S. 892]
In der Cyste finden sich meistens sehr zahlreiche Sporen, welche vorn abgerundet und hinten zugespitzt sind und mit einem langen, von beiden Schalen zusammengesetzten Schwanzanhang versehen sind (Fig. 852). Der Randwulst ist ziemlich breit. Der Körper ist 10 µ lang und 7 µ breit, der Schwanzanhang ist 40–50 µ lang. Bei ganz breiten Sporen klaffen die beiden Hälften des Schwanzanhangs auseinander (Fig. 852, 2).
Geschlechtliche Vorgänge, multiplikative Fortpflanzung und Infektionsweise sind unbekannt.
Die Art schmarotzt im Zwischengewebe der Muskulatur von Arten der Gattung Coregonus, wo sie große beulenartige Tumoren erzeugt (vgl. Myxobolus Pfeifferi). Sie ist in den Seen Rußlands und der Schweiz nicht selten.
3. Henneguya acerinae Schröder.
|
1900.
|
Schröder, Olaw, Eine neue
Myxosporidienart aus den Kiemen von Acerina cernua. In: Arch. f.
Protistenk. Vol. 7. p. 186.
|
Diese Art bildet sehr charakteristische Cysten auf den Kiemen des Kaulbarsches. Die Sporen haben eine Länge von 20–22 µ, Breite von 8–9 µ und Dicke von 6–7 µ. Die Schwanzanhänge sind 50 bis 60 µ lang.
[S. 893]
4. Gattung: Hoferellus Berg.
(Hoferia Doflein 1898, nec Bittner 1894.)
Hoferellus cyprini Doflein.
|
1898.
|
Hoferia cyprini Doflein, in:
Zool. Jahrb. Abt. Anat. Vol. 11. p. 288.
|
|
1898.
|
Hoferellus nov. nom. Berg,
in: Communicat. Mus. Nac. Buenos Aires. p. 41.
|
Hoferellus dient uns als Beispiel einer frei in den Nierenkanälchen parasitierenden Art.
Das Myxosporid bildet rundliche bis eiförmige Plasmamassen, an denen Ekto- und Endoplasma nicht scharf voneinander abgegrenzt sind. Eigentliche Pseudopodienbildung wurde nicht beobachtet.
Im Endoplasma finden sich zahlreiche Granula und eine größere Anzahl von Kernen von dichtem Gefüge (Fig. 855 N′).
Kleine Exemplare messen 20–30 µ im Durchmesser; größere Exemplare sind hauptsächlich in der Längsrichtung der Nierenkanälchen gewachsen.
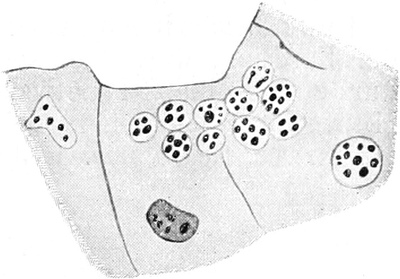
Aehnlich wie bei Myxobolus findet man junge Individuen in den Zellen, hauptsächlich in den Nierenepithelzellen, doch auch in Parenchymzellen; dieselben scheinen sich ebenfalls multipel zu vermehren (siehe Fig. 856).
Beim Heranwachsen fallen sie in die Nierenkanälchen, wo sie bald zu sporulieren beginnen. Die meisten in den Nierenkanälchen befindlichen Individuen zeigen Pansporoblasten und fertige Sporen (Fig. 855).
[S. 894]
Die Form der Spore ähnelt einer abgestumpften Pyramide; sie ist plump und gedrungen. Das Hinterende ist in zwei Zipfel ausgezogen, welche — wie bei Henneguya — von beiden Schalenhälften gebildet zu sein scheinen. Die Sporenschalen sind mit feinen Längsrillen versehen (Fig. 857).
Die Sporen messen 10–12 µ in der Länge, 8 µ in der Breite, die Schwänze nur 2 µ.
In den Nierenkanälchen führen die Myxosporidien nicht selten eine Verstopfung des Lumens herbei; hier und da sieht man das Kanälchen auch durch ihre Anwesenheit erweitert.
Geschlechtliche Vorgänge und Infektionsmodus sind noch unbekannt.
Die Art wurde in Karpfen aus Böhmen gefunden. Eine intensive pathologische Wirkung scheint sie nicht zu haben, doch ist eine solche bei massenhaftem Vorkommen natürlich nicht ausgeschlossen, vielmehr sehr wahrscheinlich.
Unter dem Namen Coccomyxa haben Léger und Hesse eine Gattung beschrieben (vertreten durch C. Moroffi aus der Gallenblase der Sardine), welche einsporige Pansporoblasten besitzt, deren Spore nur eine Polkapsel aufweist, und welche, wenn sie nicht ein echtes Mikrosporid ist, einen Uebergang zu dieser Unterordnung darstellt. (C. R. Ac. Sci. Paris. 1. Juli 1907.)
2. Unterordnung.
Microsporidia Balbiani.
Die Form der meist sehr kleinen Sporen ist sehr gleichartig. Sie sind meist birnförmig, oval oder manchmal bohnenförmig. Für eine Anzahl ist die Zusammensetzung der Hülle aus zwei Schalen, wie bei den Myxosporidien, nachgewiesen; doch ist für manche Arten die Bildung der Sporenhülle aus einem Stück wahrscheinlich. Stets ist nur eine Polkapsel am vorderen Ende der Spore vorhanden; dieselbe ist aber ohne Behandlung mit Reagentien fast nie sichtbar; außer ihr fällt in den meisten Sporen eine große Vakuole auf. Bei vielen Mikrosporidien ist keine Polkapsel nachweisbar, bei manchen nicht einmal ein Polfaden. Ob es sich bei diesen Beobachtungen um ungenügende Präparation oder um Etappen der allmählichen Rückbildung dieser Sporenorgane handelt, kann jetzt noch nicht entschieden werden. (Vgl. übrigens unten S. 903.)
Bei manchen Formen ist außerdem die Oberfläche der Sporenschalen gerillt.
Sämtliche genauer untersuchten Mikrosporidien, mit Ausnahme einer einzigen Art, sind Zellparasiten. Ihre jungen Keime dringen in die Zelle und halten sich dort im Plasma auf, in ähnlicher Weise, wie wir es früher von Plasmodiophora kennen lernten (S. 679). Man kann dann die Grenzen des Plasmas des Mikrosporids oft kaum erkennen. Die Kerne, meist zu mehreren gruppiert, heben sich deutlich ab und scheinen fast nackt im Plasma der Wirtszelle zu liegen.
Hauptsächlich durch die Untersuchungen von Stempell ist die agame Fortpflanzung genauer bekannt geworden. Bei den von ihm [S. 895]studierten Formen sind die Agameten (Meronten) kleine einkernige (in anderen Fällen mehrkernige) Stadien, welche sich durch Zweiteilung rapid vermehren. Dabei dauert die Durchschnürung der Zellen oft viel länger als die Kernteilung, so daß lange Stränge entstehen können. Einfache und multiple Kernteilung wird angegeben.
Durch die rasche Fortpflanzung der Agameten wird oft in kurzer Zeit der Körper des Wirts durch die Parasiten überschwemmt.
Ferner ist bei einigen Arten die Sporenbildung studiert worden.
Dieselbe tritt entweder schon bei den intracellulären Stadien auf, oder auch nachdem dieselben die Zellen aufgezehrt haben und zu größeren Gebilden herangewachsen sind. Manche Arten können zu ziemlich ansehnlichen Körpern heranwachsen, welche vom Wirt mit einer Cyste umgeben werden. Bei anderen Arten wird das infizierte Gewebe vom Wirt abgekapselt; man findet dann die ganze Cyste schließlich mit Sporen, welche intracellulär entstanden sind, und Zellresten erfüllt. Und schließlich gibt es Formen, auf welche das infizierte Organ gar nicht reagiert. Alle Zellen des Gewebes können weithin mit den Mikrosporidien infiziert sein, und die Infektion kann weiter um sich greifen, ohne daß Entzündung oder Einkapselung einträte. Mit der Sporenbildung findet die Ausbreitung der Mikrosporidien im Wirt ihren Abschluß, da die Sporen sich erst in einem neuen Wirt öffnen und den vermehrungsfähigen Amöboidkeim entlassen können. Bei manchen Formen sind zweierlei Sporen gefunden worden: kleine und große, welche auch als Mikrosporen und Makrosporen unterschieden werden.
Die Pansporoblasten entstehen entweder, wie bei den Myxosporidien, im Innern des weiter wachsenden Körperplasmas, oder das letztere zerfällt vollständig in Pansporoblasten.
Im ersteren Fall bildet ein Pansporoblast immer sehr zahlreiche Sporen, im letzteren Fall entweder sehr zahlreiche Sporen oder deren nur wenige (vier oder acht). Wenn viele Sporen im Pansporoblasten gebildet werden, ist die Zahl eine variable. Und schließlich kommen Formen vor, bei denen der ganze Körper des Tieres sich in eine einzige Spore umwandelt, bei denen Pansporoblasten also vollkommen fehlen. Es sind dies Formen, welche eine besonders weitgehende Anpassung an den Parasitismus erreicht haben.
Die Sporenbildung erfolgt bei den Mikrosporidien ganz ähnlich wie bei den Myxosporidien, indem 1–2 Kerne den Schalenbildungszellen, 1–2 der Polkapsel und 2 dem Amöboidkeim angehören. Doch ist es bei der Kleinheit der Objekte schwer, klare Bilder zu erzielen und die Angaben der Autoren über diese Punkte differieren daher erheblich.
Die Mikrosporidien kommen in Bryozoen, Fischen, Amphibien, vor allem aber in Arthropoden vor. Sie verursachen außer Fischkrankheiten auch andere volkswirtschaftlich sehr wichtige Krankheiten, wie die Pébrine der Seidenraupen und die Ruhr der Bienen.
Mein System der Mikrosporidien ist von Pérez ergänzt und verbessert worden und hat nunmehr folgende Fassung erhalten:
| 1. |
Formen, welche auf endogenem Wege in ihrem Körper
zahlreiche Pansporoblasten mit zahlreichen Sporen bilden. (Blastogenea)
|
|||
|
1. Legion: Polysporogenea
Doflein.
|
||||
| [S. 896]
2. |
Formen, deren Körper bei der Sporenbildung vollkommen
aufgebraucht werden Schizogenea).
|
|
a) |
Dieser Körper wandelt sich ganz in einen
Pansporoblasten um, welche eine bestimmte Anzahl Sporen einschließt.
|
|
2. Legion: Oligosporogenea
Doflein.
|
||||
| b) |
Der Körper wandelt sich ohne Pansporoblastenbildung
in eine einzige Spore um.
|
|||
|
3. Legion: Monosporogenea
Pérez.
|
||||
1. Legion.
Polysporogenea Doflein.
Bei den Gattungen dieser Gruppe werden im Pansporoblasten stets sehr zahlreiche Sporen erzeugt; die Zahl derselben scheint außerdem nicht konstant zu sein. Die Gattungen dieser Legion werden den übrigen Mikrosporidien auch als Blastogenea gegenübergestellt, da sie gleich den echten Myxosporidien in dem vielkernigen Plasma ihres Körpers Pansporoblasten in größerer Anzahl erzeugen. Der Körper kann während der Sporulation weiter wachsen und immer neue Pansporoblasten liefern.
Zu dieser Legion gehört eine einzige Familie, die der Glugeidae, zu welcher man 3 Gattungen rechnet:
- Glugea Thél.,
- Duboscquia und
- Myxocystis.
Gattung: Glugea Thélohan.
1. Glugea anomala (Moniez.)
|
1887.
|
Nosema anomala Moniez, in:
Compt. rend. Acad. Sci. Paris. Vol. 104. p. 1312.
|
|
1892.
|
Glugea microspora Thélohan,
in: Bull. Soc. philom. Sér. 8. Vol. 4. p. 155.
|
|
1899.
|
1899 Nosema anomalum Moniez,
Labbé, in: Tierreich. Lief. 5. Sporozoa. p.
105. (Daselbst Literatur.)
|
|
1904.
|
Stempell, Ueber Nosema
anomalum. In: Arch. f. Protistenk. Vol. 4. p. 1.
|
Glugea anomala, eine sehr variable Species, bildet große (Durchmesser 2–8 µ) Cysten, von kugliger oder annähernd kugliger Gestalt, deren Hülle zum größten Teil von dem Ektoplasma des Parasiten selbst gebildet wird. Dasselbe ist fibrillär differenziert und erreicht eine Dicke von 10 µ. Nach außen ist diese Schicht vom Bindegewebe des Wirts umgeben, nach innen stößt sie an das fein granulierte Endoplasma, in welchem sich zahlreiche Kerne und Pansporoblasten finden (Fig. 859). Stempell (s. oben 1904) hat eine ausführliche Darstellung der Entwicklung dieser eigenartigen Form gegeben, welche in vielen Punkten von den übrigen Mikrosporidien abweichen soll. Doch sind die Bilder sehr schwer zu deuten und wohl noch nicht vollkommen verstanden.
Die Sporen sind eiförmig mit einem wenig zugespitzten Pol, an dem die Polkapsel liegt. Sie messen in der Länge 4–4,5 µ und in der Breite 3 µ. Der sehr lange Polfaden erreicht, ausgestoßen, eine Länge von 150 µ (Fig. 858 A).
Die Art findet sich im großen und kleinen Stichling (Gasterosteus aculeatus L. und pungitius L.), wo sie das subkutane [S. 897]Bindegewebe, die Schwimmblasenwand, die Cornea, selten das Ovar befällt. Die großen Cysten vermögen den befallenen Fisch sehr zu deformieren (Fig. 860).

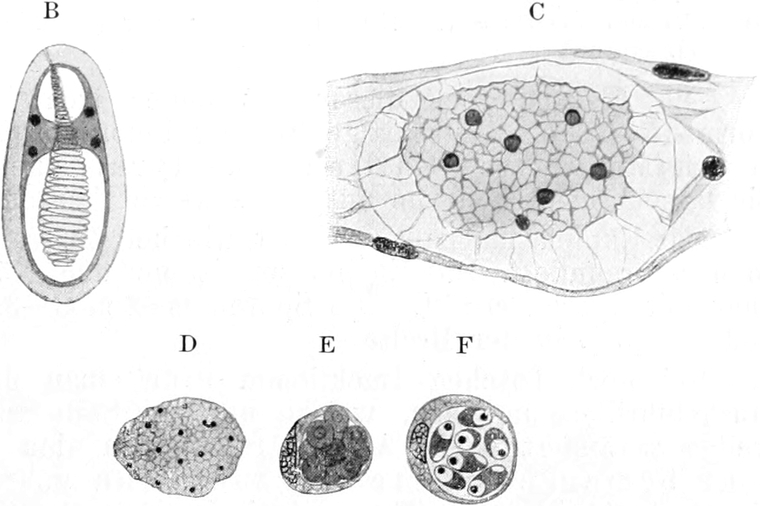
Der Parasit hat unter den Stichlingen schon Epidemien hervorgerufen, welche zahlreiche derselben vernichteten.
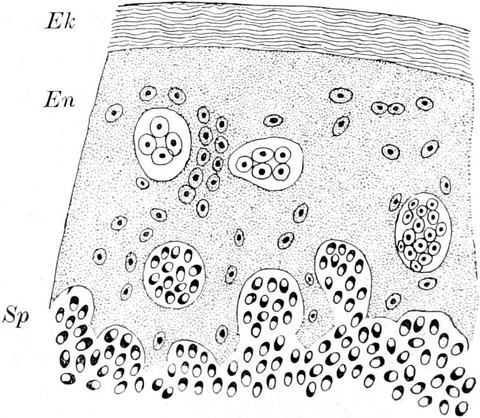
[S. 898]
2. Glugea destruens Thélohan.
|
1891.
|
Glugea destruens Thélohan,
in: Compt. rend. Acad. Sci. Paris. Vol. 112. p. 168.
|
|
1899.
|
Nosema destruens (Thél.)
Labbé, in: Tierreich. Lief. 5. Sporozoa. p. 105.
(Literatur.)
|
Die Plasmakörper dieser Art finden sich in unregelmäßigen Formen oder als cystenartige Bildung innerhalb der Primitivbündel in den Muskeln von Callionymus lyra, einem marinen Fisch. Sie lassen sich schon von außen als weiße Flecken erkennen.
Das Ektoplasma ist aber nicht, wie bei der vorigen Art, fibrillär, sondern granuliert. Das Endoplasma ist bei den größeren Exemplaren ganz mit Sporen erfüllt. Die Sporen messen 3–3,5 µ in der Länge und 2–2,5 µ in der Breite.
Bei noch frischen Infektionen findet man den Parasiten von Muskelfibrillen umgeben, welche nur zur Seite gedrängt, aber nicht weiter verändert sind. Aeltere Infektionen sind aber durch eine sehr bemerkenswerte Degeneration gekennzeichnet, welche die Muskelfibrillen ergriffen und sie in unregelmäßige Schollen einer glasigen, farblosen, stark lichtbrechenden Substanz umgewandelt hat, welche Anilinfarben intensiv speichern (Fig. 861).
Die hyaline Degeneration beginnt in der Umgebung des Parasiten und erstreckt sich allmählich auf die ganze befallene Faser. Dann tritt gewöhnlich eine Invasion von Leukocyten ein, welche die degenerierte Substanz beseitigen, deren Stelle alsbald von Bindegewebe eingenommen wird. Das letztere schließt die Sporen, welche in großer Zahl als einzige Reste des Parasiten übrig geblieben sind, wie in einer Cyste ein.
Es ist das also ein Fall von spontaner Heilung einer Cnidosporidieninfektion; denn die Sporen allein sind so brach gelegt und können erst in Wirksamkeit treten zur Neuinfektion, wenn sie nach dem Tod ihres Wirts frei werden.
3. Glugea bryozoides (Korotneff).
|
1892.
|
Myxosporidium bryozoides Korotneff,
in: Zeitschr. wiss. Zool. Vol. 53. p. 591.
|
|
1895.
|
Glugea bryozoides Thélohan,
in: Bull. sci. France et Belgique. Vol. 26. p. 359.
|
|
1899.
|
Nosema bryozoides Labbé, in:
Tierreich. Lief. 5. Sporozoa. p. 106.
|
Die jüngsten Stadien dieser Art finden sich in den Spermatoblasten ihres Wirts als Zellparasiten. Sie liegen als kleine einkernige [S. 899]Körperchen oft zu mehreren neben dem Zellkern des Wirts (Fig 862 A und B).
Sie vermehren sich durch Teilung des Kerns zu einer Anzahl ebenfalls einkerniger Nachkommen (Fig. 862 C).
Später fallen sie aus den Spermatoblasten in die Leibeshöhle des Wirts und wachsen zu großen Körpern (20–200 µ Durchmesser) heran, welche sich mit Hilfe von kurzen, spitzen, gelappten Pseudopodien bewegen. Dieselben sind an der ganzen Oberfläche der Tiere verteilt (Fig. 862 D).
Die erwachsenen Tiere sind vielkernig und erzeugen in ihrem Innern zahlreiche Sporen. Dieselben sind länglich-oval, am Polkapselende zugespitzt, am hinteren Ende abgerundet. Im hinteren Teile liegt eine Vakuole, die Spore ist 10 µ lang, 6 µ breit.
Die Art schmarotzt in der Bryozoe (Moostierchen) Alcyonella fungosa (Pall.); sie ist in Moskau gefunden worden.
Die Infektion der Spermatoblasten hat zur Folge, daß sich in diesen Zellen die Zellkerne ohne Teilung des Zellleibs vermehren.
4. Glugea lophii (Doflein).
|
1898.
|
Glugea lophii Doflein, in:
Zool. Jahrb. Anat. Abt. Vol. 11. p. 290.
|
|
1899.
|
Mrazek, in: Sitzungsber. K.
böhm. Ges. Wiss. Math.-nat. Kl. Vol. 34. p. 1.
|
Diese Art bildet große Cysten, welche von einer nach Millionen zählenden Menge von Sporen erfüllt sind. Die Sporen liegen in größerer Anzahl in je einem Pansporoblasten; die letzteren sind sehr vergänglich, so daß man die Sporen in etwas älteren Cysten sämtlich frei liegend findet. Die Sporen sind oval, oft bohnenförmig gekrümmt; die Länge beträgt 3,5 µ, die Breite 1,5 µ (Fig. 863).
[S. 900]
Die Infektion ist zunächst eine Zellinfektion, indem die Ganglienzellen des Zentralnervensystems (Cerebrospinalnerven und Rückenmark), aber auch benachbarte Bindegewebszellen befallen werden. Zum Teil wachsen nun die Cysten in den sich riesig vergrößernden Ganglienzellen heran, zum Teil geraten sie aus denselben heraus, indem dieselben zerstört werden, und wachsen intercellulär heran; dabei können mehrere benachbarte Cysten verschmelzen.
Die Art kommt ziemlich häufig in Lophius piscatorius vor, wo sie ziemlich große Nerventumoren hervorruft (Fig. 864). Dieselben sind traubenförmig gestaltet, da meist eine ganze Anzahl der kugligen Cysten nahe beieinander liegen.
Nosema lophii wurde bisher in der Adria und dem Mittelmeer gefunden.
5. Glugea stegomyiae Marchoux, Salimbeni und Simond.
Eine in mancher Beziehung interessante Form, welche bei Stegomyia fasciata schmarotzt. Sie ist charakterisiert durch den Besitz von farblosen und braunen Sporen; bei den Larven der Stechmücken kommen nur farblose, beim Imago auch braune Sporen vor.
Ferner wären hier folgende Gattungen zu erwähnen:
Duboscquia Pérez ist ausgezeichnet dadurch, daß jeder Pansporoblast konstant 16 Sporen liefert. D. Legeri Pérez lebt in der Leibeshöhle von Termes lucifugus in Südfrankreich.
Myxocystis Mrázek. In Oligochäten kommen Arten dieser Gattung vor, welche durch ein eigenartiges Cilienkleid ausgezeichnet sind (M. ciliata Mrázek, M. Mrazeki Hesse).
[S. 901]
2. Legion.
Oligosporogenea Doflein.
Der Körper der hierher gehörigen Formen geht bei der Sporulation vollkommen in die von einer Kapsel umhüllten Pansporoblasten über, von denen jeder wieder in eine kleine Anzahl von Sporen (vier oder acht) aufgeht.
Die hierher gehörigen Gattungen werden auch mit denen der nächsten Legion, den Monosporogenea, als Schizogenea zusammengefaßt, da sie nicht wie die Plastogenea zu größeren Plasmakörpern heranwachsen, sondern beim Wachsen fortgesetzt durch Teilung in kleine Körper zerfallen, welche ihrerseits vollkommen bei der Bildung der Sporen verbraucht werden.
Zu den Oligosporogenea gehören folgende Gattungen:
[S. 902]
|
1.
|
Im
|
Pansporoblast
|
n
|
Sporen
|
Plistophora Gurley.
|
|
2.
|
„
|
„
|
8
|
„
|
Thélohania Henneguy.
|
|
3.
|
„
|
„
|
4
|
„
|
Gurleya Doflein.
|
Gattung: Plistophora Gurley.
Plistophora typicalis Gurley.
|
1893.
|
Gurley, in: Bull. U. S. Fish.
Comm. Vol. 11. p. 410.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 108.
|
Die Art findet sich in Form kleiner Körper von annähernd kugliger Form im Muskelgewebe. Dieselben erzeugen zahlreiche Sporoblasten, aus welchen Sporen entstehen. Die kugligen Gebilde sind mit einer zarten Hülle umgeben und messen 25–35 µ im Durchmesser (Fig. 866).
Die Sporen sind oval, messen 5 : 3 µ und haben einen sehr langen Polfaden (Fig. 867); derselbe erreicht eine Länge von 65–75 µ.
Durch die Infektion werden die Muskeln merkwürdig wenig verändert; sie werden nur etwas deformiert, aber ihre Struktur und besonders die Querstreifung erfährt keinerlei Veränderung.

Die Art kommt in verschiedenen Fischen (Cottus bebalis Euphr., Cottus scorpius L., Blennius pholis L., Gasterosteus pungitius L.) vor, und bewohnt in ihnen die Rumpfmuskulatur. Zu dieser Gattung gehört auch die neuerdings von Schuberg genauer [S. 903]untersuchte Plistophora longifilis Schub., welche im Hoden der Barbe Geschwulstbildung veranlaßt. Schuberg konnte bei dieser Form keine Polkapseln nachweisen (vgl. Fig. 868).
Solche scheinen auch bei Pl. periplanetae Lutz u. Splendore zu fehlen. Diese in den Malpighischen Gefäßen der Küchenschaben (Periplaneta orientalis und americana) vorkommende Form (Fig. 869) pflanzt sich vegetativ durch Plasmotomie oder Bildung kleiner einkerniger Knospen fort.
Gattung: Thélohania Henneguy.
1. Thélohania octospora Henneguy.
|
1892.
|
Henneguy et
Thélohan, in: Ann. Microgr. Vol. 4. p. 621 ff.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa, p. 112. (Literatur.)
|
Diese Art ist nur in Gestalt von zahlreichen Kugeln oder Bläschen gefunden worden, welche als eine besondere Form der Pansporoblasten aufzufassen sind.
[S. 904]
Bei Th. octospora sind diese Bläschen kuglig, sie haben einen Durchmesser von 10 µ; ihre Hülle ist zart, aber deutlich doppelt konturiert (Fig. 870 A u. I). Manche Bilder regen die Vermutung an, als bestehe sie wie bei den Myxosporidien aus 2 Zellen.
Man kennt die ganze Entwicklung der Sporen, allerdings nur in den äußeren Umrissen. Aus einem einkernigen Pansporoblasten wird allmählich ein solcher, welcher acht einkernige Sporoblasten enthält. Diese wandeln sich in acht birnförmige Sporen um, welche durch Platzen der Kapsel frei werden.
Die einzelnen Sporen sind 3–4 µ lang, eine große Vakuole ist am abgerundeten Ende meist sichtbar (Fig. 870 B). Die Sporenwand ist glatt, ohne sichtbare Strukturen. Der Polfaden, welcher bei Zusatz von Aether ausgestoßen wird, ist 30–40 µ lang (Fig. 870 C u. D).
Die bekannten Stadien des Parasiten finden sich interfibrillär in den Muskeln von Palaemon rectirostris und P. serratus (Fig. 870 A).
Diese durchsichtigen Garneelen werden durch die Infektion trübe, opak-weißlich oder gelblich; ihre Beweglichkeit wird natürlich sehr beeinträchtigt, bei starker Infektion gehen sie zugrunde.
Geschlechtliche Vorgänge, Infektion, multiplikative Fortpflanzung und Jugendstadien sind noch vollkommen unbekannt.
2. Thélohania Contejeani Henneguy.
|
1892.
|
Henneguy et
Thélohan, in: Ann. Microgr. Vol. 4. p. 617.
|
|
1899.
|
Labbé. in: Tierreich. Lief.
5. Sporozoa. p. 112. (Literatur.)
|
Eine gewisse Bedeutung als Parasit unserer Flußkrebse darf diese Art wohl beanspruchen, wenn auch die Wichtigkeit keine so große ist, wie es die Entdecker glaubten, indem sie das Sporozoon für den Erreger der Krebspest hielten. Vielmehr haben die neueren Untersuchungen von Hofer gezeigt, daß die Krebspest eine Bakterieninfektion ist.
Th. Contejeani vermag aber als Parasit der Muskeln die Flußkrebse ebenso zu schädigen, wie Th. octospora die Garneelen.
Die Pansporoblasten sind sehr klein und messen nur 8 µ im Durchmesser, die 4 einzelnen Sporen nur je 2–3 µ.
Auch von dieser Art sind nur dieselben wenigen Stadien bekannt, wie von Th. octospora.
[S. 905]
3. Thélohania Mülleri (L. Pffr.).
|
1902.
|
W. Stempell, Ueber Thélohania
Mülleri (L. Pffr.). In: Zool. Jahrb. Abt. Anat. Vol. 16. p. 235.
|
Diese in Gammarus pulex (L.) schmarotzende Thélohania verursacht oft eine weitgehende Zerstörung der Körpermuskulatur. Die Fortpflanzung dieser Art ist ziemlich genau untersucht (vgl. S. 894 und Fig. 871). Die Sporen sind 4–5 µ lang und 2 µ dick.
4. Thélohania chaetogastris Schröder
|
1909.
|
Thélohania chaetogastris, eine neue in Chaetogaster
diaphanus Günth. schmarotzende Mikrosporidienart. In: Arch. f.
Protistenk. Vol. 14. p. 119.
|
Auch von dieser Art ist in den großen Zügen die Entwicklung bekannt, welche mit derjenigen von Th. Mülleri übereinstimmt. Die Sporen messen 4 : 3 µ.
Studiert wurden in neuerer Zeit ferner Th. Giardi Henn. durch Mercier, Th. Légeri Hesse, wichtig durch ihr Vorkommen in Anopheles, durch Hesse, Th. maenadis aus Carcinus maenas durch Pérez.
Gattung: Gurleya Doflein.
|
1897.
|
Doflein, Studien zur
Naturgeschichte der Protozoen III. Ueber Myxosporidien. In: Zool. Jahrb.
Abt. Anat. Vol. 11. p. 340.
|
Wie die Gattung Thélohania durch die 8-sporigen Pansporoblasten, so ist Gurleya durch 4-sporige Pansporoblasten ausgezeichnet. G. tetraspora Doflein wurde in der Hypodermis von Daphnia maxima, G. Légeri Hesse im Bindegewebe und Fettkörper von Ephemerella ignita Poda gefunden. Gurleya Francottei Léger und Duboscq ist eine Form, welche in fast [S. 906]schematischer Weise die Eigentümlichkeiten dieser Gattung erkennen läßt (Figg. 872 und 873).
3. Legion. Monosporogenea Pérez.
Gattung: Nosema Naegeli.
Die neueren Forschungen haben ergeben, daß die zum Teil in extremer Weise an den Parasitismus angepaßten, sehr pathogen wirkenden Arten dieser Gattung, welche man früher mit der Gattung Glugea vereinigte, sich durch die eigenartige Form ihrer Sporenbildung von allen anderen Mikrosporidien unterscheiden. Nachdem durch agame Teilung die Vermehrung eine Zeitlang stattgefunden hat, gehen kleine einkernige Individuen direkt, ohne Pansporoblastenbildung, zur Sporenbildung über, wobei sich ihr ganzer Körper in eine einzige Spore umwandelt.
Wir führen von dieser vor allem bei Insekten verbreiteten sehr artenreichen Gattung nur einige Formen an:
1. Nosema ovoideum (Thélohan).
|
1895.
|
Glugea ovoidea Thélohan, in:
Bull. scient. France et Belgique. Vol. 26. p. 357.
|
|
1898.
|
Doflein, in: Zool. Jahrb.
Anat. Abt. Vol. 11. p. 338.
|
|
1899.
|
Nosema ovoideum (Thél.)
Labbé, in: Tierreich. Lief. 5. Sporozoa.
p. 106.
|
Diese Art ist bisher nur als Zellparasit beobachtet worden.
Die jüngsten Stadien finden sich als kleine Körperchen in den Zellen des Wirts, die Kerne sind deutlich, die Abgrenzung des Plasmas gegenüber dem der Wirtszelle kaum zu sehen (Fig. 874). Außerdem sind nur Stadien bekannt, wo die sehr kleinen Sporen in Mengen im Plasma der Wirtszelle liegen (Fig. 875).
Die Sporen messen 2,5 : 1,5 µ.
Die Infektion stellt sich in Form von kleinen weißen Flecken auf der Oberfläche und im Innern des Gewebes der Leber von [S. 907]Cepola rubescens und Motella tricirrata dar. Es sind sowohl Leberzellen, als auch Bindegewebszellen infiziert. Das infizierte Gebiet ist unregelmäßig abgegrenzt; in demselben lassen sich noch alle Zellgrenzen feststellen und in den Zellen die intakten Kerne; die einzige Veränderung besteht darin, daß die Zellen mit Sporen erfüllt sind, und daß die Zellkerne sich häufig auf zwei vermehren, ohne daß die zugehörige Zelle sich mitteilte (Fig. 875).
2. Nosema bombycis Naegeli.
|
1857.
|
Naegeli, in: Tageblatt D.
Naturf. Vol. 33. p. 27 u. Botan. Zeitung. Vol. 15. p. 760.
|
|
1894.
|
Glugea bombycis Thélohan, in:
Compt. rend. Soc. Biol. Vol. 46.
|
|
1899.
|
Nosema bombycis Naeg.,
Labbé, in: Tierreich. Lief. 5. Sporozoa. p.
106. (Hier ein Teil der sehr großen Literatur über die
Seidenraupenkrankheit.)
|
|
1907.
|
Stempell, Die
Pébrine-Krankheit der Seidenraupen in: Sitzber. Med.-naturw. Ges. Münster
i. W. 25. Juni.
|
|
1909.
|
Stempell, W., Ueber Nosema
bombycis Naeg., in: Arch. f. Protistenk. Vol. 16. p. 281.
|
Dieser gefährliche Feind der Seidenraupe findet sich im erwachsenen Zustand in allen Organen dieses Tieres. Er bildet lappige Massen, welche in der Form verschieden sind, je nach den Geweben, die befallen sind.
Die Sporen sind eiförmig, 3 µ lang, 1,5–2 µ breit und zeigen im frischen Zustand eine Vakuole am hinteren abgerundeten Ende (Fig. 876 a u. b). Bei Zusatz von Salpetersäure quellen die Sporen stark auf; sie erreichen dann eine Länge von 6 µ und eine Breite von 3,5 µ. Dann wird die Polkapsel sichtbar, und der Polfaden wird ausgestoßen, wobei er eine Länge von 10–15 µ zeigt.
[S. 908]
Werden die Sporen von einer Seidenspinnerraupe gefressen, so schlüpft aus ihnen ein Amöboidkeim aus. Vorher wurde der Polfaden ausgestoßen, und die Spore klaffte in zwei Schalenhälften auseinander.
[S. 909]
Der Amöboidkeim durchbohrt die Darmcuticula und bleibt entweder in Darmepithelzellen oder gerät in irgendwelche andere Organe, wo er heranwächst.
Der Zeugungskreis von Nosema bombycis zeigt nach Stempell eine große Aehnlichkeit mit demjenigen von Thélohania (vgl. S. 903 u. 904). Charakteristisch ist die Vermehrungsweise der agamen Stadien, welche oft zu langen rosenkranzförmigen Ketten auswachsen (vgl. Fig. 877 u. 878). Diese agamen Stadien zerfallen bei ungünstigen Nahrungsverhältnissen in zunächst einkernige Sporen oder richtiger Sporoblasten. Diese Sporoblasten werden später vierkernig und bilden einen langen Polfaden aus (vgl. Fig. 877). Im Darm des neuen Wirts schlüpft aus der Spore der zweikernige Keim aus, dessen Kerne verschmelzen; die Zygote vermehrt sich lebhaft und ihre Sprößlinge dringen zunächst intercellulär in die Bluträume der Raupe, von da in die Zellen aller Organe, wo sie sich zu eigenartigen pilzartigen Körpern umwandeln.
Der Parasit kommt im Darm, dem Fettkörper, den Geschlechtsorganen, Eiern, Tracheen, Malpighischen Gefäßen, kurz allen Organen der Raupen von Bombyx mori (L.), Gastropacha neustria (L.), Arctia caja und anderen Schmetterlingen, besonders Spinnern, vor. In Attacus (Saturnia) Pernyi, deren Raupe er ebenfalls infiziert, geht die Infektion niemals über den Mitteldarm hinaus.
Nosema bombycis Naeg., erzeugt in den Seidenraupen
Die Pébrine.
(Gattina, Seidenraupenkrankheit.)
Durch diese Krankheit werden infolge der allgemeinen Infektion die Raupen hinfällig und sterben oft in Massen vor der Verpuppung; aber auch wenn sie zur Verpuppung kommen, so spinnen sie keinen Kokon und sterben in der Verpuppung; Fig. 879 zeigt, in welcher Weise die Spinndrüsen infiziert sein können.
Schwächer infizierte Individuen können sich aber auch zu Schmetterlingen entwickeln und zur weiteren Verbreitung der Krankheit beitragen. Da nämlich auch die Geschlechtsorgane infiziert werden, so sind die befruchteten Eier nicht selten ebenfalls befallen. Aus ihnen entwickeln sich schwächliche kleine Raupen, welche gewöhnlich früh sterben; aber mittlerweile können sie Hunderttausende von anderen Raupen infiziert haben, denn die Hauptinfektionsquelle bildet der auf den Maulbeerblättern liegende Kot der Raupen.
So kann die Epidemie mit großer Schnelligkeit sich über die seidenzüchtenden Bezirke eines Landes verbreiten. Bei künstlicher Infektion findet man schon nach 3 Tagen massenhaft Stadien der multiplikativen Vermehrung und Anfänge der Sporenbildung. Längstens nach 8 Tagen ist der ganze Körper überschwemmt.
In Frankreich brach die Epidemie zuerst im Jahre 1845 im Departement Vaucluse aus, im nächsten Jahre hatte sie schon drei weitere Departements ergriffen. Schon im Jahre 1851 war in den wichtigsten Distrikten der Seidenbau fast vernichtet; im Jahre 1856 war die Produktion auf ¼ der üblichen Ziffer gefallen. Im Jahre 1854 wurde Italien von der Seuche befallen und war bald von einem Ende zum anderen ergriffen.
[S. 910]
Die französische Seidenkultur hatte bis zum Jahre 1867 einen Verlust von mehr als einer Milliarde erlitten, gewiß ein Beweis von der wirtschaftlichen Bedeutung dieser Sporozoeninfektion.
Um die Erforschung der Krankheit haben sich besonders Pasteur und Balbiani Verdienste erworben. Der letztere bestätigte die Annahme Leydigs, daß es sich um „Psorospermien“, d. h. Neosporidien handle, und studierte die Morphologie und Infektionsweise von Nosema bombycis. Pasteur jedoch erwarb sich unsterbliche Verdienste um die französische Seidenzucht, indem er die speziellen Bedingungen der Krankheit studierte und den Züchtern eine prophylaktische Maßregel angab. Durch die mikroskopische Unterscheidung der infizierten von den nicht-infizierten Eiern ist es jetzt möglich, die ersteren von der Zucht auszuschließen und dadurch die Ausbreitung der Krankheit aufzuhalten.
3. Nosema apis Zander.
|
1909.
|
Zander, in: 2. Aufl. von
Doflein, Lehrb. der Protozoenkunde.
|
|
1911.
|
Zander, Handbuch der
Bienenkunde in Einzeldarstellungen. II. Krankheiten und Schädlinge der
erwachsenen Bienen. Stuttgart.
|
Neuerdings hat Zander entdeckt, daß die sog. Ruhr der Bienen durch einen nahe verwandten Parasiten verursacht wird, welcher in ganz ähnlicher Weise vom Darm aus den Körper der Bienenlarven durchsetzt, wie Nosema bombycis denjenigen der Seidenraupen. Nach brieflichen Mitteilungen des Entdeckers schmarotzt N. apis ausschließlich im Mitteldarm der Bienen. Füttert man sporenhaltigen Honig an gesunde Bienen, so kann man schon nach 5 Tagen die Darmzellen von Sporen durchsetzt finden. Die Entwicklung vollzieht sich also ebenso rasch wie bei der Pébrine. Der Mitteldarm verliert seine braunrötliche Färbung und wird je nach dem Grad der Infektion mehr oder weniger milchweiß. Die Stärke der befallenen Völker [S. 911]nimmt rasch ab, und wenn die Königin auch infiziert ist, so geht das Volk binnen kurzer Zeit zugrunde. Im Frühjahr 1909 sind Tausende von Bienenvölkern auf diese Weise eingegangen.
Die „Ruhr“ der Bienen ist durch sehr starke Infektion mit dem N. apis (Fig. 881) bedingt; sie äußert sich im zeitigen Frühjahr durch starke Kotentleerungen innerhalb und außerhalb des Stockes. Die Kotmassen bestehen dann fast nur aus Nosemasporen. In durch die Ruhr geschwächten Völkern räubern die gesunden sehr gern und verschleppen so die Parasiten.
Gattung: Paramyxa Chatton.
Paramyxa paradoxa Chatton.
Von besonderem Interesse ist ein eigenartiges Sporozoon, welches in seiner Entwicklungsgeschichte sich vollkommen den Cnidosporidien [S. 912]anschließt, aber die 4 in einem Pansporoblasten entstehenden Sporen sind nur aus 3 Zellen gebildet, wie die Fig. 882 deutlich zeigt. Auch ist keine Spur von einer Polkapsel vorhanden.
Es ist sehr bemerkenswert, daß bei der Reifung der Spore der eine der Kerne zugrunde geht, während von den anderen einer Schalenbildungskern ist, der zweite den Kern des Amöboidkeimes darstellt. Chatton faßt den zu zugrunde gehenden Kern als den Polkapselbildungskern auf, dessen Auftreten und Verschwinden das Anzeichen einer früher vorhandenen, aber rudimentär gewordenen Polkapsel sei.
Chatton betrachtet vorläufig Paramyxa paradoxa, welche in der Larve eines noch unbestimmten marinen Polychäten schmarotzt, als Vertreter einer vierten, den Myxo-, Mikrosporidien und Actinomystideen gleichzuordnenden Unterordnung der Cnidosporidien.
3. Unterordnung.
Actinomyxidia Stolc.
Die Actinomyxideen sind Sporozoen, von denen nur die der Sporulation vorangehenden Zustände, die Sporulation und die Sporen bekannt sind. Im erwachsenen Zustand entspricht der ganze Körper einem Pansporoblasten, welcher von einer Hülle umschlossen ist, und welcher im Innern stets 8 Sporoblasten enthält. Aus diesen entwickeln sich die dreistrahlig gebauten Sporen, welche je 3 Polkapseln [S. 913]enthalten. In letzteren ist ein deutlicher, ausschleuderbarer Polfaden vorhanden, oder es findet sich eine größere Anzahl von (mindestens 8) einkernigen Amöboidkeimen.
Sehr interessant sind die Entwicklungsvorgänge, welche zur Entstehung der Sporen führen. Die jüngsten bekannten Stadien sind zweikernig; sie werden vierkernig, und zwei der entstandenen Zellen bilden eine Hülle, innerhalb deren die zwei anderen liegen. Diese beiden vermehren sich auf 4. Von den 4 Zellen bleiben 2 groß und ruhen eine Zeitlang, während die beiden anderen sich rasch auf 8 vermehren. Wir haben dann ein Stadium mit 8 kleinen und 2 großen = 10 Zellen im Innern der zweizelligen Hülle.
Im weiteren Verlauf teilen sich auch die 2 großen Zellen in 8 Deszendenten, so daß im Pansporoblasten schließlich 16 Zellen enthalten sind. Nach Caullery und Mesnil sind dies die Gameten. Sie vereinigen sich paarweise (Fig. 885 A), wobei eine geringe, aber deutliche Verschiedenheit der Gameten in Kerngröße und Färbbarkeit des Plasmas sichtbar wird.
Nach der Verschmelzung dieser Anisogameten verwandelt sich die entstandene Zygote in den Sporoblasten und schließlich in die Spore um, deren also 16 : 2 = 8 im Pansporoblasten entstehen. In den 8 Sporoblasten erfolgen nun gleichzeitig die weiteren Umbildungsvorgänge. Der eine Kern teilt sich, und es entstehen zunächst 6 kleine Kerne und 1 großer. Die ersteren liefern die Hüllgebilde der Spore, der letztere das „Keimplasma“, d. h. die Amöboidkeime derselben. Die große Keimzelle vermehrt sich intensiv, so daß im Pansporoblasten 8 peripher gelegene Keimmassen entstehen, denen — noch vollkommen von ihnen getrennt — 8 zentral gelegene Sporenbildungszellmassen entsprechen (vgl. Fig. 885 E). Die Keimmassen bestehen je nach den Arten aus 8, 32 oder vielen Zellen resp. einer Plasmamasse mit vielen Kernen (Fig. 885 E km). Die 6 Zellen jeder Sporenbildungsmasse ordnen sich regelmäßig an (Fig. 885 C), so daß 3 äußere die Hülle der Spore mit ihren 3 regelmäßig angeordneten Sektoren und 3 innere die Polkapseln bilden (Fig. 885 D).
So entstehen also im Pansporoblasten 8 leere Sporen, neben denen (außerhalb der Hülle) die 8 Keimmassen liegen; die periphere Lage der letzteren an der äußeren Hülle des ganzen Gebildes wird als eine für die Ernährung der Fortpflanzungskörper nützliche Einrichtung aufgefaßt.
Ganz einzigartig ist die Tatsache, daß die Keimmasse nun schließlich in die fertige Sporenhülle einwandert, welche sie erst im Darm eines neuen Wirts verläßt.
Die Sporen der Actinomyxideen haben stets die nämliche dreizählige Symmetrie, doch sind sie bald kuglig, bald durch eigenartige lange Fortsätze bizarr (sternförmig, ankerförmig) gestaltet. Wir haben Grund anzunehmen, daß die Fortsätze zur Verbreitung der Art durch Erhöhung der Schwebfähigkeit dienen, da solche Sporen im Plankton gefunden worden sind (durch Kofoid).
[S. 914]
Alle bekannten Formen sind in Oligochäten aus der Familie der Tubificiden gefunden worden, und zwar sowohl im Süß- als auch im Meerwasser Europas und Nordamerikas.
4 Gattungen: Hexactinomyxon Stolc (Fig. 883 I), Triactinomyxon Stolc (Fig. 883 II), Synactinomyxon Stolc (Fig. 883 III), Sphaeractinomyxon Caullery und Mesnil (Fig. 883 IV).
II. Ordnung.
Sarcosporidia.
Unsere Kenntnis von den Sarcosporidien ist noch eine sehr mangelhafte. In vielen Beziehungen schließen sie sich direkt an die [S. 915]Mikrosporidien, besonders die Muskelparasiten unter diesen an; infolgedessen scheint es mir auch auf Grund unserer heutigen Kenntnisse gerechtfertigt, sie an dieser Stelle zu behandeln.
Sie besitzen eine schlauchförmige, ovale oder kuglige Gestalt und graue oder grauweiße Farbe; schon in frühen Entwicklungsstadien bilden sie Pansporoblasten, in deren jedem zahlreiche nieren- oder sichelförmige, kernhaltige Körperchen, die Sporen, sich bilden.
Sie beginnen ihre Entwicklung als kleine schlauchförmige Gebilde intracellulär, und zwar fast ausschließlich in Muskelzellen. Diese schlauchförmigen Gebilde werden in der älteren Literatur als „Mieschersche Schläuche“ bezeichnet.
Schon sehr früh zeigen sie eine doppelte Hülle, die äußere kann manchmal weniger ausgeprägt sein, ist aber bei den älteren Stadien meist vorhanden. Die innere Membran ist dünn und hyalin, die äußere ist dick und von einer eigentümlichen Struktur. Sie besteht nämlich aus zahlreichen parallelen Stäbchen, welche senkrecht zur Oberfläche stehen (oder vielleicht richtiger, sie ist von zahlreichen Porenkanälchen durchbohrt); dies ergibt auf Schnitten das Bild einer Streifung oder eines Wimperbesatzes (Figg. 888, 891 u. 893), wie die Struktur von früheren Beobachtern auch gedeutet wurde. Wir kennen ganz ähnliche Strukturen bei Cnidosporidien und können auf Grund der dort gemachten Befunde die beiden Schichten für Differenzierungen des Ektoplasmas halten. Laveran und Mesnil haben sich allerdings wiederum für die Deutung der Hülle als einer aus feinen Filamenten sich zusammensetzenden Bildung ausgesprochen.
Die Dicke der Wand erlaubt es meist, die Sarcosporidienschläuche ohne Schwierigkeit aus dem umgebenden Gewebe herauszupräparieren. Die Sarcosporidienschläuche erreichen eine beträchtliche Größe; beim Schaf werden sie oft 16 mm lang, beim Reh hat man solche von 50 mm gefunden.
Nach Erdmann werden bei der Verfütterung von Sporen an empfängliche Tiere durch die Wirkung des Toxins der Sarcosporidien (s. unten S. 919) die Darmepithelien zerstört. Durch die Darmwände dringen dann die einkernigen Keime in die Lymphbahnen vor und gelangen ins Fettgewebe, schließlich in die Muskulatur der Wirte. Die jungen Sarcosporidien sind vielfach mehrkernig, was auf Vermehrungsvorgänge hindeutet. In der Muskelzelle findet man die jüngsten Stadien als amöbenähnliche, zweikernige Gebilde, welche wachsen, vielkernig werden, sich in die Länge strecken und so zu den typischen Schläuchen werden. Diese erfüllen sich innerhalb des grob vakuolisierten Plasmas mit zahlreichen, einkernigen Protoplasmakugeln (Fig. 886).
Bisher wurde allgemein angenommen, daß sich bei der Sporenbildung Pansporoblasten bildeten, worauf ja die Abbildungen Figg. 888, 895 und 897 hinzuweisen schienen. Die Kugeln, welche man für solche hielt, haben ein feingranuliertes Plasma, je einen kleinen Kern und enthalten metachromatische Körner, deren Substanz wohl mit Volutin (vgl. S. 100) zu identifizieren ist.
Jetzt nimmt man nach den Untersuchungen von Negri, Erdmann u. a. an, daß die Kugeln als Sporoblasten zu bezeichnen sind, aus denen direkt die Sporen hervorgehen (bei Sarcocystis muris, S. tenella). Die Sporoblasten vermehren sich durch Teilung und auf diese Weise kann also das Sarcosporid noch während der Sporulation [S. 916]beträchtlich wachsen. Ja während im Zentrum des Schlauchs die Reifung der Sporen schon beginnt und von der Mitte nach den Polen zu fortschreitet, kann an letzterem der Schlauch durch Vermehrung der Sporoblasten noch weiterwachsen.
Aus jedem der Sporoblasten geht also eine meist sichelförmige Spore hervor; die Sporen wurden früher als Raineysche Körperchen bezeichnet. Sie erhalten allmählich eine festere Membran, an dem einen Pole eine hellere Blase, deren Deutung, wie wir sogleich sehen werden, noch strittig ist.
Die Kernverhältnisse bei der Sporenbildung sind noch unklar. Ob der eine Kern des Sporoblasts sich wie bei gewissen Mikrosporidien noch zur Sporenbildung vermehrt, ob geschlechtliche Vorgänge vorkommen etc., all das ist noch unbekannt.
Vor allem muß ich hier aber ferner hervorheben, daß es mir nicht ausgemacht erscheint, ob bei allen Sarcosporidien Pansporoblasten fehlen. Die Figg. 888, 895 u. 897 sehen zu sehr nach solchen aus. Es ist nicht unmöglich, daß, wie bei den Mikrosporidien, Formen mit Pansporoblast und Formen ohne solchen vorkommen (vgl. Monosporogenea S. 906).
Im Zentrum großer Sarcosporidienschläuche findet man merkwürdigerweise die Reste der Pansporoblasten leer vor. Es wird daher vielfach angenommen, daß dort die Sporen zugrunde gehen (?), während das Wachstum an den Enden weiter fortschreitet.
Manche Autoren, so Negri, v. Betegh, Teichmann nehmen an, daß die fertig geformten Sporen (eventuell die jungen Sporen?) noch zu Teilungen fähig seien. Teichmann beschreibt sogar von ihm als Kernteilungserscheinungen gedeutete Bilder.
Wie bei den Mikrosporidien scheint die Form der Spore bei einer Art nicht immer ganz konstant zu sein, indem die eng zusammengepackten Sporen sich während der Entwicklung gegenseitig deformieren. Meist sind sie bohnen-, nieren- oder sichelförmig und sehr klein: 3–12 µ lang und 1–5 µ breit.
Einige Autoren haben in den Sarkosporidiensporen eine Polkapsel oder ein ähnliches spiral gestreiftes Gebilde zu sehen geglaubt. Die [S. 917]abgebildeten Strukturen am einen Pol der Sporen und die diesen anhängenden Fäden beweisen jedenfalls nichts für eine „cnidosporidienähnliche“ Beschaffenheit der Spore (Fig. 895 C). Im allgemeinen werden von den Autoren Sporen und Sporoblasten als einkernig bezeichnet. Das würde auch gegen das Vorhandensein von Polkapseln sprechen. Doch werden neuerdings wiederum Angaben sogar über die Ausstoßung von Polfäden gemacht. Die neuesten Untersucher, so Rh. Erdmann und Teichmann, widersprechen sich in ihren Angaben über die Kern- und Polkapselverhältnisse bei den Sarkosporidien direkt. Während Erdmann einen Fadenapparat und einen zentral gelegenen Kern, der von metachromatischen Körnern umgeben ist, beschreibt, sieht Teichmann an Stelle des ersteren den Kern und erkennt keinen Fadenapparat an. Sollten nicht etwa die neueren Untersuchungen über Mikrosporidien und über Paramyxa (s. S. 908 und 911) den Schlüssel zu diesen Widersprüchen bieten, indem es sich in den Sarkosporidien auch um Cnidosporidien handelt, deren Fadenapparat in der Degeneration begriffen ist und daher bald mit größerer, bald mit geringerer Deutlichkeit nachweisbar ist?
Bei manchen Formen wurden bisher noch keine derartigen mit fester Hülle umschlossenen Sporen gefunden, sondern nackte sporenartige Gebilde, welche auch zu Bewegungen befähigt sein sollen. Minchin bezeichnet die mit fester Hülle umschlossenen Sporen als Chlamydosporen, die nackten als Gymnosporen. Nach seiner Ansicht dienen die ersteren zur propagativen, die letzteren zur multiplikativen Vermehrung. Doch ist dies noch ganz hypothetisch, da bisher bei je einer Art nur eine Art von Sporen gefunden wurde.
Da selbst die Morphologie der Tiere und ihrer Sporen noch strittige Punkte enthält und ungenau bekannt ist, so kann es nicht verwundern, daß wir von der frühen Entwicklung, der Infektion, von einer etwaigen multiplikativen Fortpflanzung und von geschlechtlichen Vorgängen noch gar nichts Sicheres wissen.
Ueber die Infektionsweise stehen sich zwei Theorien gegenüber: während die einen annehmen, daß sie durch den Magendarmkanal erfolge, glauben die anderen einen Zwischenwirt oder Ueberträger annehmen zu müssen. Es ist bemerkenswert, daß viele der Wirte Pflanzenfresser sind, in welche die in den Muskeln steckenden Sporen ja nur schwer gelangen könnten.
Doch wird von einigen Autoren von gelungenen Infektionsversuchen berichtet, welche nach Verfütterung von sporenhaltigem Material erfolgten. Die experimentellen Untersuchungen der letzten Jahre haben erwiesen, daß die Infektion in gewissen Fällen sicher vom Magen und den anschließenden Darmteilen aus erfolgt; so z. B. bei der Maus.
Th. Smith verfütterte mit Sarkosporidien infizierte Muskulatur der Maus an gesunde Mäuse; nach 45 Tagen fanden sich junge Schläuche, nach 90 Tagen solche mit Sporoblasten, später solche mit Sporen. Dies wurde durch M. Koch bestätigt. Dann fand Negri, daß Sarcocystis muris auf Ratten, Kaninchen und Meerschweinchen übertragen werden kann, Rh. Erdmann, daß S. tenella vom Hammel auf die Maus durch Verfütterung übertragbar ist.
Jedenfalls werden die Wirte mit den Sarkosporidien schon in der Jugend infiziert; man findet sie häufig bei jungen Lämmern; Bertram [S. 918]fand die jüngsten Sarkosporidienzustände, welche überhaupt bisher beschrieben wurden, in einem Lamm von 8 Monaten.
Die Ernährung der Sarkosporidien geht offenbar wie die der übrigen Zellschmarotzer durch Osmose vor sich.
Bewegung ist an den erwachsenen Formen nicht nachgewiesen worden; die Bewegungen, welche man an den Sporen gesehen haben will, haben wir oben schon erwähnt.
Sarkosporidien sind bisher ausschließlich bei Wirbeltieren gefunden worden, und zwar vorwiegend bei Säugetieren. Bei einigen Haustieren sind sie recht häufig: Bei Schafen und Schweinen wurden sie in etwa 98 Proz. der untersuchten Fälle gefunden. Sie wurden aber auch bei Pferden, Rindern, Büffeln, Mäusen, Ratten, Kaninchen, Hunden, Katzen, Hirschen, Rehen, Seehund, Lama, Känguruh und Affen und einigemal selbst beim Menschen nachgewiesen. Außerdem bei einigen Vögeln (Hühnern, Enten, Elstern) und Reptilien (Platydactylus mauretanicus, Lacerta muralis etc.).
Sie kommen fast ausschließlich im Muskelgewebe vor, doch können sie im Lauf der Entwicklung ins Bindegewebe geraten. In den infizierten Muskelzellen veranlassen sie eine Verdickung, aber keine sonstige bemerkbare Reaktion. Die Querstreifung bleibt lange intakt, wie wir das ja auch bei Cnidosporidieninfektionen kennen lernten. Allmählich wird beim fortgesetzten Wachstum die Muskelzelle zerstört.
Erreicht das Einzelindividuum in seinem Wachstum die Größe einer Muskelzelle, so gerät es aus derselben heraus und wird intercellulärer Gewebeparasit. Meist wird es sodann von einer Cyste umschlossen.
Solche Cysten bilden sich mit Vorliebe im Oesophagus (Fig. 887), auch im Darm, auf der Pleura, im Peritoneum. Sie erreichen z. B. bei Sarcocystis tenella einen Durchmesser von 16 mm, beim Sarkosporid des Rehs 55 mm.
Ueberhaupt sind die Muskelgruppen, welche dem Magendarmkanal benachbart sind, Prädilektionsstellen für die Sarkosporidieninfektion, ähnlich wie dies bei der Trichinosis sich verhält. Es kommen dabei vor allem die Bauchwandmuskeln, das Diaphragma, der Psoas, die Muskeln des Schlundes und der Zunge, des Kehlkopfs, aber auch die Augenmuskeln in Betracht.
Angeblich soll nach der Sprengung der Wirtszelle statt der Cystenbildung auch diffuse Infiltration entstehen können. Es soll dann „der entwicklungsfähige Inhalt“ des Sarkosporidienschlauches die Nachbarschaft überschwemmen und zu ausgedehnter Tumorenbildung Anlaß geben. Nach der Auffassung Minchins sind die Träger dieser multiplikativen Fortpflanzung die Gymnosporen. Er findet eine Bestätigung seiner Ansicht in der Tatsache, daß in den Fällen, in welchen man multiplikative Fortpflanzung auf Grund der weitgehenden Ueberschwemmung des Wirtsorganismus mit Sarkosporidien annehmen muß (bei Sarcocystis muris), gerade Gymnosporen nachgewiesen wurden.
[S. 919]
Die Sarkosporidien treten nach verschiedenen Beobachtungen in Viehherden endemisch auf.
Sie verursachen Krankheiten der befallenen Tiere. Bei Schweinen z. B. wurde Lähmung der hinteren Extremitäten, Krankheitssymptome verschiedener Art, auch Fieber festgestellt. Bei Mäusen wurde eine Epidemie mit raschem Tod der Infizierten nachgewiesen.
Die krankheiterregende Wirkung der Sarkosporidien wird hauptsächlich auf von ihnen produzierte toxische Substanzen zurückgeführt, seit wir durch die Untersuchungen von Pfeiffer, Kasparek, Laveran, Mesnil, Rievel u. Behrens wissen, daß der Glyzerinextrakt von Sarkosporidienschläuchen bei Injektion in Kaninchen tödliche Symptome hervorruft. Kleine Dosen verursachen Fieber, größere Kollapserscheinungen und nach einigen Stunden den Tod nach starker Diarrhöe. Laveran u. Mesnil nannten das den Bakterientoxinen ähnliche Gift Sarkocystin, und stellten fest, daß es auf andere Tiere keine oder geringe Wirkung ausübt. Rievel und Behrens fanden, daß es sich um ein Nervengift handelt, welches vorwiegend in der Gehirnsubstanz gespeichert wird. Nach Teichmann wird es im Zentralnervensystem an die Lipoide gebunden. Es ist ein echtes Toxin (Sarcosporidiotoxin), eine thermolabile, filtrierbare Substanz, die nur für Kaninchen toxisch ist. Kaninchen lassen sich gegen dasselbe immunisieren, durch ihr Serum läßt sich die Immunität passiv übertragen.
Die Systematik einer noch so ungenügend erforschten Gruppe ist natürlich noch sehr im Argen. Ein Versuch von Blanchard, die bekannten Arten zu ordnen, hat sich als unhaltbar erwiesen, da spätere Untersuchungen erwiesen, daß in der Entwicklung eines Individuums Formen vorkommen können, welche nach Blanchard verschiedenen Gattungen oder gar Familien angehört haben würden. Es sind eine größere Anzahl von Arten benannt und beschrieben worden, welche aus praktischen Gründen wohl vorläufig beibehalten werden dürfen. Doch haben die Infektionsversuche (vgl. S. 917 und 927) bewiesen, daß in verschiedenen Wirten die Arten abändern, so daß die Artgrenzen der bisher meist nach den Wirten definierten Sarkosporidien wenig gesichert erscheinen.
Die Ordnung wird daher im nachfolgenden nur durch eine Gattung vertreten.
Gattung: Sarcocystis Lankester.
1. Sarcocystis miescheriana (Kühn).
|
1865.
|
Synchytrium miescherianum Kühn,
in: Mitteil. des Landwirtschaftl. Inst. Halle. p. 68.
|
|
1899.
|
Sarcocystis miescheriana Labbé,
in: Tierreich. Lief. 5. Sporozoa. p. 116. (Daselbst Literatur.)
|
Die Schläuche dieser Arten können 500 µ bis 4 mm Länge und bis 3 mm Breite erreichen. Das Ektoplasma ist sehr deutlich gestreift.
Das Entoplasma ist stark granuliert und enthält zahlreiche stark lichtbrechende Fetttropfen (Fig. 888).
Die „Pansporoblasten“ messen 5–6 µ. Sie sind durch ziemlich feste Maschen der Grundsubstanz, welche vollkommen abgeschlossene Kammern um sie bildet, voneinander getrennt.
[S. 920]
In den „Pansporoblasten“ teilen sich die Kerne, es entstehen zahlreiche Sporoblasten; dieselben sind einkernig; sie sind zunächst kuglig (Fig. 888 a); im Verlauf der Entwicklung erhalten sie eine deutliche Membran, das Plasma zieht sich in den einen Teil der Kugel zurück (Fig. 888 b), dann werden sie allmählich bohnenförmig und schließlich fast wurstförmig gebogen, wobei bläschenförmige stark lichtbrechende Gebilde in ihrem Innern auftreten (Fig. 888 b-c). Teilungen der jungen Sporen wurden auch bei dieser Form von Manz und Negri gesehen (vgl. Fig. 888 d).
Nicht selten fallen die Schläuche in den infizierten Tieren mit der Zeit dem Untergange anheim; es wandern dann zahlreiche Leukocyten (nach Bertram) ein, die Gerüstsubstanz und die zerfallenden Sporen werden allmählich beseitigt. Während des Zerfalls lagern sich gar nicht selten Kalksalze in den Schläuchen oder in ihrer Umgebung ab (Fig. 890).
[S. 921]
Die Art schmarotzt in den Muskeln des Schweines (Sus domesticus), und zwar ist sie in einzelnen Gegenden sehr häufig, so daß sie z. B. von Kühne in 98,5 Proz. aller untersuchten Schweine gefunden wurde. Sie soll in Gegenden mit reinlicher Stallwirtschaft viel seltener sein.
Man findet sie vorwiegend in den Kehlkopf-, Zwerchfell- und Zwischenrippenmuskeln, außerdem in den Muskeln der Lenden, des Rumpfes, der Augen und des Herzens (vgl. Fig. 889).
Ob die Infektion eine Erkrankung der Tiere bedingt, ist strittig. Aber es kann jedenfalls nicht geleugnet werden, daß bei hochgradiger Infektion, besonders in der Einwanderungsperiode, ebenso Störungen eintreten müssen wie z. B. bei der Trichinose, was schon L. Pfeiffer hervorhob. Ob aber tatsächlich die bei Schweinen nicht selten auftretenden interstitiellen Muskelentzündungen durch Sarkosporidien verursacht sind, ist noch keineswegs erwiesen. In manchen Fällen wurden Lähmungen, besonders der hinteren Extremitäten, auf später nachgewiesene starke Sarkosporidieninfektion derselben zurückgeführt.
Uebertragung usw. ist noch vollkommen rätselhaft.
2. Sarcocystis Bertrami Doflein.
|
1872.
|
Siedamgrotzky, in: Wochenschr.
f. Tierheilk. u. Viehzucht. Vol. 16. p. 97.
|
|
1892.
|
Bertram, in: Zool. Jahrb.
Anat. Vol. 5. p. 10.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 116. (Daselbst Literatur.)
|
|
1901.
|
Doflein, in der 1. Aufl.
dieses Buches.
|
Ich hielt es für geeignet, dieser allerdings noch ungenügend charakterisierten Art um der präziseren Bezeichnung willen einen Speciesnamen zu geben, und benannte sie zu Ehren desjenigen Forschers, welcher in dem Jahrzehnt 1890–1900 fast den einzigen Fortschritt auf dem Gebiet der Sarcosporidienkunde gebracht hatte.
Die Art scheint nach den Beschreibungen S. miescheriana sehr nahezustehen. Die Schläuche erreichen eine Länge von 9–10 mm. Auch hier findet sich die Stäbchenstruktur der Cuticula und die Kammerung des Schlauches.
Die „Pansporoblasten“ haben einen Durchmesser von 6 µ. In ihnen entstehen zahlreiche Sporen, welche nach van Eecke, dessen Arbeit mir leider nicht zugänglich war, einen Fadenanhang besitzen sollen (?). Sie sollen nierenförmig gestaltet sein.
Die Art ist wiederholt im Muskel- und Bindegewebe des Pferdes (Equus caballus L.) gefunden worden.
Bei der Infektion sollen ziemlich hochgradige Zerstörungen der Muskeln vorkommen; gleichzeitig fand sich eine chronische interstitielle Myositis, welche von einzelnen Autoren auf die Sarcosporidien zurückgeführt wird. In dem Falle handelte es sich um Muskeln der vorderen Extremitäten; häufiger wird der Parasit in der Schlundmuskulatur angetroffen, ohne besondere Erscheinungen hervorzurufen.
Sarcocystis Bertrami soll auch nach einigen Autoren der Erreger der sog. Eisballenkrankheit der jungen Pferde sein. Es liegen jedoch keine hinreichend genauen Untersuchungen vor, um diese Annahme als gesichert erscheinen zu lassen.
[S. 922]
3. Sarcocystis tenella Railliet.
|
1886.
|
Sarcocystis tenella + Balbiania gigantea (part.)
Railliet, in: Bull. et Mém. de la Soc. centr.
de Méd. vét. p. 130.
|
|
1899.
|
Labbé, in: Tierreich. Lief. 5.
Sporozoa. p. 117. (Literatur.)
|
|
Vgl. hierzu auch die Arbeiten von
Rhoda Erdmann 1910 u. 1911. (S. Lit.-Verz.)
|
|
Die Schläuche dieser Art schwanken in der Größe zwischen 40 µ und 2 cm.
Während die jüngsten Stadien nackt sind, dann nur eine dünne Hülle zeigen (Fig. 891 C), besitzen die etwas älteren schon das typische gestrichelte Ektoplasma (Fig. 891 A u. B). Bei alten Exemplaren kann dasselbe eine Dicke von 4 µ erreichen.
In großen Cysten findet man gewöhnlich die zentralen Teile verödet, indem nur noch die Kammerung vorhanden ist, die Sporen dagegen fehlen.
Die Sporoblasten messen 4–5 µ im Durchmesser. Die Sporen, welche sehr klein sind, haben eine nierenförmige Gestalt. Die Sporen sollen bisweilen auch Fäden tragen (?). Die Entwicklung dieser Art ist oben in der allgemeinen Einleitung nach den Experimenten von Erdmann geschildert (S. 917). Sie verläuft ganz entsprechend derjenigen von S. muris.
Die Art schmarotzt bei dem Schaf (Ovis aries) und ist bei diesem sehr häufig (98 Proz. in manchen Gegenden).
[S. 923]
Außer in den Muskeln des Schlundes, wo sie hauptsächlich vorkommt (Fig. 892), kommt sie auch in zahlreichen anderen Muskeln vor; nach Bertram findet man Sarcocystis tenella in den Zungen-, Kau-, Schlundkopf-, Kehlkopf-, Schlund-, Nacken-, Zwischenrippen-, Zwerchfell-, Herz-, Bauch- und Lendenmuskeln. Die größeren Formen fanden sich nur in der Kehlkopf-, Pharynx-, Schlund-, Zungen- und Gaumensegelmuskulatur; auch in den Augenmuskeln kommen kleine Schläuche vor.
Von einem gewissen Interesse ist das Vorkommen von Sarcocystis tenella in den Purkinjeschen Fasern des Herzmuskels (Fig. 893).
Es sind verschiedentlich Todesfälle bei Schafen auf Erstickung infolge der großen Ausdehnung von Sarcosporidiengeschwülsten in der Nachbarschaft der Atemwege zurückgeführt worden. Auch hat man das massenhafte Vorkommen im Herzen, wohl mit Recht, als bedeutende Schädigung, eventuell als Todesursache der Schafe betrachtet.
Von besonderem Interesse ist die Tatsache, daß es gelingt, S. tenella mit infiziertem Hammelfleisch an Mäuse zu verfüttern. Nach 2–3 Monaten findet man in der Muskulatur der letzteren dann die Schläuche vor, welche allerdings in dem neuen Wirt viel kleiner sind, als im Schaf, und eine dünne spindelförmige Gestalt im Gegensatz zur ovalen der ursprünglichen Form angenommen haben.
4. Sarcocystis Blanchardi Doflein.
|
1892.
|
van Eecke, in: Jaarsverslag
d. path. Inst. zu Weltewreden. Batavia. p. 37–87.
|
|
1899.
|
Sarcocystis Labbé, in:
Tierreich. Lief. 5. Sporozoa. p. 119.
|
|
1901.
|
Doflein, in der 1. Aufl.
dieses Buches.
|
[S. 924]
van Eecke hat in einer mir nicht zugänglichen Arbeit Stadien einer Sarcocystisart beschrieben, welche bisher nicht bekannt ist, und welcher ich aus denselben Gründen, wie sie oben S. 921 angeführt wurden, den Namen Sarcocystis Blanchardi gebe.
Die Beschreibungen van Eeckes scheinen, nach den Referaten zu schließen, nicht ganz exakt zu sein. Seine Abbildungen sind aber sehr instruktiv; ich gebe daher Reproduktionen von einigen derselben aus Wasielewskis Sporozoenkunde (Fig. 894 und 895).
Sie scheinen mir keiner weiteren Erläuterung zu bedürfen.
Die Art wurde beobachtet in Bubalus sp., einer der in Java domestizierten Büffelarten.
[S. 925]
Sie scheint aber identisch zu sein mit der Sarcocystisart, welche bei uns nicht selten die Rinder befällt. Sie scheint bei denselben auch alle Muskeln befallen zu können; schon Siebold und Hessling hatten sie im Herzmuskel der Rinder gesehen, Sanfelice fand sie in der Zunge bei sizilianischen Rindern fast regelmäßig.
Jedenfalls ist aber die Art uns sehr ungenau bekannt, da keiner der Untersucher exakte Angaben über Größenverhältnisse usw. macht.
5. Sarcocystis Lindemanni (Rivolta).
|
1878.
|
Gregarina Lindemanni Rivolta,
in: Giorn. Anat. Fisiol. p. 12.
|
|
1892.
|
Sarcocystis hominis Rosenberg,
in: Zeitschr. f. Hygiene. Vol. 11.
|
|
1893.
|
Baraban und
St. Rémy, in: Bibliographie anatomique. Vol. 1.
p. 79.
|
|
1899.
|
S. Lindemanni (Riv.)
Labbé, in: Tierreich. Lief. 5. Sporozoa.
p. 79.
|
[S. 926]
Auch beim Menschen sind Sarcosporidien gefunden worden, aber nur in einigen Fällen, einmal auch bei einem Hingerichteten.
Dieser Fall wurde von Baraban und St. Rémy in Nancy konstatiert, welche in den Kehlkopfmuskeln eines Menschen Schläuche in der Größe bis 1,6 mm Länge und bis 170 µ Dicke auffanden (Fig. 896, 1).
Sie zeigen eine dünne Hülle, welche sich an den Enden etwas verdickt. Die Kammerung des Körpers ist deutlich erkennbar (Fig. 896, 4). Die Hülle ist etwas dünn, der helle Zwischenraum in Fig. 896, 3 ist ein Kunstprodukt.
Die Sporen sind etwas bananenförmig, in großer Menge vorhanden und erreichen 8–9 µ Länge.
Rob. Koch stellte als erster in neuerer Zeit (1887) unzweifelhaft diese Form beim Menschen fest; die Angaben von Lindemann waren angezweifelt worden. Weitere Fälle wurden außer von Baraban und St. Rémy von Kartulis, Rosenberg und Darling konstatiert.
Es ist nicht ausgeschlossen, daß diese Art mit S. tenella identisch ist.
6. Sarcocystis Hueti Blanchard.
|
1885.
|
Miescheria Hueti R. Blanchard,
Zoologie médicale. Vol. 1. p. 54.
|
|
1899.
|
Labbé, in: Tierreich. Lief.
5. Sporozoa. p. 118.
|
Wir führen diese von den anderen Sarcocystisarten einigermaßen abweichende Art hier an, um auf die große Aehnlichkeit, welche sie mit gewissen Mikrosporidien, besonders mit Plistophoraarten, hat, hinzuweisen.
Sie bildet lange, spindelförmige Schläuche, welche 300 µ bis 4 mm in der Länge, 20–30 µ in der Breite erreichen können (Fig. 897 A). Die Schläuche sind mit kugligen „Pansporoblasten“ erfüllt, welche eine große Anzahl von nieren- oder spindelförmigen Sporen enthalten; der Durchmesser der Sporen beträgt 4–5 µ (Fig. 897 B und C).
Die Art fand sich in ungeheuren Mengen in den Muskeln eines Seehundes: Zalophus californianus (Less.) (Otaria californica).
[S. 927]
7. Sarcocystis muris Blanchard.
|
1885.
|
Miescheria muris R.
Blanchard.
|
|
1901.
|
Koch, M., Ueber
Sarcosporidien. In: Verhandl. d. 5. Intern. Zool.-Kongr. in Berlin,
p. 674.
|
|
1904.
|
Koch, M., Die experimentelle
Uebertragung der Miescherschen Schläuche. In: Berl. klin. Wochenschr.
p. 374.
|
|
1905.
|
Smith, Th., The production of
sarcosporidiosis in the mouse by feeding infected muscular tissue. In:
Journ. comp. Med. Vol. 6. p. 1.
|
|
1907.
|
Nègre, L., Sarcosporidiose
expérimentale. In: C. R. Soc. Biologie. Vol. 57. p. 374.
|
|
1908–1910 Negri, A.,
Beobachtungen über Sarcosporidien. I. In: Centralbl. f. Bakt. Orig. Vol.
47. p. 56. II. Ibid. p. 612. III. Ibid. Vol. 55. p. 373.
|
|
|
1910.
|
Nègre, L., Sur le stade
intestinal de la sarcosporidie de la souris. Compt. rend. Soc. Biol.
Paris. Vol. 68. p. 997.
|
|
1910.
|
Erdmann, Rh., Die Entwicklung
der Sarcocystis muris in der Muskulatur. In: Sitz.-Ber. d. Ges. Naturf.
Freunde Berlin. Jahrg. 1910. No. 8. p. 377.
|
Diese neuerdings vielfach untersuchte Form erreicht eine bedeutende Größe der Schläuche (bis zu mehreren Zentimetern). Die Sporen messen 13–15 µ in der Länge, 2,5–3 µ in der Breite.
Nach Koch kommen an den Sporen merkwürdige rotierende Bewegungen zustande, wenn sie ganz frisch, kurz nach dem Tode des Wirts, dessen Muskeln entnommen werden.
Negri gibt neuerdings an, an den Sporen Längsteilungen beobachtet zu haben.
Koch, Smith sowohl als Nègre und Negri haben durch Verfütterung der Sporen künstliche Infektion der Mäuse erzielt. Die Zeit von der Infektion bis zum Nachweis der Parasiten im neuen Wirt ist eine ziemlich lange; es gelingt der Nachweis in den Muskeln erst nach ca. 45 bis 50 Tagen. Das Wachstum bis zu dem Stadium der typischen Muskelschläuche, welche selbst wieder infektionsfähige Sporen enthalten, dauert 2½-3 Monate.
Der Parasit kommt bei Hausmäusen und Ratten (auch weißen Ratten) in der Rumpfmuskulatur vor und verursacht bisweilen bei ihnen Epidemien mit schwerer Erkrankung und zahlreichen Todesfällen.
Negri hat sporenhaltige Schläuche von S. muris an Meerschweinchen verfüttert und bei fast sämtlichen Versuchstieren dann nach 50–100 Tagen in den Muskeln (Pectorales) junge Sarcosporidienschläuche von 40–100 µ Länge nachgewiesen. Dieselben enthielten Sporen, welche nur 3–5 µ lang waren.
Negri hält dieselben für Abkömmlinge von S. muris, welche im Meerschweinchen eine andere Wachstumsform annimmt. In nicht mit [S. 928]Sarcocystis gefütterten Meerschweinchen wurden niemals Sarcosporidien gefunden. Mit Recht macht Negri darauf aufmerksam, daß, wenn seine Befunde sich bestätigen, man die hauptsächlich auf die morphologischen Verhältnisse und das Vorkommen begründeten Species der Sarcosporidien einer sorgsamen Revision unterziehen muß.
Die neueren Untersuchungen bestätigen tatsächlich das wesentliche Resultat seiner wichtigen Experimente (vgl. R. Erdmann, Darling etc.).
Nach De Korté (Journ. Hygiene Cambridge. Vol. 5. 1905. p. 451) kommen auch bei einem Affen (Macacus rhesus) Sarcosporidien vor.
v. Ratz fand in Ungarn Sarcocystis gracilis Ratz beim Reh und S. Horvathi Ratz bei Hühnern.
Die Gilruthcyste.
An dieser Stelle sei ein eigenartiger Parasit erwähnt, der erst vor kurzem entdeckt wurde und in manchen Punkten, besonders in der Art seines Vorkommens, den Sarcosporidien ähnelt. Manches an ihm erinnert an Flagellaten, doch müssen genauere Untersuchungen abgewartet werden, ehe seine systematische Stellung festgelegt wird.
[S. 929]
Gastrocystis Gilruthi Chatton.
|
1910.
|
Gilruth, J. A., Notes on a
protozoon found in the mucous membrane of the abomasum of a sheep. In:
Proc. Roy. Soc. Victoria. Vol. 23. N. S. Pt. I. p. 19.
|
|
1910.
|
Chatton, E., La kyste de
Gilruth dans la muqueuse stomacale des ovidés. In: Arch. Zool. exp. gén.
Vol. 5. Notes et Revue. No. 4. p. CXIV.
|
In Tasmanien fand Gilruth einen cystenbildenden Parasiten in der Magenschleimhaut eines Schafes. Später fand er ihn sehr häufig dort, und in Paris wurde durch Chatton festgestellt, daß er fast bei jedem Schaf zu finden ist. Bei intensiver Infektion kommt etwa eine Cyste auf 1 ccm der Schleimhaut. Bei den Ziegen kommt der Parasit ebenso häufig vor. Er bildet große kuglige Cysten in der Schleimhaut, welche in reifem Zustand an die reifen Oocysten der Malariaparasiten erinnern, denn sie sind ganz mit Rosetten von spindelförmigen Keimen angefüllt (Fig. 899 B). Im unreifen Zustand sieht man alle möglichen Entwicklungsstadien der Keime aus einer vielkernigen, von großen Vakuolen durchsetzten Plasmamasse entstehen (Fig. 899 A). Schließlich bilden sich morulaähnliche Kernhaufen (Fig. 899 C), aus denen die Büschel von Keimen entstehen, deren jeder einen Kern und ein blepharoplastähnliches Gebilde besitzt (Fig. 899 F).
III. Ordnung.
Haplosporidia. Caullery u.
Mesnil.
Die Haplosporidien sind sehr kleine Sporozoen, welche in manchen Beziehungen an die parasitischen Mycetozoen (vgl. S. 672 ff.) erinnern, auch an Stadien von pflanzlichen Parasiten gemahnen, aber in ihrem Bau und ihrer Entwicklung so weit den Mikrosporidien und Sarcosporidien ähnlich sind, daß sie gewöhnlich den Neosporidien zugerechnet und an dieser Stelle im System eingefügt werden.
Die jüngsten bekannten Stadien sind kleine einkernige kuglige Gebilde. Diese wachsen heran, behalten Kugelform oder werden schlauchförmig etc. Während des Wachstums werden sie vielkernig. Im erwachsenen Zustand zerfällt die Körpermasse in die Pansporoblasten. Jeder derselben liefert einen oder mehrere (4) Sporoblasten. Das ganze Gebilde erinnert nach dem Zerfall in die einkernigen Sporoblasten an eine abgefurchte Zellmasse eines Metazoenkeims. Man bezeichnet dieses Stadium auch als „Morula“-Stadium. Zwischen den einzelnen Sporoblasten bleibt ein Teil Körperprotoplasma als Restkörpermasse zurück, welche hier also kein einheitliches Gebiet darstellt.
Bei manchen Formen wachsen die einkernigen Pansporoblasten heran und bilden nach erfolgter Kernteilung eine sekundäre, eine „Sporen-Morula“ (Rhinosporidium, Neurosporidium).
Die einkernigen Sporoblasten werden durch Ausscheidung einer festen Hülle zu kugligen, ovalen oder anders geformten Sporen, welche außer dem einen Kern im Innern keine weiteren Differenzierungen erkennen lassen. Die Sporenhüllen sind glatt, oft mit eigenartigen Fortsätzen ausgestattet.
Geschlechtliche Vorgänge sind unbekannt; ebensowenig ist multiplikative Fortpflanzung beobachtet worden (vgl. unten die Angaben bei Bertramia).
[S. 930]
Die Sporen geben bei neuer Infektion direkt den einkernigen Jugendstadien den Ursprung.
Haplosporidien kommen vor bei Rotatorien, Anneliden, Crustaceen, bei Cephalodiscus und dem Menschen.
Nach Ridewood und Fantham teilt man die Haplosporidien in zwei Gruppen.
1. Unterordnung.
Oligosporulea Ridewood u.
Fantham.
1. Familie: Bertramiidae Caull. u. Mesn.
Gattung: Bertramia Caullery. u. Mesnil.
Bertramia asperospora (Fritsch).
|
1895.
|
Glugea asperospora Fritsch.
|
|
1899.
|
Ascosporidium Blochmanni
Zacharias, Zum Kapitel der wurstförmigen
Parasiten bei Rädertieren. In: Zool. Anz. Vol. 25. p. 647.
|
|
1902.
|
Bertramia asperospora Cohn,
Protozoen als Parasiten in Rotatorien. In: Zool. Anz. Vol. 25. p. 497.
|
Die Arten der Gattung Bertramia sind wurst- oder scheibenförmige Parasiten der Leibeshöhle von Würmern und Rotatorien. Sie sind in allen Stadien bewegungslos. Bei B. asperospora kann nach Bertram die „Morula“ zerplatzen, und die Sporen können im eigenen Wirt auf diese Weise zu multiplikativer Vermehrung gelangen. Neuere Untersucher haben nur Bildung einer dicken Cyste um die „Morula“ beobachtet, welche nach dem Tod und Zerfall des Wirts die Sporen entleert (Fig. 900 E); diese werden dann verschlungen und gelangen durch den Darm in noch ungeklärter Weise in die Leibeshöhle.
B. asperospora kommt in Süßwasserrotatorien (Brachyonus u. a.), B. capitellae Caull. u. Mesn. in dem marinen Annelid Capitella vor. B. blatellae (Crawley) aus den Malpighischen Gefäßen von Blatella (= Blatta) germanica wurde von dem Entdecker ursprünglich der Gattung Coelosporidium eingereiht.
[S. 931]
Zu den Bertramiiden gehört ferner wahrscheinlich die Gattung Ichthyosporidium Caull. u. Mesn., welche eine Anzahl Parasitenarten aus Fischen umfaßt. Von diesen Formen ist die Sporulation noch nicht bekannt, aber die von ihnen bekannten Stadien sind denen der Bertramien sehr ähnlich. Arten: I. gasterophilum Caull. u. Mesn. und I. phymogenes Caull. u. Mesn. aus Meeresfischen. Eine Form dieser Gattung ist von Robertson aus Pleuronectes flesus beschrieben worden.
Sehr ähnlich den Arten dieser Gattung ist ferner eine Form, welche als der Erreger der Taumelkrankheit der Salmoniden von Hofer beschrieben wurde, worauf ich hiermit aufmerksam mache. (Vgl. Hofer, Handbuch der Fischkrankheiten. 1904. p. 286.)
Es erscheint mir sehr bedeutungsvoll und für meine oben ausgesprochene Ansicht der pilzähnlichen Natur mancher hierher gerechneter Formen sprechend, daß neuerdings Plehn und Mulsow (in: Centralbl. f. Bakt. u. Paras. Orig. Vol. 59. 1911. p. 63) nachgewiesen haben, daß dieser Organismus, den sie Ichthyophonus Hoferi nennen, in Kulturen zu mycelartigen Strängen auswächst und sich auch sonst wie ein Phycomycet zu verhalten scheint. Sie sind daher geneigt, ihn in die Nähe der Chytridinen zu stellen, denen manche Haplosporidien ohnehin in vielen Punkten ähneln.
2. Familie: Haplosporidiidae Caull. u. Mesn.
Gattung: Haplosporidium Caullery. u. Mesnil.
Die Arten der Gattung Haplosporidium parasitieren in marinen Anneliden, eine Form wurde auch in einem Süßwasseroligochäten gefunden. [S. 932]Man findet sie sowohl intra- als auch extracellulär. H. Marchouxi C. und M. z. B. findet sich in jungen Stadien in den Zellen des Cölomepithels des Anneliden Salmacina dysteri, die älteren Stadien und die Cysten liegen frei im Cölom. Beim Heranwachsen werden die Individuen vielkernig, sie bilden eine Cystenhülle, innerhalb deren der Körper in einkernige Pansporoblasten zerfällt; diese werden vierkernig und bilden je 4 Sporen von der Form eines Eies mit einem plattgedrückten Pol (Fig. 901 H u. D). Die Sporen messen 10–12 µ in der Länge und 6–7 µ in der Breite. Die Art wurde an der Küste der Nordsee in Frankreich gefunden.
Sehr nahe steht die Gattung Urosporidium C. und M., ebenfalls aus marinen Anneliden; die Sporen dieser Gattung sind durch einen langen, schwanzartigen Anhang ausgezeichnet.
Eine Art der Gattung Anurosporidium Caullery u. Chappellier wurde als Parasit im Parasiten in einem Trematoden gefunden.
3. Familie: Coelosporidiidae Caull. u. Mesn.
Umfaßt die Gattungen: Coelosporidium Mesnil u. Marchoux und Polycaryum Stempell. Vor allem letztere Gattung ist interessant durch die eigenartige Linsenform des Körpers. Es handelt sich ausschließlich um Formen aus niederen Crustaceen. Die Sporen sind nicht beschalt, vielmehr werden nackte „Sporozoiten“ gebildet, welche das Innere der dicken Körperhülle erfüllen.
In die Nähe scheint der interessante, von Schewiakoff bei Daphniden gefundene Parasit zu gehören, den Caullery und Mesnil als Scheviakovella bezeichnet haben. Er zeichnet sich dadurch aus, daß die Sporenzahl sich während des Wachstums vermehrt.
2. Unterordnung.
Polysporulea Ridewood u.
Fantham.
Gattung: Rhinosporidium Minch. u. Fanth.
Rhinosporidium Kinealyi Minch. u. Fanth.
|
1905.
|
Minchin u.
Fantham, Rhinosporidium Kinealyi a new
Sporozoon from the mucous membrane of the septum nasi of man. In: Anat.
Journ. micr. Sci. Vol. 49. p. 521.
|
In Calcutta wurde in mehreren Fällen (8–10) beim Menschen (eingeborenen Indiern) in gestielten Tumoren am Septum narium ein Parasit gefunden, der von den Autoren hier eingeordnet wird. Es handelt sich um rundliche oder ovale Körper von 100–250 µ Durchmesser, welche von einer dicken, strukturlosen Hülle umschlossen sind. Das Plasma enthält zahlreiche Kerne und scheint peripher noch zu wachsen, während vom Zentrum die Sporulation beginnt. Es sondert sich dann um je einen Kern ein Pansporoblast ab, welcher nach erfolgter Kernvermehrung in seinem Innern eine größere Anzahl von Sporen bildet. Oft sind am Rand die Pansporoblasten noch in der Bildung begriffen, wenn im Innern der Cyste schon die fertigen Sporen vorhanden sind. Die Sporen sind kuglig oder oval, von glatter Oberfläche und haben nur ca. 1 µ Durchmesser.
[S. 933]
Der Parasit liegt im Bindegewebe unter dem Epithel in Falten der Schleimhaut, welche die Wucherung überzieht. Da die Geschwulst nach der Operation Neigung hat, sich wieder zu bilden, so vermutet man, daß eine multiplikative Fortpflanzungsweise vorkommt, etwa durch Platzen der Cysten und Zerstreuung der Sporen im umliegenden Gewebe.
Die nahestehende Gattung Neurosporidium (N. cephalodisci Fantham) wurde im Nervensystem von Cephalodiscus gefunden.
Viele Aehnlichkeiten mit den hier behandelten Formen haben die Chytridineen, welche wie viele der in diesem Buch behandelten Organismen zu dem Grenzgebiet zwischen Tier- und Pflanzenreich gehören. Sie werden meist von den Botanikern untersucht, müssen aber von jedem berücksichtigt werden, der die Verwandtschaftsverhältnisse der Sporozoen, der Flagellaten und Rhizopoden studieren will.
Anhang.
Um der Vollständigkeit willen sei hier noch auf einige Gruppen von Sporozoen hingewiesen, deren Forschung noch viel zu wünschen übrig läßt. So ist denn auch ihre systematische Stellung noch schwankend.
Serumsporidia.
L. Pfeiffer hat eine Anzahl von Arten ungenau beschriebener Parasiten unter diesem Namen zusammengefaßt. Diese kommen in der Leibeshöhle niederer Crustaceen vor, wo sie in der Blutflüssigkeit (Serum) flottieren.
Sie sind rundlich geformt, auch länglich-oval bis spitzoval. Sie sind sehr klein (Durchmesser 4–90 µ). Es wurde eine doppelte Fortpflanzungsweise bei ihnen festgestellt: entweder sie vermehren sich frei durch Teilung, oder das Serumsporidium scheidet eine Cyste ab, deren Inhalt in zahlreiche amöboide Keime zerfällt.
Gattung: Serumsporidium L. Pfeiffer.
Rhinosporidium Kinealyi Minch. u. Fanth.
|
1895.
|
L. Pfeiffer, in: Protozoen
als Krankheitserreger. Nachträge 1895. p. 11.
|
Der Parasit, welcher in Fig. 903 dargestellt ist, erreicht im Durchschnitt eine Größe von nur 4 µ.
[S. 934]
Er wurde in einer Cyprisart (C. ettersbergensis Müller) bei Weimar gefunden.
Es werden hierher ferner gerechnet:
- Blanchardina Labbé,
- Botellus Moniez
und die interessante Gattung:
Lymphosporidium Calkins.
Die Arten dieser Gattung erzeugen schwere Epidemien bei Fischen. Als kleine amöboide Körper treten die jüngsten Stadien in der Lymphe von Fischen auf; sie befallen sodann die Muskeln der [S. 935]Eingeweide und andere Organe. Dort wachsen sie heran, der Kern geht in Chromidialzustand über. Die herangewachsenen Parasiten geraten wieder in die Lymphe oder in hohle Organe (Gallenblase, Darm) und bilden zahlreiche Sporen, welche in alle Teile des Körpers verschleppt werden. Durch Verstopfung der Lymphwege führen sie schwere Störungen, Geschwürsbildung und Tod des Wirts herbei. Vermutlich geraten die Sporen nach dem Zerfall der Wirte in den Darm neuer Wirte, wo sie 8 Sporozoiten in sich entstehen lassen, welche die Infektion im neuen Wirt verbreiten. Auch im gleichen Wirt scheinen sie keimen zu können.
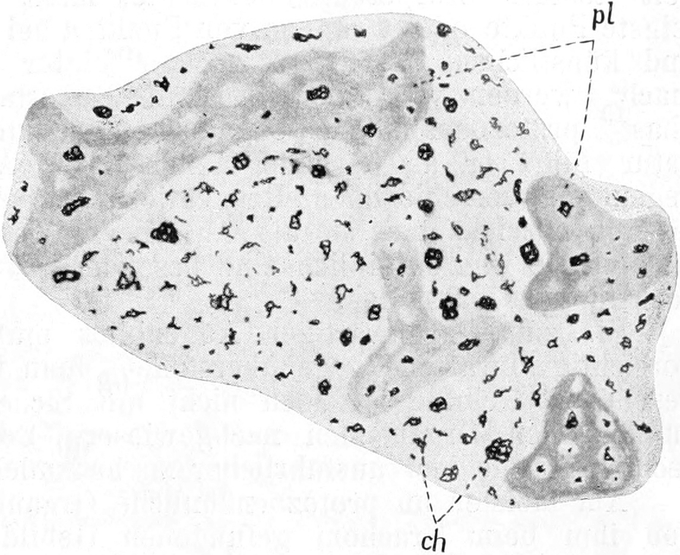
Lymphosporidium truttae Calkins kommt in dem Bachsaibling Salvelinus fontinalis vor und führt in den Zuchtanstalten Nordamerikas schwere Epidemien herbei.
Lymphocystis Johnstonei Woodcock, eine Form aus Pleuronectes flexus, ist besonders von Awerinzew untersucht worden, welcher eigenartige Chromidien etc. beschrieb. Die Entwicklung der Form und selbst der Bau ist noch ganz unklar. Wenn die von Awerinzew beschriebenen Sporen wirklich mit den Lymphocystiskörpern zusammengehören, so würde es sich um ein echtes Myxosporid, wahrscheinlich sogar um einen Angehörigen der Gattung Henneguya handeln.
Ehe wir entscheiden können, ob die neuerdings von Krassilstschik (Arch. f. Protistenk. Vol. 14. 1908. p. 1) bei Insekten gefundenen, sehr kleinen Sporozoen, welche er zu einer neuen Gattung Microclossia rechnet, wirklich Zwischenformen zwischen Telosporidien und Neosporidien darstellen, müssen weitere Untersuchungen abgewartet werden. Krassilstschik nimmt an, daß die von ihm beobachteten Formen sich zum Teil nach dem Typus von Coccidien, zum Teil nach dem Typus von Mikrosporidien entwickeln. Ja, er vermutet sogar, daß sich in den Entwicklungszyklus aller Cnidosporidien ein bisher unbekannter Teil einschaltet, welcher diese Organismen seinen Mikroclossien nähere. Vorläufig ist noch nicht zu entscheiden, ob nicht Kombination von Stadien verschiedener Parasiten etc. vorliegt.
Zum Schluß wäre hier im Anhang zu den Plasmodromen noch in Kürze einiger unsicherer Formen Erwähnung zu tun.
[S. 936]
1. Chlamydozoa.
Es gibt eine Anzahl von Krankheiten, bei denen man wegen ihrer infektiösen Natur annimmt, daß ein Organismus das pathogene Agens sein muß. Da alle bakteriologischen Methoden kein Bakterium bisher nachzuweisen gestatteten, da man auch keine den Protozoen ähnliche Gebilde mikroskopisch sichtbar machen konnte, so vermutete man als Erreger einer derartigen Krankheit ein „invisibles Virus“.
Neuerdings hat nun Prowazek angegeben, daß er bei einer ganzen Reihe zu dieser Gruppe gehöriger Krankheiten (Blattern, Scharlach, Gelbsucht der Raupen etc.) an der Grenze der Sichtbarkeit stehende Körperchen beobachtet habe. Diese Körperchen, als feinste Punkte oder Gruppen von Punkten bei starken Vergrößerungen und künstlichen Färbungen nach erfolgter Fixierung sichtbar gemacht, werden von Prowazek als Ruhestadien und Vermehrungsphasen protozoenähnlicher Organismen gedeutet. Für ihre Protozoennatur führt er als Gründe, außer ihrem Aussehen, ihr Verhalten gegenüber verschiedenen Reagentien an. Auf Grund dieser Auffassung bezeichnet er sie als Chlamydozoa, indem er der Ansicht ist, daß sie wahrscheinlich eine besondere Gruppe (Klasse) des Protozoenstammes darstellen.
Bis zum gegenwärtigen Augenblick muß man diesen Angaben vorsichtig abwartend gegenüberstehen, denn für die von Prowazek gesehenen Gebilde ist noch nicht mit Sicherheit die Zugehörigkeit zu lebenden Organismen nachgewiesen. So fehlt für uns die Berechtigung, sie hier ausführlicher zu behandeln.
Am meisten an protozoenähnliche Organismen erinnern noch die von ihm beim Trachom gefundenen Gebilde. Nach neuen Untersuchungen scheint es immer wahrscheinlicher, daß es sich auch in anderen Fällen bei den sog. Chlamydozoen wirklich um Organismen handelt, aber es scheint doch eher, als schlössen sie sich enger an Bakterien an.
2. Pseudoparasiten.
Wer oft Präparate von gewebebewohnenden Protozoen zur Beurteilung vorgelegt bekommt, der weiß, wie schwer vielfach selbst die Erkennung und Bestimmung unzweifelhafter Protozoen in konservierten Präparaten ist. Die Protozoenuntersuchung erfordert eine vielseitige Technik, und meistens müssen sich Untersuchung am lebenden oder lebensfrischen Organismus und die Untersuchung der mit bestimmten Methoden präparierten Objekte ergänzen, um sichere Aussagen zu ermöglichen.
Ja, es gibt Fälle, in denen selbst erfahrene Protozoenkenner getäuscht werden. Ich erinnere nur an die Verwechslung eigenartiger Zelldegenerationsprodukte mit intracellulären Jugendstadien von Gregarinen. Es kommen in den Zellen von Metazoen so eigenartige Bildungen vor, daß die Verwechslung mit Stadien von Protozoen sehr naheliegt, und der Irrtum wird gefördert durch die Kleinheit der in Betracht kommenden Strukturen, welche die Anwendung sehr starker Vergrößerungen erfordern. So kommt es, daß in der pathologischen Literatur eine unübersehbare Zahl von Arbeiten vorliegt, in denen solche Zelleinschlüsse der verschiedensten Art als Protozoen beschrieben sind, und zwar vor allem als Amöben und Sporozoen.
[S. 937]
Alle diese Befunde bei Carcinom und anderen Geschwülsten, bei perniziöser Anämie, bei zahlreichen Tierkrankheiten, beim gelben Fieber, der japanischen Rattenbißkrankheit und exanthematösen Krankheiten haben hier keine Darstellung erfahren, da noch in keinem dieser Fälle das Vorkommen von Protozoen mit Sicherheit erwiesen ist. Es ist nicht ausgeschlossen, daß in dem einen oder anderen Fall die Angaben der Autoren auf richtigen Beobachtungen beruhen. Vorläufig sind die mir zugänglichen Beschreibungen entweder so unzulänglich, daß man nicht angeben kann, ob Protozoen beobachtet worden sind, oder aus den Beobachtungen und ihrer Schilderung geht unzweifelhaft hervor, daß, was vorlag, keine Protozoen waren.
Wichtigste Literatur über Sporozoen.
|
1. Schriften über sämtliche
Sporozoen oder größere Gruppen derselben.
|
|
|
1164.
|
Balbiani, Leçons sur les Sporozoaires. Paris
1884.
|
|
1165.
|
Bütschli, O., Sporozoa. In: Bronn, Klassen und
Ordnungen des Tierreichs. Vol. 1. p. 479.
|
|
1166.
|
Calkins, N. G., The Protozoa. New York 1901.
|
|
1167.
|
Crawley, The interrelationships of Sporozoa. In:
American Naturalist. Vol. 39. 1905. p. 607.
|
|
1168.
|
Delage, Y. et Hérouard, Sporozoaires. In:
Traité de Zoologie concrète. Vol. 1. p. 254.
|
|
1169.
|
Doflein, Die Protozoen als Parasiten und
Krankheitserreger. Jena 1901.
|
|
1170.
|
Hagenmüller, P., Bibliotheca Sporozoologica.
(Bibliographie bis 1. Jan. 1899.) In: Ann. Mus. H. nat. Marseille (2).
Bulletin. Vol. 1. 1899. Livr. 2.
|
|
1171.
|
Labbé, A., Sporozoa. In: Das Tierreich. 1899.
|
|
1172.
|
Lang, A., vgl. No. 7 der Liste auf p. 67.
|
|
1173.
|
Lühe, M., Ergebnisse der neueren
Sporozoenforschung. Jena 1900.
|
|
1174.
|
— Die im Blute schmarotzenden Protozoen und ihre
nächsten Verwandten. In: Mense, Handb. d. Tropenkrankh. Vol. 3. 1906.
p. 69.
|
|
1175.
|
Mesnil, F., Essai sur la classification et
l’origine des Sporozoaires. In: Soc. Biol. Paris. Vol. jubil. 1899.
p. 258.
|
|
1176.
|
Minchin, Sporozoa. In: Ray Lankester, A Treatise
on Zoology. Part 1. Fasc. 2. 1903. p. 150.
|
|
1177.
|
v. Wasielewski, Sporozoenkunde. Jena 1896.
|
|
2. Schriften über Coccidien.
|
|
|
1178.
|
Awerinzew, S., Sur les Coccidies de l’intestin
de Cerebratulus sp. In: Travaux de la Soc. Supér. des Naturalistes de
St. Pétersbourg. Vol. 39. 1908. Livr. 1.
|
|
1179.
|
— Studien über parasitische Protozoen. IV.
Beobachtungen über die Entwicklungsgeschichte von Coccidien aus dem Darm
von Cerebratulus sp. In: Arch. f. Protistenk. Vol. 18. 1910. H. 1.
|
|
1180.
|
Blanchard, R., Les coccidies et leur rôle
pathogène. Causeries scientif. Soc. Zool. France. Année 1900. 8ᵒ.
p. 133.
|
|
1181.
|
Bonnet-Eymard, G., Sur l’évolution de l’Eimeria
nova Schneid. In: Compt. rend. Soc. Biol. Paris. Vol. 52. 1900. No. 24.
p. 639.
|
|
1182.
|
Cole, L. J., Hadley, Ph. B.,
Kirkpatrick, W. F., Blackhead in turkeys, a study in avian
coccidiosis. In: Agricultural Experiment Station of the Rhode Island
State College, Bull. 141. Kingston, R. I. 1910. June 28.
|
|
1183.
|
Cuénot, L., Legerella testiculi nov. sp.
Coccidie parasite du testicule de Glomeris. In: Arch. Zool. expér.
générale. Sér. 3. Vol. 10. 1902. Notes et Revue. 4/5. p. 49.
|
|
1184.
|
Dobell, B. A., Observations on the life-history
of Adelea ovata. In: Proc. Roy. Soc. London. Vol. 79. 1907. p. 155.
|
|
[S. 938]
1185.
|
Eimer, Th., Ueber die ei- oder kugelförmigen
sog. Psorospermien der Wirbeltiere. Würzburg 1870.
|
|
1186.
|
Elmassian, M., Une nouvelle coccidie et un
nouveau parasite de la tanche, Coccidium Rouxi n. sp., Zoomyxa Légeri nov.
gen. nov. spec. In: Arch. de Zool. expér. et gén. Sér. 5. Vol. 2.
1909. No. 4.
|
|
1187.
|
Fantham, H. B., The morphology and life history
of Eimeria (Coccidium) avium, a Sporozoon causing a fatal disease among
young grouse. In: Proc. of the Zoolog. Soc. London 1910. p. 672.
|
|
1188.
|
— Experimental studies on avian coccidiosis,
especially in relation to young grouse, fowls and pigeons. Ibid. 1910.
p. 708.
|
|
1189.
|
Fiebiger, J., Ueber Protozoen als Parasiten der
Fische. In: Verh. d. k. k. Zool. botan. Ges. Wien. Vol. 59. 1909. p. 32.
|
|
1190.
|
Hadley, Ph. B., Note on Roupin Fowls (Soc. Amer.
Bacter.). In: Science. N. S. Vol. 29. 1909. p. 1006.
|
|
1191.
|
— White diarrhea of Chicks: A study in avian
coccidiosis (Soc. Amer. Bacter.). Ibid. Vol. 29. p. 1007.
|
|
1192.
|
— Studies in avian coccidiosis. III. Coccidiosis in the
English sparrow and other wild birds. In: Centralbl. Bakt. Paras. Inf.
Abt. I. Orig. Vol. 56. 1910. H. 5/6. p. 522.
|
|
1193.
|
— Studies in avian coccidiosis. I. White diarrhea of
chicks. II. Roup of fowls. Ibid. Vol. 50. p. 348.
|
|
1194.
|
— and Amson, E. E., Further studies on blackhead
in turkeys. Ibid. Vol. 58. H. 1. p. 34.
|
|
1195.
|
Jollos, V., Multiple Teilung und Reduktion bei
Adelea ovata (s. Schneider). In: Arch. f. Protistenk. Vol. 15. 1909.
p. 250.
|
|
1196.
|
Kloss, H., Ueber Parasiten in der Niere von
Helix. In: Abh. d. Senckenb. Ges. Vol. 1. 1885. p. 189.
|
|
1197.
|
Kunze, W., Ueber Orcheobius herpobdellae. In:
Arch. f. Protistenk. Vol. 9. 1907. p. 382.
|
|
1198.
|
Labbé, A., Recherches zoologiques, cytologiques
et biologiques sur les Coccidies. In: Arch. Zool. expér. et génér. (3)
Vol. 4. 1897. p. 517.
|
|
1199.
|
Laveran, A., Au sujet de Coccidium Metschnikovi
et Myxobolus oviformis. In: Compt. rend. Soc. Biol. Paris (10) Vol. 50.
1898. p. 1038.
|
|
1200.
|
— Sur les modes de reproduction de Klossia helicina
Schneider. Ibid. p. 1083.
|
|
1201.
|
— Sur les modes de reproduction d’Isospora Lacazei.
Ibid. p. 1139.
|
|
1202.
|
— Au sujet des altérations cellulaires produites par
les Coccidies. Ibid. Vol. 52. 1900. p. 378.
|
|
1203.
|
— et Mesnil, F., Sur deux Coccidies intestinales
de la Rana esculenta. Ibid. Vol. 54. 1902. p. 857.
|
|
1204.
|
— — Sur la Coccidie trouvée dans le rein de la Rana
esculenta et sur l’infection générale qu’elle produit. In: Compt. rend.
Acad. Scienc. Paris. Vol. 135. 1902. p. 82.
|
|
1205.
|
— — Sur quelques Protozoaires parasites d’une Tortue.
Ibid. 1902. p. 609.
|
|
1206.
|
Léger, L., Echinospora Labbei n. g. n. sp. In:
Compt. rend. Soc. Biol. Paris. (10) Vol. 49. 1897. p. 987.
|
|
1207.
|
— Sur une nouvelle Coccidie à microgamètes ciliées
(Echinospora Labbei et E. ventricosa.) In: Compt. rend. Acad. Scienc.
Paris. Vol. 127. 1898. p. 418.
|
|
1208.
|
— Sur la morphologie et le développement des
microgamètes des Coccidies. In: Arch. Zool. expérim. générale. Notes et
Revue. (3) Vol. 6. 1898.
|
|
1209.
|
— Essai sur la classification des Coccidies. In: Ann.
Mus. Hist. nat. Marseille (2) Bull. 1. 1898. p. 71.
|
|
1210.
|
— Sur la présence d’une Coccidie coelomique chez
l’Olocrates abbreviatus. In: Arch. Zool. expér. générale. Notes et Revue.
(3) Vol. 13. 1900. p. 1.
|
|
1211.
|
— Sur le genre Eimeria. In: Compt. rend. Soc. Biol.
Paris. Vol. 52. 1900. p. 575.
|
|
1212.
|
— Le genre Eimeria et la classification des Coccidies.
Ibid. p. 576.
|
|
1213.
|
— Caryospora simplex. Coccidie monosporée et la
classification des Coccidies. In: Arch. f. Protistenk. Vol. 22. 1911. H.
1. p. 71–88.
|
|
1214.
|
Leuckart, R., Die Parasiten des Menschen. 2.
Aufl. Vol. 1. 1. Abt. 1879.
|
|
1215.
|
Lühe, M., Ueber Geltung und Bedeutung der
Gattungsnamen Eimeria und Coccidium. In: Centralbl. f. Bakt. Abt. I.
Orig. Vol. 31. 1902. p. 771.
|
|
1216.
|
— Ergebnisse der neueren Sporozoenforschung.
Zusammenfassende Darstellung mit besonderer Berücksichtigung der
Malariaparasiten und ihrer nächsten Verwandten. I. Entwicklungszyklus der
Coccidien. Ebenda. Vol. 27. 1900. p. 368.
|
|
1217.
|
— Dasselbe, erweiterter Abdruck. Jena (Gustav Fischer)
1900.
|
|
1218.
|
— Die Coccidienliteratur der letzten 4 Jahre. In: Zool.
Centralbl. Vol. 10. 1903. p. 617.
|
|
1219.
|
— Ueber den Schrotausschlag der Schweine und das sog.
Coccidium fuscum. In: Centralbl. f. Bakt. Orig. Vol. 39. 1901. p. 693.
|
|
[S. 939]
1220.
|
Mesnil, F., Coccidies et paludisme. I. partie.
Cycle évolutif des Coccidies. In: Revue géner. des Scienc. Année 10.
1899. No. 6. p. 213.
|
|
1221.
|
— Les travaux récente sur les Coccidies. In: Bull.
Inst. Pasteur. Vol. 1. 1904. No. 12 u. 13.
|
|
1222.
|
Metzner, Rud., Untersuchungen an Coccidium
cuniculi. I. Teil. In: Arch. f. Protistenk. Vol. 2. 1903. p. 13.
|
|
1223.
|
Moroff, Th. und Fiebiger, Ueber Eimeria
subepithelialis. In: Arch. f. Protistenk. Vol. 6. 1905. p. 166.
|
|
1224.
|
— Untersuchungen über Coccidien. I. Adelea zonula.
Ebenda. Vol. 8. 1906. p. 17.
|
|
1225.
|
Moussu, G. et Marotel, G., La coccidiose
du Mouton et son parasite. In: Arch. Parasitol. Vol. 6. 1902. p. 82.
|
|
1226.
|
Pérez, C., Sur une Coccidie nouvelle (Adelea
Mesnili) n. sp. In: Compt. rend. Soc. Biol. Paris. (11) Vol. 51. 1899.
p. 694.
|
|
1227.
|
— Le cycle évolutif de l’Adelea Mesnili, Coccidie
coelomique parasite d’une Lepidoptère. In: Arch. f. Protistenk. Vol. 2.
1903. Heft 1. p. 1.
|
|
1228.
|
Pfeiffer, R., Beiträge zur Protozoenforschung.
1. Die Coccidienkrankheit der Kaninchen. Berlin 1892.
|
|
1229.
|
Schaudinn, F., Untersuchungen über den
Generationswechsel bei Coccidien. In: Zool. Jahrb. Abt. f. Anat. Vol.
13. 1900. p. 197.
|
|
1230.
|
— Studien über krankheitserregende Protozoen. I.
Cyclospora caryolytica Schaud. etc. In: Arb. aus d. Kais. Gesundheitsamt
Berlin. Vol. 18. 1901. p. 378.
|
|
1231.
|
— und Siedlecki, Beiträge zur Kenntnis der
Coccidien. In: Verh. d. Deutschen Zool. Ges. 1897.
|
|
1232.
|
Schuberg, A., Die Coccidien aus dem Darm der
Maus. In: Verh. Nat.-Med. Verein. Heidelberg. N. F. Vol. 5. 1895.
|
|
1233.
|
Sergent, E., Sur une Coccidie nouvelle
(Diplospora Mesnili) parasite du Caméléon vulgaire. In: Compt. rend. Soc.
Biol. Paris. Vol. 54. 1902. p. 1260.
|
|
1234.
|
Siedlecki, M., Reproduction sexuée de la
Coccidie de la Seiche (Benedenia). In: Compt. rend. Soc. Biol. Paris
(10). Vol. 50. 1898. p. 540.
|
|
1235.
|
— Reproduction sexuée chez Coccidium proprium Schn.
Ibid. 1898. p. 664.
|
|
1236.
|
— Étude cytologique de Adelea ovata Schn. In: Ann.
Inst. Pasteur. Vol. 13. 1899. p. 169.
|
|
1237.
|
— Étude cytologique de la Coccidie de la Seiche. Ibid.
Vol. 12. 1898, p. 799.
|
|
1238.
|
— Cycle évolutif de la Caryotropha Mesnili. In: Bull.
Acad. Scienc. Cracovie. 1902. p. 561.
|
|
1239.
|
— Simond, P. L., Note sur le dimorphisme
évolutif de Karyophagus salamandrae Steinh. In: Compt. rend. Soc. Biol.
Paris. (10) Vol. 48. 1896. p. 1061.
|
|
1240.
|
Smith, T. and Johnston, H. P., On a
Coccidium (Klossiella muris gen. et spec. nov.), parasitic in the renal
epithelium of the Mouse. In: Journ. exper. Medicine. Vol. 6. 1902. p.
313.
|
|
1241.
|
Tyzzer, E. E., An extracellular Coccidium,
Cryptosporidium muris. In: Journ. med. res. Vol. 23. 1910. p. 487.
|
|
1242.
|
Voisin, V., Zur Morphologie und Biologie einiger
Coccidienformen. In: Zool. Jahrb. Abt. f. Anat. Vol. 14. 1900. p. 61.
|
|
1243.
|
Wasielewski, Th. v., Studien und
Mikrophotogramme zur Kenntnis der pathogenen Protozoen. I. Studien über
den Bau, die Entwicklung und über die pathogene Bedeutung der Coccidien.
Leipzig 1904.
|
|
3. Literatur über
Hämogregarinen und ähnliche Formen von Blutparasiten.
(Anhang zu den Coccidien.) |
|
|
1244.
|
Adie, S. R., Note on a Leucocytozoon found in
Mus rattus in the Punjab. In: Journ. trop. med. Vol. 9. 1906. p. 325.
|
|
1245.
|
Anschütz, G., Ueber den Entwicklungsgang des
„Haemoproteus orizivorae“ n. sp. In: Centralbl. Bakt. Paras. Abt. I.
Orig. Vol. 51. 1909. p. 654.
|
|
1246.
|
— Ueber Uebertragungsversuche von Haemoproteus
orizivorae und Trypanosoma paddae, nebst Bemerkungen über den
Entwicklungsgang des ersteren. Ibid. Vol. 54. 1910. p. 329.
|
|
1247.
|
Aragao, H. de Beaurepaire, Ueber den
Entwicklungsgang und die Uebertragung von Haemoproteus columbae. In:
Arch. f. Protistenk. Vol. 12. 1908. p. 154.
|
|
1248.
|
Bouet, G., Mesnil, M., Hémogregarines de
l’Afrique occidentale française. In: Compt. rend. Soc. Biol. Vol. 66.
1909. p. 741. (Mesnil 743.)
|
|
1249.
|
Börner, C., Untersuchungen über Hämosporidien.
In: Zeitschr. f. wiss. Zool. Vol. 69. 1901. p. 398.
|
|
[S. 940]
1251.
|
Carini, A., Un leucocitozoo del Leptodactylus
ocellatus. In: Rev. da Soc. Scient. de Sao Paolo. 1907. No. 8.
|
|
1252.
|
Christophers, S. R., The sexual cycle of
Leucocytozoon canis in the tick. In: Scient. Mem. by Off. of med. and
sanit. Depart. Gov. of India. Calcutta 1907. No. 28.
|
|
1253.
|
Danilewsky, B., Die Hämatozoen der Kaltblüter.
In: Arch. mikr. Anat. Vol. 24. 1885.
|
|
1254.
|
— Parasitology comparée du sang. II. Recherches sur les
hématozoaires des tortues Kharkoff. 1889.
|
|
1255.
|
Dutton, Todd and Tobey, Concerning
certain parasitic Protozoa observed in Africa. In: Ann. trop. Med. and
Parasit. Vol. 1. 1907. p. 287.
|
|
1256.
|
Fantham, H. B., On the occurrence of Schizogony
in an avian Leucocytozoon, L. lovati, parasitic in the red grouse,
Lagopus scoticus. In: Ann. of trop. Med. and Parasitology. Vol. 4. 1910.
No. 2.
|
|
1257.
|
— Observations on the parasitic protozoa of the red
grouse (Lagopus scoticus). In: Proc. Zool. Soc. London. 1910. No. 84.
|
|
1258.
|
Flu, P. C., Ueber Hämogregarinen im Blute
surinamischer Schlangen. In: Arch. f. Protistenk. Vol. 18. 1909. H. 2.
|
|
1259.
|
Hahn, C. W., The stages of Haemogregarina
Stepanowi Danilewsky found in the blood of turtles. In: Arch. f.
Protistenk. Vol. 17. 1909.
|
|
1260.
|
Hartmann, M. und Chagas, C., Vorläufige
Mitteilung über Untersuchungen an Schlangenhämogregarinen, nebst
Bemerkungen zu der vorstehenden Arbeit von E. Reichenow über
Haemogregarina stepanowi. In: Arch. f. Protistenk. Vol. 20. 1910. p.
351.
|
|
1261.
|
— — Vorläufige Mitteilungen über Untersuchungen an
Schlangengregarinen. Ibid. Vol. 20. 1910. p. 351.
|
|
1262.
|
Hintze, R., Lebensweise und Entwicklung von
Lankesterella minima (Chaussat). In: Zool. Jahrb. Abt. f. Anat. Vol. 15.
1902. p. 693. Taf. 36.
|
|
1263.
|
Laveran, A., Contribution à l’étude de
Haemogregarina Stepanovi Danilewsky. In: Compt. rend. Soc. Biol. Paris.
1898. p. 885.
|
|
1264.
|
— Contribution à l’étude de Drepanidium ranarum
Lankester. Ibid. 1898. p. 977.
|
|
1265.
|
— Sur une hémogregarine de la Couleuvre argus. In:
Compt. rend. Acad. Sc. Paris. Vol. 147a. 1908. p. 103.
|
|
1266.
|
— Au sujet des hémogregarines de Tupinambus Algericus
L. In: Compt. rend. Soc. Biol. Vol. 67. 1909. p. 9.
|
|
1267.
|
— et Pettit, A., Sur les formes de
multiplication endogène de Haemogregarina lacertae. In: Compt. rend.
Acad. Sc. Paris. Vol. 147b. 1908. No. 25. p. 1378.
|
|
1268.
|
— — Sur les formes de multiplication endogène de
Haemogregarina platydactyli Billet. In: Compt. rend. Soc. Biol. Paris.
Vol. 69. 1910. p. 176.
|
|
1269.
|
— et Mesnil, F., Deux Hémogrégarines nouvelles
des Poissons. In: Compt. rend. Acad. Sci. Paris. Vol. 133. 1901.
p. 572.
|
|
1270.
|
Lesage, J. et Solanet E., Sur les
caractères et la fréquence de „haemogregarina leptodactyli“, dans le
sang des grenouilles de l’Argentine. In: Compt. rend. de la Soc. de Biol.
Vol. 65. 1908. p. 295.
|
|
1271.
|
Lutz, A., Ueber die Drepanidien der Schlangen
etc. Ein Beitrag zur Kenntnis der Hämosporidien. In: Centralbl. f. Bakt.
etc. Vol. 29. 1901. p. 390.
|
|
1272.
|
MacCallum, W. C., On the Haematozoan infection
of Birds. In: Journal of experim. Medicine. Vol. 3. 1898. p. 117.
pl. 12.
|
|
1273.
|
Mezincescu, D., Evolution des Ookynètes
d’Haemoproteus dans l’intestin des Moustiques. In: Compt. rend. Soc.
Biol. Vol. 66. 1909. p. 329.
|
|
1274.
|
— Leucocytozoon Ziemanni et Trypanosomes chez
l’épervier (Falco nisus. Ibid. Vol. 66. 1909. p. 328.
|
|
1275.
|
Neresheimer, E., Ueber das Eindringen von
Lankesterella speziell in die Froschblutkörperchen. In: Arch. f.
Protistenk. Vol. 16. 1909. H. 2.
|
|
1276.
|
Neumann, R. O., Studien über protozoische
Parasiten im Blut von Meeresfischen. In: Zeitschr. f. Hygiene und
Infektionskrankheiten. Vol. 64. 1909. H. 1. p. 1.
|
|
1277.
|
Opie, E. L., On the Haemocytozoa of Birds. In:
Journ. experim. Medicine. Vol. 3. 1898. p. 79. pl. 9.
|
|
1278.
|
Patton, W. S., The Haemogregarines of Mammals
and Reptiles. In: Parasitology. Vol. 1. 1908. p. 319.
|
|
1279.
|
Porter, A., The leucocytozoa: protozoal
parasites of the colourless corpuscles of the blood of vertebrates. In:
Science progress. 1909. No. 14.
|
|
1280.
|
— Leucocytozoon musculi, sp. n., a parasitic protozoon
from the blood of white mice. In: Proc. Zool. Soc. London. 1908. p. 703.
|
|
1281.
|
Prowazek, S. v., Untersuchungen über
Hämogregarinen. In: Arb. aus d. Kais. Gesundheitsamt. Vol. 26. 1907.
p. 32.
|
|
[S. 941]
1282.
|
Prowazek, S., v., Ueber Hämogregarinen aus
Porocephalus moniliformis. In: Zool. Anz. Vol. 33. 1908. p. 465.
|
|
1283.
|
Reichenow, E., Haemogregarina Stepanowi. Die
Entwicklungsgeschichte einer Hämogregarine. In: Arch. f. Protistenk.
Vol. 20. 1910. p. 252.
|
|
1284.
|
— Der Zeugungskreis der Haemogregarina Stepanowi. In:
Sitzungsber. Ges. naturf. Freunde. Berlin. 1910.
|
|
1285.
|
Sambon, L. W., Haemogregarines and
„Parasitology“. In: Journ. trop. med. Hyg. London. Vol. 12. 1909.
p. 111.
|
|
1286.
|
— The haemogregarines of snakes. Ibid. Vol. 12. No. 2.
p. 22, No. 3. p. 38, No. 4. p. 48, No. 5. p. 70.
|
|
1287.
|
— and Seligmann, C. G., Dasselbe. Ibid. Vol. 11.
1908. No. 23. p. 355; No. 24. p. 374; Vol. 12. 1909. No. 2. p. 22; No. 3.
p. 38; No. 4. p. 48.
|
|
1288.
|
— Remarks on the avian haemoprotozoa of the genus
Leukocytozoon Danilewsky. Ibid. Vol. 11. 1908. No. 16. p. 245, No. 21.
p. 325; Vol. 12. 1909. No. 3. p. 37.
|
|
1289.
|
Sergent, E. et E., Hémamibes des Oiseaux
et Moustiques. Générations alternantes de Schaudinn. In: Compt. rend.
Soc. Biol. Paris. Vol. 58. 1905.
|
|
1290.
|
— Sur le second hôte de l’Hémoproteus (Halteridium) du
pigeon. Ibid. Vol. 61. 1906. p. 494.
|
|
1291.
|
Siegel, Die geschlechtliche Entwicklung von
Haemogregarina Stepanowi im Rüsselegel Placobdella catenigera. In: Arch.
f. Protistenk. Vol. 2. 1903. p. 339.
|
|
1292.
|
Simond, P. L., Sur un Hématozoaire
endoglobulaire pigmenté des Tortues. In: Compt. rend. Soc. Biol. Paris.
Vol. 53. 1901.
|
|
4. Schriften über
Hämosporidien.
|
|
|
1293.
|
Aragao, H. de Beaurepaire and Neiva, A.,
Contribution to the study of the intraglobular parasites of the lizards.
Two new species of Plasmodium, Pl. diploglossi n. sp. and Pl. tropiduri
n. sp. In: Mem. Inst. Oswaldo Cruz, Rio de Janeiro. Vol. 1. 1909. p. 44.
|
|
1294.
|
Argutinsky, P., Malariastudien. I. In: Arch. f.
mikr. Anat. Vol. 59. 1901. p. 315. Taf. 18–21.
|
|
1295.
|
— Malariastudien. II. Ebenda. Vol. 61. 1902. p. 331.
Taf. 13.
|
|
1296.
|
Bastianelli, Bignami e Grassi,
Coltivazione delle semilune malariche del uomo nel Anopheles claviger.
In: Rend. R. Acc. Lincei. Vol. 7. 1898. p. 11.
|
|
1297.
|
Berenberg-Gossler, H. v., Beiträge zur
Naturgeschichte der Malariaplasmodien. In: Arch. f. Protistenk. Vol. 16.
1909. p. 245.
|
|
1298.
|
Bertarelli, E., Die Malaria der Affen (Referat).
In: Centralbl. Bakt. Abt. I. Vol. 43. 1909, p. 280.
|
|
1299.
|
Bertrand, D. M., Les parasites pigmentés
endoglobulaires des vertébrés. Paris, Jouve et Cie., Editeurs. 1911. p.
103 (cf. Literatur ibid. p. 103–112.)
|
|
1300.
|
Bonet, G., Sur deux Hémocytozoaires pigmentés
des Reptiles. In: Compt. rend. Soc. Biol. Vol. 66. 1909. p. 43.
|
|
1301.
|
Cardamatis, J. P., Le paludisme des oiseaux en
Grèce. Étude biologique et histologique du parasite de Danilewsky. In:
Centralbl. Bakt. Par. Inf. Abt. I. Orig. Vol. 52. 1909. p. 351.
|
|
1302.
|
Celli, A. und Sanfelice, Ueber die
Parasiten der roten Blutkörperchen im Menschen und in den Tieren. In:
Fortschritte d. Med. Vol. 9. 1891.
|
|
1303.
|
Danilewsky, Sur les microbes de l’infection
malarique etc. In: Ann. Inst. Pasteur. Vol. 4. 1890. p. 752.
|
|
1304.
|
— Contribution à l’étude de la microbiose malarique.
Ibid. Vol. 5. 1891. p. 758.
|
|
1305.
|
Darling, S. T., Transmission of Malarial fever
in the Canal zone by Anopheles Mosquitoes. In: Am. Med. Ass. 60. Ann.
Sess. Atlantic City. June 1909.
|
|
1306.
|
— Studies in relation to Malaria. In: Isthmian Canal
Comm. Lab. Board of Health. Departm. of Saltation. Washington 1910
|
|
1307.
|
Dionisi, A., La malaria di alcune pipistrelli.
In: Ann. d’ Igiene sperim. Vol. 9. vgl. auch oben S. 793.
|
|
1308.
|
Dobell, C. C., Contributions to the life-history
of Haemocystidinea Simondi C. u. W. In: Festschr. 60. Geb. R. Hertwigs.
Vol. 2. 1910. p. 125.
|
|
1309.
|
Donovan, C., Notes on malaria and Kala-Azar. In:
The Journal of trop. Med. and Hyg. Vol. 12. 1909. No. 13.
|
|
1310.
|
Flu, P. C., Untersuchungen über Affenmalaria.
In: Arch. f. Protistenk. Vol. 12. 1909. p. 320.
|
|
1311.
|
Golgi, Ueber den angeblichen Bacillus von Klebs
etc. In: Beitr. z. pathol. Anat. u. z. allg. Pathol. v. Ziegler. Vol. 4.
1888. p. 421. (Zuerst: Giornale d. R. Acc. d. Med. Torino. 1885.
p. 734.)
|
|
[S. 942]
1312.
|
Gonder, R. und Berenberg-Gossler, H. v.,
Untersuchungen über Malariaplasmodien der Affen. In: Malaria Internat.
Archiv. Vol. 1. 1908. p. 49.
|
|
1313.
|
— und Rodenwaldt, E., Experimentelle
Untersuchungen über Affenmalaria. In: Centralbl. Bakt. Abt. I. Orig. Vol.
54. 1910. p. 237.
|
|
1314.
|
Grassi, B., Die Malaria etc. 2. Aufl. Jena
(Gustav Fischer) 1901.
|
|
1315.
|
Jancsó, N., Zur Frage der Infektion bei
Anopheles mit Malariaparasiten bei niederer Temperatur. In: Centralbl. f.
Bakt. Orig. Vol. 36. 1903. p. 624.
|
|
1316.
|
— Der Einfluß der Temperatur auf die geschlechtliche
Generationsentwicklung der Malariaparasiten und auf die
experimentelle Malariaerkrankung. Ibid. Vol. 38. 1905. p. 650.
|
|
1317.
|
Kerschbaumer, F., Malaria, ihr Wesen, ihre
Entstehung und ihre Verhütung. Wien und Leipzig 1901.
|
|
1318.
|
Koch, R., Reiseberichte über Rinderpest etc.
Berlin (Julius Springer) 1898.
|
|
1319.
|
— Ueber die Entwicklung der Malariaparasiten. In:
Zeitschr. f. Hyg. Vol. 32. 1899. p. 1.
|
|
1320.
|
— Zusammenfassende Darstellung der Ergebnisse der
Malariaexpedition. In: Deutsche med. Wochenschr. 1900. No. 49.
|
|
1321.
|
— Die Bekämpfung der Malaria. In: Zeitschr. f. Hyg. u.
Infektionskrankh. Vol. 43. 1903.
|
|
1322.
|
Labbé, A., Recherches sur les parasites
endoglobulaires du sang des Vertébrés. In: Arch. Zoolog. expér. et génér.
Vol. 2. 1894. p. 55–258. 10 Taf.
|
|
1323.
|
Laveran, A., Un nouveau parasite trouvé dans le
sang des malades atteints de fièvre palustre etc. In: Bull. et Mém. de la
Soc. méd. des Hôpitaux de Paris. Vol 17. 1880.
|
|
1324.
|
— Traité du paludisme. Paris 1898.
|
|
1325.
|
— Les Hématozoaires endoglobulaires. In: Compt. rend.
Soc. Biol. Paris. Vol. 53. 1901. p. 798.
(Sowie zahlreiche kleinere und größere Arbeiten über Blutparasiten. Vgl. Literatur bei Ruge, No. 1337.) |
|
1326.
|
— et Pettit, A., Sur un hémamibe de Melopelia
leucoptera L. In: Compt. rend. Soc. Biol. Vol. 66. 1909. p. 953.
|
|
1327.
|
Lühe, M., vgl. No. 1173 dieser Liste.
|
|
1328.
|
Mannaberg, Die Malariaparasiten. 1893.
|
|
1329.
|
Manson, P., Surgeon-Major Ronald Ross’ recent
investigations on the mosquito-malaria theory. In: Brit. med. Journ.
1898 (I). p. 1575.
|
|
1330.
|
Maurer, G., Die Malariaparasiten. In: Münch.
med. Wochenschr. Vol. 48. 1901. p. 337.
|
|
1331.
|
Neveau-Lemaire, M., L’hématozoaire du paludisme
etc. In: Causeries sci. Soc. Zool. France. Vol. 1. 1900. p. 1–24.
|
|
1332.
|
— Les Hématozoaires du paludisme. Paris 1901.
|
|
1333.
|
Neeb, H. M., The parthenogenesis of the female
crescent body. In: Journ. trop. Med. Vol. 13. 1910. p. 98.
|
|
1334.
|
— Dasselbe. In: Philippine Journal. of Science. B.
medical Sciences. Vol. 5. 1910. p. 179.
|
|
1335.
|
Neumann, R. O., Ueber die Blutparasiten von
Vesperugo und deren Weiterentwicklung in den Milben der Fledermäuse. In:
Arch. f. Protistenk. Vol. 18. 1909. Heft 1.
|
|
1336.
|
Ross, R., Untersuchungen über die Malaria.
(Deutsche Uebersetzung.) Jena 1905. (Darin historische Uebersicht über
die Entdeckungen des Autors.)
|
|
1337.
|
Ruge, R., Einführung in das Studium der
Malariakrankheiten. 2. Aufl. Jena 1906.
|
|
1338.
|
— Malariaparasiten. In: Handb. d. pathogenen Mikroorg.
Vol. 1. p. 709. (Jena 1903.)
|
|
1339.
|
Schaudinn, F., Ueber den Generationswechsel bei
Coccidien und die neuere Malariaforschung. In: Sitzungsber. d. naturf.
Freunde Berlin 1899. p. 159.
|
|
1340.
|
— Der Generationswechsel der Coccidien und
Hämosporidien. In: Zool. Centralbl. Vol. 6. 1899. p. 765.
|
|
1341.
|
— Studien über krankheitserregende Protozoen. II.
Plasmodium vivax etc. In: Arb. aus d. Kais. Gesundheitsamt Berlin. Vol.
19. 1902. p. 169.
|
|
1342.
|
— vgl. No. 17 der Liste S. 68.
|
|
1343.
|
Schingareff, A. J., Les hémosporidies des
Chauves-Souris. In: Arch. Sci. Biol. St. Pétersbourg. Vol. 12. 1906.
p. 181.
|
|
1344.
|
Sergent, E. et E., Études
épidémiologiques et prophylactiques du paludisme. In: Ann. Inst. Pasteur.
Vol. 21. 1907. p. 1.
|
|
1345.
|
Sergent, E. et Étienne, Sur la structure
fine des sporozoites de Plasmodium relictum Grassi et Feletti (=
Proteosoma). In: Compt. rend. Acad. Sci. Vol. 147. 1909. p. 439.
|
|
[S. 943]
1346.
|
Shibayama, G., On malaria parasites of the
Orang outan. In: Philippine Journ. Sci. Vol. 5. 1910. p. 189.
|
|
1347.
|
Simond, P. L., Contributian à l’étude des
Hématozoaires endoglobulaires des Reptiles. In: Ann. Inst. Pasteur. Vol.
15. 1901. p. 319.
|
|
1348.
|
Wasielewski, Th. v., Studien und
Mikrophotogramme zur Kenntnis der pathogenen Protozoen. Heft 2.
Untersuchungen über Blutschmarotzer. Leipzig 1908.
|
|
1349.
|
Ziemann, H., Ueber Malaria und andere
Blutparasiten. Jena 1898.
|
|
Die fast unübersehbare Literatur über Malaria, besonders vom klinischen, pathologischen und hygienischen Standpunkt aus, ist hier nicht berücksichtigt. Sie findet sich in einer ausführlichen Liste zusammengestellt bei Ruge, No. 1337 dieser Liste. |
|
|
5. Literatur über
Stechfliegen.
|
|
|
1350.
|
Blanchard, R., Les Moustiques. Paris 1905.
|
|
1351.
|
Eysell, A., Die Stechmücken. In: Mense, Handb.
der Tropenkrankheiten. Vol. 2. p. 190.
|
|
1352.
|
Giles, G. M., A Handbook of Gnats. 2. ed.
London 1902.
|
|
1353.
|
— A revision of the Anophelinae, being the first
supplement to the 2. edition of a Handbook of the Gnats or Mosquitoes.
London 1904.
|
|
1354.
|
Grünberg, Die blutsaugenden Dipteren. Jena
1908.
|
|
1355.
|
Theobald, F. V., A Monograph of the Culicidae.
3 Vol. London 1901–1903.
|
|
6. Schriften über
Babesien.
|
|
|
1356.
|
Bitter, Texasfieber in Aegypten. In: 8.
internat. Vet.-Kongreß Budapest. Vol. 3. 1905. p. 289.
|
|
1357.
|
Breinl, A. and Hindle, Contribution to
the morphology and life-history of Piroplasma canis. In: Ann. trop. Med.
and Parasit. Vol. 2. 1908. p. 233.
|
|
1358.
|
Bowhill, T., Equine piroplasmosis or biliary
fever. In: Journ. Hygiene. Vol. 5. 1905. p. 7.
|
|
1359.
|
Carini, A., Réproduction expérimentale de la
toxoplasmose du lapin. In: Bull. de la Soc. de Path. exot. Vol. 2.
1909. No. 8. p. 465.
|
|
1360.
|
Christophers, Piroplasma canis and its life
cycle in the tick. In: Sci. Mem. by Off. of Med. and Sanit. Departm. Gov.
India. 1907. No. 29.
|
|
1361.
|
Doflein, F., 1. Aufl. dieses Lehrbuches. Jena
1901.
|
|
1362.
|
Dschunkowsky und Luhs, Die Piroplasmosen
der Rinder. In: Centralbl. f. Bakt. Abt. I. Orig. Vol. 35. 1904.
p. 486.
|
|
1363.
|
— — Piroplasmose in Transkaukasien. Referat von
Tartakowsky. In: 8. intern. Vet.-Kongreß Budapest. Vol. 3. 1905. p. 290.
|
|
1364.
|
— — Entwicklungsformen von Piroplasmen in Zecken. In:
9. internat. Vet.-Kongreß. Haag 1909.
|
|
1365.
|
Ducloux, M. E., Sur une Piroplasmose
bacilliforme du Boeuf en Tunisie. In: Compt. rend. Soc. Biol. Vol. 59.
1905.
|
|
1366.
|
Fantham, H. B., Piroplasma muris. In: Quart.
Journ. Micr. Sci. Vol. 50. 1906. p. 493.
|
|
1367.
|
França, C., Sur la classification de Piroplasmes.
In: Bull. Soc. Portug. Sc. nat. Vol. 3. 1910. p. 11.
|
|
1368.
|
Galli-Valerio, B., Die Piroplasmose des Hundes.
In: Centralbl. f. Bakt. Orig. Vol. 34. 1904. p. 367.
|
|
1369.
|
Gonder, R., Atoxylversuche bei der Piroplasmose
der Hunde. In: Arb. aus d. Kais. Gesundheitsamt. Vol. 27. 1907. p. 301.
|
|
1370.
|
— Ueber die Entwicklung von Piroplasma parvum in den
Organen von küstenfieberkranken Rindern. In: Berl. tierärztl. Wochanschr.
1910. No. 27.
|
|
1371.
|
— Theileria parva und Babesia mutans.
Küstenfieberparasit und Pseudoküstenfieberparasit. Teil I. In: Arch. f.
Protistenk. Vol. 21. 1911. H. 3. p. 223.
|
|
1372.
|
— Die Entwicklung von Theileria parva, dem Erreger des
Küstenfiebers der Rinder in Afrika. Teil. I. Ibid. Vol. 21. 1910/11.
H. 2. p. 143. Teil II. Ibid. Vol. 22. 1910/11. H. 2. p. 170.
|
|
1373.
|
— The development of Piroplasma parvum. Suppl. to the
Annales of the Transvaal Museum. In: Proc. of the Biol. Soc. Pretoria.
1910.
|
|
1374.
|
Graham-Smith, G. S., A new form of parasite
found in the red blood corpuscules of the mole. In: Journ. of Hygiene.
Vol. 5. 1905. p. 453.
|
|
1375.
|
Höfer, P. A., Ueber ein unbekanntes Protozoon
im menschlichen Blute bei einem Falle von Anämie. In: Centralbl. Bakt.
Abt. I. Orig. Vol. 55. 1910. p. 19.
|
|
1376.
|
Kinoshita, Untersuchungen über Babesia canis.
In: Arch. f. Protistenk. Vol. 8. 1907. p. 294.
|
|
[S. 944]
1377.
|
Kleine, Kultivierungsversuche der
Hundepiroplasmen. In: Zeitschr. f. Hyg. u. Infektionskrankh. Vol. 54.
1906. p. 17.
|
|
1378.
|
— Bemerkung zu Dr. Mayers Arbeit: Beiträge usw. In:
Arch. f. Schiffs- u. Tropenhyg. Vol. 12. 1908.
|
|
1379.
|
Koch, R., On Rhodesian red-water or African
coast fever. In: Journ. comp. Path. and Therap. Vol. 16. 1903. p. 273
u. 390.
|
|
1380.
|
— Vorläufige Mitteilung über die Ergebnisse einer
Forschungsreise nach Ostafrika. In: Deutsche med. Wochenschr. 1905.
No. 47.
|
|
1381.
|
— Beiträge zur Entwicklungsgeschichte der Piroplasmen.
In: Zeitschr. f. Hyg. u. Infektionskrankh. Vol. 54. 1906. p. 1.
|
|
1382.
|
Kossel, Schütz, Weber und
Miessner, Ueber die Hämoglobinurie der Rinder in Deutschland. In:
Arb. aus d. Kais. Gesundheitsamte. Vol. 20. 1903. p. 1.
|
|
1383.
|
Kossel, R., Hämoglobinurie der Rinder. In:
Handb. pathog. Mikroorg. Vol. 1. 1902. p. 841.
|
|
1384.
|
Krompecher, E., Goldzieher, M.,
Augyán, J., Protozoenbefunde bei Typhus exanthematicus. In:
Centralbl. Bakt. Abt. I. Orig. Vol. 50. 1909. p. 612.
|
|
1385.
|
Laveran, A., Contribution à l’étude de
Piroplasma equi. In: Compt. rend. Soc. Biol. Vol. 53. 1901. p. 385.
|
|
1386.
|
— et Nicolle, Contribution à l’étude de
Piroplasma bigeminum. Ibid. Vol. 51. 1899. p. 748.
|
|
1387.
|
Lichtenheld, Ergebnisse der von R. Koch
ausgeführten und vorgezeichneten Forschungen über das Küstenfieber der
Rinder in Deutsch-Ostafrika. In: Zeitschr. f. Hyg. u. Infektionskrankh.
Vol. 61. 1908. H. 2. p. 261.
|
|
1388.
|
Lignières, J., La piroplasmose bovine. In: Arch.
Parasit. Vol. 7. 1903. p. 398.
|
|
1389.
|
Lühe, M., Zur Kenntnis von Bau und Entwicklung
der Babesien. In: Zool. Anz. Vol. 30. 1906. p. 45.
|
|
1390.
|
Marchoux, S., Piroplasma, canis chez les chiens
du Sénégal. In: Compt. rend. Soc. Biol. Vol. 52. 1900. p. 97.
|
|
1391.
|
Martini, E., Entwicklung eines Rinderpiroplasmas
und -Trypanosomas im künstlichen Nährboden. Ibid. Vol. 64. 1909.
p. 385.
|
|
1392.
|
Marzinowski, E. J., Ueber die Züchtung von
Piroplasma equi. In: Zeitschr. f. Hyg. u. Infektionskrankh. Vol. 62.
1909. H. 5. p. 417.
|
|
1393.
|
— und Bielitzer, A. W., Piroplasmose des Pferdes
in Rußland und die Rolle der Zecke Dermatocentor reticulatus bei ihrer
Verbreitung. Ibid. Vol. 63. 1909. H. 1. p. 17.
|
|
1394.
|
Miyajima, On the cultivation of a bovine
Piroplasma. In: The Philippine Journ. of Sci. Vol. 2. 1907. p. 83.
|
|
1395.
|
Motas, La piroplasmose ovine, „Carceag“. In:
Compt. rend. Soc. Biol. Vol. 54. 1902. p. 1522.
|
|
1396.
|
Nicolle, C. et Manceaux, L., Sur une
infection à corps de Leishman (ou organismes voisins) du Gondi. In: Compt.
rend. Acad. Sc. Par. Vol. 147b. 1908. p. 763.
|
|
1397.
|
— — Sur un protozoaire nouveau de Gondi. Ibid. Vol.
148. 1909. No. 6. p. 369.
|
|
1398.
|
— — Dasselbe. (Toxoplasma n. gen.). In: Arch. de
l’Institut Pasteur de Tunis. Vol. 2. 1909. p. 97.
|
|
1399.
|
Nuttal, G., The Ixodoidea or ticks,
Spirochaetosis in man and animals, piroplasmosis. In: Journ. Roy. Inst.
publ. Health 1908. (Repr.)
|
|
1400.
|
— and Graham-Smith, Canine piroplasmosis. I–VI.
In: Journal Hygiene. Vol. 4–7. 1904–1907.
|
|
1401.
|
— — The mode of multiplication of Piroplasma bovis, P.
pitheci in the circulating blood compared with that of P. canis, with
notes on other species of Piroplasma. In: Parasitology. Vol. 1. 1908.
No. 2. p. 134.
|
|
1402.
|
— — The development of Piroplasma canis in culture.
Ibid. Vol. 1. 1908. p. 243.
|
|
1403.
|
— Fantham, H. B. and Porter, A.,
Observations of Theileria parva. Ibid. Vol. 11. 1910.
|
|
1404.
|
Ollwig und Manteuffel, Babesia mutans in
Deutsch-Ostafrika und Beobachtungen zur mikroskopischen Differentialdiagnose
dieses Parasiten. In: Arch. f. Schiffs- u. Tropenhyg. Vol. 14. 1910.
p. 765.
|
|
1405.
|
Seidelin, Zur Aetiologie des gelben Fiebers. In:
Berl. klin. Wochenschr. 1909. No. 18.
|
|
1406.
|
Smith, Th. and Kilborne, F.,
Investigations into the nature, causation and prevention of Texas- or
southern cattle-fever. 8. and 9. Ann. Rep. Bur. of Animal Industry.
Washington 1893. p. 177.
|
|
1407.
|
Splendore, A., Sur un nouveau protozoaire
parasite du lapin. In: Bull. de la Soc. de Path. exot. Vol. 2. No. 8.
p. 462.
|
|
1408.
|
Thiroux, A. et Teppaz, A., Sur le
Leucocytozoon piroplasmoides Dudeux, de la lymphangite épizootique des
équidés. In: Compt. rend. Acad. Sc. Vol. 147. No. 22. p. 1075.
|
|
[S. 945]
1409.
|
Theiler, A., Die Malaria des Pferdes. Inaug.
Diss. Zürich 1901.
|
|
1410.
|
— The Piroplasma bigeminum of the immmune ox. In:
Journ. Roy. Army Med. Corps. Vol. 3. 1904. p. 469.
|
|
1411.
|
— East coast fever. Ibid. Dec. 1904.
|
|
1412.
|
— Report of the Government Veterinary Bacteriologist,
in the Report of the Department of Agriculture in Transvaal. 1903–1906;
1906–1907; 1907–1910.
|
|
1413.
|
— Prophylaxis of the tropical diseases. In: 9.
internat. Vet.-Kongreß Haag 1909.
|
|
1414.
|
— Anaplasma marginale. In: Ann. Transvaal Mus. Vol. 2.
1910. p. 53.
|
|
1415.
|
— Notes on the stock diseases of German and British
East Africa etc. In: Transvaal Agricult. Journ. Vol. 8. 1910.
|
|
1416.
|
— Quelques observations concernant la transmission du
Piroplasma bigeminum par des tiques. In: Bull. de la Soc. de Pathol.
exot. Vol. 2. 1909. No. 7. p. 384.
|
|
1417.
|
Walker, S., The Diagnosis of the bacillary
piroplasmosis etc. In: Report of the Gov. Vet. Bact. 1909.
|
|
1418.
|
Yakimoff, W. L., Kohl-Yakimoff, N.,
Korssak, D. W., Hämoparasitologische Notizen. In: Centralbl. Bakt.
Abt. I. Orig. Vol. 55. 1910. p. 370.
|
|
1419.
|
Ziemann, Vorläufiger Bericht über das Vorkommen
von Texasfieber bei den Rindern in Kamerun etc., sowie über die
„Tiermalaria“. In: Deutsche med. Wochenschr. Vol. 29. 1903. p. 289.
|
|
7. Schriften über
Gregarinen.
|
|
|
1420.
|
Beneden, E. Van, Recherches sur
l’évolution des Grégarines. In: Bull. Ac. Roy. Belg. Vol. 31. 1871.
p. 3.
|
|
1421.
|
Berndt, Beitrag zur Kenntnis der im Darm von
Tenebrio molitor lebenden Gregarinen. In: Arch. f. Protistenk. Vol. 1.
1902.
|
|
1422.
|
Brasil, L., Recherches sur la reproduction des
Grégarines monocystidées. In: Arch. Zool. expér. Sér. 14. Vol. 3.
1905. p. 17.
|
|
1423.
|
— Nouvelles recherches etc. Ibid. Sér. 14. Vol. 4.
1905. p. 69.
|
|
1424.
|
Caullery, M., et Mesnil, F., Sur
l’évolution d’une groupe de Grégarines etc. (Selinidium). Compt. rend.
Soc. Biol. Paris. (11) Vol. 51. 1899. p. 7 u. 8.
|
|
1425.
|
— — Le parasitisme intracellulaire des Grégarines. In:
Compt. rend. Soc. Biol. Paris. Vol. 53. p. 84; ebenso: Compt. rend. Acad.
Scienc. Paris. Vol. 132. 1901. p. 220.
|
|
1426.
|
Crawley, B., The progressive movement of
Gregarines. In: Pr. Acad. Nat. Scienc. Philadelphia. 1902. p. 4.
|
|
1427.
|
Cuénot, L., Recherches sur l’évolution et la
conjugaison des Grégarines. In: Arch. Biol. Vol. 17. 1901. p. 581.
Taf. 18–21.
|
|
1428.
|
Duke, H. Lyndhurst, Some observations on a new
gregarine (Metamera Schubergi n. g. n. sp.). In: Quart. Journ. micr. Sc.
N. S. Vol. 55. 1910. p. 261.
|
|
1429.
|
Fantham, H. B., The Schizogregarines: A review
and a new classification. In: Parasitology. Vol. 1. 1908. p. 369
(daselbst Literatur).
|
|
1430.
|
Hesse, Edmond, Contribution à l’Étude des
Monocystidées des Oligochaetes. In: Arch. de Zool. expér. gén. Vol. 43.
Sér. 5. Vol. 3. 1909. p. 27.
|
|
1431.
|
Hoffmann, R., Ueber Fortpflanzungserscheinungen
von Monocystideen des Lumbricus agricola. In: Arch. f. Protistenk. Vol.
13. 1908. p. 139.
|
|
1432.
|
Kuschakewitsch, G., vgl. No. 242 der Liste
p. 272.
|
|
1433.
|
Léger, L., Recherches sur les Grégarines. In:
Tablettes Zoologiques. Vol. 3. 1, 2. 1892. p. 1–182. Taf. 1–22.
|
|
1434.
|
— Contribution à la connaissance des Sporozoaires.
Études sur le Lithocystis Schneideri. In: Bull. sci. France Belgique.
Vol. 30. 1897. p. 240. 3 Taf.
|
|
1435.
|
— La reproduction sexuée chez les Ophryocystis. In:
Compt. rend. Soc. Biol. Paris. Vol. 53. p. 927; ebenso Compt. rend. Acad.
Scienc. Paris. Vol. 131. p. 761.
|
|
1436.
|
— vgl. oben No. 196 der Liste S. 270.
|
|
1437.
|
— Étude sur Taeniocystis mira. In: Arch. f. Protistenk.
Vol. 7. 1906. p. 307.
|
|
1438.
|
— Les Schizogrégarines des Trachéates. 1. Le genre
Ophryocystis. In: Arch. f. Protistenk. Vol. 8. 1907. p. 159.
|
|
1439.
|
— Les Schizogrégarines des Trachéates. 2. Le genre
Schizocystis. In: Arch. f. Protistenk. Vol. 18. 1909. Heft 1. p. 83.
|
|
1440.
|
— et Duboscq, vgl. No. 244 der Liste S. 272.
|
|
1441.
|
— — La reproduction sexuée chez Pterocephalus. In:
Arch. Zool. exp. Notes et Revues. Sér. 4. Vol. 1. 1904. p. CXLI.
|
|
1442.
|
— — vgl. No. 245 der Liste S. 272.
|
|
1443.
|
— — Selenicollidium intermedium Lég. et Dub. et la
systématique des Sporozoaires. In: Arch. de Zool. expér. et gén. Sér.
5. T. 5. 1910. p. 187.
|
|
[S. 946]
1444.
|
Léger, L. et Duboscq, La reproduction
sexuée chez les Actinocephalides. In: Compt. rend. Acad. Sc. Vol. 148.
1909. No. 3. p. 190.
|
|
1445.
|
— — Études sur la sexualité chez les Grégarines. In:
Arch. f. Protistenk. Vol. 17. 1909. p. 19.
|
|
1446.
|
— — La reproduction sexuée chez les Actinocéphalides.
In: Ann. Univ. Grenoble. Vol. 21. 1909. p. 223.
|
|
1447.
|
Lieberkühn, N., Évolution des Grégarines. In:
Mém. cour. Acad. Roy. Belgique. Vol. 26. 1854.
|
|
1448.
|
Lühe, M., Bau und Entwicklung der Gregarinen.
In: Arch. f. Protistenk. Vol. 4. 1904. p. 88. (Daselbst ausführliches
Literaturverzeichnis.)
|
|
1449.
|
Minchin, E. A., Observations on the Gregarines
of the Holothurians. In: Quart. Journ. Micr. Sci. Vol. 34. 1893.
p. 279.
|
|
1450.
|
Moroff, Th., vgl. No. 248 der Liste S. 272.
Daselbst Literatur.
|
|
1451.
|
Mulsow, K., Ueber Fortpflanzungserscheinungen
bei Monocystis rostrata n. sp. In: Arch. f. Protistenk. Vol. 22. 1911.
Heft 1. p. 20.
|
|
1452.
|
Nussbaum, J., Ueber die geschlechtliche
heterogene Fortpflanzung einer im Darmkanal von Henlea leptodera Vejd.
schmarotzenden Gregarine Schaudinnella henleae. In: Zeitschr. f. wiss.
Zool. Vol. 75. 1903.
|
|
1453.
|
Paehler, F., vgl. No. 219 der Liste S. 271.
|
|
1454.
|
Porter, A., Merogregarina amaroucii nov. gen.
nov. sp., a sporozoon from the digestive tract of the Ascidian,
Amaroucium sp. In: Arch. f. Protistenk. Vol. 15. 1909. Heft 1 u. 2.
|
|
1455.
|
Prowazek, S., Zur Entwicklung der Gregarinen.
In: Arch. f. Protistenk. Vol. 1. 1902. Taf. 9.
|
|
1456.
|
Schewiakoff, W., Ueber die Ursache der
fortschreitenden Bewegung der Gregarinen. Zeitschr. f. wiss. Zool. Vol.
58. 1894. p. 340.
|
|
1457.
|
Schellack, C., Ueber die Entwicklung und
Fortpflanzung von Echinomera hispida. In: Arch. f. Protistenk. Vol. 9.
1907. p. 297.
|
|
1458.
|
Schneider, Ai., Zahlreiche Arbeiten in:
Tablettes zoologiques und in: Arch. Zool. expér.
|
|
1459.
|
Schnitzler, vgl. No. 227 der Liste S. 271.
|
|
1460.
|
Siedlecki, M., Contribution à l’étude des
changements cellulaires provoqués par les Grégarines. Arch. Anat.
microsc. Vol. 4. 1900. p. 87.
|
|
1461.
|
Wolters, M., Die Konjugation bei Gregarinen. In:
Arch. f. mikr. Anat. Vol. 37. 1891. p. 99–138. Taf. 5–8.
|
|
1462.
|
Woodcock, H. M., On Cystobia irregularis. In:
Arch. Zool. expér. Sér. 4. Vol. 2. 1904.
|
|
8. Schriften über
Cnidosporidien.
|
|
|
1463.
|
Auerbach, M., Ein Myxobolus im Kopf von Gadus
aeglefinus. In: Zool. Anz. Vol. 30. 1906. p. 568.
|
|
1464.
|
— Bemerkungen über Myxosporidien heimischer
Süßwasserfische. Ebenda. Vol. 32. 1907. p. 456.
|
|
1465.
|
— Bemerkungen über Myxosporidien. Ebenda. Vol. 34.
1909. p. 65.
|
|
1466.
|
— Die Sporenbildung von Zschokkella und das System der
Myxosporidien. In: Zool. Anz. Vol. 35. 1909. p. 240.
|
|
1467.
|
— Bericht über eine Studienreise nach Bergen. Verh. d.
naturw. Ver. Karlsruhe. Vol. 21. 1909.
|
|
1468.
|
— Die Cnidosporidien (Myxosporidien, Actinomyxidien,
Microsporidien). Eine monographische Studie. Leipzig, W. Klinkhardt,
1910. 8ᵒ. 262 pp. 83 Fig. 18 M.
|
|
1469.
|
Awerinzew, S., Studien über parasitische
Protozoen. 1. Die Sporenbildung bei Ceratomyxa drepanopsettae. In: Arch.
f. Protistenk. Vol. 14. 1908. p. 74.
|
|
1470.
|
— Dasselbe. In: Arch. f. Protistenk. Vol. 14. 1909.
Heft 3.
|
|
1471.
|
— Dasselbe. V. Einige neue Befunde aus der
Entwicklungsgeschichte von Lymphocystis Johnstoni Woode. In: Arch. f.
Protistenk. Vol. 22. 1911. p. 179–197.
|
|
1472.
|
— Données nouvelles sur l’histoire du développement de
Lymphocystis Johnstoni. (Russisch.) In: Bull. Acad. Supér. des Sc. de
St. Pétersbourg. 1910. p. 1327.
|
|
1473.
|
Bütschli, O., Beiträge zur Kenntnis der
Fischpsorospermien. In: Zeitschr. f. wiss. Zool. Vol. 35. 1881.
|
|
1474.
|
Caullery et Mesnil, Recherches sur les
Actinomyxidés. In: Arch. f. Protistenk. Vol. 6. 1905. p. 272.
|
|
1475.
|
Chatton, E., Sur une Cnidosporidie sans
Cnidoblaste (Paramyxa paradoxa, n. g. n. sp.) In: Compt. rend. des
séances de l’Acad. Sci. 6. III. 1911.
|
|
1476.
|
Cohn, L., Ueber die Myxosporidien von Esox
lucius und Perca fluviatilis. In: Zool. Jahrb. Abt. f. Anat. Vol. 9.
1895. p. 227.
|
|
[S. 947]
1477.
|
Doflein, F., Studien zur Naturgeschichte der
Protozoen. III. Ueber Myxosporidien. In: Zool. Jahrb. Abt. f. Morph. Vol.
11. 1898. p. 281.
|
|
1478.
|
— Fortschritte auf dem Gebiete der Myxosporidienkunde.
In: Zool. Centralbl. Vol. 7. 1899. p. 361.
|
|
1479.
|
Emery, C., Imissosporidi sono protozoi? In:
Monit. Zool. Stat. Anno 20. 1909. No. 8. p. 247.
|
|
1480.
|
Hesse, Edm., Sur le développement de Thélohania
Légeri Hesse. In: Compt. rend. Soc. Biol. Paris. Vol. 57. 1904. p. 571.
|
|
1481.
|
— Sur Myxocystis Mrazeki. Ibid. Vol. 53. 1905. p. 12.
|
|
1482.
|
Gurley, R. R., The Myxosporidia or Psorosperms
of Fishes. Bull. U. S. Fishery Commission. Report of Commission. 1892.
p. 65. 1894.
|
|
1483.
|
Joseph, H., Chloromyxum Protei. In: Arch. f.
Protistenk. Vol. 8. 1907. p. 398.
|
|
1484.
|
Keysselitz, G., Die Entwicklung von Myxobolus
Pfeifferi. I und II. In: Arch. f. Protistenk. Vol. 11. 1908. p. 252 u.
276. (Daselbst Literatur.)
|
|
1485.
|
Korotneff, siehe oben S. 898.
|
|
1486.
|
Laveran, A., et Mesnil, F., Sur une
Myxosporidie des voies biliaires de l’Hippocampe (Sphaeromyxa Sabrazesi).
In: Compt. rend. Soc. Biol. Paris. Vol. 52. 1900. p. 380.
|
|
1487.
|
— Sur la multiplication endogène des Myxosporidies.
Ibid. Vol. 54. 1902. p. 469.
|
|
1488.
|
Léger, L., Sur les Actinomyxidées. In: Assoc.
Franç. pour l’Avancement des Sci. Compt. rend. 32. Sess. 1903. p. 228.
|
|
1489.
|
— Sur une nouvelle maladie myxosporidienne de la Truite
indigène. In: Compt. rend. Ac. Sci. Vol. 140. 1906.
|
|
1490.
|
— Myxosporidies nouvelles, parasites de poissons. In:
Ann. Univ. Grenoble. Vol. 18. 1906.
|
|
1491.
|
— et Duboscq, Protistes parasites de l’intestin
d’une larve de Ptyeloptera et leur action sur l’hôte. In: Bull. de l’Acad.
roy. de Belgique (Cl. des Sc.). 1909. p. 985.
|
|
1492.
|
— — Sur une Microsporidie parasite d’une Grégarine. In:
C. R. des Séances de l’Acad. des Sc. Paris. 15. III. 1909.
|
|
1493.
|
— — Perezia Lankesteriae, n. g. n. sp., microsporidie
parasite de Lankesteria ascidiae (Ray Lank.). In: Arch. Zool. exper. gén.
(5). Vol. 1. 1909. p. LXXXIX.
|
|
1494.
|
— et Hesse, Sur la structure de la paroi sporale
des Myxosporidies. In: Compt. rend. Acad. Sci. Paris. Vol. 140. 1906.
|
|
1495.
|
— — Cnidosporidies des larves d’ephémères. In: Compt.
rend. Acad. Sci. Vol. 150. 1910. No. 7. p. 411.
|
|
1496.
|
Linton, E., Notes on the flesh parasites of
marine food fishes (Sporozoa, Vermes). Washington (Bull. Bur. Fish).
1910. 4ᵒ. 15 p.
|
|
1497.
|
Lutz u. Splendore, Ueber Pebrine und verwandte
Mikrosporideen. In: Centralbl. f. Bakt. etc. Orig. Vol. 46. 1908. p.
311.
|
|
1498.
|
Lühe, Max, Cystodiscus immersus Lutz. Verh. d. Deutschen
Zool. Ges. 9. Vers. 1899. p. 291.
|
|
1499.
|
Mercier, Phénomènes de sexualité chez Myxobolus
Pfeifferi. In: Compt. rend. Soc. Biol. 1906.
|
|
1500.
|
— Contribution à l’étude du développement des Spores
chez M. Pfeifferi. Ibid. 1906.
|
|
1501.
|
— Contribution à l’étude de la sexualité chez les
Myxosporidies et les Microsporidies. In: Mém. de l’Ac. roy. de
Belgique. 2 sér. II. 1909. p. 1.
|
|
1502.
|
Mrazek, A., Ueber eine neue Sporozoenform aus
Limnodrilus [Myxocystis ciliata]. In: Sitzungsber. d. böhm. Gesellsch.
Vol. 8. 1897.
|
|
1503.
|
— Sporozoenstudien. II. Glugea lophii Doflein. Ebenda.
Vol. 10. 1899.
|
|
1504.
|
— Sporozoenstudien. Zur Auffassung der Myxocystiden.
In: Arch. f. Protistenk. Vol. 18. 1910. H. 3. p. 245–259.
|
|
1505.
|
Moroff, Th., Ueber die Gelbsucht der
Bachforelle. In: Oesterr. Fisch.-Zeitg. Jahrg. 3. 1906. p. 285.
|
|
1506.
|
Nemaczek, A., Beiträge zur Kenntnis der Myxo-
und Mikrosporidien der Fische. In: Arch. f. Protistenk. Vol. 22. 1911. H.
2. p. 143.
|
|
1507.
|
Pérez, Ch., Sur Duboscqia Legeri, Microsporidie
nouvelle parasite du Termes lucifugus, et sur la classification des
Microsporidies. In: Compt. rend. de la Soc. de Biol. Vol. 65. 1908.
p. 631.
|
|
1508.
|
— Sur une Microsporidie nouvelle parasite du Termite
lucifuge. In: Proc. verb. Soc. Sc. phys. nat. Bordeaux. Ann. 1908/09.
p. 17.
|
|
1509.
|
Perrin, W. S., Observations on the life-history
and structure of Pleistophora periplanetae. In: Quart. Journ. Micr. Sci.
Vol. 49. 1906. p. 615.
|
|
1510.
|
Plehn, M., Ueber die Drehkrankheit der
Salmoniden. In: Arch. f. Protistenk. Vol. 5. 1904. p. 145.
|
|
1511.
|
— Ueber Geschwülste bei niederen Wirbeltieren. Deuxième
conférence internationale pour l’étude du cancer. Paris, 1–5 Octobre
1910. p. 221.
|
|
[S. 948]
1512.
|
Schiwago, P., Ueber Vermehrung bei Pleistophora
periplanetae Lutz u. Splendorf. In: Zool. Anz. Vol. 34. 1909. p. 647.
|
|
1513.
|
Stempell, W., Ueber Thélohania Mülleri L.
Pfeiffer. In: Zool. Jahrb. Abt. f. Anat. Vol. 16. 1902. p. 235.
|
|
1514.
|
— Ueber Nosema anomalum. In: Arch. f. Protistenk. Vol.
4. 1904. p. 1.
|
|
1515.
|
— Zur Entwicklung von Plistophora Mülleri, L. Pfr.
Vorl. Mitt. In: Zool. Anz. Vol. 24. 1910. No. 639.
|
|
1516.
|
— Ueber Nosema bombycis Näg., nebst Bemerkungen über
Mikrophotographie mit gewöhnlichem und ultraviolettem Licht. In:
Arch. f. Protistenk. Vol. 16. 1909. H. 3. p. 282.
|
|
1517.
|
— Zur Morphologie der Mikrosporidien. In: Zool. Anz.
Vol. 35. 1910. No. 26. p. 801.
|
|
1518.
|
Schröder, O., Beiträge zur
Entwicklungsgeschichte der Myxosporidien: Sphaeromyxa Sabrazesi. In:
Arch. f. Protistenk. Vol. 9. 1907. p. 359.
|
|
1519.
|
— Eine neue Myxosporidienart aus den Kiemen von Acerina
cernua. Ebenda. Vol. 7. 1906. p. 186.
|
|
1520.
|
— Thelohania chaetogastris, eine neue in Chaetogaster
diaphanus Gruith schmarotzende Mikrosporidienart. In: Arch. f.
Protistenk. Vol. 14. 1909. p. 119.
|
|
1521.
|
— Ueber die Anlage der Sporocyste (Pansporoblast) bei
Sphaeromyxa Sabrazesi L. u. M. In: Arch. f. Protistenk. Vol. 19.
1910. H. 1.
|
|
1522.
|
Schuberg, Ueber Mikrosporidien aus dem Hoden der
Barbe und durch sie verursachte Hypertrophie der Kerne. In: Arb. a. d.
Kais. Gesundheitsamt. Vol. 33. 1910. H. 5. p. 401.
|
|
1523.
|
Schuberg und Schröder, O., Myxosporidien
aus dem Nervensystem und der Haut der Bachforelle. In: Arch. f.
Protistenk. Vol. 6. 1905.
|
|
1524.
|
Stolč, A., Actinomyxidia, nová skupina Mesozon,
pribuzna Myxosporidium. In: Rozp. leske Ak. Cis. Frant. Jos. II. Vol. 8.
1899.
|
|
1525.
|
Thélohan, P., Recherches sur les Myxosporidies.
In: Bull. sci. France Belg. Vol. 26. 1896. p. 100.
|
|
1526.
|
Weissenberg, K., Beiträge zur Kenntnis von
Glugea lophii Doflein. I. Ueber den Sitz und die Verbreitung der
Mikrosporidiencysten am Nervensystem von Lophius piscator. u. budegassa.
In: Sitzungsber. Ges. nat. Fr. Berlin. 1909. p. 559.
|
|
1527.
|
Woodcock, H. M., On Myxosporidia in flat fish.
In: Rep. Lancashire Sea Fish Sci. Invest. 1903 und Trans. Biol. Soc.
Liverpool. Vol. 18. 1904. p. 46.
|
|
1528.
|
Zander-Erlangen, E., Tierische Parasiten als
Krankheitserreger bei der Biene. In: Münchener Bienenzeitg. 1909.
H. 9.
|
|
1529.
|
— Handbuch der Bienenkunde in Einzeldarstellungen. II.
Krankheiten und Schädlinge der erwachsenen Bienen. Stuttgart, E.
Ulmer.
|
|
9. Schriften über
Sarcosporidien.
|
|
|
1530.
|
Bertram, Beiträge zur Kenntnis der
Sarcosporidien. Zool. Jahrb. Abt. f. Anat. Vol. 5.
|
|
1531.
|
v. Betheg, L., Beiträge zum Entwicklungsgange
der Sarcosporidien. In: Centralbl. f. Bakt. etc. Abt. I. Orig. Vol. 52.
1909. p. 566–573.
|
|
1532.
|
Darling, S. P., Experimental Sarcosporidiosis in
the Guinea pig and its relation to a case of Sarcospondiosis in man. In:
The Journ. of Exper. Med. Vol. 12. 1910. No. 1.
|
|
1533.
|
— Sarcosporidiosis with report of a case in man. In:
The Arch. of Intern. Med. April 1909.
|
|
1534.
|
Erdmann, Rh., Beiträge zur Morphologie und
Entwicklungsgeschichte des Hammelsarcosporids in der Maus. In:
Centralbl. f. Bakteriol. etc. Abt. I. Orig. Vol. 53. 1910. p. 510.
|
|
1535.
|
— Die Entwicklung der Sarcocystis muris in der
Muskulatur. Sonderabdr. aus den Sitz.-Ber. d. Ges. Naturf. Freunde. No.
8. 1910.
|
|
1536.
|
— Kern und metachromatische Körper bei Sarcosporidien.
In: Arch. f. Protistenk. Vol. 20. 1910. p. 240–250.
|
|
1537.
|
Kasparek, T., Beiträge zu den
Infektionsversuchen mit Sarcosporidien. In: Centralbl. f. Bakt. etc. Abt.
I. Vol. 18. p. 327.
|
|
1538.
|
Koch, M., Ueber Sarcosporidia. In: Verh. V.
internat. Kongr. f. Zool. Berlin 1901. 1902. p. 674.
|
|
1539.
|
— De la Sarcocystine, toxine des Sarcosporidies. Ibid.
1899. p. 311.
|
|
1540.
|
— Kern und metachromatische Körper bei Sarcosporidien.
In: Arch. f. Protistenk. Vol. 20. 1910. p. 240–250.
|
|
[S. 949]
1541.
|
Nègre, L., Sur le stade intestinal de la
sarcosporidie de la souris. In: Compt. rend. Soc. Biol. Paris. Vol. 68.
1910. p. 997–998.
|
|
1542.
|
Negri, A., Beobachtungen über Sarcosporidien. I
und II. In: Centralbl. f. Bakt. etc. Orig. Vol. 47. 1908. p. 56, 612;
II. Mitt. Vol. 47. Heft 5. p. 612–622; III. Mitt. Vol. 55. 1910. p.
373–382.
|
|
1543.
|
Probst, Ueber Sarcosporidienbefunde im Blut. In:
Arch. f. Schiffs- u. Tropenhyg. Vol. 14. 1910. No. 7. p. 558–559.
|
|
1544.
|
v. Rátz, St., Die Sarcosporidien und ihre in
Ungarn vorkommenden Arten. Budapest. Allattani Közlemények. 1909.
p. 37.
|
|
1545.
|
Sabrazès, J., et Muratet, L., Présence de
kystes à sarcosporidies, dans le tissu musculaire, au voisinage immédiat
d’une tumeur fibro-sarcomateuse chez un cheval. In: Compt. rend. Soc.
Biol. Vol. 67. 1909. p. 395
|
|
1546.
|
Smith, F. T., The production of Sarcosporidiosis
in the Mouse by feeding infected muscular tissue. In: Journ. of experim.
Medicine. Vol. 6. 1901. p. 1. Taf. 1–4.
|
|
1547.
|
Splendore, A., Sopra Sarcosporidi di Uccelli
Brasiliani. In: Rev. de Soc. scientif. da Sao Paulo. Vol. 2. 1908.
No. 1/8.
|
|
1548.
|
Teichmann, E., Ueber die Teilungen der Keime in
der Cyste von Sarcocystis tenella. In: Arch. f. Protistenk. Vol. 22. 1911.
Heft 3. p. 239–248.
|
|
1549.
|
— Ueber das Gift der Sarcosporidien. Experimentelle
Untersuchungen am Kaninchen. In: Arch. f. Protistenk. Vol. 20. 1910.
p. 97.
|
|
1550.
|
Watson, E. A., Sarcosporidiosis. In: Journ. of
comp. Pathol. and Therap. Vol. 22. 1909. No. 1. p. 1.
|
|
1551.
|
Weber, A., Altérations des fibres musculaires
striées sous l’influence des Sarcosporidies. In: Compt. rend. Soc. Biol.
Vol. 66. 1909. p. 567.
|
|
1552.
|
— Sur la morphologie de la Sarcosporidie du Gecko
(Sarcocystis platydactyli Bertram). In: Compt. rend. Soc. Biol. Vol. 66.
1909. p. 1061.
|
|
Die sonstige wichtige Literatur ist im Text bei den einzelnen Arten aufgeführt. |
|
|
10. Schriften über
Haplosporidien.
|
|
|
1553.
|
Bertram, vgl. No. 1530 oben.
|
|
1554.
|
Caullery et Mesnil, Recherches sur les
Haplosporidies. In: Arch. Zool. expér. Vol. 4 (IV). 1905. p. 101.
(Daselbst die gesamte ältere Literatur.)
|
|
1555.
|
Fantham, H. B., The classification of the
Haplosporidia. In: Rep. Brit. Assoc. Leicester 1907.
|
|
1556.
|
— and Ridewood, Neurosporidium cephalodisci. In:
Quart. Journ. Micr. Sci. Vol. 51. 1907. p. 81.
|
|
1557.
|
Minchin and Fantham, Rhinosporidium
Kinealyi. In: Quart. Journ. Micr. Sci. Vol. 49. 1905. p. 521.
|
|
1558.
|
Plehn, M., und Mulsow, K., Der Erreger
der „Taumelkrankheit“ der Salmoniden. In: Centralbl. f. Bakt. etc. Abt.
I. Orig. Vol. 59. 1911. Heft 1. p. 63.
|
|
1559.
|
Robertson, M., Notes upon a Haplosporidiacea
belonging to the genus Ichthyosporidium. In: Proc. Roy. Phys. Soc.
Edinburgh. Vol. 17. 1907. p. 175.
|
|
1560.
|
— Notes on a Ichthyosporidian causing a fatal disease
in sea trout. In: Proc. Zool. Soc. 1909. p. 399.
|
|
1561.
|
Stempell, W., Beiträge zur Kenntnis der Gattung
Polycaryum. In: Arch. f. Protistenk. Vol. 2. 1903. p. 349. (Daselbst
frühere Literatur.)
|
[39] Begründung, warum die Hämosporidien in diesem Buch abweichend von neueren systematischen Bestrebungen innerhalb der Gruppe der Telosporidia belassen wurden, folgt unten.
[40] Extracellulär lebt Eimeria mitraria Lav. u. Mesn., Cryptosporidium muris Tyzzer, auch Orcheobius herpobdellae Schub. u. Kze. ist kein typischer Zellparasit, andere Formen sind erst im ausgewachsenen Zustand intercellulär, s. u.
[41] Da die Vermehrung der ungeschlechtlichen Individuen auch schließlich zu einer Vermehrung der resultierenden Sporen führt, so dient die Agamogonie natürlich indirekt auch der Erhaltung der Art.
[42] Für Sporen der Coccidien hat man auch die Bezeichnung Sporocysten angewandt. Da diese aber schon für gewisse Stadien von Trematoden vergeben ist, so habe ich keinen Gebrauch davon gemacht. Ich halte eine besondere Bezeichnung für die Sporen der Coccidien nicht für nötig.
[43] Durch die konsequente Anwendung der Nomenklaturgesetze ist nun auch der Gattungsname Coccidium aus der Gruppe der Coccidien verschwunden. Um Verwirrungen zu vermeiden, habe ich an allen Stellen, wo eine Unklarheit über die Zugehörigkeit der Art entstehen könnte, im Allgemeinen Teil den Gattungsnamen Coccidium belassen, im Speziellen Teil ihn hinter Eimeria in Klammern beigefügt.
[44] Siehe Simond in: Annales Institut Pasteur. Vol. 11. 1897. p. 545.
[45] In Fig. A liegt der Kern als kompakter, schwarzer, runder Block am unteren Rand, in B und C am oberen Rand des Parasiten.
[46] Um keine Verwirrung anzurichten, füge ich den von den Spezialforschern angenommenen, prioritätsberechtigten Namen Nina nur an zweiter Stelle an, da Pterocephalus sich schon eingebürgert hat.
[47] Nach ihren neuesten Untersuchungen vereinigen Léger und Duboscq wohl mit Recht jetzt definitiv die drei folgenden Familien (Actinocephalidae, Acanthosporidae, Menosporidae) zu einer großen Familie Actinocephalidae s. l., welche charakterisiert ist durch das solitäre Vorkommen der heranwachsenden Stadien, durch den bewaffneten Epimeriten, die im Grundplan doppelkegelförmigen Sporen, die sexuelle Differenzierung der Syzygiten in der Cyste, Anisogamie mit zwei Sorten von geißeltragenden Mikrogameten, kuglige Makrogameten, kurze Dauer der beweglichen Phase der Mikrogameten, das alles und die Kopulationsvorgänge wie bei Stylorhynchus. Zygoten stets ein kugliges Stadium durchmachend und nicht eher die Kerne vermehrend, bis die Spore in der definitiven Form erhärtet ist. Restkörper mit „somatischen“ Kernen. Das alles ist festgestellt für Hoplorhynchus, Pileocephalus, Actinocephalus, Phialoides, Geneiorhynchus und Ancyrophora.
[48] Von Keysselitz wegen der von diesem Autor geschilderten späteren Vorgänge auch „Gametoblast“ genannt.
[S. 950]
II. Unterstamm:
Ciliophora Doflein.
Von allen bisher behandelten Protozoen unterscheiden sich die Angehörigen des zweiten Unterstammes, die Ciliophoren oder Infusorien, durch die Bewegungsorganellen: wo Bewegung bei ihnen stattfindet, wird sie durch zahlreiche kleine härchenartige Fortsätze des Protoplasmas, die Cilien oder Wimpern, vermittelt, welche alle oder doch in größeren Portionen simultan und gleichsinnig schwingen und so das Tier vorwärtsrudern (vgl. S. 37).
Aber noch durch einige weitere Eigentümlichkeiten erweisen sich die in Form und Lebensweise sehr mannigfaltigen Ciliophoren als zusammengehörig. Zunächst durch die Beschaffenheit ihrer Kerne. Die typischen Formen besitzen zwei Kerne: einen Hauptkern oder Makronucleus von gewöhnlich bedeutenderer Größe und sehr dichter Struktur und einen Nebenkern oder Mikronucleus von sehr geringem Durchmesser und bläschenförmigem Bau. Der Hauptkern färbt sich mit den üblichen Farbstoffen sehr stark, während dies bei dem Nebenkern in viel geringerem Maße der Fall ist.
Beide Kerne unterscheiden sich auch in ihrer physiologischen Bedeutung: während der Hauptkern alle gewöhnlichen Lebensverrichtungen, wie Bewegung, Ernährung, Atmung usw., leitet, spielt der Nebenkern seine Rolle hauptsächlich bei den Fortpflanzungsvorgängen. Da er bei den geschlechtlichen Vorgängen gegenüber dem Hauptkern in auffallender Weise in den Vordergrund tritt, hat man ihn sogar direkt den Geschlechtskern genannt.
Die Ciliophoren vermehren sich durch Zweiteilung oder Knospung. Dabei teilt sich stets zuerst der Nebenkern (oder die Nebenkerne) unter Spindelbildung, also auf indirekte Weise; der Hauptkern folgt meist erst nach, wenn die Nebenkernteilung annähernd oder ganz vollendet ist. Die Teilung des Hauptkerns ist meist eine direkte, er streckt sich in die Länge und zerfällt nach biskuitförmiger Einschnürung (Fig. 905 k). Ganz analog verläuft der Vorgang bei der multiplen Knospung der Suctorien.
Nicht bei allen Formen stellt der Makronucleus eine einheitliche Masse dar; wir haben schon im allgemeinen Teil verzweigte bandförmige und rosenkranzförmige Kerne beschrieben und geschildert, wie solche sich bei der Teilung verhalten (vgl. S. 149). Manche Arten besitzen Hauptkerne, welche während des vegetativen Lebens vollständig [S. 951]in kleine Partikel aufgeteilt sind, die im ganzen Protoplasma in einer Weise, welche sehr an Chromidien erinnert, zerstreut liegen. Nicht immer findet bei solchen Formen eine Konzentrierung der Kernmasse vor der Teilung statt, wie das für Urostyla grandis angegeben wird, sondern bei Formen, wie Dileptus, ziehen sich die einzelnen Partikel strangartig in die Länge und werden auf diese Weise auf die beiden Tochtertiere verteilt (Fig. 906).
Es gibt Ciliophoren mit mehreren Hauptkernen und mit mehreren Nebenkernen. Bei der Teilung verhalten sich solche Formen wie ein einheitliches Individuum (vgl. Fig. 905 Paramaecium aurelia mit 2 Nebenkernen). Zu jedem Hauptkern resp. Hauptkernteil können ein oder mehrere Nebenkerne gehören.
Die Befruchtung, welche nach Perioden ungeschlechtlicher Fortpflanzung eintritt, erfolgt als isogame oder anisogame Konjugation wie das im allgemeinen Teil (S. 187 ff.) geschildert worden ist. Neuere Untersuchungen deuten darauf hin, daß bei manchen Formen sich die Konjugationsvorgänge erheblich von dem dort geschilderten Schema entfernen. So kommen mancherlei Uebergänge von der typischen Isogamie zur typischen Anisogamie vor. Auch ist für eine Form [S. 952]neuerdings sogar Austausch von Makronucleusbestandteilen bei der Konjugation angegeben.
Zur Klärung unserer Vorstellungen vom Bau und den Fortpflanzungsverhältnissen der Protozoen ist ein vertieftes Studium der Ciliophoren sehr notwendig. Das Studium der vom Typus abweichenden Formen verspricht sehr wichtige Aufschlüsse.
Wir teilen die Ciliophoren auf Grund der Bewimperungsverhältnisse in folgende Klassen:
I. Klasse.
Ciliata. Bütschli.
Die Ciliaten oder Wimper-Infusorien, Protozoen mit konstanter Eigenform, besitzen meist einen so komplizierten Bau, daß man langer Zeit bedurfte, um sich von ihrer Einzelligkeit zu überzeugen. Ekto- und Entoplasma sind meist deutlich geschieden; den Körper überzieht eine vielfach sehr deutliche Pellicula. Für die verschiedensten Funktionen sind bei ihnen Organellen von hoher Vollkommenheit ausgebildet. Dies gilt besonders für die Bewegungsorgane und die Cytostome. Nicht nur sind die seltsamsten Umbildungen und Anordnungen von Cilien zum Schwimmen, Rudern, Kriechen und Hüpfen vorhanden. sondern es sind sogar den Muskelfibrillen vergleichbare Differenzierungen im Plasma mancher Arten zu finden. Der Bau der Cilien, Cirren, Membranellen, Membranulen, undulierenden Membranen und Tastborsten ist im allgemeinen Teil ausführlich geschildert worden. Das Erfassen und Schlucken der Nahrung wird durch komplizierte Bildungen, besonders spiralige Anordnung starker Wimpern, mit dem Mund (Cytostom) als Mittelpunkt des Systems, und durch sogenannte Reusenapparate am Schlund erleichtert. — Dem Cytostom entspricht vielfach eine Cytopyge, eine Afterstelle, welche zur Entleerung der Fäkalien dient. — Eine ganze Anzahl von Formen ist sessil; aber gerade diese sind in besonders hohem Grade kontraktil und besitzen die ansehnlichsten Strudelapparate. Sehr charakteristisch für viele Ciliaten ist der Besitz von kontraktilen Vakuolen, welche durch Zahl, Form und Anordnung der zuführenden Kanäle, durch Entleerungseinrichtungen etc. bei den verschiedenen Arten spezifische Merkmale darstellen.
Die Vermehrung geht durch Querteilung oder durch Knospung vor sich. Die Querteilung ist stets eine Zweiteilung. Sie vollzieht sich in der Regel im freibeweglichen Zustand. Aber in manchen Fällen — und dies ist für parasitische Formen von besonderer Wichtigkeit — geht die Vermehrung in einer schützenden Hülle, einer Cyste, vor sich. Dann finden gewöhnlich rasch hintereinander mehrere, in manchen Fällen sogar sehr zahlreiche Teilungen statt. Doch haben die geschlechtlichen Vorgänge keine besondere Form der Vermehrung, nicht einmal eine besonders intensive Vermehrung, zur Folge.
Bei den Ciliaten hat die Fähigkeit, durch Bildung von Schutzcysten, sogenannten Dauercysten, der Gefahr des Austrocknens [S. 953]zu entgehen, eine große Verbreitung. Die Tiere pflegen bei Einwirkung von ungünstigen Einflüssen sich abzurunden und unter rotierenden Bewegungen eine dauerhafte Membran abzuscheiden. In dieser können sie selbst einige Jahre lang ausgetrocknet sich lebend erhalten. Wenn sie wieder in Wasser kommen, platzt die Hülle, und die Tiere erwachen so zu neuem Leben. Diese Eigenschaft macht die Ciliaten auch für den Parasitismus sehr geeignet. Wir finden denn auch in allen Abteilungen der Ciliaten Parasiten. Aber ihre Vermehrungsverhältnisse und ihre Ernährungsweise macht sie nicht besonders geeignet zum Parasitieren in den Geweben; auch als echte Krankheitserreger kommen sie daher selten zur Wirkung.
Wir finden sie vor allem als Ekto- und Entokommensalen. Aber auch als solche können sie durch massenhaftes Auftreten ihren Wirt sehr belästigen und ihm selbst Schaden zufügen, indem sie z. B. bei Fischen die Kiemen vollständig bedecken. In anderen Fällen können wir selbst bei ganz ungeheuer massenhaftem Vorkommen nicht die geringste Schädigung des Wirts feststellen, z. B. bei den Ciliaten des Wiederkäuermagens.
Weit verbreitet sind bei den Ciliaten Stielbildungen, sowie gallertige pseudochitinige und durch Fremdkörper verstärkte Gehäuse (vgl. S. 48). Sehr häufig ist die Koloniebildung, besonders unter den Peritrichen.
Gar nicht selten sind unter den Ciliaten Formen mit symbiotischen Zoochlorellen (vgl. S. 77). Sehr viele Ciliaten sind Bakterienfresser (Glaucoma, Colpoda, Paramaecium-Arten), andere sind Algenfresser (Nossula), andere Infusorien- und Kleintierfresser (Stentor, Didinium, Bursaria) etc.
Sowohl im Meer als auch im süßen Wasser sind die Ciliaten in großer Artenzahl verbreitet.
Wir teilen die Ciliaten auf Grund ihrer Bewimperungsverhältnisse in fünf Ordnungen ein, welche in zwei großen Gruppen angeordnet werden können, den Unterklassen der Aspirigera und der Spirigera.
Bütschli hat ferner als wichtiges Einteilungsprinzip die Bauverhältnisse des Mundes herangezogen. Ein Teil der Holotrichen hat eine Mundöffnung, welche gewöhnlich geschlossen ist und nur zur Nahrungsaufnahme geöffnet wird. Bei diesen Formen kommen weder undulierende Membranen noch Schlundbewimperung vor. Die Nahrung wird hinabgeschlungen: „Packer“ oder „Schlinger“, Gymnostomata Bütschli (vgl. S. 84 u. 284).
Bei den übrigen Holotrichen und sämtlichen anderen Infusorien ist der Mund gewöhnlich geöffnet, seine Ränder und der Schlund können mit undulierenden Membranen oder Cilien versehen sein. Die Nahrung wird eingestrudelt: „Strudler“, Trichostomata Bütschli (vgl. S. 84 u. 284):
In Uebereinstimmung mit unseren früheren Erfahrungen bei den anderen Klassen der Protozoen werden wir sehen, daß die primitiveren Ordnungen zahlreiche Parasiten enthalten, daß dagegen, je höher die Organisation einer Gruppe gestiegen ist, um so weniger sich Parasiten mit ihren Merkmalen nachweisen lassen; d. h. also, entweder nehmen keine ihrer Angehörigen die parasitische Lebensweise an, oder — wenn es geschehen sollte — so verschwinden die höheren Differenzierungen infolge des Parasitismus und machen anderen Platz, welche das Tier von seinen freilebenden Verwandten noch weiter entfernen.
So finden wir unter den Holotrichen und Heterotrichen die meisten Parasiten, weniger unter den Oligotrichen, fast gar keine mehr bei Hypotrichen und Peritrichen; und die wenigen, die sich in den beiden letzten Abteilungen finden, sind auch nur Ektoparasiten.
Wir betrachten von der großen Menge von Ciliatenformen nur eine kleine Zahl, welche uns einen Ueberblick über die Fülle interessanter Formen geben soll. Dabei wird außer oft genannten und für die allgemeine Naturgeschichte der Protozoen wichtigen Formen besonderes Gewicht auf die Parasiten gelegt. Diese treten dadurch fast zu sehr in den Vordergrund, während sie in der Natur gegenüber der Formenfülle der freilebenden Arten zurücktreten.
Wir konnten uns um so eher bei der Darstellung der Ciliaten kurz fassen, als in Bütschlis unübertroffenem Protozoenwerk die ausführliche Darstellung der Ciliaten in allen wesentlichen Punkten, obwohl das Werk schon 1888 vollendet war, noch nicht überholt ist.
[S. 955]
I. Unterklasse.
Aspirigera
Blochmann.
I. Ordnung:
Holotricha Stein.
Die holotrichen Infusorien stellen durch die Art ihrer Bewimperung den einfachsten Typus dar. Viele Gattungen sind durch ein gleichmäßiges Wimperkleid ausgezeichnet, dessen Wimpern alle untereinander gleich sind und alle Seiten des Körpers bedecken. Das gilt besonders für die freischwimmenden Formen, welche dieser Lebensweise entsprechend einen kreisrunden Querschnitt besitzen. Bei solchen Formen können die Wimpern auch in Streifen oder Zonen angeordnet sein, welche den Körper ringförmig umziehen und aus lauter gleichartigen Elementen bestehen. Solche Wimperringe kommen in der Ein- oder Mehrzahl vor; die von ihnen nicht bedeckte Körperoberfläche ist nackt (vgl. Didinium nasutum Fig. 912 C). Bei an Unterlagen kriechenden Formen ist der Körper meist abgeflacht, und die Hauptmasse der Wimpern ist dann an der Bauchseite angebracht, während der Rücken nackt ist oder lokalisierte Wimpergruppen trägt (vgl. Chilodon Fig. 72, S. 59). Bei manchen Formen ist immerhin eine gewisse Differenzierung im Wimperkleid erkennbar, indem die Cilien in der Nähe des Mundes größer sind und charakteristische, allerdings niemals spiralige, Anordnung zeigen; auch kommen undulierende Membranen vor.
Während die typischen Holotrichen im allgemeinen durch den Besitz eines massigen Makronucleus und eines bläschenförmigen Mikronucleus ausgezeichnet sind, finden wir bei manchen holotrich bewimperten Protozoen erheblich abweichende Kernverhältnisse. Wir reihen einige solche Formen am Anfang der Holotrichen ein, indem wir von der Idee ausgehen, daß möglicherweise solche Formen einen Uebergang von Plasmodromen zu Ciliophoren vermitteln können. Bütschli u. a. haben darauf hingewiesen, daß man die Ciliaten am ungezwungensten von Flagellaten ableiten kann, welche mit über den ganzen Körper verteilten gleich langen und gleichmäßig funktionierenden Geißeln versehen sind. Eine solche Form ist z. B. Multicilia. Da nun die in ihren Kernverhältnissen abweichenden Ciliaten zum Teil eine Entwicklung haben, welche an diejenige der Plasmodromen erinnert (Opalina), zum Teil erst während der Vorbereitungen zu einer echten Konjugation die für die Ciliophoren typischen Kernverhältnisse entwickeln etc., so liegt die Vermutung nahe, daß sie zu den primitivsten Ciliophoren gehören oder doch deren Bauverhältnisse repräsentieren.
Abgesehen von diesen primitiven Formen kann man die Holotrichen in 9 Familien einteilen.
A. Primitive Formen.
Es sind besonders Formen ohne den charakteristischen Dimorphismus der Kerne, welche wir für primitive Ciliaten zu halten geneigt sind. Manche davon, so z. B. Opalina und das von Lebedew untersuchte marine Infusor Trachelocerca, zeigen noch dazu eine Art von Generationswechsel, welcher den Zeugungskreis demjenigen [S. 956]von Plasmodromen einigermaßen ähnlich macht. Meist treten aber in den Konjugationsstadien echte Mikronuclei oder ähnliche Gebilde auf.
Gattung: Opalina Purkinje u. Valentin.
Opalina ranarum Purk. u. Val.
|
1835.
|
Purkinje et
Valentin, De phenomeno generali et fundamentali
motus vibratorii etc. Vratislaviae.
|
|
1876.
|
Engelmann, in: Morphol. Jahrb.
Vol. 1. p. 574.
|
|
1877.
|
Zeller, in: Zeitschr. f.
wiss. Zool. Vol. 29. p. 352.
|
|
1904.
|
Loewenthal, Das Auftreten
eines mikronucleusartigen Gebildes bei Opalina. In: Arch. f. Protistenk.
Vol. 3. p. 387.
|
|
1907.
|
Neresheimer, E., Die
Fortpflanzung der Opalinen. In: Arch. f. Protistenk. Suppl.-Bd. 1. p. 1.
|
|
1909.
|
Metcalf, Opalina. Ibid.
Vol. 13. p. 195.
|
Die Gattung Opalina ist durch den Besitz von bläschenförmigen Kernen ausgezeichnet. Es sind deren 2 oder mehr vorhanden, welche alle gleich geartet sind; also nicht Haupt- und Nebenkern, vielmehr gleichen alle Kerne Nebenkernen.
[S. 957]
Opalina ranarum ist die gemeinste Form, dabei sehr groß, sie mißt 600–800 µ. Ihr Körper ist stark abgeplattet, breit, nach vorn stumpf zugespitzt, nach hinten mehr oder weniger abgerundet (Fig. 907 A). Die Kontur ist nicht regelmäßig, vielmehr ist die linke Seite etwas eingekerbt. Die Pellicula ist durch starke Streifen ausgezeichnet.
Das Ektoplasma ist homogen, das Endoplasma granuliert und enthält zahlreiche scheibenförmige Körperchen.
Außerdem enthält es die sehr zahlreichen Kerne, welche einen Durchmesser von 8–10 µ besitzen.
Mund und After fehlen; nach neueren Untersuchungen von Metcalf ist ein eigenartiger kanalartiger Exkretionsapparat vorhanden.
Opalina ranarum bewohnt den Enddarm von Rana temporaria, Bufo variabilis und cinereus. In den erwachsenen Wirten findet in der Regel eine Vermehrung durch Teilung in schiefer oder querer Richtung statt (Fig. 907 B). Damit alterniert eine zweite Art der Vermehrung, welche nur zu gewissen Zeiten des Jahres stattfindet.
Bei der Lebensweise und Nahrung der Frösche und Kröten wäre eine Infektion mit den Infusorien ohne Wirtswechsel der letzteren nicht möglich, fände die Infektion nicht ausschließlich bei den Larven statt.
Wenn die Frösche im Frühjahr zum Laichen ins Wasser gehen, zerfallen die Opalinen in ihrem Darm durch rasch aufeinander folgende Teilungen in kleine Individuen (40–50 µ), welche nur noch wenige Kerne enthalten (Fig. 907 C). Dieselben umgeben sich alsbald mit einer durchsichtigen kugligen Cyste von 20–28 µ (selten 40–45 µ) Durchmesser (Fig. 907 D).
Die encystierten Tierchen zeigen noch mehrere Kerne. Sie verlassen den Darm ihres Wirts, fallen in den Schlamm und werden mit demselben von den Kaulquappen gefressen. Sie kriechen in denselben erst im Enddarm aus, wo die Cysten oft tagelang liegen [S. 958]bleiben. Die aus den Cysten entstehenden einkernigen Stadien sind die Gameten, welche nach Metcalf Anisogameten sind. Die Kopulation führt zu einer vollkommenen Verschmelzung.
Es würde zu weit führen, die sehr interessanten Phänomene, welche der Kopulation vorausgehen und sie begleiten (vgl. Fig. 908), hier zu erörtern. Es sei hier nur auf die Arbeiten von Neresheimer und Metcalf hingewiesen.
Für die Auffassung der Ciliaten im allgemeinen sind die eigenartigen Opalinen aus Fischen und Amphibien und ihre Verwandten aus Cephalopoden etc. von großer Wichtigkeit; doch sind unsere Kenntnisse aller dieser Formen noch unvollkommen. (Vgl. die Schriften, welche im Literaturverzeichnis zitiert sind.)
Gattung: Ichthyophthirius Fouquet.
Ichthyophthirius multifiliis Fouquet.
|
1869.
|
Parasitisches Infusor, Hilgendorff
und Paulicki, in: Centralbl. f. d. med.
Wissensch. p. 33.
|
|
1876.
|
Ichthyophthirius multifiliis
Fouquet, in: Arch. Zool. expér. Vol. 5.
p. 159.
|
|
1884.
|
Chromatophagus parasiticus Kerbert,
in: Nederl. Tijdschr. v. d. Dierk. Vereen. Vol. 5. p. 44.
|
|
1880.
|
Holophrya multifiliis Fouquet,
Bütschli, in: Bronns Klassen und Ordnungen.
Vol. 1. Protozoa.
|
|
1892.
|
Zacharias, in: Centralbl. f.
Bakt. etc. p. 718.
|
|
1908.
|
Neresheimer, E., Der
Zeugungskreis von Ichthyophthirius. In: Ber. d. Kgl. bayr. biol.
Versuchsstation in München. Vol. 1. p. 1.
|
Diese Art, welche den Angehörigen der Gattung Holophrya sehr nahesteht, erreicht eine sehr ansehnliche Größe. Man findet Exemplare von über ½ mm Länge bis 800 µ. Die Gestalt ist fast kuglig, nach vorn etwas verjüngt, doch ist der Körper sehr biegsam. Die Oberfläche ist regulär gestreift.
Der Mund ist terminal gelegen, von einem wulstartigen Lippensaum umgeben. Ein kurzer Schlund ist deutlich (Fig. 909 A).
Der After ist terminal gelegen; kontraktile Vakuolen sind zahlreich vorhanden, welche klein sind und sich über die ganze Körperoberfläche verteilt finden.
Die Cilien sind sehr zart und gleichmäßig verteilt.
Der Hauptkern ist groß, hufeisenförmig, in der Mitte des Tieres gelegen (Fig. 909 A). Der Nebenkern, welcher bisher mit Sicherheit noch nicht nachgewiesen war, ist bei den erwachsenen Formen wahrscheinlich gar nicht vorhanden. Bei jungen Exemplaren ist er jedoch leicht zu erkennen; er ist relativ groß, bläschenförmig und zeigt im Innern eine alveoläre Struktur. Nach Neresheimer entsteht er durch einen eigenartigen Knospungsvorgang aus dem Hauptkern.
Konjugation ist bisher noch nicht bekannt. Neresheimer beschreibt Autogamie von Mikronucleis. Die Vermehrung betrachten wir am besten im Zusammenhang mit dem Parasitismus.
Ichthyophthirius multifiliis schmarotzt in der Haut von zahlreichen Süßwasserfischen (Cyprinoidea, Salmoniden, Esox, Tinca u. a.), ohne eine besondere Vorliebe für eine bestimmte Art zu zeigen. Die befallenen Fische zeigen an der Körperoberfläche weißliche Pusteln; die infizierten Tiere sind gewöhnlich in kurzer Zeit von sehr zahlreichen Parasiten bedeckt.
Die jungen Parasiten setzen sich auf der Haut der Fische fest, es ist noch nicht nachgewiesen, ob sie zwischen die Epithelzellen [S. 959]eindringen können. Jedenfalls findet man die heranwachsenden Tiere vom wuchernden Epithel umwallt und überwallt. Die Zellen der Haut ordnen sich wie das Bindegewebe bei der Bildung einer Cyste, wie Epithel um ein Gefäß (Fig. 911). Sonst sind im Epithel keine besonderen Erscheinungen zu konstatieren. Die Pusteln bilden sich als eine trübe Schwellung aus, so daß sie sich meist von der dunkleren Haut des Fisches abheben.
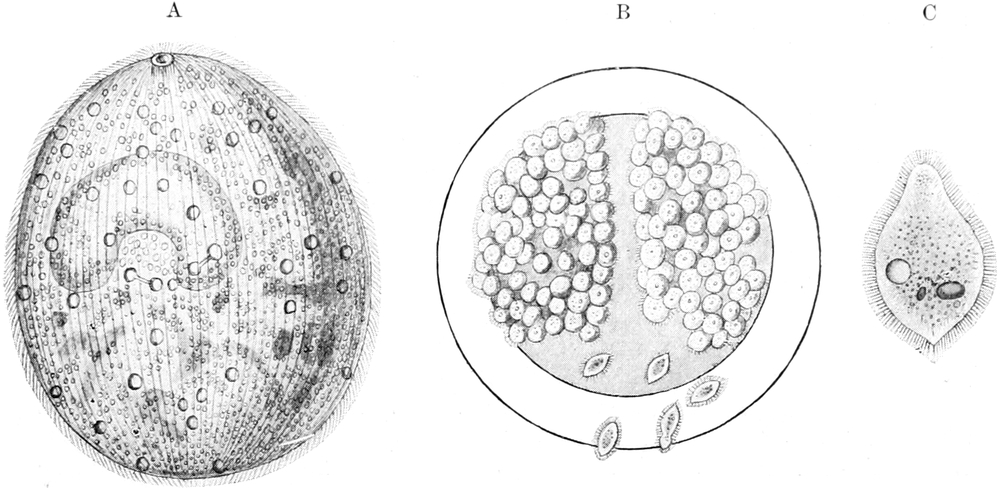
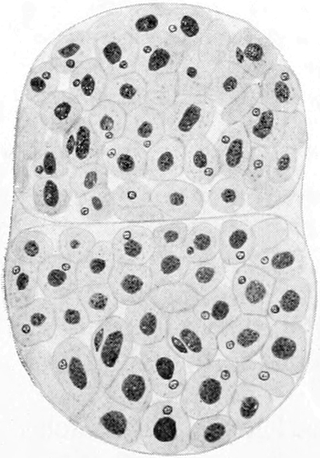
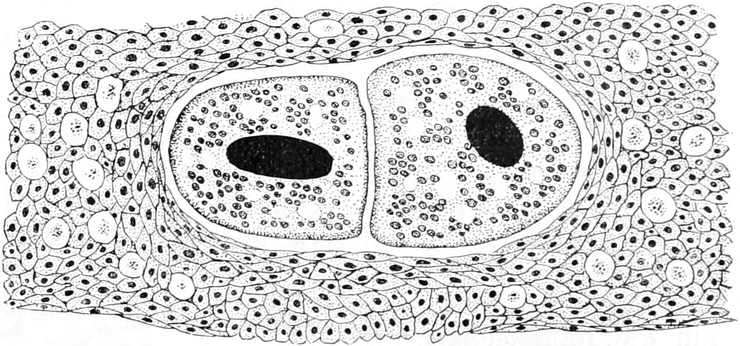
Man findet nicht selten zwei Individuen oder selbst mehr von der gleichen Epithelkapsel umschlossen (Fig. 911). Doch glaube ich dies nicht auf eine Teilung innerhalb des Epithels zurückführen zu [S. 960]müssen; denn ich habe nie Ichthyophthirius in der Haut in Teilung angetroffen.
Die Vermehrung findet vielmehr in der Regel statt, nachdem das Infusor aus dem Epithel des Fisches herausgefallen ist. Dies kann nach Erreichung ganz verschiedener Dimensionen geschehen. Oft lösen sich mit dem Infusor Teile der Haut los.
Das herausgefallene Tier bildet eine gallertige zarte Cyste und teilt sich alsbald in zwei Hälften unter lebhaften Bewegungen und Rotationen. Die beiden Hälften teilen sich sofort wieder, und es entsteht durch fortgesetzte Teilung eine sehr große Anzahl kleiner Nachkommen (Fig. 909 B u. C). Die Zahl differiert je nach der Größe, welche das Infusor vor der Teilung, als es sich aus der Haut loslöste, erreicht hatte. Sie erreicht nach meiner Schätzung höchstens 256. Doch ist die Zahl nicht immer eine regelmäßige, da häufig ein Teilstück in irgendeinem Stadium die Teilung einstellt, z. B. schon im Zweierstadium nur die eine Hälfte die Teilung fortsetzt. Die jungen Tiere messen im Durchschnitt 45 µ in der Länge.
In den späteren Stadien, wenn die Nahrungskörper im Plasma schon fast vollständig aufgebraucht sind, lassen sich auch die Nebenkerne, zum Teil in Spindelbildung, auf Schnitten massenhaft nachweisen (Fig. 910).
Die jungen Tiere schwärmen aus der Cyste aus (bei ihnen sollen dann nach Neresheimer die Autogamievorgänge stattfinden) und infizieren die Fische von neuem, um in der Haut heranzuwachsen. Die Pusteln finden sich hauptsächlich auf den Flossen und dem Kopf, doch auch auf Augen und Kiemen. Wird die Infektion sehr stark, so dehnen sich die Pusteln schließlich über den ganzen Körper aus, wobei die benachbarten zusammenfließen.
Die infizierten Fische, besonders Forellenbrut, gehen oft massenhaft an den Ichthyophthirien ein, insbesondere da sich in deren Gefolge meist Saprolegnien und andere Pilze auf der Haut der Fische ansiedeln.
B. Typische Holotricha.
a) Holotricha gymnostomata.
1. Familie: Enchelidae Ehrenberg.
Formen mit einem röhrenförmigen, stets unbewimperten, meist geraden, nicht immer deutlichen Schlund.
Gattungen: Holophrya Ehrbg., Enchelys Ehrbg.
Prorodon Ehrbg. Gattung mit eiförmigen Arten, deren Schlund von feinen Stäbchen gestützt ist, mit dichteren Cilienbüscheln in der Nähe des Mundes. Die Tiere bewegen sich sehr lebhaft unter Rotation um die Längsachse.
Prorodum ovum (Ehrbg.) (Fig. 912 B). P. teres Ehrbg. (vgl. auch Fig. 47, S. 39).
Nahe steht Enchelyodon Cl. u. L. (E. farctus C. u. L., Fig. 271, S. 286).
Lacrymaria Ehrbg., mit flaschenförmigen Arten (vgl. Fig. 208 A, S. 204).
Coleps Ehrbg., eine in faulendem Sumpfwasser sehr häufige Gattung, hat einen tonnenförmigen Körper; die sehr erweiterungsfähige [S. 961]Mundöffnung nimmt das ganze breit abgestutzte Vorderende ein. Der Schlund ist längsgestreift. Der Körper besteht aus einer größeren Anzahl von Platten. Coleps hirtus Ehrbg. Fig. 912 A und Fig. 102, S. 87; Fig. 137, S. 139.
Hier in der Nähe ist auch die eigenartige, von Lauterborn beschriebene, sapropelische (vgl. S. 289) Form Dactylochlamys pisciformis L. einzuordnen (Fig. 913).
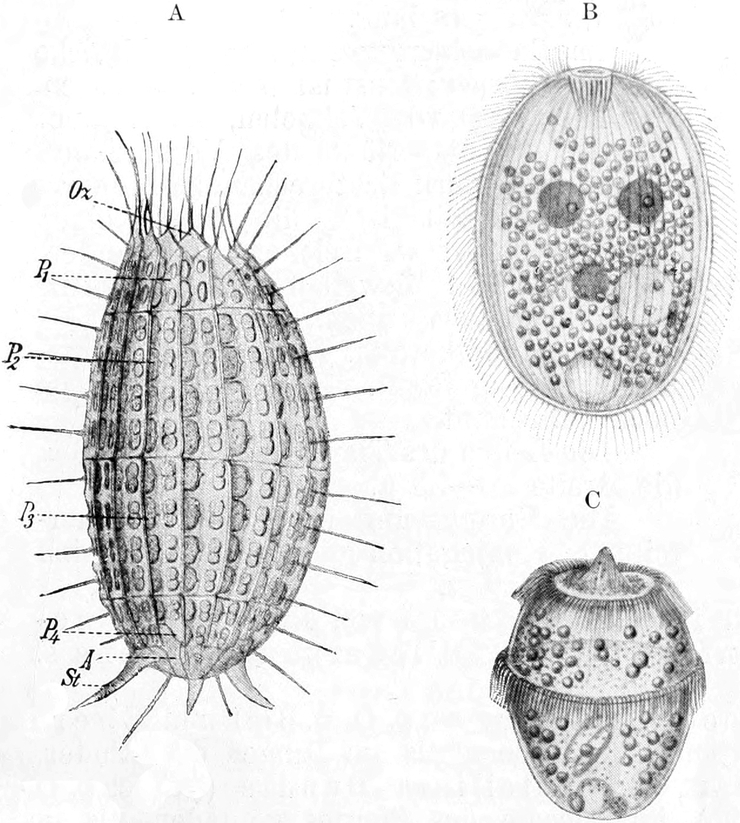
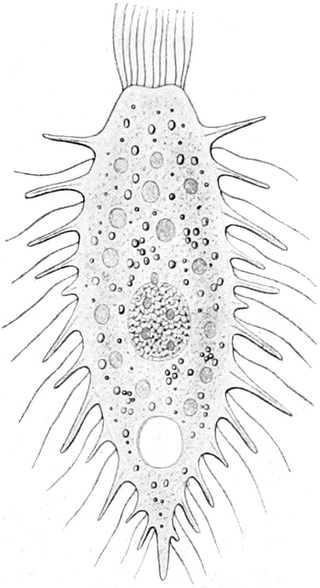
Didinium Stein. Eiförmige Gattung mit reduzierter Bewimperung. 2 Ciliengürtel vorhanden. Am Vorderende ein vorstülpbarer Rüssel, an dessen Ende die sehr erweiterungsfähige Mundöffnung gelegen ist. Der Schlund ist durch feine Stäbchen gestützt. Das Tier ist ein lebhafter Räuber, der selbst Paramäcien zu verschlingen vermag. Didinium nasutum Stein (Fig. 912 C, vgl. auch Fig. 269 u. 270, S. 285 u. 286).
Gattung: Bütschlia Schuberg.
Bütschlia parva Schuberg.
|
1888.
|
Schuberg, in: Zool. Jahrb.
Anat. Vol. 3. p. 372.
|
|
1895.
|
Eberlein, in: Zeitschr. Wiss.
Zool. Vol. 59. p. 280.
|
Die Gestalt dieser nur etwa 60 µ Länge erreichenden Art ist oval, oft nahezu kuglig. Das Vorderende ist fast gerade abgestutzt. [S. 962]Das Ektoplasma ist dicht homogen, cuticulaartig. Am Vorderende findet sich ferner eine sehr dichte Plasmazone (Fig. 914).
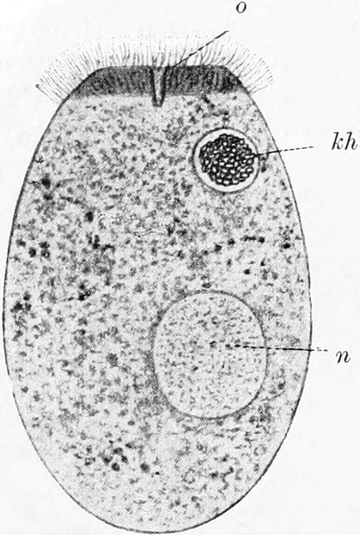
Die Oberfläche des Körpers ist in ihrer ganzen Ausdehnung mit sehr feinen und zarten Cilien bedeckt, welche in ziemlich weiten Längsreihen angeordnet sind. Am Vorderende sind die Cilien besonders lang.
Im Endoplasma zeigen sich zahlreiche Nahrungskörper; sonst ist es sehr homogen, vor allem frei von Vakuolen, außer einer Vakuole in der Nähe des Vorderendes, welche mit stark lichtbrechenden Konkretionen angefüllt ist, die durch einen Porus von Zeit zu Zeit entleert werden. Eberlein will bisweilen eine kontraktile Vakuole gesehen haben.
Der Hauptkern ist groß und blaß, ziemlich kuglig geformt. Der Nebenkern ist noch unbekannt.
Die Länge des Tieres beträgt 30–50 µ, die Breite 20–30 µ.
Die Vermehrung erfolgt durch Querteilung. Konjugation und Encystierung sind noch unbekannt.
Die Art findet sich im Rumen (Pansen) von Rindern. Allgemeines über die Infusorien des Wiederkäuermagens s. S. 981.
Bütschlia neglecta Schuberg (a. a. O. S. 374) und Eberlein (a. a. O. S. 282) finden sich ebenfalls im Rumen der Rinder, während eine andere Art, B. postciliata Bundle (Zeitschr. f. wiss. Zool. Vol. 60. 1895), im Coecum des Pferdes gefunden wurde.
2. Familie: Trachelidae Ehrenberg.
Die Tracheliden sind nicht so regelmäßig gebaut, wie die Enchelidae. Ihr Körper ist bilateral-symmetrisch oder asymmetrisch, meist seitlich komprimiert. In der Nachbarschaft des Mundes ist oft eine Körperpartie rüsselartig vorgezogen und überragt die Mundregion.
Gattungen: Trachelius Cl. u. L., Amphileptus Cl. u. L. (A. Claparedii Stein), Lionotus Wrzesn. (L. anser O. F. M.), Loxodes Cl. u. L. (L. rostrum Ehrbg.).
Dileptus Duj. Eine Gattung mit langem, sehr beweglichem Rüsselfortsatz, der etwa ⅔ der Gesamtlänge erreicht, und zugespitztem Hinterende. An der Basis des Rüssels liegt ventral die Mundöffnung. Der Schlund ist von feinen Stäbchen gestützt. An der Ventralkante des Körpers zahlreiche Trichocysten. Makronucleus bei manchen Formen rosenkranzförmig, bei anderen durch eine Anzahl chromatischer Brocken vertreten. Mikronucleus nur bei der Konjugation nachweisbar.
Dileptus anser (O. F. M.). D. gigas Wrzesn. (Fig. 906.)
3. Familie: Chlamydodontidae Stein.
Körper oval oder bohnenförmig, mäßig lang, oft abgeplattet; im letzteren Fall vorwiegend auf der Bauchseite bewimpert.
[S. 963]
Gattungen: Nassula Ehrbg. (N. elegans Ehrbg.).
Chilodon Ehrbg. Stark abgeflacht, mit oft gekrümmtem Reusenapparat. C. uncinatus Ehrbg. = curvidentis Gruber (Fig. 72, S. 59; vgl. auch Fig. 208 B. S. 204). Chilodon cyprini Moroff, eine Form mit eingekerbtem Hinterrand, kommt bei Karpfen und ganz besonders bei Goldfischen sehr häufig auf der Haut vor. Bei massenhafter Entwicklung, besonders bei Verbreitung der Parasiten auf die Kiemen verursacht er eine schwere Erkrankung, welche in Goldfischzüchtereien große Verheerungen anrichten kann (vgl. Hofer, Handb. der Fischkrankh. 1904. p. 128). Ch. hexastichus Kiernik parasitiert ebenfalls auf Süßwasserfischen.
Ch. dentatus (wohl = uncinatus) (Ehrbg.) ist von Guiart neuerdings für einen Parasiten des menschlichen Darms gehalten worden, da er sich in Faeces nachweisen ließ. Es ist wohl kaum an echten Parasitismus zu denken, sondern eher an Passage im Cystenzustand durch den menschlichen Körper und nachträgliche Entwicklung in den abgesetzten Faeces (vgl. hierzu die Entwicklungsweise von Chlamydophrys S. 627). Selenew will in mehreren Fällen ein Chilodon-ähnlich aussehendes Protozoon im Prostatasekret bei Gonorrhöe gefunden haben.
b) Holotricha trichostomata.
4. Familie: Chiliferidae Bütschli.
Formen mit in der vorderen Körperhälfte, manchmal am Vorderende gelegenem Mund; derselbe ist an seinen Rändern oder der Schlund ist mit undulierenden Membranen versehen, der Schlund ist flach oder beutelförmig.
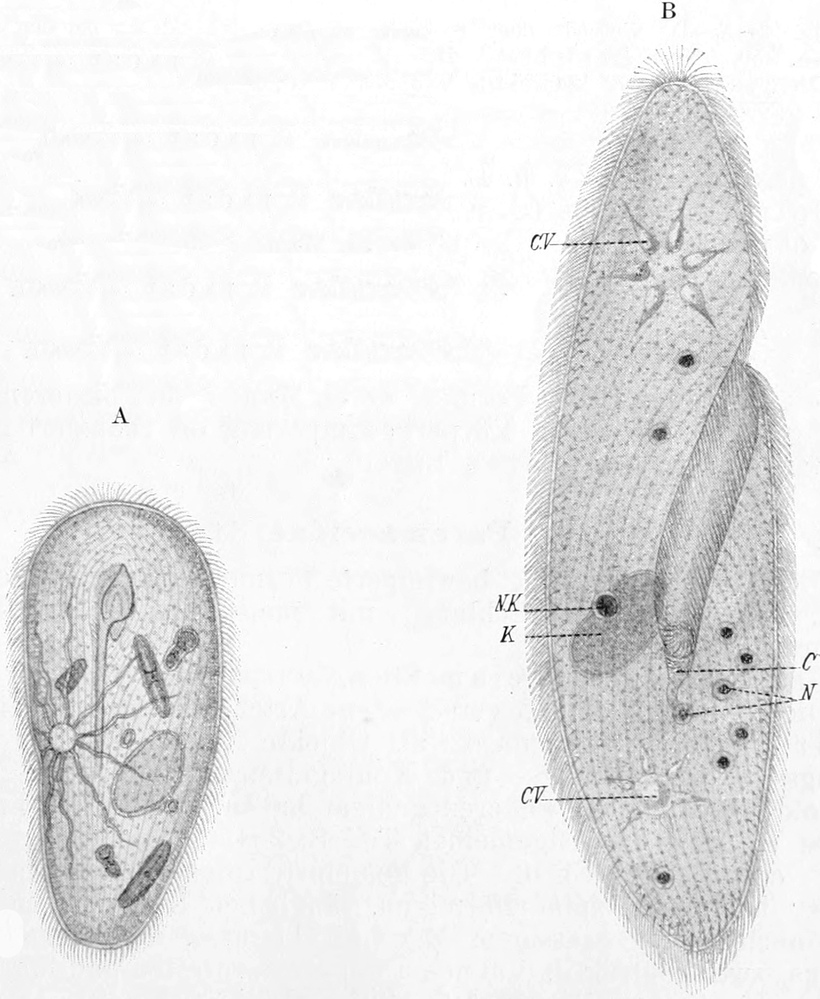
[S. 964]
Gattungen: Leucophrys Stein mit spaltförmigem Mund am Vorderende (L. patula Ehrbg.).
Glaucoma Ehrbg. (G. scintillans Ehrbg., häufig in Infusionen).
Frontonia Cl. u. L. Formen mit regelmäßiger Körperstreifung, ventral gelegener, großer ovaler Mundöffnung mit großer undulierender Membran am linken Rand, meist mit Trichocysten.
Fr. leucas Cl. u. L. mit seitlich gelegener kontraktiler Vakuole und langen geschlängelten zuleitenden Kanälen (Fig. 915 A). Oft mit Zoochlorellen infiziert.
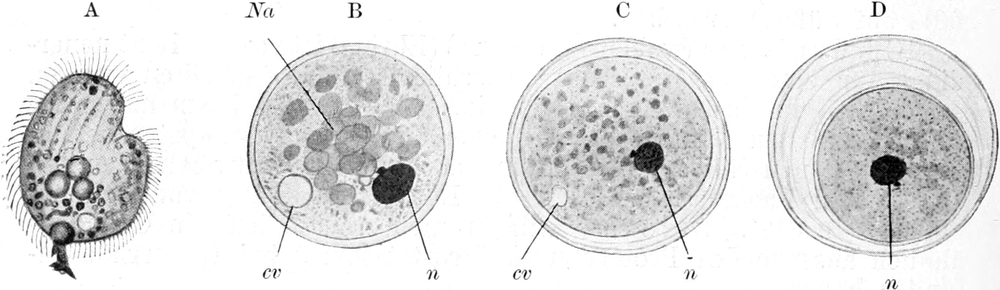
Ophryoglena Cl. u. L. (O. flava Ehrbg. Fig. 79, S. 64).
Colpidium Stein (C. colpoda St.)
Colpoda O. F. M. (C. cucullus Ehrbg. Fig. 916). Eine in Heuinfusionen besonders häufige Form.
5. Familie: Microthoracidae Wrzesniowski.
Stark asymmetrische Formen, deren Mund in der hinteren Körperhälfte gelegen und deren Körperbewimperung oft reduziert ist.
Gattung: Microthorax Engelm.
6. Familie: Paramaecidae Bütschli.
Dicht und gleichmäßig bewimperte Formen mit ventral gelegenem Mund, röhrenförmigem Schlund, mit meist langer, undulierender Membran.
Gattung: Paramaecium Stein.
Diese Gattung enthält verschiedene Arten, welche die meist untersuchten Infusorien sind, da sie als Objekte für das Studium der Vererbungs-, Fortpflanzungs- und Konjugationserscheinungen und der Physiologie vor allen anderen gedient haben. Ueber sie findet sich einiges Wichtige im Allgemeinen Teil S. 264.
P. caudatum Ehrbg. Die gemeinste Infusorienform in fauligem Wasser hat einen spindelförmigen, länglichen Körper, einen ovalen Makronucleus von massigem Bau mit kleinem, anliegendem Mikronucleus, zwei kontraktile Vakuolen mit Kanalrosetten und führt Trichocysten. Länge des Körpers 120–325 µ. (Fig. 915 u. 917 A; vgl. auch Fig. 262 u. 263, S. 264; Fig. 264, S. 265; Fig. 103–105, S. 88; Fig. 111 u. 112, S. 92; Fig. 118 u. 119, S. 104; Fig. 258, S. 254.)
[S. 965]
P. aurelia (O. F. M.) mit zwei Nebenkernen (Fig. 917 B, vgl. auch Fig. 905, S. 951).
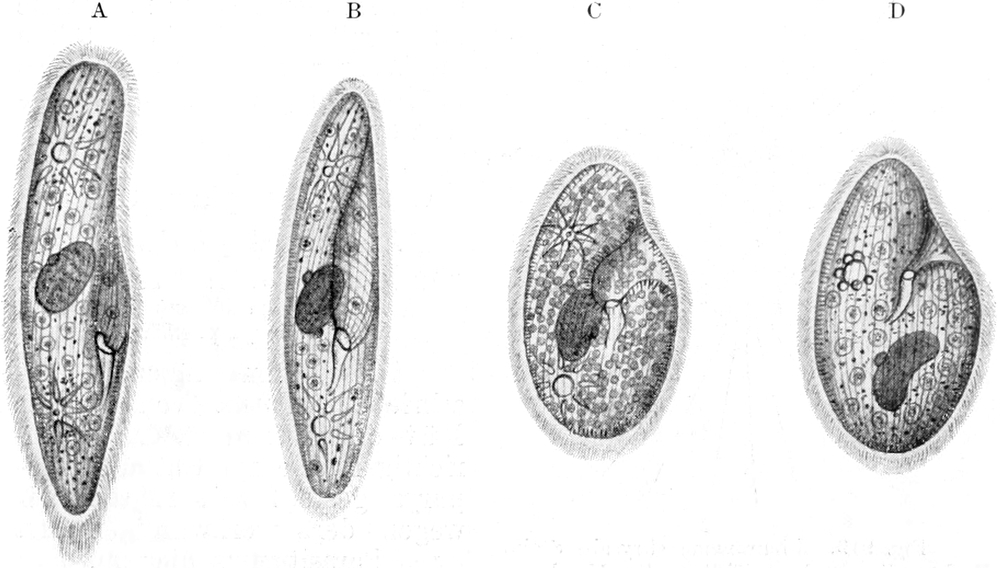
P. putrinum Cl. u. L. ist kürzer und plumper als die vorigen, sonst sehr ähnlich. Länge 80–140 µ. (Fig. 917 D u. Fig. 197 A–Q, S. 188 ff.)
P. bursaria (Ehrbg.) ist breiter, flacher, mehr nierenförmig gestaltet, die Peristomfurche ist flach. Der Makronucleus ist ebenfalls nierenförmig, ihm liegt ein Mikronucleus an. Fast stets durch Zoochlorellen infiziert. Länge ca. 120 µ (60–155 µ). (Fig. 917 C u. Fig. 918).
7. Familie: Urocentridae Claparède u. Lachmann.
Mit einzelnen Wimperfeldern (hauptsächlich ein bis zwei Wimperringen), Mund ventral, Schlund lang-röhrenförmig.
Gattung: Urocentrum Nitzsch. (U. turbo Ehrbg.)
8. Familie: Pleuronemidae Bütschli.
Formen mit starker allgemeiner Bewimperung, denen ein Schlund nicht selten fehlt. Das Peristom ist am linken Rand mit einer oft sehr mächtig entwickelten undulierenden Membran versehen, während es am rechten Rand eine schwächere Membran oder eine Reihe von Wimpern besitzt.
[S. 966]
Gattung: Pleuronema Duj. (P. chrysalis Stein Fig. 919). Eine Form mit starker undulierender Membran, welche meist mit ausgestreckten Cilien im Wasser stillsteht und sich bei Beunruhigung durch Sprünge fortbewegt. (Nach Verworn.)
Gattung: Anophrys Cohn.
Anophrys Maggii Cattaneo.
|
1888.
|
Cattaneo, in: Bull. Sc.
Pavia. Anno 10. p. 11 und Zool. Anz. Vol. 11. 1888. p. 456.
|
Diese ungenügend beschriebene Form, von welcher Bütschli vermutet, daß sie unrichtigerweise zur Gattung Anophrys gestellt sei, führen wir wegen der merkwürdigen Art ihres Parasitismus hier an.
Der Körper ist länglich-oval (35–45 µ lang, 10–12 µ breit). Am vorderen Ende sind die Cilien am längsten; das Ende ist zu einer Art Schnabel ausgezogen, unter welchem die Mundöffnung liegt. Das Hinterende ist abgerundet; der Kern liegt median, die kontraktile Vakuole im hinteren Teil.
Die Art fand sich in den Kiemenblättern von Carcinus maenas im Blute kreisend, und ernährte sich von den Blutzellen.
Wir haben offenbar hier ein Beispiel von gelegentlichem Parasitismus vor uns, wie denn öfter auf den Kiemen von Crustaceen ektoparasitisch vorkommende Infusorien bei kranken Individuen ins Blut einzudringen und dort gut fortzukommen scheinen.
Es sind mehrere Fälle von derartigem Parasitismus bei niederen und höheren Crustaceen bekannt geworden; das vereinzelte Vorkommen scheint in den meisten dieser Fälle auf gelegentlichen Parasitismus hinzudeuten, doch ist darüber noch recht wenig bekannt.
Es wäre von großem Interesse, diese Frage experimentell zu untersuchen, was jedenfalls auch keinen allzugroßen Schwierigkeiten begegnen würde.
9. Familie: Isotrichidae Bütschli.
Meist parasitische Formen. Gestalt länglich, Pellicula dick, Bewimperung total und dicht. Mund ventral stark nach hinten verlagert, oft bis zum Hinterende.
Gattungen: Conchophthirus Stein (C. anodontae Ehrbg.) im. Schleim der Mantelhöhle von Süßwassermuscheln. Ferner:
Gattung: Isotricha Stein.
Isotricha prostoma Stein.
|
1859.
|
Stein, in: Lotos. Vol. 9. Prag.
p. 57.
|
|
1888.
|
Schuberg, in: Zool. Jahrb.
Vol. 3. Syst. p. 377.
|
|
1895.
|
Eberlein, in: Zeitschr. wiss.
Zool. Vol. 59. p. 272.
|
[S. 967]
Von allen Infusorien des Rumens der Wiederkäuer ist diese Art am weitesten verbreitet.
Die Form des sehr biegsamen und elastischen, aber nicht kontraktilen Körpers ist gestreckt-eiförmig, das Vorderende abgerundet, das Hinterende zugespitzt. Der Körper ist ein wenig dorsoventral abgeplattet (Fig. 920).
Der Mund mit dem kurzen, weiten Schlund liegt am Vorderende, etwas ventral verschoben. Am Hinterende befindet sich eine Afterröhre.
Die ganze Oberfläche des gelblichen oder farblos durchscheinenden Tieres ist mit feinen Cilien bedeckt.
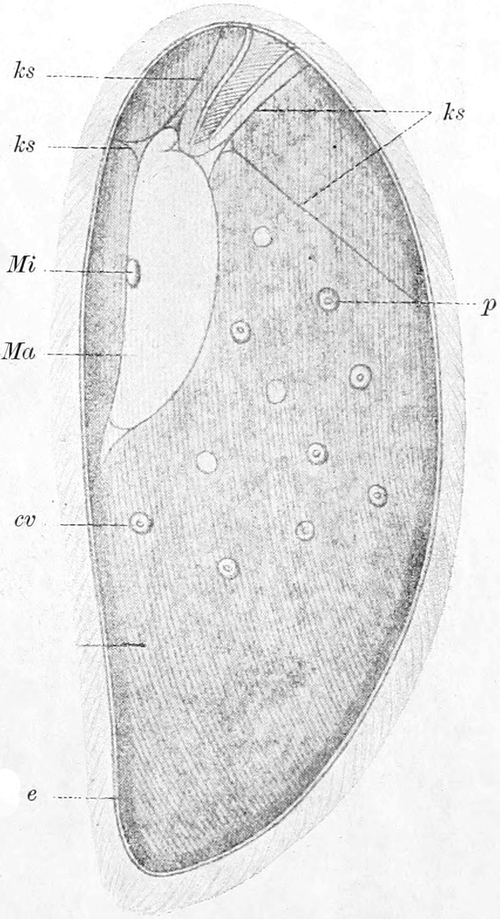
Die Körperhülle besitzt einen sehr komplizierten Bau, der noch nicht hinreichend aufgeklärt ist. Jedenfalls besteht sie aus zwei dichteren Membranen, welche eine starke quellbare Masse umschließen.
Das Entoplasma ist dicht granuliert und in steter Bewegung. Die kontraktilen Vakuolen, welche in größerer Zahl vorhanden sind, befinden sich hauptsächlich in der Körpermitte.
Der Hauptkern findet sich in einer Art von Tasche durch die sog. Kernstiele (Fig. 920 ks) an der Rückenfläche des Tieres aufgehängt; ihm liegt der ovale Nebenkern an.
Die Länge des Tieres beträgt 70–150 µ, die Breite 50–100 µ.
Die Vermehrung erfolgt durch Querteilung.
Die Bewegung ist eine sehr gewandte, wobei das Hinterende vorangeht.
Die Art bewohnt das Rumen der Rinder und anderer Wiederkäuer. (Allgemeines siehe S. 981.)
Sehr ähnlich dieser Form und ebenfalls am gleichen Ort sehr häufig ist Isotricha intestinalis Stein (s. Schuberg, a. a. O. S. 385, und Eberlein, a. a. O. S. 277).
Eine verwandte Gattung Dasytricha findet sich in der Art Dasytricha ruminantium Schuberg (a. a. O. S. 386, Eberlein, a. a. O. S. 278) ebenfalls im Rumen der Wiederkäuer.
[S. 968]
II. Unterklasse.
Spirigera
Bütschli.
II. Ordnung:
Heterotricha Stein.
Die heterotrichen Infusorien besitzen außer der spiral zum Munde führenden adoralen Zone ein aus feinen, gleichmäßigen Cilien bestehendes, den ganzen Körper überziehendes Wimperkleid. Die adorale Zone besteht aus kräftigen Cilien oder aus Cirren; am Schlund finden sich nicht selten kräftig entwickelte undulierende Membranen. Die adorale Spirale ist links gewunden.
1. Familie: Plagiotomidae Claparède und Lachmann.
Formen mit schmal-rinnenförmigem Peristom. Mund in der Mitte oder am hinteren Teil des Körpers gelegen. Adorale Zone meist ziemlich geradlinig.
Gattungen: Plagiotoma Duj., Blepharisma Perty, Spirostomum Ehrbg. Große Arten (bis 4,5 mm lang) von sehr kontraktilem Körper (vgl. Fig. 60, S. 48). Körperstreifung sehr deutlich, kontraktile Vakuole hinten mit langem Zuführungskanal. Spirostomum ambiguum Ehrenbg. In fauligem Sumpfwasser oft in großer Menge (Fig. 921).
[S. 969]
2. Familie: Bursaridae Stein.
Peristom relativ breit, meist dreieckig und mehr oder weniger tief eingesenkt. Schlund wenig ausgebildet. Adorale Zone nur am linken Peristomrand.
Gattungen: Bursaria O. F. Mueller. Große, breite Form, bis 1,5 mm lang, oval, vorn breit abgestutzt mit tiefem, taschenförmigem Peristom und großem Schlund. B. truncatella O. F. Muell. (Fig. 922).
Gattung: Nyctotherus Leidy.
Die Gattung Nyctotherus, deren Vertreter im Darm von Anuren und Arthropoden schmarotzen, ist neuerdings um zwei interessante Arten bereichert worden, welche im Darm des Menschen vorkommen. N. cordiformis Cl. kommt in Batrachiern, N. ovalis Leidy (Fig. 149, S. 149) in Blatta orientalis, N. piscicola Daday in Fischen vor.
1. Nyctotherus faba Schaudinn.
|
1899.
|
Schaudinn, in: Centralbl. f.
Bakt. etc. Vol. 25. p. 491.
|
Der Infusor ist bohnenförmig, dorsoventral etwas abgeplattet. Der linke Seitenrand ist konvex, der rechte konkav und in der [S. 970]Mitte ausgerandet. Das Vorderende ist nach rechts gebogen und an der rechten Seite sanft abgestutzt, das Hinterende ist breit abgerundet (Fig. 923).
Das Tier ist sehr klein, die Länge 26–28 µ, die Breite 16–18 µ, die Dicke 10–12 µ, während alle anderen Vertreter der Gattung 2–3mal so groß sind.
Das Peristom, am rechten Körperrand gelegen, ist schmal, spaltförmig; es reicht, etwas ventral gebogen, etwa bis zur Körpermitte. Der Schlund ist kurz, viel kürzer als bei den anderen Arten der Gattung. Der Eingang des Schlundes zeigt keine Leitborste.
Das Endoplasma enthält keine geformten Nahrungskörper. Die Wimpern, welche die Körperoberfläche bedecken, sind ziemlich kurz (3–4 µ). Die kontraktile Vakuole ist groß, am Hinterende gelegen; ihr Inhalt wird in Intervallen von 18–20 Sekunden durch die links von ihr mündende Afterröhre entleert.
Der Hauptkern liegt median, ist kuglig und hat einen Durchmesser von 6–7 µ. Die Anordnung des Chromatins in demselben ist bemerkenswert: es ist in 4–5 soliden großen Körpern an der Kernmembran angesammelt, während das dazwischen liegende Lininwerk ganz chromatinfrei ist.
Der kuglige oder längliche Nebenkern hat einen Durchmesser von 1–1½ µ; er liegt der Membran des Hauptkerns meist dicht an.
Teilung und Konjugation sind noch unbekannt. Die Dauercyste ist oval, innerhalb derselben ist der Hauptkern mit einer merkwürdigen Chromatinanordnung deutlich erkennbar.
Die Art wurde in Berlin bei einem Patienten festgestellt, welcher an Diarrhöen, abwechselnd mit Verstopfung, litt. Die Vorgeschichte des Patienten läßt die Möglichkeit zu, daß er sich im Ausland (Nordamerika) mit den Infusorien infizierte.
Eine direkte pathogene Bedeutung der im Stuhl sehr reichlich vorhandenen, mit Balantidium minutum vergesellschafteten, Infusorien ist nicht wahrscheinlich.
Unter dem Namen Nyctotherus africanus hat Castellani (in: Centralbl. Bakt. Abt. Orig. Vol. 38. 1905. p. 66) ein Infusor beschrieben, welches er in Uganda in den Faeces eines an Schlafkrankheit und Diarrhöen leidenden Eingeborenen fand. Er bildet das Infusor ab in Gestalt etwa einer Glocke mit Handgriff. Der Kern und Nebenkern sehen genau so aus wie bei N. faba. Das Infusor mißt 40–50 µ in der Länge und 35–40 µ in der Breite. Wenn Castellani nicht ganz deformierte Individuen abgebildet und beschrieben hat (etwa von N. faba Schaud.), was man fast annehmen möchte, so gehört das von ihm beobachtete Infusor sicher nicht in die Gattung Nyctotherus.
2. Nyctotherus giganteus (P. Krause).
|
1906.
|
Balantidium giganteum P.
Krause, Ueber Infusorien im Typhusstadium. In: D. Arch. klin. Med.
Vol. 86. p. 442.
|
|
1908.
|
Nyctotherus giganteus Braun,
Tierische Parasiten. 4. Aufl.
|
Die etwas ungenau beschriebene Form ist von Braun wohl mit Recht in die Gattung Nyctotherus verwiesen worden. Das Tier ist ebenfalls schwach bohnenförmig, hinten verdickt. Das Vorderende ist verschmälert. Der Hinterrand ist abgestutzt. Das Peristom liegt, wie [S. 971]aus Abbildung und Bemerkungen im Text hervorgeht, seitlich. Der Makronucleus ist bohnenförmig, der Mikronucleus ist klein. Es sind 2 kontraktile Vakuolen vorhanden. Die Cytopyge liegt am Hinterende (Fig. 924 A). Das Tier mißt in der Länge 90–400 µ, in der Breite 60–150 µ.
N. giganteus wurde in Breslau bei einem Typhusfall, bei welchem gleichzeitig Trichomonas intestinalis vorkam, entdeckt und verschwand mit dem Aufhören der Diarrhöe. Wesentlich für das Vorkommen ist die alkalische Reaktion des Darminhalts, ferner dessen Dünnflüssigkeit. In Faeces, welche durch das Ueberwuchern von Bacillus faecalis alcaligenes alkalisch erhalten werden, konnte P. Krause im Brutschrank bei 57° C die Art wochenlang am Leben erhalten. Auch in Kulturen dieses Bakteriums gelang die Züchtung.
Außerhalb des Körpers, bei Abkühlung tritt sehr leicht Encystierung ein.
Durch ihre Größe ist die Art leicht von N. faba zu unterscheiden.
Gattung: Balantidium Claparède u. Lachmann em. Stein.
Von den Arten dieser Gattung schmarotzen die meisten im Darm von Amphibien, Würmern und eine Art im Schwein. Zwei Arten sind jedoch auch im Menschen nachgewiesen worden.
Die Körpergestalt derselben ist meist oval oder ellipsoid, das Vorderende etwas abgestutzt, alle Arten sind etwas metabol; das Peristom ist spaltförmig, im Grunde desselben befindet sich die Mundöffnung mit kurzem Oesophagus, das Peristom führt meist schnappende Bewegungen aus; der After ist terminal gelegen.
Der Körper ist mit kurzen gleichmäßigen Cilien bedeckt und bei mehreren Arten deutlich und regulär längsgestreift.
Der Hauptkern ist kuglig bis nierenförmig, der Nebenkern bläschenförmig. Die Zahl der kontraktilen Vakuolen ist verschieden.
Ich füge eine Tabelle nach Schaudinn hier an, nach welcher sich die einzelnen Arten leicht unterscheiden lassen. Genauer betrachten wir nur die zwei beim Menschen gefundenen Arten.
[S. 972]
1. Balantidium coli (Malmsten).
|
1857.
|
Paramaecium coli Malmsten,
in: Virchows Archiv. Vol. 12. p. 302.
|
|
1867.
|
Balantidium coli Stein,
Organismus der Infusorien. Abt. II. p. 320.
|
|
1879/86 Leuckart, Parasiten
des Menschen. 2. Aufl. Vol. 1.
|
|
|
1908.
|
Glaessner, Ueber
Balantidienenteritis, in: Centralbl. Bakt. Orig. Vol. 47. p. 351.
|
Der Körper ist kurz eiförmig, vorn kaum abgestutzt und mit einem sehr kurzen Peristom versehen; das letztere ist am Vorderende etwas nach rechts gelegen, ist trichterförmig und setzt sich in einen kurzen Schlund fort (Fig. 925 A).
Ekto- und Entoplasma sind deutlich unterscheidbar. Der Körper ist vom Peristom zum Hinterende mit parallelen Streifen bedeckt.
Das Tier mißt 70–100 µ (nach Janowski auch bis 200 µ) in der Länge, 50–70 µ in der Breite.
Der Hauptkern ist bohnen- oder nierenförmig, dicht neben ihm liegt der Nebenkern.
Es sind 2 kontraktile Vakuolen vorhanden, welche auf der rechten Seite liegen. Der After ist nicht persistierend.
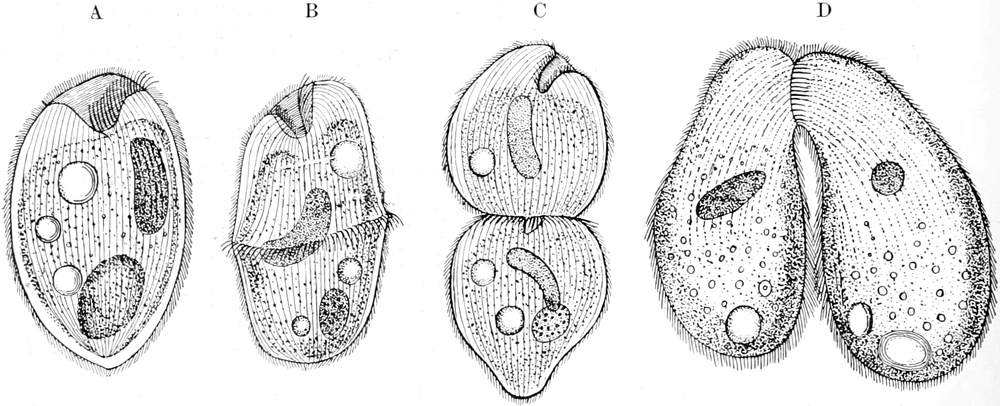
Im Plasma finden sich Tröpfchen von Fett und Schleim. Auch sind rote und weiße Blutkörperchen des Wirts dort beobachtet worden.
Die Vermehrung geht durch einfache Zweiteilung im freien Zustand vor sich (Fig. 925 B u. C).
Konjugationszustände sind auch beobachtet worden (Fig. 925 D), bieten aber nichts besonders Bemerkenswertes.
Die Dauercysten sind kuglig und mit einer festen Membran umgeben. In solchen gibt Brumpt ebenfalls Konjugationsvorgänge an. Er fand gemeinsame Encystierung zweier Individuen.
Wie Leuckart zuerst feststellte, kommt Balantidium coli außer im Menschen auch im Schwein vor. Das letztere scheint der normale Wirt des Infusors zu sein; es kommt im Colon, Blinddarm und Rectum vor, und zwar wird es da sehr regelmäßig und meist in großer Menge gefunden. So wenigstens in Deutschland, Frankreich, Italien, Schweden, Rußland usw.
[S. 973]
Dem Schwein aber schaden die Balantidien in keiner Weise, die Faeces sind beim Vorhandensein des Infusors in keiner Weise verändert.
Mit dem Kot der behafteten Schweine gehen zahlreiche Dauercysten ab, und man nimmt an, daß diese die Infektion neuer Schweine vermitteln, zumal die Schweine ja Koprophagen sind. Experimentell ist allerdings die Infektion bis jetzt nicht gelungen.
Da beim Menschen Balantidium coli nur bei pathologischen Zuständen, bei Diarrhöen und Darmkrankheiten gefunden wurde, nimmt man an, daß der Mensch sich nur gelegentlich durch Cysten mit dem Parasiten des Schweines infiziert, und zwar nur dann, wenn krankhafte Zustände seines Darms die Infektion begünstigen. In manchen Fällen bleibt die Einwirkung relativ harmlos und auf das Lumen des Darms beschränkt. In anderen vermögen aber die Balantidien nach Solowjew, Strong und Musgrave, Askanazy, Klimenko tief in die Darmwand vorzudringen und erzeugen dann bis in die Subserosa reichende Geschwüre. Es scheint demnach, daß wir hier mit Verhältnissen zu tun haben, welche an die Infektion mit Entamoeba coli erinnern (vgl. S. 574). Es scheint auch zur Ausbildung verschieden virulenter Rassen zu kommen.
Aehnlich wie Entamoeba coli ist auch Balantidium in der Lunge des Menschen gefunden worden.
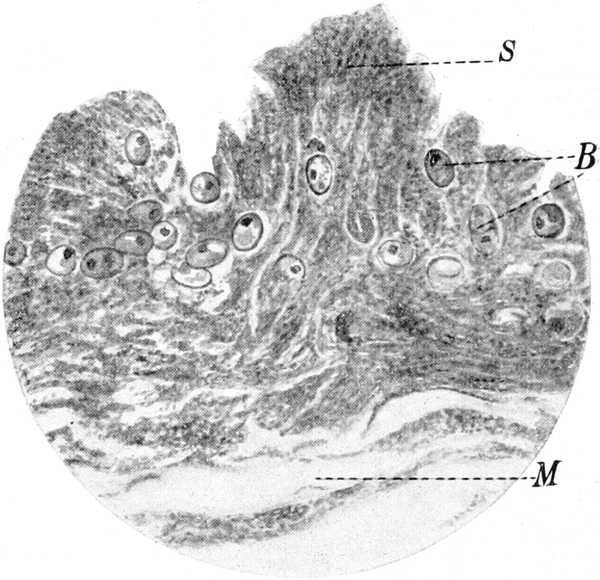
Da das Balantidium des Schweines immer etwas größer ist, als dasjenige des Menschen, welches nur 60 bis 70 µ in der Länge mißt, und die Infektion des Menschen durch Cysten des Parasiten aus dem Schwein nicht gelang, so vermuteten Grassi und Calandruccio, daß es sich um zwei verschiedene Arten handle. Doch ist dies bei dem gegenwärtigen Stand unserer Kenntnisse nicht mit Sicherheit zu entscheiden.
Noc (C. R. Soc. Biol. Vol. 64. 1908. p. 870) fand Dysenterie, verursacht durch Balantidium coli, bei einem Macacus cynomolgus. Harlow Brooks (Proc. N. Y. Path. Soc. Vol. 3. 1903. p. 28) hat bei den Orang Utans des zoologischen Gartens in New York eine ebenfalls durch B. coli erzeugte Dysenterieepidemie beobachtet, bei welcher einige tödliche Fälle vorkamen. Nach Brumpt ist Balantidium von Macacus cynomolgus aufs Schwein übertragbar und umgekehrt.
2. Balantidium minutum Schaudinn.
|
1899.
|
Schaudinn, in: Centralbl.
Bakt. Parasitenk. Vol. 25. p. 488.
|
Balantidium minutum ist kurz-birnförmig oder oval, im Querschnitt drehrund.
[S. 974]
Die Länge des Körpers beträgt 20–32 µ, die Breite 14–20 µ, das Verhältnis also 3 : 2.
Das vordere Ende des Körpers ist leicht zugespitzt, das hintere breit und abgerundet (Fig. 927). Das Peristom ist spaltförmig, vorn etwas breiter, hinten spitz zulaufend. Die Peristomrinne erstreckt sich nach rückwärts bis über die Mitte des Tieres hinaus. Der linke Rand des Peristoms ist in einen dreieckigen Lappen, ein Hypostom, erweitert.
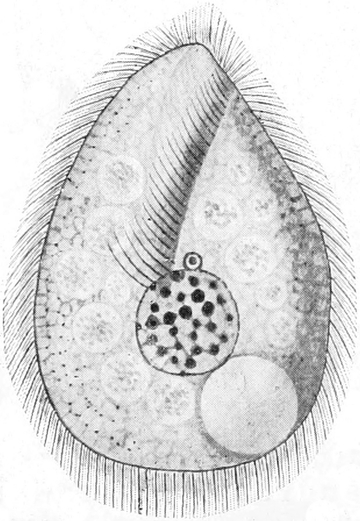
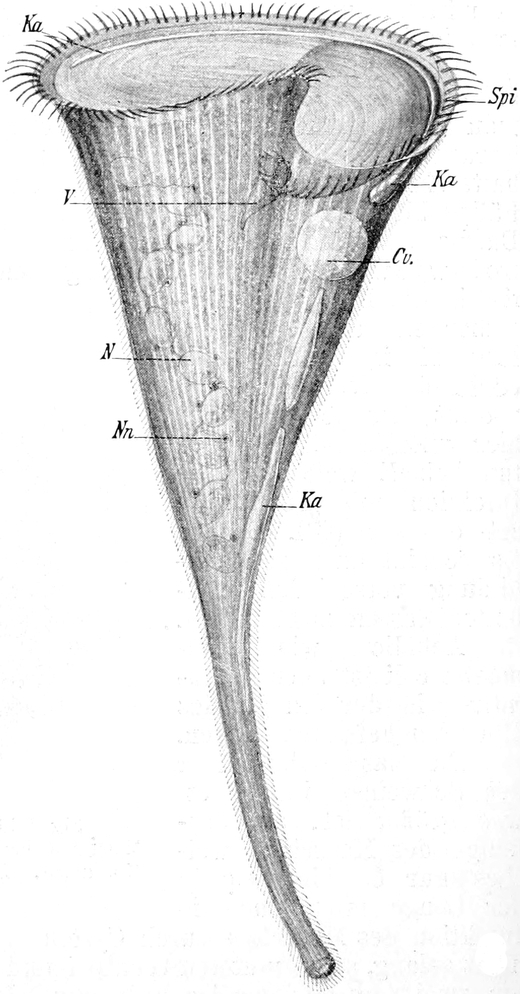
Die sehr dünnen Körperwimpern sind sehr lang (bis 7–8 µ), eine Anordnung in Reihen ist nicht bemerkbar. Die adoralen Wimpern sind bedeutend länger und stärker als die Körpercilien und finden sich nur auf dem linken Peristomrand, auf dem rechten sieht man nur die gewöhnlichen Körpercilien.
Das Ektoplasma ist hyalin, das Entoplasma granuliert und vakuolisiert. Größere Nahrungskörper finden sich jedoch nicht.
Die Afteröffnung liegt am Hinterende, ist aber nicht persistierend.
Es ist nur eine, dorsal auf der linken Seite gelegene, kontraktile Vakuole vorhanden.
[S. 975]
Der Hauptkern ist median gelegen, kuglig. Das Linin in demselben ist netzig angeordnet, in den Knotenpunkten finden sich Chromatinbrocken. Er hat einen Durchmesser von 6–7 µ, der Nebenkern ist sehr klein, Durchmesser nur 1 µ, und liegt dem Hauptkern dicht an.
Die Teilung geht genau wie bei den anderen Balantidien vor sich. Die Konjugation ist noch unbekannt.
Die Dauercysten sind oval.
Diese Art wurde beim Menschen, bisher zweimal in Berlin, gefunden; das eine Mal mit Nyctotherus faba vergesellschaftet.
Aus dem Vorkommen im Stuhl bei Diarrhöen und nach Abführmitteln schließt man auf das Vorkommen der Art im Dünndarm oder gar Duodenum.
3. Familie: Stentoridae Stein.
Körper beutelförmig, oft trichterförmig. Adorale Spirale mächtig entwickelt, Peristom kurz, am Vorderende, Schlund röhrenförmig.
Gattung: Stentor Oken.
Körper ausgesprochen trichterförmig, mit dem stielartig verschmälerten Hinterende meist festsitzend. Das Peristom kurz, breit, das ganze Vorderende einnehmend. Adorale Spirale mehr als einen ganzen Umfang beschreibend. Im festsitzenden Zustande bilden die Tiere manchmal eine Gallerthülle.
Im Süßwasser finden sich 7–8 Arten dieser Gattung, welche ½–1 mm lang werden:
St. polymorphus Ehrenbg. (= St. viridis aut.). Oft mit Zoochlorellen infiziert. St. coeruleus Ehrenbg. mit bläulichem Pigment (Fig. 928; Fig. 8, S. 19; Fig. 49, S. 40; Fig. 125, S. 117; Fig. 229 bis 231, S. 231 u. 232). Beides Arten mit rosenkranzförmigem Kern, Stentor Roeseli dagegen (Fig. 232, S. 233) hat einen ungegliederten wurstförmigen Kern.
Gattung: Folliculina Lamarck.
F. ampulla O. F. M., eine marine Form mit außerordentlich erweiterungsfähigem Peristomtrichter, bildet Gehäuse durch pseudochitinige Substanz (Fig. 266, S. 281).
4. Familie: Gyrocoridae Stein.
Körper glockenförmig, Bewimperung zu den Oligotrichen überleitend.
Gattung: Gyrocoris Stein (Gyrocoris oxyura St. = Caenomorpha medusula Perty).
5. Familie: Ctenostomidae Lauterborn.
Gewisse Verwandtschaftsbeziehungen zu den Gyrocoriden (aber auch zu den Microthoracidae, S. 964) zeigen einige eigenartige, sapropelisch (vgl. S. 289) lebende Gattungen von Infusorien, welche Lauterborn in dieser Familie zusammenfaßt. Körper seitlich komprimiert, [S. 976]asymmetrisch, meist mit stachelförmigen Fortsätzen. Bewimperung reduziert.
Gattungen: Discomorpha Lev. (Fig. 929), Saprodinium Laut.
III.
Ordnung:
Oligotricha Bütschli.
Die Oligotrichen besitzen eine linksgewundene adorale Spirale, welche derjenigen der Heterotrichen sehr ähnlich und meist fast oder ganz kreisförmig geschlossen ist. Von den letzteren unterscheiden sie sich jedoch durch den Mangel der allgemeinen Körperbewimperung, welche meist bedeutend zurückgebildet ist. Die Oligotrichen sind kleine Formen von kugliger, beutel- oder kegelförmiger Gestalt.
1. Familie: Lieberkühnidae Bütschli.
2. Familie: Halteriidae Claparède und Lachmann.
Kleine Formen mit rascher, vielfach hüpfender Bewegung von kugliger oder kegelförmiger Gestalt, mit unbewimpertem, vorgewölbtem Peristomfeld, geringer Körperbewimperung und öfter mit langen starren Borsten. Schlund kaum entwickelt.
Gattung: Halteria Duj. (Halteria grandinella [O. F. M.]).
3. Familie: Tintinnidae Claparède und Lachmann.
Kleine pelagisch lebende Formen mit Gehäusebildung, meist ausgesprochen kegelförmig mit stielartig verlängertem, kontraktilem Hinterrande. Adorale Zone meist vollkommen kreisförmig geschlossen. Der Rumpf mit vier spiralig vom Peristomsaum nach hinten verlaufenden Cilienreihen. Typische Konjugation beobachtet, daher sind die Angaben über „Schwärmsporenbildung“ (Mikro- und Makrogameten) mit Zweifel aufzunehmen und wahrscheinlich auf Parasitismus zurückzuführen.
Gattungen: Tintinnus Schranck em. Fol. Mit (pseudo-?)chitinöser Gehäusewandung ohne auffällige Struktur und Fremdkörpereinlagerung. Marin.
Tintinnidium Sav. Kent. mit Gallerthülle (T. fluviatile St. im Süßwasser, in größeren Wasserbecken).
[S. 977]
Codonella Haeckel mit Fremdkörpergehäusen in Meer- und Süßwasser.
Cyttarocyclis Fol, Dictyocysta Ehrbg.
4. Familie: Ophryoscolecidae Stein.
In den Eingeweiden von Huftieren vorkommende Formen von oft bizarrer Gestalt. Starr, mit dicker Pellicula und retraktilem Peristom. Adorale Zone nahezu kreisförmig geschlossen, tief in die Peristomhöhle reichend. Hinterende vielfach mit eigenartigen Fortsätzen.
Gattung: Entodinium Stein.
Entodinium caudatum Stein.
|
1859.
|
Stein, in: Abhandl. Kgl.
böhm. Gesellsch. Vol. 10. p. 35–38.
|
|
1859.
|
— in: Lotos, Zeitschr. f. Naturwissensch. Vol. 9. Prag.
p. 2–5 u. 57–60.
|
|
1888.
|
Schuberg, in: Zool. Jahrb.
Abt. Syst. Vol. 3. p. 409.
|
|
1895.
|
Eberlein, in: Zeitschr. f.
wiss. Zool. Vol. 59. p. 268.
|
Die parasitischen Infusorien der Familie der Ophryoscolecina, zu welcher Entodinium gehört, haben einen fast nackten Körper und eine meist stark ausgebildete adorale Wimperspirale; dieselbe ist nahezu kreisförmig geschlossen. Das Peristom ist retraktil. Das Peristomfeld wird von einem ziemlich hohen Saum umzogen, welcher durch besondere Vorrichtungen geeignet ist, bei der Retraktion des Peristoms über dasselbe zusammengezogen zu werden.
Bei Entodinium beschränken sich die Bewegungsorganellen auf die adorale Zone, am Körper fehlt eine Membranellenzone.
Entodinium caudatum ist vor allem durch seine charakteristische Gestalt ausgezeichnet. Es ist oval, nach hinten etwas verjüngt, [S. 978]und das Hinterende ist in drei stachelartige Fortsätze ausgezogen, von denen der eine die beiden anderen an Länge bedeutend übertrifft (Fig. 931).
Der lange Schwanzfortsatz besitzt eine gewisse Beweglichkeit und soll, nach Eberlein, als Steuer dienen. Ihm zur Seite befindet sich eine scharf ausgeprägte Vertiefung.
Die Körperoberfläche ist glatt, nicht gestreift.
Ekto- und Entoplasma sind deutlich unterschieden, außerdem zwischen ihnen eine Grenzzone. Das Entoplasma wird von lebhaften Strömungen bewegt.
Vom Peristom aus senkt sich ein weiter, trichterförmiger Schlund in das Innere des Tieres (Fig. 931 schl). Die kontraktile Vakuole liegt nahe dem Vorderende (Fig. 931 cv), der Kern ist bohnenförmig, ihm liegt der Nebenkern dicht an. Die Länge des Tieres beträgt ohne Schwanzfortsatz 90–120 µ, die Breite 60–70 µ.
Die Fortpflanzung erfolgt durch Querteilung. Konjugation ist bisher noch nicht festgestellt worden.
Das Tier nährt sich von Pflanzenfasern, von denen Stücke und Reste sich in seinem Entoplasma finden. — Es bewegt sich schnell und elegant, wobei ihm der große Schwanzfortsatz, wie erwähnt, als Steuer dient.
Die Art kommt im Magen der Wiederkäuer vor (vgl. S. 981).
Nahe verwandt sind die Arten Entodinium bursa Stein, E. dentatum Stein, E. rostratum Fiorentini, E. minimum Schuberg (s. Eberlein, a. a. O. S. 264 ff.).
Die nahestehende Gattung Diplodinium Schuberg, mit einer ganzen Reihe von Arten, ist durch den Besitz eines zweiten Membranellenkranzes hinter der adoralen Spirale ausgezeichnet. Sie leitet über zur nächsten
Gattung: Ophryoscolex Stein.
Diese Gattung enthält ziemlich große Formen von länglich-ovaler Form, welche etwas abgeplattet sind. Das Hinterteil des Körpers ist in einen Fortsatz ausgezogen, welcher meist von drei Wirteln von spitzen Lappen umgeben ist, welche wiederum dreizähnig sein können.
Außer der adoralen Zone ist ein zweiter Gürtel von Membranellen vorhanden, welcher in einigem Abstand hinter der adoralen Zone liegt und etwa ⅘ des Körpers umgreift.
Es sind zwei oder mehr kontraktile Vakuolen vorhanden.
Ein länglicher Hauptkern erstreckt sich einer Seite des Tieres entlang, neben ihm liegt ein Nebenkern.
Ophryoscolex caudatus Eberlein.
|
1895.
|
Eberlein, in: Zeitschr. f.
wiss. Zool. Vol. 59. p. 247.
|
Diese Art besitzt eine länglich-eiförmige Gestalt, das Hinterende ist in einen langen Fortsatz ausgezogen, vor demselben wird der Körper von drei Reihen von Stacheln umzogen (Fig. 932 A). Der Körper ist starr und formbeständig; er ist von einem festen Panzer umhüllt, dessen Härte durch die Einlagerung von Kieselsäureanhydrid bedingt ist.
Ekto- und Entoplasma sind durch eine Zwischenschicht getrennt.
[S. 979]
Der Hauptkern ist groß, wurstförmig, der Nebenkern liegt dicht neben ihm (Fig. 932 A 6 u. 7). Im mittleren Teil des Körpers liegen mehrere kontraktile Vakuolen.
Die Länge des Tieres beträgt 200–230 µ, die Breite 30–90 µ. Das Tier bewegt sich rasch unter gleichzeitiger Rotation.
Es kommt am häufigsten im Pansen des Schafes vor (vgl. S. 981).
Fast nur durch den Bau des Hinterendes unterscheiden sich einige andere Arten der Gattung: Ophryoscolex inermis Stein, O. Purkinjei Stein (Fig. 932 B) (vgl. Eberlein, a. a. O.).
Gattung: Cycloposthium Bundle.
Cycloposthium bipalmatum (Fiorentini).
|
1890.
|
Entodinium bipalmatum Fiorentini,
in: Intorno ai Protisti dell’intestino degli equini. Pavia.
|
|
[S. 980]
1895.
|
Cycloposthium bipalmatum Bundle,
in: Zeitschr. f. wiss. Zoologie. Vol. 60. p. 288.
|
Dies Infusor ist von langgestreckter Gestalt, etwas dorsoventral abgeplattet, manchmal fast dreikantig. Die eine Kante wird von einer Leiste gebildet (Fig. 933). Die Leiste verläuft nach hinten in einen Spalt, welcher von zwei verschieden langen, dünnen Platten der Körpersubstanz gebildet wird.
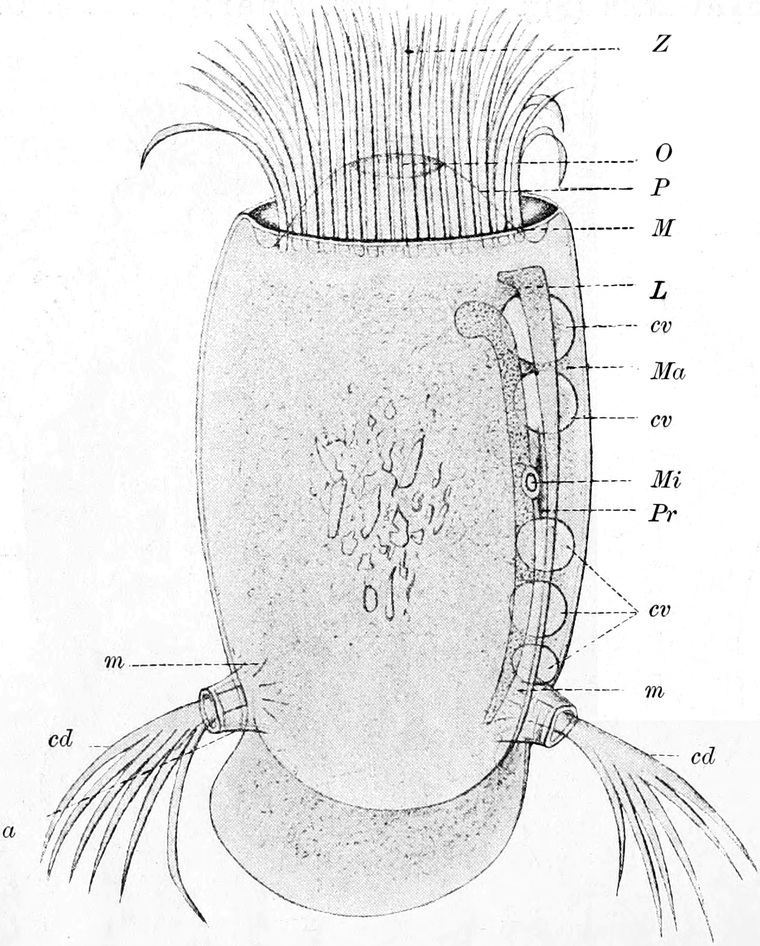
Der Körper ist sehr formbeständig und von einer starren Hülle umgeben. Der Körper ist von Cilien frei, mit Ausnahme der adoralen Zone und zweier Stellen am Hinterende.
Das Peristom ist kreisförmig; es ist rückziehbar. Die Zone, welche es umgibt, besteht aus 24 Cilien (wohl richtiger Membranellen). Die Peristomscheibe erhebt sich bei ausgestülptem Peristom in Form eines stumpfen Kegels. Der Schlund ist kurz und breit.
Außerdem befindet sich am Hinterende des Tieres auf jeder Seite ein eigentümliches Bewegungsorgan. Es sind die sog. Caudalia (Fig. 933 cd). Sie bestehen aus einem röhrenförmigen Stück, aus dem [S. 981]das eigentliche Bewegungsorgan in Form eines Büschels von schlanken Membranellen hervorragt.
Ekto- und Entoplasma sind durch eine Grenzschicht getrennt.
Der langgestreckte Hauptkern ist hakenförmig und beherbergt in einem Ausschnitt, der ungefähr in der Mitte seiner Länge liegt, den kleinen Nebenkern.
Die kontraktilen Vakuolen, in der Zahl von 6 vorhanden, liegen neben dem Hauptkern in einer Längsreihe.
Die Länge des Tieres beträgt 80–190 µ, die Breite 30–85 µ.
Querteilung des Tieres ist bekannt, Konjugation nicht.
Die Bewegung von Cycloposthium ist eine mäßig schnelle; die Caudalia sollen bei derselben die Hauptrolle spielen.
Die Art kommt mit einer ganzen Anzahl von Verwandten und anderen Formen im Coecum des Pferdes vor.
Cycloposthium nährt sich von Pflanzenteilen, in seinem Körper findet sich Paraglykogen.
Man vergleiche auch die folgenden allgemeinen Bemerkungen.
Lebensverhältnisse der im Wiederkäuermagen und Equidendarm vorkommenden parasitischen Infusorien.
In dem Pansen und Netzmagen der Wiederkäuer kommen eine Anzahl von Infusorienarten vor, von denen wir einige der charakteristischsten Formen im vorhergehenden angeführt haben (S. 961, 966, 977, 978 und 979). Dieselben finden sich also in denjenigen Teilen des Darmtraktus ihrer Wirte, in denen die Celluloseverdauung eingeleitet wird, in denen das pflanzliche Futter derselben eine Art von Gärungsprozeß durchmacht. Bei den Pferden finden sie in dem Blinddarm ähnliche Verhältnisse.
Sie sind ganz allgemein verbreitet, und zwar bevölkern sie den Darm in ungeheuren Mengen. Wenn auch die früheren Berechnungen, daß die Infusorien ⅕ des Gesamtinhalts der betreffenden Darmabteilungen ausmachen sollten, sich als unrichtig herausgestellt haben, so ist ihre Quantität immerhin doch eine sehr erhebliche.
Bei den Wiederkäuern kann man sie sogar in jeder Portion Nahrung, welche wiedergekäut wird, in Mengen antreffen.
Im Omasus und Abomasus der Wiederkäuer und in den hinteren Darmabteilungen des Pferdes trifft man die betreffenden Arten ebenfalls an, aber dann stets in abgestorbenem Zustande.
Sie ernähren sich, wie die Untersuchung ihres Körpers ohne weiteres lehrt, meist von den pflanzlichen Partikeln, welche sich im Darm finden; doch fressen sie auch Bakterien und eventuell sich untereinander.
Es läge also am nächsten, sie als gewöhnliche Kommensalen zu betrachten, wenn nicht einige Gründe schon in früher Zeit zu einer anderen Auslegung ihres physiologischen Verhältnisses zu ihren Wirten verleitet hätten. Es war dies 1) ihre ungeheure Anzahl, welche den Anlaß zu einer falschen Berechnung ihrer Masse gab, 2) der Umstand, daß sie trotz so großer Mengen ihren Wirten nicht das geringste Unbehagen zu verursachen scheinen, 3) der Umstand, daß sie in den hinteren Darmregionen in abgestorbenem Zustand gefunden werden, 4) daß sie fast ausschließlich aus Fibrin und Albumin bestehen und Paraglykogen enthalten usw.
[S. 982]
So kam man dazu, zu vermuten, daß sie zu ihren Wirten in einem Verhältnis der Symbiose stünden. Man dachte sie entweder als Eiweißquellen oder als Gehilfen bei der Celluloseverdauung wirksam.
Es ist gewiß zuzugeben, daß sie ihren Wirten in dieser Weise einigen Nutzen bringen können; derselbe ist aber minimal und wohl nur ein zufälliger. Jedenfalls ist es am wahrscheinlichsten, daß sie nur gewöhnliche Kommensalen sind. Doch kann man die sehr schwierigen Forschungen über diesen Gegenstand noch nicht als abgeschlossen betrachten.
Rätselhaft ist bis jetzt noch die Art der Infektion. Die angestellten Versuche ergaben, daß die Infusorien aus dem Futter — Grünfutter, Heu oder sonstige Pflanzennahrung — stammen müssen. Bei Milchfütterung treten sie nicht auf, wie sie denn auch bei noch saugenden jungen Tieren fehlen. Wahrscheinlich geschieht die Infektion durch Cysten; dieselben sind aber noch unbekannt. Jedenfalls sind die Dauerformen sehr widerstandsfähig, da man das Futter sehr lange kochen muß, um die Infektion auszuschließen.
Bei Equiden und Wiederkäuern kommen ganz verschiedene Gattungen und Arten vor; doch scheinen unseren einheimischen Wiederkäuern sämtliche Arten gemeinsam zu sein, auch findet man die nämlichen Formen in den bei uns in den zoologischen Gärten gezüchteten ausländischen Wiederkäuern. Es wäre von Interesse, in überseeischen Ländern die Huftiere auf ähnliche Infusorien zu untersuchen.
Bisher wurden sie nur in Mitteleuropa, da aber ganz regelmäßig und in allgemeinster Verbreitung gefunden.
Die bizarren Formen zahlreicher der Arten erheischen ein besonderes Interesse, wenn wir sie mit den Trichonymphiden, den unter ähnlichen Verhältnissen bei niederen Insekten vorkommenden Flagellaten vergleichen (s. S. 534).
IV.
Ordnung:
Hypotricha Stein.
Die Hypotrichen zeigen unter den Infusorien die am meisten einseitig differenzierten Bewimperungstypen. Zu ihnen gehören fast ausschließlich stark abgeplattete Formen, welche fast nur an der Bauchseite bewimpert sind. Sie sind von den erwähnten ähnlich gebauten Formen der Holotrichen vor allem durch den Besitz der linksgewundenen adoralen Spirale, welche aus kräftigen Membranellen besteht, unterschieden. Der Mundapparat mit seinen undulierenden Membranen und die Peristombewimperung zeigen meist recht komplizierten Bau und Anordnung. Das meist dreieckige Peristomfeld liegt ganz oder fast ganz in einer Ebene mit der Bauchseite.
Zum Unterschied von den abgeflachten Formen unter den Holotrichen kommt bei den Hypotrichen nur selten eine gleichmäßige, aus Reihen kurzer Cilien bestehende Bauchbewimperung vor. Meist finden sich sehr charakteristische Gruppen von langen, kräftigen Cirren (Bezeichnung vgl. Fig. 934 u. 936), welche die Arten zum Forthebeln auf der Unterlage und zu Sprüngen befähigen. Sehr große Cirren mit rundem oder elliptischem Querschnitt werden als Griffel bezeichnet.
[S. 983]
Auf der Rückenseite finden sich keine der Fortbewegung dienende Wimpergebilde, sondern lange, dünne Tastborsten, welche mit großen Abständen in Reihen angeordnet sind.
1. Familie: Peritromidae Stein.
Marine Formen mit primitiven Merkmalen, indem das Peristom vom Stirnfeld undeutlich abgegrenzt und die Bauchseite mit gleichmäßigen feinen Wimpern bedeckt ist; Cirren fehlen noch.
Gattung: Peritromus Stein (P. Emmae Stein).
2. Familie: Oxytrichidae Ehrenberg.
Formen mit deutlich abgegrenztem Stirnfeld. Cirren wohlausgebildet, doch in sehr wechselnder Form, Größe, Zahl und Anordnung, welche jeweils für Gattungen und Arten charakteristische Merkmale abgeben. Kontraktile Vakuole und Makronucleus linksseitig.
Formenreiche Familie, deren Gattungen in der Regel in 3 Unterfamilien gruppiert werden.
Gattungen: Urostyla Ehrenberg (U. grandis Ehrbg.).
Gattung: Kerona Ehrbg.
Kerona pediculus (O. F. Müller).
Vgl. auch Bütschli, Protozoa, in: Bronn, Klassen und Ordnungen des Tierreichs. Vol. 1. 1887–89. p. 1742.
Diese einzige „parasitische“ Hypotrichenform ist ein Ektokommensale, welcher auf Hydren vorkommt. Sie ist in keiner Weise an den Parasitismus erheblich angepaßt.
Onychodromus Stein (O. grandis Stein).
Gastrostyla Engelmann (G. Steinii Engelm.).
Oxytricha Ehrbg. (O. fallax Stein).
Gattung: Stylonychia Stein.
Häufige Formen, als charakteristische Typen der Ordnung oft beschrieben. Länglich-oval mit einem dreieckigen Peristom, welches das Vorderteil des Körpers zur Hälfte einnimmt. 8 Stirncirren, 5 Bauchcirren, 5 Aftercirren und in der Regel 3 ansehnliche Schwanzborsten sind vorhanden.
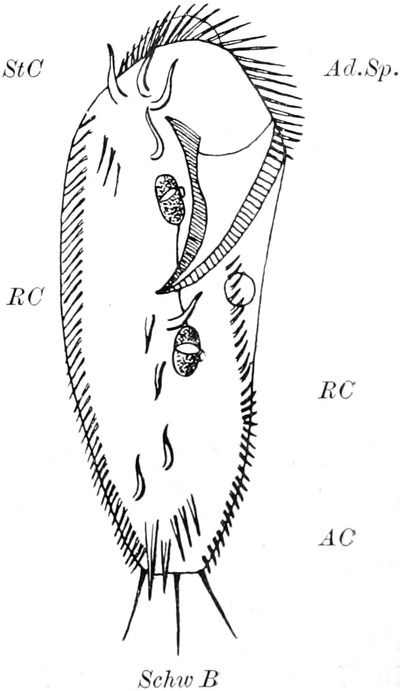
[S. 984]
St. mytilus Ehrbg., Länge 100–300 µ (Fig. 934 und 935), St. histrio Ehrbg., St. pustulata Ehrbg., beide letzteren nur 100–150 µ lang.
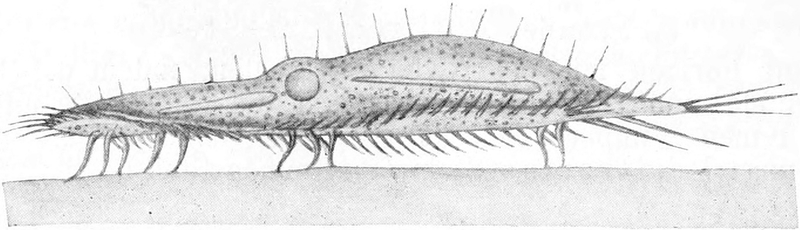
3. Familie: Euplotidae Ehrenberg.
Formen mit sehr reduzierter Bewimperung, Randreihen sehr zurückgebildet oder fehlend, stets mehrere Aftercirren. Kontraktile Vakuole an der rechten Seite des Körpers, Makronucleus linksseitig.
Gattungen: Euplotes Stein (E. Charon Ehrbg., E. patella Ehrbg., E. harpa, Fig. 936 u. Fig. 54, S. 45; Fig. 136. S. 135), Süßwasser.
Uronychia Stein. Marin.
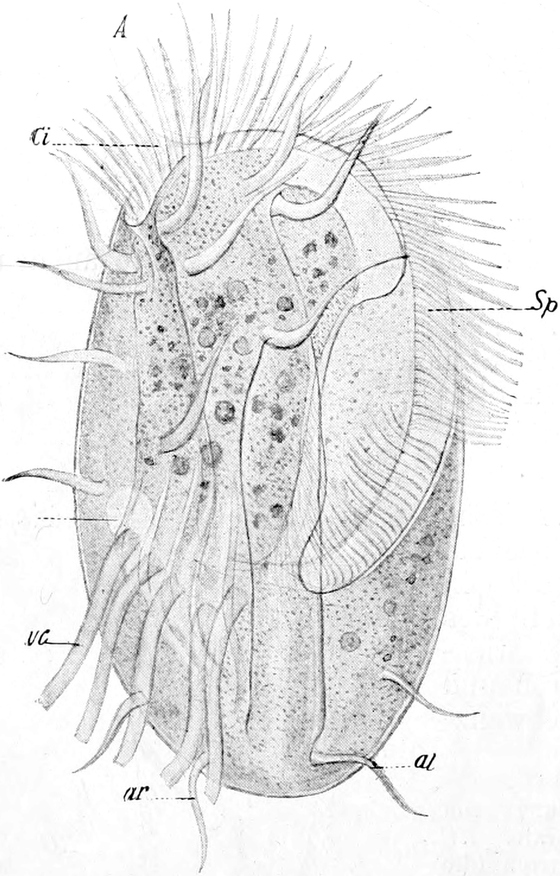
4. Familie: Aspidiscidae Stein.
Klein mit vollständig fehlenden Randcirren, sehr schmalem Peristom und sehr verkürzter adoraler Zone.
Gattung: Aspidisca Ehrbg.
V.
Ordnung:
Peritricha Stein.
Die Peritrichen besitzen eine rechtsgewundene adorale Spirale. Außer ihr findet sich am Körper höchstens ein am hinteren Ende des Körpers denselben umziehender Wimperring. Ein solcher kommt nur bei den wenigen freilebenden Formen der Gruppe vor, während die festgewachsenen Formen ihn nur zeitweilig bilden, wenn sie sich loslösen und vorübergehend frei schwimmen (vgl. S. 234).
[S. 985]
Die adorale Spirale, aus zwei Reihen von Cilien bestehend, umgibt die sogenannte Peristomscheibe, welche von einer wulstartigen Verdickung des Körperrandes umgeben wird, dem Peristomrand, welcher sich über sie zusammenschlagen kann. Die adorale Spirale verläuft schief in die Tiefe des Körpers hinab, auf den Grund einer trichterförmigen Einsenkung, des Vestibulums. Dabei setzt sich die äußere Cilienreihe in eine undulierende Membran fort, deren Rand, aus dem Vestibulum hervorragend, wie eine Borste aussieht. In das Vestibulum münden After und Reservoir der kontraktilen Vakuole (vgl. S. 64 u. Fig. 81); am Grund des Vestibulums öffnet sich die Mundöffnung in den oft langen Schlund.
In dieser Ordnung enthält die Familie der Vorticellidae in ihren beiden Unterfamilien, den Urceolarinae und den Vorticellinae, einige Parasiten. Dieselben sind fast ausschließlich Ektokommensalen; einzelne Formen gehen jedoch unter Umständen zum Entokommensalismus über und können auch auf ihre Wirte eine pathogene Wirkung ausüben.
1. Familie: Spirochonidae Stein.
Eigenartige Formen mit offenbar durch den Ektokommensalismus abgeänderter Organisation. Körper nicht kontraktil, am Vorderende mit eigenartig gefaltetem Membrantrichter versehen, welcher an der Innenseite mit einer Zone zarter Wimpern besetzt ist. Fortpflanzung durch Knospung.
Gattungen: Spirochona Stein: Sp. gemmipara Stein mit spiral aufgerolltem Membrantrichter, auf den Kiemenplatten von Gammarus pulex (Fig. 938, vgl. auch Fig. 144, S. 145 u. Fig. 221, S. 218). Kentrochona Keuten mit eigenartigen Fortsätzen des Membrantrichters, Kentrochonopsis Doflein mit multipler Knospung, beide letzteren auf den Kiemenplatten von Nebalia Geoffroyi.
[S. 986]
2. Familie: Licnophoridae Bütschli.
Eigenartige Formen mit stielartigem Hinterende und Saugscheibe an demselben, am Vorderende eine wohlausgebildete adorale Spirale. Saugscheibe mit glattem Haftring und hinterem Cilienkranz.
Gattung: Licnophora Claparède, marine, ektokommensale Formen auf Medusen, Mollusken, Würmern, Echinodermen. Entokommensal in der Wasserlunge von Holothurien.
Wichtig als morphologische Uebergangsform zu Vorticelliden.
3. Familie: Vorticellidae Ehrenberg.
Meist festsitzende oder auf einer Unterlage kriechende Formen, vielfach koloniebildend. Mit oder ohne hinteren Wimperkranz; wenn er fehlt — das ist bei festgewachsenen Formen der Fall — so wird er beim Uebergehen in den freischwimmenden Zustand ausgebildet (vgl. S. 234).
Angaben über die Teilung finden sich S. 151, über die anisogame Konjugation S. 192.
Die sehr zahlreichen Formen dieser Familie werden in 3 Unterfamilien geteilt.
1. Unterfamilie: Urceolarinae Stein.
Frei bewegliche, ungestielte Formen mit kreiselförmigem Körper, hinterer Wimperkranz dauernd vorhanden; er umschließt die Haftscheibe, welche mit einem pellicularen Haftring versehen ist.
Eine ziemlich große Zahl nahe verwandter Formen kommt als Ektokommensalen auf sehr zahlreichen Tieren des Süß- und Seewassers vor, auf Hydren, Spongien, Planarien, anderen Würmern, Mollusken, Echinodermen, Fischen, Amphibienlarven.
Gattung: Trichodina Ehrenberg.
Der Haftring ist aus zahlreichen Stücken gebildet, die dütenförmig ineinander stecken. T. pediculus Ehrbg. auf Hydraarten (Fig. 939), T. Steinii Clap. u. L. auf Planarien.
Gattung: Cyclochaeta Jackson.
Cyclochaeta Domerguei Wallengren.
|
1895.
|
Wallengren, in: Fysiografiska
Sällskapets Handlingar. Vol. 8. 1897.
|
|
1897.
|
—, in: Acta Universitatis Lundensis. Vol. 33.
|
Diese Art steht der verwandten Trichodina pediculus Ehrbg. (Fig. 939) sehr nahe, unterscheidet sich jedoch von ihr durch das Gattungsmerkmal, daß sie über dem hinteren Cilienkranz einen Kranz von steifen Cirren besitzt.
Es sind kleine Tiere von kurz-zylindrischer Gestalt, im kontrahierten Zustand ist das sogenannte Vorderende gewöhnlich gewölbt. Dies Vorderende ist von der adoralen Spirale umzogen, welche sich seitlich zum Vestibulum niedersenkt. In diesem vereinigen sich die Membranellen der Zone zu einer undulierenden Membran.
Das sogenannte Hinterende ist ebenfalls von einem Kranz von Membranellen umzogen; nach außen schließt sich der erwähnte Kranz von Cirren an dieselben an, und der Rand des hinteren Endes wird [S. 987]von dem sogenannten Velum gebildet. Es ist dies eine lamellenartige Verbreiterung des Randes.
Dies Hinterende wird auch als Saugscheibe bezeichnet, weil mit ihm die Urceolarinae an der Unterlage festhaften. Gegen die Mitte der Scheibe, von dem Membranellenkranz aus, ist die Scheibe fein radiär gestreift; es ist das sogenannte Ringband, welches aus zahlreichen Lamellen gebildet wird. Im Innern desselben liegt der Haftring, eine pelliculare Bildung, welche aus zahlreichen tütenförmig ineinander steckenden Stücken besteht.
Ekto- und Entoplasma sind deutlich unterschieden. Der Hauptkern ist band- oder wurstförmig, der einzige Nebenkern mäßig groß.
Die Tiere messen gewöhnlich in Höhe und Breite um 50 µ.
Die Vermehrung findet durch gewöhnliche Teilung statt. Konjugation und Cystenbildung sind unbekannt.
Die Art kommt auf zahlreichen Süßwasserfischen vor, wo sie mit der Haftscheibe auf der Unterlage sich anheften. Nach manchen Angaben verlassen sie aber nicht selten ihre Wirte, um frei im Wasser umherzuschwimmen. Ich konnte dies an den auf der Haut von Forellen gefundenen Exemplaren nicht bestätigen, solche starben im freien Wasser sehr bald ab. Es mag dies aber nur der Fall sein, wenn sie tief im Schleim der Haut gesessen haben.
Außer auf der Haut kommen sie besonders häufig auf den Kiemen der Fische vor. Ja, sie dringen bisweilen in ihre Harnblasen und Seitenkanäle ein. Ihr Vorkommen in Darm und Leibeshöhle ist nicht ganz sichergestellt.
Wenn sie auf der Haut massenhaft vorkommen, rufen sie sehr starke Schleimausscheidung und, wie es scheint, auch Zellwucherung hervor. Es bilden sich Hautverdickungen, welche ausschließlich aus Epithelzellen bestehen. Die Parasiten geraten dabei aber nicht zwischen die Zellen, sondern sitzen stets der Oberfläche auf (Fig. 940).
Fischbrut kann von ihnen getötet werden.
[S. 988]
2. Unterfamilie: Vorticellinae Bütschli.
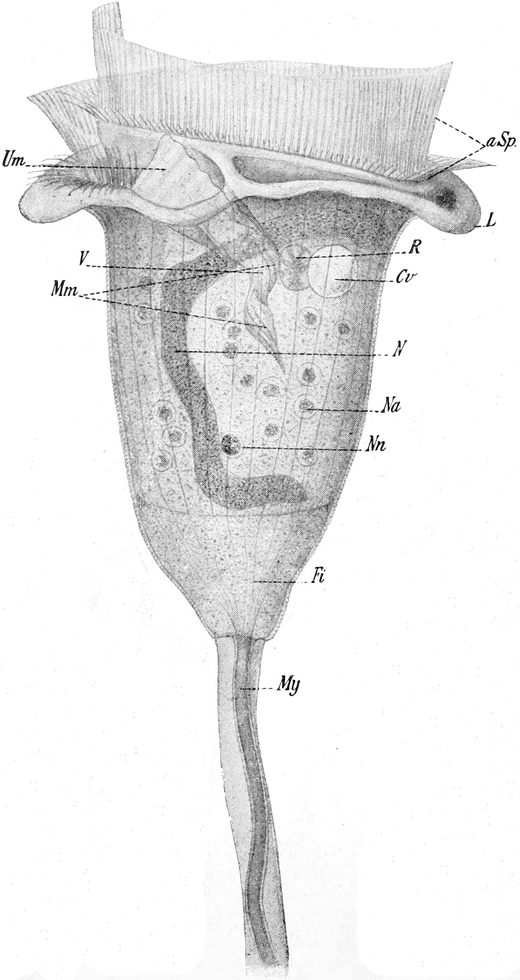
Bei den Vorticellinen tritt der hintere Wimperkranz nur mehr bei der Loslösung von der Unterlage vorübergehend auf; denn die Gattungen sind fast alle festgeheftet. Um die adorale Zone ist ein ringförmiger Wulst ausgebildet, der Peristomsaum, welcher bei der Kontraktion über dem Peristom und der adoralen Zone wie ein Sphinkter zusammengeklappt werden kann. Der Peristomsaum ist nach innen durch eine Rinne abgegrenzt, von welcher aus adorale Zone und Peristom in Form einer Scheibe oder Kuppe (Discus oder Wimperscheibe) in ausgestrecktem Zustand mehr oder weniger hoch sich über den Peristomsaum erheben können. Einige primitive Formen sind nicht festgeheftet und besitzen keine Gehäuse (Scyphidia Lachmann, Gerda Clap. u. Lachm.). Sonst sind alle Formen durch kontraktile oder starre Stiele oder durch Gehäusebildung ausgezeichnet. Wir unterscheiden außer den primitiven Scyphidinen 4 Legionen.
1. Legion.
Contractilia Bütschli.
Formen mit kontraktilem Stielfaden (vgl. hierzu S. 42).
Gattungen: Vorticella Ehrenbg. Einzellebende Formen, jedes Tier an einem besonderen Stiel.
V. microstoma Ehrbg., V. campanula Ehrbg., V. nebulifera Ehrbg. (vgl. Fig. 199, S. 193), V. monilata Tatem (Fig. 943).
[S. 989]
Telotrochidium Kent. Diese etwas unsichere Gattung enthält stiellose Vorticellinen, welche dauernd ungestielt sind, sich in diesem Zustand auch durch Teilung vermehren.
Als Parasiten sind Angehörige dieser Gattung allerdings von zuverlässigen Beobachtern noch nicht bezeichnet worden.
Jedoch veröffentlicht Lindner schon seit fast 20 Jahren unablässig Arbeiten, in denen er das Vorkommen von stiellosen Vorticellen bei allen möglichen Krankheiten, auch des Menschen, behauptet. Die mangelhaften Methoden dieses Autors und die anhaltende Unkenntnis desselben in bezug auf die moderne Protozoenliteratur machen seine Schriften undiskutabel. Braun (in: Die tierischen Parasiten des Menschen. 1895) hat seine Leistungen bereits hinreichend charakterisiert.
Sie wurden an dieser Stelle nur der Vollständigkeit wegen, und um Anfänger zu warnen, angeführt.
Carchesium Ehrenbg.
Sehr kontraktile Formen, sowohl Körper als auch baumartig verästelte Stiele kontraktil; Kolonien bildend, deren jede einen bei den großen Kolonien langen Hauptstiel besitzt; die sekundären Stiele sind meist sehr regelmäßig dichotom verästelt, die Muskelfäden hängen aber untereinander nicht zusammen, da bei der Teilung das eine Tier den Muskelfaden fortsetzt, während das andere einen neuen bildet. Es kann daher ein Teil der Kolonie bisweilen sich kontrahieren, ohne daß die ganze Kolonie sich beteiligt.
C. polypinum Ehrbg. bildet oft zentimetergroße Kolonien, welche im Süßwasser Pflanzen, Steine, Balken etc. überziehen (Fig. 941 u. 944, vgl. auch Fig. 110 S. 92, Fig. 151 S. 150).
[S. 990]
Zoothamnium Stein.
Ebenfalls sehr kontraktil und Kolonien bildend, bei denen jedoch zum Unterschied von voriger Gattung die Stielfäden zusammenhängen, da bei der Teilung sich auch der Stielfaden auf die beiden Sprößlinge teilt. Meist erstreckt sich aber der gemeinsame Stielfaden nicht bis zum Grund des Hauptfadens. Die ganze Kolonie muß sich einheitlich kontrahieren.
Z. arbuscula Ehrbg., meist auf Wasserpflanzen und Wassertieren.
2. Legion.
Acontractilia Bütschli.
Gestielte Formen ohne kontraktilen Stielfaden, welche ebenfalls einzeln oder in Kolonien vorkommen, die manchmal in Gallerte eingehüllt sind.
Gattungen:
Epistylis Ehrbg.
Kolonien ohne Gallerthülle; Tiere mit ausbreitungsfähigem Peristomsaum und meist geringelter Pellicula. Baumförmige Kolonien auf verzweigten, aber starren Stielen bildend.
E. plicatilis Ehrbg., E. umbellaria (L.) = Campanella umbellaria (L.) (Fig. 55, S. 45, Fig. 81, S. 65). [Campanella wird von manchen Autoren von Epistylis wegen der mächtigen Ausdehnung der mehrere Umgänge beschreibenden adoralen Spirale abgetrennt.]
Opercularia Ehrbg.
Ebenfalls ohne Gallerte, mit starren Stielen, die öfters quergeringelt sind. Tiere länglich mit verengtem Peristom, Peristomsaum nicht nach außen aufklappbar, Wimperscheibe auf einem langen dünnen Stiel.
O. nutans Ehrbg., O. articulata Ehrbg.
Ophrydium Ehrbg.
In Gallerte gehüllt, oft mehrere Centimeter (bis 10–15 cm) große, auch freischwimmende Kolonien bildend. Körper meist durch Zoochlorellen grün.
O. versatile Ehrbg. (Fig. 251 S. 247).
[S. 991]
3. Legion.
Cothurnina Bütschli.
Gestielt oder ungestielt, aber stets mit Gehäusen.
Gattung: Cothurnina Ehrbg.
Formen mit weiten, abstehenden (pseudo-)chitinigen Hüllen, welche glashell sind und mit dem Hinterende event. mit einem kurzen Stiel angewachsen sind.
C. operculata Gruber kann ihr Gehäuse verschließen, da es einen Deckel besitzt, den das Tier bei der Kontraktion mitzieht.
Vaginicola Ehrbg. hat ähnliche Gehäuse, welche aber mit der ganzen Länge angewachsen sind. V. decumbens Ehrbg.
3. Unterfamilie: Lagenophryinae Bütschli.
Gehäuse stets vorhanden, ähnlich dem von Vaginicola, die Mündung ist verengt und mit einer Doppelklappe versehen, welche bei der Kontraktion den Verschluß besorgt. Die Tiere füllen den Innenraum der Schale nicht aus und befestigen sich mit dem Peristomsaum am Mündungsrand. Sie können daher ihren Körper nicht, wie die Cothurninen, aus der Mündung hervorstrecken, sondern tun dies nur mit ihrer langgestielten Peristomscheibe. Einzige Gattung Lagenophrys Stein (L. ampulla St.).
II. Klasse.
Suctoria. Bütschli.
Die Suctorien oder Sauginfusorien (auch Acineten genannt) besitzen im erwachsenen Zustand keine Cilien, auch keine anderen Bewegungsorganellen. Sie sind daher zu aktiver Bewegung unfähig, die meisten von ihnen sind sogar an die Unterlage festgewachsen oder durch einen Stiel mit derselben verbunden.
[S. 992]
Der Körper ist mit einer Pellicula umhüllt; manchmal kommt auch Gehäusebildung vor.
Die Art der Nahrungsaufnahme ist eine ganz andere als bei den Ciliaten. Eine Mundöffnung fehlt, statt dessen sind die sog. Saugtentakel ausgebildet. Es sind dies feine Röhrchen mit kontraktilen Wandungen (Fig. 945 a). Mittels derselben fangen und töten sie in einer noch unaufgeklärten Weise ihre Beutetiere, meist Infusorien. [S. 993]Sodann saugen sie dieselben aus, wobei man die Nahrung durch die Röhrchen hindurchströmen sieht. Bei manchen Formen sind durch Arbeitsteilung die Tentakel zu verschiedenen Funktionen differenziert.
Sonst gleichen die Suctorien den Ciliaten in den meisten Eigenschaften der Organisation. Sie besitzen eine oder mehrere kontraktile Vakuolen. Der Hauptkern kann sehr verschiedene Formen besitzen, seine Struktur ist meist eine sehr dichte (Fig. 946 A und B). Ein Nebenkern ist nicht bei allen Gattungen nachgewiesen; wir haben aber alles Recht, anzunehmen, daß er allgemein verbreitet ist.
Die Fortpflanzung ist bei den Suctorien sehr charakteristisch und eigenartig. Selten ist gleichhälftige Teilung, und auch dann weichen die gleich großen bei der Teilung entstehenden Sprößlinge meist in der Organisation voneinander ab.
Die gewöhnlichste Vermehrungsform ist jedoch die Knospung, welche sowohl eine einfache wie eine multiple, eine äußere wie eine innere sein kann.
Bei der äußeren Knospung (Fig. 945 b) heben sich die einzelnen Sprößlinge weit über die Oberfläche des Mutterkörpers empor. Bei der inneren Knospung dagegen, welche bei weitem der häufigste Vermehrungsmodus der Suctorien ist, bildet sich an einer Stelle des Körpers von der Oberfläche aus eine Einsenkung (Fig. 946 A), dieselbe dringt allmählich tiefer und schneidet dabei geradezu ein Stück aus dem Plasmaleibe des Tiers heraus (Fig. 946 B, C, D).
Diese Plasmaportion verwandelt sich allmählich in den Schwärmer, indem eine kontraktile Vakuole und Cilien in verschiedener Anordnung auftreten, und schließlich ein Fortsatz des Hauptkerns in die Knospe hineinwächst (Fig. 946 C).
Die Anordnung der Cilien ist verschieden, doch folgt sie meist dem Typus der Peritrichen.
Die Knospen verlassen das Muttertier, schwärmen eine Zeitlang umher, um sich sodann niederzulassen, die Cilien zu verlieren, Stiel, Tentakel usw. auszubilden und ihr Wachstum zu beginnen.
Während die meisten Suctorien auf lebenden oder unbelebten Objekten im Wasser festgewachsen sind, wobei die auf Tieren oder Pflanzen wohnenden Formen meist nicht einmal als Ektokommensalen zu bezeichnen sind, gibt es auch zwei Gattungen, welche parasitische Formen enthalten.
1. Familie: Hypocomidae Bütschli.
Primitive, freibewegliche Gattung mit dauernd bewimperter Bauchfläche und einem kurzen Saugtentakel.
Gattung: Hypocoma Gruber.
2. Familie: Urnulidae Bütschli.
Klein, festsitzend, mit oder ohne Gehäuse; ohne Wimpern. Schwärmer holotrich. Erwachsene Tiere mit einem oder wenig Tentakeln.
Gattungen: Rhyncheta Zenker (R. cyclopum Zkr., Fig. 947, auf Cyclops coronatus Claus).
Urnula Clap. u. Lachm.
[S. 994]
3. Familie: Metacinetidae Bütschli.
Gehäusebildende Formen, Gehäuse gestielt und am apikalen Ende mit strahlig angeordneten Spalten zum Durchtritt der Tentakel.
Gattung: Metacineta Bütschli (M. mystacina Ehrbg. auf Algen).
4. Familie: Podophryidae Bütschli.
Gestielte oder ungestielte, gehäuselose Formen mit zahlreichen Tentakeln. Vermehrung durch Teilung, einfache und multiple Knospung.
Gattung: Sphaerophrya Clap. u. L.
Sphaerophrya pusilla Cl. u. L.
1858–1861 Claparède und Lachmann, in: Mém. Inst. Genevoise. Vol. 5–7.
Der Körper der Art ist kuglig, von der ganzen Körperoberfläche ragen kürzere und längere Saugtentakel hervor, welche geknöpft sind (Fig. 949 B).
Solange allerdings die Tiere sich in ihren Wirten aufhalten, sind sie tentakellos. Beim Auskriechen aus denselben sprossen sofort die Tentakel hervor.
Das Plasma der Art ist fein granuliert. Der Hauptkern ist kuglig. Es ist eine kontraktile Vakuole vorhanden (Fig. 949).
Der Durchmessser der Tiere beträgt 20 bis 40 µ.
Die Vermehrung erfolgt durch gleichhälftige oder etwas ungleiche Teilung (Fig. 949 A) oder durch Knospenbildung. Bei der letzteren entstehen Schwärmer, welche sich mit Hilfe eines ringförmigen Ciliengürtels lebhaft zu bewegen vermögen (Fig. 949 C).
Sph. pusilla schmarotzt in zahlreichen Hypotrichen, in Paramaecium, Nassula usw.
Die Art und ihre nächsten Verwandten beanspruchen ein besonderes Interesse dadurch, daß sie die einzigen parasitischen Protozoen [S. 995]sind, deren regelmäßiger Parasitismus in anderen Protozoen einigermaßen genau studiert wurde.
Das Leben einer solchen Suctorie läuft etwa folgendermaßen ab. Als Schwärmer mit Saugtentakeln und Cilienkranz heftet sich das junge Tier an ein Paramaecium an; es verliert die Cilien und bald auch die Tentakel und sinkt allmählich wie in eine oberflächliche Grube des Ciliatenkörpers ein; die Grube vertieft sich, während der Parasit heranwächst, immer mehr, bis derselbe in einer tiefen Höhle eingeschlossen ist, welche nur durch ein kleines Loch, die sog. Geburtsöffnung, mit der Außenwelt kommuniziert. Dieselbe kann sich manchmal auch vollständig schließen (?).
Im Wirt beginnen sich die Parasiten durch Zweiteilung lebhaft zu vermehren, so daß es deren schließlich oft eine große Zahl ist: 50 und mehr. Die „Bruthöhle“ soll in den meisten Fällen auch dann noch nachweisbar sein; sie hat sich bedeutend vergrößert, und die Geburtsöffnung ist zu einem länglichen Spalt geworden (vgl. Fig. 948 a).
Man findet die Tiere in ganz verschiedenen Größen in der Vermehrung begriffen. Die herangewachsenen Tiere vermehren sich im Wirt anfangs durch gleichhälftige Teilung, wobei beide Tochtertiere zunächst ganz gleichgeartet bleiben. Durch die rasch aufeinanderfolgenden Teilungen werden die Tiere bald kleiner, sie beginnen sich dann durch einfache Knospung zu vermehren, wobei die Knospe Cilien bildet und als Schwärmer durch die Geburtsöffnung den Wirt verläßt, um einen neuen Wirt aufzusuchen.
Der Vermehrungsprozeß schreitet auch fort, wenn die Tiere zufällig aus dem Wirt herausgeraten. In diesem Fall entwickeln sich schon gleichzeitig die Tentakeln (Fig. 949 C).
Gattung: Podophrya Bütschli.
Kuglig, mit allseitigen geknöpften Tentakeln, welche eine bedeutende Länge erreichen können. Mit Stiel von wechselnden Dimensionen, Vermehrung durch fast gleichhälftige Teilung, wobei das vordere Teiltier zu dem Schwärmer wird; letzterer mit einem breiten Wimpergürtel versehen. Süßwasser.
P. fixa Ehrbg.
Gattung: Ephelota Wright.
Marine Formen mit langen, spitzen Greiftentakeln und kürzeren, geknöpften Saugtentakeln. Vermehren sich durch freie, meist multiple Knospung.
E. gemmipara Hertw.
5. Familie: Acinetidae Bütschli.
Gestielte oder ungestielte Formen mit Gehäuse, dessen Mündung weit und einfach ist. Die zahlreichen Tentakel sind alle geknöpft. Fortpflanzung erfolgt durch einfache oder multiple, innere (d. h. in Bruträumen vor sich gehende) Knospung. Schwärmer peritrich.
Gattungen: Tocophrya Bütschli (T. quadripartita Cl. u. L., Fig. 946).
Acineta Ehrenbg.
[S. 996]
6. Familie: Dendrosomidae Bütschli.
Ungestielte, gehäuselose Formen, mit zahlreichen gleichen Tentakeln, welche geknöpft und in Büscheln angeordnet sind. Fortpflanzung durch innere Knospen, Schwärmer peritrich.
Gattung: Dendrosoma Ehrenbg. D. radians Ehrenbg., auf der Unterlage kriechend und zahlreiche Stämmchen in die Höhe sendend (Fig. 950).
7. Familie: Dendrocometidae Stein.
Flache Formen mit zahlreichen allseitig verteilten Tentakeln oder mit Armen, an deren Enden die Saugröhren sich befinden. Fortpflanzung durch Bildung einer inneren Knospe, Schwärmer peritrich.
Gattung: Dendrocometes Stein. D. paradoxus St. auf den Kiemenblättern von Gammarus pulex (Fig. 951).
7. Familie: Ophryodendridae Stein.
Marine Formen, gestielt, mit zahlreichen kurzen Tentakeln, die auf rüsselartigen Fortsätzen konzentriert sind. Bei allen Arten scheinen sog. vermiforme oder lageniforme Individuen vorzukommen, welche tentakel- und rüssellos sind.
Fortpflanzung durch innere Knospen, Schwärmer peritrich.
Gattung: Ophryodendron Clap. u. Lachm.
[S. 997]
Schriften über Ciliophora.
(Die ältere Literatur findet sich, soweit sie wichtig ist, vollständig bei Bütschli. Von neueren Schriften sind nur die zur Orientierung geeignetsten hier angeführt.)
|
1562.
|
Bel-George, S., u. Couret, M.,
Balantidium coli infection in man. In: Journ. of infect. dis. Vol. 7.
1910. No. 5. p. 609. 4 Taf.
|
|
1563.
|
Bezzenberger, O., Infusorien aus asiatischen
Anuren. In: Arch. f. Protistenk. Vol. 3. 1904. p. 138.
|
|
1564.
|
Blochmann, R., Die mikroskopische Tierwelt des
Süßwassers. 2. Aufl. 1897.
|
|
1565.
|
Brauer, A., Bursaria truncatella. In: Jen.
Zeitschr. f. Naturw. Vol. 19. 1896. p. 489.
|
|
1566.
|
Brumpt, E., Démonstration du rôle pathogène du
Balantidium coli. Enkystement et conjugaison de cet Infusoire. In:
Compt. rend. Soc. Biol. Vol. 67. 1909. p. 103.
|
|
1567.
|
Buschkiel, A. L., Beiträge zur Kenntnis des
Ichthyophthirius multifiliis Fouquet. In: Arch. f. Protistenk. Vol.
21. 1910. H. 1. p. 61–102.
|
|
1568.
|
Bütschli, O., Studien über die ersten
Entwicklungsvorgänge der Eizelle, die Zellteilung und die
Konjugation. In: Abh. Senckenb. naturf. Ges. Frankfurt. Vol. 10.
1876. p. 213.
|
|
1569.
|
— Protozoa. In: Bronns
Klassen und Ordnungen des Tierreichs. Vol. 1. 1887–1889.
|
|
1570.
|
Calkins, G. N., Studies on the life-history of
Protozoa. In: Arch. f. Entw.-Mech. Vol. 15. 1902. p. 139.
|
|
1571.
|
— and Cull, The conjugation of Paramaccium
aurelia. In: Arch. f. Protistenk. Vol. 10. 1907. p. 375.
|
|
1572.
|
Cépède, C., Recherches sur les Infusoires
astomes. Anatomie, biologie, éthologie parasitaire, systématique. In:
Arch. Zool. expér. gén. (5). Vol. 3. 1910. p. 341.
|
|
1573.
|
Cohnheim, P., Infusorien bei gut- und bösartigen
Magenleiden, nebst Bemerkungen über die sog. Infusorienenteritis. In:
Deutsche med. Wochenschr. Vol. 35. 1909. p. 92.
|
|
1574.
|
Collin, B., La conjugaison d’Anoplophrya
branchiarum (Stein). In: Arch. Zool. expér. gén. Sér. 5. Vol. 1. 1909.
p. 345.
|
|
1575.
|
— Sur la symétrie et l’orientation morphologique des
embryons d’acinétiens. In: Arch. Zool. expér. (5) Vol. 2. 1909.
p. XXXIV.
|
|
1576.
|
Delage, et Hérouard, Zoologie concrète.
Vol. 1. 1896.
|
|
1577.
|
Dobell, C. C., Physiological degeneration in
Opalina. In: Quart. Journ. Micr. Sci. Vol. 51. 1907. p. 633.
|
|
1578.
|
— Some observations on the Infusoria parasitic in
Cephalopoda. In: Quart. Journ. Micr. Sci. Vol. 53. 1909. p. 183.
|
|
1579.
|
Enriques, P., La coniugazione ed il
differenziamento sessuale negli Infusori. In: Arch. f. Protistenk. Vol.
9. 1907. p. 195.
|
|
1580.
|
— Die Konjugation und sexuelle Differenzierung der
Infusorien. Ebenda. Vol. 12. 1908. p. 213.
|
|
1581.
|
— Sulla morfologia e sistematica del genere Colpoda.
In: Arch. Zool. expér. gén. (4) Vol. 8. 1908. Notes p. I–XV.
|
|
1582.
|
— Di un nuovo Infusorio oligotrico (Turbilina
instabilis n. g. n. sp.) e suo significato per la filogenia dei
Peritrichi. In: Atti Accad. Lincei Rend. (5) Vol. 17. 1908. Sem. 1.
p. 224.
|
|
1583.
|
Entz, G., Studien über Organisation und Biologie
der Tintinniden. In: Arch. f. Protistenk. Vol. 15. 1909. H. 1 u. 2.
|
|
1584.
|
Eyferth, B., Einfachste Lebensformen des Tier-
und Pflanzenreichs. 4. Aufl. Von W. Schoenichen und A. Kalberlah. (Recht
brauchbar für die Süßwasserinfusorien, ebenso für die Systematik der
anderen im Süßwasser vorkommenden Protozoenabteilungen.)
|
|
1585.
|
Fauré-Fremiet, E., Sur un cas de Symbiose
présenté par un infusoire cilié. (Trichodinopsis paradoxa in Cyclostoma
elegans.) In: Compt. rend. Soc. Biol. Vol. 67. 1909. p. 113.
|
|
1586.
|
Filipjev, J., Zur Organisation von Tocophrya
quadripartita Cl. L. In: Arch. f. Protistenk. Vol. 21. 1910. H. 2. p.
117.
|
|
1587.
|
Gonder, A., Beiträge zur Kenntnis der
Kernverhältnisse bei den in Cephalopoden schmarotzenden Infusorien. In:
Arch. f. Protistenk. Vol. 5. 1905. p. 240.
|
|
1588.
|
Gruber, A., Weitere Beobachtungen an
vielkernigen Infusorien. In: Ber. naturf. Ges. Freiburg. Vol. S. 1887.
|
|
1589.
|
Hamburger, Cl., Zur Kenntnis von Stentor
coeruleus etc. In: Zeitschr. f. wiss. Zool. Vol. 90. 1908. p. 423.
|
|
1590.
|
— Die Konjugation von Paramaecium bursaria. In: Arch.
f. Protistenk. Vol. 4. 1904. p. 199.
|
|
1591.
|
Hertwig, R., Ueber die Konjugation der
Infusorien. In: Abh. bayr. Ak. d. Wiss. II. Kl. Vol. 17. 1889. p. 151.
|
|
[S. 998]
1592.
|
— Ueber Befruchtung und Konjugation.
In: Verh. d. Deutschen Zool. Ges. 1892. p. 95.
|
|
1593.
|
Hickson and Wadsworth, Dendrocometes
paradoxus. In: Quart. Journ. Micr. Sci. Vol. 45. 1904. p. 325.
|
|
1594.
|
Hickson, Sydney S., Dendrosoma radians,
Ehrenberg. In: Quart. Journ. Micr. Sci. N. S. Vol. 54. 1909. p. 141.
|
|
1595.
|
Jennings, H., Heredity, variation and evolution
in Protozoa. I. In: Journ. exp. Zool. Vol. 5. 1908. p. 577. II. In: Proc.
Amer. Philos. Soc. Vol. 47. 1908. p. 393.
|
|
1596.
|
Johnson, P., A contribution to the morphology
and biology of the Stentors. In: Journ. Morph. Vol. 8. 1893. p. 467.
|
|
1597.
|
Joseph, Beobachtungen über die Kernverhältnisse
von Loxodes rostrum. In: Arch. f. Protistenk. Vol. 8. 1907. p. 344.
|
|
1598.
|
Kent, S., A Manual of Infusoria. 1880–1882.
|
|
1599.
|
Khainsky, S., Zur Morphologie und Physiologie
einiger Infusorien (Param. caud.) auf Grund einer neuen histologischen
Methode. In: Arch. f. Protistenk. Vol. 21. 1910. H. 1. p. 1.
|
|
1600.
|
Kiernick, E., Chilodon hexastichus n. sp., ein
auf Süßwasserfischen parasitierendes Infusorium, nebst Bemerkungen über
Vakuolenhautbildung und Zellteilung. In: Bull. intern. Acad. Sc. Cracovie.
1909. Cl. Sc. math. nat. Sem 1. p. 75.
|
|
1601.
|
Lebedew, W., Ueber Trachelocerca phoenicopterus,
ein marines Infusor. In: Arch. f. Protistenk. Vol. 13. 1908. p. 70.
|
|
1602.
|
Léger et Duboscq, Notes sur les
Infusoires endoparasites. I–III. In: Arch. Zool. expér. et gén. Notes et
Revues. Sér. 4. Vol. 2. No. 6. p. 337.
|
|
1603.
|
von Linden, M., Tentakelartige Fortsätze an
Opalina dimidiata. In: Biolog. Centralbl. Vol. 29. 1909. No. 21. p. 648.
|
|
1604.
|
Manson, Patrick, and Sambon, L. W., A
case of intestinal pseudoparasitism, due to Chilodon uncinatus (Blochm.).
In: Lancet. Vol. 176. 1909. p. 823.
|
|
1605.
|
Martin, Some observations on Acinetaria. I–III.
In: Quart. Journ. Micr. Sci. Vol. 53. 1909. p. 351, 378 u. 629.
|
|
1606.
|
Maupas, Recherches expérimentales sur la
multiplication des Infusoires ciliés. In: Arch. Zool. expér. gén. Sér. 2.
Vol. 6. 1888. p. 165.
|
|
1607.
|
— Le rajeunissement karyogamique des Ciliés. In: Arch.
Zool. expér. gén. Sér. 2. Vol. 7. 1889. p. 149.
|
|
1608.
|
Metcalf, M. M., Opalina. In: Arch. f. Protistenk.
Vol. 13. 1909. p. 195.
|
|
1609.
|
Neresheimer, Die Fortpflanzung der Opalinen. In:
Arch. f. Protistenk. Suppl. 1. 1907. p. 1.
|
|
1610.
|
— Der Zeugungskreis des Ichthyophthirius. In: Ber. d.
Kgl. bayr. biol. Versuchsstation in München. Vol. 1. 1908. p. 165.
|
|
1611.
|
Popoff, M., Die Gametenbildung und die
Konjugation von Carchesium polypinum. In: Zeitschr. f. wiss. Zool. Vol.
89. 1908. H. 3.
|
|
1612.
|
Prantl, K., Die Konjugation von Didinium nasutum.
In: Arch. f. Protistenk. Vol. 7. 1906. p. 229.
|
|
1613.
|
Prowazek, S. v., Protozoenstudien. I–III. In:
Arb. aus d. Zool. Inst. d. Univ. Wien. Vol. 11–14. 1899–1903.
|
|
1614.
|
Roth, W., Die parasitischen Chilodontiden.
Chilodon cyprini Moroff und Chilodon hexastichus Kiernik. In: Wochenschr.
Aquar. Terrarienkde. Jahrg. 7. 1910. p. 73, 89.
|
|
1615.
|
Sand, R., Étude monographique sur le groupe des
Infusoires tentaculifères. Bruxelles 1901.
|
|
1616.
|
Selenew, S. F., Zur Biologie meines Infusoriums:
seine Anwesenheit im Prostatasekret. In: Centralbl. f. Bakt. Abt. I.
Orig. Vol. 55. 1910. p. 496.
|
|
1617.
|
Schewiakow, W., Infusoria aspirotricha. In: Mem.
Acad. Sci. Pétersbourg. Sér. 8. Vol. 4. 1896. No. 1.
|
|
1618.
|
Schröder, O., Beitrag zur Kenntnis von Stentor
coeruleus und Stentor Roeselii. In: Arch. f. Protistenk. Vol. 8. 1906.
|
|
1619.
|
— Beiträge zur Kenntnis von Epistylis plicatilis.
Ebenda. Vol. 7. 1906. p. 173.
|
|
1620.
|
— Beiträge zur Kenntnis von Vorticella monilata.
Ebenda. p. 395.
|
|
1621.
|
Schubotz, Pycnothrix monocystoides. In:
Denkschr. der Med.-naturw. Ges. Jena. Vol. 13. 1908.
|
|
1622.
|
Stein, F., Der Organismus der Infusionstiere.
Vol. 2. 1867.
|
|
1623.
|
Stevens, N. M., Further studies on the ciliate
Infusoria Licnophora and Boveria. In: Arch. f. Protistenk. Vol. 3. 1903.
p. 1.
|
|
1624.
|
Versluys, Die Konjugation der Infusorien. In:
Biol. Centralbl. Vol. 26. 1906.
|
|
1625.
|
Walker, Linwood, E., Sporulation in the
parasitic ciliata. In: Arch. f. Protistenk. Vol. 17. 1909. H. 3.
|
[S. 999]
Autorenregister.
(Im Autorenregister sind diejenigen Seitenzahlen fett gedruckt, welche auf eine Stelle verweisen, an der ein vollständiges Literaturzitat gegeben ist.)
[S. 1009]
Sachregister.
(Im Sachregister sind diejenigen Zahlen fett gedruckt, welche auf eine Stelle verweisen, an der eine ausführliche Beschreibung einer Protozoengattung oder -Art zu finden ist, während ein Sternchen (*) denjenigen Zahlen beigefügt ist, welche die Seite angeben, auf welcher der betreffende Organismus durch eine Figur abgebildet ist.)